研究论文

不同发育阶段牦牛复胃组织中线粒体DNA拷贝数变化

  • 杨露 ,
  • 吴若吉 ,
  • 袁小迪 ,
  • 李飙 , * ,
  • 江明锋 , *
展开
  • 西南民族大学畜牧兽医学院,成都 610041
*李飙,讲师,硕士生导师,E-mail: ;
江明锋,教授,博士生导师,E-mail:

杨露(1999—),女,四川遂宁人,硕士研究生,研究方向为畜禽分子生物学与育种。E-mail:

Copy editor: 菅景颖

收稿日期: 2024-10-28

  网络出版日期: 2025-06-12

基金资助

四川省科技厅科技援青项目(2023YFQ0076)

西南民族大学中央高校基本科研业务费专项资金(ZYN2022110)

那曲市科技局重点研发项目(NQKJ-2023-07)

Mitochondrial DNA Copy Number Changes in Complex Stomach Tissues of Yaks at Different Developmental Stages

  • YANG Lu ,
  • WU Ruoji ,
  • YUAN Xiaodi ,
  • LI Biao , * ,
  • JIANG Mingfeng , *
Expand
  • College of Animal and Veterinary Sciences, Southwest Minzu University, Chengdu 610041, China
* LI Biao, lecturer, E-mail: ;
JIANG Mingfeng, professor, E-mail:

Received date: 2024-10-28

  Online published: 2025-06-12

摘要

本试验旨在研究不同年龄段牦牛复胃组织线粒体DNA(mtDNA)拷贝数的变化,并对与mtDNA复制转录相关基因的表达量进行测定,以探寻牦牛瘤胃、网胃、瓣胃以及皱胃在发育过程中的能量代谢调整规律。试验采用定量PCR(qPCR)测定牦牛5个关键发育阶段[0日龄(新生)、20日龄、60日龄、15月龄和3岁龄]复胃(瘤胃、网胃、瓣胃和皱胃)组织中的mtDNA拷贝数,测定与mtDNA复制转录相关基因的表达量,并对相关基因的表达量与mtDNA拷贝数进行相关分析。结果显示:1)0和60日龄时,皱胃组织中mtDNA拷贝数极显著高于3个前胃(瘤胃、网胃和瓣胃)组织(P<0.01),3个前胃组织之间则无显著差异(P>0.05);20日龄时,瘤胃组织中mtDNA拷贝数最低,显著低于网胃和皱胃组织(P<0.05);15月龄时,网胃组织中mtDNA拷贝数最高,显著高于瘤胃和瓣胃组织(P<0.05),极显著高于皱胃组织(P<0.01);3岁龄时,瘤胃组织中mtDNA拷贝数显著高于皱胃组织(P<0.05)。2)随着前胃的生长发育,mtDNA拷贝数逐渐增加,在15月龄时,3个前胃组织中mtDNA拷贝数都达到最高值,而后呈下降趋势;而在皱胃组织中,mtDNA拷贝数随年龄的增加总体呈下降趋势。3)与线粒体增殖相关的核编码基因过氧化物酶体增殖激活物受体γ辅激活因子-1α(PGC-1α)的表达量与mtDNA拷贝数呈显著正相关[相关系数(r)=0.500,P<0.05]。4)线粒体编码基因细胞色素c氧化酶亚基Ⅰ(COX1)的表达量与mtDNA拷贝数呈显著正相关(r=0.473,P<0.05)。综上可知,新生牦牛皱胃组织中mtDNA拷贝数最高,侧面反映出新生牦牛主要依靠皱胃进行营养物质的消化吸收;牦牛前胃(瘤胃、网胃和瓣胃)发育过程中,mtDNA拷贝数总体呈上升的趋势,在15月龄左右3个前胃组织中mtDNA拷贝数都达到最大值,而在皱胃发育过程中,mtDNA拷贝数总体呈下降的趋势,侧面反映出在15月龄左右瘤胃逐渐取代皱胃成为营养物质消化吸收的主要场所;在牦牛复胃生长发育过程中,PGC-1α和COX1是调控复胃组织中mtDNA拷贝数的关键因子。

本文引用格式

杨露 , 吴若吉 , 袁小迪 , 李飙 , 江明锋 . 不同发育阶段牦牛复胃组织中线粒体DNA拷贝数变化[J]. 动物营养学报, 2025 , 37(6) : 4052 -4062 . DOI: 10.12418/CJAN2025.332

Abstract

This experiment was conducted to investigate the changes in mitochondrial DNA (mtDNA) copy number in complex stomach tissues of yaks at different ages, and to measure the expression levels of genes related to mtDNA replication and transcription, in order to explore the regulation rule of energy metabolism during the development of complex stomach in yaks. The mtDNA copy number of complex stomach (rumen, reticulum, omasum and abomasum) of yaks at five key developmental stages [0 day of age (newborn), 20 days of age, 60 days of age, 15 months of age and 3 years of age] was determined by quantitative PCR (qPCR), the expression levels of genes associated with mtDNA replicative transcription were determined and the correlation analysis were performed with mtDNA copy number. The results showed as follows: 1) the mtDNA copy number of the abomasum tissue was extremely significantly higher than that of the rumen, reticulum and omasum tissues at 0 and 60 days of age (P<0.01); at 20 days of age, the mtDNA copy number of the rumen tissue was the lowest, which was significantly lower than that of the reticulum and abomasum tissues (P<0.05); at 15 months of age, the mtDNA copy number of the reticulum tissue was the highest, which was significantly higher than that of the rumen and omasum tissues (P<0.05), and extremely significantly higher than that of the abomasum tissue (P<0.01); at 3 years of age, the mtDNA copy number of the rumen tissue was significantly higher than that of the abomasum tissue (P<0.05). 2) With the growth and development of the anterior stomach, the mtDNA copy number increased gradually. At 15 months of age, the mtDNA copy number of rumen, reticulum and omasum tissues reached the highest value, and then showed a decreasing trend; in contrast, in abomasum tissue, there was an overall decreasing trend in mtDNA copy number with age. 3) The expression level of the nuclear-encoded gene peroxisome proliferator-activator receptor gamma coactivator-1α (PGC-1α), which is associated with mitochondrial proliferation, was significantly and positively correlated with the mtDNA copy number [correlation coefficient (r)=0.500, P<0.05)]. 4) The expression level of the mitochondria-encoding gene cytochrome c oxidase subunit 1 (COX1) was significantly and positively correlated with the mtDNA copy number (r=0.473, P<0.05). In summary, the mtDNA copy number in newborn yak’s abomasum is the highest, which reflects that newborn yak mainly relies on abomasum for nutrient digestion and absorption; during the development of the anterior stomach (rumen, reticulum and omasum) of yaks, the mtDNA copy number generally increased, reaching the maximum value for all three stomachs around 15 months of age. In contrast, the mtDNA copy number in the rumen tissue of yaks decreased during its development. This indicates that, at 15 months of age, the rumen gradually replaces the abomasum as the main site for nutrient digestion and absorption. PGC-1α and COX1 may be key factors regulating mtDNA copy number in complex stomach tissues during the growth and development of complex stomach in yaks.

线粒体是电子传递链(ETC)的所在地,是真核生物进行有氧代谢的主要部位。通过氧化磷酸化产生超过90%的细胞ATP,是能量代谢的中心[1]。通常情况下,细胞中的线粒体数量取决于该细胞的代谢水平,代谢活动越旺盛的细胞内线粒体数量越多[2]。在每个线粒体中存在多个线粒体DNA(mtDNA)的拷贝。mtDNA拥有独立于核基因的复制和转录系统,其复制和转录严格受到细胞核和线粒体自身的双重控制[3-7]。mtDNA拷贝数可反映细胞中线粒体的含量、线粒体的功能状态、组织的氧化和ATP的合成能力,一般来说,mtDNA拷贝数越多,细胞合成ATP的能力越强[3,8-9]。mtDNA拷贝数已经在人类[10-11]、大鼠[12]、小鼠[13]和猪[14]的组织中得到了广泛的研究,并且已被证明在不同组织中存在很大差异。并且mtDNA拷贝数变化已经在越来越多的线粒体遗传缺陷和癌变组织中表现[15]。反刍动物对营养物质的消化吸收主要发生在胃肠道[16]。新生犊牛的皱胃已有一定程度的发育,犊牛出生后的2~3周内,皱胃是最主要的营养物质消化场所。当反刍动物由哺乳阶段进入采食饲草阶段后,前胃(瘤胃、网胃、瓣胃)逐渐发育,在18月龄左右基本发育成熟。成年牦牛瘤胃是营养物质消化吸收的主要场所[17],而皱胃主要是对前胃消化的较小食糜进一步消化吸收[18]。牦牛复胃不同部位在不同阶段的发育情况和生理功能存在差异,能量代谢情况也就有所不同。我们推测,反刍动物的复胃在发育过程中也存在一种与能量代谢相关的调节机制来适应复胃结构和功能的变化。
牦牛是高寒地区特有的草食性反刍家畜,对高海拔低氧的高原环境具有极强的适应能力。目前对mtDNA拷贝数的研究多集中在人、大鼠、小鼠和猪,而牦牛相关研究较少。近年来,已有研究对牦牛复胃组织进行形态鉴定和生理功能研究,但这些研究主要集中在复胃组织形态、免疫等方面,对分子水平的研究较少。目前关于牦牛皱胃发育分子机理尚不清楚,需进一步研究。迄今为止,尚未有系统的研究来检测牦牛发育过程复胃组织的mtDNA拷贝数变化。鉴于此,本研究采用定量PCR(qPCR)法对牦牛5个生长发育关键阶段[0日龄(新生)、20日龄、60日龄、15月龄和3岁龄]的复胃组织(瘤胃、网胃、瓣胃和皱胃)的mtDNA拷贝数进行定量分析,测定与mtDNA复制相关的基因的表达量,并与mtDNA拷贝数进行相关分析,获得不同年龄段的牦牛复胃组织详细的mtDNA变化数据,以期为今后阐明牦牛复胃发育和营养代谢的调控机制提供更多的理论依据和重要参考,为提高牦牛的生产性能提供理论参考与新思路。

1 材料与方法

1.1 伦理声明

本研究所有活体动物的处理程序均经过西南民族大学动物保护与使用委员会的严格审查和批准,所有试验方案均已获得西南民族大学机构动物护理和使用委员会的批准(许可证号:2020-07-02-11)。

1.2 样品采集

动物样本采自四川省阿坝藏族羌族自治州红原县,牦牛培育采用自然放牧方式,犊牛出生后随母哺乳,自由采食。随机选取0日龄、20日龄、60日龄、15月龄和3岁龄的体重相近的健康牦牛各3头。按以下程序屠宰牦牛:放血前电休克,昏迷时颈部放血并快速解剖,清空胃内容物后用生理盐水洗涤胃组织,用灭菌剪刀取瘤胃、网胃、瓣胃和皱胃上皮及皮下组织,剪成1.0 cm×1.0 cm×0.5 cm的组织块,用DEPC水冲洗后迅速放入冻存管内,并立即投入液氮中保存。

1.3 DNA和RNA提取及逆转录

使用血液/细胞/组织基因组DNA提取试剂盒[DP304-02,天根生化科技(北京)有限公司]提取组织总DNA,采用TRIzol法提取组织的总RNA。1%琼脂糖凝胶电泳检测RNA样品的完整性,超微量核酸蛋白测定仪检测DNA、RNA的浓度和纯度。使用PrimeScriptTM RT Reagent Kit with gDNA Eraser(Perfect Real Time)反转录试剂盒(RR047A,TaKaRa,日本)反转录cDNA,方法按操作说明进行。

1.4 PCR检测mtDNA有无片段缺失

根据牦牛mtDNA序列(NC_006380.3),设计5对引物覆盖全部的mtDNA序列,其序列如表1所示,扩增片段长度为4.5~5.5 kb。按照TaKaRa LA Taq® Hot Start Version(RR042A,TaKaRa,日本)进行线粒体的全序列扩增,方法按操作说明进行。0.8%琼脂糖凝胶电泳检测DNA样品的完整性。
表1 PCR引物信息

Table 1 Primer information for PCR

序号
Number
引物序列
Primer sequence (5’—3’)
产物大小
Product size/bp
起始位点
Initiation site
终止位点
Termination site
1# F:TCCATAAATGTAAAGAGCCTCACCA 3 741 18 42
R:TGGGCCTACGACATTTGGAC 3 758 3 739
2# F:AGCCGTAGCATTCCTCACATTA 3 212 3 677 3 698
R:TGCTGGGTCGAAGAAGGTTG 6 888 6 869
3# F:CCCGCAATGTCACAGTACCAA 3 393 6 739 6 759
R:ATGATGACATGGAGGCCGTG 10 131 10 112
4# F:TTTCCAAGGGCACCATACCC 3 441 9 700 9 719
R:GCTGTATTTGCGTCTGCTCG 13 140 13 121
5# F:CGTCCCAGTAGCACTATTCGTC 3 177 12 907 12 928
R:TGGGTGTTCGACTGGTTGTC 16 083 16 064

1.5 mtDNA拷贝数的定量

为了准确定量复胃组织中mtDNA拷贝数随年龄的变化趋势,需选择合适的扩增片段以及扩增片段的数目,以保证试验结果的准确性。根据牦牛mtDNA序列(NC_006380.3),本试验选取多个mtDNA上的基因片段设计引物。胰高血糖素(GC)基因在物种间高度保守,以单拷贝形式存在,作为单拷贝内参基因共同定量mtDNA拷贝数。引物信息如表2所示。
表2 qPCR引物信息

Table 2 Primer information for qPCR

基因
Genes
登录号
Accession number
引物序列
Primer sequence (5’—3’)
产物大小
Product size/bp
ATP合酶亚基6
ATP6
NC_006380.3 F:GCATAGCCATTCCCCTGTGA
R:TCCTGCAGTGATGTTGGCTG
194
细胞色素c氧化酶亚基Ⅰ
COX1
NC_006380.3 F:AACCTTCTTCGACCCAGCAG
R:TATAGACTTCGGGGTGCCCA
83
细胞色素c氧化酶亚基Ⅲ
COX3
NC_006380.3 F:GACGGAGTCTACGGCTCAAC
R:ATGTCAGTATCAGGCAGCGG
162
细胞色素b
CYTB
NC_006380.3 F:CATTCTCCTCCGTTGCCCAT
R:ATTGAAGCTCCGTTTGCGTG
82
NADH脱氢酶亚基2
ND2
NC_006380.3 F:ATTGGAGGCTGAGGAGGACT
R:GGTGGTGGTGGAATTGGCTA
189
NADH脱氢酶亚基5
ND5
NC_006380.3 F:TTCTCCACATCTGCACCCAC
R:CTGTTAGTGCGAGACTGCCA
168
NADH脱氢酶亚基6
ND6
NC_006380.3 F:AATCCCTATGGCCTCCTCACT
R:ACAACGGCTATGGCTACGG
219
线粒体DNA解旋酶
TWINKLE
XM_005888099.1 F:GACAGTGTTCACAGGGCCAAC
R:GGGCTAGTCTCACGTTGCTG
128
线粒体RNA聚合酶
POLRMT
XM_014477291.1 F:CCACCTCTGTCAACCTGTCG
R:TGCGGAATACCTCCACCTGT
81
线粒体转录因子A
TFAM
XM_005906585.2 F:GATGGCACATCACAGGTAAAGC
R:TCCATCATTTGTTCCTCCCAAG
149
线粒体转录延伸因子
TEFM
XM_005896671.1 F:GAAGAGAGAGAGTTAAGGCAGTT
R:CCAGCACTGCCAATTTACGA
99
过氧化物酶体增殖物激活受体辅助
活化因子-1α
PGC-1α
XM_005897076.1 F:GATTGGCGTCATTCAGGAGC
R:CCAGAGCAGCACACTCGAT
84
胰高血糖素
GC*
NW_005393853.1 F:AGAGAGCAACACGCCTTGAA
R:AGCTGCCACATAACCAGGTG
141
肽基脯氨酰异构酶A
PPIA*
XM_005891872.2 F:GGCATGAATATTGTGGAAGCCA
R:CCTGGGCTACAGAAGGAATGG
147
核糖体蛋白L4
RPL4*
XM_005893286.1 F:AGCCCACAGAAAAGAAACCCA
R:TCTCATTGCCTCTTTGTTCAAACC
137
酪氨酸3-单加氧酶
YWHAZ*
XM_005887010.2 F:ACCTACTCCGGACACAGAACA
R:GACGACCCTCCAAGATGACC
214

标注*的基因为内参基因。

The gene marked with * is the reference gene.

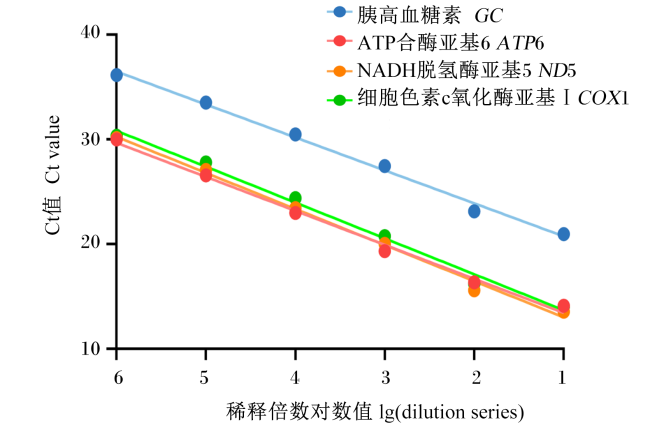
对DNA模板进行10倍梯度稀释后,用稀释模板进行qPCR。根据Ct=-klgX0+b得到扩增标准曲线。选取3对扩增效率(E)在90%~110%(3.6>k>3.1,E=10-1/k-1)、相关系数大于0.99的mtDNA基因片段。按照TaKaRa TB Green®Premix Ex TaqTM Ⅱ (RR820A,TaKaRa,日本)测定mtDNA的拷贝数,方法按操作说明进行。
每个样品所有的反应进行3次,对mtDNA上的3个基因的Ct值求取几何平均数,代表线粒体基因Ct值。采用2-ΔCt计算mtDNA的绝对拷贝数。

1.6 mRNA水平测定

采用qPCR检测参与mtDNA复制和转录的核编码基因[线粒体DNA解旋酶(TWINKLE)、线粒体RNA聚合酶(POLRMT)、线粒体转录延伸因子(TEFM)、线粒体转录因子A(TFAM)、过氧化物酶体增殖物激活受体辅助活化因子-1α(PGC-1α)]以及与复制功能相关的线粒体编码基因[ATP合酶亚基6(ATP6)、细胞色素c氧化酶亚基Ⅰ(COX1)、细胞色素c氧化酶亚基Ⅲ(COX3)、细胞色素b(CYTB)、NADH脱氢酶亚基2(ND2)、NADH脱氢酶亚基6(ND6)]的表达量,内参基因为肽基脯氨酰异构酶A(PPIA)、核糖体蛋白L4(RPL4)、酪氨酸3-单加氧酶(YWHAZ)。检测引物序列见表2。按照TaKaRa TB Green® Premix Ex TaqTM Ⅱ(RR820A,TaKaRa,日本)测定mtDNA的拷贝数,方法按操作说明进行。每个样品重复测定3个,对3个内参基因的表达量求取几何平均数,采用2-ΔΔCt方法计算每个目的基因的表达量。

1.7 统计分析

试验数据采用SPSS 26.0软件的ANOVA程序进行单因素方差分析,存在差异显著时采用Duncan法进行多重比较,以P<0.05表示差异显著,P<0.01表示差异极显著。结果以平均值±标准误(SE)表示。基于皮尔逊(Pearson)相关性分析对牦牛复胃组织中mtDNA拷贝数与相关基因表达量进行相关分析。

2 结果

2.1 RNA样品质量检测结果

利用1%琼脂糖凝胶电泳检测RNA样品的完整性,所有样品都清晰地显示出2条预期的18S和28S rRNA条带,无产物降解的迹象,表明提取的牦牛复胃组织RNA完整性较好。通过超微量核酸蛋白测定仪检测RNA样品的浓度与纯度,所有样品RNA浓度较高,260和280 nm处吸光度的比值(A260/A280的值)在2.0左右,纯度较好。由检测结果可知,RNA样品的浓度、纯度以及完整性都符合下一步试验的要求,可进行后续试验。

2.2 mtDNA样品质量检测结果

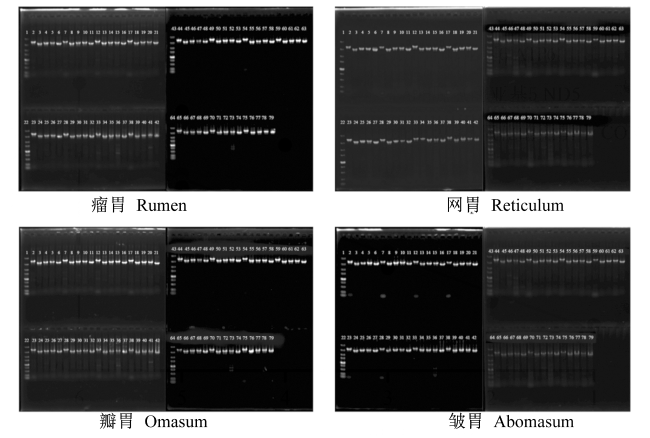
对所有复胃组织进行PCR扩增,通过0.8%琼脂糖凝胶电泳检测DNA样品的完整性,结果如图1所示。所有样品都清晰地显示出单一条带,表明样品不存在mtDNA缺失。通过超微量核酸蛋白测定仪检测DNA样品的浓度与纯度,所有样品DNA浓度较高,A260/A280的值在1.8左右,纯度较好。由检测结果可知,DNA样品的浓度、纯度以及完整性都符合下一步试验的要求,可进行后续试验。
图1 牦牛复胃组织mtDNA样品的琼脂糖凝胶电泳图

泳道1、22、43、64:Marker DL5000;泳道2~6:0日龄样品1;泳道7~11:0日龄样品2;泳道12~16:0日龄样品3;泳道17~21:20日龄样品1;泳道23~27:20日龄样品2;泳道28~32:20日龄样品3;泳道33~37:60日龄样品1;泳道38~42:60日龄样品2;泳道44~48:60日龄样品3;泳道49~53:15月龄样品1;泳道54~58:15月龄样品2;泳道59~63:15月龄样品3;泳道65~69:3岁龄样品1;泳道70~74:3岁龄样品2;泳道75~79:3岁龄样品3。每个样品的5个泳道从左至右所用引物依次为1#、2#、3#、4#、5#。

Fig.1 Agarose gel electrophoresis maps for mtDNA samples of complex stomach tissues of yaks

Lanes 1, 22,43, and 64: Marker DL5000; lanes 2 to 6: 0-day-old sample 1; lanes 7 to 11: 0-day-old sample 2; lanes 12 to 16: 0-day-old sample 3; lanes 17 to 21: 20-day-old sample 1; lanes 23 to 27: 20-day-old sample 2; lanes 28 to 32: 20-day-old sample 3; lanes 33 to 37: 60-day-old sample 1; lanes 38 to 42: 60-day-old sample 2; lanes 44 to 48: 60-day-old sample 3; lanes 49 to 53: 15-month-old sample 1; lanes 54 to 58: 15-month-old sample 2; lanes 59 to 63: 15-month-old sample 3; lanes 65 to 69: 3-year-old sample 1; lanes 70 to 74: 3-year-old sample 2; lanes 75 to 79: 3-year-old sample 3. The primers used in the 5 lanes of each sample from left to right are 1#, 2#, 3#, 4# and 5#.

2.3 mtDNA定量标准曲线

将样品浓度统一至10 mg/mL后10倍梯度稀释样品,对稀释模板进行qPCR。以稀释倍数对数值为横坐标,Ct值为纵坐标,绘制mtDNA上6个基因及内参基因GC的qPCR扩增标准曲线。各引物的标准曲线、扩增效率及皮尔逊相关系数如表3所示。ATP6、COX1、CYTBND5的扩增效率均在90%~110%范围内,且皮尔逊相关系数>0.99,与内参基因GC的扩增效率一致,qPCR标准曲线如图2所示。选取ATP6、COX1、ND5进行后续试验。
表3 引物标准曲线信息

Table 3 Primer standard curve information

基因
Genes
标准曲线
Standard curves
皮尔逊相关系数
Pearson correlation
coefficient
扩增效率
Amplification
efficiency/%
ATP合酶亚基6 ATP6 y=-3.249x+16.688 0.997 0 103.14
细胞色素b CYTB y=-3.523 3x+15.953 0.996 1 92.23
细胞色素c氧化酶亚基Ⅰ COX1 y=-3.428 6x+17.104 0.996 3 95.73
细胞色素c氧化酶亚基Ⅲ COX3 y=-3.693 2x+17.282 0.996 6 86.53
NADH脱氢酶亚基2 ND2 y=-3.843 2x+16.247 0.996 7 82.05
NADH脱氢酶亚基5 ND5 y=-3.450 8x+16.443 0.997 2 94.89
胰高血糖素GC y=-3.149 6x+23.884 0.997 1 107.73
图2 ATP6、COX1、ND5和GC的qPCR标准曲线

Fig.2 qPCR standard curves for ATP6, COX1, ND5 and GC

2.4 牦牛复胃组织中mtDNA拷贝数定量

牦牛复胃组织中mtDNA拷贝数的具体数值见表4
表4 不同年龄段牦牛复胃组织中mtDNA拷贝数

Table 4 mtDNA copy number for complex stomach tissues of yaks at different ages

项目Items 瘤胃Rumen 网胃Reticulum 瓣胃Omasum 皱胃Abomasum
0日龄0 day of age 100.29±11.58 94.72±10.69 99.04±10.80 452.36±61.05
20日龄20 days of age 112.58±23.23 196.92±19.68 118.34±16.76 205.52±30.21
60日龄60 days of age 210.92±30.66 188.69±41.54 131.18±17.00 349.24±8.14
15月龄15 months of age 400.16±72.53 570.42±35.70 390.71±38.91 350.70±33.21
3岁龄3 years of age 356.47±22.40 267.55±30.21 327.89±21.34 258.45±37.03

2.4.1 同一年龄段不同胃组织之间mtDNA拷贝数差异分析

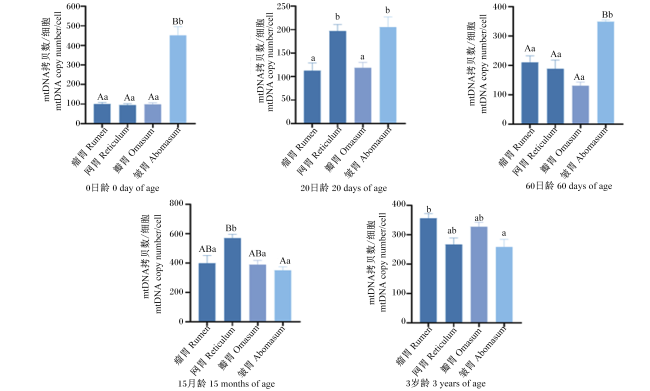
同一年龄段的不同胃组织中,mtDNA拷贝数呈现出差异(图3)。在0日龄样本中,皱胃组织中mtDNA拷贝数最高,为452.36±61.05,极显著高于瘤胃、网胃和瓣胃组织(P<0.01),而瘤胃、网胃和瓣胃组织之间则无显著差异(P>0.05);20日龄的样品中,瘤胃组织中mtDNA拷贝数最低,为112.58±23.23,显著低于网胃和皱胃组织(P<0.05);60日龄的样品中,皱胃组织中mtDNA拷贝数也极显著高于瘤胃、网胃和瓣胃(P<0.01),为349.24±8.14,而瘤胃、网胃和瓣胃组织之间则无显著差异(P>0.05);15月龄的样品中,网胃组织中mtDNA拷贝数最高,为570.42±35.70,显著高于瘤胃和瓣胃组织(P<0.05),极显著高于皱胃组织(P<0.01);3岁龄的样品中,瘤胃组织中mtDNA拷贝数显著高于皱胃组织(P<0.05)。
图3 同一年龄段不同胃组织之间mtDNA拷贝数差异

数据柱标注不同小写字母表示差异显著(P<0.05),不同大写字母表示差异极显著(P<0.01)。

Fig.3 Differences in mtDNA copy number among different stomach tissues at the same age

Data columns with different small letters mean significant difference (P<0.05), and with different capital letters mean extremely significant difference (P<0.01).

2.4.2 不同胃组织中mtDNA拷贝数随年龄变化趋势

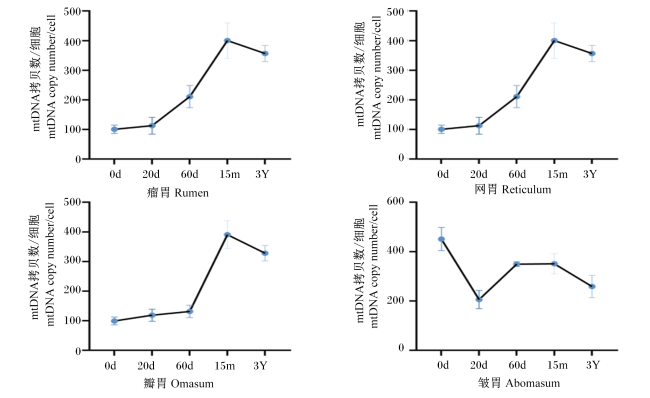
在前胃的发育过程中,mtDNA拷贝数总体呈上升的趋势(图4)。0日龄时瘤胃、网胃和瓣胃组织中mtDNA拷贝数最低,分别为100.29±11.58、94.72±10.69和99.04±10.8,在15月龄时瘤胃、网胃和瓣胃组织中mtDNA拷贝数都达到最大值,分别为400.16±72.53、570.42±35.70、390.71±38.91,而后呈下降趋势。而在皱胃的发育过程中,mtDNA拷贝数总体呈下降的趋势(图4)。
图4 不同胃组织中mtDNA拷贝数随牦牛日龄变化趋势

0d:0日龄 0 day of age;20d:20日龄 20 days of age;60d:60日龄 60 days of age;15m:15月龄 15 months of age;3Y:3岁龄 3 years of age。

Fig.4 Variation trends of mtDNA copy number in different stomach tissues with age of yaks

2.5 牦牛复胃组织中mtDNA拷贝数与相关基因表达量的相关分析

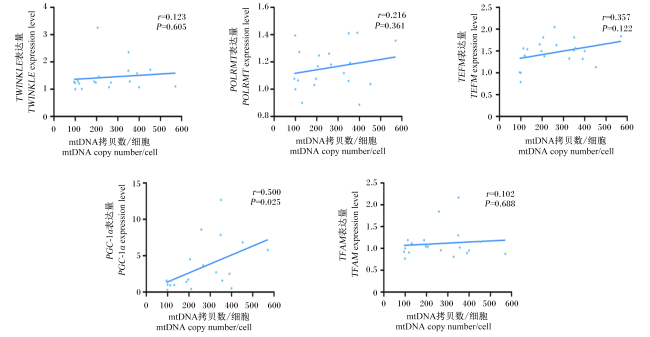
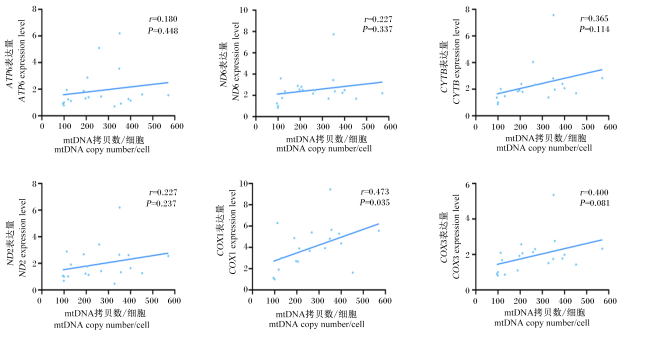
利用qPCR测定参与mtDNA复制和转录的核编码基因TWINKLEPOLRMTTEFMTFAMPGC-1α以及与复制功能相关的线粒体编码基因ATP6、COX1、COX3、CYTBND2、ND6的表达量,并用3个内参基因表达量的几何平均值进行校正,选取0日龄的瘤胃组织进行组织表达量归一化处理。归一后的数据与mtDNA拷贝数进行相关分析,得到相关系数(r)及显著性检验P值。

2.5.1 mtDNA拷贝数与核编码基因表达量的相关关系

相关性分析结果(图5)显示,mtDNA拷贝数与PGC-1α的表达量呈显著正相关(r=0.500,P<0.05),与TWINKLEPOLRMTTEFMTFAM的表达量也呈正相关,但相关性不显著(P>0.05)。
图5 mtDNA拷贝数与核编码基因表达量的相关分析

Fig.5 Correlation analysis of mtDNA copy number and nuclear-encoding gene expression level

2.5.2 mtDNA拷贝数与线粒体编码基因表达量的相关关系

相关性分析结果(图6)显示,mtDNA拷贝数与COX1的表达量呈显著正相关(r=0.473,P<0.05),与ATP6、COX3、CYTBND2、ND6的表达量也呈正相关,但相关性不显著(P>0.05)。
图6 mtDNA拷贝数与线粒体编码基因表达量的相关分析

Fig.6 Correlation analysis of mtDNA copy number and mitochondria-encoding gene expression level

3 讨论

牦牛复胃的发育情况对其生长发育和营养物质的消化吸收有着重要的的影响,近年来已有研究测定了不同年龄段牦牛的复胃指数、转录组表达谱的变化[19-20]。但目前牦牛复胃发育机理尚不清楚,还需进一步研究相关分子机制,为牦牛的营养调控和健康生长提供理论参考和新思路。本研究中,随着牦牛年龄的增长,瘤胃、网胃和瓣胃组织中mtDNA拷贝数总体呈上升的趋势,提示随着年龄的增加,瘤胃发挥更重要的作用,逐渐承担生物学功能;而在皱胃组织的发育过程中,mtDNA拷贝数总体呈下降的趋势,提示随着个体发育,牦牛的能量提供由皱胃转移至瘤胃。
新生犊牛的消化吸收功能主要依靠皱胃和小肠[21],其瘤胃不发达,没有功能。摄食的液体乳可经食管沟直接进入皱胃消化,利用葡萄糖为机体供能[22]。本研究的0日龄的样品中,皱胃组织中mtDNA拷贝数最高,极显著高于其他3个胃组织,这可侧面反映出皱胃在新生牦牛营养供给中的重要作用。
研究表明,大多数犊牦牛在2周龄后开始进食固体饲料,固体饲料的摄入量与液体乳的摄入量成反比[23-24]。固体饲料的摄入加速了犊牛瘤胃的发育[25]。当犊牛食用固体饲料时,瘤胃发酵开始,因此瘤胃中挥发性脂肪酸(VFA)的浓度升高。VFA通过增加细胞增殖和减少细胞凋亡来刺激瘤胃上皮生长[25-26]。本研究中,20日龄瘤胃组织中mtDNA拷贝数相较于0日龄有所升高,皱胃则有所降低。这说明瘤胃产生ATP的能力增强,并开始为机体提供能量需求。据此推测,以放牧方式培育的牦牛在20日龄左右时可能已经开始采食牧草,并经瘤胃微生物发酵产生VFA,此时的瘤胃获得了代谢VFA的能力,并得到一定程度的发育;同时反映出20日龄后牦牛的营养提供不再完全由皱胃主导,部分营养由快速发育的瘤胃进行VFA代谢提供。这与本实验室前期对5个年龄段牦牛瘤胃和皱胃的转录组研究结果[19-20]相呼应。这提示,在牦牛日常养殖中,20日龄前后可以开始训练犊牦牛采食草料,尽早使其适应饲料,提升饲料采食能力,促进瘤胃及消化道机能的发育和健全,加快犊牛生长发育速度;同时,还可提高消化系统的健康程度,减少消化道疾病的发病率,提升犊牦牛的成活率。60日龄瘤胃和皱胃组织中mtDNA拷贝数相较于20日龄均有所升高,瘤胃和皱胃产生更多的能量,推测在20~60日龄,随着个体的进一步生长发育,犊牦牛需要采食更多的饲草来满足自身的能量需求。在15月龄时,瘤胃、网胃和瓣胃组织中mtDNA拷贝数都达到最大值,并且在15月龄时瘤胃组织中mtDNA拷贝数高于皱胃组织,说明瘤胃VFA代谢所提供的能量占比进一步提高,瘤胃逐渐转变为营养物质消化吸收的主要场所,此时瘤胃以VFA代替葡萄糖作为主要的能量来源[27]。皱胃则对前胃消化的较小食糜进一步消化吸收。这提示15月龄前后可能是牦牛前胃成熟的关键时期。
此外,通过对牦牛复胃组织中mtDNA拷贝数与DNA复制转录相关基因表达量进行相关分析发现,mtDNA拷贝数与PGC-1αCOX1的表达量呈显著正相关。已有相关研究发现,PGC-1α作为过氧化物酶体增殖物激活受体(PPAR)家族的首要成员,是一种多功能的转录共调节因子,能深度参与能量代谢调节进程。PGC-1α结合BAF60a能募集染色质重塑因子到PPARα的结合位点,从而激活过氧化物酶体和线粒体脂肪氧化基因的转录[28]。故此,推测在牦牛复胃生长过程中,PGC-1α和COX1是调控复胃组织中mtDNA拷贝数的关键因子。
上述试验结果为牦牛复胃生长发育过程中线粒体的变化情况提供了基础数据,后期可以在细胞水平对线粒体体膜电位变化、线粒体ATP生成速率等进行检测,并结合多组学研究,以得到更完整的数据对线粒体功能进行全面评估。

4 结论

综上所述,新生牦牛皱胃组织的mtDNA拷贝数最多,侧面反映出犊牛主要依靠皱胃进行营养物质的消化吸收。随着牦牛前胃(瘤胃、网胃和瓣胃)的发育,mtDNA拷贝数总体呈上升的趋势,在15月龄左右瘤胃、网胃和瓣胃组织中mtDNA拷贝数都达到最大值;而在皱胃的发育过程中,mtDNA拷贝数总体呈下降的趋势,侧面反映出在15月龄时瘤胃逐渐取代皱胃转变为营养物质消化吸收的主要场所,说明15月龄前后是牦牛前胃成熟的关键时期。在牦牛复胃生长发育过程中,PGC-1α和COX1是调控复胃组织中mtDNA拷贝数的关键因子。
[1]
GUSTAFSON M A, SULLIVAN E D, COPELAND W C. Consequences of compromised mitochondrial genome integrity[J]. DNA Repair, 2020,93:102916.

[2]
ST P J. Master of mitochondrial number[J]. Journal of Experimental Biology, 2005, 208(3):7.

[3]
YASUKAWA T, KANG D. An overview of mammalian mitochondrial DNA replication mechanisms[J]. Journal of Biochemistry, 2018, 164(3):183-193.

DOI PMID

[4]
CLAYTON D A. Mitochondrial DNA replication:what we know[J]. IUBMB Life, 2003, 55(4/5):213-217.

[5]
INATOMI T, MATSUDA S, ISHIUCHI T, et al. TFB2M and POLRMT are essential for mammalian mitochondrial DNA replication[J]. Biochimica et Biophysica Acta-Molecular Cell Research, 2022, 1869(1):119167.

[6]
HILLEN H S, MOROZOV Y I, SARFALLAH A, et al. Structural basis of mitochondrial transcription initiation[J]. Cell, 2017, 171(5):1072-1081.e10.

DOI PMID

[7]
LITONIN D, SOLOGUB M, SHI Y H, et al. Human mitochondrial transcription revisited:only TFAM and TFB2M are required for transcription of the mitochondrial genes in vitro[J]. The Journal of Biological Chemistry, 2010, 285(24):18129-18133.

[8]
HOEKS J, SCHRAUWEN P. Muscle mitochondria and insulin resistance:a human perspective[J]. Trends in Endocrinology and Metabolism, 2012, 23(9):444-450.

[9]
FALKENBERG M, GUSTAFSSON C M. Mammalian mitochondrial DNA replication and mechanisms of deletion formation[J]. Critical Reviews in Biochemistry and Molecular Biology, 2020, 55(6):509-524.

[10]
MILLER F J, ROSENFRLDT F L, ZHANG C, et al. Precise determination of mitochondrial DNA copy number in human skeletal and cardiac muscle by a PCR-based assay:lack of change of copy number with age[J]. Nucleic Acids Research. 2003, 31(11):e61.

[11]
POHJOISMÄKI J L O, GOFFART S, TAYLOR R W, et al. Developmental and pathological changes in the human cardiac muscle mitochondrial DNA organization,replication and copy number[J]. PLoS One, 2010, 5(5):e10426.

[12]
RAZZONI R, SHORT K R, NAIR K S. Effects of aging on mitochondrial DNA copy number and cytochrome c oxidase gene expression in rat skeletal muscle,liver,and heart[J]. The Journal of Biological Chemistry, 2000, 275(5):3343-3347.

[13]
MASUYAMA M K, IIDA R, TAKATSUKA H, et al. Quantitative change in mitochondrial DNA content in various mouse tissues during aging[J]. Biochimica et Biophysica Acta, 2005, 1723(1/2/3):302-308.

[14]
XIE Y M, JIN L, CHEN X J, et al. Quantitative changes in mitochondrial DNA copy number in various tissues of pigs during growth[J]. Genetics and Molecular Research. 2015, 14(1):1662-1670.

DOI PMID

[15]
ALIKHANI M, OUATI E, KARIMIPOOR M, et al. Mitochondrial DNA copy number variations in gastrointestinal tract cancers:potential players[J]. Journal of Gastrointestinal Cancer, 2022, 53(3):770-781.

[16]
王彦, 阿不夏合满·穆巴拉克, 陈翔宇, 等. 幼龄反刍动物瘤胃微生物定植与肠道酶系建立研究进展[J]. 中国畜牧杂志, 2024, 60(1):80-86.

WANG Y, ABUXIAHEMAN M B L K, CHEN X Y, et al. Research progress on colonization of rumen microorganisms and establishment of intestinal enzyme system in young ruminants[J]. Chinese Journal of Animal Science, 2024, 60(1):80-86.(in Chinese)

[17]
田发益, 武俊喜. 放牧与舍饲对彭波半细毛羊瘤胃细菌群落的生物学信息影响[J]. 畜牧兽医学报, 2019, 50(11):2252-2263.

TIAN F Y, WU J X. Effects of grazing and barn feeding on biological information of rumen bacterial communities in Pengbo semi-fine wool sheep[J]. Acta Veterinaria et Zootechnica Sinica, 2019, 50(11):2252-2263.(in Chinese)

[18]
袁赞, 侯生珍, 崔晓鹏. 不同蛋白水平日粮对西藏羊复胃形态学的影响[J]. 草学, 2018(1):64-69.

YUAN Z, HOU S Z, CUI X P. Effects of dietary protein levels on the morphology of the stomach in Tibetan sheep[J]. Journal of Grassland and Forage Science, 2018(1):64-69.(in Chinese)

[19]
唐娇. 不同年龄放牧牦牛瘤胃与皱胃转录组学研究[D]. 硕士学位论文. 成都: 西南民族大学, 2022.

TANG J. Transcriptomic analysis of yak rumen and abomasum at different ages[D]. Master’s Thesis. Chengdu: Southwest University for Nationalities, 2022.(in Chinese)

[20]
刘益丽, 唐娇, 闵奇, 等. 基于转录组数据挖掘牦牛皱胃发育代谢的关键候选基因[J]. 畜牧兽医学报, 2024, 55(1):153-168.

DOI

LIU Y L, TANG J, MIN Q, et al. Mining key candidate genes of development and metabolism in yak abomasum based on transcriptome data[J]. Acta Veterinaria et Zootechnica Sinica, 2024, 55(1):153-168.(in Chinese)

DOI

[21]
高艳霞, 王加启. 新生犊牛消化功能的发育及影响因素[J]. 中国奶牛, 2006(8):6-9.

GAO Y X, WANG J Q. The development of the digestive system of neonatal calf and the effective factors[J]. China Dairy Cattle, 2006(8):6-9.(in Chinese)

[22]
BALDWIN R L, MCLEOD K R, KLOTZ J L, et al. Rumen development,intestinal growth and hepatic metabolism in the pre- and postweaning ruminant[J]. Journal of Dairy Science, 2004, 87(Suppl.):E55-E65.

[23]
DRACKLEY J K. Calf nutrition from birth to breeding[J]. The Veterinary Clinics of North America:Food Animal Practice, 2008, 24(1):55-86.

[24]
KHAN M A, WEARY D M, VON KEYSERLINGK M A G. Invited review:effects of milk ration on solid feed intake,weaning,and performance in dairy heifers[J]. Journal of Dairy Science, 2011, 94(3):1071-1081.

[25]
LANE M A, BALDWIN R L 6, JESSE B W. Sheep rumen metabolic development in response to age and dietary treatments[J]. Journal of Animal Science, 2000, 78(7):1990-1996.

PMID

[26]
MENTSCHEL J, LEISER R, MÜLLING C, et al. Butyric acid stimulates rumen mucosa development in the calf mainly by a reduction of apoptosis[J]. Archiv Fur Tierernahrung, 2001, 55(2):85-102.

[27]
PAN X Y, LI Z J, LI B B, et al. Dynamics of rumen gene expression,microbiome colonization,and their interplay in goats[J]. BMC Genomics, 2021, 22(1):288.

[28]
WALLBERG A E, YAMAMURA S, MALIK S, et al. Coordination of p300-mediated chromatin remodeling and TRAP/mediator function through coactivator PGC-1alpha[J]. Molecular Cell, 2003, 12(5):1137-1149.

PMID

文章导航

/