综述

母羊妊娠毒血症的发病机制及其营养调控研究进展

  • 王雨薇 ,
  • 臧长江 , * ,
  • 成志强 ,
  • 张铖
展开
  • 新疆农业大学动物科学学院,新疆肉乳用草食动物营养实验室,乌鲁木齐 830052
* 臧长江,教授,博士生导师,E-mail:

王雨薇(2000—),女,内蒙古通辽人,硕士研究生,从事反刍动物营养与饲料研究。E-mail:

Copy editor: 菅景颖

收稿日期: 2024-11-14

  网络出版日期: 2025-07-12

基金资助

自治区“三农”骨干人才培养项目(2023SNGGGCC029)

自治区农区肉羊品种选育计划项目(xjnqry-2024TD09)

Research Progress on Pathogenesis and Nutritional Regulation of Ewe Pregnancy Toxaemia

  • WANG Yuwei ,
  • ZANG Changjiang , * ,
  • CHENG Zhiqiang ,
  • ZHANG Cheng
Expand
  • Xinjiang Key Laboratory of Herbivore Nutrition for Meat & Milk Production, College of Animal Science, Xinjiang Agricultural University, Urumqi 830052, China
* professor, E-mail:

Received date: 2024-11-14

  Online published: 2025-07-12

摘要

妊娠毒血症是妊娠后期导致多胎(双羔及以上)母羊死亡的最重要原因之一,是多因素引起的葡萄糖和脂肪代谢障碍的营养代谢性疾病,低血糖、高酮血症及神经功能障碍是该病的特征性症状。妊娠后期多胎母羊因胎儿能量消耗剧增,葡萄糖供给不足,迫使母体脂肪动员过度,产生大量酮体(β-羟丁酸、乙酰乙酸等),引发高酮血症,其核心发病原因是母体营养摄入不足(尤其是易发酵碳水化合物缺乏)与胎儿快速生长所需能量激增的矛盾,导致机体能量负平衡。本文从发病原因、诊断方法、发病机制、分子调控机制及营养防控措施等方面系统的解析了母羊妊娠毒血症,以期为肉羊实际生产中妊娠毒血症的防治提供科学指导。

本文引用格式

王雨薇 , 臧长江 , 成志强 , 张铖 . 母羊妊娠毒血症的发病机制及其营养调控研究进展[J]. 动物营养学报, 2025 , 37(7) : 4209 -4219 . DOI: 10.12418/CJAN2025.344

Abstract

Pregnancy toxemia is one of the most critical causes of mortality in ewes carrying multiple fetuses (twins or more) during late gestation. It is a nutritional metabolic disorder characterized by glucose and lipid metabolism dysfunction caused by multiple factors. The hallmark symptoms of this disease include hypoglycemia, hyperketonemia and neurological dysfunction. In late gestation, ewes carrying multiple fetuses experience a dramatic increase in fetal energy demands, leading to insufficient glucose supply. This forces the maternal body to excessively mobilize fat reserves, resulting in the overproduction of ketone bodies (such as β-hydroxybutyrate and aceto-acetate) and subsequent hyperketonemia. The core pathogenesis lies in the imbalance between inadequate maternal nutrient intake (particularly a deficiency in readily fermentable carbohy-drates) and the surge in energy requirements for rapid fetal growth, ultimately causing a negative energy balance in the maternal body. This article systematically analyzed pregnancy toxemia from perspectives including its etiology, diagnostic methods, pathogenesis, molecular regulatory mechanisms, and nutritional prevention strategies, providing scientific guidance for the prevention and treatment of pregnancy toxemia in practical mutton sheep production.

羊妊娠毒血症(pregnancy toxaemia,PT)是母羊妊娠后期因能量代谢紊乱引发的一种多因素营养代谢性疾病,多发于妊娠多胎(双羔及以上)或营养摄入不足的高产母羊,是困扰集约化养羊的重大代谢性疾病,规模化羊场妊娠后期母羊该病的发病率为5%~20%,死亡率可达80%,并造成85%以上的围产期羔羊死亡[1-2]。随着我国多胎肉羊产业规模化发展,推广高繁品种(小尾寒羊、湖羊)以提高繁殖率,导致规模化养殖过程中以PT为代表的营养代谢性疾病频发,严重制约着多胎肉羊产业的健康发展[3-4]。多胎母羊妊娠后期胎儿快速发育,营养(葡萄糖等)需求迅速增加,当饲粮营养供给不足时,会导致机体能量负平衡,母羊通过启动脂肪动员供能,导致非酯化脂肪酸(non-esterified fatty acid,NEFA)浓度升高,增加了β-羟丁酸(β-hydroxybutyric acid,BHBA)的产生,从而诱发PT[5-6]。PT的核心病理基础是母羊能量负平衡引起的葡萄糖代谢紊乱,从而导致碳水化合物、脂质、蛋白质和其他营养物质代谢障碍,继而引发低血糖、低血钙、高酮血症和酸中毒等疾病[7]。PT以低血糖、酮血和酮尿为主要特征,临床表现为精神沉郁、目光呆滞、食欲不振、可视黏膜苍白或黄染,甚至出现震颤、头颈向腹部侧弯等神经症状[8-9]。PT的形成机制虽然复杂,但发病早期出现的低血糖是可以预防的。因此,研究PT的发病机制,特别是肝脏脂质代谢途径,是有效预防PT发生的关键所在。PT已成为制约多胎母羊繁殖性能提升和羔羊成活率提高的关键瓶颈,本文从PT的发病原因、诊断方法、发病机制、分子调控机制及营养防控措施等方面进行综述,深入解析该病的发病机制并建立有效防控体系,对保障多胎肉羊产业的可持续发展具有重要的指导意义。

1 母羊PT概述及诊断

PT又称孕羊酮病或妊娠酮血症,是母羊妊娠后期因能量代谢失衡引发的代谢性疾病,常见于妊娠多胎或营养供给不足的高产母羊。血液中葡萄糖浓度是反映机体能量摄入水平的关键指标,血液葡萄糖浓度降低是机体能量摄入不足的直接表现;血液中NEFA浓度是反映机体脂肪动员程度的指标;BHBA是脂肪分解产物酮体的主要成分之一[10],其在血液中的浓度可反映脂肪代谢程度。因此,血液中BHBA、葡萄糖和NEFA浓度可用于诊断羊PT。根据母羊病程临床症状以及血液生化指标(BHBA、葡萄糖、NEFA浓度等),PT分为亚临床PT和临床PT 2种[11]。亚临床PT被定义为疾病的临床前阶段,其特征在于血液中BHBA浓度增加而无明显临床症状[12]。血液生化指标中BHBA浓度在0.8~3.0 mmol/L(正常范围<0.8 mmol/L)、葡萄糖浓度在2.2~3.3 mmol/L(正常范围3.3~4.4 mmol/L)、NEFA浓度在0.4~1.6 mmol/L(正常范围<0.4 mmol/L),但母羊无临床体征时可以诊断为亚临床PT[13]。临床PT血液生化指标中BHBA浓度>3.0 mmol/L、葡萄糖浓度<2.2 mmol/L、NEFA浓度>1.6 mmol/L时,妊娠母羊开始表现为精神沉郁、食欲减退、黏膜充血等;数小时后,随着低血糖程度加深,出现脱水、失明、行为改变、呼吸、心跳加快等症状,有些母羊对外界刺激反应微弱甚至瘫痪、抽搐、最终昏迷死亡[2]。临床PT的解剖学病理变化为肝脏肿大、质地易碎,色泽为土黄色,切面圆润且油腻[14];肝脏组织切片可见胞浆内有脂肪空泡[15];肾脏肿大,也可以看到脂肪变性、出血等病理变化[16]。果糖胺也称糖化血清蛋白,其浓度可反映机体过去1~3周的平均血糖浓度和能量负平衡状态,因此,结合血清中总蛋白(total protein,TP)含量,果糖胺浓度可作为羊PT亚临床阶段的诊断指标,健康母羊血清中果糖胺浓度应大于1.005 mmol/L[13,17]。Nisar等[17]研究表明,妊娠母羊血清中25羟基维生素D与果糖胺浓度呈正相关,25羟基维生素D浓度也可作为早期血糖状态的监测指标。绵羊血清中25羟基维生素D浓度正常在75~150 nmol/L,在25~75 nmol/L表示维生素D不足,低于25 nmol/L表示维生素D缺乏[18],血清中25羟基维生素D浓度显著降低可能与能量代谢障碍及继发低血钙有关。妊娠母羊TP含量、谷草转氨酶(aspartate aminotransferase,AST)与谷氨酰转移酶(gamma glutamyltransferase,GGT)活性的正常范围分别为60~85 g/L、167~513 U/L、20~56 U/L;PT发生时母羊血液中TP含量以及AST、GGT活性等指标也会出现异常[19];血液中AST和GGT活性升高是由于大量脂肪动员和酮体的增加导致肝细胞的损伤[12]。亚临床PT是该病的早期阶段,血液生化指标(BHBA、葡萄糖、NEFA浓度等)可提前预警,临床PT表现为显著的代谢紊乱和典型的神经症状,需紧急干预,定期监测妊娠晚期母羊的营养状态和血液生化指标是预防重症的关键。

2 母羊PT的发病机制

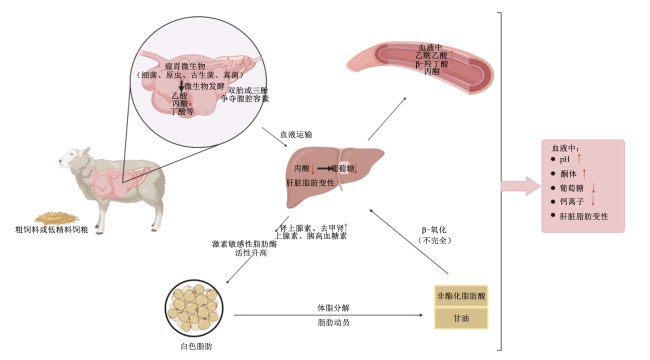
营养物质的供给是维持动物稳定生长、生产和繁殖的关键所在[1]。糖类是动物体内的主要能源物质,动物体内约70%的能量来源于糖类的代谢分解,妊娠期胎儿发育消耗的葡萄糖占母体总葡萄糖的60%~70%。对于反刍动物而言,碳水化合物(纤维素、半纤维素、淀粉等)在瘤胃中经过微生物(细菌、真菌、原虫)分泌的纤维素酶、半纤维素酶、淀粉酶等分解发酵,转化为乙酸、丙酸、丁酸等挥发性脂肪酸后被吸收;丙酸吸收后在肝脏经糖异生转化为葡萄糖,反刍动物体内的葡萄糖主要依赖于糖异生产生,其中丙酸是糖异生的主要前体物[20]。妊娠母羊在采食质量低下的饲粮(粗饲料比例较高)或饲粮摄入不足时,糖异生所需前体物匮乏,导致糖异生受阻,机体产生的葡萄糖减少,同时妊娠后期胎儿所需能量迅速增加,母羊能量代谢发生适应性改变,优先将血液循环中约40%的葡萄糖用于胎儿的生长,怀双羔和三羔的母羊对葡萄糖的需求量更高,易导致母羊低血糖的发生[21-22]。妊娠后期母羊胎盘分泌的激素(如孕酮)可诱导胰岛素抵抗,进一步抑制葡萄糖的利用,加剧低血糖的发生。脂肪是动物体内重要的储能物质,母羊出现低血糖时迫使机体白色脂肪组织氧化供给自身所需能量(脂肪动员),肾上腺素、去甲肾上腺素、胰高血糖素分泌增加,增强了激素敏感性脂肪酶(hormone-sensitive triglyceride lipase,HSL)活性,甘油三酯被氧化分解为甘油和NEFA[23]。甘油在磷酸甘油激酶、甘油磷酸脱氢酶、丙糖异构酶等酶的催化下生成甘油醛-3-磷酸,甘油醛-3-磷酸一部分经过糖异生生成为葡萄糖,一部分生成为丙酮酸。NEFA进入肝脏、心脏、骨骼肌等组织细胞中进行氧化分解供能。血液中约50%的NEFA被转运到肝脏组织进行β-氧化,分解成乙酰辅酶A,进入三羧酸循环进一步分解氧化供能,此时,NEFA是机体的重要能量来源。酮体(乙酰乙酸、BHBA和丙酮)是脂肪酸氧化的中间产物,也是肝脏输出能源的一种形式,动物机体可以优先利用酮体用以节约葡萄糖。由于肝脏组织缺乏酮体分解酶系,酮体需通过血液循环转运至骨骼肌、心肌等组织进行代谢,在正常状态下,肝脏中产生酮体的速率和肝外组织利用酮体的速率应处于动态平衡,持续的低血糖导致脂肪大量动员,同时母体营养不良可能会降低脂蛋白脂肪酶和肝脂酶活性,降低了肝脏脂质处理能力[24]。肝脏组织中β-氧化过程产生的乙酰辅酶A不能全部被三羧酸循环氧化分解而缩合形成大量酮体,超出了机体的利用能力,大量酮体在血液中蓄积,造成血液中的酮体含量大幅上升,抑制中枢神经功能,产生精神沉郁、共济失调[25]。由于酮体成分为酸性物质,血液中大量蓄积的酮体会导致酸中毒的发生。NEFA氧化增加使肝脏超负荷以及多余的脂肪动员使脂质在母羊的肝脏中累积,引起肝脏脂肪变性[1,26],导致功能衰竭,糖异生进一步受阻。肝脏的超负荷损害了维生素D在肝脏中的转化,进而影响机体肠道对钙的吸收,引起母体的低血钙[27]。肝脏糖异生功能因脂肪浸润和线粒体功能障碍受损而受到抑制,形成“能量负平衡-脂肪过度分解-高酮症酸中毒”的恶性循环,加剧低血糖状态,导致大脑能量供应不足,产生神经症状(抽搐、昏迷),同时低血糖和高酮症会影响胎儿的发育,导致死胎和母羊流产。母羊PT发病机制见图1
图1 母羊妊娠毒血症的发病机制

Fig.1 Pathogenesis of pregnancy toxaemia in ewe

3 母羊PT的分子调控机制

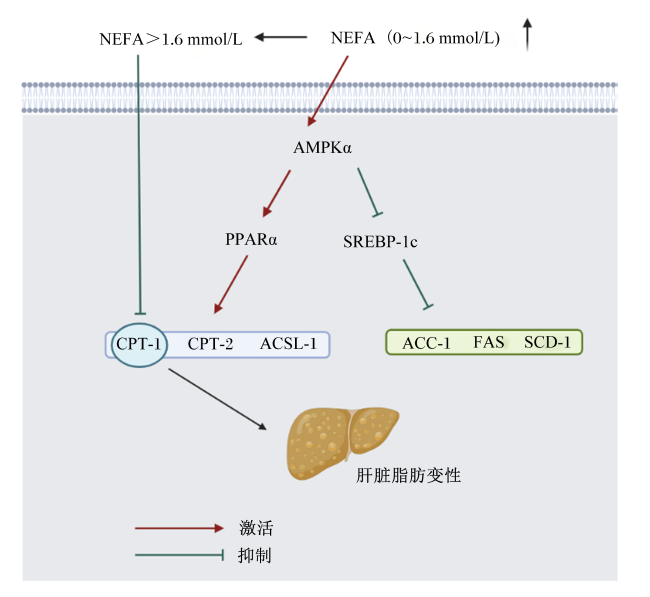
当母羊机体处于能量负平衡时,发生脂肪动员,血液中NEFA浓度升高。肝脏是脂肪酸氧化的最活跃组织,在肝脏细胞中,脂肪酸氧化主要发生在线粒体,该过程主要分为4个步骤:脂肪酸活化、脂酰辅酶A转移、脂酰辅酶A的β-氧化和硫解[1]。AMP活化蛋白激酶(AMP activated protein kinase,AMPK)在肝脏细胞脂质代谢中起重要作用,其主要通过转录因子来调节脂肪的氧化、合成和转录[28]。过氧化物酶体增殖物激活受体(peroxisome proliferator-activated receptor,PPAR)和固醇调节元件结合蛋白-1c(sterol regulatory element binding protein-1c,SREBP-1c)是AMPK的主要转录因子[29]。有研究表明,当NEFA浓度升高时,AMPKα通路被激活,PPARα的表达水平和转录活性显著升高;此外,在经NEFA处理的肝脏细胞中,肉碱棕榈酰转移酶-1(carnitine palmito-yltransferase-1,CPT-1)、肉碱棕榈酰转移酶-2(carnitine palmitoyltransferase-2,CPT-2)和长链脂酰辅酶A合成酶-1(long-chain acyl-CoA synthetase-1,ACSL-1)的mRNA和蛋白表达水平也显著增加,从而增加脂质氧化并产生更多ATP以缓解能量负平衡[30]。据报道,激活的PPAR可以通过调节奶山羊乳腺上皮细胞中脂肪酸氧化相关酶CPT-1、CPT-2和ACSL-1的活性来调节脂肪酸代谢[31]。SREBP-1c通过激活参与脂肪酸和甘油三酯合成的基因表达优先调节脂肪生成过程[32]。SREBP-1c及其靶基因乙酰辅酶A羧化酶-1(acetyl-CoA carboxylase-1,ACC-1)、脂肪酸合酶(fatty acid synthase,FAS)和硬脂酰辅酶A去饱和酶-1(stearoyl-CoA desaturase-1,SCD-1)的表达被抑制,减少了脂质的合成。但Li等[33]研究发现,在NEFA浓度>1.6 mmol/L时,CPT-1的mRNA和蛋白表达降低。因此,线粒体中脂肪酸的氧化是有限的。有研究表明,BHBA可激活AMPKα,促进PPARα及其靶基因的表达,抑制SREBP-1c及其下游基因的表达;当BHBA浓度超过1.2 mmol/L时,上述蛋白和基因表达的作用则相反[10]。所以,高浓度的BHBA和NEFA减少了肝脏细胞内脂质氧化,增加了脂质合成,引起肝细胞内脂质沉积,导致脂质代谢紊乱,最终导致母羊PT。母羊营养不良时,机体脂肪组织中异柠檬酸脱氢酶1(isocitrate dehydrogenase 1,IDH1)和溶质载体家族25成员1(solute carrier family 25 member 1,SLC25A1)的表达水平以及柠檬酸浓度下调;同时,参与糖酵解的己糖激酶2(hexokinase 2,HK2)和6-磷酸葡萄糖(glucose-6-phosphatase,G-6-P)以及葡萄糖转运载体4(glucose transporter 4,GLUT4)的表达水平均下调,可能影响脂肪酸的合成[34]。妊娠晚期营养不良降低了血液中胰岛素浓度和GLUT4的表达水平,这可能将主要的能量产生系统从葡萄糖代谢转变为脂质代谢。母羊PT分子调控机制见图2
图2 母羊妊娠毒血症的分子调控机制

NEFA:非酯化脂肪酸 non-esterified fatty acid;AMPKα:AMP活化蛋白激酶α AMP activated protein kinase α;PPARα:过氧化物酶体增殖物激活受体α peroxisome proliferator-activated receptor α;SREBP-1c:固醇调节元件结合蛋白-1c sterol regulatory element binding protein-1c;CPT-1:肉碱棕榈酰转移酶-1 carnitine palmitoyltransferase-1;CPT-2:肉碱棕榈酰转移酶-2 carnitine palmitoyltransferase-2;ACSL-1:长链脂酰辅酶A合成酶-1 long-chain acyl-CoA synthetase-1;ACC-1:乙酰辅酶A羧化酶-1 acetyl-CoA carboxylase-1;FAS:脂肪酸合酶 fatty acid synthase;SCD-1:硬脂酰辅酶A去饱和酶-1 stearoyl-CoA desaturase-1。

Fig.2 Molecular regulatory mechanisms of pregnancy toxaemia in ewe

4 母羊PT产生的原因

PT产生的原因比较复杂,是多种致病因素共同导致,其核心病因与机体能量负平衡、胎儿过度消耗、营养管理不当及应激等因素密切相关。体况、代谢、饲粮营养水平和其他因素单独或协同作用都可能影响PT的发生率。

4.1 母羊体况与PT的关系

体况评分(body condition scoring,BCS)是评估羊营养状况和健康水平的重要指标,BCS是通过观察羊脊柱、肋骨、腰部的脂肪和肌肉覆盖程度来评估其能量储备的指标,通常采用5分制(1分极瘦、5分极肥胖),理想的BCS因品种和生理阶段而异,它被广泛用作评估绵羊营养状况的管理工具[35]
妊娠母羊的BCS在2.5~3.5分之间较为合理,适中的体况可平衡能量储备与代谢需求,降低酮体蓄积风险,使PT发病率降低。BCS过高(BCS>4.0分),脂肪沉积过多,可能导致胰岛素抵抗,降低葡萄糖利用效率;同时,母羊肥胖在妊娠后期因腹腔空间受限,采食量显著下降,易发生能量负平衡,机体脂肪动员导致酮体水平升高,PT发病风险增加。BCS过低(BCS<2.0分),能量储备不足,无法满足妊娠后期胎儿的生长需要,机体被迫快速分解脂肪,酮体生产量超过代谢能力,酮体水平升高,尤其是怀多胎时,PT发病风险增加。妊娠后期怀三羔母羊的BCS适宜范围为3.1~3.2分[35]。BCS<2.75分的母羊在围产期(分娩前15 d至产羔后30 d)患病风险比BCS在2.75~3.50分的母羊高0.338倍[36]。有研究表明,妊娠后期母羊血清中BHBA浓度增加与BCS≤2分和BCS≥3分相关[37]。母羊妊娠早期,应调整母羊BCS至理想范围(2.5~3.5分),避免过胖或过瘦;妊娠后期,应分阶段增加能量供给(如补充谷物、优质牧草),避免突然改变饲粮[35,38]。总体而言,要根据BCS和胎儿数量(B超检测)分群管理,对多胎或BCS异常的母羊要单独饲喂高能量饲粮,妊娠后期可进行尿液酮体检测,发现早期酮症及时干预,减少环境应激,避免过度驱赶。

4.2 多胎母羊妊娠的代谢

怀多胎母羊比怀单胎母羊能量消耗高30%~50%,怀多胎的母羊因胎儿数量和体积的增加,子宫及其内容物占据腹腔空间,压缩瘤胃容积,采食量下降,导致能量负平衡,妊娠后期尤为明显[15]。因此,妊娠多胎母羊随着妊娠胎儿数量的增加,母体对能量、蛋白质、矿物元素等营养素的需要量增加,随着妊娠期的延长,子宫及其内容物体积增大,压缩了腹腔肠道容积,限制其物理空间和蠕动功能,母羊摄食能力受限,导致采食量下降;采食量下降和营养需要增加共同导致了机体能量负平衡(血液中葡萄糖浓度下降),机体脂肪动员,血液中NEFA和酮体(BHBA)浓度升高,最终导致PT的发生。

4.3 饲粮营养水平对PT的影响

母羊PT的发生与饲粮营养水平密切相关,科学合理的营养管理可有效降低PT的发病率。妊娠后期母羊特别是怀双羔、三羔的母羊,需要消耗大量的营养素。在妊娠后期,胎儿的主要组织和器官迅速发育,需要消耗大量的碳水化合物、脂肪、蛋白质、维生素和矿物元素等营养素。能量摄入不足与妊娠后期胎儿快速生长使得母体能量需求激增相矛盾,机体脂肪动员,导致酮体(BHBA)蓄积,引发PT;若能量摄入过剩,则导致母体肥胖,增加胰岛素抵抗风险,间接干扰代谢稳态。因此,应在妊娠前期控制母羊体况,妊娠后期逐步提高饲粮能量水平,提高饲粮中易发酵碳水化合物(谷物)比例或糖异生前体物,满足母体及胎儿发育的能量需要。饲粮蛋白质水平过低,限制胎儿发育,加剧母体肌肉分解,增加代谢负担;若饲粮蛋白质水平过高,则增加母体肝脏氨代谢压力,可能抑制采食量,间接导致能量负平衡。B族维生素(维生素B1、维生素B12)参与糖代谢辅酶合成,缺乏会加重能量代谢障碍;低血钙或缺镁可能影响神经肌肉功能,与酮病症状(如瘫痪)相关;硒和维生素E具有抗氧化作用,具有减少机体氧化应激、保护肝脏的功能。饲粮纤维素水平过高,降低饲粮能量水平,限制总能量的摄入;饲粮纤维素水平过低,影响瘤胃健康,导致消化紊乱,降低营养素的吸收效率。因此,应注意平衡粗饲料与精饲料的比例,控制饲粮中中性洗涤纤维的水平(适宜水平28%~32%)。PT的防控以能量平衡为核心,兼顾蛋白质、矿物元素及维生素的合理供给,并结合分阶段(妊娠前期和妊娠后期)饲喂和精准营养(母羊怀单羔、双羔及双羔以上营养需要)供给,通过调整饲粮营养水平,降低代谢紊乱的风险,保障母体及胎儿的健康,有效预防PT的发病率。

5 母羊PT的营养调控

5.1 妊娠期精准营养供给

妊娠期的精准营养供给对于维持母羊的健康和胎儿生长发育至关重要[1]。能量和蛋白质水平是配制饲粮时优先考虑的重要指标。导致母羊PT的核心因素是机体能量代谢障碍,妊娠母羊在妊娠前期(妊娠1~90 d)、妊娠后期(妊娠91~150 d)以及妊娠情况(妊娠单羔、双羔、三羔)不同时对代谢能和蛋白质的需求存在较大差异。按照《肉羊营养需要量》(NY/T 816—2021),1只体重70 kg的妊娠母羊,怀单羔时,妊娠前期能量需要量为12.9 MJ/d、蛋白质需要量为209 g/d,而妊娠后期能量需要量增至15.8 MJ/d(增加22.5%)、蛋白质需要量增至257 g/d(增加23.0%);对于怀双羔的母羊,这种变化更为显著,妊娠前期能量和蛋白质需要量分别为14.7 MJ/d和239 g/d,而妊娠后期能量和粗蛋白质需要量分别增至19.9 MJ/d(增加35.4%)和324 g/d(增加35.6%);而怀三羔的母羊能量和蛋白质需要量则从妊娠前期的16.0 MJ/d和260 g/d增至妊娠后期的22.6 MJ/d(增加41.3%)和368 g/d(增加41.5%)。因此,在妊娠前期,应按照母羊怀单羔、双羔、三羔等情况分群精准饲喂;在妊娠后期,随母羊对能量、蛋白质的需要量急剧上升,应及时调整饲粮能量、蛋白质等营养素的水平,同时保持能氮平衡,提高营养物质的利用效率。妊娠期母羊钙、磷等其他营养素的需要量变化趋势与之类似。《肉羊营养需要量》(NY/T 816—2021)是基于需要量的最低营养标准,在实际应用时要根据妊娠母羊的体重、妊娠时期和怀胎数及时调整饲粮配方,满足其营养需要。在中国北方(新疆、内蒙古)地区,冬、春季节时间较长,部分地区以放牧为主,羊群饲粮中缺少新鲜草料,饲粮组成单一、维生素及矿物质缺乏,特别是当饲喂量不足、饲草料淀粉含量低时极易发生PT[9,39],需引起注意。

5.2 围产期饲粮中添加过瘤胃葡萄糖(rumen-protected glucose,RPG)

母羊妊娠后期,肝脏通过增强糖异生作用来保障母体及胎儿葡萄糖的供应,在妊娠后期每个胎儿每天需要30~40 g葡萄糖,占据母羊葡萄糖产量的很大比例,且母羊产生的葡萄糖优先供给胎儿。在母羊能量负平衡状态下,过度脂肪动员可能超过肝脏代谢能力,导致肝脏脂肪沉积及功能受损,值得注意的是,怀双羔及双羔以上的母羊在葡萄糖生产和酮体代谢方面存在更大的困难,因此更易发生PT。RPG是一种通过物理或化学包被技术处理的葡萄糖制剂,旨在抵抗反刍动物瘤胃微生物的降解,使其能够通过瘤胃,在小肠中被直接消化吸收,解决传统葡萄糖在瘤胃中降解为挥发性脂肪酸的问题,从而更高效地为反刍动物提供能量[40]。在母羊妊娠后期饲粮中添加RPG可以提高能量供应效率,显著提高血糖浓度,减少脂肪动员,降低机体酮体浓度,有效缓解机体能量负平衡,降低PT发病率[41]。此外,葡萄糖是免疫细胞的重要能量来源,补充RPG可缓解应激状态下的免疫抑制。研究显示,饲粮中添加350 g/(d·头)RPG可显著降低奶牛血清中BHBA、NEFA浓度和AST活性,提高血清中葡萄糖浓度以缓解能量负平衡,但不影响奶牛的生产性能[42]。涂远璐等[6]研究表明,在母羊围产期(产前30 d到产后20 d)饲粮中添加15 g/(d·头)RPG,有助于降低血清中BHBA浓度,减少脂肪动员,缓解能量负平衡。饲粮中添加RPG防治母羊PT机制是RPG通过瘤胃在小肠吸收后快速提升血糖浓度,减少脂肪分解,降低酮体的生产;同时,RPG具有调控代谢激素的作用,可提高胰岛素/胰高血糖素比值和瘦素水平,抑制脂肪分解酶活性,减少NEFA的释放,通过下丘脑信号降低食欲抑制,提高采食量;此外,母体血糖浓度的稳定可保障胎盘葡萄糖转运,避免胎儿低血糖导致的宫内发育迟缓,降低死胎率。RPG通过精准能量供应和代谢调控,成为反刍动物营养学的重要突破,尤其在防治母羊PT方面效果显著。

5.3 围产期饲粮中添加烟酸(nicotinic acid,NA)

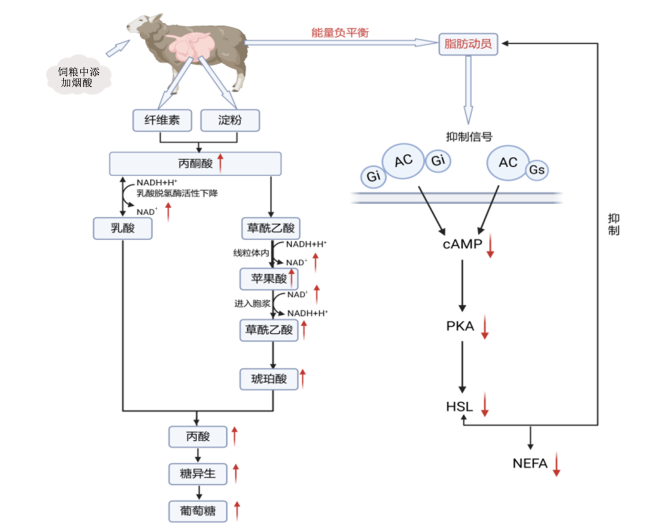
NA是水溶性B族维生素,包括NA(尼克酸)和其衍生物烟酰胺(尼克酰胺),其还是辅酶Ⅰ[烟酰胺腺嘌呤二核苷酸(NAD+)]和辅酶Ⅱ[烟酰胺腺嘌呤二核苷酸磷酸(NADP+)]的前体物质,NA进入机体后,以辅酶Ⅰ和辅酶Ⅱ形式参与糖、脂肪和蛋白质的代谢。NA可被微生物部分降解,通过包被处理可提高其过瘤胃稳定性;NA主要在小肠通过钠依赖性烟酸转运载体——钠偶联单羧酸转运蛋白1(sodium-coupled monocarboxylate transporter 1,SMCT1)吸收,经门静脉进入肝脏,在肝脏细胞中转化为NAD+,参与三羧酸循环和脂肪酸β-氧化,过剩的NA经肾脏排出体外。NA调控PT的机制为:首先,NA可通过激活G蛋白偶联受体109A(G protein-coupled receptor 109A,GPR109A),抑制脂肪分解,降低血液中NEFA浓度,减少肝脏酮体(BHBA)的产生;其次,NA通过提高血液中NAD+浓度,促进丙酸转化为葡萄糖,增强糖异生,提高血糖浓度,缓解机体能量负平衡;此外,NA通过调节胰岛素的敏感性,改善脂肪细胞胰岛素信号通路,促进葡萄糖的摄取,同时通过还原型辅酶Ⅰ[还原型烟酰胺腺嘌呤二核苷酸(NADH)]维持机体抗氧化系统功能,减少氧化应激损伤,抑制核因子-κB(nuclear factor-κB,NF-κB)通路,降低炎症因子[肿瘤坏死因子-α(tumor necrosis factor-α,TNF-α)、白细胞介素-6(interleukin-6,IL-6)]的表达[43]。围产期饲粮中添加烟酰胺可改变瘤胃发酵模式,使其趋向于丙酸型发酵,缓解机体能量负平衡[44]。研究表明,烟酰胺能够提高荷斯坦奶牛瘤胃发酵效率,提高瘤胃液中NAD+浓度[45]。NAD+是NADH的竞争性抑制剂,对乳酸脱氢酶有抑制作用[46]。在高精料饲粮中添加NA增加了绵羊瘤胃液中丙酮酸、苹果酸和琥珀酸的浓度[47]。饲粮中添加NA可以提高反刍动物瘤胃内NAD+浓度,降低乳酸脱氢酶的活性,减少乳酸生成,促进乳酸向丙酮酸的转换,使丙酮酸浓度升高[48]。丙酮酸通过琥珀酸途径首先在线粒体内在丙酮酸羧化酶的催化下羧化变成草酰乙酸,由于线粒体内膜上缺乏草酰乙酸的载体,草酰乙酸必须通过特定的转运途径才能进入胞浆进行后续的反应。此时,草酰乙酸被还原为苹果酸,苹果酸离开线粒体进入胞浆,重新被氧化为草酰乙酸,促进丙酸的产生。瘤胃发酵产生的丙酸是肝脏糖异生的主要前体物,糖异生是反刍动物主要的供能形式,丙酸浓度升高,有利于肝脏糖异生,为反刍动物在围产期提供更多的能量,缓解自身的能量负平衡[16]。NA可通过抑制脂肪分解,降低血液中NEFA的浓度,从而减少酮体的产生。脂肪动员由HSL催化,HSL通过蛋白激酶A(protein kinase A,PKA)的磷酸化而被激活,PKA由环腺苷酸(cyclic adenosine monophosphate,cAMP)激活,cAMP又由腺苷酸环化酶(adenylate cyclase,AC)产生,AC由与7个跨膜结构域G蛋白偶联受体连接的刺激型G蛋白(stimulatory G protein,Gs)或抑制型G蛋白(inhibitory G protein,Gi)调节,NA进入体内后会立即与脂肪组织中的G蛋白受体结合,产生抑制性G蛋白信号,从而降低脂肪细胞中cAMP浓度,抑制脂肪分解,进而降低血液中NEFA浓度[49]。因此,母羊妊娠后期饲粮中添加NA,可通过增强机体糖异生、抑制脂肪分解、调节胰岛素敏感性、提高机体血糖浓度、降低血液NEFA浓度、减少酮体(BHBA)的生成来有效降低PT的发病率。围产期饲粮中添加NA缓解母羊PT的机制如图3所示。
图3 围产期饲粮中添加烟酸缓解母羊PT的机制

NADH:还原型烟酰胺腺嘌呤二核苷酸 reduced nicotinamide adenine dinucleotide;H+:氢离子 hydrion;NAD+:烟酰胺腺嘌呤二核苷酸 nicotinamide adenine dinucleotide;Gi:刺激型G蛋白 stimulatory G protein;Gs:抑制型 G蛋白inhibitory G protein;AC:腺苷酸环化酶 adenylate cyclase;cAMP:环核苷酸 cyclic adenosine monophosphate;PKA:蛋白激酶A protein kinase A;HSL:激素敏感性脂肪酶 hormone-sensitive triglyceride lipase;NEFA:非酯化脂肪酸 non-esterified fatty acid。

Fig.3 Mechanism of adding nicotinic acid to periparturient diets to alleviate pregnancy toxemia in ewe

6 小结

母羊PT具有发病急,死亡率高的特点,严重影响着现代肉羊养殖场的经济效益。PT的有效预防对提高母羊生产力、养殖场经济效益以及动物福利至关重要。现有对于PT发病机制的研究还较为浅显,分子层面上的各组织器官相互作用机制鲜有报道。因此,未来的研究可在分子水平继续研究PT发病机制,聚焦于代谢重编程的分子调控网络解析,开发基于代谢组学的早期预警标志物,优化过瘤胃营养素缓释技术,并建立不同品种/胎次母羊的动态营养需求模型,实现母羊的健康繁殖,为精准防控提供理论支撑。
[1]
JI X Y, LIU N, WANG Y Q, et al. Pregnancy toxemia in ewes:a review of molecular metabolic mechanisms and management strategies[J]. Metabolites, 2023, 13(2):149.

[2]
ROOK J S. Pregnancy toxemia of ewes,does,and beef cows[J]. The Veterinary Clinics of North America:Food Animal Practice, 2000, 16(2):293-317.

[3]
贾学敬, 汤海江, 张凯, 等. 围产期母羊妊娠毒血症营养调控研究进展[J]. 饲料研究, 2020, 43(11):121-124.

JIA X J, TANG H J, ZHANG K, et al. Research progress on nutrition regulation of pregnancy tox-emia in perinatal ewe[J]. Feed Research, 2020, 43(11):121-124. (in Chinese)

[4]
WU W B, LU H Z, CHENG J B, et al. Undernutrition disrupts cecal microbiota and epithelium interactions,epithelial metabolism,and immune responses in a pregnant sheep model[J]. Microbiology Spectrum, 2023, 11(2):e05320-e05322.

[5]
张昕乐, 王智博, 陈培勇, 等. 围产期湖羊能量负平衡下添加三丁酸甘油酯对羔羊瘤胃发酵指标及微生物多样性的影响[J]. 南京农业大学学报, 2023, 46(5):933-938.

ZHANG X L, WANG Z B, CHEN P Y, et al. Effects of tributyrin supplementation on rumen fermentation indexes and microbial diversity of lambs under negative energy balance in perinatal Hu sheep[J]. Journal of Nanjing Agricultural University, 2023, 46(5):933-938. (in Chinese)

[6]
涂远璐, 汤海江, 张凯, 等. 过瘤胃胆碱和过瘤胃葡萄糖对围产期母羊健康、血清生化指标及产羔性能的影响[J]. 动物营养学报, 2022, 34(12):7935-7944.

DOI

TU Y L, TANG H J, ZHANG K, et al. Effects of rumen-protected choline and rumen-protected glucose on health,serum biochemical indices and lambing performance of perinatal ewes[J]. Chinese Journal of Animal Nutrition, 2022, 34(12):7935-7944. (in Chinese)

[7]
KALYESUBULA M, ROSOV A, ALON T, et al. Intravenous infusions of glycerol versus propylene glycol for the regulation of negative energy balance in sheep:a randomized trial[J]. Animals, 2019, 9(10):731.

[8]
AFFAN A A, SALLEH A, ZAMRI-SAAD M, et al. Clinical signs and blood variables of pregnancy toxemia goats during late gestation and postpartum[J]. Tropical Animal Science Journal, 2022, 45(1):84-90.

[9]
王杰, 刘丽娅, 韩涛, 等. 羊妊娠毒血症的诊断与防治[J]. 畜牧兽医杂志, 2017, 36(2):134-136.

WANG J, LIU L Y, HAN T, et al. Diagnosis and prevention for pregnancy toxemia of sheep[J]. Journal of Animal Science and Veterinary Medicine, 2017, 36(2):134-136. (in Chinese)

[10]
ZOU D M, LIU R N, SHI S J, et al. BHBA regulates the expressions of lipid synthesis and oxidation genes in sheep hepatocytes through the AMPK pathway[J]. Research in Veterinary Science, 2021, 140:153-163.

DOI PMID

[11]
FEIJÓ J O, SCHNEIDER A, SCHMITT E, et al. Prepartum administration of recombinant bovine somatotropin (rBST)on adaptation to subclinical ketosis of the ewes and performance of the lambs[J]. Arquivo Brasileiro de Medicina Veterinária e Zootecnia, 2015, 67(1):103-108.

[12]
SOUTO R J C, SOARES G S L, MACEDO A T M, et al. Protein,enzymatic and mineral indicators of clinical and subclinical pregnancy toxemia during the transitional period in dairy goats[J]. Ciência Animal Brasileira, 2023, 24:e-75182E.

[13]
IQBAL R, BEIGH S A, MIR A Q, et al. Evaluation of metabolic and oxidative profile in ovine pregnancy toxemia and to determine their association with diagnosis and prognosis of disease[J]. Tropical Animal Health and Production, 2022, 54(6):338.

DOI PMID

[14]
王青青, 胡建军, 王娜, 等. 新疆南疆某规模羊场小尾寒羊妊娠毒血症诊断与分析[J]. 畜牧与饲料科学, 2016, 37(6):129-131.

WANG Q Q, HU J J, WANG N, et al. Diagnosis and analysis of pregnancy toxaemia of smalltail Han sheep in a scaled sheep farm in South Xinjiang[J]. Animal Husbandry and Feed Science, 2016, 37(6):129-131. (in Chinese)

[15]
JIN B Y, WANG R Q, HU J D, et al. Analysis of fecal microbiome and metabolome changes in goats with pregnant toxemia[J]. BMC Veterinary Research, 2024, 20(1):2.

DOI PMID

[16]
胡家达. 妊娠毒血症山羊粪便微生物和代谢组学变化分析[D].硕士学位论文. 合肥: 安徽农业大学, 2022.

HU J D. Analysis of fecal microbiological and metabolomic changes in goats with pregnant toxemia[D].Master’s Thesis. Hefei: Anhui Agricultural University, 2022. (in Chinese)

[17]
NISAR M, BEIGH S A, MIR A Q, et al. Association of vitamin D status with redox balance and insulin resistance and its predicting ability for subclinical pregnancy toxemia in pregnant sheep[J]. Domestic Animal Endocrinology, 2024, 86:106823.

[18]
ZHOU P, MCEVOY T G, GILL A C, et al. Investigation of relationship between vitamin D status and reproductive fitness in Scottish hill sheep[J]. Scientific Reports, 2019, 9(1):1162.

DOI PMID

[19]
徐楠. 皖北地区羊妊娠毒血症病因调查及生化指标分析[D].硕士学位论文. 合肥: 安徽农业大学, 2019.

XU N. Investigation on the causes of pregnancy-induced toxemia in sheep in northern Anhui Province and analysis of biochemical indicators[D].Master’s Thesis. Hefei: Anhui Agricultural University, 2019. (in Chinese)

[20]
WILTROUT D W, SATTER L D. Contribution of propionate to glucose synthesis in the lactating and nonlactating cow[J]. Journal of Dairy Science, 1972, 55(3):307-317.

PMID

[21]
DUEHLMEIER R, FLUEGGE I, SCHWERT B, et al. Insulin sensitivity during late gestation in ewes affected by pregnancy toxemia and in ewes with high and low susceptibility to this disorder[J]. Journal of Veterinary Internal Medicine, 2013, 27(2):359-366.

DOI PMID

[22]
王吉, 刘翔燕, 李晓文, 等. 新疾病:母羊生殖应激及其综合征[J]. 畜牧兽医学报, 2022, 53(12):4159-4171.

DOI

WANG J, LIU X Y, LI X W, et al. New disease:ewe’s reproductive stress and its syndrome[J]. Acta Veterinaria et Zootechnica Sinica, 2022, 53(12):4159-4171. (in Chinese)

DOI

[23]
ALON T, MATAS D, KOREN L, et al. Higher cortisol and testosterone levels in sheep with larger litter sizes[J]. Livestock Science, 2021, 243:104381.

[24]
YANG H, WANG Y, MA C, et al. Effects of feed intake restriction during late pregnancy on the function,anti-oxidation capability and acute phase protein synthesis of ovine liver[J]. Asian-Australasian Journal of Animal Sciences, 2019, 32(2):217-223.

[25]
SCHLUMBOHM C, HARMEYER J. Hyperketonemia impairs glucose metabolism in pregnant and nonpregnant ewes[J]. Journal of Dairy Science, 2004, 87(2):350-358.

PMID

[26]
ANTEVELI G, OLIVEIRA C S, ALVES B A, et al. Effective treatment of a case of pregnancy toxemia in sheep—case report[J]. Arquivo Brasileiro de Medicina Veterinária e Zootecnia, 2023, 75(2):254.

[27]
BROZOS C, MAVROGIANNI V S, FTHENAKIS G C. Treatment and control of peri-parturient metabolic diseases:pregnancy toxemia,hypocalcemia,hypomagnesemia[J]. The Veterinary Clinics of North America:Food Animal Practice, 2011, 27(1):105-113.

[28]
KAWAGUCHI T, OSATOMI K, YAMASHITA H, et al. Mechanism for fatty acid “sparing” effect on glucose-induced transcription:regulation of carbohydrate-responsive element-binding protein by AMP-activated protein kinase[J]. Journal of Biological Chemistry, 2002, 277(6):3829-3835.

[29]
BORDOLOI J, OZAH D, BORA T, et al. Gamma-glutamyl carboxylated Gas6 mediates the beneficial effect of vitamin K on lowering hyperlipidemia via regulating the AMPK/SREBP1/PPARα signaling cascade of lipid metabolism[J]. The Journal of Nutritional Bi-ochemistry, 2019, 70:174-184.

[30]
LI X W, LI X B, CHEN H, et al. Non-esterified fatty acids activate the AMP-activated protein kinase signaling pathway to regulate lipid metabolism in bovine hepatocytes[J]. Cell Biochemistry and Biophysics, 2013, 67(3):1157-1169.

DOI PMID

[31]
SHI H B, ZHANG C H, ZHAO W, et al. Peroxisome proliferator-activated receptor delta facilitates lipid secretion and catabolism of fatty acids in dairy goat mammary epithelial cells[J]. Journal of Dairy Science, 2017, 100(1):797-806.

DOI PMID

[32]
LI Y, XU S Q, MIHAYLOVA M M, et al. AMPK phosphorylates and inhibits SREBP activity to attenuate hepatic steatosis and atherosclerosis in diet-induced insulin-resistant mice[J]. Cell Metabolism, 2011, 13(4):376-388.

DOI PMID

[33]
LI B Y, WU W B, LU H Z, et al. Undernutrition affects metabolism and immune response in subcutaneous adipose tissue of pregnant ewes[J]. The FASEB Journal, 2025, 39(1):e70259.

[34]
FAZELI P K, ZHANG Y, O’KEEFE J, et al. Prolonged fasting drives a program of metabolic inflammation in human adipose tissue[J]. Molecular Metabolism, 2020, 42:101082.

[35]
KARAGIANNIS I, PANOUSIS N, KIOSSIS E, et al. Associations of pre-lambing body condition score and serum β-hydroxybutyric acid and non-esterified fatty acids concentrations with periparturient health of Chios dairy ewes[J]. Small Ruminant Research, 2014, 120(1):164-173.

[36]
HASLIN E, ALLINGTON T, BLUMER S E, et al. Management of body condition score between pregnancy scanning and lamb marking impacts the survival of triplet-bearing ewes and their lambs[J]. Animals, 2023, 13(13):2057.

[37]
RATANAPOB N, VANLEEUWEN J, MCKENNA S, et al. The association of serum β-hydroxybutyrate concentration with fetal number and health indicators in late-gestation ewes in commercial meat flocks in Prince Edward island[J]. Preventive Veterinary Medi-cine, 2018, 154:18-22.

[38]
EGGIMANN H, REDIGER I, HIRSBRUNNER G, et al. Infectious and non-infectious causes for pregnancy loss in South American camelids—a review[J]. Animal Reproduction Science, 2024, 268:107571.

[39]
CRILLY J, PHYTHIAN C, EVANS M. Advances in managing pregnancy toxaemia in sheep[J]. In Practice, 2021, 3(2):79-94.

[40]
LI X P, TAN Z L, JIAO J Z, et al. Supplementation with fat-coated rumen-protected glucose during the transition period enhances milk production and influences blood biochemical parameters of liver function and inflammation in dairy cows[J]. Animal Feed Science and Technology, 2019, 252:92-102.

[41]
WANG Y P, CAI M, HUA D K, et al. Metabolomics reveals effects of rumen-protected glucose on metabolism of dairy cows in early lactation[J]. Animal Feed Science and Technology, 2020, 269:114620.

[42]
张国华, 李强, 金振华, 等. 过瘤胃葡萄糖对泌乳早期奶牛体况、血清生化指标、产奶量、乳成分的影响[J]. 中国饲料, 2023(15):94-98.

ZHANG G H, LI Q, JIN Z H, et al. Effects of rumen-passing glucose on body condition,serum biochemical indexes,milk yield and milk composition of dairy cows in early lactation[J]. China Feed, 2023(15):94-98. (in Chinese)

[43]
魏筱诗, 姚军虎, 王翀. 烟酸和烟酰胺在反刍动物机体代谢及生产研究中的异同性[J]. 动物营养学报, 2020, 32(12):5509-5515.

DOI

WEI X S, YAO J H, WANG C. Similarities and differences of niacin and niacinamide in study on metabolism and production of ruminant[J]. Chinese Journal of Animal Nutrition, 2020, 32(12):5509-5515. (in Chinese)

[44]
尹清艳. 烟酰胺对围产期奶山羊氧化应激状态的影响及初步机制[D].硕士学位论文. 杨凌: 西北农林科技大学, 2019.

YIN Q Y. Nicotinamide regulates oxidative stress in dairy goats during the transition period[D].Master’s Thesis. Yangling: Northwest A&F University, 2019. (in Chinese)

[45]
刘拓, 努热耶·吾斯曼, 臧长江, 等. 烟酰胺对泌乳期奶牛瘤胃乳酸代谢及其相关酶活力的影响[J]. 中国畜牧兽医, 2023, 50(12):4868-4875.

DOI

LIU T, NUREYE W, ZANG C J, et al. Effects of nicotinamide on rumen lactate metabolism and related enzyme activities in lactating dairy cows[J]. China Animal Husbandry & Veterinary Medicine, 2023, 50(12):4868-4875. (in Chinese)

[46]
南冰禹, 李浩东, 臧长江, 等. 烟酰胺对泌乳奶牛生产性能及营养物质表观消化率的影响[J]. 中国畜牧兽医, 2024, 51(1):96-105.

DOI

NAN B Y, LI H D, ZANG C J, et al. Effects of niacinamide on production performance and nutrient apparent digestibility of lactating dairy cows[J]. China Animal Husbandry & Veterinary Medicine, 2024, 51(1):96-105. (in Chinese)

[47]
杨艳, 瞿明仁, 欧阳克蕙, 等. 烟酸对锦江黄牛瘤胃乳酸、挥发性脂肪酸浓度及相关酶活性的影响[J]. 动物营养学报, 2013, 25(7):1610-1616.

DOI

YANG Y, QU M R, OUYANG K H, et al. Effects of nicotinic acid on lactate and volatile fatty acid concentrations,and related enzyme activities in rumen of Jinjiang cattle[J]. Chinese Journal of Animal Nutrition, 2013, 25(7):1610-1616. (in Chinese)

[48]
成志强, 管勤超, 臧长江, 等. 高精料饲粮中添加烟酸对绵羊瘤胃内乳酸代谢及其相关酶活性的影响[J]. 动物营养学报, 2023, 35(10):6507-6515.

DOI

CHENG Z Q, GUAN Q C, ZANG C J, et al. Effects of niacin supplementation in high-concentrate diets on rumen lactate metabolism and its related enzyme activities of sheep[J]. Chinese Journal of Animal Nutrition, 2023, 35(10):6507-6515. (in Chinese)

DOI

[49]
KARPE F, FRAYN K N. The nicotinic acid receptor—a new mechanism for an old drug[J]. Lancet, 2004, 363(9424):1892-1894.

文章导航

/