综述

动物母仔间二十二碳六烯酸的传递及作用机制

  • 柳禄灵 , 1, 2 ,
  • 李光燃 1, 2 ,
  • 王婧 1, 2 ,
  • 谭碧娥 , 1, 2, *
展开
  • 1 湖南农业大学动物科学技术学院,畜禽产品品质调控湖南省重点实验室,长沙 410128
  • 2 岳麓山实验室,长沙 410128
* 谭碧娥,教授,博士生导师,E-mail:

柳禄灵(2001—),男,湖南邵阳人,硕士研究生,从事动物营养与饲料科学研究。E-mail:

Copy editor: 靳爽

收稿日期: 2024-12-18

  网络出版日期: 2025-07-12

基金资助

湖南省自然科学基金项目(2024JJ1004)

Transfer and Action Mechanism of Docosahexaenoic Acid between Maternity and Offspring of Animals

  • LIU Luling , 1, 2 ,
  • LI Guangran 1, 2 ,
  • WANG Jing 1, 2 ,
  • TAN Bi’e , 1, 2, *
Expand
  • 1 Key Laboratory for Quality Regulation of Livestock and Poultry Products of Hunan Province, College of Animal Science and Technology, Hunan Agricultural University, Changsha 410128, China
  • 2 Yuelushan Laboratory, Changsha 410128, China
* professor, E-mail:

Received date: 2024-12-18

  Online published: 2025-07-12

摘要

二十二碳六烯酸(DHA)是一种必需ω-3多不饱和脂肪酸(ω-3 PUFAs),在动物机体的神经发育和免疫功能方面发挥关键作用,对母体健康、胎儿发育及子代早期生长至关重要。妊娠期母体摄入的DHA主要以游离脂肪酸或脂蛋白的形式经血液循环转运至胎盘和乳腺中,通过胎盘和乳汁传递给子代。此外,肠道微生物群通过调节母体自身代谢、免疫功能和营养物质吸收效率等方式,间接促进DHA在母仔间的传递。为明确DHA在母仔传递中的关键作用及其生物学机制,本文综述了国内外相关领域的研究进展,重点论述DHA在母仔间的传递路径及机制,为研究母仔一体化营养调控提供参考。

本文引用格式

柳禄灵 , 李光燃 , 王婧 , 谭碧娥 . 动物母仔间二十二碳六烯酸的传递及作用机制[J]. 动物营养学报, 2025 , 37(7) : 4220 -4232 . DOI: 10.12418/CJAN2025.345

Abstract

Docosahexaenoic acid (DHA) is an essential omega-3 polyunsaturated fatty acid (ω-3 PUFAs) that plays a crucial role in neurodevelopment and immune function of animal organisms. It is crucial for maternal health, fetal development, and early offspring growth. Maternal intake of DHA during pregnancy is primarily transported to the placenta and mammary glands in the form of free fatty acids or lipoproteins through blood circulation, and subsequently transferred to the offspring via the placenta and breast milk. Additionally, the gut microbiota indirectly promotes the maternal-offspring transfer of DHA by regulating the maternal metabolism, immune function and nutrient absorption efficiency, among other means. In order to elucidate the crucial role of DHA in maternal-offspring transfer and its biological mechanisms, this paper reviews the research progress in related fields both domestically and internationally. It focuses on discussing the transfer pathways and mechanisms of DHA between maternity and offspring, aiming to offer a reference for the study of integrated maternal-offspring nutritional regulation.

脂肪酸作为脂质的基本组成部分,主要由碳、氢、氧3种原子构成,根据碳链的长度可将其分为短链脂肪酸(short-chain fatty acids,SCFAs)、中链脂肪酸(medium-chain fatty acids,MCFAs)、长链脂肪酸(long-chain fatty acids,LCFAs),根据饱和程度可将其分为饱和脂肪酸和不饱和脂肪酸,这些脂肪酸具有储存能量、构建细胞膜和参与信号传导等作用。二十二碳六烯酸(docosahexaenoic acid,DHA)是一种必需长链多不饱和脂肪酸(polyunsaturated fatty acids,PUFAs),广泛存在于深海鱼类和藻类之中,对胎儿的大脑和视网膜发育具有重要作用[1]。妊娠后期,胎儿大脑的快速发育和成熟需要充足的DHA,以支持其神经元增殖、分化及髓鞘和突触形成。因此,DHA在母仔间的有效传递对保障子代健康起着关键作用[2]
母体通过胎盘和乳汁将营养物质、免疫因子及其他生物活性物质传递给子代,这一过程对胎儿的生长发育和免疫系统的成熟至关重要。传递的物质不仅包括葡萄糖、氨基酸等基本营养物质,还涵盖维生素、矿物质和脂肪酸(如DHA)等对胎儿发育具有重要意义的生物活性物质[3]。在妊娠期与哺乳期,母体摄入的DHA主要以游离脂肪酸和脂蛋白的形式在血液中转运,并最终富集于胎盘和乳腺中。胎盘中的特定转运蛋白能够识别并结合DHA,促进其从母体血液进入胎儿体内,从而满足胎儿对DHA的需求[4]。在哺乳过程中,DHA依靠特定的脂肪酸转运蛋白和载脂蛋白从母体血液转移到乳腺,并通过乳汁传递给子代。哺乳期确保母体摄入足够的DHA,有助于提高母乳中DHA的水平,促进DHA在母仔之间有效传递[5]。此外,越来越多的研究表明,DHA与肠道微生物之间存在相关性,DHA可调节肠道微生物群落结构,肠道微生物也能影响DHA的代谢和吸收[6]。DHA与肠道微生物之间的协同作用会影响子代获取母源DHA的效率,从而为子代早期的生长发育和免疫系统的建立提供支持。在当前动物营养领域的研究中,母仔营养一体化越来越受到重视,为了明确DHA在母仔营养传递中的关键作用及机制,进而实施科学合理的营养调控措施,推动畜牧业的可持续发展,本文将从DHA的生理功能、在母体内的积累途径、在母仔间传递的机制及母体DHA水平对子代生长发育和免疫功能的影响4个方面展开论述,为研究母仔一体化营养调控提供参考。

1 DHA的生理功能

1.1 DHA对神经系统发育的影响

DHA作为大脑和视网膜的主要脂质成分,在大脑的ω-3 PUFAs中占比超过90%,它主要以磷脂的形式在神经元细胞和星形胶质细胞的质膜上积累,是大脑灰质中膜磷脂的重要组成部分,对神经元的膜结构与功能以及神经系统的发育有重要作用[7]。DHA的结构特性为神经元质膜提供了灵活性和流动性,能有效促进G蛋白、离子通道、酶和神经受体的横向运动,进而提高细胞间的信号传导效率。此外,大脑中的神经胶质细胞(尤其是星形胶质细胞)可以通过α-亚麻酸(alpha-linolenic acid,ALA)等前体物质合成DHA。DHA还能够调节与呼吸链功能和ATP合成相关的神经元能量生成基因的表达,维持神经元细胞的电兴奋性,并通过多种机制参与神经元的生长、迁移、突触形成、突触可塑性和基因表达,对神经系统的发育和功能具有重要影响[8]。研究表明,妊娠期和哺乳期母体的DHA水平与子代早期的认知能力、视觉功能以及整体神经发育密切相关。适宜的DHA水平有助于新生儿神经元的生长、分化以及复杂神经网络的建立,从而为新生儿提供更好的学习和记忆基础[9-10]

1.2 DHA对免疫功能的影响

DHA在免疫调节、抗炎和抗氧化方面发挥着重要作用。妊娠期母体摄入适宜水平的DHA不仅有助于调节母体的免疫反应,减少炎症因子的产生,还能改善胎盘功能及营养物质的输送效率,从而促进胎儿的正常发育和免疫功能的完善。DHA的结构特性使其能有效嵌入免疫细胞的细胞膜中,通过竞争性抑制花生四烯酸(arachidonic acid,ARA)的代谢路径以及抑制促炎因子核因子-κB(nuclear factor-κB,NF-κB)的激活等途径,减少炎症介质的生成,降低炎症标志物的水平[6,11]。同时,DHA能够通过膜受体如G蛋白偶联受体120(G-protein coupled receptor 120,GPR120)直接作用于炎症细胞,激活细胞内NF-κB、腺苷酸活化蛋白激酶(adenosine monophosphate-activated protein kinase,AMPK)、磷脂酰肌醇3-激酶(phosphatidylinositol 3-kinase,PI3K)/蛋白激酶B(protein kinase B,Akt)等信号通路,抑制促炎因子的产生,维持机体的免疫稳态[12]。DHA还可以通过增加内源性抗氧化酶的活性,减少与氧化应激相关的线粒体功能障碍和内皮细胞凋亡,调节氧化信号通路并发挥抗氧化作用[13]。此外,DHA还与肠道微生物之间存在密切的相互作用,这种相互作用能有效调节机体内促炎介质和抗炎介质的水平,改变肠道微生物的组成,并降低脂多糖(lipopolysaccharide,LPS)、葡聚糖硫酸钠(dextran sulfate sodium,DSS)或过氧化氢(H2O2)引起的肠上皮细胞损伤,有助于维持肠壁的完整性,减少与肠道相关的免疫反应[14-15]

1.3 其他作用

DHA作为一种功能性脂肪酸,除了支持机体神经系统的发育及免疫功能外,还能调节癌症关键基因的表达,如B细胞淋巴瘤-2(B-cell lymphoma-2,Bcl-2)、PI3KNF-κB、磷酸化蛋白激酶B(phosphorylated protein kinase B,p-Akt)等,从而降低癌症风险[16]。妊娠期DHA的摄入与子痫前期、妊娠期糖尿病、早产、宫内生长受限及产后抑郁等妊娠并发症有关,但目前关于DHA摄入对母体妊娠并发症防治效果的研究较为有限且存在争议[17]。此外,DHA还是一种对心脏、心血管和大脑功能有益的生物活性化合物,在治疗心血管疾病和认知功能障碍方面具有很大的潜力[18]

2 DHA在母体内的积累途径

DHA在母体内的积累主要依靠摄入富含DHA的外源性食物或补充剂,其次是通过体内ALA等前体物质进行生物合成,但这一过程转化效率较低。母体借助这2种途径提高血液中的DHA水平,在相关脂肪酸转运蛋白的作用下,DHA被运输至各个器官,维持母体的代谢状态及免疫功能。同时,DHA还会通过乳汁和胎盘传递给胎儿,保障胎儿神经系统的发育及免疫功能的建立。

2.1 外源性摄入

一般情况下,动物机体自身不能合成DHA,或者合成的量无法满足机体需要,因此必须从外源摄取。深海鱼类是DHA常见的食物来源,其富含DHA和二十碳五烯酸(eicosapentaenoic acid,EPA),且这些营养成分易被机体吸收利用,具有较高的生物可利用性[19]。此外,转基因植物也可作为DHA的来源。研究表明,经过基因改造的亚麻荠中的油脂含量超过35%,其中PUFAs如DHA、EPA的含量与鱼油中的含量相近[20]。畜禽通过饲粮摄取的DHA主要以酯化的形式存在于体内,经过一系列代谢转化后储存在肌肉、乳腺等组织中,并最终以肉、蛋、奶的形式作为人体补充DHA的外源性食物[20-21]
近年来,利用微生物合成ω-3 PUFAs的技术日益成熟,特别是对微藻、丝状真菌、产油酵母菌的应用。这不仅改善了ω-3 PUFAs供应短缺、品质不稳定的问题,还拓宽了其应用范围。以微藻为例,微藻油与鱼油不同,鱼油中含有丰富的DHA和EPA,但EPA对血管的软化作用使其不适合用于婴幼儿补充;而微藻油具有低EPA、高DHA的特点,可成为母体和婴幼儿补充DHA的理想来源[22]。此外,微藻生长速度快、培养周期短、二氧化碳(CO2)固定能力强且储存脂质能力优越,其生产的DHA更容易被机体吸收和代谢,具有较高的稳定性和生物利用度,是生产DHA的潜力微生物。目前,已经有多种微藻(如莱茵衣藻、盐藻、拟微球藻、裂壶藻等)生产的DHA藻油获得新资源食品认证,可作为婴幼儿补充DHA的新来源。微藻中DHA的合成效率通常受发酵条件和基因工程手段的影响。一方面,可以通过改变培养环境,如调整温度、光照、培养基成分等参数,调控微藻的脂质代谢,加快微藻的生长速度,进而提高其生物量及脂质合成能力;另一方面,基因工程技术的进步也为微藻生产DHA提供了新的思路。现有的研究主要集中在对模式微藻菌株的遗传改造上,如拟微球藻、灰藻和莱茵衣藻。研究表明,在灰藻中异源引入绿藻来源的Δ6去饱和酶和Δ5延长酶能显著增加其DHA含量[23]。然而,由于藻类基因组复杂,且不同微藻菌株在生物学特性上存在差异,目前缺乏通用的基因编辑工具,未来的研究可以针对微藻特定的基因组,开发更高效、特异性更强的微藻基因编辑系统。

2.2 内源性合成

母体除了依赖外源性食物补充DHA外,还能通过前体物质ALA在体内的代谢途径合成DHA。ALA不仅是体内合成DHA的直接脂肪酸来源,还是一种重要的PUFAs。哺乳动物由于缺乏Δ15去饱和酶,不能在体内通过亚油酸(linoleic acid,LA)合成ALA,因此需要从外界摄取,以支持母体自身DHA的生物合成。但是,哺乳动物可以通过过表达编码ω-3 PUFAs去饱和酶的脂肪酸去饱和酶(fatty acid desaturase,FADS)1基因,促进机体内源性ω-6 PUFAs向ω-3 PUFAs转变,进而转化为DHA。这些途径都需要ALA在体内经过一系列的去饱和、延伸和β-氧化步骤来合成DHA。首先,ALA(C18:3n-3)在FADS2催化Δ6去饱和反应的作用下生成十八碳四烯酸(stearidonic acid,SDA,C18:4n-3),进而通过超长链脂肪酸延伸酶5(elongase of very long chain fatty acid 5,ELOVL5)的延伸作用生成二十碳四烯酸(eicosatetraenoic acid,ETA,C20:4n-3),随后由FADS1催化Δ5去饱和反应生成EPA(C20:5n-3),EPA在ELOVL2/5的2次延伸和FADS2的去饱和反应下生成二十四碳六烯酸(tetracosahexaenoic acid,THA,C24:6n-3),并最终在过氧化物酶体中进行β-氧化生成DHA(C22:6n-3)。DHA合成过程的初始步骤发生在内质网中,而EPA的β-氧化过程发生在过氧化物酶体中,需要依赖特定基因的参与,如酰基辅酶A氧化酶和过氧化物酶体硫解酶[24-26]。近年来有关DHA生物合成途径的研究主要集中在FADS和ELOVL的功能和基因调控方面。脂肪酸前体物质LA和ALA在体内转化为长链PUFAs时具有很大的遗传变异性,FADSELOVL基因的单核苷酸多态性(single nucleotide polymorphism,SNP)可能改变FADS1、FADS2和ELOVL的活性或基因表达,从而影响DHA和EPA的合成[27]。研究发现,FADS基因中的特异性SNP rs174537与体内EPA和DHA的循环水平有很强的相关性,影响体内ALA转化为EPA和DHA的效率[28]。在反刍动物中,其丰富的瘤胃微生物群可以在一系列酶(如脂肪酶、氢化酶、脱氢酶等)的协同作用下通过生物氢化途径合成少量DHA,并将这些DHA运输至各个器官组织[29]。此外,DHA的内源性生物合成还受到膳食组成、生理状态及组织差异等因素的影响。由于ω-3 PUFAs和ω-6 PUFAs的生物合成共用一套FADS和ELVOL酶系,因此膳食中ω-3 PUFAs与ω-6 PUFAs的比例会直接影响体内DHA的生物合成效率[30]

3 DHA在母仔间传递的机制

3.1 胎盘

胎盘的代谢状态会影响胎儿关键营养物质、激素、活性氧和炎症细胞因子的供应,胎盘脂肪酸代谢对母体妊娠过程和胎儿结局至关重要[31]。母体脂肪酸,特别是DHA,参与母体妊娠的各个阶段,是胎盘和胎儿生长发育所需的关键营养物质。虽然胎盘是母体和胎儿交换营养物质的中转站,但其自身合成DHA的效率却很低,母体必须通过营养物质的摄入和动员脂肪储备来提高体内DHA的水平,并在各种脂肪酸转运载体如脂肪酸转运蛋白(fatty acid transporter protein,FATP)、脂肪酸移位酶/分化簇36(fatty acid translocase/cluster of differentiation 36,FAT/CD36)和细胞质脂肪酸结合蛋白(fatty acid binding protein,FABP)的作用下,将DHA通过胎盘传递给胎儿,确保胎儿获得足够的DHA[32]
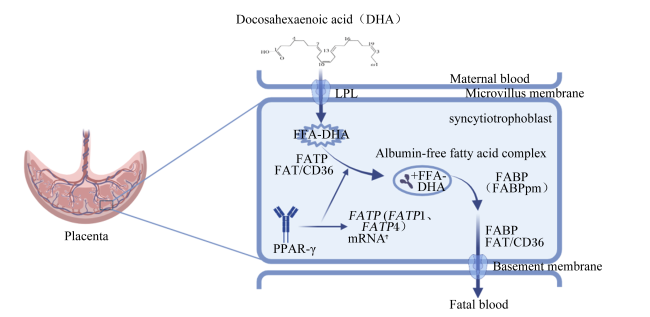
DHA主要参与妊娠早期胎盘滋养层细胞的增殖和血管生成,并在中后期通过胎盘转运机制运输给胎儿[4,33]。DHA在母胎界面的跨膜机制主要涉及一些关键的膜结合蛋白和转运蛋白,包括FABP、FATP、FAT/CD36、主要协同转运蛋白超家族结构域蛋白2A(major facilitator superfamily domain containing 2A,MFSD2A)等[32]。在妊娠后期,母体脂蛋白中的甘油三酯,特别是极低密度脂蛋白,会被微绒毛膜(microvillus membrane,MVM)中的脂蛋白脂肪酶(lipoprotein lipase,LPL)水解成游离脂肪酸。这些游离脂肪酸与白蛋白结合形成白蛋白-游离脂肪酸复合体,在脂肪酸摄入和转运蛋白介导的跨膜转运的相互作用下,穿过MVM进入合体滋养层细胞,并进一步与FABP[主要是质膜脂肪酸结合蛋白(plasma membrane fatty acid binding protein,FABPpm)]结合进入细胞质,在FATP(如FATP-1、FATP-4)的转运作用下进入基底膜并最终被传递到胎儿侧的血液中。在转运过程中,过氧化物酶体增殖物激活受体-γ(peroxisome proliferator-activated receptor-gamma,PPAR-γ)在胎盘中可以调控FATP的表达,进而影响DHA的转运效率。研究发现,PPAR-γ激动剂可以促进FATP-1、FATP-4的mRNA表达,提高DHA的转运效率,增强胎儿对DHA的获取[4]。FATP还可与脂肪酰基辅酶A合成酶(acyl-CoA synthetase,ACS)协同促进滋养层细胞对DHA的单向摄取。当细胞中的ATP耗竭时,细胞会通过代谢补偿机制维持能量平衡,这一机制会提高FATP的表达水平,加强细胞对脂肪酸的摄入和转运,通过脂肪酸的β-氧化为细胞提供能量。同时,母体脂蛋白还可与MVM中低密度脂蛋白或极低密度脂蛋白的受体相互作用,通过内吞作用进入滋养层细胞,并在细胞内水解,释放出游离脂肪酸与FABP结合进行运输,从而确保脂肪酸在细胞内的转运和利用[34]。此外,MFSD2A可作为胎盘中DHA的特异性转运载体,通过与其他转运蛋白如FATP家族成员(FATP-2、FATP-4)、FAT/CD36以及FABP的协同作用,促进溶血磷脂DHA在母仔之间的转运[4]。MFSD2A是一种重要的脂肪酸转运蛋白[35],其具体的跨膜转运机制和调控路径仍需进一步研究。
此外,DHA在胎盘中的转运还受到母体饮食、代谢状态、胎儿性别等因素的调控。研究发现,母体高脂肪饮食会以胎儿性别特异性的方式破坏胎盘-脑轴,降低胎儿脂肪酸的积累,影响其后代对神经疾病发展的易感性。母体肥胖能显著下调妊娠早期胎盘中与脂肪酸氧化、摄取、合成和储存相关的基因表达,降低胎儿对母体脂肪酸的摄取,且这种影响在雄性胎儿的胎盘中表现得更为明显[36]。总之,胎盘作为母胎连接的重要纽带,是胎儿获取母体营养物质的重要途径。脂肪酸在胎盘中的转运机制较为复杂,受到营养、遗传、环境等多个因素的干扰,应综合考虑各方面因素,以提高DHA在胎盘中的传递效率,满足胎儿的正常生长需要。DHA在胎盘中的转运和代谢过程见图1
图1 DHA在胎盘中的转运和代谢过程

Placenta:胎盘;Docosahexaenoic acid (DHA):二十二碳六烯酸;Maternal blood:母体血液;LPL:脂蛋白脂肪酶 lipoprotein lipase;Microvillus membrane:微绒毛膜;syncytiotrophoblast:合体滋养层细胞;FFA-DHA:游离脂肪酸形式的二十二碳六烯酸 free fatty acids-docosahexaenoic acid;Albumin-free fatty acid complex:白蛋白-游离脂肪酸复合体;FATP:脂肪酸转运蛋白 fatty acid transporter protein;FAT/CD36:脂肪酸移位酶/分化簇36 fatty acid translocase/cluster of differentiation 36;FABP:脂肪酸结合蛋白 fatty acid binding protein;PPAR-γ:过氧化物酶体增殖物激活受体-γ peroxisome proliferator-activated receptor-gamma;FATP1:脂肪酸转运蛋白1 fatty acid transporter protein 1;FATP4:脂肪酸转运蛋白4 fatty acid transporter protein 4;FABPpm:质膜脂肪酸结合蛋白 plasma membrane fatty acid binding protein;Basement membrane:基底膜;Fatal blood:胎儿血液。

Fig.1 Transport and metabolic process of DHA in placenta[4,32,34]

3.2 乳汁

脂肪酸(包括DHA)占乳汁含量的3%~5%,与新生儿早期免疫功能的建立、大脑及视网膜的发育密切相关。DHA在母乳中的转运主要涉及2个方面:1)DHA通过乳腺上皮细胞进行跨膜运输,在乳腺细胞内完成转运、脂滴形成以及分泌过程,最终以乳汁的形式输送给子代;2)通过乳腺中多酶复合物的从头合成途径生成DHA。该过程主要包括脂肪酸的从头合成、在血液中的摄取、细胞内激活和转运,以及脂肪酸的延伸、去饱和、甘油三酯合成,随后在胞质中形成脂滴,再以乳汁的形式传输给子代[37]。DHA在母乳中的转运受到多种因素的调控,如母体自身代谢状态、饮食结构、遗传因素等,这些因素会影响新生儿获取母乳中DHA的效率[38-39]
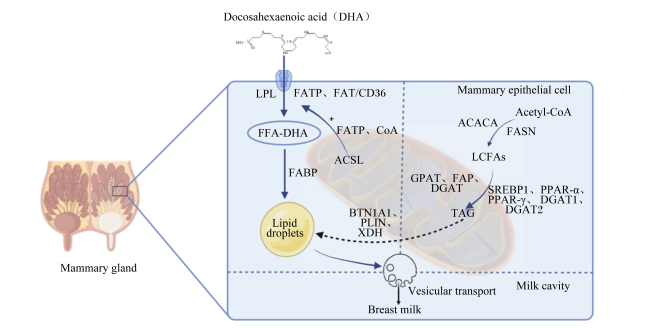
如前文所述,母体通过外源性摄入和内源性合成途径获取DHA。血液中的DHA主要以脂蛋白的形式运输至乳腺上皮细胞,随后被质膜上的LPL水解成游离脂肪酸,并在脂肪酸转运蛋白(如FAT/CD36、FATP等)的作用下进入乳腺上皮细胞[40]。FATP作为参与脂肪酸跨质膜运输的跨膜蛋白,能够与长链酰基辅酶A合成酶(long-chain acyl-CoA synthetase,ACSL)协同作用,通过催化细胞内LCFAs与辅酶A的酯化反应促进DHA的摄取。此外,FATP与ACSL的协同作用还能防止脂肪酸外流,并促进脂肪酸的单向摄取。在哺乳期,FAT/CD36在乳腺上皮细胞中高度表达,并通过激活转运蛋白参与DHA的摄取。DHA进入乳腺细胞后与FABP结合,并被运输至细胞质中形成脂滴,用于乳脂的运输和积累。这些脂滴以脂肪球的形式被包裹在顶质膜中,通过分泌囊泡机制进入乳腺腔。乳腺腔内的脂滴可以被分泌到乳汁中,为子代提供丰富的乳脂来源[37]
此外,乙酰辅酶A羧化酶(acetyl-CoA carboxylase,ACACA)还可以通过催化乙酰辅酶A(acetyl-CoA)生成丙二酸单酰辅酶A(malonyl-CoA)为脂肪酸合成提供前体物质。这些前体物质通过乳腺上皮细胞的从头合成途径合成低于16碳的脂肪酸,并在脂肪酸合酶(fatty acid synthase,FASN)的催化作用下生成LCFAs。最终,LCFAs与甘油在二酰基甘油酰基转移酶(diacylglycerol acyltransferase,DGAT)的催化作用下生成甘油三酯,并以脂滴的形式形成乳脂[41-42]。脂滴的合成及分泌过程主要受到嗜乳脂蛋白亚家族1成员A1(butyrophilin subfamily 1 member A1,BTN1A1)、黄嘌呤脱氢酶(xanthine dehydrogenase,XDH)和围脂滴蛋白(perilipin,PLIN)的调控[43]。在牛的研究中发现,PLIN1的过表达可以上调与甘油三酯合成相关的基因[如类固醇调节元件结合蛋白1(sterol regulatory element-binding protein 1,SREBP1)、PPAR-αPPAR-γDGAT1和DGAT2]表达,同时下调激素敏感脂肪酶和脂解酶的表达,从而增强细胞内甘油三酯的形成,促进脂滴的形成和分泌[44-45]
DHA在母乳中的转运是一个复杂的生物学过程,涉及多个细胞内途径和调控因素。研究表明,乳腺上皮细胞的脂肪酸合成及脂滴形成主要受到细胞内的转录因子和核受体的调控,如SREBPPPAR、肝脏X受体(liver X receptor,LXR)、胰岛素诱导基因(insulin induced gene,INSIG)、碳水化合物反应元件结合蛋白(carbohydrate-responsive element-binding protein,ChREBP)和PLIN[37]。未来的研究可以进一步揭示DHA及其他脂肪酸(如ARA、EPA)的选择性转运机制以及脂滴动态与乳腺细胞功能之间的联系,进而改善母乳喂养模式下新生子代的免疫功能及生长发育。DHA在乳腺中的转运和代谢过程见图2
图2 DHA在乳腺中的转运和代谢过程

Mammary gland:乳腺;Docosahexaenoic acid (DHA):二十二碳六烯酸;Mammary epithelial cell:乳腺上皮细胞;LPL:脂蛋白脂肪酶 lipoprotein lipase;FATP:脂肪酸转运蛋白 fatty acid transporter protein;FAT/CD36:脂肪酸移位酶/分化簇36 fatty acid translocase/cluster of differentiation 36;FABP:脂肪酸结合蛋白 fatty acid binding protein;FFA-DHA:游离脂肪酸形式的二十二碳六烯酸 free fatty acids-docosahexaenoic acid;CoA:辅酶A;ACSL:长链酰基辅酶A合成酶 long-chain acyl-CoA synthetase;Lipid droplets:脂滴;Acetyl-CoA:乙酰辅酶A;ACACA:乙酰辅酶A羧化酶 acetyl-CoA carboxylase;FASN:脂肪酸合酶 fatty acid synthase;LCFAs:长链脂肪酸 long-chain fatty acids;GPAT:甘油-3-磷酸酰基转移酶 glycerol-3-phosphate acyltransferase;FAP:脂肪酸磷酸酶 fatty acid phosphatase;DGAT:二酰基甘油酰基转移酶 diacylglycerol acyltransferase;TAG:甘油三酯 triacylglycerol;SREBP1:类固醇调节元件结合蛋白1 sterol regulatory element-binding protein 1;PPAR-α:过氧化物酶体增殖物激活受体-α peroxisome proliferator-activated receptor-alpha;PPAR-γ:过氧化物酶体增殖物激活受体-γ peroxisome proliferator-activated receptor-gamma;DGAT1:二酰基甘油酰基转移酶1 diacylglycerol acyltransferase 1;DGAT2:二酰基甘油酰基转移酶2 diacylglycerol acyltransferase 2;BTN1A1:嗜乳脂蛋白亚家族1成员A1 butyrophilin subfamily 1 member A1;XDH:黄嘌呤脱氢酶 xanthine dehydrogenase;PLIN:围脂滴蛋白 perilipin;Milk cavity:乳腺腔;Vesicular transport:囊泡转运;Breast milk:母乳。

Fig.2 Transport and metabolic process of DHA in mammary gland[37]

3.3 肠道微生物

饲粮脂肪酸,尤其是ω-3 PUFAs(包括DHA),能有效调节肠道微生物群的多样性和丰度,进而影响宿主的肠壁完整性、肠道炎症反应和免疫功能。同时,肠道微生物会反过来影响ω-3 PUFAs的吸收、生物利用度和生物转化[6]。此外,在肠-乳腺轴的介导下,肠道中的部分微生物能够转移至乳腺。乳汁中的有益微生物不仅有助于新生儿更好地吸收营养物质,还有助于子代早期的肠道微生物定植,对子代的肠道发育及免疫功能至关重要[46-48]
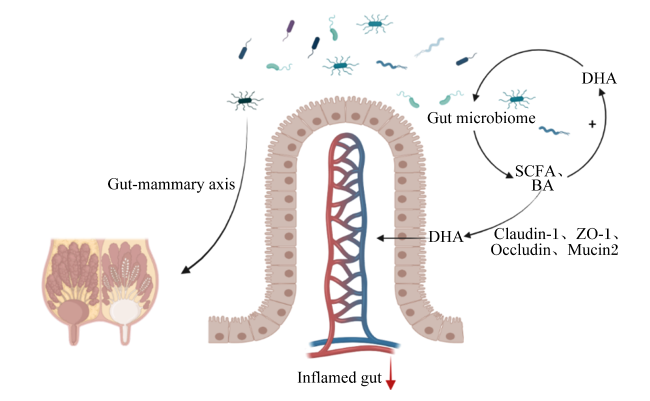
DHA通过调节肠道微生物的类型和丰度、改变促炎介质的水平,以及调节SCFAs或短链脂肪酸盐的水平,影响肠道微生物群的组成[6]。研究表明,在小鼠饲粮中补充DHA后,其肠道中含有LPS的肠杆菌科(Enterobacteriaceae)的丰度显著降低,而双歧杆菌属(Bifidobacterium)、乳杆菌属(Lactobacillus)以及其他产SCFAs的微生物物种的丰度显著升高,改善了小鼠肠道微环境和肠黏膜的屏障功能[49]。另有研究表明,饲粮中补充DHA的小鼠肠道中乳杆菌属及产生SCFAs的厚壁菌科(Lachnospiraceae)的丰度显著增加,同时产生LPS的比洛菲氏菌属(Bilophila)、大肠杆菌属(Escherichia)和志贺氏菌属(Shigella)的丰度降低;与补充EPA相比,补充DHA的小鼠肠道中富含产生丙酸和丁酸的细菌,包括奥泊诺氏菌属(Opornococcus)、Butyricimonas synergistica、酸化拟杆菌(Bacteroides acidifaciens)和肠单胞菌属(Intestinimonas),而与产生LPS相关的致病细菌链球菌属(Streptococcus)的丰度较低[50]。相反,肠道微生物也能通过调控宿主的代谢状态及肠道功能,促进母体对DHA的吸收和利用,提高母体循环中DHA的水平,间接促进DHA在胎盘和乳汁与子代之间的有效传递。在脂肪酸进入宿主的代谢途径之前,来自肠道微生物群的生物酶可对饲粮中的脂质进行生物转化,从而影响宿主的脂质代谢[51]。双歧杆菌属和乳杆菌属细菌能够将LA转化为CLA[52],进而限制了LA生成ω-6 PUFAs的生物合成途径。由于LA与ALA在生物合成过程中竞争使用同一套延伸酶和去饱和酶,因此CLA的生成可能会间接促进DHA的生物合成。同时,肠道微生物通过其代谢产物(如胆汁酸、SCFAs等)影响肠道结构和功能,进而间接影响DHA的吸收和利用。例如,长双歧杆菌(Bifidobacterium longum)、嗜酸乳杆菌(Lactobacillus acidophilus)、植物乳杆菌(Lactobacillus plantarum)等益生菌具有胆汁盐水解酶活性,可参与调控胆汁酸的代谢途径,胆汁酸与甘氨酸或牛磺酸结合,经胆囊流入肠道,乳化饲粮中的脂质成分,从而促进脂质的吸收[53]。胆汁酸还可以作为信号分子,通过与法尼醇X受体和G蛋白偶联胆汁酸受体结合调节宿主代谢[54],这些作用可能影响DHA的吸收和利用。双歧杆菌通过代谢膳食纤维或抗性淀粉产生的SCFAs,能直接作用于中性粒细胞,抑制其活性氧和髓过氧化物酶的产生;部分SCFAs可通过减少单核细胞趋化蛋白-1(monocyte chemoattractant protein-1,MCP-1)、血管细胞黏附分子-1(vascular cell adhesion molecule-1,VCAM-1)和趋化因子的表达,促进细胞凋亡,并降低炎症细胞的趋化性;SCFAs还可通过抑制NF-κB信号通路、与芳烃受体相互作用,调节机体肠道免疫功能,并激活肝脏中PPAR-γ信号通路,调节肝脏脂肪代谢[55-56],这可能会影响机体循环中DHA的水平。此外,SCFAs是肠上皮细胞的重要能量来源,可通过多种机制调节肠上皮细胞的功能,包括其增殖、分化以及肠内分泌细胞等亚群的功能,从而影响肠道蠕动,增强肠道屏障功能以及调节宿主代谢[57],这有助于提高肠上皮细胞对DHA的吸收效率。
肠-乳腺轴也可能参与母仔之间的物质传递。肠道中的部分微生物通过介导肠-乳腺轴影响乳腺组织中有益微生物的丰度,并通过乳汁垂直传递给子代,有助于婴儿期肠道微生物的定植及维持肠道功能的完整性[48],也可能间接影响子代对乳汁中DHA的利用。微生物易位的过程通常涉及肠上皮细胞、免疫细胞及微生物之间的相互作用。肠道微生物的潜在易位是一个高度选择性的过程,并非所有肠道细菌都会同时发生转移,例如,拟杆菌属、乳杆菌属和双歧杆菌属等有益菌可在肠-乳腺轴的介导下,通过内源性途径到达乳腺。此外,树突状细胞(dendritic cell,DC)在树突穿透过程中会表达紧密连接蛋白,如闭锁小带蛋白-1(ZO-1)、闭合蛋白(Occludin)、封闭蛋白(Claudin),从而维持上皮屏障的完整性。研究发现,DC和CD18+细胞能够打开肠上皮细胞之间的紧密连接,从肠腔中吸收非侵入性细菌,并将其转运至其他黏膜相关淋巴组织(mucosa-associated lymphoid tissue,MALT),最终转运至乳腺[47]。在妊娠后期和哺乳期,由于母体激素水平和肠道屏障功能的改变,免疫细胞更多地外流至乳腺,调控乳腺组织的免疫功能,并进一步增加肠道微生物的易位频率[58-60]。然而,肠道微生物的具体易位机制在动物营养学领域的研究有限,且这一易位过程还可能受到母体自身代谢状态、遗传及饮食因素的影响,仍需进一步探究。肠道微生物协同DHA的传递机制见图3
图3 肠道微生物协同DHA的传递机制

Gut-mammary axis:肠-乳腺轴;DHA:二十二碳六烯酸 docosahexaenoic acid;Gut microbiome:肠道微生物;SCFA:短链脂肪酸 short-chain fatty acid;BA:胆汁酸 bile acids;Claudin-1:封闭蛋白-1;ZO-1:闭锁小带蛋白-1 zonula occluden-1;Occludin:闭合蛋白;Mucin2:黏蛋白2;Inflamed gut:肠道炎症。

Fig.3 Delivery mechanisms of gut microbiota synergizing with DHA[6,47-48]

综上所述,DHA通过调节肠道微生物群的多样性和丰度,影响宿主的肠道功能、免疫反应和DHA的吸收与代谢。此外,肠-乳腺轴可通过介导肠道微生物的易位作用,进而影响乳腺中的微生物组成,促进新生子代的肠道发育及早期微生物的定植,间接影响子代对母乳DHA的利用效率。

4 母体DHA水平对子代生长发育和免疫功能的影响

4.1 母体DHA水平对子代生长发育的影响

大量研究证实,母体妊娠期适量的DHA供应对子代的生长发育,尤其是神经系统的发育至关重要[61]。在妊娠晚期和哺乳期,DHA在胎儿和婴儿大脑中大量积累,它不仅是神经元细胞膜的重要组成成分,还参与神经发生、抗凋亡作用、神经递质的释放及突触可塑性等重要生理过程[62-63]。此外,妊娠后期母体补充DHA能显著提高子代出生体重,并降低胎儿宫内发育迟缓(intrauterine growth restriction,IUGR)和胎儿生长受限(fetal growth restriction,FGR)的风险[64-65]。研究发现,当妊娠期母体暴露于LPS环境中时,其会激活自身NF-κB通路并诱导下游炎症因子的分泌,从而导致FGR,而补充DHA可通过激活PPAR-γ的表达,促进p65泛素化和降解,进而抑制LPS诱导的FGR[66]。在小鼠模型中,营养不良的母鼠在经过DHA调控后,其子代在成年期海马体中与认知功能和突触可塑性相关基因的表达上调,如脑源性神经营养因子(brain-derived neurotrophic factor,BDNF)、神经营养因子-3(neurotrophins-3,NT-3)、cAMP反应元件结合蛋白(cAMP-response element binding protein,CREB)和解偶联蛋白2(uncoupling protein 2,UCP2)。而且,其后代幼鼠在新奇物体识别测试和部分诱饵辐射臂迷宫任务中的表现证明,妊娠期补充DHA可以改善母体营养不良引起的子代学习障碍[67]。现有的研究中,妊娠期母体补充DHA对子代生长发育及认知功能的影响存在一定的差异。虽然补充DHA可作为预防子代神经功能障碍的一种措施,但在探讨DHA在母仔传递过程中对后代早期神经系统发育的影响时,还应考虑母体自身代谢状态、遗传变异以及长远效应等因素[68-69]

4.2 母体DHA水平对子代免疫功能的影响

新生子代自身合成DHA的效率很低,只能依赖从母体获取DHA来提高自身的免疫功能。因此,妊娠期母体保持适当的DHA水平以及DHA在母仔间的有效传递对子代早期免疫功能的建立至关重要。研究发现,用含有鱼油(DHA或EPA)的饲粮饲喂母猪,可通过减少促炎细胞因子经脐带血从母猪向仔猪的转移,及上调仔猪肝脏中抗炎细胞因子如花生四烯酸5-脂氧合酶(arachidonate 5-lipoxygenase,ALOX5)、GPR120的表达,调节新生仔猪的免疫反应[70]。在IUGR大鼠模型中,DHA通过激活核因子E2相关因子2(nuclear factor erythroid 2-related factor 2,Nrf2)信号通路,抑制氧化应激和细胞凋亡的进程,从而减轻IUGR大鼠幼崽脾脏细胞的免疫损伤[71]。此外,通过研究早产儿血清DHA水平与蛋白质组的相关性发现,出生后第1天早产儿血清中有55种蛋白质的含量与DHA水平显著相关;出生后100 d内共鉴定出57种与DHA水平相关的蛋白质,其中41种与炎症相关,主要炎症调节因子白细胞介素-6(interleukin-6,IL-6)和CC趋化因子配体7[chemokine (C-C motif) ligand 7,CCL7]含量均与血清中DHA水平呈显著负相关[72]。DHA不仅在外周免疫系统中发挥作用,还能通过抑制依赖于激活转录因子3(activating transcription factor 3,ATF3)的促炎介质释放,以及增强小胶质细胞的吞噬活性,调节中枢神经系统的免疫反应,缓解大脑中促炎环境引发的神经元损伤[73]。综上所述,妊娠期母体补充DHA对子代免疫功能具有积极影响,能减轻妊娠期并发症对子代造成的免疫损伤,有助于子代早期免疫功能的建立,并保障其正常的生长发育。

5 小结与展望

妊娠期母体可通过外源性摄入及内源性生物合成途径来提高自身的DHA水平,并通过胎盘转运、母乳喂养、肠道微生物介导3种方式将DHA传递给子代,这不仅有助于维持母体自身的代谢状态和免疫水平,还对子代早期的生长发育和免疫功能的建立至关重要。然而,DHA在母仔间传递的机制非常复杂,其传递效率受到母体饮食结构、内源性合成效率、个体遗传差异及外界环境等多重因素的影响。目前动物营养学领域针对母仔间DHA传递的相关研究仍较为有限。因此,未来需要整合营养学、遗传学、免疫学及微生物学等多个领域的研究成果,进一步探索DHA在饲养动物母仔间传递的机制,优化母体DHA水平调控策略,提高DHA在母仔间传递的效率。这不仅有助于提升饲养动物母仔的健康水平,还将为母仔一体化营养调控的深入研究提供理论基础。
[1]
王俊, 张明亮, 李力. 功能性n-3多不饱和脂肪酸的研究进展[J]. 福建轻纺, 2023(1):14-18,30.

WANG J, ZHANG M L, LI L. The research progress of functional n-3 polyunsaturated fatty acids[J]. The Light & Textile Industries of Fujian, 2023(1):14-18,30. (in Chinese)

[2]
COMITINI F, PEILA C, FANOS V, et al. The docosahexanoic acid:from the maternal-fetal dyad to early life toward metabolomics[J]. Frontiers in Pediatrics, 2020, 8:538.

[3]
KRAMER A C, JANSSON T, BALE T L, et al. Maternal-fetal cross-talk via the placenta:influence on offspring development and metabolism[J]. Development, 2023, 150(20):dev202088.

[4]
DUTTAROY A K, BASAK S. Maternal dietary fatty acids and their roles in human placental development[J]. Prostaglandins Leukotrienes and Essential Fatty Acids, 2020, 155:102080.

[5]
JUBER B A, JACKSON K H, JOHNSON K B, et al. Breast milk DHA levels may increase after informing women:a community-based cohort study from South Dakota USA[J]. International Breastfeeding Journal, 2016, 12:7.

[6]
FU Y W, WANG Y D, GAO H, et al. Associations among dietary omega-3 polyunsaturated fatty acids,the gut microbiota,and intestinal immunity[J]. Mediators of Inflammation, 2021, 2021:8879227.

[7]
YAMAGATA K. Dietary docosahexaenoic acid inhibits neurodegeneration and prevents stroke[J]. Journal of Neuroscience Research, 2021, 99(2):561-572.

[8]
SAMBRA V, ECHEVERRIA F, VALENZUELA A, et al. Docosahexaenoic and arachidonic acids as neuroprotective nutrients throughout the life cycle[J]. Nutrients, 2021, 13(3):986.

[9]
LI J, JIAN Y Q, LIU R N, et al. Choline and fish oil can improve memory of mice through increasing brain DHA level[J]. Foods, 2023, 12(9):1799.

[10]
GHOTBEDDIN Z, KHAZAEEL K, TABANDEH M R, et al. Effects of omega-3 fatty acid supplementation during chronic maternal hypoxia on behavioral disorders in male rat offspring:the role of Trk family and oxidative stress[J]. Metabolic Brain Disease, 2022, 37(6):1959-1967.

[11]
MILES E A, CHILDS C E, CALDER P C. Long-chain polyunsaturated fatty acids (LCPUFAs) and the developing immune system:a narrative review[J]. Nutrients, 2021, 13(1):247.

[12]
HIDALGO M A, CARRETTA M D, BURGOS R A. Long chain fatty acids as modulators of immune cells function:contribution of FFA1 and FFA4 receptors[J]. Frontiers in Physiology, 2021, 12:668330.

[13]
OPPEDISANO F, MACRÌ R, GLIOZZI M, et al. The anti-inflammatory and antioxidant properties of n-3 PUFAs:their role in cardiovascular protection[J]. Biomedicines, 2020, 8(9):306.

[14]
JAYAPALA H P S, LIM S Y. N-3 polyunsaturated fatty acids and gut microbiota[J]. Combinatorial Chemistry & High Throughput Screening, 2023, 26(5):892-905.

[15]
丁军, 和俊豪, 付子琳, 等. 富二十二碳六烯酸裂殖壶藻藻油对过氧化氢诱导的小肠上皮细胞抗炎和抗氧化系统的影响[J]. 动物营养学报, 2023, 35(5):3303-3312.

DOI

DING J, HE J H, FU Z L, et al. Effects of docosahexaenoic acid-enriched schizochytrium oil on anti-inflammatory and antioxidant systems of hydrogen peroxide-induced intestinal epithelial cells[J]. Chinese Journal of Animal Nutrition, 2023, 35(5):3303-3312. (in Chinese)

DOI

[16]
GURAV P, GARAD S, NIRMALA K R. N-3 PUFAs show promise as adjuvants in chemotherapy,enhancing their efficacy while safeguarding hematopoiesis and promoting bone generation[J]. Current Topics in Medicinal Chemistry, 2024, 24(1):45-59.

[17]
JIANG Y, CHEN Y T, WEI L J, et al. DHA supplementation and pregnancy complications[J]. Journal of Translational Medicine, 2023, 21(1):394.

DOI PMID

[18]
GHASEMI FARD S, WANG F L, SINCLAIR A J, et al. How does high DHA fish oil affect health?A systematic review of evidence[J]. Critical Reviews in Food Science and Nutrition, 2019, 59(11):1684-1727.

[19]
CHOLEWSKI M, TOMCZYKOWA M, TOMCZYK M. A comprehensive review of chemistry,sources and bioavailability of omega-3 fatty acids[J]. Nutrients, 2018, 10(11):1662.

[20]
ABBAS N, RIAZ S, MAZHAR S, et al. Microbial production of docosahexaenoic acid (DHA):biosynthetic pathways,physical parameter optimization,and health benefits[J]. Archives of Microbiology, 2023, 205(9):321.

[21]
周龙珠, 李萍漾, 赵丽媛, 等. 畜产品ω-3多不饱和脂肪酸生物营养强化研究应用进展[J]. 中国科学(生命科学), 2025, 55(3):463-478.

ZHOU L Z, LI P Y, ZHAO L Y, et al. Advances in the application of biofortification research on omega-3 polyunsaturated fatty acids in livestock products[J]. Scientia Sinica(Vitae), 2025, 55(3):463-478. (in Chinese)

[22]
高鑫, 万方, 李世豪, 等. DHA微藻油功能研究进展[J]. 食品安全质量检测学报, 2020, 11(4):1117-1123.

GAO X, WAN F, LI S H, et al. Research advances on function of docosahexaenoic acid-microalgae oil[J]. Journal of Food Safety & Quality, 2020, 11(4):1117-1123. (in Chinese)

[23]
黄和, 任波, 孙小曼. ω-3多不饱和脂肪酸健康机制及应用研究进展[J]. 食品科学技术学报, 2024, 42(5):1-12.

HUANG H, REN B, SUN X M. Research progress on health mechanism and application of omega-3 polyunsaturated fatty acids[J]. Journal of Food Science and Technology, 2024, 42(5):1-12. (in Chinese)

[24]
KHAN I, HUSSAIN M, JIANG B Z, et al. Omega-3 long-chain polyunsaturated fatty acids:metabolism and health implications[J]. Progress in Lipid Research, 2023, 92:101255.

[25]
XIONG Y B, LI X L, LIU J F, et al. Omega-3 PUFAs slow organ aging through promoting energy metabolism[J]. Pharmacological Research, 2024, 208:107384.

[26]
LEE-OKADA H C, XUE C X, YOKOMIZO T. Recent advances on the physiological and pathophysiological roles of polyunsaturated fatty acids and their biosynthetic pathway[J]. Biochimica et Biophysica Acta:Molecular and Cell Biology of Lipids, 2025, 1870(1):159564.

[27]
吴义霞. DHA摄入与ELOVL2/5基因变异对母婴脂肪酸水平的影响及机制研究[D].博士学位论文. 长春: 吉林大学, 2020.

WU Y X. Effect of DHA intake and ELOVL2/5 genetic variants on maternal and neonatal fatty acid levels and its mechanism[D].Ph.D.Thesis. Changchun: Jilin University, 2020. (in Chinese)

[28]
LOUKIL I, MUTCH D M, PLOURDE M. Genetic association between FADS and ELOVL polymorphisms and the circulating levels of EPA/DHA in humans:a scoping review[J]. Genes & Nutrition, 2024, 19(1):11.

[29]
HUANG G X, ZHANG Y D, XU Q B, et al. DHA content in milk and biohydrogenation pathway in rumen:a review[J]. PeerJ, 2020, 8:e10230.

[30]
JEONG H Y, MOON Y S, CHO K K. ω-6 and ω-3 polyunsaturated fatty acids:inflammation,obesity and foods of animal resources[J]. Food Science of Animal Resources, 2024, 44(5):988-1010.

[31]
ZHANG L, WANG Z W, WU H H, et al. Maternal high-fat diet impairs placental fatty acid β-oxidation and metabolic homeostasis in the offspring[J]. Frontiers in Nutrition, 2022, 9:849684.

[32]
WU Z M, HU G L, ZHANG Y Y, et al. IGF2 may enhance placental fatty acid metabolism by regulating expression of fatty acid carriers in the growth of fetus and placenta during late pregnancy in pigs[J]. Genes, 2023, 14(4):872.

[33]
BASAK S, DUTTAROY A K. Maternal PUFAs,placental epigenetics,and their relevance to fetal growth and brain development[J]. Reproductive Sciences, 2023, 30(2):408-427.

[34]
DUTTAROY A K, BASAK S. Maternal fatty acid metabolism in pregnancy and its consequences in the feto-placental development[J]. Frontiers in Physiology, 2021, 12:787848.

[35]
ORIGÜELA V, FERRER-AGUILAR P, GÁZQUEZ A, et al. Placental MFSD2A expression in fetal growth restriction and maternal and fetal DHA status[J]. Placenta, 2024, 150:31-38.

[36]
RASOOL A, MAHMOUD T, MATHYK B, et al. Obesity downregulates lipid metabolism genes in first trimester placenta[J]. Scientific Reports, 2022, 12(1):19368.

DOI PMID

[37]
SINGH A, MALLA W A, KUMAR A, et al. Review:genetic background of milk fatty acid synthesis in bovines[J]. Tropical Animal Health and Production, 2023, 55(5):328.

[38]
FOUGÈRE H, BILODEAU J F, LAVOIE P M, et al. Docosahexaenoic acid-rich algae oil supplementation on breast milk fatty acid profile of mothers who delivered prematurely:a randomized clinical trial[J]. Scientific Reports, 2021, 11(1):21492.

[39]
YU H T, XU W H, GONG J Y, et al. Effect of high-fat diet on the fatty acid profiles of brain in offspring mice exposed to maternal gestational diabetes mellitus[J]. International Journal of Obesity, 2024, 48(6):849-858.

[40]
骆东梅. 山羊乳腺上皮长链脂肪酸跨膜转运特征研究[D].硕士学位论文. 重庆: 西南大学, 2020.

LUO D M. The study of characteristics of trans-membrane transport of long-chain fatty acids in goat mammary epithelial cells[D].Master’s Thesis. Chongqing: Southwest University, 2020. (in Chinese)

[41]
吕晨晨. RNA结合蛋白MSI2在奶牛乳腺炎和乳脂合成中的作用及其机制研究[D].博士学位论文. 长春: 吉林大学, 2024.

LYU C C. Role and mechanisms of RNA binding protein MSI2 in mastitis and milk fat synthesis in dairy cows[D].Ph.D.Thesis. Changchun: Jilin University, 2024. (in Chinese)

[42]
车龙. 妊娠后期饲粮缬氨酸与赖氨酸比例对母猪乳腺发育和泌乳的影响及机制研究[D].博士学位论文. 雅安: 四川农业大学, 2019.

CHE L. Effects of dietary valine-to-lysine ratio to gilts during late gestation on the development of mammary gland and lactation and the underlying mechanism[D].Ph.D.Thesis. Ya’an: Sichuan Agricultural University, 2019. (in Chinese)

[43]
MONKS J, LADINSKY M S, MCMANAMAN J L. Organellar contacts of milk lipid droplets[J]. Contact, 2020, 3:2515256419897226.

[44]
ZHOU F T, FAN X Y, MIAO Y W. LPIN1 promotes triglycerides synthesis and is transcriptionally regulated by PPARG in buffalo mammary epithelial cells[J]. Scientific Reports, 2022, 12(1):2390.

DOI PMID

[45]
ZHANG J F, CHOI S H, LI Q, et al. Overexpression of DGAT2 stimulates lipid droplet formation and triacylglycerol accumulation in bovine satellite cells[J]. Animals, 2022, 12(14):1847.

[46]
RODRÍGUEZ J M, FERNÁNDEZ L, VERHASSELT V. The gut-breast axis:programming health for life[J]. Nutrients, 2021, 13(2):606.

[47]
DAVIS E C, CASTAGNA V P, SELA D A, et al. Gut microbiome and breast-feeding:implications for early immune development[J]. The Journal of Allergy and Clinical Immunology, 2022, 150(3):523-534.

[48]
COUVILLION S P, MOSTOLLER K E, WILLIAMS J E, et al. Interrogating the role of the milk microbiome in mastitis in the multi-omics era[J]. Frontiers in Microbiology, 2023, 14:1105675.

[49]
ZHUANG P, LI H Y, JIA W, et al. Eicosapentaenoic and docosahexaenoic acids attenuate hyperglycemia through the microbiome-gut-organs axis in db/db mice[J]. Microbiome, 2021, 9(1):185.

[50]
ZHUANG P, ZHANG Y, SHOU Q Y, et al. Eicosapentaenoic and docosahexaenoic acids differentially alter gut microbiome and reverse high-fat diet-induced insulin resistance[J]. Molecular Nutrition & Food Research, 2020, 64(10):e1900946.

[51]
BROWN E M, CLARDY J, XAVIER R J. Gut microbiome lipid metabolism and its impact on host physiology[J]. Cell Host & Microbe, 2023, 31(2):173-186.

[52]
WU C, CHEN H Q, MEI Y C, et al. Advances in research on microbial conjugated linoleic acid bioconversion[J]. Progress in Lipid Research, 2024, 93:101257.

[53]
WU T Y, WANG G A, XIONG Z Q, et al. Probiotics interact with lipids metabolism and affect gut health[J]. Frontiers in Nutrition, 2022, 9:917043.

[54]
SCHOELER M, CAESAR R. Dietary lipids,gut microbiota and lipid metabolism[J]. Reviews in Endocrine & Metabolic Disorders, 2019, 20(4):461-472.

[55]
FUSCO W, LORENZO M B, CINTONI M, et al. Short-chain fatty-acid-producing bacteria:key components of the human gut microbiota[J]. Nutrients, 2023, 15(9):2211.

[56]
ROSSER E C, PIPER C J M, MATEI D E, et al. Microbiota-derived metabolites suppress arthritis by amplifying aryl-hydrocarbon receptor activation in regulatory B cells[J]. Cell Metabolism, 2020, 31(4):837-851.e10.

DOI PMID

[57]
MARTIN-GALLAUSIAUX C, MARINELLI L, BLOTTIÈRE H M, et al. SCFA:mechanisms and functional importance in the gut[J]. Proceedings of the Nutrition Society, 2021, 80(1):37-49.

[58]
LYONS K E, RYAN C A, DEMPSEY E M, et al. Breast milk,a source of beneficial microbes and associated benefits for infant health[J]. Nutrients, 2020, 12(4):1039.

[59]
BAWANEH A, SHIVELY C A, TOOZE J A, et al. Impact of gut permeability on the breast microbiome using a non-human primate model[J]. Gut Microbiome, 2022, 3:e10.

[60]
FANG X, LEE S, RAYALAM S, et al. Docosahexaenoic acid supplementation and infant brain development:role of gut microbiome[J]. Nutrition Research, 2024, 131:1-13.

[61]
DE MATOS REIS A E, TEIXEIRA I S, MAIA J M, et al. Maternal nutrition and its effects on fetal neurodevelopment[J]. Nutrition, 2024, 125:112483.

[62]
HORTENSIUS L M, HELLSTRÖM W, SÄVMAN K, et al. Serum docosahexaenoic acid levels are associated with brain volumes in extremely preterm born infants[J]. Pediatric Research, 2021, 90(6):1177-1185.

DOI PMID

[63]
MITGUARD S, DOUCETTE O, MIKLAVCIC J. Human milk polyunsaturated fatty acids are related to neurodevelopmental,anthropometric,and allergic outcomes in early life:a systematic review[J]. Journal of Developmental Origins of Health and Disease, 2023, 14(6):763-772.

[64]
BILGUNDI K, VISWANATHA G L, PURUSHOTTAM K M, et al. Docosahexaenoic acid and pregnancy:a systematic review and Meta-analysis of the association with improved maternal and fetal health[J]. Nutrition Research, 2024, 128:82-93.

[65]
VALENTINE C J, KHAN A Q, BROWN A R, et al. Higher-dose DHA supplementation modulates immune responses in pregnancy and is associated with decreased preterm birth[J]. Nutrients, 2021, 13(12):4248.

[66]
BO Q L, XIE Y L, LIN Q L, et al. Docosahexaenoic acid protects against lipopolysaccharide-induced fetal growth restriction via inducing the ubiquitination and degradation of NF-κB p65 in placental trophoblasts[J]. Journal of Nutritional Biochemistry, 2023, 118:109359.

[67]
AGNI M B, HEGDE P S, RAI P, et al. Astaxanthin and DHA supplementation modulates the maternal undernutrition-induced impairment of cognitive behavior and synaptic plasticity in adult life of offspring’s-exploring the molecular mechanism[J]. Molecular Neurobiology, 2024, 61(11):8975-8995.

[68]
GONZALEZ CASANOVA I, SCHOEN M, TANDON S, et al. Maternal FADS2 single nucleotide polymorphism modified the impact of prenatal docosahexaenoic acid (DHA) supplementation on child neurodevelopment at 5 years:follow-up of a randomized clinical trial[J]. Clinical Nutrition, 2021, 40(10):5339-5345.

[69]
GUSTAFSON K M, CHRISTIFANO D N, HOYER D, et al. Prenatal docosahexaenoic acid effect on maternal-infant DHA-equilibrium and fetal neurodevelopment:a randomized clinical trial[J]. Pediatric Research, 2022, 92(1):255-264.

[70]
LUO W L, LUO Z, XU X, et al. The effect of maternal diet with fish oil on oxidative stress and inflammatory response in sow and new-born piglets[J]. Oxidative Medicine and Cellular Longevity, 2019, 2019:6765803.

[71]
JIANG W M, WAN L J, CHEN P Y, et al. Docosahexaenoic acid activates the Nrf2 signaling pathway to alleviate impairment of spleen cellular immunity in intrauterine growth restricted rat pups[J]. Saudi Journal of Biological Sciences, 2021, 28(9):4987-4993.

DOI PMID

[72]
KLEVEBRO S, KEBEDE MERID S, SJÖBOM U, et al. Arachidonic acid and docosahexaenoic acid levels correlate with the inflammation proteome in extremely preterm infants[J]. Clinical Nutrition, 2024, 43(5):1162-1170.

DOI PMID

[73]
WIECZOREK-SZUKALA K, MARKIEWICZ M, WALCZEWSKA A, et al. Docosahexaenoic acid (DHA) reduces LPS-induced inflammatory response via ATF3 transcription factor and stimulates Src/Syk signaling-dependent phagocytosis in microglia[J]. Cellular Physiology and Biochemistry, 2023, 57(6):411-425.

文章导航

/