研究论文

饲粮中添加甜菊糖苷对黄羽肉鸡肠道微生物和肌肉代谢物的影响

  • 刘雅丽 , 1, 2, 3 ,
  • 杨福生 3 ,
  • 宋榜桂 4 ,
  • 杜雪 5 ,
  • 俞奇力 3 ,
  • 陈菲 3 ,
  • 陈国宏 , 1, *
展开
  • 1 扬州大学动物科学与技术学院,扬州 225100
  • 2 浙江省畜牧技术推广与种畜禽监测总站,杭州 310021
  • 3 杭州萧山东海养殖有限责任公司,杭州 311500
  • 4 南京农业大学动物科技学院,南京 210095
  • 5 浙江农林大学动物科技学院·动物医学院,杭州 311300
* 陈国宏,教授,博士生导师,E-mail:

刘雅丽(1984—),女,河北石家庄人,高级畜牧师,博士,从事畜牧技术推广工作。E-mail:

Copy editor: 武海龙

收稿日期: 2025-02-26

  网络出版日期: 2025-07-12

基金资助

浙江省农业重大技术协同推广计划项目(2023ZDXT15)

Effects of Dietary Supplementation with Steviol Glycosides on Gut Microbiota and Muscle Metabolites of Yellow-Feathered Broilers

  • LIU Yali , 1, 2, 3 ,
  • YANG Fusheng 3 ,
  • SONG Banggui 4 ,
  • DU Xue 5 ,
  • YU Qili 3 ,
  • CHEN Fei 3 ,
  • CHEN Guohong , 1, *
Expand
  • 1 College of Animal Science and Technology, Yangzhou University, Yangzhou 225100, China
  • 2 Zhejiang Provincial Livestock Technology Promotion and Breeding Livestock and Poultry Monitoring Station, Hangzhou 310021, China
  • 3 Hangzhou Xiaoshan Donghai Breeding Co., Ltd., Hangzhou 311500, China
  • 4 College of Animal Science and Technology, Nanjing Agricultural University, Nanjing 210095, China
  • 5 College of Animal Science and Technology, College of Veterinary Medicine, Zhejiang A&F University, Hangzhou 311300, China
* professor, E-mail:

Received date: 2025-02-26

  Online published: 2025-07-12

摘要

本研究旨在探讨饲粮中添加不同剂量甜菊糖苷对黄羽肉鸡肠道微生物和肌肉代谢物的影响。选择240只1日龄黄羽肉鸡母鸡,随机分为4个组,每组6个重复,每个重复10只鸡。对照组(C组)饲喂基础饲粮,低、中和高剂量甜菊糖苷组分别在基础饲粮中添加600(L组)、800(M组)和1 000 mg/kg(H组)的甜菊糖苷。试验期84 d。通过16S rDNA测序和液相色谱-质谱联用(LC-MS)技术,评估肠道微生物和鸡肉代谢物的变化。结果表明:饲粮中添加甜菊糖苷改变了黄羽肉鸡盲肠微生物群落结构,与C组相比,M组的盲肠拟杆菌门相对丰度下降,厚壁菌门相对丰度上升。此外,饲粮中添加甜菊糖苷影响了黄羽肉鸡胸肌代谢物含量,与C组相比,M组的胸肌连苯三酚、麦芽酚和肌苷含量降低,油酸和鳄梨炔醇-1-乙酸酯含量增加。由此可见,饲粮中添加甜菊糖苷可改善黄羽肉鸡肠道菌群结构和肌肉代谢物含量,添加量以800 mg/kg为宜。

本文引用格式

刘雅丽 , 杨福生 , 宋榜桂 , 杜雪 , 俞奇力 , 陈菲 , 陈国宏 . 饲粮中添加甜菊糖苷对黄羽肉鸡肠道微生物和肌肉代谢物的影响[J]. 动物营养学报, 2025 , 37(7) : 4374 -4383 . DOI: 10.12418/CJAN2025.358

Abstract

This study aimed to investigate the effects of dietary supplementation with different doses of steviol glycosides on gut microbiota and muscle metabolites of yellow-feathered broilers. A total of 240 one-day-old female yellow-feathered broilers were randomly divided into 4 groups with 6 replicates per group and 10 broilers per replicate. Broilers in the control group (group C) were fed a basal diet, and others in low, medium and high doses steviol glycosides groups were fed the basal diets supplemented with 600 (group L), 800 (group M) and 1 000 mg/kg (group H) steviol glycosides, respectively. The experiment lasted for 84 days. The changes of gut microbiota and muscle metabolites were evaluated using 16S rDNA sequencing and liquid chromatography-mass spectrometry (LC-MS) technology. The results showed that dietary supplementation with steviol glycosides changed the cecal microbial community structure of yellow-feathered broilers, compared with the group C, the cecal Bacteroidota relative abundance of the group M was decreased, and the Firmicutes relative abundance was increased. In addition, dietary supplementation with steviol glycosides affected the pectoral muscle metabolites contents of yellow-feathered broilers, compared with the group C, the contents of pyrogallol, maltol and inosine in pectoral muscle were decreased, and the oleic acid and avocadyne 1-acetate contents were increased. In conclusion, dietary supplementation with steviol glycosides can improve the gut microbiota structure and muscle metabolites contents of yellow-feathered broilers, and the optimal addition amount is 800 mg/kg.

甜菊糖苷是从甜菊叶中提取的天然甜味剂,甜度为蔗糖甜度的200~350倍,热量仅为蔗糖的1/300,易溶于水,微溶于甲醇、乙醇,不依赖胰岛素代谢,不会在人体内储存,被认为是21世纪最理想的“第三代糖源”,已被广泛应用于食品和医药化工中。目前,我国已是世界上最大的甜菊糖苷生产国。
近年来,我国肉鸡产量持续增长,消费者对鸡肉品质的需求也日益提升[1]。甜菊糖苷具有降血糖、降血压、降血脂、抗炎和抗氧化等功能[2-4],在养殖业中具有很强的应用潜力。甜菊糖苷能够改善畜禽生产性能、提高饲料利用率和调节胃肠道微生物群落。在反刍动物方面的研究表明,饲粮中添加0.07%的甜菊糖苷可改变断奶后湖羊瘤胃微生物群落,显著增加瘤胃变形菌门、普氏菌属和琥珀酸弧菌科_UCG_001的相对丰度,并显著降低理研菌科_RC9的相对丰度[5];饲粮中添加0.2%的甜菊糖苷可显著提高牛瘤胃总挥发性脂肪酸(total volatile fatty acids,TVFA)、丙酸盐、丁酸盐和戊酸盐含量,并增加琥珀酸菌属、毛螺菌科_NK3A20和欧陆森氏菌属的相对丰度,降低不动杆菌属的相对丰度[6]。在猪方面的研究表明,饲粮中添加100 mg/kg的甜菊糖苷可显著提高断奶仔猪回肠菌群β多样性指数[7]。在家禽方面的研究表明,甜菊糖苷可缓解脂多糖诱导的子代鸡肠道黏膜损伤和肠道微生物菌群失调[8]。但是,不同畜禽品种之间性状差异较大,不同物种可能对甜菊糖苷的反应程度不同,导致甜菊糖苷对不同物种产生的影响有差异,且目前尚未见关于甜菊糖苷对鸡肉成分影响的相关研究报道。黄羽肉鸡是我国本土肉鸡,因其鲜美的肉质而深受喜爱,在我国肉鸡产业中具有举足轻重的地位[9]。目前,甜菊糖苷在黄羽肉鸡养殖生产中的应用鲜有报道。基于此,本试验通过在黄羽肉鸡饲粮中添加甜菊糖苷,旨在探究甜菊糖苷对黄羽肉鸡肠道微生物和肌肉代谢物的影响,以期为甜菊糖苷在畜禽养殖中的应用提供理论基础和科技支撑。

1 材料与方法

1.1 伦理声明和试验材料

所有动物试验按照南京农业大学实验动物中心伦理委员会指南进行,批准文号:SYXK(SU)2017-0007。甜菊糖苷,食品级,纯度为99%。

1.2 试验设计

挑选240只1日龄、健康且体重相近的岭南中速型黄羽肉鸡(岭南黄鸡3号配套系)母鸡,随机分为4个组,每组6个重复,每个重复10只鸡。对照组(C组)饲喂基础饲粮,低、中和高剂量甜菊糖苷组分别在基础饲粮中添加600(L组)、800(M组)和1 000 mg/kg(H组)的甜菊糖苷。试验期84 d。甜菊糖苷添加剂量参照Bhasker等[10]的研究结果。

1.3 基础饲粮与饲养管理

饲养试验于江苏和盈家禽育种科技有限公司种鸡动物试验研究房内开展,持续光照,试验期间肉鸡自由采食和饮水。试验第1周,室温保持在36~38 ℃,然后每4 d逐渐降低2 ℃,直到降低至26 ℃,并维持到试验结束。基础饲粮参照NRC(1994)和《鸡饲养标准》(NY/T 33—2004)中黄羽肉仔鸡的营养需求进行配制,其组成及营养水平见表1。此外,所有肉鸡在第10天接种新流腺和H5H7疫苗,在第20天接种支原体灭活疫苗。
表1 基础饲粮组成及营养水平(干物质基础)

Table 1 Composition and nutrient levels of basal diets (DM basis)%

项目
Items
1~21日龄
1 to 21
days of age
22~84日龄
22 to 84
days of age
原料 Ingredients
玉米 Corn 55.00 58.00
豆粕 Soybean meal 34.00 30.00
玉米蛋白粉 Corn gluten meal 4.80 5.00
大豆油 Soybean oil 2.40 3.00
氯化钠 NaCl 0.30 0.30
石粉 Limestone 1.20 1.50
碳酸氢钙 Ca(HCO3)2 1.30 1.20
预混料 Premix1) 1.00 1.00
合计 Total 100.00 100.00
营养水平 Nutrient levels2)
代谢能
Metabolizable energy/(MJ/kg)
12.32 12.77
粗蛋白质 Crude protein 21.56 20.48
赖氨酸 Lysine 1.20 1.13
蛋氨酸 Methionine 0.48 0.51
钙 Calcium 1.12 1.02
总磷 Total phosphorus 0.49 0.64

1)每千克预混料含 One kg of the premix contained the following:VA 19 500 IU,VD3 4 400 IU,VE 500.0 IU,VK3 50.0 mg,VB1 50.0 mg,VB12 0.4 mg,VB2 125.0 mg,VB6 75.0 mg,烟酰胺 nicotinamide 800.0 mg,D-泛酸 D-pantothenic acid 225.0 mg,D-生物素 D-biotin 6.0 mg,氯化胆碱 choline chloride 5 000 mg,Fe 1 280 mg,Cu 220.0 mg,Mn 1 920 mg,Zn 1 600 mg,蛋氨酸 methionine 25 000 mg。
2)代谢能为计算值,其余营养水平为实测值。Metabolizable energy was a calculated value, while the other nutrient levels were measured values.

1.4 样本采集

试验第83天20:00对所有肉鸡进行断料,试验第84天进行采样。每组6个盲肠内容物样本:每个重复随机选择1只鸡,屠宰后迅速解剖并分离盲肠,收集盲肠内容物,迅速置于液氮保存,用于盲肠微生物16S rDNA测序。每组6个胸肌样本:每个重复随机选择1只,屠宰后取右侧相同位置胸肌100 g,干冰保存,用于胸肌代谢物检测。

1.5 饲粮营养成分测定

粗蛋白质、钙和总磷含量分别参照GB/T 6432—2018、GB/T 6436—2018和GB/T 6437—2018的方法测定,赖氨酸和蛋氨酸含量参照GB/T 18246—2019的方法测定。代谢能参考《中国饲料成分及营养价值表(2022年第33版)》计算得出。

1.6 盲肠微生物16S rDNA测序与数据分析

按照MagPure Stool DNA Kit(Magen公司,美国)说明书分别提取6只鸡盲肠内容物的DNA,进行纯度检测,利用含标签的通用引物对合格样品DNA进行细菌V1~V9区扩增。通过Pacbio Sequel Ⅱ平台进行全长微生物多样性测序。
数据获取和分析参考Gao等[11]的方法。主要过程有:使用SMRTLINK(v11)获取环状一致性序列(circular consensus sequencing,CCS),使用Deblur去噪算法以100%相似性将清晰Reads聚集到扩增子序列变体(amplicon sequence variant,ASV)中[12],通过Usearch(v11)软件包(https://www.drive5.com/usearch/)中的Uclust算法与Silva(SSU132)16S rRNA数据库进行比对,对16S rRNA基因序列进行注释[13]。使用QIIME2软件进行微生物多样性分析[14]。使用EasyAmplicon v1.0[15]绘制微生物组成图,并使用线性判别分析效应大小(linear discriminant analysis effect size,LefSe)进行差异分析,并以线性判别分析(linear discriminan analysis,LDA)绝对值大于3作为显著差异微生物的筛选条件绘制展示图。

1.7 胸肌代谢物检测与数据分析

将100 mg胸肌进行液氮研磨,加入EP管中,加入500 μL预冷的提取溶液(甲醇:水=80:20,体积比),涡旋振荡,在冰浴条件下静置5 min,15 000×g、4 ℃离心20 min。取一定量上清液加入质谱级别水稀释至甲醇含量为53%,15 000×g、4 ℃离心20 min,收集上清,进行液相色谱-质谱联用(liquid chromatography-mass spectrometry,LC-MS)分析。
LC-MS条件如下:色谱柱为Hyperil Gold column(C18),柱温为40 ℃,流速为0.2 mL/min,质谱扫描范围为100~1 500 m/z。电喷雾电离(ESI)源设置如下:喷雾电压为3.5 kV,鞘气流速为35 psi,辅助气流速为10 L/min,离子传输管温度为320 ℃,离子导入射频电平为60 dBm,辅助气加热器温度为350 ℃。
差异代谢物的筛选主要参考变量重要性投影(variable importance in projection,VIP)、差异倍数(fold change,FC)以及P值3个参数,差异显著代谢物筛选标准为|FC|≥1.5、VIP>1同时P<0.05。

2 结果

2.1 饲粮中添加甜菊糖苷对黄羽肉鸡盲肠微生物的影响

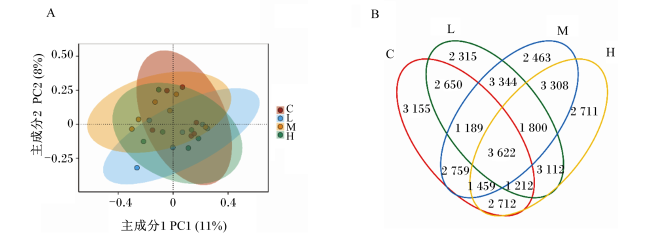
主坐标分析(PCoA,图1)结果表明,L组、M组、H组的盲肠微生物菌群结构与C组较相似(图1-A);根据操作分类单元(operational taxonomic unit,OTU)聚类分析结果绘制韦恩图(图1-B),4组共有的OTU数量为3 622个,C组、L组、M组和H组特有的OTU数量分别为3 155、2 315、2 463和2 711个。
图1 主坐标分析(A)和韦恩图(B)

C:C组 C group;L:L组 L group;M:L组 L group;H:H组 H group;下图同 the same as below。

Fig.1 PCoA (A) and Venn diagram (B)

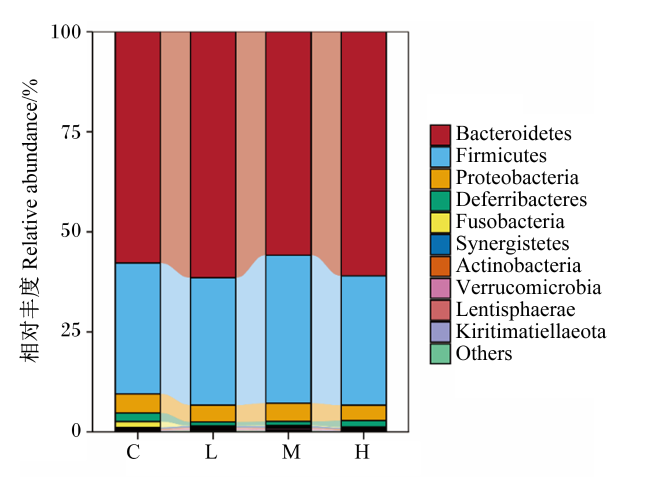
图2可以看出,在门水平上,相对丰度排行前3位的依次是拟杆菌门(55.83%~61.50%)、厚壁菌门(31.78%~36.99%)和变形菌门(3.85%~4.80%);与C组相比,M组的盲肠拟杆菌门相对丰度下降,厚壁菌门相对丰度上升。
图2 门水平盲肠微生物相对丰度

Bacteroidetes:拟杆菌门;Firmicutes:厚壁菌门;Proteobacteria:变形菌门;Deferribacteres:脱铁杆菌门;Fusobacteria:梭杆菌门;Synergistetes:互养菌门;Actinobacteria:放线菌门;Verrucomicrobia:疣微菌门;Lentisphaerae:黏胶球形菌门;Kiritimatiellaeota:鸢尾花菌门;Others:其他。

Fig.2 Relative abundance of microbiota in cecum at phylum level

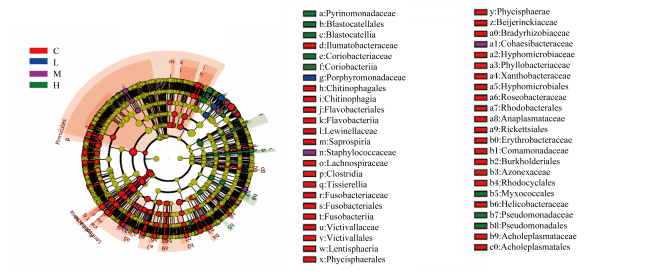
通过LEfSe分析评估L组、M组、H组的盲肠主导菌,从图3可以看出,L组的主导菌为卟啉单胞菌科,M组的主导菌为团结细菌科和葡萄球菌科,H组的主导菌为普氏单胞菌科、爆颗球目、科里细菌科和科里细菌属。
图3 系统进化分支图

Pyrinomonadaceae:普氏单胞菌科;Blastocatellales:爆颗球目;Ilumatobacteraceae:伊鲁马托菌科;Coriobacteriia:红椿菌纲;Porphyromonadaceae:卟啉单胞菌科;Chitinophagales:噬几丁质菌目;Chitinophagia:噬几丁质菌纲;Flavobacteriales:黄杆菌目;Flavobacteriia:黄杆菌科;Lewinellaceae:莱温氏菌科;Saprospiria:腐螺旋菌纲;Staphylococcaceae:葡萄球菌科;Lachnospiraceae:毛螺旋菌科;Clostridia:梭菌纲;Tissierellia:蒂氏菌纲;Fusobacteriaceae:梭杆菌科;Fusobacteriales:梭杆菌目;Fusobacteriia:梭杆菌纲;Victivallaceae:维克提瓦菌科;Victivallales:维克提瓦菌目;Lentisphaeria:缓释菌纲;Phycisphaerales:泡球菌目;Phycisphaerae:泡球菌科;Beijerinckiaceae:拜叶林克氏菌科;Bradyrhizobiaceae:慢生根瘤菌科;Cohaesibacteraceae:团结细菌科;Hyphomicrobiaceae:生丝微菌科;Phyllobacteriaceae:叶杆菌科;Xanthobacteraceae:黄色杆菌科;Hyphomicrobiales:生丝菌目;Roseobacteraceae:玫瑰杆菌科;Anaplasmataceae:无形体科;Rickettsiales:立克次体目;Erythrobacteraceae:红杆菌科;Comamonadaceae:丛毛单胞菌科;Burkholderiales:伯克氏菌目;Azonexaceae:阿佐内克司科;Rhodocyclales:红环菌目;Myxococcales:粘球菌目;Helicobacteraceae:螺杆菌科;Pseudomonadaceae:假单胞菌科;Pseudomonadales:假单胞菌目;Acholeplasmataceae:无胆甾原体科;Acholeplasmatales:无胆甾原体目。

Fig.3 Phylogenetic cladogram

2.2 饲粮中添加甜菊糖苷对黄羽肉鸡胸肌代谢物的影响

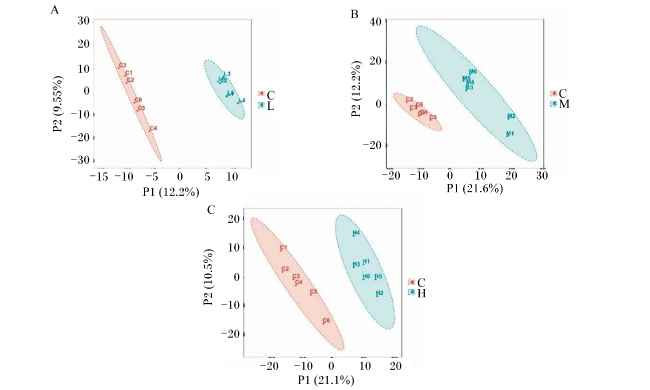
图4可以看出,L组、M组和H组均能同C组进行有效区分。
图4 各组胸肌代谢物多元统计分析

偏最小二乘判别分析(PLS-DA)评分图比较试验组和对照组。横坐标P1和纵坐标P2分别代表第一排名和第二排名主成分得分,椭圆为95%的置信区间。

Fig.4 Multivariate statistical analysis of pectoral muscle metabolites in each group

Partial least squares discriminant analysis (PLS-DA) scoring plots were compared between experimental and control groups. The abscess P1 and ordinate P2 represented the first and second ranking principal component scores, respectively, with a 95% confidence interval for the ellipse.

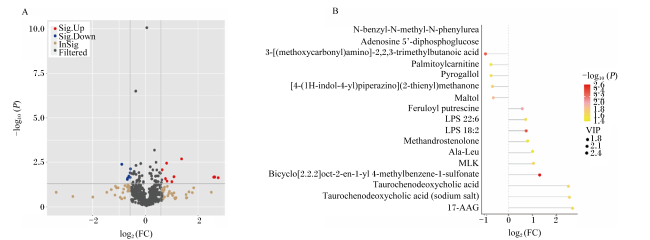
图5可以看出,L组和C组间差异代谢物筛选结果中,有10种显著差异代谢物,其中连苯三酚、腺苷-5’-二磷酸葡萄糖、麦芽酚等含量降低,牛磺酸鹅去氧胆酸、二十二碳六烯酸构成的甘油磷酸丝氨酸等含量升高。
图5 基于LC-MS分析的L组与C组间显著差异代谢物展示

Sig.Up:显著上升 significant up;Sig.Down:显著降低 significant down;InSig:不显著 insignificant;Filtered:滤过的;P:PP-value;FC:差异倍数 fold change;VIP:变量重要性投影 variable importance in projection。下图同 the same as below。

N-benzyl-N-methyl-N-phenylurea:N-苯甲基-N-甲基-N-苯基脲;Adenosine 5’-diphosphoglucose:腺苷-5’-二磷酸葡萄糖;3-[(methoxycarbonyl)amino]-2,2,3-trimethylbutanoic acid:3-甲酯基氨基2,2,3-三甲基丁酸;Palmitoylcarnitine:棕榈酰肉碱;Pyrogallol:连苯三酚;[4-(1H-indol-4-yl)piperazino](2-thienyl)methanone:4-(1H-吲哚-4-基)哌嗪-1-基甲酮;Maltol:麦芽酚;Feruloyl putrescine:阿魏酰腐胺;LPS 22:6:二十二碳六烯酸构成的甘油磷酸丝氨酸 glycerol phosphoserine composed of docosahexaenoic acid;LPS 18:2:十八碳二烯酸构成的甘油磷酸丝氨酸 glycerol phosphoserine composed of octadecadienoic acid;Methandrostenolone:美雄酮;Ala-Leu:亮氨酸-丝氨酸 leucine serine;MLK:甲硫氨酸-亮氨酸-赖氨酸 methionine-leucine-lysine;Bicyclo[2.2.2]oct-2-en-1-yl 4-methylbenzene-1-sulfonate:4-甲基苯磺酸二环[2.2.2]辛-2-烯-1-基酯;Taurochenodeoxycholic acid:牛磺鹅去氧胆酸;Taurochenodeoxycholic acid (sodium salt):牛磺鹅去氧胆酸(钠盐);17-AAG:17-烯丙氨基-17-去甲氧基格尔德霉素 17-allylamino-17-demethoxygeldanamycin。

Fig.5 Significant differential metabolites display between L group and C group based on LC-MS analysis

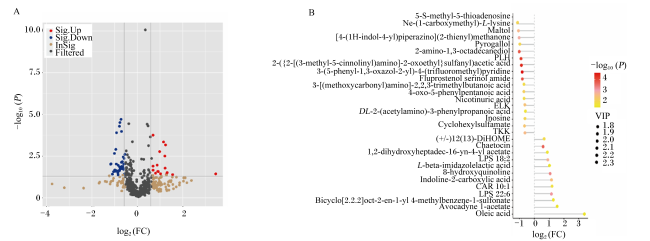
图6可以看出,M组和C组差异代谢物筛选结果中,有55种显著差异代谢物,其中连苯三酚、麦芽酚、肌苷等含量降低,油酸、鳄梨炔醇-1-乙酸酯和二十二碳六烯酸构成的甘油磷酸丝氨酸等含量升高。
图6 基于LC-MS分析的M组与C组间显著差异代谢物展示

5-S-methyl-5-thioadenosine:5-甲硫基腺苷;Ne-(1-carboxymethyl)-L-lysine:ε-羧甲基-L-赖氨酸;Maltol:麦芽酚;[4-(1H-indol-4-yl)piperazino](2-thienyl)methanone:4-(1H-吲哚-4-基)哌嗪-1-基甲酮;Pyrogallol:连苯三酚;2-amino-1,3-octadecanediol:2-氨基-1,3-十八烷二醇;PLH:脯氨酰-亮氨酰-组氨酸三肽 prolyl leucyl histidine tripeptide;2-({2-[(3-methyl-5-cinnolinyl)amino]-2-oxoethyl}sulfanyl)acetic acid:2-{[2-[(3-甲基-5-噌啉基)氨基]-2-氧代乙基]硫基}乙酸;3-(5-phenyl-1,3-oxazol-2-yl)-4-(trifluoromethyl)pyridine:3-(5-苯基-1,3-噁唑-2-基)-4-(三氟甲基)吡啶;Fluprostenol serinol amide:氟前列醇丝氨醇酰胺;3-[(methoxycarbonyl)amino]-2,2,3-trimethylbutanoic acid:3-甲氧羰基氨基-2,2,3-三甲基丁酸;4-oxo-5-phenylpentanoic acid:5-苯基-4-氧代戊酸;Nicotinuric acid:尼古丁尿酸;ELK:谷氨酰-亮氨酰-赖氨酸三肽 glutamyl-leucyl-lysine tripeptide;DL-2-(acetylamino)-3-phenylpropanoic acid:DL-2-乙酰氨基-3-苯丙酸;Inosine:肌苷;Cyclohexylsulfamate:环已基氨基磺酸盐;TKK:苏氨酰-赖氨酰-赖氨酸三肽 sumyl-lysyl-lysine tripeptides;(+/-)12(13)-DiHOME:(±)12,13-二羟基-9-十八碳烯酸/12,13-二羟基油酸衍生物 (±)12,13-dihydroxy-9-octadecenoic acid/12,13-dihydroxy oleic acid derivatives;Chaetocin:毛壳素;1,2-dihydroxyheptadec-16-yn-4-yl acetate:1,2-二羟基十七碳烯-16-炔-4-基醋酸酯;LPS 18:2:十八碳二烯酸构成的甘油磷酸丝氨酸 glycerol phosphoserine composed of octadecadienoic acid;L-beta-imidazolelactic acid:L-β-咪唑乳酸;8-hydroxyquinoline:8-羟基喹啉;indoline-2-carboxylic acid:吲哚啶-2-羧酸;CAR 10:1:N-辛基-N-甲基氨基乙酸酯 N-oct-N-methylaminoacetate;LPS 22:6:二十二碳六烯酸构成的甘油磷酸丝氨酸 glycerol phosphoserine composed of docosahexaenoic acid;bicyclo[2.2.2]oct-2-en-1-yl 4-methylbenzene-1-sulfonate:双环[2.2.2]辛-2-烯-1-基-4-甲基苯磺酸酯;Avocadyne 1-acetate:鳄梨炔醇-1-乙酸酯;Oleic acid:油酸。

Fig.6 Significant differential metabolites display between M group and C group based on LC-MS analysis

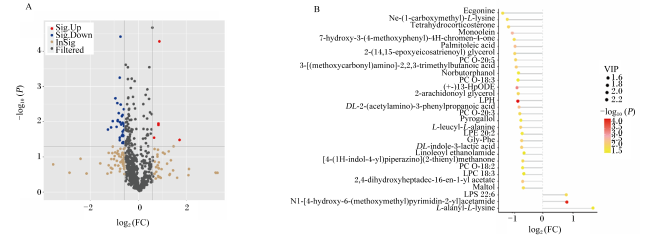
图7可以看出,H组与C组差异代谢物筛选结果中,有38种显著差异代谢物,其中连苯三酚、牙子碱、麦芽酚、棕榈酸等含量降低,L-丙氨酰-L-赖氨酸和二十二碳六烯酸构成的甘油磷酸丝氨酸等含量升高。
图7 基于LC-MS分析的H组与C组间显著差异代谢物展示

Ecgonine:牙子碱;Ne-(1-carboxymethyl)-L-lysine:N-ε-羧甲基-L-赖氨酸;Tetrahydrocorticosterone:四氢皮质酮;Monoolein:油酸单甘油酯;7-hydroxy-3-(4-methoxyphenyl)-4H-chromen-4-one:7-羟基-3-(4-甲氧基苯基)-4-氧代-4H-色烯;Palmitoleic acid:棕榈酸;2-(14,15-epoxyeicosatrienoyl) glycerol:2-(14,15-环氧二十碳三烯酰基)甘油;PC O-20:5:1-二十碳五烯酰-sn-甘油-3-磷酸胆碱 1-eicosapentaenyl-sn-glycerin-3-phosphocholine;3-[(methoxycarbonyl)amino]-2,2,3-trimethylbutanoic acid:3-甲酯基氨基2,2,3-三甲基丁酸;Norbutorphanol:布托啡诺;PC O-18:3:1-十八碳三烯酰-sn-甘油-3-磷酸胆碱 1-octadecyltienyl sn-glycerin-3-phosphocholine;(+-)13-HpODE:(+-) 13-羟基-9-十八碳烯酸/13-羟基油酸衍生物 (+-) 13-hydroxy-9-octadecenoic acid/13-hydroxy oleic acid derivatives;2-arachidonoyl glycerol:花生四烯酰多巴胺;LPH:洛普酰胺 loproamide;DL-2-(acetylamino)-3-phenylpropanoic acid:DL-2-(乙酰氨基)-3-苯基丙酸;PC O-20:3:1-二十碳三烯酰-sn-甘油-3-磷酸胆碱 1-eicosatrieneacyl-sn-glycerin-3-phosphocholine;Pyrogallol:连苯三酚;L-leucyl-L-alanine:L-亮氨酰-L-丙氨酸;LPE 20:2:溶血磷脂酰乙醇胺20:2 lysophosphatidylethanolamines 20:2;Gly-Phe:甘氨酸-苯丙氨酸 glycine-phenylalanine;DL-indole-3-lactic acid:DL-吲哚-3-乳酸;Linoleoyl ethanolamide:亚油酰乙醇胺;[4-(1H-indol-4-yl)piperazino](2-thienyl)methanone:[4-(1H-吲哚-4-基)哌嗪基](2-噻吩基)甲酮;PC O-18:2:1-十八碳二烯酰-sn-甘油-3-磷酸胆碱 1-octadecadienyl-sn-glycerin-3-phosphocholine;LPC 18:3:溶血磷脂酰乙醇胺18:3 lysophosphatidylethanolamines 18:3;2,4-dihydroxyheptadec-16-en-1-yl acetate:2,4-二羟正十七烷基环己烷-16-丙烯乙酯;Maltol:麦芽酚;LPS 22:6:二十二碳六烯酸构成的甘油磷酸丝氨酸 glycerol phosphoserine composed of docosahexaenoic acid;N1-[4-hydroxy-6-(methoxymethyl)pyrimidin-2-yl]acetamide:N1-[4-羟基-6-(甲氧基甲基)嘧啶-2-基]乙酰胺;L-alanyl-L-lysine:L-丙氨酰-L-赖氨酸。

Fig.7 Significant differential metabolites display between H group and C group based on LC-MS analysis

3 讨论

在鸡的胃肠道中定植着包括细菌和古细菌等在内的大量微生物,并在营养物质消化、免疫系统发育、病原体消除和饲料效率提升等方面发挥重要作用。鸡盲肠中的微生物数量最多,主要以4种细菌为主,分别是厚壁菌门、拟杆菌门、放线菌门和变形菌门。林奕岑等[16]在研究肉鸡盲肠微生物多样性的试验中发现,肉鸡盲肠中拟杆菌门占比约70.0%,厚壁菌门占比约25.4%,变形菌门占比约4.3%。拟杆菌门可降解复杂碳水化合物外,如多糖、抗性淀粉和果胶等,提高养分利用率、提高机体免疫力、维持肠道微生态平衡[17]。厚壁菌门擅长利用简单碳水化合物产生短链脂肪酸[18],有助于肠道健康和免疫调节,包括乳酸杆菌等有益的益生菌[19]。变形菌门包括许多立克次氏体属、布鲁氏菌属等病原微生物,可使动物患肠炎腹泻等疾病[20]。本研究表明,不同剂量甜菊糖苷组肉鸡盲肠中的优势菌仍以拟杆菌门(55.83%~61.50%)、厚壁菌门(31.78%~36.99%)和变形菌门(3.85%~4.80%)为主,说明甜菊糖苷对肉鸡盲肠内容物无明显破坏性的影响。另外,中剂量甜菊糖苷能够降低拟杆菌门相对丰度,并提高厚壁菌门相对丰度,说明利用肠道微生物简单碳水化合物产生短链脂肪酸的能力有所提升。
进一步分析评估了各组主导菌种,低剂量甜菊糖苷组的主导菌为卟啉单胞菌科,中剂量甜菊糖苷组的主导菌为团结细菌科和葡萄球菌科,高剂量甜菊糖苷组的主导菌为普氏单胞菌科、爆颗球目、科里细菌科和科里细菌属。卟啉单胞菌科属拟杆菌门,可通过乙酰辅酶A、戊二酸、赖氨酸3种途径合种丁酸盐[21],参与肠道短链脂肪酸如乙酸盐、丁酸盐和丙酸盐等的形成[22-23]。团结细菌科、普氏单胞菌科和爆颗球目广泛存在于土壤和水体中,关于团结细菌科在肠道中的功能的研究相对有限。葡萄球菌科可能在正常情况下作为肠道微生物群的一部分存在,但在肠道屏障受损或免疫系统紊乱时,它也可能成为致病菌,引发肠道感染[24-25]。科里细菌属具有纤维素降解和发酵代谢的能力,能有效分解复杂的碳水化合物并产生短链脂肪酸(如醋酸和丁酸),这些短链脂肪酸对于维持肠道健康至关重要。另外,盲肠中科里细菌属促进核黄素、草铵膦和环司他丁的形成而抑制肉鸡肌内脂肪含量[26]
与对照组相比,中剂量甜菊糖苷组肌肉中显著改变的代谢物最多,其次是高剂量甜菊糖苷组,再次是低剂量甜菊糖苷组,说明中剂量甜菊糖苷对肉鸡肌肉代谢物的影响最大。与对照组相比,中剂量甜菊糖苷组肌肉连苯三酚、麦芽酚和肌苷等代谢物含量降低,油酸、鳄梨炔醇-1-乙酸酯和二十二碳六烯酸构成的甘油磷酸丝氨酸等代谢物含量上升。连苯三酚具有抗氧化、抑菌、抗癌等特性而成为许多药物的活性成分[27],但它也是一种广泛存在的环境污染物,具有乙酰胆碱酯酶抑制作用,对人类和动物都构成健康风险[28]。麦芽酚是一种风味物质,常被用作烘焙食物中的增味剂,但是研究表明过量添加增味剂影响过氧化氢酶活性,从而引起健康问题[29]。肌苷则是风味物质肌苷酸的前体,在肉类加工和储存过程中会降解为肌苷酸[30]。油酸在肌肉中具有多种重要作用,包括能量供应[31]、细胞膜结构维护[32]、抗炎[33]、抗氧化[34]以及支持肌肉生长和修复[35]。鳄梨炔醇-1-乙酸酯是鳄梨中提取的一种脂类化合物,具有潜在的抗炎和抗氧化作用[36-37]。二十二碳六烯酸构成的甘油磷酸丝氨酸含有蛋白质原性氨基酸丝氨酸作为头部基团,它是细胞膜的重要组成部分,同时也参与多种生物过程,如细胞膜组成、信号传导、神经保护、代谢调节和抗氧化作用[38]。由此可见,饲粮中添加中剂量甜菊糖苷可以降低连苯三酚对机体的影响,提高黄羽肉鸡抗氧化能力,但仍需进一步研究。

4 结论

饲粮中添加800 mg/kg甜菊糖苷能够降低黄羽肉鸡盲肠中拟杆菌门相对丰度,增加厚壁菌门相对丰度;降低胸肌中代谢物连苯三酚、麦芽酚和肌苷含量,增加油酸、鳄梨炔醇-1-乙酸酯和二十二碳六烯酸构成的甘油磷酸丝氨酸含量。
[1]
LIU R R, XING S Y, WANG J, et al. A new chicken 55K SNP genotyping array[J]. BMC Genomics, 2019, 20(1):410.

DOI PMID

[2]
CASAS-GRAJALES S, RAMOS-TOVAR E, CHÁVEZ-ESTRADA E, et al. Antioxidant and immunomodulatory activity induced by stevioside in liver damage:in vivo,in vitro and in silico assays[J]. Life Sciences, 2019, 224:187-196.

[3]
VELESIOTIS C, KANELLAKIS M, VYNIOS D H. Steviol glycosides affect functional properties and macromolecular expression of breast cancer cells[J]. IUBMB Life, 2022, 74(10):1012-1028.

DOI PMID

[4]
WANG Y, LUO X, CHEN L, et al. Natural and low-caloric rebaudioside a as a substitute for dietary sugars:a comprehensive review[J]. Comprehensive Reviews in Food Science and Food Safety, 2023, 22(1):615-642.

[5]
ZHANG J N, LI X X, SHA Y Z, et al. Effects of steviol glycosides on growth performance,ruminal fermentation and microbial diversity of Hu sheep[J]. Animals, 2024, 14(13):1991.

[6]
WANG K X, JIANG M C, CHEN Y H, et al. Changes in the rumen development,rumen fermentation,and rumen microbiota community in weaned calves during steviol glycosides treatment[J]. Frontiers in Microbiology, 2024, 15:1395665.

[7]
何振涛. 饲粮中添加甜菊糖苷对仔猪生长性能、营养化学感应功能及肠道健康的影响[D].硕士学位论文. 佛山: 佛山科学技术学院, 2024.

HE Z T. Effects of dietary steviol glycosides supplementation on growth performance,nutrients chemosensory function,and intestinal health in weaned piglets[D].Master’s Thesis. Foshan: Foshan University, 2024. (in Chinese)

[8]
蒋静乐. 甜菊糖苷对产蛋后期种鸡生产性能和其子代肠道免疫功能的影响及机制研究[D].博士学位论文. 南京: 南京农业大学, 2022.

JIANG J L. Effects and mechanisms of stevioside on production performance of aged breeder hens and intestinal immune function of chicken offspring[D].Ph.D.Thesis. Nanjing: Nanjing Agricultural University, 2022. (in Chinese)

[9]
FANG X, YE H Q, ZHANG S Y, et al. Investigation of potential genetic factors for growth traits in yellow-feather broilers using weighted single-step genome-wide association study[J]. Poultry Science, 2023, 102(11):103034.

[10]
BHASKER S, MADHAV H, CHINNAMMA M. Molecular evidence of insulinomimetic property exhibited by steviol and stevioside in diabetes induced L6 and 3T3L1 cells[J]. Phytomedicine, 2015, 22(11):1037-1044.

DOI PMID

[11]
GAO F J, GUO R J, MA Q Y, et al. Stressful events induce long-term gut microbiota dysbiosis and associated post-traumatic stress symptoms in healthcare workers fighting against COVID-19[J]. Journal of Affective Disorders, 2022, 303:187-195.

DOI PMID

[12]
AMIR A, MCDONALD D, NAVAS-MOLINA J A, et al. Deblur rapidly resolves single-nucleotide community sequence patterns[J]. mSystems, 2017, 2(2):e00191-e00216.

[13]
EDGAR R C. Updating the 97% identity threshold for 16S ribosomal RNA OTUs[J]. Bioinformatics, 2018, 34(14):2371-2375.

DOI PMID

[14]
CAPORASO J G, KUCZYNSKI J, STOMBAUGH J, et al. QIIME allows analysis of high-throughput community sequencing data[J]. Nature Methods, 2010, 7(5):335-336.

DOI PMID

[15]
LI B, ZHANG H B, SHI L L, et al. Saccharomyces boulardii alleviates DSS-induced intestinal barrier dysfunction and inflammation in humanized mice[J]. Food & Function, 2022, 13(1):102-112.

[16]
林奕岑, 徐帅, 倪学勤, 等. 利用Illumina MiSeq测序平台分析肉鸡盲肠微生物多样性[J]. 中国农业大学学报, 2016, 21(12):65-73.

LIN Y C, XU S, NI X Q, et al. Diversity of the cecal microbiome of broiler chicken based on Illumina MiSeq sequencing platform[J]. Journal of China Agricultural University, 2016, 21(12):65-73. (in Chinese)

[17]
LOUIS P, FLINT H J. Formation of propionate and butyrate by the human colonic microbiota[J]. Environmental Microbiology, 2017, 19(1):29-41.

DOI PMID

[18]
RÍOS-COVIÁN D, RUAS-MADIEDO P, MARGOLLES A, et al. Intestinal short chain fatty acids and their link with diet and human health[J]. Frontiers in Microbiology, 2016, 7:185.

[19]
LAI H H, CHIU C H, KONG M S, et al. Probiotic Lactobacillus casei:effective for managing childhood diarrhea by altering gut microbiota and attenuating fecal inflammatory markers[J]. Nutrients, 2019, 11(5):1150.

[20]
RIZZATTI G, LOPETUSO L R, GIBIINO G, et al. Proteobacteria:a common factor in human diseases[J]. BioMed Research International, 2017, 2017:9351507.

[21]
VITAL M, HOWE A C, TIEDJE J M. Revealing the bacterial butyrate synthesis pathways by analyzing (meta) genomic data[J]. mBio, 2014, 5(2):e00889.

[22]
LANDY J, WALKER A W, LI J V, et al. Variable alterations of the microbiota,without metabolic or immunological change,following faecal microbiota transplantation in patients with chronic pouchitis[J]. Scientific Reports, 2015, 5:12955.

[23]
AYUDTHAYA S P N, VAN DE WEIJER A H P, VAN GELDER A H, et al. Organic acid production from potato starch waste fermentation by rumen microbial communities from Dutch and Thai dairy cows[J]. Biotechnology for Biofuels, 2018, 11:13.

DOI PMID

[24]
BELKAID Y, HAND T W. Role of the microbiota in immunity and inflammation[J]. Cell, 2014, 157(1):121-141.

DOI PMID

[25]
ZENG J S, YANG K L, NIE H F, et al. The mechanism of intestinal microbiota regulating immunity and inflammation in ischemic stroke and the role of natural botanical active ingredients in regulating intestinal microbiota:a review[J]. Biomedecine & Pharmacotherapie, 2023, 157:114026.

[26]
LONG X X, ZHANG F P, WANG L Q, et al. The chicken cecal microbiome alters bile acids and riboflavin metabolism that correlate with intramuscular fat content[J]. Frontiers in Microbiology, 2024, 15:1494139.

[27]
WANG J, SHEN X L, YUAN Q P, et al. Microbial synthesis of pyrogallol using genetically engineered Escherichia coli[J]. Metabolic Engineering, 2018, 45:134-141.

[28]
SARIKAYA S B O. Acethylcholinesterase inhibitory potential and antioxidant properties of pyrogallol[J]. Journal of Enzyme Inhibition and Medicinal Chemistry, 2015, 30(5):761-766.

DOI PMID

[29]
HUO M L, ZHAO L N, WANG T, et al. Binding mechanism of maltol with catalase investigated by spectroscopy,molecular docking,and enzyme activity assay[J]. Journal of Molecular Recognition, 2020, 33(3):e2822.

[30]
法春梅, 王芷筠, 张雅文, 等. 鸡肌苷酸代谢调控基因及影响因素研究进展[J/OL]. 中国家禽, 2025:1-8(2025-01-10)[2025-03-01]. http://kns.cnki.net/kcms/detail/32.1222.S.20250110.1337.006.html.

FA C M, WANG Z Y, ZHANG Y W, et al. Research progress on regulatory genes and influencing factors of chicken inosine metabolism[J/OL]. China Poultry, 2025:1-8(2025-01-10)[2025-03-01]. http://kns.cnki.net/kcms/detail/32.1222.S.20250110.1337.006.html. (in Chinese)

[31]
NAZARI M, JEBRANE M, TERZIEV N. Multicomponent bio-based fatty acids system as phase change material for low temperature energy storage[J]. Journal of Energy Storage, 2021, 39:102645.

[32]
DEMIRBOLAT G M, COSKUN G P, ERDOGAN O, et al. Long chain fatty acids can form aggregates and affect the membrane integrity[J]. Colloids and Surfaces B: Biointerfaces, 2021, 204:111795.

[33]
SANTA-MARÍA C, LÓPEZ-ENRÍQUEZ S, MONTSERRAT-DE LA PAZ S, et al. Update on anti-inflammatory molecular mechanisms induced by oleic acid[J]. Nutrients, 2023, 15(1):224.

[34]
FRATIANNI F, D’ACIERNO A, OMBRA M N, et al. Fatty acid composition,antioxidant,and in vitro anti-inflammatory activity of five cold-pressed prunus seed oils,and their anti-biofilm effect against pathogenic bacteria[J]. Frontiers in Nutrition, 2021, 8:775751.

[35]
WATANABE N, KOMIYA Y, SATO Y, et al. Oleic acid up-regulates myosin heavy chain (MyHC) 1 expression and increases mitochondrial mass and maximum respiration in C2C12 myoblasts[J]. Biochemical and Biophysical Research Communications, 2020, 525(2):406-411.

DOI PMID

[36]
MARRA A, MANOUSAKIS V, ZERVAS G P, et al. Avocado and its by-products as natural sources of valuable anti-inflammatory and antioxidant bioactives for functional foods and cosmetics with health-promoting properties[J]. Applied Sciences, 2024, 14(14):5978.

[37]
TCHENG M, CUNHA V L S, AHMED N, et al. Structure-activity relationship of avocadyne[J]. Food and Function, 2021, 12(14):6323-6333.

[38]
BOCKOVÁ J, GARCIA A D, JONES N C, et al. Chiroptical properties of membrane glycerophospholipids and their chiral backbones[J]. Chirality, 2024, 36(3):e23654.

文章导航

/