研究论文

维生素K3对爱拔益加肉鸡生长性能和血浆代谢组学的影响

  • 段元亮 ,
  • 高杰 ,
  • 赖玉娇 ,
  • 郭双双 ,
  • 李兰兰 , * ,
  • 丁斌鹰 , *
展开
  • 武汉轻工大学农副产品蛋白质饲料资源教育部工程研究中心,动物营养与饲料科学湖北省重点实验室,武汉 430023
* 李兰兰,讲师,E-mail: ;
丁斌鹰,教授,硕士生导师,E-mail:

段元亮(2000—),女,安徽六安人,硕士研究生,研究方向为动物营养与饲料科学。E-mail:

Copy editor: 武海龙

收稿日期: 2024-11-07

  网络出版日期: 2025-07-12

基金资助

国家重点研发计划课题(2016YFD0501202)

武汉英才“优秀青年人才”项目(05226004)

Effects of Vitamin K3 on Growth Performance and Plasma Metabolomics of Arbor Acres Broilers

  • DUAN Yuanliang ,
  • GAO Jie ,
  • LAI Yujiao ,
  • GUO Shuangshuang ,
  • LI Lanlan , * ,
  • DING Binying , *
Expand
  • Hubei Key Laboratory of Animal Nutrition and Feed Science, Engineering Research Center of Feed Protein Resources on Agricultural By-Prodoucts, Ministry of Education, Wuhan Polytechnic University, Wuhan 430023, China
* LI Lanlan, lecturer, E-mail: ;
DING Binying, professor, E-mail:

Received date: 2024-11-07

  Online published: 2025-07-12

摘要

本试验旨在研究维生素K3(VK3)对爱拔益加(AA)肉鸡生长性能和血浆代谢组学的影响。选择360只平均体重为(45.00±0.50) g的1日龄AA肉鸡公鸡,随机分为3个组,每组6个重复,每个重复20只鸡。对照组饲喂基础饲粮(不额外添加VK3),试验组分别在基础饲粮中额外添加0.5和4.0 mg/kg的VK3。预试期3 d,正试期42 d。结果表明:1)与对照组相比,饲粮中添加0.5和4.0 mg/kg的VK3显著提高了肉鸡第22~42天和第1~42天的平均日增重(P<0.05),并显著降低了料重比(P<0.05);饲粮中添加0.5 mg/kg的VK3显著降低了肉鸡第1~21天的料重比(P<0.05)。2)与对照组相比,饲粮中添加0.5 mg/kg VK3改变了第14天和第42天血浆中差异代谢物的种类和含量,差异代谢物的类型主要包括氨基酸及其代谢物、碳水化合物及其代谢物、有机酸及其衍生物、甘油磷脂类、转运类蛋白等,极显著富集到ABC转运蛋白,氨酰基-tRNA生物合成,丙氨酸、天冬氨酸和谷氨酸代谢、甘油磷脂代谢途径(P<0.01)。综上所述,饲粮中添加0.5 mg/kg VK3能够影响肉鸡血浆代谢物的代谢途径,改变血浆中差异代谢物的类型和含量,提高机体的综合代谢能力,从而提高肉鸡生长性能。

本文引用格式

段元亮 , 高杰 , 赖玉娇 , 郭双双 , 李兰兰 , 丁斌鹰 . 维生素K3对爱拔益加肉鸡生长性能和血浆代谢组学的影响[J]. 动物营养学报, 2025 , 37(7) : 4481 -4493 . DOI: 10.12418/CJAN2025.367

Abstract

This experiment was conducted to investigate the effects of vitamin K3 (VK3) on growth performance and plasma metabolomics of Arbor Acres (AA) broilers. A total of 360 one-day-old AA male broilers with average body weight of (45.00±0.50) g were selected and randomly divided into 3 groups with 6 replicates per group and 20 broilers per replicate. The control group was fed the basal diet (without additional VK3), and the experimental groups were fed basal diets additional supplemented with 0.5 and 4.0 mg/kg VK3, respectively. The trial contained 3-days pre-experimental period and 42-days formal experimental period. The results showed as follows: 1) compared with the control group, dietary supplemented with 0.5 and 4.0 mg/kg VK3 significantly increased the average daily gain of broilers during days 22 to 42 and days 1 to 42 (P<0.05), and significantly decreased the feed to gain ratio (P<0.05); dietary supplemented with 0.5 mg/kg VK3 significantly decreased the feed to gain ratio of broilers during days 1 to 21 (P<0.05). 2) Compared with the control group, dietary supplemented with 0.5 mg/kg VK3 changed the types and contents of differential metabolites in plasma of broilers on day 14 and day 42, the types of differential metabolites mainly included amino acids and metabolites, carbohydrates and metabolites, organic acids and their derivatives, glycerophospholipids and transport proteins, and significantly enriched the pathways of ABC transporter, aminoacyl-tRNA biosynthesis, alanine, aspartate and glutamate metabolism, glyceropholipid metabolism (P<0.01). In summary, dietary supplemented with 0.5 mg/kg VK3 can affect the metabolic pathways of plasma metabolites of broilers, change the types and contents of differential metabolites in plasma, improve the body comprehensive metabolic capacity, thereby improv the growth performance of broilers.

生长性能是反映畜禽经济价值最直观的指标,包括平均日增重(average daily gain,ADG)、平均日采食量(average daily feed intake,ADFI)和料重比(feed to gain ratio,F/G)等指标,是营养物质摄入、消化吸收与代谢的最终表现。在动物体内,糖类、脂类和蛋白质之间相互作用,并分解成核苷酸、氨基酸和脂肪酸等小分子物质,通过体内多个器官的协同运作,维持机体正常运转的生命活动[1]。代谢组学通过对生物样品中的小分子代谢物进行定性、定量分析,筛选出生物标志物,建立起代谢物在代谢网络中的联系,揭示代谢物与动物表型之间的关系和潜在机制[2]。代谢组学广泛应用于营养代谢、疾病诊断、遗传育种等方面的动物研究中,如对畜禽营养干预及营养需要量分析[3-4]、药物的安全性监测[5]、动物应激领域研究[6]、畜禽遗传参数估计研究[7-8]等。
家禽消化道比较短,肠道产生的维生素K(VK)微乎其微,因此VK是集约化养殖中畜禽必须要添加的维生素,VK3在VK族中活性最高,多用于生产饲料添加剂,能改善动物的糖代谢、脂代谢、骨品质、氧化应激和免疫能力[9-11]。外源性VK可通过调控组织中钙、磷代谢以及促进成骨基因的表达,显著提高生长期肉鸡胫骨的骨品质[11]。但是,目前关于研究VK3对爱拔益加(AA)肉鸡生长阶段血浆中代谢物与代谢途径影响的报道很少。因此,本试验从代谢组学的角度出发,采用超高效液相色谱-飞行时间质谱联用(UHPLC-Q-TOF/MS)的技术手段,探究饲粮中VK3添加水平对不同日龄肉鸡血浆代谢物和代谢通路的影响,为研究VK3调节AA肉鸡关键代谢物的生理机制提供理论依据。

1 材料与方法

1.1 试验材料

VK3制剂采用亚硫酸氢钠甲萘醌产品,有效含量为50%。

1.2 试验设计

动物试验经武汉轻工大学动物福利伦理委员会批准(编号:WPU201612001)。本试验以360只平均体重为(45.00±0.50) g的1日龄AA肉鸡公鸡为研究对象,随机分为3个组,每组6个重复,每个重复20只鸡。对照组饲喂基础饲粮(不额外添加VK3),试验组分别在基础饲粮中额外添加0.5和4.0 mg/kg的VK3。预试期3 d,正试期42 d。基础饲粮为玉米-豆粕型饲粮,依据NRC(1994)标准分阶段配制,其具体组成及营养水平见表1。NRC(1994)建议在肉鸡饲粮中添加0.5 mg/kg的VK3。饲粮粗蛋白质(CP)和钙(Ca)含量的测定分别参照GB/T 6432—2018和GB/T 6436—2018中方法,代谢能(ME)、有效磷(AP)和氨基酸含量的计算参照《中国饲料成分及营养价值表(2021年第32版)》。
表1 基础饲粮组成及营养水平(风干基础)

Table 1 Composition and nutrient levels of basal diets (air-dry basis)%

项目
Items
含量 Content
第1~21天
Days
1 to 21
第22~42天
Days
22 to 42
原料 Ingredients
玉米 Corn 51.00 51.54
豆粕 Soybean meal 39.60 37.40
豆油 Soybean oil 5.00 7.18
磷酸氢钙 CaHPO4 1.80 1.64
石粉 Limestone 1.20 1.06
食盐 NaCl 0.36 0.31
DL-蛋氨酸 DL-Met 0.42 0.32
L-赖氨酸盐酸盐 L-Lys·HCl 0.28 0.22
氯化胆碱
Choline chloride (50%)
0.21 0.20
微量元素预混料
Trace element premix1)
0.10 0.10
维生素预混料 Vitamin premix2) 0.03 0.03
合计 Total 100.00 100.00
营养水平 Nutrient levels3)
代谢能 ME/(MJ/kg) 12.56 13.19
粗蛋白质 CP 21.40 20.50
赖氨酸 Lys 1.35 1.25
蛋氨酸 Met 0.73 0.62
钙 Ca 1.00 0.90
有效磷 AP 0.46 0.42

1)微量元素预混料为每千克饲粮提供 The trace element premix provided the following per kg of diets:Mn 100 mg,Zn 75 mg,Fe 80 mg,Cu 8 mg,I 0.35 mg,Se 0.15 mg。
2)维生素预混料为每千克饲粮提供 The Vitamin premix provided the following per kg of diets:VA 12 500 IU,VD3 2 500 IU,VE 30 IU,VB1 2 mg,VB2 6 mg,VB12 0.025 mg,生物素 biotin 0.032 5 mg,叶酸 folic acid 1.25 mg,泛酸 pantothenic acid 12 mg,尼克酸 niacin 50 mg。
3)代谢能、有效磷和氨基酸计算值,粗蛋白质和钙为实测值。ME, AP and amino acids were calculated values, while CP and Ca were measured values.

1.3 饲养管理

前期准备时将鸡舍及试验用具清理干净,并严格按照程序进行消毒通风处理。采用网上平养的方式,每笼20只肉鸡。根据AA肉鸡饲养管理制度控制鸡舍内温度(第1周32~34 ℃,第2周30~32 ℃,第3周之后25 ℃左右)、相对湿度(50%~60%)和光照(24 h)。定期打扫消毒鸡舍,按照正常免疫程序进行免疫。试验期间,肉鸡自由采食和饮水,每天定时观察和记录鸡舍内温度、相对湿度以及鸡只的采食、饮水、健康状态,统计耗料量和死淘率。

1.4 血浆样品采集与预处理

在正式试验的第14天和第42天,从3个组6个重复中分别挑选3只体重相近的肉鸡,采翅下静脉血于抗凝管中,离心后取上层血浆100 μL,加入甲醇乙腈溶液(甲醇与乙腈按体积比1:1混合,预冷)400 μL,60 s涡旋仪混匀,-20 ℃条件下放置1 h,待蛋白沉淀后14 000×g、4 ℃离心20 min,取上清冷冻干燥,于-80 ℃保存。

1.5 测定指标与方法

1.5.1 生长性能

在正式试验的第1天、第21天和第42天,测定每个重复鸡只的体重(称重前断料12 h)和采食量,计算肉鸡第1~21天、第22~42天以及第1~42天的ADG、ADFI和F/G。

1.5.2 血浆代谢组学分析

采用超高效液相色谱(1290 Infinity LC,Agilent公司,美国)进行色谱分析(随机顺序进行样本的连续分析),样品置于4 ℃自动进样器中。样本队列中插入质量控制(quality control,QC)样品(样品等量混合)并采用电喷雾电离(ESI)正离子和负离子2种模式进行。经超高效液相色谱(UHPLC)分离样品后进行质谱分析(Triple-TOF 5600质谱仪,AB SCIEX公司,美国)。将原始数据转化为mzXML格式后,对齐峰、校正保留时间和提取峰面积。数据预处理后,进行无监督主成分分析(PCA)、有监督偏最小二乘法判别分析(PLS-DA)的多维统计,进行t检验和变异倍数(fold change,FC)分析的单维统计分析,绘制火山图(R软件)。

1.6 数据处理与统计分析

试验数据采用SPSS 21.0软件进行单因素方差分析(one-way ANOVA),并采用Duncan氏多重比较法进行差异显著性分析。生长性能数据用平均值±标准差表示,P<0.05为差异显著。

2 结果与分析

2.1 VK3对肉鸡生长性能的影响

表2可知,第22~42天和第1~42天,与对照组相比,0.5和4.0 mg/kg VK3组肉鸡的ADG显著提高(P<0.05),F/G显著降低(P<0.05);第1~21天,与对照组相比,0.5 mg/kg VK3组肉鸡的F/G显著降低(P<0.05)。
表2 VK3对肉鸡生长性能的影响

Table 2 Effects of VK3 on growth performance of broilers

项目
Items
组别 Groups P
P-value
对照 Control 0.5 mg/kg VK3 4.0 mg/kg VK3
第1~21天 Days 1 to 21
平均日增重 ADG/g 42.10±0.96 43.71±2.20 43.19±1.69 0.274
平均日采食量 ADFI/g 61.70±0.96 62.31±2.59 62.51±1.48 0.729
料重比 F/G 1.47±0.02a 1.43±0.03b 1.45±0.02ab 0.030
第22~42天 Days 22 to 42
平均日增重 ADG/g 69.08±2.22b 81.39±8.35a 78.96±7.19a 0.012
平均日采食量 ADFI/g 150.70±9.20 155.00±12.20 155.80±11.90 0.708
料重比 F/G 2.18±0.16a 1.91±0.05b 1.98±0.10b 0.002
第1~42天 Days 1 to 42
平均日增重 ADG/g 55.48±1.28b 62.55±5.18a 61.08±4.37a 0.018
平均日采食量 ADFI/g 106.20±5.00 108.60±7.30 109.10±6.60 0.705
料重比 F/G 1.92±0.10a 1.74±0.03b 1.79±0.06b 0.001

同行数据肩标不同小写字母表示差异显著(P<0.05),相同或无字母表示差异不显著(P>0.05)。下表同。

In the same row, values with different small letter superscripts mean significant difference (P<0.05), while with the same or no letter superscripts mean no significant difference (P>0.05). The same as below.

2.2 VK3对肉鸡血浆代谢组学的影响

2.2.1 样本QC分析

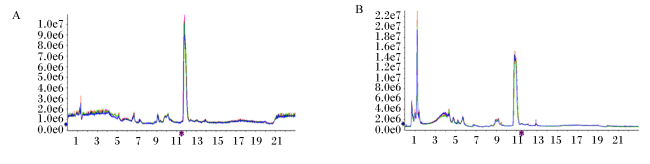
图1可知,通过比较正、负离子模式下QC样品的总离子流图发现,各色谱峰谱图重合度较高,响应强度和保留时间高度一致,说明在整个试验过程中仪器稳定,误差小。
图1 正、负离子模式下QC样品的总离子流图

A:正离子模式B:负离子模式。横坐标为保留时间(min),纵坐标为响应强度。

Fig.1 Total ion current figure of QC sample in positive and negative ion mode

A: positive ion mode B: negative ion mode. The abscissa is the retention time (min), and the ordinate is the response intensity.

2.2.2 总体样本PCA

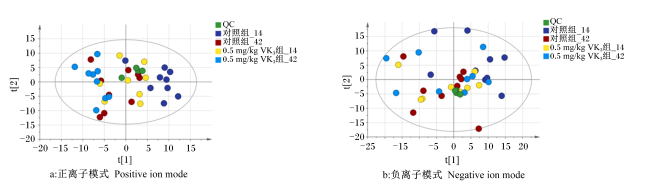
图2可知,PCA模型下,无论是正离子模式还是负离子模式,QC样本均聚集度高,第14天,对照组与0.5 mg/kg VK3组之间的模型对X变量解释率(R2X)为0.578;第42天,对照组和0.5 mg/kg VK3组之间的R2X为0.532,均表明仪器分析系统稳定,得出试验数据具有可靠性。第14天和第42天,0.5 mg/kg VK3组与对照组血浆样品之间有堆叠,但表现出明显的分离趋势,2组血浆代谢有明显差异,能反映出样本间自身的生物学差异。
图2 PCA图

QC:质量控制 quality control;对照组_14:第14天对照组 control group of day 14;对照组_42:第42天对照组 control group of day 42;0.5 mg/kg VK3组_14:第14天0.5 mg/kg VK3组 0.5 mg/kg VK3 of day 14;0.5 mg/kg VK3组_42:第42天0.5 mg/kg VK3组 0.5 mg/kg VK3 of day 42;t[1]:第1主成分 the first principal component;t[2]:第2主成分 the second principal component。

Fig.2 PCA figure

2.2.3 PLS-DA

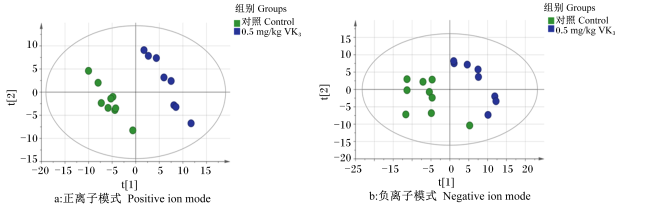
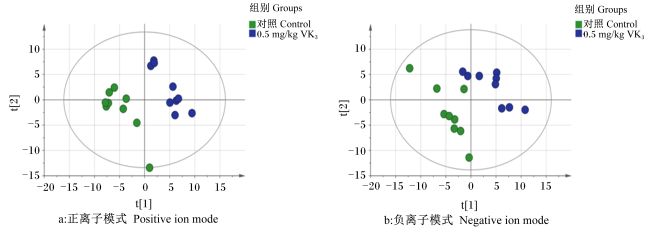
图3图4可知,利用PLS-DA模式,建立了对照组和0.5 mg/kg VK3组与各组代谢物之间的关系模式。由表3可知,通过7次循环交互验证得到模型评价参数模型对Y变量解释率(R2Y)和模型预测能力(Q2)。R2Y接近1,表示模型稳定可靠;Q2接近0.5,表示模型稳定性较好。以上结果表明,筛选出的差异代谢物准确、可靠。
图3 第14天PLS-DA得分图

t[1]:第1主成分 the first principal component;t[2]:第2主成分 the second principal component。图4同 the same as Fig.4

Fig.3 PLS-DA scoring plot for day 14

图4 第42天PLS-DA得分图

Fig.4 PLS-DA scoring plot for day 42

表3 PLS-DA模型的评价参数表(对照组vs 0.5 mg/kg VK3组)

Table 3 Evaluation parameter table of PLS-DA model (control group vs 0.5 mg/kg VK3 group)

项目
Items
模式
Mode
主成分数
A
模型对X变量
解释率
R2X
模型对Y
变量解释率
R2Y
模型预测能力
Q2

第14天 Day 14
正离子 3 0.306 0.997 0.646
负离子 2 0.401 0.848 0.479

第42天 Day 42
正离子 2 0.202 0.949 0.481
负离子 2 0.229 0.868 0.201

2.2.4 血浆差异代谢物筛选

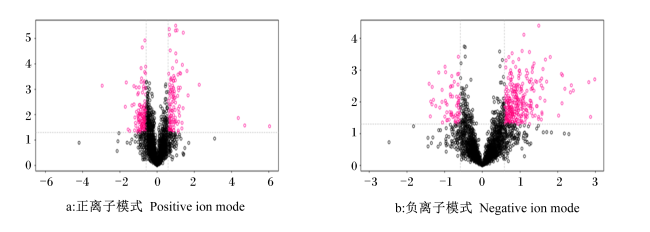
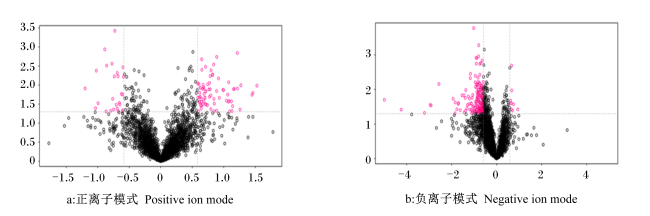
图5图6可知,综合了FC分析和t检验2种单变量分析方法的火山图,可以直观地显示对照组和0.5 mg/kg VK3组之间显著变化的代谢物,单变量统计分析筛选的潜在的标志代谢物(FC>1.5且P<0.05)为图中红色点。分析差异代谢物的类型主要包括氨基酸及其代谢物、碳水化合物及其代谢物、有机酸及其衍生物、甘油磷脂类、转运类蛋白等。在第14天,正离子模式下,对照组和0.5 mg/kg VK3组血浆中共筛选出32个差异代谢物,0.5 mg/kg VK3组血浆中11个代谢物上调,21个代谢物下调;负离子模式下,对照组和0.5 mg/kg VK3组血浆中共筛选出36个差异代谢物,0.5 mg/kg VK3组血浆中12个代谢物上调,24个代谢物下调。在第42天,正离子模式下,对照组和0.5 mg/kg VK3组血浆中共筛选出13个差异代谢物,0.5 mg/kg VK3组血浆中4个代谢物上调,9个代谢物下调;负离子模式下,对照组和0.5 mg/kg VK3组血浆中共筛选出24个差异代谢物,0.5 mg/kg VK3组血浆中23个代谢物上调,1个代谢物下调。正离子模式常用于分析如脂质、氨基酸、糖类等中等极性和非极性化合物,负离子模式常用于分析如有机酸、有机酸盐等极性化合物,同时使用正、负离子模式,可以更全面地检测到样本中的代谢物。表4表7列出了正、负离子模式下对照组和0.5 mg/kg VK3组血浆差异代谢物显著变化的前10位。
图5 第14天对照组和0.5 mg/kg VK3组血浆代谢组火山图

横坐标为log2(差异倍数),纵坐标为-log10(P值)。图6同。

Fig.5 Volcanic map of plasma metabolome of group of control group and 0.5 mg/kg VK3 group on day 14

The abscissa is the log2(FC), and the ordinate is the -log10(P-value). The same as Fig.6.

图6 第42天对照组和0.5 mg/kg VK3组血浆代谢组火山图

Fig.6 Volcanic map of plasma metabolome of group of control group and 0.5 mg/kg VK3 group on day 42

表4 第14天正离子模式下对照组和0.5 mg/kg VK3组血浆差异代谢物(前10)

Table 4 Plasma differential metabolites of control group and 0.5 mg/kg VK3 group in positive ion mode on day 14 (top 10)

序号
No.
代谢物
Metabolite
质荷比
m/z
保留时间
Rt/s
变量投影
重要度
VIP
P
P-value
差异
倍数
FC
趋势
Trend
1 D-脯氨酸 D-proline 116.07 636.93 5.59 <0.001 0.48 下调
2 L-焦谷氨酸 L-pyroglutamic acid 130.05 609.86 1.39 <0.001 1.59 上调
3 精氨酸-谷氨酸 Arg-Glu 394.16 981.87 1.30 <0.001 0.43 下调
4 邻氨基苯甲酸(维生素L1)
Anthranilic acid (vitamin L1)
138.05 585.75 4.45 <0.001 0.51 下调
5 L-高脯氨酸 L-pipecolic acid 147.11 1 059.50 2.71 0.001 0.62 下调
6 L-丙氨酸 L-alanine 90.05 705.55 1.45 0.001 0.61 下调
7 落叶松树脂酸 Larixinic acid 127.04 57.01 1.81 0.006 0.45 下调
8 二乙醇胺 Diethanolamine 70.06 293.38 1.72 0.006 0.68 下调
9 α-生育酚(维生素E)
α-tocopherol (vitamin E)
430.08 54.96 2.17 0.012 1.52 上调
10 反-4-羟基-L-脯氨酸
Trans-4-hydroxy-L-proline
114.05 624.01 1.27 0.017 0.68 下调
表5 第14天负离子模式下对照组和0.5 mg/kg VK3组血浆差异代谢物(前10)

Table 5 Plasma differential metabolites of control group and 0.5 mg/kg VK3 group in negative ion mode on day 14 (top 10)

序号
No.
代谢物
Metabolite
质荷比
m/z
保留时间
Rt/s
变量投影
重要度
VIP
P
P-value
差异
倍数
FC
趋势
Trend
1 邻磺酰苯甲酰亚胺 Saccharin 181.99 50.25 1.12 <0.001 0.31 下调
2 人肠抑制素 Enterostatin human 495.28 49.53 2.21 0.001 0.51 下调
3 肌醇 Inositol 179.06 712.50 1.63 0.002 0.68 下调
4 顺式-9-棕榈油酸 Cis-9-palmitoleic acid 253.22 76.84 6.71 0.003 2.63 上调
5 牛磺鹅去氧胆酸钠 Taurochenodeoxycholate 498.29 226.42 21.99 0.004 0.22 下调
6 L-天冬酰胺 L-asparagine 131.05 703.07 1.76 0.004 0.41 下调
7 牛磺胆酸 Taurolithocholic acid 482.29 75.88 1.57 0.006 0.53 下调
8 尿酸 Uric acid 167.02 581.91 2.95 0.007 0.35 下调
9 L-蛋氨酸 L-methionine 148.04 516.16 1.51 0.008 0.48 下调
10 亚油酸 Linoleic acid 559.47 71.84 1.10 0.012 1.92 上调
表6 第42天正离子模式下对照组和0.5 mg/kg VK3组血浆差异代谢物(前10)

Table 6 Plasma differential metabolites of control group and 0.5 mg/kg VK3 group in positive ion mode on day 42 (top 10)

序号
No.
代谢物
Metabolite
质荷比
m/z
保留时间
Rt/s
变量投影
重要度
VIP
P
P-value
差异
倍数
FC
趋势
Trend
1 牛磺鹅去氧胆酸 Taurochenodeoxycholic acid 482.29 305.31 1.14 0.010 0.41 下调
2 二乙醇胺 Diethanolamine 88.08 414.73 2.02 0.012 1.37 上调
3 邻氨基苯甲酸(维生素L1)
Anthranilic acid (vitamin L1)
138.05 585.75 3.62 0.013 0.44 下调
4 D-脯氨酸 D-proline 116.07 636.93 3.29 0.013 0.67 下调
5 反-4-羟基-L-脯氨酸
Trans-4-hydroxy-L-proline
114.05 624.01 1.39 0.017 0.62 下调
6 1-硬脂酰-2-油酰磷脂酰胆碱
1-stearoyl-2-oleoyl-sn-glycerol 3-phosphocholine
810.60 168.04 15.36 0.017 1.54 上调
7 牛磺鹅去氧胆酸钠 Taurochenodeoxycholate 517.33 305.62 1.10 0.026 0.49 下调
8 硫醚酰胺-PC Thioetheramide-PC 758.57 149.17 20.68 0.027 0.47 下调
9 多巴胺 Dopamine 136.08 245.22 1.07 0.034 0.56 下调
10 邻苯二甲酸二辛酯 Dioctyl phthalate 391.28 54.41 2.14 0.043 0.43 下调
表7 第42天负离子模式下对照组和0.5 mg/kg VK3组血浆差异代谢物(前10)

Table 7 Plasma differential metabolites of control group and 0.5 mg/kg VK3 group in negative ion mode on day 42 (top 10)

序号
No.
代谢物
Metabolite
质荷比
m/z
保留时间
Rt/s
变量投影
重要度 VIP
P
P-value
差异
倍数
FC
趋势
Trend
1 L-丝氨酸 L-serine 104.03 687.77 1.08 0.007 1.67 上调
2 二氢胸腺嘧啶 Dihydrothymine 127.05 680.06 1.51 0.009 1.54 上调
3 L-苏糖酸 L-threonate 135.03 572.81 1.91 0.015 1.59 上调
4 DL-乳酸钠 DL-lactate 89.02 392.13 5.56 0.015 1.39 上调
5 半胱氨酸-S-硫酸酯 Cysteine-S-sulfate 199.97 545.42 1.93 0.018 2.63 上调
6 3-磷酸丝氨酸 3-phosphoserine 185.01 112.64 1.10 0.028 2.44 上调
7 L-谷氨酰胺 L-glutamine 145.06 679.83 3.90 0.031 1.49 上调
8 D-葡萄糖醛酸盐 D-Glucuronate 193.04 694.40 1.29 0.034 1.61 上调
9 肌苷 Inosine 267.07 375.20 2.42 0.038 3.45 上调
10 L-抗坏血酸 L-ascorbic acid 235.05 214.68 1.40 0.038 1.59 上调

2.2.5 差异代谢通路富集分析

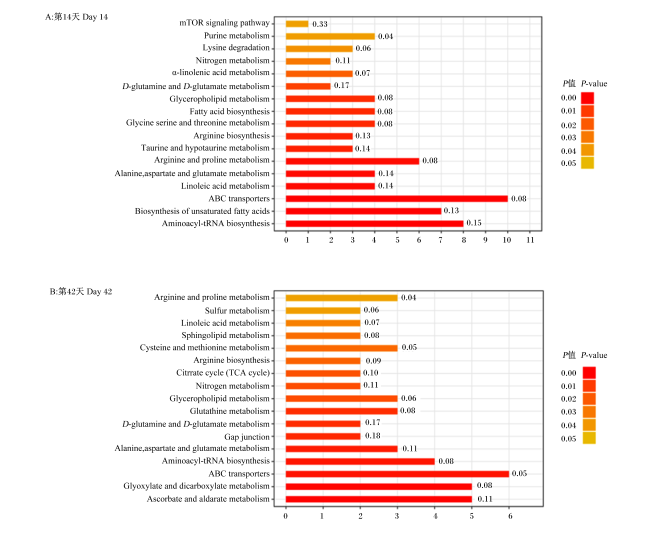
通过各个通路代谢物富集度的显著性水平(Fisher精确检验)确定对照组与0.5 mg/kg VK3组之间显著变化的代谢和信号转导途径。KEGG通路富集度的P值越小(P<0.05),代谢通路富集越显著。由图7可知,在第14天和第42天,血浆中均有17条重要通路发生了显著变化(P<0.05)。差异代谢物作为中间代谢物或反应底物,参与到体内多种代谢途径,因此,对差异代谢物进行通路富集分析,结果见表8表9(仅列出P<0.01的通路)。在第14天及42天,0.5 mg/kg VK3组筛选出的差异代谢物均极显著富集到ABC转运蛋白,氨酰基tRNA生物合成,丙氨酸、天冬氨酸和谷氨酸代谢、甘油磷脂代谢途径(P<0.01)。在第14天,0.5 mg/kg VK3组在ABC转运蛋白、氨酰基tRNA生物合成代谢通路中差异代谢物L-丙氨酸、L-谷氨酸盐、L-精氨酸、L-苏氨酸、L-谷氨酰胺、L-赖氨酸下调;在第42天,0.5 mg/kg VK3组在ABC转运蛋白、氨酰基tRNA生物合成代谢通路中差异代谢物L-丝氨酸、L-谷氨酰胺、L-谷氨酸盐上调。在第14天和第42天,0.5 mg/kg VK3组在甘油磷脂代谢通路中差异代谢物1-硬脂酰-2-油酰磷脂酰胆碱(SOPC)、磷酸胆碱均上调。
图7 第14、42天对照组和0.5 mg/kg VK3组的KEGG通路图

mTOR signaling pathway:哺乳动物雷帕霉素蛋白通路;Purine metabolism:嘌呤代谢;Lysine degradation:赖氨酸降解;Nitrogen metabolism:氮素代谢;α-linolenic acid metabolism:α-亚油酸代谢;D-glutamine and D-glutamate:D-谷氨酰胺和D-谷氨酸代谢;Glyceropholipid metabolism:甘油磷酯代谢;Fatty acid biosynthesis:脂肪酸生物合成;Glycine serine and threonine metabolism:甘氨酸、丝氨酸和苏氨酸代谢;Arginine biosynthesis:精氨酸生物合成;Taurine and hypotaurine metabolism:牛磺酸和亚牛磺酸代谢;Arginine and proline metabolism:精氨酸和脯氨酸代谢;Alanine,aspartate and glutamate metabolism:丙氨酸、天冬氨酸和谷氨酸代谢;Linoleic acid metabolism:亚油酸代谢;ABC transporters:ABC转运蛋白;Biosynthesis of unsaturated fatty acids:不饱和脂肪酸的生物合成;Aminoacyl-tRNA biosynthesis:氨酰基-tRNA生物合成;Sulfur metabolism:硫代谢;Sphingolipid metabolism:鞘脂类代谢;Cysteine and methionine metabolism:半胱氨酸和蛋氨酸代谢;Citrrate cycle (TCA cycle):柠檬酸循环(三羧酸循环);Glutathine metabolism:谷胱甘肽代谢;Gap junction:缝隙连接;Glyoxylate and dicarboxylate metabolism:乙醛酸和二羧酸代谢;Ascorbate and aldarate metabolism:抗坏血酸和乙醛代谢。

Fig.7 KEGG path map in control group and 0.5 mg/kg VK3 group on days 14 and 42

表8 第14天代谢通路及相关差异代谢物

Table 8 Metabolic pathways and associated differential metabolites on day 14

序号
No.
代谢途径
Metabolic pathways
差异代谢物
Differential metabolites
P
P-value
1 ABC转运蛋白 L-丙氨酸、反-4-羟基-L-脯氨酸、L-谷氨酸盐、
甜菜碱、L-精氨酸、牛磺酸、肌醇、L-苏氨酸、
L-谷氨酰胺、L-赖氨酸
<0.001
2 氨酰基-tRNA生物合成 L-丙氨酸、L-谷氨酸盐、L-精氨酸、
L-天冬酰胺、L-蛋氨酸、L-苏氨酸、
L-谷氨酰胺、L-赖氨酸
<0.001
3 不饱和脂肪酸的
生物合成
亚油酸、硬脂酸、花生四烯酸(无过氧化物)、
(4Z,7Z,10Z,13Z,16Z,19Z)-4,7,10,13,1 6,19-二十二
碳六烯酸、油酸、α-亚麻酸、棕榈酸
<0.001
4 精氨酸和脯氨酸代谢 D-脯氨酸、反-4-羟基-L-脯氨酸、
肌酸、4-胍基丁酸、L-苏氨酸、谷氨酰胺
0.001
5 亚油酸代谢 磷脂酰胆碱(16:0/16:0)、1-硬脂酰-2-油酰磷脂酰胆碱、
亚油酸、花生四烯酸(无过氧化物)
0.001
6 嘌呤代谢 L-谷氨酸盐、次黄嘌呤、尿酸、肌苷 0.001
7 丙氨酸、天冬氨酸和谷氨酸代谢 L-丙氨酸、L-谷氨酸盐、L-天冬
酰胺、L-谷氨酰胺
0.004
8 甘氨酸、丝氨酸和苏氨酸代谢 肌酸、甜菜碱、二乙醇胺、L-苏氨酸 0.004
9 脂肪酸生物合成 顺式-9-棕榈油酸、硬脂酸、油酸、棕榈酸 0.005
10 甘油磷酯代谢 二乙醇胺、磷脂酰胆碱(16:0/16:0)、1-硬脂酰-2-
油酰磷脂酰胆碱、磷酸胆碱
0.005
11 α-亚油酸代谢 磷脂酰胆碱(16:0/16:0)、1-硬脂酰-2-
油酰磷脂酰胆碱、α-亚麻酸
0.006
表9 第42天代谢通路及相关差异代谢物

Table 9 Metabolic pathways and associated differential metabolites on day 42

序号
No.
代谢途径
Metabolic pathways
差异代谢物
Differential metabolites
P
P-value
1 ABC转运蛋白 反-4-羟基-L-脯氨酸、L-丝氨酸、L-谷氨酰胺、
D-核糖、肌醇、L-谷氨酸盐
<0.001
2 乙醛酸和二羧酸代谢 L-丝氨酸、L-谷氨酰胺、顺乌头酸、琥珀酸盐、
L-谷氨酸盐
<0.001
3 抗坏血酸和乙醛代谢 L-苏糖酸、D-葡萄糖醛酸盐、L-抗坏血酸、
L-古洛糖γ-内酯、肌醇
0.002
4 氨酰基-tRNA生物合成 L-丝氨酸、3-磷酸丝氨酸、L-谷氨酰胺、L-谷氨酸盐 0.002
5 谷胱甘肽代谢 L-抗坏血酸、L-焦谷氨酸、L-谷氨酸盐 0.003
6 甘油磷酯代谢 二氢胸腺嘧啶、1-硬脂酰-2-油酰磷脂酰胆碱、磷酰胆碱 0.005
7 半胱氨酸和蛋氨酸代谢 L-丝氨酸、半胱氨酸-3-硫酸盐、3-磷酸丝氨酸 0.006
8 丙氨酸、天冬氨酸和谷氨酸代谢 L-谷氨酰胺、琥珀酸盐、L-谷氨酸盐 0.006

3 讨论

3.1 VK3对肉鸡生长性能的影响

玉米-豆粕型基础饲粮和肠道菌群不能为肉鸡提供足够的VK3,NRC(1994)建议在肉鸡饲粮中添加0.5 mg/kg的VK3。由于基础饲粮营养水平中VK3的不足,肉鸡在生长期骨骼发育和成熟情况跟不上整体的生长,会导致骨骼畸形和脆性,生长前期是改善肉鸡骨骼质量的重要时期,补充VK3在开始阶段对骨质量的影响大于在结束阶段,饲粮中添加8.0和2.0 mg/kg VK3,能够较好地提高肉鸡第1~3周和第4~7周的骨发育[12]。大多数骨巩固发生在出生后的前3周[13]。饲粮中混合添加亚硫酸氢烟酰胺甲萘醌(VK3衍生物)和烟酰胺(维生素B3衍生物)对肉仔鸡具有线性促生长的效果[14]。对球虫攻击造成的坏死性肠炎模型的肉鸡,联合使用亚硫酸氢烟酰胺甲萘醌与精油、有机酸和植物提取物,可显著提高其生长性能[15]。实际生产中笼养条件下,为了获得更好的生长性能和骨骼质量,VK3的添加量是标准推荐量的4~10倍[16]。但VK3在动物生产上的实际添加量远超于标准推荐量,无法确定当前养殖环境下其最佳需要量和VK3对动物生产性能的影响。在本试验中,饲粮中添加0.5 mg/kg VK3显著降低了第1~21天的F/G;添加0.5和4.0 mg/kg VK3显著提高了肉鸡第22~42天的ADG,显著降低了F/G;VK3主要影响肉鸡发育后期,从而使得全期的ADG显著提高,F/G显著降低,且0.5 mg/kg VK3对生长性能具有更好的效果。此外,关于VK3对肉鸡血浆代谢物及通路的影响还未见报道,有待进一步研究。

3.2 VK3对肉鸡血浆代谢组学的影响

代谢组学是一种高通量技术,对生物体内的小内源性代谢物进行分析,从分子层面揭示生命体的反应过程以及代谢通路的规律[17]。代谢组学相比基因组学和蛋白质组学能更好解释表型的变化[18],血浆代谢物分析可揭示生物机体的生理状态。本试验中,通过对肉鸡基础饲粮中添加0.5和4.0 mg/kg VK3,生长性能结果显示0.5 mg/kg的VK3添加水平在各阶段以及全期具有更低的F/G。研究表明,补充VK3在肉鸡发育期具有更好的效果[12-13]。因此,对0.5 mg/kg VK3组和对照组肉鸡第14天和第42天血浆进行非靶向代谢组学分析,探究VK3对肉鸡的营养调控。
在第14天和第42天,与对照组相比,0.5 mg/kg VK3组血浆中L-谷氨酰胺、L-谷氨酸盐含量显著变化,富集到氨酰基-tRNA生物合成,ABC转运蛋白,丙氨酸、天冬氨酸和谷氨酸代谢途径上。氨酰基-tRNA是一种与对应氨基酸相结合的tRNA,能够将氨基酸传递到核糖体中[19]。tRNA被aaRS氨酰化之后形成的aa-tRNA最主要的流向是参与蛋白质合成,也可以参与到细胞壁/细胞膜的生物合成、卟啉生物合成等生理代谢过程中[20]。ATP结合盒式转运蛋白简称ABC转运蛋白,是家族最大、表达最广泛的膜转运蛋白超家族之一[21]。大部分转运蛋白都位于细胞膜上,ABC转运蛋白催化ATP的水解,将反应中释放的能量与其他细胞功能耦合,实现肠道内各物质的输入与输出[22]。丙氨酸、天冬氨酸和谷氨酸代谢途径是参与神经传递的主要氨基酸代谢途径,是由多种代谢物变化的结果。组织中含有丰富的丙氨酸、天冬氨酸、谷氨酸等非必需氨基酸,参与各种细胞代谢、脂质和核苷酸的合成。谷氨酰胺可以为合成生物大分子如蛋白质等提供碳和氮[23-24],也可以参与糖酵解中三羧酸循环、脂代谢中与柠檬酸合成生成乙酰辅酶A的关键步骤[25],保证细胞的正常功能,促进能量代谢和脂代谢。饲粮中添加0.5 mg/kg VK3使肉鸡血浆中氨基酸合成与分解代谢发生变化,有效调控细胞内蛋白质周转、营养物质吸收利用与代谢、糖代谢、脂代谢等多种途径,从而对肉鸡的生理机能发挥作用,促进生长[26]
饲粮中添加0.5 mg/kg VK3通过上调磷脂酰胆碱类(如SOPC、磷酸胆碱)、下调磷脂酰醇胺类(如二乙醇胺)代谢物影响肉鸡第14天、第42天血浆中甘油磷脂代谢,甘油磷脂可以调节机体能量代谢、免疫和炎症[27],在细胞凋亡[28]、物质的跨膜运输等方面发挥作用[29]。推测饲粮中添加0.5 mg/kg VK3可能通过影响甘油磷脂代谢,调节脂质代谢紊乱,提高机体代谢。
通过对第14天及第42天肉鸡血浆中代谢组学显著影响的通路进行比较发现,饲粮中添加0.5 mg/kg VK3在第42天显著改变了碳水化合物的代谢,其中包括乙醛酸和二羧酸代谢、抗坏血酸和乙醛代谢、柠檬酸循环代谢通路,以及差异代谢物L-丝氨酸、L-谷氨酰胺、L-苏糖酸、D-葡萄糖醛酸盐、L-抗坏血酸、L-谷氨酸盐等的上调,推测可能通过影响碳水化合物的代谢,从而改变肉鸡发育后期的生长性能。

4 结论

饲粮中添加0.5 mg/kg VK3影响了肉鸡血浆中ABC转运蛋白,氨酰基-tRNA生物合成,丙氨酸、天冬氨酸和谷氨酸代谢,甘油磷脂代谢途径,改变了血浆中氨基酸及其代谢物、碳水化合物及其代谢物、有机酸及其衍生物、甘油磷脂类、转运类蛋白等代谢物的含量,提高了机体的综合代谢能力,从而提高了肉鸡生长性能。
[1]
吴维达. 不同日粮纤维对生长猪血浆代谢组及肠道菌群影响的研究[D].博士学位论文. 中国农业科学院, 2016.

WU W D. Study on the effect of dietary fiber on the plasma metabolomics and gut flora in growing pig[D].Ph.D.Thesis. Chinese Academy of Agricultural Sciences, 2016. (in Chinese)

[2]
JOHNSON C H, IVANISEVIC J, SIUZDAK G. Metabolomics:beyond biomarkers and towards mechanisms[J]. Nature Reviews Molecular Cell Biology, 2016, 17:451-459.

[3]
聂存喜, 张文举, 闫理东, 等. 基于棉籽粕源发酵饲料的鸡血浆代谢组学研究[J]. 畜牧兽医学报, 2013, 44(5):737-744.

NIE C X, ZHANG W J, YAN L D, et al. A metabolomics study on chicken plasma based on fermented feed from cottonseed meal mixed substrate[J]. Acta Veterinaria et Zootechnica Sinica, 2013, 44(5):737-744. (in Chinese)

DOI

[4]
ZHU Y B, SUN G M, DUNZHU L S, et al. Effects of different dietary protein level on growth performance,rumen fermentation characteristics and plasma metabolomics profile of growing yak in the cold season[J]. Animals, 2023, 13(3):367.

[5]
周珍. 双谐振压电细胞术对大鼠原代心肌细胞力学性能的表征及应用于心脏药物的评估[D].博士学位论文. 长沙: 湖南农业大学, 2023.

ZHOU Z. Characterization of mechanical properties of rat primary cardiomyocytes by double resonator piezoelectric cytometry and applied for the evaluation of cardiac drugs[D].Ph.D.Thesis. Changsha: Hunan Agricultural University, 2023. (in Chinese)

[6]
WANG L, URRIOLA P E, LUO Z H, et al. Metabolomics revealed diurnal heat stress and zinc supplementation-induced changes in amino acid, lipid,and microbial metabolism[J]. Physiological Reports, 2016, 4(1):e12676.

[7]
DONG J Q, ZHANG H, JIANG X F, et al. Comparison of serum biochemical parameters between two broiler chicken lines divergently selected for abdominal fat content[J]. Journal of Animal Science, 2015, 93(7):3278-3286.

DOI PMID

[8]
ZHANG H L, XU Z Q, YANG L L, et al. Genetic parameters for the prediction of abdominal fat traits using blood biochemical indicators in broilers[J]. British Poultry Science, 2018, 59(1):28-33.

DOI PMID

[9]
IVANOVA D, ZHELEV Z, GETSOV P, et al. Vitamin K:redox-modulation,prevention of mitochondrial dysfunction and anticancer effect[J]. Redox Biology, 2018, 16:352-358.

[10]
DAI T M, ZHANG X, LI M, et al. Dietary vitamin K3 activates mitophagy,improves antioxidant capacity,immunity and affects glucose metabolism in Litopenaeus vannamei[J]. Food & Function, 2022, 13(11):6362-6372.

[11]
GUO S, XV J, LI Y, et al. Interactive effects of dietary vitamin K3 and Bacillus subtilis PB6 on the growth performance and tibia quality of broiler chickens with sex separate rearing[J]. Animal, 2020, 14(8):1610-1618.

[12]
ZHANG C Y, LI D F, WANG F L, et al. Effects of dietary vitamin K levels on bone quality in broilers[J]. Archives of Animal Nurtrition, 2003, 57(3):197-206.

[13]
ROSE N, CONSTANTIN P, LETERRIER C. Sex differences in bone growth of broiler chickens[J]. Growth,Development,and Aging:GDA, 1996, 60(2):49-59.

[14]
ODUHO G W, CHUNG T K, BAKER D H. Menadione nicotinamide bisulfite is a bioactive source of vitamin K and niacin activity for chicks[J]. The Journal of Nutrition, 1993, 123(4):737-743.

[15]
JULIEN C. PSXIII-21 formulations of vitamin K,organic acids,essential oils and plant hydroalcoholic extracts prevent coccidiosis impact on growth performances in broilers[J]. Journal of Animal Science, 2022, 100:319.

[16]
AL RAJABI A, BOOTH S L, PETERSON J W, et al. Deuterium-labeled phylloquinone has tissue-specific conversion to menaquinone-4 among Fischer 344 male rats[J]. The Journal of Nutrition, 2012, 142(5):841-845.

[17]
LIU J, YUE S J, YANG Z R, et al. Oral hydroxysafflor yellow a reduces obesity in mice by modulating the gut microbiota and serum metabolism[J]. Pharmacological Research, 2018, 134:40-50.

DOI PMID

[18]
王胜男, 杨伟光, 尹福泉. 岩藻多糖对断奶羔羊瘤胃微生物区系及代谢组学的影响[J]. 动物营养学报, 2023, 35(3):1827-1840.

DOI

WANG S N, YANG W G, YIN F Q. Effects of fucoidan on rumen microflora and metabolomics of weaned lambs[J]. Chinese Journal of Animal Nutrition, 2023, 35(3):1827-1840. (in Chinese)

DOI

[19]
OSTERSETZER-BIRAN O, KLIPCAN L. Aminoacyl-tRNA synthetases and translational quality control in plant mitochondria[J]. Mitochondrion, 2020, 54:15-20.

[20]
王先坤. 杀稻瘟菌素生物合成中氨酰基转移酶BlsK和甲基转移酶BlsL的研究[D].博士学位论文. 上海: 上海交通大学, 2020.

WANG X K. Study on the aminoacyltransferase BlsK and the methyltransferase BlsL in the biosynthesis of blasticidin S[D].Ph.D.Thesis. Shanghai: Shanghai Jiao Tong University, 2020. (in Chinese)

[21]
苏利娅. ABC转运蛋白乳腺癌耐药蛋白(BCRP)在肉鸡组织中的定位、表达及影响因素研究[D].硕士学位论文. 南京: 南京农业大学, 2011.

SU L Y. Localization,expression and influncing factors of ABC transporter breast cancer resistance protein (BCRP) in tissues of broilers[D].Master’s Thesis. Nanjing: Nanjing Agricultural University, 2011. (in Chinese)

[22]
BIECZYNSKI F, PAINEFILÚ J C, VENTURINO A, et al. Expression and function of ABC proteins in fish intestine[J]. Frontiers in Physiology, 2021, 12:791834.

[23]
XI P B, JIANG Z Y, ZHENG C T, et al. Regulation of protein metabolism by glutamine:implications for nutrition and health[J]. Frontiers in Bioscience, 2011, 16(2):578-597.

[24]
CRUZAT V, MACEDO ROGERO M, NOEL KEANE K, et al. Glutamine:metabolism and immune function,supplementation and clinical translation[J]. Nutrients, 2018, 10(11):1564.

[25]
LI X, ZHU H M, SUN W X, et al. Role of glutamine and its metabolite ammonia in crosstalk of cancer-associated fibroblasts and cancer cells[J]. Cancer Cell International, 2021, 21:479.

DOI PMID

[26]
BRUHAT A, CHÉRASSE Y, CHAVEROUX C, et al. Amino acids as regulators of gene expression in mammals:molecular mechanisms[J]. BioFactors, 2009, 35(3):249-257.

[27]
PANG Z Q, WANG G Q, WANG C Z, et al. Serum metabolomics analysis of asthma in different inflammatory phenotypes:a cross-sectional study in Northeast China[J]. BioMed Research International, 2018, 2018:2860521.

[28]
FAROOQUI A A, HORROCKS L A, FAROOQUI T. Interactions between neural membrane glycerophospholipid and sphingolipid mediators:a recipe for neural cell survival or suicide[J]. Journal of Neuroscience Research, 2007, 85(9):1834-1850.

[29]
OLKKONEN V M. OSBP-related proteins: liganding by glycerophospholipids opens new insight into their function[J]. Molecules, 2013, 18(11):13666-13679.

DOI PMID

文章导航

/