研究论文

植物乳杆菌后生元对肉鸭血清抗氧化指标、肠道形态和菌群结构的影响及其抑制有害菌效果

  • 怀志芳 , 1 ,
  • 凡文磊 1 ,
  • 王秉翰 2 ,
  • 张晶 3 ,
  • 代林 3 ,
  • 李志鑫 1 ,
  • 吕广宙 4 ,
  • 齐国锋 4 ,
  • 王巧莉 4 ,
  • 赖学湘 3 ,
  • 王宝维 , 3, * ,
  • 张名爱 , 1, *
展开
  • 1 青岛农业大学动物科技学院,青岛 266109
  • 2 青岛慧和生物科技有限公司,青岛 266109
  • 3 青岛农业大学食品科学与工程学院,青岛 266109
  • 4 青岛普兴生物科技有限公司,青岛 266113
* 王宝维,教授,硕士生导师,E-mail: ;
张名爱,正高级实验师,E-mail:

怀志芳(1998—),女,山东滨州人,硕士研究生,研究方向为家禽营养与保健。E-mail:

Copy editor: 武海龙

收稿日期: 2024-11-26

  网络出版日期: 2025-07-12

基金资助

2023山东省重点研发计划(2023TZXD042)

财政部和农业农村部-国家现代农业产业技术体系资助(CARS-42-14)

2024山东省重点研发计划(2024LZGC020)

Effects of Lactobacillus plantarum Postbiotics on Serum Antioxidant Indices, Intestinal Morphology and Microbiota Structure of Meat Ducks and Its Inhibition Effects on Harmful Bacteria

  • HUAI Zhifang , 1 ,
  • FAN Wenlei 1 ,
  • WANG Binghan 2 ,
  • ZHANG Jing 3 ,
  • DAI Lin 3 ,
  • LI Zhixin 1 ,
  • LYU Guangzhou 4 ,
  • QI Guofeng 4 ,
  • WANG Qiaoli 4 ,
  • LAI Xuexiang 3 ,
  • WANG Baowei , 3, * ,
  • ZHANG Ming’ai , 1, *
Expand
  • 1 College of Animal Science and Technology, Qingdao Agricultural University, Qingdao 266109, China
  • 2 Qingdao Huihe Biotechnology Co., Ltd., Qingdao 266109, China
  • 3 College of Food Science and Echnology, Qingdao Agricultural University, Qingdao 266109, China
  • 4 Qingdao Puxing Biotechnology Co., Ltd., Qingdao 266113, China
* WANG Baowei, professor, E-mail: ;
ZHANG Ming’ai, senior experimenter, E-mail:

Received date: 2024-11-26

  Online published: 2025-07-12

摘要

本试验旨在研究植物乳杆菌后生元对肉鸭血清抗氧化指标、肠道形态和菌群结构的影响及其抑制有害菌效果。选取192只体重相近的1日龄北京鸭,随机分成4个组,每组6个重复,每个重复8只鸭。对照组饲喂基础饲粮,后生元组饲喂基础饲粮+4 mL/kg植物乳杆菌后生元,纯菌组饲喂基础饲粮+4×109 CFU/kg植物乳杆菌纯菌,菌液组饲喂基础饲粮+4×109 CFU/kg植物乳杆菌菌液(后生元+益生菌)。试验期为42 d。结果表明:1)与对照组相比,后生元组42日龄血清总抗氧化能力和总超氧化物歧化酶活性显著升高(P<0.05)。2)与对照组相比,菌液组42日龄空肠绒毛高度显著升高(P<0.05)。3)与对照组相比,纯菌组和菌液组28日龄盲肠菌群ACE指数显著升高(P<0.05)。4)植物乳杆菌后生元对大肠杆菌和鸭疫里默氏杆菌细胞壁具有破坏作用。由此可见,饲粮中添加植物乳杆菌后生元和菌液均可以提高肉鸭抗氧化能力,改善肠道组织形态,优化肠道菌群结构。植物乳杆菌后生元能够有效抑制大肠杆菌和鸭疫里默氏杆菌。

本文引用格式

怀志芳 , 凡文磊 , 王秉翰 , 张晶 , 代林 , 李志鑫 , 吕广宙 , 齐国锋 , 王巧莉 , 赖学湘 , 王宝维 , 张名爱 . 植物乳杆菌后生元对肉鸭血清抗氧化指标、肠道形态和菌群结构的影响及其抑制有害菌效果[J]. 动物营养学报, 2025 , 37(7) : 4543 -4555 . DOI: 10.12418/CJAN2025.372

Abstract

This experiment was conducted to study the effects of Lactobacillus plantarum postbiotics on serum antioxidant indices, intestinal morphology and microbiota structure of meat ducks and its inhibition effects on harmful bacteria. A total of 192 one-day-old Peking ducks with similar body weight were randomly divided into 4 groups with 6 replicates in each group and 8 ducks in each replicate. The control group was fed a basal diet, the postbiotic group was fed the basal diet+4 mL/kg Lactobacillus plantarum postbiotic, the pure bacteria group was fed the basal diet+4×10⁹ CFU/kg Lactobacillus plantarum pure bacteria, and the bacterial solution group was fed the basal diet+4×10⁹ CFU/kg Lactobacillus plantarum bacterial solution (postbiotic+probiotics). The experiment lasted for 42 days. The results showed as follows: 1) compared with the control group, the total antioxidant capacity and total superoxide dismutase activity in serum at 42 days of age of the postbiotic group were significantly increased (P<0.05). 2) Compared with the control group, the jejunal villi height at 28 days of age of the bacterial solution group was significantly increased (P<0.05). 3) Compared with the control group,the cecal microbiota ACE index at 28 days of age of pure bacteria group and bacterial solution group was significantly increased (P<0.05). 4) The Lactobacillus plantarum postbiotics had a destructive effect on the cell wall of Escherichia coli and Riemerella anatipestifer. In conclusion, dietary Lactobacillus plantarum postbiotics and bacterial liquid can improve the antioxidant capacity of meat ducks, improve the intestinal morphology, optimize the intestinal microbiota structure. The Lactobacillus plantarum postbiotics can effectively inhibit Escherichia coli and Riemerella anatipestifer.

在家禽养殖过程中,滥用抗生素会引发病原菌抗药性并造成药物残留,对禽类与人类健康造成了不利影响,同时也增加了养殖成本。因此,研发新型抗生素替代产品具有重要意义和广阔的应用前景。植物乳杆菌(Lactobacillus plantarum)是一种能够促进动物生长、改善血清抗氧化和生化指标、调节肠道菌群的乳酸菌[1-2]。后生元是益生菌在生长过程中所产生的次级代谢产物,与益生菌具有相似的功效[3]。研究发现,饲粮中添加植物乳杆菌后生元可以改善肉鸡血清生化指标及肠道形态和菌群结构[4-6],并可以提高机体抗氧化能力[2]。有研究发现,植物乳杆菌能有效抑制大肠杆菌和鸭疫里默氏杆菌的生长[7-8]。目前,已有植物乳杆菌后生元提高动物抗氧化能力、改善肠道形态、促肠道益生菌生长、减少肠道致病菌、调节肠道菌群结构的研究报道[9-10];饲粮中添加植物乳杆菌后生元能提高肉鸭生长性能,即提高肉鸭平均日增重,降低料重比[11]。但是,尚无从宿主源分离驯化的植物乳杆菌后生元对肉鸭生物学效应与作用机制的系统研究,植物乳杆菌后生元与菌体本身的生物学效果比较研究还处于空白。因此,本试验以肉鸭为研究对象,在对前期生长性能干预效果饲养试验基础上,研究饲粮中添加植物乳杆菌后生元对肉鸭血清抗氧化指标、肠道形态和菌群结构的影响及其抑制有害菌效果,旨在探明植物乳杆菌后生元对肉鸭的生物学功能,为研发家禽新型保健饲料添加剂提供科学依据。

1 材料与方法

1.1 试验材料

植物乳杆菌(分离于北京鸭盲肠内容物,保藏编号CGMCC No.26622,活菌数1×10⁹ CFU/mL)由国家水禽产业技术体系青岛农业大学优质水禽研究所提供。植物乳杆菌在MRS肉汤中复活2次,并在37 ℃摇床中培育24 h,将菌液离心、洗涤,再将植物乳杆菌接种到MRS培养基中进行培育,得到植物乳杆菌菌液。

1.2 试验设计及饲养管理

动物试验由青岛农业大学动物科技学院实验室管理及伦理委员会审批批准(批准编号:DKY20230608)。
选取1日龄、体重相近的北京鸭雏鸭(公鸭)192只,随机分成4个组,每组6个重复,每个重复8只鸭。对照组饲喂基础饲粮,后生元组饲喂基础饲粮+4 mL/kg植物乳杆菌后生元,纯菌组饲喂基础饲粮+4×109 CFU/kg植物乳杆菌纯菌,菌液组饲喂基础饲粮+4×109 CFU/kg植物乳杆菌菌液(后生元+益生菌)。首先将植物乳杆菌菌液过滤,分离后生元和菌体,用0.22 μm水系滤膜过滤出后生元,然后将对应体系溶解到无菌蒸馏水中,最后将植物乳杆菌后生元、纯菌和菌液分别添加到饲粮中。植物乳杆菌后生元主要活性成分:小肽含量0.91 mg/mL,ɑ-淀粉酶活力17.14 U/dL,脂肪酶活力1.81 U/L,总蛋白酶活力0.236 U/mL,L-乳酸含量19.51 g/L。小肽含量的测定采用双缩脲法;ɑ-淀粉酶与脂肪酶活力的测定使用微板法,试剂盒由南京建成生物工程研究所提供;总蛋白酶活力的测定采用分光法,试剂盒由苏州格锐思生物科技有限公司提供;L-乳酸含量的测定使用液相色谱仪(Agilent 1100)。植物乳杆菌添加量参照本实验室代林等[12]的研究成果。基础饲粮组成及营养水平见表1
表1 基础饲粮组成及营养水平(风干基础)

Table 1 Composition and nutrient levels of the basal diet (air-dry basis)%

项目 Items 含量 Content
原料 Ingredients
豆粕 Soybean meal 23.85
玉米 Corn 64.13
豆油 Soybean oil 5.00
石粉 Limestone 1.23
菊花梗粉 Chrysanthemum stem powder 3.24
磷酸氢钙 CaHPO4 1.59
DL-蛋氨酸 DL-Met 0.17
L-赖氨酸盐酸盐 L-Lys·HCl 0.06
色氨酸 Tryptophan 0.01
维生素预混料 Vitamin premix1) 0.10
微量元素预混料 Trace element premix2) 0.15
氯化胆碱 Choline chloride 0.07
防霉剂 Fungicide 0.10
食盐 NaCl 0.30
合计 Total 100.00
营养水平 Nutrient levels3)
代谢能 ME/(MJ/kg) 13.28
粗蛋白质 CP 16.89
粗纤维 CF 4.46
粗脂肪 EE 8.14
钙 Ca 0.88
磷 P 0.57
蛋氨酸 Met 0.42
赖氨酸 Lys 0.98
苏氨酸 Thr 0.63
色氨酸 Trp 0.22

1)维生素预混料为每千克饲粮提供 The vitamin premix provided the following per kg of the diet:VA 12 000 IU,VB1 3 mg,VB2 8 mg,VB6 7 mg,VB12 0.3 mg,VD3 2 500 IU,VE 20 mg,VK3 3 mg,D-泛酸 D-pantothenic acid 20 mg,生物素 biotin 0.1 mg,叶酸 folic acid 1.5 mg,烟酸 nicotinic acid 50 mg。
2)微量元素预混料为每千克饲粮提供 The trace element premix provided the following per kg of the diet:Zn (as zinc sulfate) 110 mg,I (as potassium iodide) 0.6 mg,Mn (as manganese sulfate) 100 mg,Fe (as ferrous sulfate) 100 mg,Se (as sodium selenite ) 0.16 mg,Cu (as copper sulfate) 9 mg。
3)氨基酸、代谢能为计算值[13],其他均为实测值。Amino acids and ME were calculated values[13], while the others were measured values。

饲养试验于2023年6月12日至2023年7月23日在青岛农业大学优质水禽研究所实验动物房进行。试验肉鸭采用网上平养,采用粉状饲料饲养,自由采食。动物房环境温度可自行调控,1~7日龄舍内温度在30~33 ℃,8~42日龄温度逐渐降低至22 ℃;1~7日龄光照24 h,8日龄以后光照23 h;相对湿度55%~65%。试验期为42 d。

1.3 样品采集与指标测定

1.3.1 饲粮营养水平

采用凯氏定氮法测定粗蛋白质含量,参照GB/T 6432—2018的方法进行测定;采用过滤法测定粗纤维含量,参照GB/T 6434—2006的方法进行测定;采用乙醚浸提法测定粗脂肪含量,参照GB/T 6433—2006的方法进行测定;钙和磷含量分别参照GB/T 6436—2018和GB/T 6437—2018的方法进行测定。

1.3.2 血清抗氧化指标

分别在28、42日龄,从每个重复中随机选取2只肉鸭,分别取颈脉血10 mL于乙二胺四乙酸(ETDA)管中,861×g离心20 min,取上清液分装到离心管中,-40 ℃保存。采用南京建成生物工程研究所提供的试剂盒测定血清总抗氧化力(T-AOC)、总超氧化物歧化酶(T-SOD)、过氧化氢酶(CAT)活性和丙二醛(MDA)含量。

1.3.3 肠道形态

将肉鸭处死后,取出肠道,分离出空肠、盲肠,用无菌生理盐水清洗后,切取空肠中段放入4%多聚甲醛溶液固定;盲肠内容物挤出到冻存管中,立即放入液氮中保存。将空肠肠道组织固定于多聚甲醛溶液中24 h以上,切取合适长度,流水冲12 h,不同梯度乙醇脱水、二甲苯透明、石蜡包埋。包埋后使用切片机切成5 μm厚度,烘干并苏木精-伊红(HE)染色。在显微镜下观察肠道结构形态,测量绒毛高度、隐窝深度,并计算绒隐比(绒毛高度/隐窝深度)。

1.3.4 肠道菌群结构

将肉鸭盲肠内容物中的微生物进行基因组DNA的提取,再利用1%的琼脂糖凝胶电泳检测抽提的基因组DNA,通过PCR的扩增,按指定测序的区域,合成带有barcode的特异引物。再进行二次扩增,将同一样本的PCR产物混合,用2%琼脂糖凝胶电泳检测,使用AxyPrepDNA凝胶回收试剂盒(美国Axygen公司)切胶回收PCR产物。经Illumina文库的构建,加入到Illumina NovaSeq 6000平台进行高通量测序。Illumina测序得到的PE reads首先根据overlap关系进行拼接,区分样本后进行操作分类单元(OTU)聚类及物种分类学分析,基于OTU聚类分析结果,可以对多样本的群落组成和系统发育信息进行多元分析和差异显著性检验等一系列深入的统计学和可视化分析。肠道菌群多样性研究包括样本在界(domain)、门(phylum)、纲(class)、目(order)、科(family)、属(genus)各分类学水平的物种比例和分布的群落组成分析;对于α多样性的分析是基于ACE指数、Chao指数、Shannon指数、Simpson指数;分析门、属水平物种分布和比例的群落组成;基于Bray Curtis的主坐标分析(PCoA)方法,发现不同组之间的差异。

1.3.5 植物乳杆菌后生元抑菌曲线

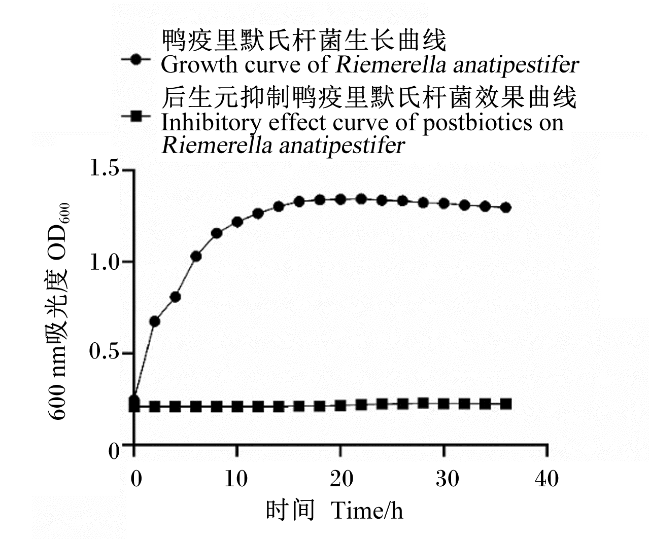
在实验室前期研究结果的基础上,选择1:4的添加比将植物乳杆菌后生元与大肠杆菌和鸭疫里默氏杆菌混合,每种梯度设置3个重复,培养36 h(37 ℃,180 r/min),每间隔2 h用全自动生长曲线分析仪[杰灵仪器制造(天津)有限公司]测定600 nm处吸光度(OD600)值,以培养时间为横坐标,测定的OD600值为纵坐标,绘制抑菌曲线。

1.3.6 有害菌细胞形态

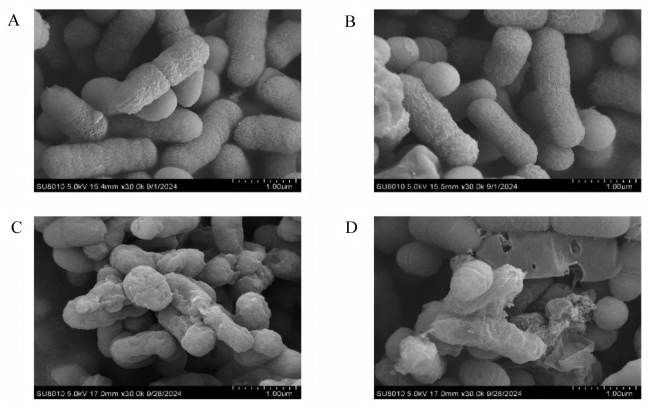
采用LB与TSB培养基分别培养大肠杆菌和鸭疫里默氏杆菌,取菌液离心,弃上清,用磷酸盐缓冲液(PBS)洗涤3次,用相应空白培养基冲开,分成2组,其中一组作为干预前,另一组作为干预后,然后调节吸光度值,用0.22 μm水系滤膜过滤出后生元,干预前不添加后生元培养,干预后将后生元与大肠杆菌和鸭疫里默氏杆菌按照1:4比例混合培养;干预前与干预后培养结束后离心,弃上清,用戊二醛固定,使用PBS漂洗,用锇酸溶液固定,PBS漂洗3次并用乙醇梯度脱水,醋酸异戊酯置换,临界点干燥,将干预前干预后样品置于扫描电镜台上,扫描并拍照。

1.3.7 植物乳杆菌后生元抑菌蛋白

培养后的植物乳杆菌上清液采用超滤法提取胞外蛋白,胰蛋白酶消化,肽段脱盐,使用纳升流速Easy nLC 1200色谱系统(美国Thermo Scientific公司)进行色谱分离。肽段分离后使用Q-Exactibe HF-X质谱仪进行数据依赖采集质谱分析,获得二级质谱图。采用质谱数据库检索软件MaxQuant 2.4.14.0,并通过Uniprot蛋白数据库对所有蛋白进行分析。

1.4 统计分析

采用SPSS 25.0软件对试验数据进行单因素方差分析(one-way ANOVA),通过Duncan氏多重比较法对各组试验数据进行比较,P<0.05为差异显著,数据采用平均值和均值标准误(SEM)表示。

2 结果

2.1 植物乳杆菌后生元对肉鸭血清抗氧化指标的影响

表2可知,28日龄时,各组之间血清抗氧化指标差异不显著(P>0.05)。42日龄时,与对照组相比,后生元组和纯菌组血清总抗氧化能力显著升高(P<0.05),其中后生元组升高了35.71%;后生元组和菌液组血清总超氧化物歧化酶活性显著升高(P<0.05),其中后生元组升高了23.44%。各组之间血清过氧化氢酶活性和丙二醛含量差异不显著(P>0.05)。
表2 植物乳杆菌后生元对肉鸭血清抗氧化指标的影响

Table 2 Effects of Lactobacillus plantarum postbiotics on serum antioxidant indices of meat ducks

项目
Items
组别 Groups SEM P
P-value
对照
Control
后生元
Postbiotic
纯菌
Pure bacteri
菌液
Bacterial
solution
28日龄 28 days of age
过氧化氢酶 CAT/(U/mL) 1.15 1.00 0.95 0.96 0.039 0.268
丙二醛 MDA/(nmol/mL) 1.70 1.61 1.89 1.71 0.077 0.682
总抗氧化力 T-AOC/(mmol/L) 1.11 1.23 1.30 1.24 0.039 0.457
总超氧化物歧化酶 T-SOD/(U/mL) 42.77 44.26 43.99 44.05 1.722 0.993
42日龄 42 days of age
过氧化氢酶 CAT/(U/mL) 1.85 1.88 1.80 1.94 0.047 0.840
丙二醛 MDA/(nmol/mL) 1.40 1.31 1.42 1.22 0.061 0.686
总抗氧化力 T-AOC/(mmol/L) 0.84b 1.14a 1.17a 1.08ab 0.047 0.026
总超氧化物歧化酶 T-SOD/(U/mL) 80.12b 98.90a 81.96b 98.63a 3.425 0.046

同行数据肩标不同小写字母表示差异显著(P<0.05),相同或无字母表示差异不显著(P>0.05)。下表同。

In the same row, values with different small letter superscripts mean significant difference (P<0.05), while with the same or no letter superscripts mean no significant difference (P>0.05). The same as below.

2.2 植物乳杆菌后生元对肉鸭肠道形态的影响

表3可知,28日龄时,各组之间空肠绒毛高度、隐窝深度和绒隐比差异不显著(P>0.05)。42日龄时,与对照组相比,菌液组空肠绒毛高度显著升高(P<0.05);各组之间空肠隐窝深度和绒隐比差异不显著(P>0.05)。
表3 植物乳杆菌后生元对肉鸭肠道形态的影响

Table 3 Effects of Lactobacillus plantarum postbiotics on intestinal morphology of meat ducks

项目
Items
组别 Groups SEM P
P-value
对照
Control
后生元
Postbiotic
纯菌
Pure bacteri
菌液
Bacterial
solution
28日龄 28 days of age
绒毛高度 Villus height/μm 678.76 710.95 684.56 717.85 8.247 0.265
隐窝深度 Crypt depth/μm 135.38 133.67 134.31 132.39 1.519 0.934
绒隐比 Villus height/crypt depth 5.02 5.32 5.11 5.42 0.078 0.239
42日龄 42 days of age
绒毛高度 Villus height/μm 774.23b 820.10ab 772.76b 842.70a 10.936 0.033
隐窝深度 Crypt depth/μm 126.71 125.17 122.47 126.69 1.437 0.738
绒隐比 Villus height/crypt depth 6.12 6.56 6.32 6.65 0.091 0.149

2.3 植物乳杆菌后生元对肉鸭盲肠菌群结构的影响

2.3.1 肉鸭盲肠菌群α多样性分析

表4可知,28日龄时,与对照组相比,纯菌组和菌液组盲肠菌群ACE指数显著升高(P<0.05);各组之间盲肠菌群Chao指数、Shannon指数和Simpson指数差异不显著(P>0.05)。42日龄时,各组之间盲肠菌群ACE指数、Chao指数、Shannon指数和Simpson指数差异不显著(P>0.05)。
表4 植物乳杆菌后生元对肉鸭盲肠菌群α多样性指数的影响

Table 4 Effects of Lactobacillus plantarum postbiotics on cecal microbiota α diversity indices of meat ducks

项目
Items
组别 Groups SEM P
P-value
对照
Control
后生元
Postbiotic
纯菌
Pure bacteri
菌液
Bacterial
solution
28日龄 28 days of age
ACE指数 ACE index 177.91b 300.25ab 323.83a 321.42a 22.730 0.036
Chao指数 Chao index 175.43 302.33 339.79 319.63 25.170 0.056
Shannon指数 Shannon index 2.32 3.03 3.33 3.81 0.221 0.082
Simpson指数 Simpson index 0.27 0.16 0.09 0.05 0.045 0.361
42日龄 42 days of age
ACE指数 ACE index 576.15 595.90 571.31 600.39 17.492 0.939
Chao指数 Chao index 566.18 577.61 566.31 590.09 17.353 0.969
Shannon指数 Shannon index 3.65 3.48 3.47 3.57 0.081 0.856
Simpson指数 Simpson index 0.07 0.08 0.09 0.08 0.008 0.893

2.3.2 肉鸭盲肠菌群OTU聚类分析和β多样性分析

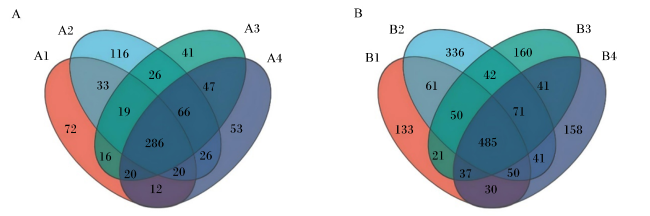
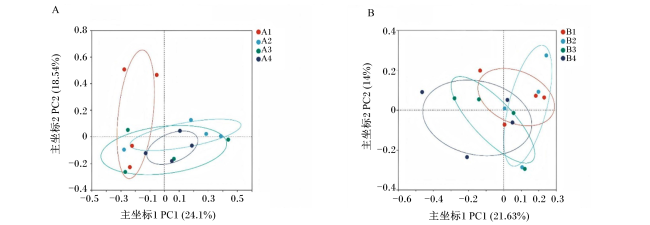
图1所示,28日龄时,对照组、后生元组、纯菌组和菌液组特有的OTU数量分别为72、116、41和53种,共有的OTU数量为286种;42日龄时,对照组、后生元组、纯菌组和菌液组特有的OTU数量分别为133、336、160和158种,共有的OTU数量为485种。如图2所示,盲肠菌群β多样性分析表明,28日龄时,对照组与试验组样本较为分离;42日龄时,各组样本聚类不明显,肉鸭盲肠菌群没有出现明显变化。
图1 OTU分布比较Venn图

A:28日龄;B:42日龄;A1:28日龄对照组;A2:28日龄后生元组;A3:28日龄纯菌组;A4:28日龄菌液组;B1:42日龄对照组;B2:42日龄后生元组;B3:42日龄纯菌组;B4:42日龄菌液组。下图同。

Fig.1 Venn diagram of comparison of OTU distribution

A: 28 days of age; B:42 days of age; A1: 28 days of age control group; A2: 28 days of age postbiotic group; A3: 28 days of age pure bacteria group; A4: 28 days of age bacterial solution group; B1: 42 days of age control group; B2: 42 days of age postbiotic group; B3: 42 days of age pure bacteria group; B4: 42 days of age bacterial solution group. The same as below.

图2 盲肠菌群组成PCoA图

Fig.2 PCoA diagram of cecal microbiota composition

2.3.3 肉鸭盲肠菌群组成分析

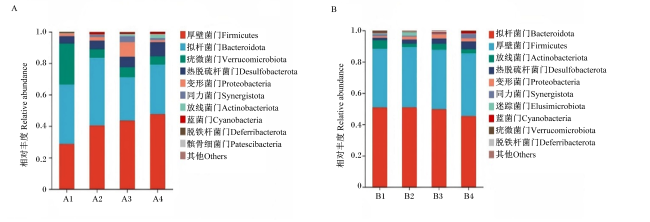
图3可知,28日龄时,门水平相对丰度排行前10位依次为厚壁菌门、拟杆菌门、疣微菌门、热脱硫干菌门、变形菌门、同力菌门、放线菌门、蓝菌门、脱铁杆菌门、髌骨菌门;42日龄时,门水平相对丰度排行前10位依次为拟杆菌门、厚壁菌门、放线菌门、热脱硫杆菌门、变形菌门、同力菌门、迷踪菌门、蓝菌门、疣微菌门、脱铁杆菌门。
图3 肉鸭盲肠菌群在门水平的物种组成分析

Fig.3 Species composition analysis of cecal microbiota at phylum level of meat ducks

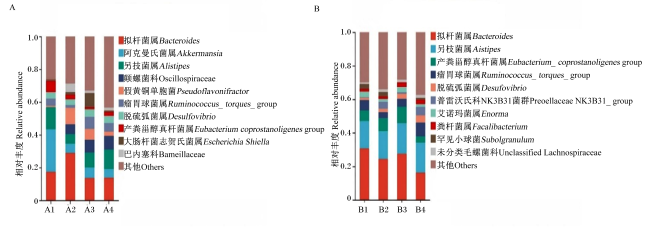
图4可知,28日龄时,属水平相对丰度排行前10位依次为拟杆菌属、阿克曼氏菌属、另枝菌属、颤螺旋菌科、假黄铜单胞菌、瘤球菌属、脱硫弧菌属、产粪甾醇真杆菌科、志贺氏菌属、巴内赛科;42日龄时,属水平相对丰度排行前10位依次为拟杆菌属、另枝菌属、产粪甾醇真杆菌科、瘤球菌属、脱硫弧菌属、普雷沃氏科NK3B31菌群、艾诺玛菌属、粪杆菌属、罕见小球菌、未分类毛螺菌科。
图4 肉鸭盲肠菌群在属水平的物种组成分析

Fig.4 Species composition analysis of cecal microbiota at genus level of meat ducks

2.4 植物乳杆菌后生元对大肠杆菌和鸭疫里默氏杆菌的抑制效果及抑菌蛋白的测定

2.4.1 植物乳杆菌后生元对大肠杆菌和鸭疫里默氏杆菌抑菌曲线和细胞形态的影响
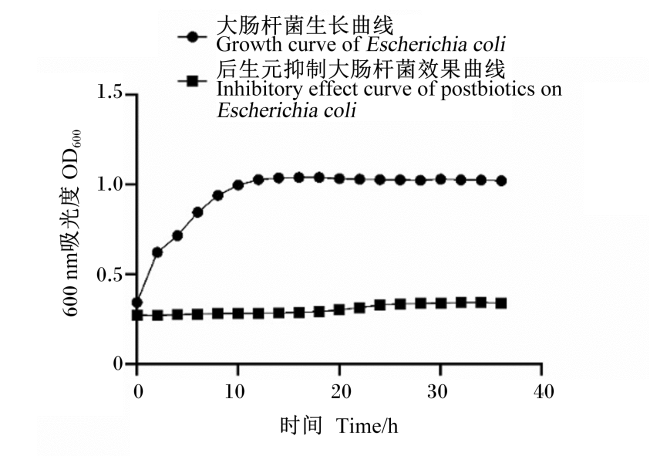
图5图6可知,植物乳杆菌后生元能够有效抑制大肠杆菌和鸭疫里默氏杆菌的生长;由图7可知,对照组大肠杆菌和鸭疫里默氏杆菌形态呈长杆状,细胞壁无损坏现象;植物乳杆菌后生元对大肠杆菌和鸭疫里默氏杆菌细胞壁具有明显破坏作用。
图5 植物乳杆菌后生元抑制大肠杆菌效果

Fig.5 Effects of Lactobacillus plantarum postbiotics in inhibition of Escherichia coli

图6 植物乳杆菌后生元抑制鸭疫里默氏杆菌效果

Fig.6 Effects of Lactobacillus plantarum postbiotics in inhibition of Riemerella anatipestifer

图7 干预前、后大肠杆菌和鸭疫里默氏杆菌形态

A:干预前大肠杆菌形态;B:干预前鸭疫里默氏杆菌形态;C:干预后大肠杆菌形态;D:干预后鸭疫里默氏杆菌形态。

Fig.7 Morphology of Escherichia coli and Riemerella anatipestifer before and after intervention

A: morphology of Escherichia coli before intervention; B: morphology of Riemerella anatipestifer before intervention; C: morphology of Escherichia coli after intervention; D: morphology of Riemerella anatipestifer after intervention.

2.4.2 植物乳杆菌后生元抑菌蛋白组成

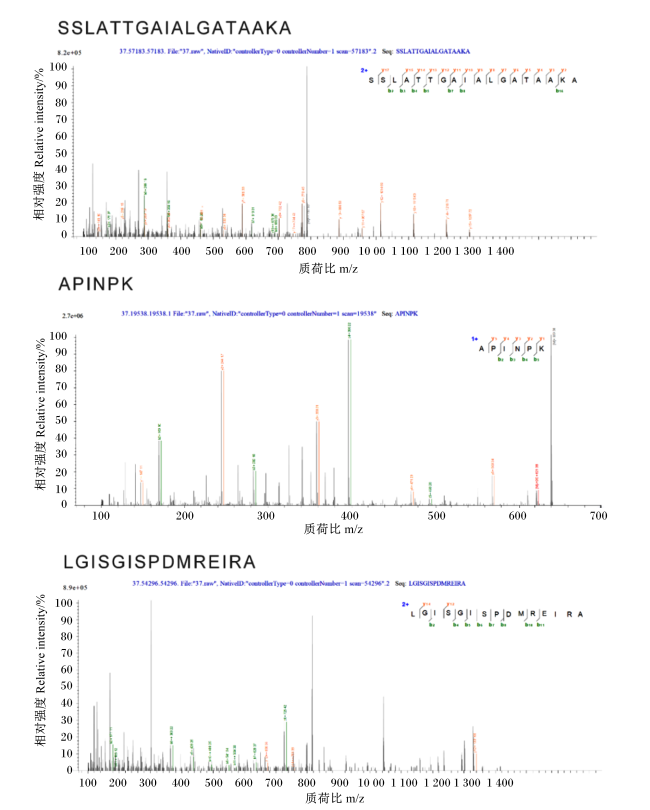
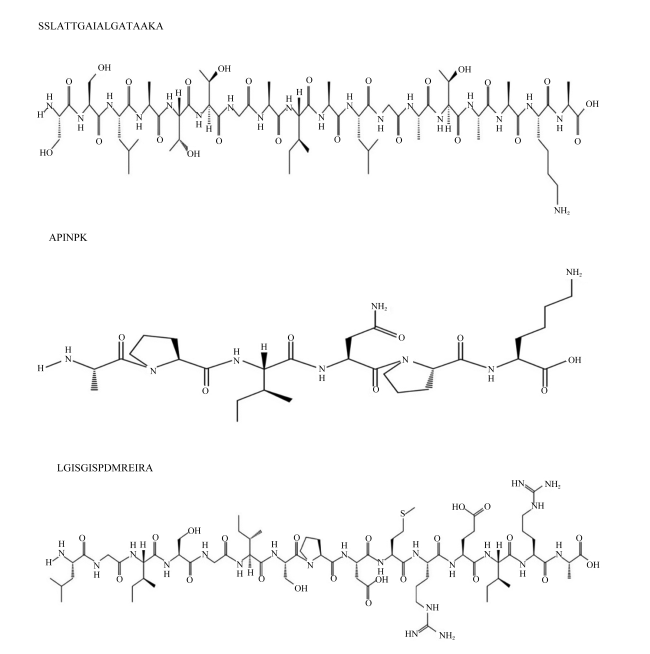
3种与抑菌相关肽段离子图谱和结构图如图8图9所示,为二级质谱分析采集的数据。由表5可知,共有3种可信度较高且与抑菌作用相关的抑菌蛋白,分别为肽聚糖结合蛋白、根皮素水解酶、乙酸激酶。
图8 肽段离子图谱

Fig.8 Peptide ion chromatogram

图9 肽段结构图

Fig.9 Peptide structure diagram

表5 植物乳杆菌后生元中相关抑菌肽段序列及蛋白分析

Table 5 Sequence and protein analysis of related inhibitory peptides in Lactobacillus plantara postbiotics

肽段序列 Peptide sequences 蛋白 Protein 蛋白质名称 Protein name
SSLATTGAIALGATAAKA A0A837NKA4 肽聚糖结合蛋白
APINPK A0A2S3U3Z7 根皮素水解酶
LGISGISPDMREIRA F9UT17 乙酸激酶

3 讨论

3.1 植物乳杆菌后生元对肉鸭血清抗氧化指标的影响

原君梦等[14]研究发现,饲粮中添加植物乳杆菌能够提高肉鸡血浆和回肠黏膜中核因子E2相关因子2(Nrf2)含量、血红素氧合酶-1(HO-1)活性和T-AOC。Yang等[15]研究发现,饲喂植物乳杆菌能够提高肉鸡血清超氧化物歧化酶(SOD)活性,是机体抵御氧化应激中重要的防御机制。有研究发现,植物乳杆菌16和多黏杆菌10可以上调肉鸡肠道中Nrf2和HO-1表达,从而增强肉鸡肠道的抗氧化能力[16]。本实验室前期试验发现,植物乳杆菌后生元对肉鸭生长性能有影响,可以降低料重比,增加平均日增重[11]。本试验发现,植物乳杆菌后生元可提高肉鸭42日龄血清活性T-SOD与T-AOC,这与上述结果一致。这可能是植物乳杆菌后生元进入肉鸭肠道上调Nrf2和HO-1表达,从而提高肉鸭的抗氧化能力。

3.2 植物乳杆菌后生元对肉鸭空肠形态的影响

肠道的吸收功能与绒毛高度有直接的联系,绒毛的表面积越大吸收营养物质的能力越强;肠道上皮细胞的生成速率与隐窝深度有关,生成速率越快,隐窝的深度越浅;而绒隐比反映的是机体的消化吸收功能[17]。Humam等[4]研究发现,饲喂植物乳杆菌后生元可以改善空肠的绒毛高度。刘华伟等[18]研究发现,饲粮中添加植物乳杆菌可以改善肉鸡在热应激状态下导致的空肠绒毛高度下降的现象。本试验发现,饲粮中添加植物乳杆菌后生元和菌液可以增加肉鸭42日龄空肠绒毛高度,这可能是植物乳杆菌后生元在动物体内对肠道有一定的调控作用,能够维持微生物平衡,进入肠道后会在肠道上皮中附着,从而防止有害物质对肠道黏膜的损伤[19]

3.3 植物乳杆菌后生元对肉鸭盲肠菌群结构的影响

有研究发现,饲喂复合益生菌能显著增加ACE指数、Chao指数和Shannon指数[20-21];当乳酸菌进入肠道后通过占位、争夺营养物质的方式在肠道中定植,可以产生乳酸与乳酸菌肽等物质,抑制有害菌的繁殖[22]。这与本研究结果相似,这可能是生长早期,由于植物乳杆菌后生元的添加,肉鸭肠道菌群的ACE指数得到升高。Venn图可以统计多组样本中所共有和独有的物种,发现不同环境样本组中独有物种,28日龄时发现后生元组独有116种OTU,42日龄时发现后生元组独有336种OTU。β多样性是通过样品中微生物群落结构进行比较分析,PCoA发现28日龄时对照组与后生元组样本相对分离,说明添加植物乳杆菌后生元对盲肠内容物菌群结构有一定影响。
禽类肠道中的优势菌群主要有厚壁菌门和拟杆菌门,厚壁菌门细菌能够产生芽孢来抵抗逆境,从而促进肠道健康,维持畜禽菌群平衡;而拟杆菌门细菌可以分解碳水化合物,为肠道提供营养物质[23-24]。本试验中,28日龄时,后生元组肉鸭盲肠内容物中菌群厚壁菌门的相对丰度增加,而生长后期各组厚壁菌门、拟杆菌门相对丰度趋于平衡。这可能是生长早期植物乳杆菌后生元中含有有机酸、小肽等物质,能在肠道中改变肠道环境,从而使有益菌更好生存;而在生长后期,各组菌群趋于平衡,可能是菌群之间的相互作用机制,从而维持菌群群落结构保持相对稳定。拟杆菌属在动物肠道中分解多糖,为机体提供能量[25];颤螺菌科可以通过提高乙酸分泌缓解机体炎症[26]。假黄铜单胞菌属属于瘤胃球菌科,并有研究表明其属于有益菌[27]。本试验中,42日龄时,后生元组普雷沃氏科NK3B31菌群相对丰度与对照组相比升高,并发现该菌属与白细胞介素-10含量呈正相关[28]。综上所述,植物乳杆菌后生元可以提高生长早期肉鸭肠道物种群落丰富度与多样性,并改善肠道菌群组成。

3.4 植物乳杆菌后生元对大肠杆菌和鸭疫里默氏杆菌的抑制效果及抑菌蛋白

有研究表明,植物乳杆菌后生元中含有的细胞素会破坏大肠杆菌的形态结构,导致其细胞壁破裂,从而起到杀菌的作用[29],这与本试验结果一致。植物乳杆菌作为一种有益菌能够有产生小肽,它们对病原感染的保护作用涉及抑制病原体生长、防止病原体黏附到肠黏膜以及调节肠上皮细胞的炎症反应[30]。本研究发现,植物乳杆菌后生元能够破坏鸭疫里默氏杆菌的形态结构,使细胞壁破裂。此外本研究还表明,发挥抑菌作用的蛋白为肽聚糖结合蛋白、根皮素水解酶、乙酸激酶。其中,肽聚糖结合蛋白通过降解细菌的细胞壁发挥抑菌作用;根皮素水解酶能够产生原儿茶酚物质来达到抑菌的效果;乙酸激酶参与乙酸的合成,抑制有害菌的生长,其机理还需要进一步研究。

4 结论

① 饲粮中添加植物乳杆菌后生元和菌液均可以提高肉鸭抗氧化能力,改善肠道组织形态,优化肠道菌群结构。
② 植物乳杆菌后生元能够破坏大肠杆菌和鸭疫里默氏杆菌细胞壁,其中含有具有抑菌作用的蛋白分别是肽聚糖结合蛋白、根皮素水解酶、乙酸激酶。
[1]
YANG C M, WANG S T, LI Q, et al. Effects of probiotic Lactiplantibacillus plantarum HJLP-1 on growth performance,selected antioxidant capacity,immune function indices in the serum,and cecal microbiota in broiler chicken[J]. Animals, 2024, 14(5):668.

[2]
IZUDDIN W I, HUMAM A M, LOH T C, et al. Dietary postbiotic Lactobacillus plantarum improves serum and ruminal antioxidant activity and upregulates hepatic antioxidant enzymes and ruminal barrier function in post-weaning lambs[J]. Antioxidants, 2020, 9(3):250.

[3]
CICENIA A, SCIROCCO A, CARABOTTI M, et al. Postbiotic activities of lactobacilli-derived factors[J]. Journal of Clinical Gastroenterology, 2014, 48(Suppl.1):S18-S22.

[4]
HUMAM A M, LOH T C, FOO H L, et al. Effects of feeding different postbiotics produced by Lactobacillus plantarum on growth performance,carcass yield,intestinal morphology,gut microbiota composition,immune status,and growth gene expression in broilers under heat stress[J]. Animals, 2019, 9(9):644.

[5]
孙丙勇, 何金祚, 刘晶晶, 等. 植物乳杆菌代谢产物对黄羽肉鸡生长性能和肠道健康的影响[J]. 饲料研究, 2024, 47(9):77-83.

SUN B Y, HE J Z, LIU J J, et al. Effect of metabolites of Lactobacillus plantarum on growth performance and intestinal health of yellow-feathered broilers[J]. Feed Research, 2024, 47(9):77-83. (in Chinese)

[6]
黄炜乾, 范文胜, 林万华, 等. 后生元对清远麻鸡生长性能、免疫功能和血清生化指标的影响[J]. 中国畜牧杂志, 2024, 60(10):303-310.

HUANG W Q, FAN W S, LIN W H, et al. Effect of postbiotics on growth performance,immune function and serum biochemical indexes of Qingyuan hemp chicken[J]. Chinese Journal of Animal Science, 2024, 60(10):303-310. (in Chinese)

[7]
满丽莉, 向殿军. 植物乳杆菌素的抑菌特性及应用研究进展[J]. 中国调味品, 2024, 49(12):215-220.

MAN L L, XIANG D J. Research progress of antimicrobial properties and application of plantaricin[J]. China Condiment, 2024, 49(12):215-220. (in Chinese)

[8]
LI Z L, GUO Q, LIN F Q, et al. Lactobacillus plantarum supernatant inhibits growth of Riemerella anatipestifer and mediates intestinal antimicrobial defense in Muscovy ducks[J]. Poultry Science, 2024, 103(2):103216.

[9]
李亚霖, 甄士博, 曹林, 等. 植物乳杆菌及其后生元对育成期母貂生长性能、免疫功能及肠道健康的影响[J]. 畜牧兽医学报, 2024, 55(6):2530-2539.

DOI

LI Y L, ZHEN S B, CAO L, et al. Effects of Lactobacillus plantarum and Lactobacillus plantarum postbiotics on growth performance,immune status and intestinal health of growing female minks[J]. Acta Veterinaria et Zootechnica Sinica, 2024, 55(6):2530-2539. (in Chinese)

[10]
黄金贵, 张勇, 李方方, 等. 植物乳杆菌后生元对肉鸡生长性能、屠宰性能及肠道健康的影响[J]. 动物营养学报, 2022, 34(11):7109-7119.

DOI

HUANG J G, ZHANG Y, LI F F, et al. Effects of postbiotics lactobacillus plantarum on growth performance,slaughter performance and intestinal health of broilers[J]. Chinese Journal of Animal Nutrition, 2022, 34(11):7109-7119. (in Chinese)

[11]
怀志芳, 王宝维, 张名爱, 等. 鸭源植物乳杆菌后生元对肉鸭生长性能、屠宰性能、肉品质及肠道免疫的影响[J/OL]. 中国畜牧杂志, 2025:1-7(2025-02-26)[2025-03-05].https://doi.org/10.19556/j.0258-7033.20240808-03.

HUAI Z F, WANG B W, ZHANG M A, et al. Effects of postbiotics produced by duck derived Lactobacillus plantarum on the growth performance,slaughter performance,meat quality,and intestinal immunity of meat ducks[J]. Chinese Journal of Animal Science, 2025:1-7(2025-02-26)[2025-03-05].https://doi.org/10.19556/j.0258-7033.20240808-03. (in Chinese)

[12]
代林, 王宝维, 张名爱, 等. 没食子酸丙酯和植物乳杆菌对北京鸭屠宰性能、血清脂质指标、胸肌肉品质和脂肪酸组成的影响[J]. 动物营养学报, 2023, 35(11):7165-7173.

DOI

DAI L, WANG B W, ZHANG M A, et al. Effects of propyl gallate and Lactobacillus plantarum on slaughter performance,serum lipid indices,breast muscle quality and fatty acid composition of pekin ducks[J]. Chinese Journal of Animal Nutrition, 2023, 35(11):7165-7173. (in Chinese)

DOI

[13]
中国农业科学院北京畜牧兽医研究所, 动物营养学国家重点实验室, 中国饲料数据库情报网中心, 等. 中国饲料成分及营养价值表(2022年第33版)制订说明[J]. 中国饲料, 2022(23):109-119.

Institute of Animal Husbandry and Veterinary Medicine,Chinese Academy of Agricultural Sciences, State Key Laboratory of Animal Nutrition, China Feed Database Information Network Center, et al. Formulation of tables of feed composition and nutritive values in China (33th edition,2022)[J]. China Feed, 2022(23):109-119. (in Chinese)

[14]
原君梦, 赵凡, 史淑艳, 等. 植物乳杆菌对氧化应激肉鸡抗氧化能力和肠道真菌结构的影响[J]. 动物营养学报, 2023, 35(5):2929-2942.

DOI

YUAN J M, ZHAO F, SHI S Y, et al. Effects of Lactiplantibacillus plantarum on antioxidant capacity and intestinal fungi structure of oxidative stressed broilers[J]. Chinese Journal of Animal Nutrition, 2023, 35(5):2929-2942. (in Chinese)

[15]
YANG X, LI L, DUAN Y L, et al. Antioxidant activity of JM113 in vitro and its protective effect on broiler chickens challenged with deoxynivalenol[J]. Journal of Animal Science, 2017, 95(2):837-846.

[16]
WU Y P, WANG B K, ZENG Z H, et al. Effects of probiotics Lactobacillus plantarum 16 and Paenibacillus polymyxa 10 on intestinal barrier function,antioxidative capacity,apoptosis,immune response,and biochemical parameters in broilers[J]. Poultry Science, 2019, 98(10):5028-5039.

[17]
THANH N T, LOH T C, FOO H L, et al. Effects of feeding metabolite combinations produced by Lactobacillus plantarum on growth performance,faecal microbial population,small intestine villus height and faecal volatile fatty acids in broilers[J]. British Poultry Science, 2009, 50(3):298-306.

[18]
刘华伟, 赵金山, 吕孝国, 等. 植物乳杆菌P-8对热应激肉鸡生产性能、血液指标和肠道形态及免疫功能的影响[J]. 中国家禽, 2020, 42(2):59-63.

LIU H W, ZHAO J S, LV X G, et al. Effect of Lactobacillus plantarum P-8 on production performance,serum parameters,and intestinal morphology and immunity of heat-stressed broilers[J]. China Poultry, 2020, 42(2):59-63. (in Chinese)

[19]
董胜奇, 夏超笃, 湛穗璋, 等. 植物乳杆菌RSJ01对黄羽肉鸡生长性能、血清抗氧化指标、肠道微生物和肠道形态结构的影响[J]. 中国饲料, 2023(9):76-80.

DONG S Q, XIA C D, ZHAN S Z, et al. Effects of Lactobacillus plantarum RSJ01 on growth performance,serum antioxidant index,intestinal microorganism and intestinal morphology of yellow broilers[J]. China Feed, 2023(9):76-80. (in Chinese)

[20]
冯婧, 姚大为, 李玉鹏, 等. 饲喂复合益生菌对湖羊粪便微生物多样性的影响研究[J]. 中国饲料, 2024(7):42-51.

FENG J, YAO D W, LI Y P, et al. Effects of feeding compound probiotics on fecal microbial diversity of Hu sheep[J]. China Feed, 2024(7):42-51. (in Chinese)

[21]
覃振斌, 熊晓妍, 莫红芳, 等. 复合益生菌对清远麻羽雏鸡生长性能、血清免疫指标及肠道菌群的影响[J]. 黑龙江畜牧兽医, 2022(7):105-112.

QIN Z B, XIONG X Y, MO H F, et al. Effect of compound probiotics on growth performance,serum immune indexes and intestinal flora of Qingyuan Mayu chicks[J]. Heilongjiang Animal Science and Veterinary Medicine, 2022(7):105-112. (in Chinese)

[22]
枉候军, 黄兴国, 谷雪玲. 乳酸菌的生物学功能及其在肉鸡生产中应用[J]. 湖南饲料, 2015(3):25-27.

WANG H J, HUANG X G, GU X L. Biological function of lactic acid bacteria and its application in broiler production[J]. Hunan Feed, 2015(3):25-27. (in Chinese)

[23]
SUN Y G, ZHANG S S, NIE Q X, et al. Gut firmicutes:relationship with dietary fiber and role in host homeostasis[J]. Critical Reviews in Food Science and Nutrition, 2023, 63(33):12073-12088.

[24]
BEST A A, PORTER A L, FRALEY S M, et al. Characterization of gut microbiome dynamics in developing pekin ducks and impact of management system[J]. Frontiers in Microbiology, 2016, 7:2125.

DOI PMID

[25]
HOOPER L V, MACPHERSON A J. Immune adaptations that maintain homeostasis with the intestinal microbiota[J]. Nature Reviews Immunology, 2010, 10(3):159-169.

DOI PMID

[26]
PAVAN S, GORTHI S P, PRABHU A N, et al. Dysbiosis of the beneficial gut bacteria in patients with Parkinson’s disease from India[J]. Annals of Indian Academy of Neurology, 2023, 26(6):908-916.

[27]
SAKAMOTO M, IINO T, YUKI M, et al. Lawsonibacter asaccharolyticus gen.nov.,sp.nov.,a butyrate-producing bacterium isolated from human faeces[J]. International Journal of Systematic and Evolutionary Microbiology, 2018, 68(6):2074-2081.

[28]
商佳琪, 郭宇帆, 张梦洁, 等. 抗生素紊乱饮食性肥胖SD大鼠肠道菌群与炎性因子的变化[C]// 达能营养中心第二十三届学术会议——营养与认知论文集. 西安: 达能营养中心(中国), 2020:55-62.

SHANG J Q, GUO Y F, ZHANG M J, et al. Changes of intestinal flora and inflammatory factors in SD rats with antibiotic disturbance diet-induced obesity[C]// The 23rd Academic Conference of Danone Nutrition Center-Collection of Papers on Nutrition and Cognition. Xian: Danone Nutrition Center (China), 2020:55-62. (in Chinese)

[29]
XU Z Q, WANG J G, ZHENG W B, et al. Antibacterial activity and mechanism of a novel bacteriocin produced by Lactiplantibacillus plantarum against Escherichia coli and Staphylococcus aureus[J]. International Journal of Food Science & Technology, 2022, 58(1):181-193.

[30]
ARENA M P, SILVAIN A, NORMANNO G, et al. Use of Lactobacillus plantarum strains as a bio-control strategy against food-borne pathogenic microorganisms[J]. Frontiers in Microbiology, 2016, 7:464.

文章导航

/