研究论文

酵母培养物对泌乳后期奶牛生产性能、血清生化指标、瘤胃微生物及代谢物的影响

  • 米虎伟 , 1 ,
  • 李一帆 1 ,
  • 王丽 2 ,
  • 李玉龙 1 ,
  • 曹雨娃 1 ,
  • 王弘浩 3 ,
  • 刘维平 3 ,
  • 王腊梅 1 ,
  • 姚军虎 1 ,
  • 王砀砀 , 1, * ,
  • 曹阳春 , 1, *
展开
  • 1 西北农林科技大学动物科技学院,杨凌 712100
  • 2 山阳县农业综合执法大队,山阳 726400
  • 3 银川市畜牧技术推广服务中心,银川 750003
* 王砀砀,助理研究员,E-mail: ;
曹阳春,教授,博士生导师,E-mail:

米虎伟(1999—),男,甘肃岷县人,硕士研究生,从事反刍动物营养研究。E-mail:

Copy editor: 陈 鑫

收稿日期: 2024-12-08

  网络出版日期: 2025-07-12

基金资助

国家重点研发计划(2024YFD1300201)

国家自然科学基金项目(32472935)

陕西省杰出青年科学基金(2024-JC-JCQN-25)

Effects of Yeast Culture on Performance, Serum Biochemical Indexes, Rumen Microbiota and Metabolites of Late Lactating Dairy Cows

  • MI Huwei , 1 ,
  • LI Yifan 1 ,
  • WANG Li 2 ,
  • LI Yulong 1 ,
  • CAO Yuwa 1 ,
  • WANG Honghao 3 ,
  • LIU Weiping 3 ,
  • WANG Lamei 1 ,
  • YAO Junhu 1 ,
  • WANG Dangdang , 1, * ,
  • CAO Yangchun , 1, *
Expand
  • 1 College of Animal Science and Technology, Northwest A&F University, Yangling 712100, China
  • 2 Shanyang County Agricultural Law Enforcement Brigade, Shanyang 726400, China
  • 3 Animal Husbandry Promotion Center, Yinchuan 750003, China
* WANG Dangdang, assistant researcher, E-mail: ;
CAO Yangchun, professor, E-mail:

Received date: 2024-12-08

  Online published: 2025-07-12

摘要

本研究旨在探究酵母培养物(YC)对奶牛生产性能、血清生化指标、瘤胃微生物及代谢物的影响。选用泌乳天数、胎次、产奶量相近的荷斯坦奶牛40头,随机分为2组,对照组饲喂基础饲粮(不含YC),试验组饲喂基础饲粮+YC(每头每天100 g),试验期35 d,其中预试期7 d,正试期28 d。结果表明:与对照组相比,1)添加YC显著提高了奶牛的产奶量、乳脂产量、乳糖产量、乳蛋白产量(P<0.05),显著降低了体细胞数(P<0.05);2)添加YC极显著提高了血清中总蛋白含量(P<0.01),显著提高血清中白蛋白、钙、总胆固醇及低密度脂蛋白含量(P<0.05);3)添加YC显著提高了血清中过氧化氢酶和超氧化物歧化酶的活性(P<0.05);4)添加YC极显著增加了瘤胃微生物蛋白的含量(P<0.01),显著提高了氨态氮、乙酸、异丁酸、异戊酸、戊酸的含量(P<0.05),瘤胃总挥发性脂肪酸含量也有升高的趋势(P=0.051);5)添加YC显著提高了奶牛瘤胃中UCG-002、毛螺菌科UCG-004、未分类硒单胞菌科、未分类WCHB1-41等的相对丰度(P<0.05);瘤胃代谢组学共鉴定出224个差异代谢物,其中155个上调,69个下调。差异代谢物富集于维生素B6代谢、初级胆汁酸生物合成、色氨酸代谢和α-亚麻酸代谢4个通路。综上所述,饲粮中添加YC可以提高奶牛瘤胃特定细菌丰度,增加挥发性脂肪酸、微生物蛋白和B族维生素等合成,改善瘤胃发酵效率并增强奶牛抗氧化能力,进而提高泌乳后期奶牛的生产性能。

本文引用格式

米虎伟 , 李一帆 , 王丽 , 李玉龙 , 曹雨娃 , 王弘浩 , 刘维平 , 王腊梅 , 姚军虎 , 王砀砀 , 曹阳春 . 酵母培养物对泌乳后期奶牛生产性能、血清生化指标、瘤胃微生物及代谢物的影响[J]. 动物营养学报, 2025 , 37(7) : 4576 -4590 . DOI: 10.12418/CJAN2025.375

Abstract

The aim of this study was to investigate the effects of yeast culture (YC) on the performance, serum biochemical indexes, rumen microbiota and rumen metabolites of late lactating dairy cows. Forty Holstein cows with similar lactation days, litter size and milk yield were randomly divided into two groups, the control group was fed a basal diet without YC, and the experimental group was fed the basal diet+YC at 100 g per head per day for a period of 35 days, with a pre-test period of 7 days and a positive test period of 28 days. The results showed as follows: compared with control group, 1) addition of YC significantly increased milk yield, milk fat, lactose, and milk protein yield of cows (P<0.05), and significantly decreased somatic cell counts (P<0.05); 2) YC highly significantly increased the total protein content in serum (P<0.01), and significantly increased the albumin, calcium, total cholesterol, and low-density lipoprotein contents in serum (P<0.05); 3) YC significantly increased the activities of catalase and superoxide dismutase in serum (P<0.05); 4) addition of YC highly significantly increased the content of rumen microbial protein (P<0.01), significantly increased the contents of ammoniacal nitrogen, acetic acid, isobutyric acid, isovaleric acid, and valeric acid (P<0.05), and there was a tendency to elevate the content of total rumen volatile acids (P=0.051); 5) addition of YC significantly increased the relative abundance of the genera UCG_002, Lachnospiraceae_UCG_004, unclassified_f_Selenomonadaceae, and norank_f_norank_o_WCHB1-41 in the rumen of dairy cows in the experimental group (P<0.05); a total of 224 differential metabolites were identified by rumen metabolomics, of which 155 were up-regulated and 69 were down-regulated. The differential metabolites were enriched in the following four pathways: vitamin B6 metabolism, primary bile acid biosynthesis, tryptophan metabolism and α-linolenic acid metabolism. The results show that the addition of YC to the diet can increase the abundance of specific bacteria in the rumen of dairy cows, increase the synthesis of volatile fatty acids, microbial proteins and B vitamins, improve the rumen fermentation efficiency and enhance the antioxidant capacity of dairy cows, thereby improving the performance of dairy cows in the late lactation period.

酵母培养物(YC)是将酵母细胞在特定的培养条件下,通过特定发酵工艺形成的一种酵母发酵产品,除含有酵母细胞内的营养物质外,还含有丰富的酵母代谢产物,如小肽、甘露寡糖、β-葡聚糖、氨基酸、未知生长因子等,营养较为全面[1]。研究表明,饲喂YC可以提高奶牛对饲粮的消化率,提高生产性能、抗氧化能力,改善瘤胃发酵,维持瘤胃稳态[2]。Halfen等[3]研究发现,YC可以增加泌乳中期奶牛瘤胃中纤维分解菌和乳酸分解菌的占比,降低淀粉分解菌的占比,提高奶牛对饲料的利用率。Desnoyers等[4]研究表明,饲喂YC可以改善奶牛的生产性能、稳定瘤胃pH、增加挥发性脂肪酸含量和乙丙比。Dias等[5]报道,添加YC可以提高奶牛的泌乳性能,降低奶牛亚急性瘤胃酸中毒的风险。奶牛在泌乳后期采食量下降,饲粮中粗饲料的比例升高,但其营养需求仍然较高,添加YC可以改善瘤胃功能,提高能量利用率。此外,YC还具有增强奶牛免疫功能和缓解氧化应激的作用,可以改善奶牛机体健康。且现有文献大多关注YC在奶牛泌乳盛期的作用,很少有对泌乳后期奶牛添加YC的效果及其作用机理的报道。因此,本试验通过在饲粮中添加YC,探究其对泌乳后期奶牛的影响,从瘤胃微生物的角度出发,通过16S rRNA高通量测序技术与瘤胃液非靶向代谢组学联合分析来进一步阐明YC的作用机理,为YC在生产中的使用提供理论依据。

1 材料与方法

1.1 试验材料

YC蛋白质含量>16%,甘露聚糖含量≥3%,水分含量<12%。

1.2 试验设计与饲养管理

本次动物试验已由西北农林科技大学实验动物管理及伦理审查执行委员会批准,审批号:NWAFU-DK2024016。
本试验在宁夏某牧场进行。选用泌乳天数[(218±10) d]、胎次(3.5±0.5)、产奶量[(46±5) kg/d]相近的荷斯坦奶牛40头,随机分为2组,每组各20头,对照组(CON组)饲喂基础饲粮(不含YC),试验组(YC组)饲喂基础饲粮+YC(每天每头100 g)。试验期35 d,其中预试期7 d,正试期28 d。试验牛均采用散栏式饲养,每天投料2次(10:40、18:40),挤奶3次(06:00、14:00、22:00),自由饮水。基础饲粮组成及营养水平见表1
表1 基础饲粮组成及营养水平(干物质基础)

Table 1 Composition and nutrient levels of the basal diet (DM basis)%

项目 Items 含量 Content
原料 Ingredients
青贮玉米 Corn silage 36.35
压片玉米 Flaked corn 3.64
全棉籽 Whole cottonseed 5.54
苜蓿干草 Alfalfa hay 3.27
苜蓿青贮 Alfalfa silage 6.70
玉米 Corn 16.02
豆粕 Soybean meal 12.46
棉籽粕 Cottonseed meal 2.23
菜籽粕 Rapeseed meal 2.45
麦麸 Wheat bran 1.56
碳酸氢钠 NaHCO3 1.02
脂肪酸钙 Fatty acid calcium 0.98
湿玉米酒糟 Wet corn distiller’s grains 4.45
膨化大豆 Extruded soybean 1.33
预混料 Premix1) 2.00
合计 Total 100.00
营养水平 Nutrient levels2)
粗蛋白质 CP 17.13
粗脂肪 EE 5.56
中性洗涤纤维 NDF 31.36
酸性洗涤纤维 ADF 20.98
粗灰分 Ash 7.59
钙 Ca 0.94
磷 P 0.39
泌乳净能 NEL/(MJ/kg) 6.53

1)预混料为每千克饲粮提供The premix provided the following per kg of the diet:VA 100 000 IU,VD3 20 000 IU,VE≥1 000 mg,Cu 300 mg,Zn 1 000 mg,Mn 600 mg,I 10 mg,Se 5 mg,Co 5 mg。
2)泌乳净能为计算值,其余为实测值。NEL was a calculated value, while the others were measured values.

1.3 样品采集与指标测定

1.3.1 饲粮营养成分测定

粗蛋白质(CP)、粗脂肪(EE)和粗灰分(Ash)含量分别参照GB/T 6432—2018、GB/T 6433—2006、GB/T 6438—2007方法测定;中性洗涤纤维(NDF)、酸性洗涤纤维(ADF)含量参考Van Soest等[6]方法测定;钙(Ca)含量参照GB/T 6436—2018方法测定;磷(P)含量参考GB/T 6437—2018方法测定;泌乳净能(NEL)参照NRC(2001)[7]计算。

1.3.2 干物质采食量(DMI)、产奶量及乳成分的测定

试验期间每天记录2组的饲粮投喂量和剩料量。同时,采用四分法采集饲粮样,测定干物质含量,用每组实际采食量再除以每组的牛头数,计算各组的DMI。通过牧场利拉伐帝波罗挤奶系统记录试验牛只每天的产奶量,并于试验期的第7、14、21、28天采集早、中、晚各50 mL乳样,按4:3:3的比例混匀后保存。送往吴忠市奶业研究院进行乳蛋白、乳脂、乳糖、非脂乳固体、总固形物、乳尿素氮及体细胞数的测定,并计算4%乳脂校正乳(FCM)产量和泌乳效率(FE),计算公式如下:
4% FCM产量=0.4×产奶量(kg/d)+15×乳脂产量(kg/d);
FE=4% FCM产量/DMI。

1.3.3 血液采集与指标的测定

于试验期第28天,晨饲前用真空采血管采集牛尾静脉血液30 mL,静置30 min后,3 000×g、4 ℃离心15 min制备血清样品,分装于1.0 mL离心管,-20 ℃保存待测。使用全自动生化仪(7020型,日立,日本)检测血清中总蛋白、白蛋白、总胆固醇、低密度脂蛋白、甘油三酯、葡萄糖、钙、肌酐含量。血清过氧化氢酶(CAT)、谷胱甘肽过氧化物酶(GHS-Px)、谷胱甘肽-S转移酶(GST)、超氧化物歧化酶(SOD)活性和丙二醛(MDA)的含量用试剂盒测定,试剂盒购自南京建成生物工程研究所。

1.3.4 瘤胃液采集与指标的测定

于试验期28天,2组各随机选取8头奶牛,晨饲前使用瘤胃液口腔采集器采集奶牛瘤胃液样品,弃掉前50 mL瘤胃液后采集100 mL,经4层纱布过滤后直接测定pH并记录,然后将瘤胃液分装于冻存管中,于-20 ℃保存待测。瘤胃液中氨态氮(NH3-N)含量用苯酚-次氯酸钠比色法[8]测定;瘤胃挥发性脂肪酸含量采用气相色谱法,使用气相色谱仪(GC-2014,岛津株式会社,日本)进行测定;瘤胃微生物蛋白(MCP)含量使用试剂盒进行测定,方法及步骤详见说明书,试剂盒购自南京建成生物工程研究所。

1.3.5 瘤胃菌群结构的测定

瘤胃液样品送上海美吉生物医药科技有限公司测定瘤胃菌群。根据E.Z.N.A.soil DNA kit(Omega Bio-Tek,美国)说明书进行微生物群落总基因组DNA抽提,完成样品DNA的抽提后,使用携带Barcode序列的上游引物338F(5'-ACTCCTACGGGAGGCAGCAG-3')和下游引物806R(5'-GGACTACHVGGGTWTCTAAT-3')[9]对16S rRNA基因V3~V4可变区进行PCR扩增,后将PCR扩增产物切胶回收,用Qubit 4.0(Thermo Fisher Scientific,美国)对回收产物进行检测定量。使用NEXTFLEX Rapid DNA-Seq Kit对纯化后的PCR产物进行建库,最后利用Illumina NextSeq 2000平台进行测序。
使用fastp[10]软件对双端原始测序序列进行质控,使用FLASH[11]软件进行拼接,然后使用Qiime2流程[12]中的DADA2插件对质控拼接之后的优化序列进行降噪处理。根据ASV代表序列及丰度信息,进行群落多样性分析、菌群差异分析及相关性分析等。

1.3.6 瘤胃液代谢组的测定

委托上海美吉生物医药科技有限公司完成瘤胃液代谢组分析。本次液相色谱-质谱联用(LC-MS)分析的仪器平台为赛默飞公司的超高效液相色谱串联傅里叶变换质谱UHPLC-Q Exactive系统。将2 μL 样本经HSS T3色谱柱(100 mm×2.1 mm, 1.8 μm)分离后进入质谱检测。上机完成之后,LC-MS原始数据导入代谢组学处理软件Progenesis QI进行基线过滤、峰识别、积分、保留时间校正、峰对齐,最终得到一个保留时间、质荷比和峰强度的数据矩阵,同时将MS和MSMS质谱信息与代谢公共数据库HMDB和Metlin以及美吉自建库进行匹配,得到代谢物信息[13]

1.4 数据统计与分析

试验数据先用Excel 2019软件进行初步整理,后用SPSS 27.0进行独立样本t检验,结果数据以平均值和均值标准误的形式表示,P<0.05为差异显著,P<0.01为差异极显著,将0.05≤P<0.10作为有显著趋势。用Wilcoxon检验分析CON组和YC组的α多样性指数和2组在门水平和属水平上相对丰度的差异,将P<0.05定为差异显著性判断标准;用斯皮尔曼相关性分析对2组差异菌属和瘤胃发酵参数进行相关性分析。将美吉云平台上预处理后的矩阵文件进行差异分析。R软件包进行主成分分析。差异代谢物的选择基于正交偏最小二乘判别分析(OPLS-DA)模型,以重要变量投影(VIP)值>1、P<0.05的代谢物为差异代谢物。差异代谢物通过KEGG数据库进行的代谢通路注释,获得差异代谢物参与的通路。Python软件包scipy.stats进行通路富集分析。

2 结果与分析

2.1 YC对奶牛生产性能的影响

表2可知,YC组的产奶量及4% FCM、乳脂、乳糖、乳蛋白产量显著高于CON组(P<0.05),YC组的体细胞数相较于CON组显著降低(P<0.05)。与CON组相比,YC组FE显著提高(P<0.05)。2组间奶牛的DMI、乳蛋白率、乳脂率、乳糖率及非乳脂固体、总固形物及乳尿素氮含量均无显著差异(P>0.05)。
表2 YC对奶牛生产性能的影响

Table 2 Effects of YC on performance of dairy cows

项目
Items
组别 Groups SEM P
P-value
CON YC
干物质采食量 DMI/(kg/d) 25.80 25.78 0.076 0.900
产奶量 Milk yield/(kg/d) 42.24 43.00 0.179 0.035
4%乳脂校正乳产量 4% FCM yield/(kg/d) 39.96 40.87 0.170 0.008
乳脂率 Milk fat rate/% 3.64 3.67 0.075 0.826
乳脂产量 Milk fat yield/kg 1.54 1.58 0.007 0.002
乳蛋白率 Milk protein rate/% 3.38 3.38 0.037 0.977
乳蛋白产量 Milk protein yield/kg 1.43 1.45 0.006 0.035
乳糖率 Lactose/% 4.63 4.64 0.041 0.911
乳糖产量 Lactose yield/kg 1.96 2.00 0.008 0.018
非脂乳固体 Non-fat solids/% 8.73 8.66 0.087 0.726
总固形物 Total solids/% 12.56 12.57 0.099 0.948
乳尿素氮 MUN/(mg/dL) 13.89 13.35 0.283 0.347
体细胞数 SCC/(×103个/mL) 184.21 72.38 23.122 0.016
饲料效率 FE 1.64 1.67 0.006 0.028

2.2 YC对奶牛血清生化指标的影响

表3可知,与CON组相比,YC组血清总蛋白含量极显著升高(P<0.01),血清白蛋白、钙、总胆固醇、低密度脂蛋白含量显著升高(P<0.05)。2组间奶牛的血清葡萄糖、甘油三酯和肌酐含量均无显著差异(P>0.05)。
表3 YC对奶牛血清生化指标的影响

Table 3 Effects of YC on serum biochemical indexes of dairy cows

项目
Items
组别 Groups SEM P
P-value
CON YC
白蛋白 ALB/(g/L) 38.59 41.76 0.629 0.011
球蛋白 GLB/(g/L) 26.45 32.53 0.937 0.001
白球比 A/G 1.57 1.33 0.059 0.041
钙 Ca/(mmol/L) 2.06 2.15 0.023 0.048
总胆固醇 TCHO/(mmol/L) 5.94 6.55 0.138 0.028
葡萄糖 GLU/(mmol/L) 2.31 2.23 0.082 0.636
低密度脂蛋白 LDL/(mmol/L) 3.86 4.28 0.095 0.026
甘油三酯 TG/(mmol/L) 0.17 0.18 0.006 0.556
总蛋白 TP/(g/L) 65.05 74.29 1.276 <0.001
肌酐 CREA/(μmol/L) 86.46 83.40 1.216 0.220

2.3 YC对奶牛血清抗氧化指标的影响

表4可知,YC组血清CAT和SOD活性极显著提高于CON组(P<0.01)。2组间血清GHS-Px、GST活性及MDA含量均无显著差异(P>0.05)。
表4 YC对奶牛血清抗氧化指标的影响

Table 4 Effects of YC on serum antioxidant indexes of dairy cows

项目
Items
组别 Groups SEM P
P-value
CON YC
过氧化氢酶 CAT/(U/mL) 6.06 7.88 0.255 <0.001
谷胱甘肽过氧化物酶 GHS-Px/(U/mL) 65.31 65.14 1.997 0.972
谷胱甘肽-S转移酶 GST/(U/mL) 13.03 13.22 0.638 0.882
丙二醛 MDA/(nmol/mL) 4.26 4.96 0.241 0.155
超氧化物歧化酶 SOD/(U/mL) 27.58 31.10 0.523 0.001

2.4 YC对奶牛瘤胃发酵参数的影响

表5可知,与CON组相比,YC组瘤胃液MCP含量极显著增加(P<0.01);YC组瘤胃液氨态氮、乙酸、异丁酸、异戊酸、戊酸含量显著提高(P<0.05),总挥发性脂肪酸含量有升高的趋势(P=0.051)。2组间奶牛瘤胃液丙酸、丁酸含量及乙丙比均无显著差异(P>0.05)。
表5 YC对奶牛瘤胃发酵参数的影响

Table 5 Effects of YC on rumen fermentation parameters of dairy cows

项目
Items
组别 Groups SEM P
P-value
CON YC
pH 6.16 5.90 0.088 0.154
氨态氮 NH3-N/(mg/dL) 8.76 14.03 1.144 0.020
微生物蛋白 MCP/(mg/dL) 2.52 3.13 0.106 <0.001
乙酸 Acetate/(mmol/L) 67.44 79.72 2.933 0.038
丙酸 Propionate/(mmol/L) 28.18 30.97 1.150 0.254
异丁酸 Isobutyrate/(mmol/L) 1.32 1.66 0.048 0.013
丁酸 Butyrate/(mmol/L) 9.82 11.16 0.473 0.178
异戊酸 Isovalerate/(mmol/L) 1.32 1.66 0.077 0.023
戊酸 Valerate/(mmol/L) 1.49 1.81 0.071 0.025
乙丙比 A/P 2.41 2.60 0.069 0.198
总挥发性脂肪酸 TVFA/(mmol/L) 109.18 126.47 4.369 0.051

2.5 YC对奶牛瘤胃菌群的影响

2.5.1 α多样性分析

表6可知,与对照组相比,添加YC对瘤胃液中微生物ACE、Chao、Shannon、Simpson、Coverage、Sobs指数无显著影响(P>0.05),说明2组物种多样性无显著差异。
表6 YC对奶牛瘤胃微生物α多样性的影响

Table 6 Effects of YC on α-diversity of rumen microorganisms of dairy cows

项目
Items
组别 Groups SEM P
P-value
CON YC
ACE指数 ACE index 1 585.22 1 754.19 157.207 0.301
Chao指数 Chao index 1 554.42 1 715.23 146.813 0.292
Shannon指数 Shannon index 5.95 6.12 0.151 0.279
Simpson指数 Simpson index 0.01 0.01 0.002 0.441
Coverage指数 Coverage index 1.00 0.99 0.002 0.504
Sobs指数 Sobs index 1 523.38 1 668.63 131.608 0.288

2.5.2 YC对瘤胃菌群结构的影响

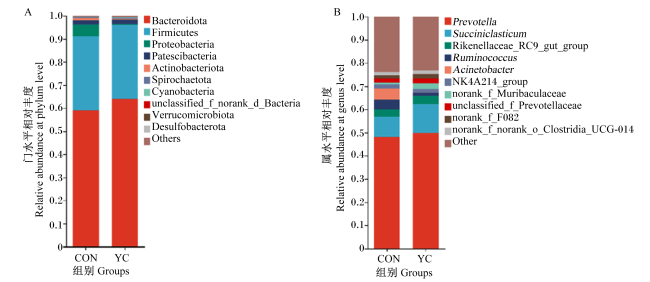
图1-A可知,YC组和CON组的优势菌门均为拟杆菌门(Bacteroidota)、厚壁菌门(Firmicutes)、变形菌门(Proteobacteria),其中拟杆菌门的相对丰度最高。由图1-B可知,2组的优势菌属均为普雷沃氏菌属和解琥珀酸菌属。
图1 瘤胃菌群在门(A)和属水平(B)的群落分布

Bacteroidota:拟杆菌门;Firmicutes:厚壁菌门;Proteobacteria:变形菌门;Patescibacteria:髌骨菌门;Actinobacteriota:放线菌门;Spirochaetota:螺旋体菌门;Cyanobacteria:蓝藻菌门;Verrucomicrobiota:疣微菌门;Desulfobacterota:脱硫杆菌门;Prevotella:普雷沃氏菌属;Succiniclasticum:解琥珀酸菌属;Rikenellaceae_RC9_gut_group:理研菌科RC9_肠道群;Ruminococcus:瘤胃球菌属;Acinetobacter:不动杆菌属;NK4A214_group:NK4A214群;norank_f_Muribaculaceae:未分类拟杆菌目;unclassified_f_Prevotellaceae:未分类普雷沃氏菌科;norank_f_norank_o_Clostridia_UCG-014:未分类梭菌纲UCG-014;Other:其他。

Fig.1 Community distribution of rumen bacteria at phylum (A) and genus (B) levels

2.5.3 YC对瘤胃菌群在属水平上差异的影响

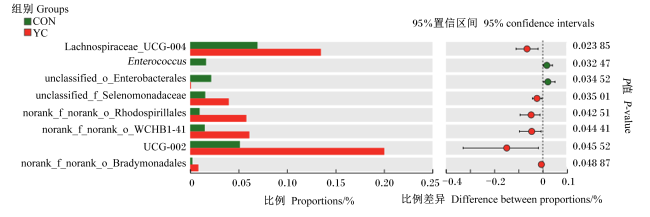
图2所示,YC组中的6个属:UCG-002、毛螺菌科UCG-004、norank_f_norank_o_WCHB1_41、未分类红螺菌目、未分类硒单胞菌科、未分类慢生单胞菌目的相对丰度显著高于CON组(P<0.05);YC组中的未分类肠杆菌目、肠球菌属的相对丰度显著低于CON组(P<0.05)。
图2 CON组和YC组差异菌属

Lachnospiraceae_UCG-004:毛螺菌科UCG-004;Enterococcus:肠球菌属;unclassified_o_Enterobacterales:未分类肠杆菌目;unclassified_f_Selenomonadaceae:未分类硒单胞菌科;norank_f_norank_o_Rhodospirillales:未分类红螺菌目;norank_f_norank_o_Bradymonadales:未分类慢生单胞菌目。

Fig.2 Differential bacterial genus between CON group and YC group

2.5.4 瘤胃发酵参数与差异菌属之间的相关性

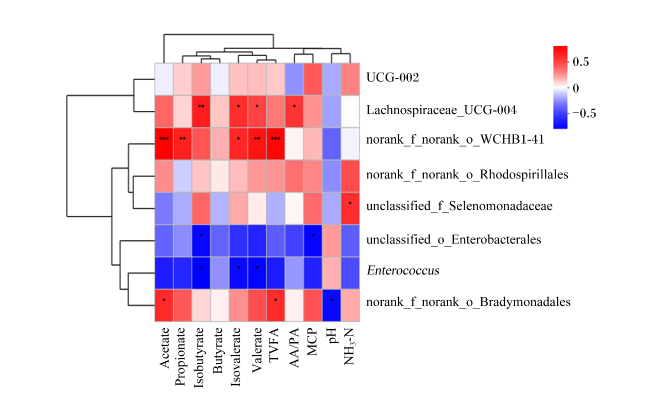
图3所示,毛螺菌科UCG-004相对丰度与异丁酸、异戊酸、戊酸含量呈显著或极显著正相关(P<0.05或P<0.01)。norank_f_norank_o_WCHB1_41相对丰度与乙酸、丙酸、异戊酸、戊酸及总挥发性脂肪酸含量呈显著或极显著正相关(P<0.05或P<0.01)。未分类硒单胞菌科相对丰度与NH3-N含量呈显著正相关(P<0.05)。
图3 瘤胃发酵参数与差异菌属相关性分析

Lachnospiraceae_UCG-004:毛螺菌科UCG-004;norank_f_norank_o_Rhodospirillales:未分类红螺菌目;unclassified_f_Selenomonadaceae:未分类硒单胞菌科;unclassified_o_Enterobacterales:未分类肠杆菌目;Enterococcus:肠球菌属;norank_f_norank_o_Bradymonadales:未分类慢生单胞菌目;Acetate:乙酸;Propionate:丙酸;Isobutyrate:异丁酸;Butyrate:丁酸;Isovalerate:异戊酸;Valerate:戊酸;TVFA:总挥发性脂肪酸 total volatile fatty acids;AA/PA:乙丙比 acetate/valerate;MCP:微生物蛋白 microprotein;NH3-N:氨态氮 ammoniacal nitrogen。

*表示显著相关(P<0.05),**表示极显著相关(P<0.01),***表示极显著相关(P<0.001)。图7同。

Fig.3 Correlation analysis between rumen fermentation parameters and differential bacteria genus

* indicates significant correlation (P<0.05), ** indicates extremely significant correlation (P<0.01), and *** indicates extremely significant correlation (P<0.001). The same as Fig.7.

2.6 YC对瘤胃液代谢组的影响

2.6.1 瘤胃液代谢组主成分分析(PCA)结果
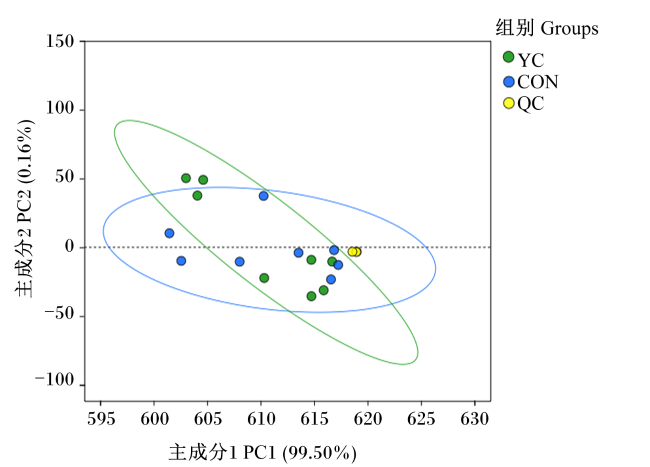
图4可知,PCA模型拟合程度较好,但添加YC对瘤胃液代谢物整体没有显著影响。
图4 瘤胃液代谢组PCA结果

QC:质量控制样本 quality control sample。

Fig.4 Metabolome PCA results of rumen fluid

2.6.2 瘤胃差异代谢物

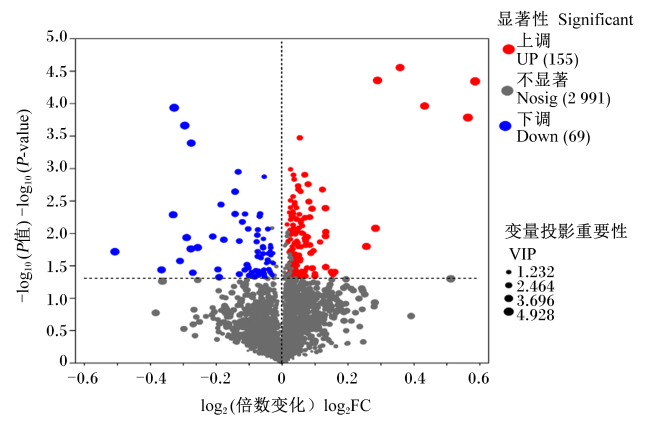
图5可知,2组样品共鉴定出224个差异代谢物,上调155个,下调69个。与CON组相比,YC组共筛选到224种差异代谢物,其中三甲基吲哚、羟基苯乙酰甘氨酸、1-丁醇、N-羟基色胺、4-吡啶氧酸、2-甲基-3-羟基-5-甲酰吡啶-4-羧酸盐等代谢物含量显著上调(表7)。
图5 瘤胃液代谢物火山图

横坐标代表组间差异的倍数,纵坐标是代谢物表达量变化差异的统计学检验值,值越大差异越显著。每个点代表1个代谢物,点的大小代表重要变量投影值。红色点是显著上调的代谢物,蓝色点是显著下调的代谢物,灰色点则代表差异不显著的代谢物。

Fig.5 Volcano plot of rumen fluid metabolites

The abscissa represents the multiple of the difference between the groups, and the ordinate is the statistical test value of the difference in the expression of metabolites. The larger the value, the more significant the difference. Each point represents a metabolite, and the size of the point represents the VIP value. Red dots are significantly up-regulated metabolites, blue dots are significantly down-regulated metabolites, and gray dots represent metabolites with no significant difference.

表7 2组瘤胃液显著差异代谢物

Table 7 Significantly different metabolites in rumen fluid between two groups

差异代谢物
Differential metabolites
重要变量投影值
VIP value
调节
Regulate
P
P-value
3-甲基吲哚 3-methylindole 3.90 上调 <0.001
(S)-2,3,4,5-四氢二吡啶甲酸盐 (S)-2,3,4,5-tetrahydrodipicolinate 1.77 上调 0.022
羟基苯乙酰甘氨酸 Hydroxyphenylacetylglycine 1.64 上调 0.026
1-丁醇 1-butanol 1.54 上调 0.040
N-羟基色胺 N-hydroxyl-tryptamine 1.46 上调 0.010
4-吡啶氧酸 4-pyridoxic acid 1.43 上调 0.024
2-甲基-3-羟基-5-甲酰吡啶-4-羧酸盐
2-methyl-3-hydroxy-5-formylpyridine-4-carboxylate
1.41 上调 0.028
(3Z,6Z)-3,6-壬二烯醛 (3Z,6Z)-3,6-nonadienal 1.13 上调 0.036
4-(2-氨基苯基)-2,4-二氧丁酸 4-(2-aminophenyl)-2,4-dioxobutanoic acid 1.06 上调 0.020
9(S)-HOTrE 1.88 下调 0.005
吲哚-3-乙醛 Indole-3-acetaldehyde 1.84 下调 0.006
9-hpode 1.73 下调 0.009
8-甲氧基犬尿氨酸盐 8-methoxykynurenate 1.70 下调 0.016
9,10-DiHOME 1.56 下调 0.020
甲基咪唑乙醛 Methylimidazole acetaldehyde 1.54 下调 0.009
9(S)-HpODE 1.48 下调 0.017
(9Z,11E,13S,15Z)-13-羟基十八碳-9,11,15-三油酸
(9Z,11E,13S,15Z)-13-hydroxyoctadeca-9,11,15-trienoic acid
1.27 下调 0.029

2.6.3 差异代谢物的通路分析

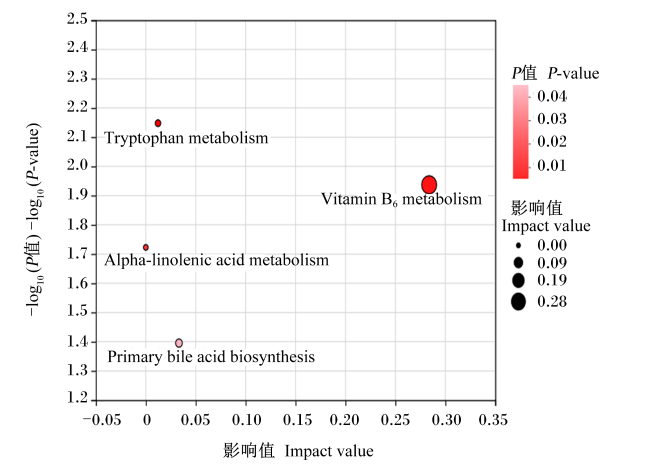
通过超几何检验分析,将P<0.05的代谢物进行KEGG代谢通路富集分析。由表8图6可知,与CON组相比,YC组差异代谢物主要显著富集的通路为维生素B6代谢(vitamin B6 metabolism)、初级胆汁酸生物合成(primary bile acid biosynthesis)、色氨酸代谢(tryptophan metabolism)以及α-亚麻酸代谢(alpha-linolenic acid metabolism)。
表8 2组瘤胃液KEGG代谢通路

Table 8 KEGG metabolic pathways of rumen fluid in two groups

KEGG通路
KEGG pathways
P
P-value
上调的代谢物
Up-regulated metabolites
下调的代谢物
Down-regulated metabolites
维生素B6代谢
Vitamin B6 metabolism
0.012 4-吡啶氧酸、2-甲基-3-羟基-5-
甲酰吡啶-4-羧酸盐
初级胆汁酸生物合成
Primary bile acid biosynthesis
0.040 3α,7α,12α-三羟基-5β-
胆甾酸酯、胆酸
色氨酸代谢
Tryptophan metabolism
0.007 3-甲基吲哚、4-(2-氨基
苯基)-2,4-二氧丁酸,
吲哚-3-乙醛
α-亚麻酸代谢
Alpha-linolenic acid metabolism
0.019 (3Z,6Z)-3,6-壬二烯醛、
(-)-茉莉酸
图6 瘤胃液差异代谢物通路分析

Vitamin B6 metabolism:维生素B6代谢;Primary bile acid biosynthesis:初级胆汁酸生物合成;Tryptophan metabolism:色氨酸代谢;Alpha-linolenic acid metabolism:α-亚麻酸代谢。

图中每个气泡代表1个代谢通路;横轴表示通路中代谢物相对重要性;纵轴表示代谢物参与通路的富集显著性;气泡大小代表通路的重要性;气泡越大,通路重要性越大。

Fig.6 Pathway analysis of differential metabolites in rumen fluid

Each bubble in the figure represents a metabolic pathway; the transverse axis indicates the relative importance of metabolites in the pathway; the longitudinal axis indicates the enrichment significance of metabolites involved in the pathway ; the bubble size represents the importance of the pathway ; the larger the bubble, the greater the importance of the pathway.

2.7 瘤胃差异菌属与瘤胃液差异代谢物的相关分析

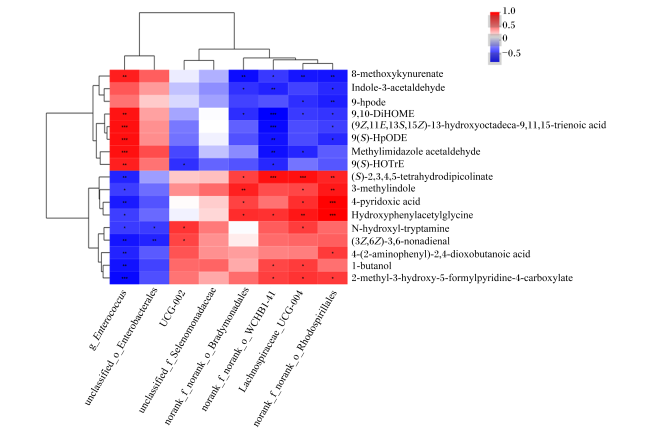
差异菌属与试验组差异代谢物的相关分析如图7所示。UCG-002相对丰度与N-羟基色胺、(3Z,6Z)-3,6-壬二烯醛含量呈显著正相关(P<0.05);norank_f_norank_o_WCHB1-41相对丰度与(S)-2,3,4,5-四氢二吡啶甲酸盐、羟基苯乙酰甘氨酸、1-丁醇、2-甲基-3-羟基-5-甲酰吡啶-4-羧酸盐含量呈显著或极显著正相关(P<0.05或P<0.01)。毛螺菌科UCG-004相对丰度与(S)-2,3,4,5-四氢二吡啶甲酸盐、3-甲基吲哚、4-吡啶氧酸、羟基苯乙酰甘氨酸、N-羟基色胺、1-丁醇、2-甲基-3-羟基-5-甲酰吡啶-4-羧酸盐含量呈显著或极显著正相关(P<0.05或P<0.01)。
图7 差异代谢物与差异菌属相关性分析

g_Enterococcus:肠球菌属;unclassified_o_Enterobacterales:未分类肠杆菌目;unclassified_f_Selenomonadaceae:未分类硒单胞菌科;norank_f_norank_o_Bradymonadales:未分类慢生单胞菌目;Lachnospiraceae_UCG-004:毛螺菌科UCG-004;norank_f_norank_o_Rhodospirillales:未分类红螺菌目;8-methoxykynurenate:8-甲氧基犬尿氨酸盐;Indole-3-acetaldehyde:吲哚-3-乙醛;(9Z,11E,13S,15Z)-13-hydroxyoctadeca-9,11,15-trienoic acid:(9Z,11E,13S,15Z)-13-羟基十八碳-9,11,15-三油酸;Methylimidazole acetaldehyde:甲基咪唑乙醛;(S)-2,3,4,5-tetrahydrodipicolinate:(S)-2,3,4,5-四氢二吡啶甲酸盐;3-methylindole:3-甲基吲哚;4-pyridoxic acid:4-吡啶氧酸;Hydroxyphenylacetylglycine:羟基苯乙酰甘氨酸;N-hydroxyl-tryptamine:N-羟基色胺;(3Z,6Z)-3,6-nonadienal:(3Z,6Z)-3,6-壬二烯醛;4-(2-aminophenyl)-2,4-dioxobutanoic acid:4-(2-氨基苯基)-2,4-二氧丁酸;1-butanol:1-丁醇;2-methyl-3-hydroxy-5-formylpyridine-4-carboxylate:2-甲基-3-羟基-5-甲酰吡啶-4-羧酸盐。

Fig.7 Correlation analysis between differential metabolites and differential bacteria

3 讨论

3.1 YC对奶牛生产性能的影响

奶牛的产奶量和乳成分直接影响了牧场的经济效益。Dais等[5]研究表明,添加YC可以显著提高产奶量、3.5% FCM产量和能量校正乳产量,还提高了乳脂和乳蛋白产量。研究表明,围产期添加活酵母可以显著提高产奶量,提高乳蛋白含量,减少体细胞数[14]。添加YC和酶解酵母可以显著提高泌乳早期奶牛的产奶量、4% FCM产量和能量校正乳产量[15]。Halfen等[3]报道,泌乳中期添加YC对产奶量并无显著影响。
本试验中,添加YC显著提高了产奶量及4%FCM、乳脂、乳蛋白、乳糖产量及FE。YC提高产奶量,提升乳品质的原因一方面可能与其本身含有的可发酵代谢物有关,这部分代谢物直接被瘤胃细菌利用[16];另一方面YC通过影响瘤胃菌群结构来影响碳水化合物等营养物质在瘤胃中的发酵,进而提升能量利用效率,产生更多的牛奶。此外,本研究中发现添加YC还能显著减少体细胞数,这很可能由于YC中含有的甘露寡糖(MOS)和β-葡聚糖。MOS对有益菌具有促进作用,而对有害菌的定植和生长具有抑制作用,进而影响瘤胃营养物质的降解,从而提高了动物的生产性能和抗病能力,同时,MOS还可以作为免疫刺激的辅因子,直接作用于机体的免疫系统,提高动物的免疫力。而β-葡聚糖在很多报道中已经证明了其对动物在抗氧化和免疫方面的有效性[17]

3.2 YC对奶牛血清生化指标的影响

血清生化指标在一定程度上能够反映机体的生理状态。血液中白蛋白可以维持血液的渗透压,运输多种代谢物。球蛋白由免疫器官生成,与机体免疫力密切相关。总蛋白是白蛋白和球蛋白之和。本试验中,添加YC显著提高了血清中总蛋白的含量,这可能与YC提升了奶牛对蛋白质消化吸收与利用的能力有关。
胆固醇是细胞膜结构的重要组成部分,对于细胞膜稳定性和流动性维持具有重要作用[18]。胆固醇还可以生成胆酸,参与脂肪消化。此外,胆固醇还是机体中类固醇激素合成的前提物质。低密度脂蛋白是血浆中胆固醇占比最高的一类脂蛋白,为蛋白质、胆固醇和磷脂组成的复合体,是极低密度脂蛋白降解的产物,主要作用是运载胆固醇进入外周组织细胞[19]。李琛[20]研究表明,在饲粮中添加YC可以显著提高奶牛血清中低密度脂蛋白和胆固醇的含量。本试验中,添加YC显著提高了血清低密度脂蛋白和胆固醇含量,在一定程度上说明机体对脂肪酸的利用能力得以提升,这与前人的试验结果是一致的。

3.3 YC对奶牛血清抗氧化指标的影响

有研究表明,由于自由基的过度生成导致机体处于氧化应激状态[21]。CAT是一种重要的抗氧化酶,其主要作用是催化在氧化还原过程中产生的过氧化氢,以减少过氧化氢对细胞的氧化损伤。SOD是一种天然的抗氧化金属酶[22],具有清除活性氧、缓解炎症和抗氧化等生物学功能[23]。王卫正[24]探究了在饲粮中添加YC对泌乳初期奶牛抗氧化功能的影响,研究结果表明,在饲粮中添加3% YC极显著提高了血液中SOD的活性。本试验结果表明,添加YC可以显著提升血清CAT和SOD的活性,提升了奶牛的抗氧化能力,这与前人研究结果一致。程艳[25]研究表明,添加YC可以显著提高隐形乳房炎奶牛血浆中GSH-Px活性,本试验中血清GSH-Px的活性在YC组并无显著升高,这可能与奶牛的健康状态有关。

3.4 YC对奶牛瘤胃发酵参数的影响

瘤胃NH3-N由瘤胃菌群分解含氮物质的产生,同时微生物利用NH3-N合成MCP[26]。充足的NH3-N是保证MCP合成的前提。郭婷[27]研究表明,添加YC会通过影响瘤胃中纤维降解菌、蛋白水解菌以及淀粉降解菌等细菌之间的相互作用从而提高瘤胃中NH3-N和MCP的含量,这与本试验结果一致。
乙酸是瘤胃发酵的终产物,是脂肪酸从头合成的主要底物;增加乙酸供应会提高产奶量和乳脂产量[27-29]。有研究表明,在饲粮中添加活性干酵母可以改善瘤胃发酵,即提高瘤胃中乙酸和丁酸的含量[30]。瘤胃中丙酸含量受饲粮中精料比的影响,一般情况下精料比越高产生的丙酸也越多。丙酸是肝脏糖异生的主要原料,是奶牛能量的重要来源。丁酸主要由存在于反刍动物消化道中的厚壁菌门分解碳水化合物生成,丁酸可以作为合成乳脂和体脂的前提物质,也可以参与机体供能,另外,丁酸还可以生成胆固醇。异位酸含有支链挥发性脂肪酸,瘤胃中可以产生的异位酸主要包括异戊酸、异丁酸和2-甲基丁酸,支链挥发性脂肪酸是瘤胃纤维素分解菌生长的必需营养素[31]。在本研究中,与CON组相比,YC组中的乙酸、异戊酸、异丁酸、戊酸含量显著升高,这与Lascano等[32]研究的结果是一致的。本试验中,乙酸含量的升高可能因为YC刺激了纤维素分解菌的生长。张少泽[33]研究表明,在奶牛饲粮中添加YC对瘤胃中乙酸含量无显著影响,与本试验结果不一致,可能与奶牛的饲粮组成、泌乳阶段、生理状态以及所处的环境等因素相关。

3.5 YC对奶牛瘤胃菌群的影响

在本研究中,2组的优势菌门都为拟杆菌门、厚壁菌门、变形菌门,其中拟杆菌门的相对丰度最高。Xue等[34]通过微生物基因组说明了拟杆菌门在瘤胃碳水化合物降解过程中发挥了重要作用。Xue等[35]研究表明,厚壁菌门具有促进纤维在瘤胃中降解的功能。2组的优势菌属均为普雷沃氏菌属。这与前人的研究结果[36-37]一致。普雷沃氏菌属对反刍动物瘤胃降解碳水化合物具有重要作用,其在瘤胃中的相对丰度可间接说明瘤胃对碳水化合物的消化水平,此外,普雷沃氏菌属也对蛋白质的降解发挥重要作用[38]。本试验中,YC组中的UCG-002、毛螺菌科UCG-004、未分类硒单胞菌科等的相对丰度显著高于CON组,这些菌属都属于厚壁菌门。所以,添加YC可能促进纤维在瘤胃中的降解,这也可能是YC组中挥发性脂肪酸含量升高的原因。试验组中的norank_f_norank_o_WCHB1_41属于疣微菌门,一些疣微菌对多糖和木质纤维素的降解具有重要作用[39]。在本试验中,norank_f_norank_o_WCHB1_41相对丰度与乙酸、丙酸、异戊酸等挥发性脂肪酸及总挥发性脂肪酸含量呈显著或极显著正相关。UCG-002属于颤螺菌科,Gophna等[40]在研究中表明,颤螺菌属可以发酵碳水化合物。本试验的相关性结果表明,毛螺菌科UCG-004相对丰度与异丁酸、异位酸等异位酸含量的升高有显著或极显著的正相关关系,毛螺菌科UCG-004属于毛螺菌科,有研究表明,毛螺菌属可以发酵各种复杂的多糖,产生挥发性脂肪酸,而且毛螺菌科还可以利用氨基酸合成异位酸[41-43]。这和本研究中试验组乙酸、异丁酸、异戊酸含量的显著升高结果一致。试验组中的未分类硒单胞菌科属于硒单胞菌科,硒单胞菌可以对多种碳水化合物分解代谢,还可以利用蛋白质、氨和氨基酸作为氮源,并利用氨进行氨基酸的生物合成[44]。与CON组相比,添加YC还显著降低了试验组中未分类肠杆菌目和肠球菌属等可能致病的菌属的相对丰度,这可能与酵母细胞壁可以抑制有害菌的繁殖有关[45]

3.6 YC对奶牛瘤胃代谢物的影响

瘤胃代谢组学分析结果表明,显著差异的通路分别为维生素B6代谢、初级胆汁酸生物合成、色氨酸代谢、α-亚麻酸代谢。维生素B6是一种水溶性维生素,参与机体蛋白质代谢、糖原与脂肪酸代谢,参与一些微量营养素的转化与吸收,调节神经递质的合成和代谢。黎俊[46]报道,维生素B6是蛋白质代谢过程中氨基酸转氨酶和脱羧酶的重要辅酶。脱羧作用能够促进神经递质的合成,如多巴胺、组胺等。通过转氨酶调控色氨酸代谢,色氨酸也可以通过相关途径合成烟酸。色氨酸不但在蛋白质生物合成具有重要作用,而且它还是神经递质的前体,如烟酰胺、维生素B6等。此外,色氨酸还可以提高动物的抗氧化和免疫力[47]。α-亚麻酸是一种多不饱和脂肪酸,具有抗炎、抗氧化作用。上述代谢通路说明添加YC会影响瘤胃维生素代谢、氨基酸代谢和脂代谢。

4 结论

饲粮中添加YC可以提高奶牛瘤胃特定细菌丰度,增加挥发性脂肪酸、MCP和B族维生素等合成,改善瘤胃发酵效率并增强奶牛抗氧化能力,进而提高泌乳后期奶牛的生产性能。
[1]
冷向军. 酵母培养物在水产饲料中的研究与应用[J]. 饲料工业, 2023, 44(22):1-7.

LENG X J. Research and application of yeast culture in aquatic feeds[J]. Feed Industry, 2023, 44(22):1-7. (in Chinese)

[2]
POPPY G D, RABIEE A R, LEAN I J, et al. A Meta-analysis of the effects of feeding yeast culture produced by anaerobic fermentation of Saccharomyces cerevisiae on milk production of lactating dairy cows[J]. Journal of Dairy Science, 2012, 95(10):6027-6041.

[3]
HALFEN J, CARPINELLI N, DEL PINO F A B, et al. Effects of yeast culture supplementation on lactation performance and rumen fermentation profile and microbial abundance in mid-lactation Holstein dairy cows[J]. Journal of Dairy Science, 2021, 104(11):11580-11592.

[4]
DESNOYERS M, GIGER-REVERDIN S, BERTIN G, et al. Meta-analysis of the influence of Saccharomyces cerevisiae supplementation on ruminal parameters and milk production of ruminants[J]. Journal of Dairy Science, 2009, 92(4):1620-1632.

[5]
DIAS A L G, FREITAS J A, MICAI B, et al. Effects of supplementing yeast culture to diets differing in starch content on performance and feeding behavior of dairy cows[J]. Journal of Dairy Science, 2018, 101(1):186-200.

DOI PMID

[6]
VAN SOEST P J, ROBERTSON J B, LEWIS B A. Methods for dietary fiber,neutral detergent fiber,and nonstarch polysaccharides in relation to animal nutrition[J]. Journal of Dairy Science, 1991, 74(10):3583-3597.

[7]
NRC. Committee on animal nutrition,subcommittee on dairy cattle nutrition.nutrient requirements of dairy cattle[S].7th ed. Washington,D.C.: National Academies Press, 2001.

[8]
王志远, 沈宜钊, 薄玉琨, 等. 不同青贮添加剂和青贮时间对全株谷草青贮营养价值的影响[J]. 动物营养学报, 2023, 35(9):6072-6086.

DOI

WANG Z Y, SHEN Y Z, BO Y K, et al. Effects of different silage additives and silage time on nutritional value of whole-plant millet silage[J]. Chinese Journal of Animal Nutrition, 2023, 35(9):6072-6086. (in Chinese)

DOI

[9]
LIU C S, ZHAO D F, MA W J, et al. Denitrifying sulfide removal process on high-salinity wastewaters in the presence of Halomonas sp.[J]. Applied Microbiology and Biotechnology, 2016, 100(3):1421-1426.

[10]
CHEN S F, ZHOU Y Q, CHEN Y R, et al. Fastp:an ultra-fast all-in-one FASTQ preprocessor[J]. Bioinformatics, 2018, 34(17):i884-i890.

[11]
MAGOČ T, SALZBERG S L. FLASH:fast length adjustment of short reads to improve genome assemblies[J]. Bioinformatics, 2011, 27(21):2957-2963.

[12]
BARBERÁN A, BATES S T, CASAMAYOR E O, et al. Using network analysis to explore co-occurrence patterns in soil microbial communities[J]. The ISME Journal, 2012, 6(2):343-351.

[13]
REN Y, YU G, SHI C P, et al. Majorbio cloud:a one-stop,comprehensive bioinformatic platform for multiomics analyses[J]. iMeta, 2022, 1(2):e12.

[14]
CATTANEO L, LOPREIATO V, PICCIOLI-CAPPELLI F, et al. Effect of supplementing live Saccharomyces cerevisiae yeast on performance,rumen function,and metabolism during the transition period in Holstein dairy cows[J]. Journal of Dairy Science, 2023, 106(6):4353-4365.

[15]
NOCEK J E, HOLT M G, OPPY J. Effects of supplementation with yeast culture and enzymatically hydrolyzed yeast on performance of early lactation dairy cattle[J]. Journal of Dairy Science, 2011, 94(8):4046-4056.

DOI PMID

[16]
CARPINELLI N A, HALFEN J, TREVISI E, et al. Effects of peripartal yeast culture supplementation on lactation performance,blood biomarkers,rumen fermentation,and rumen bacteria species in dairy cows[J]. Journal of Dairy Science, 2021, 104(10):10727-10743.

[17]
顾鲲涛, 赵连生, 王留香, 等. 饲粮中添加酵母β-葡聚糖对围产期奶牛生产性能、血清生化指标及抗氧化能力的影响[J]. 动物营养学报, 2018, 30(6):2164-2171.

GU K T, ZHAO L S, WANG L X, et al. Effects of dietary supplementation of yeast β-glucan on performance,serum biochemical indices and antioxidant capacity of transition dairy cows[J]. Chinese Journal of Animal Nutrition, 2018, 30(6):2164-2171. (in Chinese)

[18]
孙丹丹. C60、脂质纳气泡与类细胞膜作用的分子动力学模拟研究[D].硕士学位论文. 南京: 东南大学, 2015.

SUN D D. The interaction of C60 or lipid nanobubble with A phospholipid mem-brane:molecular dynamics simulation[D].Master’s Thesis. Nanjing: Southeaast University, 2015. (in Chinese)

[19]
刘元志, 刘富佳, 艾杨, 等. 低密度脂蛋白、同型半胱氨酸及维生素D与糖尿病微血管病变的相关性研究[J]. 医疗装备, 2023, 36(8):51-53.

LIU Y Z, LIU F J, AI Y, et al. Correlation of low-density lipoprotein,homocysteine and vitamin D with microangiopathy in diabetes mellitus[J]. Medical Equipment, 2023, 36(8):51-53. (in Chinese)

[20]
李琛. 饲喂酵母培养物对奶牛泌乳性能、血清和瘤胃发酵指标的影响[D].硕士学位论文. 乌鲁木齐: 新疆农业大学, 2021.

LI C. Effect of feeding yeast culture on milking performance,serum and rumen fermentation index of dairy cows[D].Master’s Thesis. Urumchi: Xinjiang Agricultural University, 2021. (in Chinese)

[21]
SURAI P F, KOCHISH I I, FISININ V I, et al. Revisiting oxidative stress and the use of organic selenium in dairy cow nutrition[J]. Animals, 2019, 9(7):462.

[22]
蒋武. 超氧化物歧化酶及过氧化氢酶模拟物的研究[D].硕士学位论文. 武汉: 武汉工程大学, 2015.

JIANG W. Study on the superoxide dismutase and catalase-like activities of simulant[D].Master’s Thesis. Wuhan: Wuhan Institute of Technology, 2017. (in Chinese)

[23]
ISLAM M N, RAUF A, FAHAD F I, et al. Superoxide dismutase:an updated review on its health benefits and industrial applications[J]. Critical Reviews in Food Science and Nutrition, 2022, 62(26):7282-7300.

[24]
王卫正. 酵母培养物对奶牛生产性能、表观消化率、抗氧化功能及免疫能力的影响[D].硕士学位论文. 南京: 南京农业大学, 2016.

WANG W Z. Effects of yeast culture on production performance,apparent digestibility,antioxidant function and immune capacity in dairy cow[D].Master’s Thesis. Nanjing: Nanjing Agricultural University, 2016. (in Chinese)

[25]
程艳. 酵母培养物对患隐性乳房炎奶牛免疫、抗氧化功能及生产性能的影响[D].硕士学位论文. 呼和浩特: 内蒙古农业大学, 2007.

CHENG Y. Effect of yeast culture on immunity,antioxidation and performance of dairy cows with subclinic mastitis[D].Master’s Thesis. Hohhot: Inner Mongolia Agricultural University, 2007. (in Chinese)

[26]
刘程. 复合益生菌对泌乳中期奶牛生产性能和瘤胃菌群的影响[D].硕士学位论文. 杭州: 浙江大学, 2020.

LIU C. Effect of compound probiotics on milk performance and rumen flora of mid-lactation dairy cows[D].Master’s Thesis. Hangzhou: Zhejiang University, 2020. (in Chinese)

[27]
郭婷. 围产前期开始连续饲喂酵母培养物对奶牛泌乳性能及瘤胃发酵功能的影响[D].硕士学位论文. 呼和浩特: 内蒙古农业大学, 2022.

GUO T. Effects of continuous supplementation with yeast culture in prepartum dietary on lactation performance and rumen fermentation function in dairy cows[D].Master’s Thesis. Hohhot: Inner Mongolia Agricultural University, 2022. (in Chinese)

[28]
URRUTIA N L, HARVATINE K J. Acetate dose-dependently stimulates milk fat synthesis in lactating dairy cows[J]. The Journal of Nutrition, 2017:763-769.

[29]
SUTTON J D, DHANOA M S, MORANT S V, et al. Rates of production of acetate,propionate,and butyrate in the rumen of lactating dairy cows given normal and low-roughage diets[J]. Journal of Dairy Science, 2003, 86(11):3620-3633.

[30]
BENCHAAR C H, YANG W Z. Effects of active dried yeast (Saccharomyces cerevisiae) a non-ionic surfactant,or their combination on gas production,rumen microbial fermentation and methane production in vitro[J]. Animal Feed Science and Technology, 2024, 307:115844.

[31]
EUGÈNE M, ARCHIMÈDE H, SAUVANT D. Quantitative Meta-analysis on the effects of defaunation of the rumen on growth,intake and digestion in ruminants[J]. Livestock Production Science, 2004, 85(1):81-97.

[32]
LASCANO G J, HEINRICHS A J. Rumen fermentation pattern of dairy heifers fed restricted amounts of low,medium,and high concentrate diets without and with yeast culture[J]. Livestock Science, 2009, 124(1/2/3):48-57.

[33]
张少泽. 活酵母和酵母培养物对奶牛生产性能的影响及其作用机理研究[D].硕士学位论文. 合肥: 安徽农业大学, 2021.

ZHANG S Z. Effect of active dry yeast and yeast culture on performance and mechanism of dairy cows[D].Master’s Thesis. Hefei: Anhui Agricultural University, 2021. (in Chinese)

[34]
XUE M Y, WU J J, XIE Y Y, et al. Investigation of fiber utilization in the rumen of dairy cows based on metagenome-assembled genomes and single-cell RNA sequencing[J]. Microbiome, 2022, 10(1):11.

[35]
XUE M Y, SUN H Z, WU X H, et al. Assessment of rumen bacteria in dairy cows with varied milk protein yield[J]. Journal of Dairy Science, 2019, 102(6):5031-5041.

DOI PMID

[36]
BOWEN, JENNA M. Evaluation of microbial communities associated with the liquid and solid phases of the rumen of cattle offered a diet of perennial ryegrass or white clover[J]. Frontiers in Microbiology, 2018, 9:2389.

DOI PMID

[37]
JAMI E, ISRAEL A, KOTSER A, et al. Exploring the bovine rumen bacterial community from birth to adulthood[J]. ISME Journal, 2013, 7(6):1069-1079.

DOI PMID

[38]
张洁, 张力莉, 徐晓锋. 反刍动物瘤胃内普雷沃氏菌的研究进展[J]. 中国饲料, 2020,(7):17-21.

ZHANG J, ZHANG L L, XU X F, et al. Research progress of Prevotella in the rumen of ruminants[J]. China Feed, 2020,(7):17-21. (in Chinese)

[39]
GHARECHAHI J, VAHIDI M F, BAHRAM M, et al. Metagenomic analysis reveals a dynamic microbiome with diversified adaptive functions to utilize high lignocellulosic forages in the cattle rumen[J]. The ISME Journal, 2021, 15(4):1108-1120.

[40]
GOPHNA U, KONIKOFF T, NIELSEN H B. Oscillospira and related bacteria-from metagenomic species to metabolic features[J]. Environmental Microbiology, 2017, 19(3):835-841.

[41]
BOUTARD M, CERISY T, NOGUE P Y, et al. Functional diversity of carbohydrate-active enzymes enabling a bacterium to ferment plant biomass[J]. PLoS Genetics, 2014, 10(11):e1004773.

[42]
WATANABE M, KAKU N, UEKI K, et al. Falcatimonas natans gen.nov.,sp.nov.,a strictly anaerobic,amino-acid-decomposing bacterium isolated from a methanogenic reactor of cattle waste[J]. International Journal of Systematic and Evolutionary Microbiology, 2016, 66(11):4639-4644.

[43]
ZAPLANA T, SOLANGE M, ANDREW C T. Lachnospiraceae are emerging industrial biocatalysts and biotherapeutics[J]. Frontiers in Bioengineering and Biotechnology, 2024, 11:1324396.

[44]
RICKE S C, MARTIN S A, NISBET D J. Ecology, metabolism, and genetics of ruminal selenomonads[J]. Critical Reviews in Microbiology, 1996, 22(1):27-56.

PMID

[45]
孙喆, 甄玉国, 鲍男, 等. 酵母培养物在动物生产中营养及保健作用的研究[J]. 中国畜牧杂志, 2014, 50(24):65-68,73.

SUN Z, ZHEN Y G, BAO N, et al. Progress in the research of yeast culture on nutrition and health care function in animal production[J]. Chinese Journal of Animal Science, 2014, 50(24):65-68,73. (in Chinese)

[46]
黎俊. 维生素B6和蛋白质对断奶仔猪肠道功能及氨基酸代谢的影响及其机制探究[D].博士学位论文. 长沙: 湖南师范大学, 2020.

LI J. Effects of vitamin B6 and protein on intestinal function and amino acid metabolism of weaned piglets[D].Ph.D.Thesis. Changsha: Hunan Normal University, 2020. (in Chinese)

[47]
陈俊宏. 添喂色氨酸、过瘤胃色氨酸对奶牛泌乳性能、血浆及乳中褪黑素含量的影响[D].硕士学位论文. 乌鲁木齐: 新疆农业大学, 2017.

CHEN J H. Effect of tryptophan and rumen-protected tryptophan supplementation on lactation performance,plasma and milk melatonin levels in dairy cows[D].Master’s Thesis. Urumqi: Xinjiang Agricultural University, 2017. (in Chinese)

文章导航

/