研究论文

不同饲料利用效率奶牛的生产性能和瘤胃微生物多样性的差异研究

  • 王猛 , 1, 2 ,
  • 徐宏建 1, 2 ,
  • 沈宜钊 3 ,
  • 马峰涛 1, 2 ,
  • 李妍 2, 4 ,
  • 赵玉萍 1, 2 ,
  • 刘洁 1, 2 ,
  • 梁紫恒 1, 2 ,
  • 李建国 , 1, 2, 5, 6, * ,
  • 高艳霞 , 1, 2, 5, 6, *
展开
  • 1 河北农业大学动物科技学院,保定 071001
  • 2 农业农村部奶牛健康养殖重点实验室(部省共建),保定 071001
  • 3 山东农业大学动物科技学院,泰安 271000
  • 4 河北农业大学动物医学院,保定 071001
  • 5 河北省牛羊胚胎技术创新中心,保定 071001
  • 6 河北省乳制品产业技术研究院,石家庄 050000
* 李建国,教授,博士生导师,E-mail: ;
高艳霞,研究员,硕士生导师,E-mail:

王 猛(2000—),男,河北沧州人,硕士研究生,研究方向为动物营养学。E-mail:

Copy editor: 陈 鑫

收稿日期: 2024-11-14

  网络出版日期: 2025-07-12

基金资助

国家奶牛产业技术体系(CARS-36-20)

河北省科学技术厅生物农业联合基金重点项目(C2022204248)

河北省现代农业产业技术体系奶牛创新团队(HBCT2023180207)

河北省高端人才项目(6012018)

Study on Differences in Performance and Rumen Microbial Diversity of Dairy Cows with Different Feed Utilization Efficiencies

  • WANG Meng , 1, 2 ,
  • XU Hongjian 1, 2 ,
  • SHEN Yizhao 3 ,
  • MA Fengtao 1, 2 ,
  • LI Yan 2, 4 ,
  • ZHAO Yuping 1, 2 ,
  • LIU Jie 1, 2 ,
  • LIANG Ziheng 1, 2 ,
  • LI Jianguo , 1, 2, 5, 6, * ,
  • GAO Yanxia , 1, 2, 5, 6, *
Expand
  • 1 College of Animal Science and Technology, Agricultural University of Hebei, Baoding 071001, China
  • 2 Key Laboratory of Healthy Breeding in Dairy Cattle of the Ministry of Agriculture and Rural Affairs (Co-Construction by Ministry and Province), Baoding 071001, China
  • 3 College of Animal Science and Veterinary Medicine, Shandong Agricultural University, Tai’an 271000, China
  • 4 College of Veterinary Medicine, Hebei Agricultural University, Baoding 071001, China
  • 5 Hebei Province Cattle and Sheep Embryo Technology Innovation Center, Baoding 071001, China
  • 6 Hebei Dairy Industry Technology Research Institute, Shijiazhuang 050000, China
* LI Jianguo, professor, E-mail: ;
GAO Yanxia, professor, E-mail:

Received date: 2024-11-14

  Online published: 2025-07-12

摘要

本试验旨在研究不同饲料利用效率的奶牛生产性能、瘤胃发酵和瘤胃微生物多样性的差异。试验选用60头胎次[(2.00±0.22)胎)]、体重[(662.8±25.5) kg]和泌乳天数[(139.48±13.44) d]相近的泌乳中期高产荷斯坦奶牛,连续10 d记录其采食量和产奶量,通过平均干物质采食量与4%乳脂校正乳产量的比值计算饲料利用效率,将饲料利用效率最高的15头奶牛分为高饲料利用效率组(1.76±0.11),将饲料利用效率最低的15头奶牛分为低饲料利用效率组(1.28±0.17)。试验最后1 d采集瘤胃液。结果显示:1)高饲料利用效率组奶牛干物质采食量与低饲料利用效率组没有显著差异(P>0.05),高饲料利用效率组奶牛乳产量、4%乳脂校正乳产量、能量校正乳产量、能量校正乳产量与干物质采食量的比值和4%乳脂校正乳产量与干物质采食量的比值显著高于低饲料利用效率组(P<0.05);虽然2组间奶牛的乳脂率、乳蛋白率、乳糖率、总固形物含量、乳尿素氮含量和体细胞数没有显著差异(P>0.05),但是高饲料利用效率组奶牛乳脂产量、乳蛋白产量和乳糖产量显著高于低饲料利用效率组(P<0.05)。2)高饲料利用效率组奶牛的瘤胃pH,氨态氮、微生物蛋白、总挥发性脂肪酸和乙酸浓度与低饲料利用效率组相比没有显著差异(P>0.05);高饲料利用效率组奶牛瘤胃的丙酸和丁酸浓度显著高于低饲料利用效率组(P<0.05),高饲料利用效率组奶牛丙酸摩尔比例显著高于低饲料利用效率组(P<0.05),乙酸的摩尔比例和乙酸/丙酸显著低于低饲料利用效率组(P<0.05)。3)不同饲料利用效率奶牛瘤胃微生物丰富度和多样性指数没有显著差异(P>0.05)。4)在细菌门水平上,2组间微生物相对丰度没有显著差异(P>0.05);在细菌属水平上,低饲料利用效率组Limivicinus的相对丰度显著高于高饲料利用效率组(P<0.05),在细菌种水平上,低饲料利用效率组普雷沃氏菌属sp002391185(Prevotella sp002391185)、NK4A136 sp900102065、UBA2897 sp002350105和琥珀酸弧菌属sp002473165(Succinivibrio sp002473165)等10个菌种相对丰度显著高于高饲料利用效率组[线性判别分析(LDA)>2,P<0.05];在古菌门水平上,低饲料利用效率组奶牛甲烷杆菌门(Methanobacteriota)和甲烷杆菌门A(Methanobacteriota A)的相对丰度显著高于高饲料利用效率组(P<0.05);在古菌属水平上,低饲料利用效率组甲烷短杆菌属(Methanobrevibacter)、甲烷短杆菌属A(MethanobrevibacterA)和甲烷球形菌属(Methanosphaera)的相对丰度显著高于高饲料利用效率组(P<0.05);在古菌种水平上,低饲料利用效率组52个产甲烷菌种相对丰度显著高于低饲料利用效率组(LDA>2,P<0.05)。综上所述,高饲料利用效率奶牛具有更优的瘤胃微生物组成和高效的丙酸发酵能力,且高饲料利用效率奶牛的产甲烷菌的相对丰度更低,减少甲烷产生的能量损失,能为奶牛提供更多的能量和营养物质,进而改善瘤胃发酵和生长性能。

本文引用格式

王猛 , 徐宏建 , 沈宜钊 , 马峰涛 , 李妍 , 赵玉萍 , 刘洁 , 梁紫恒 , 李建国 , 高艳霞 . 不同饲料利用效率奶牛的生产性能和瘤胃微生物多样性的差异研究[J]. 动物营养学报, 2025 , 37(7) : 4591 -4607 . DOI: 10.12418/CJAN2025.376

Abstract

This study was designed to explore the differences of performance, rumen fermentation and rumen microbial diversity of dairy cows with different feed utilization efficiencies. Sixty high yielding Holstein cows with similar parity[(2.00±0.22) parities], body weight[(662.8±25.5)kg] and days in milk[(139.48±13.44) d] in middle lactation period were selected for the experiment, and their feed intake and milk yield were recorded for 10 consecutive days. The feed conversion rate (FCR) of the 60 cows was calculated using the ratio of average dry matter intake (DMI) to 4% fat correction milk yield. The 15 dairy cows with the highest feed utilization efficiency were divided into the high feed utilization efficiency group (HFE group) (1.76±0.11), and the 15 dairy cows with the lowest feed utilization efficiency were divided into the low feed utilization efficiency group (LFE group) (1.28±0.17). Rumen fluid was collected on the last day of the experiment. The results showed as follows: 1) DMI of dairy cows in HFE group was not significantly different from that of dairy cows in LFE group (P>0.05), but the milk yield, 4%FCM yield, energy correction milk (ECM) yield, ECM yield/DMI and 4%FCM yield/DMI in HFE group were significantly higher than those in LFE group (P<0.05); although there were no significant differences in milk fat percentage, milk protein percentage, lactose percentage, total solids content, milk urea nitrogen content and somatic cell count (SCC) between the two groups (P>0.05), but the milk fat yield, milk protein yield, lactose yield in HFE group were significantly higher than those in LFE group (P<0.05). 2) There were no significant differences in rumen fluid pH, the concentration of microbial protein, total volatile fatty acid, aminopeptide nitrogen, acetic acid between HFE and LFE groups (P>0.05), but the concentration of propionic acid and the molar ratio of propionic acid in HFE group were significantly higher than those in LFE group (P<0.05), the molar ratio of acetic acid and acetic acid/propionic acid ratio in LFE group were significantly higher than those in HFE group (P<0.05). 3) There were no significant differences in rumen microbial richness and diversity indexes among dairy cows with different feed utilization efficiencies (P>0.05). 4) At the bacteria phylum level, there was no significant difference between the two groups of dairy cows (P>0.05), at the bacteria genus level, the relative abundance of Limivicinus in LFE group was significantly higher than that in HFE group (P<0.05), at the bacteria species level, 10 species such as Prevotella sp002391185, NK4A136 sp900102065, UBA2897 sp002350105 and Succinivibrio sp002473165 were significantly higher in the HFE group [linear discriminant analysis (LDA)>2, P<0.05]; at the archaea phylum level, the relative abundance of Methanobacteriota and Methanobacteriota A in LFE group was significantly higher than that in FHE group (P<0.05), at the archaea genus level, the relative abundance of Methanobrevibacter, Methanobrevibacter A and Methanosphaera in LFE group was significantly higher than that in FHE group (P<0.05), at the archaea species level, 52 methanogenic archaea were significantly higher in the LFE group (LDA>2, P<0.05). In summary, high feed utilization efficiency dairy cows have a better rumen microbial composition and efficient propionic acid fermentation, and methanogens from high feed utilization efficiency dairy cows have a lower abundance of Methanogens, which reduces energy losses from methane production and provides more energy and nutrients to dairy cows, which in turn improves rumen fermentation and growth performance.

我国饲料资源相对不足,饲料成本高居不下,长期依赖进口,农业农村部数据显示,仅大豆一项,2023年进口量为9 941万t,比上年增长11.4%,占全部粮食进口量的6成以上。因此提高饲料利用效率是当前提高奶牛生产、降低牛奶成本的重要举措。同时,奶牛作为一种大型乳用动物,采食量惊人的同时,粪污产量也高得惊人,高产奶牛每天的粪污产量甚至高达35 kg以上,提高奶牛的饲料利用率还是当前环境保护的必然要求。
瘤胃微生物对饲料利用效率起着至关重要的作用。反刍动物依靠瘤胃微生物群促进饲料消化,并为宿主提供短链脂肪酸(SCFA)和微生物蛋白(MCP)等营养物质[1],其中乙酸、丙酸和丁酸满足宿主70%的能量需求[2]。此外,产甲烷古菌能利用瘤胃发酵的副产物产生甲烷,造成能量损失,同时甲烷也是一种温室气体[3]。瘤胃微生物的细微变化都会对饲料利用效率和生产性能产生影响。Guan等[4]采用变性梯度凝胶电泳(PCR-DGGE)分析了不同饲料利用效率肉牛瘤胃菌群结构的差异,发现2组瘤胃菌群差异显著。Hernandez-Sanabria等[5]根据奶牛的剩余采食量(RFI)进行分类,发现琥珀酸弧菌属(Succinivibrio)、罗宾逊氏菌属(Robinsoniella)和真杆菌属(Eubacterium)与饲料利用效率具有相关性。Shabat等[6]通过宏基因组和代谢组分析了瘤胃微生物与饲料利用效率的关系,研究发现效率较高的奶牛体内的微生物群落丰富度和多样性较低,但为宿主产生的重要代谢物的菌群丰度较高。该研究还发现产甲烷古菌的相对丰度和甲烷代谢途径在低效奶牛瘤胃中显著富集。谢云怡[7]研究发现,低效奶牛瘤胃中产甲烷古菌相对丰度显著高于高效奶牛。Xue等[8]揭示了具有不同饲料利用效率奶牛之间瘤胃微生物组及其代谢物的差异,研究发现高效奶牛中月形单胞菌属(Selenomonas)与琥珀酸弧菌科(Succinivibrionaceae)的成员相互促进,对饲料利用效率有积极的影响。但不同研究报道结果不一致。
虽然众多研究表明,反刍动物瘤胃微生物菌群的变化会对饲料利用效率产生很大影响,但瘤胃微生物对饲料利用效率具体调控原因和机制并不明确。因此,本试验探究不同饲料利用效率奶牛生产性能、瘤胃发酵和瘤胃微生物的差异,明确特定微生物菌群是否与宿主饲料利用效率相关,以及是否存在与饲料利用效率相关的优势菌群,以期扩大对微生物调控饲料利用效率的认识,并为瘤胃微生物与宿主饲料利用效率相关的潜在机制提供理论依据。

1 材料与方法

1.1 试验时间与地点

试验时间为2023年11月;饲养试验地点为河北宏达牧业。

1.2 试验设计

所有试验动物样品采集方案均经过河北农业大学试验动物伦理委员会审核通过,编号YXGAO-2305。所有动物的护理和处理都符合“实验动物护理原则(NIH第86-23号出版物,1985年修订)”。
试验选用60头胎次[(2.00±0.22)胎]、体重[(662.8±25.5) kg]和泌乳天数[(139.48±13.44) d]相近的泌乳中期高产荷斯坦奶牛,连续10 d记录其采食量和产奶量,通过平均干物质采食量(DMI)与4%乳脂校正乳(4%FCM)产量的比值计算饲料利用效率,将饲料利用效率最高的15头奶牛分为高饲料利用效率组(1.76±0.11),将饲料利用效率最低的15头奶牛分为低饲料利用效率组(1.28±0.17)。试验最后1 d采集奶牛瘤胃液。瘤胃液提取DNA,进行宏基因组分析。根据宏基因组的结果,对奶牛饲料利用效率相关的瘤胃微生物种类、菌群结构进行分析,从微生物层面确定奶牛饲料利用效率的差异原因。

1.3 饲养管理

所有饲喂管理方式按照该牧场管理标准执行,奶牛在干燥、通风、舒适的环境中饲养。试验期间,每日挤奶3次(06:00、13:30和21:00),每天饲喂全混合日粮(TMR)3次(07:30、14:00和22:00),使剩料量保持在5%左右,自由采食和饮水。奶牛基础饲粮参照NRC(2001)标准进行配制,其组成及营养水平见表1。其中干物质(DM)含量参照GB/T 6435—2014中方法测定,粗脂肪(EE)含量参照GB/T 6433—2025中方法测定,粗蛋白质(CP)含量参照GB/T 6432—2018中方法测定,中性洗涤纤维(NDF)含量参照GB/T 20806—2006中方法测定,酸性洗涤纤维(ADF)含量参照NY/T 1459—2007中方法测定,钙和磷含量分别参照GB/T 6436—2018和GB/T 6437—2018中方法测定。
表1 基础饲粮组成及营养水平(干物质基础)

Table 1 Composition and nutrient levels of the basal diet (DM basis)%

项目 Items 含量 Content
原料 Ingredients
玉米青贮 Corn silage 34.30
苜蓿干草 Alfalfa hay 12.40
燕麦干草 Oat hay 4.30
压片玉米 Flaking corn 17.20
豆粕 Soybean meal 10.60
甜菜颗粒 Pelleted sugar beet pulp 7.59
菜籽粕 Rapeseed meal 1.15
大豆皮 Soybean hull 1.74
麸皮 Wheat bran 1.38
全棉籽 Whole cottonseed 6.25
脂肪粉 Fat powder 0.65
氧化镁 MgO 0.12
磷酸氢钙 CaHPO4 0.64
小苏打 NaHCO3 0.45
食盐 NaCl 0.18
石粉 Limestone 0.35
碳酸钾 K2CO3 0.07
预混料 Premix1) 0.61
脱霉剂 Mold remover 0.02
合计 Total 100.00
营养水平 Nutrient levels2)
泌乳净能 NEL/(MJ/kg) 7.28
粗蛋白质 CP 15.60
粗脂肪 EE 5.21
中性洗涤纤维 NDF 40.20
酸性洗涤纤维 ADF 22.50
钙 Ca 0.82
磷 P 0.46

1)每千克预混料含有 Each kilogram of premix contained the following:VA 710 000 IU,VD3 280 000 IU,VE 11 000 mg,Cu 1 800 mg,Fe 1 700 mg,Zn 7 215 mg,Mn 4 000 mg,Co 58 mg,Se 60 mg,I 110 mg。
2)泌乳净能参照NRC(2001)计算,其他营养水平为实测值。NEL was a calculated value according to NRC (2001), while the other nutrient levels were measured values.

1.4 样品采集与指标测定

1.4.1 DMI的测定

统计每头牛每日的采食量,分别测定饲粮样品重(投料量)和第2天饲喂前剩余饲粮重(剩料量),于105 ℃烘干至恒重,计算样品DM含量,换算出各组奶牛DMI,计算公式如下:
DMI=(投料量-剩料量)×DM含量。

1.4.2 乳产量和乳成分测定

每日早、中、晚挤奶时记录试验牛产奶量。试验期第11天,将早、中、晚收集的乳样按4:3:3的比例混匀,取2份,每份50 mL,一份加入重铬酸钾防腐剂(0.6 mg/mL)混合均匀4 ℃冷藏;另一份送至奶牛生产性能测定(DHI)中心(河北省石家庄市),测定其乳脂、乳蛋白、乳糖、总固形物、乳尿素氮、体细胞数等指标,4%FCM产量和能量校正乳(ECM)产量计算公式如下:
4%FCM产量=[(0.4×产奶量(kg/d)]+[(15×乳脂产量(kg/d)];
ECM产量=[0.324 6×产奶量(kg/d)]+[13.86×乳脂产量(kg/d)]+[7.04×乳蛋白产量(kg/d)];
饲料利用效率=4%FCM产量(kg/d)/DMI(kg/d)。

1.4.3 瘤胃液的采集

试验期第11天晨饲前,每头牛用口腔采样法采集瘤胃液。经4层纱布过滤后取得滤液,分成5份,1份立即用pH计测定瘤胃pH;1份转移到灭菌管中,立刻冻存液氮中,转移至-80 ℃冰箱冻存,用于瘤胃微生物菌群分析,另外3份装入10 mL离心管中,存放在-20 ℃的冰箱保存,经过处理后测定氨态氮(NH3-N)、MCP和挥发性脂肪酸(VFA)浓度。

1.4.4 瘤胃发酵参数测定

瘤胃液pH使用酸度计(Denver UB-7,美国)测定[9]。采用比色法测定单个样品中的瘤胃液NH3-N浓度[10]。瘤胃液VFA浓度使用气相色谱仪(Agilent 7890A,美国)测定[11]。瘤胃液MCP浓度参考Makkar等[12]的方法测定。

1.4.5 宏基因组测序

将瘤胃液样品送至上海派森诺生物科技有限公司通过Illumina NovaSeq/HiSeq高通量测序平台进行宏基因组测序。利用Fastp和minimap2软件对原始数据进行质控和去宿主污染处理得到有效reads及数据库;使用QIIME 2计算包括Chao1、Observed species、Shannon、Simpson指数在内的Alpha多样性指数。基于Bray-Curtis 距离的主坐标分析(PCoA)由QIIME2计算微生物Beta多样性。通过线性判别分析效应大小(LEfSe)分析,以线性判别分析(LDA)>2、P<0.05为阈值,筛选出2组奶牛瘤胃种水平的特征微生物。

1.5 统计分析

本试验数据使用Excel 2017进行整理,应用SPSS 23.0软件对表型数据进行独立样本t检验分析,试验结果以“平均值±标准差”形式表示,P<0.05为差异显著,0.05≤P<0.10为有显著趋势。使用Wilcoxon秩和检验比较组间瘤胃微生物门和属水平的相对丰度,P<0.05定为组间显著差异。使用LEfSe分析种水平的差异,LDA>2且P<0.05认为差异显著。使用GraphPad Prism 9软件进行可视化呈现。使用Spearman秩相关进行相关性分析,Gephi 0.9.2用于本试验中相关性图的绘制。

2 结果与分析

2.1 不同饲料利用效率奶牛的生产性能及饲料利用效率

表2可知,高饲料利用效率组奶牛DMI与低饲料利用效率组相比有升高的趋势(P=0.093)。高饲料利用效率组奶牛乳产量、4%FCM产量和ECM产量显著高于低饲料利用效率组(P<0.05)。高饲料利用效率组奶牛ECM产量/DMI、4%FCM产量/DMI显著高于低饲料利用效率组(P<0.05)。
表2 不同饲料利用效率奶牛的生产性能及饲料利用效率

Table 2 Performance and feed utilization efficiency of cows with different feed utilization efficiencies

项目
Items
高饲料利用效率组
HFE group
低饲料利用效率组
LFE group
P
P-value
干物质采食量 DMI/(kg/d) 27.95±2.25 26.66±1.77 0.093
乳产量 Milk yield/(kg/d) 44.54±3.99 39.24±4.49 0.002
4%乳脂校正乳产量 4%FCM yield/(kg/d) 48.74±6.03 41.57±6.33 0.004
能量校正乳产量 ECM yield/(kg/d) 53.35±6.09 45.93±6.51 0.003
饲料利用效率 FE/%
能量校正乳产量/干物质采食量ECM yield/DMI 1.92±0.11 1.47±0.15 <0.001
4%乳脂校正乳产量/干物质采食量4%FCM yield/DMI 1.76±0.11 1.28±0.17 <0.001

2.2 不同饲料利用效率奶牛的乳品质

表3可知,高饲料利用效率组奶牛乳脂率、总固形物含量、乳尿素氮含量和体细胞数与低饲料利用效率组相比没有显著差异(P>0.05),高饲料利用效率组奶牛乳脂产量、乳蛋白产量和乳糖产量显著高于低饲料利用效率组(P<0.05)。
表3 不同饲料利用效率奶牛的乳品质

Table 3 Milk quality of cows with different feed utilization efficiencies

项目
Items
高饲料利用效率组
HFE group
低饲料利用效率组
LFE group
P
P-value
乳脂率 Milk fat percentage/% 4.62±0.44 4.37±0.36 0.107
乳蛋白率 Milk protein percentage/% 3.30±0.21 3.37±0.22 0.370
乳糖率 Lactose percentage/% 5.33±0.08 5.36±0.15 0.474
乳脂产量 Milk fat yield/(kg/d) 2.06±0.31 1.73±0.31 0.006
乳蛋白产量 Milk protein yield/(kg/d) 1.47±0.14 1.32±0.15 0.009
乳糖产量 Lactose yield/(kg/d) 2.37±0.23 2.11±0.28 0.007
乳尿素氮 Milk urea nitrogen/(mg/dL) 13.99±0.66 12.87±1.16 0.355
总固形物 Total solids/% 13.96±0.70 13.56±0.70 0.129
体细胞数 Somatic cell count/(×103个/mL) 22.00±7.60 23.47±6.40 0.572

2.3 不同饲料利用效率奶牛的瘤胃发酵参数

表4可知,高饲料利用效率组奶牛瘤胃的pH,NH3-N、MCP、总VFA和乙酸浓度与低饲料利用效率组相比没有显著差异(P>0.05)。高饲料利用效率组奶牛瘤胃的丙酸和丁酸浓度显著高于低饲料利用效率组(P<0.05)。高饲料利用效率组奶牛丙酸摩尔比例显著高于低饲料利用效率组(P<0.05),乙酸的摩尔比例和乙酸/丙酸显著低于低饲料利用效率组(P<0.05)。此外,高饲料利用效率组奶牛异丁酸的摩尔比例有高于低饲料利用效率组的趋势(P=0.063)。
表4 不同饲料利用效率奶牛的瘤胃发酵参数

Table 4 Rumen fermentation parameters of cows with different feed utilization efficiencies

项目
Items
高饲料利用效率组
HFE group
低饲料利用效率组
LFE group
P
P-value
pH 6.59±0.23 6.62±0.19 0.708
氨态氮 NH3-N/(mg/dL) 9.39±2.11 10.59±2.38 0.154
微生物蛋白 MCP/(μg/mL) 130.49±56.57 126.50±46.40 0.834
总挥发性脂肪酸 Total VFA/(mmol/L) 107.09±7.45 102.98±6.24 0.112
乙酸 Acetate/(mmol/L) 61.97±3.20 63.13±3.25 0.334
丙酸 Propionate/(mmol/L) 27.94±3.80 23.90±3.38 0.005
丁酸 Butyrate/(mmol/L) 12.61±1.77 11.27±1.35 0.028
异丁酸 Isobutyrate/(mmol/L) 0.74±0.17 0.80±0.11 0.223
戊酸 Valerate/(mmol/L) 1.58±0.30 1.63±0.39 0.703
异戊酸 Isovalerate/(mmol/L) 2.26±0.64 2.25±0.49 0.957
摩尔比例 Molar proportion/%
乙酸 Acetate 57.96±2.26 61.38±2.48 <0.001
丙酸 Propionate 26.00±1.80 23.14±2.34 0.001
丁酸 Butyrate 11.78±1.51 10.96±1.27 0.116
异丁酸 Isobutyrate 0.69±0.15 0.78±0.10 0.063
戊酸 Valerate 1.47±0.23 1.57±0.33 0.324
异戊酸 Isovalerate 2.10±0.52 2.18±0.41 0.658
乙酸/丙酸 A/P 2.24±0.21 2.69±0.39 0.001

2.4 不同饲料利用效率奶牛瘤胃微生物α多样性

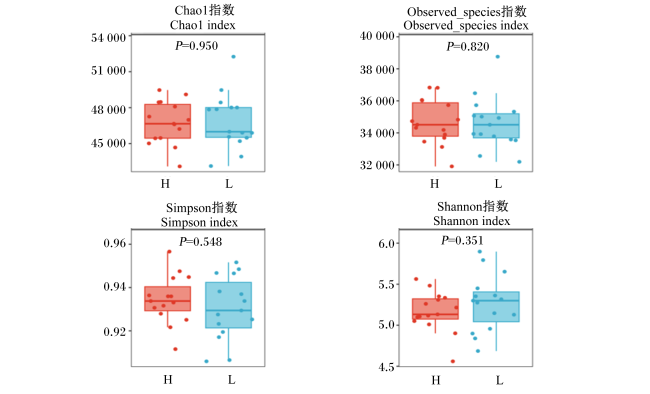
对瘤胃中微生物群落进行α多样性分析,由图1可知,2组奶牛微生物丰富度Chao1、Observed_species指数和多样性Simpson、Shannon指数均没有显著差异(P>0.05)。
图1 不同饲料利用效率奶牛瘤胃微生物多样性和丰富度指数

H:高饲料利用效率组;L:低饲料利用效率组。下图同。

Fig.1 Rumen microbial diversity and richness indexes of cows with feed utilization efficiencies

H: high feed utilization efficiency group;L: low feed utilization efficiency group. The same as below.

2.5 不同饲料利用效率奶牛瘤胃微生物β多样性

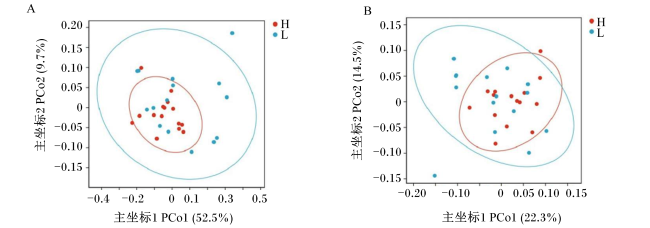
对瘤胃中古菌和细菌的Bray-Curtis距离进行了PCoA(图2)。结果显示,2组古菌和细菌均没有明显聚类。
图2 不同饲料利用效率奶牛的瘤胃微生物组成结构比较

A:瘤胃细菌的PCoA; B:瘤胃古菌的PCoA。

Fig.2 Comparison of rumen microbial composition of cows with feed utilization efficiencies

A: PCoA of rumen bacteria; B: PCoA of rumen archaea.

2.6 不同饲料利用效率奶牛瘤胃细菌差异

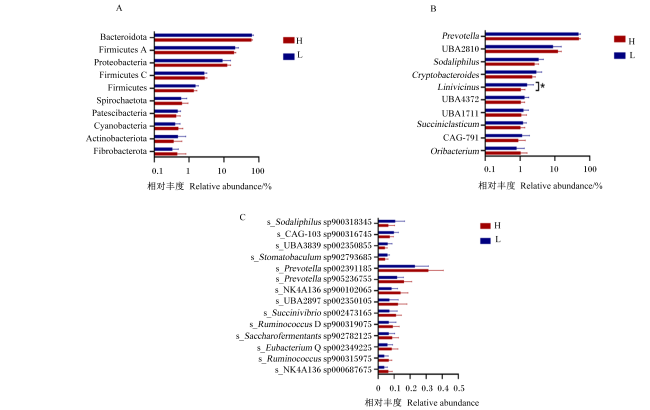
不同饲料利用效率的奶牛瘤胃细菌组成差异见图3。在瘤胃细菌门水平上2组奶牛没有显著差异(图3-A);在属水平上,低饲料利用效率组奶牛Limivicinus相对丰度显著高于高饲料利用效率组(P<0.05)(图3-B);在种水平上进行不同饲料利用效率的组间LEfSe差异统计,所有显著差异菌种见图3-C,其中10个菌种的相对丰度在高饲料利用效率组中相对较高,4个菌种的相对丰度在低饲料利用效率组中相对较高(LDA>2,P<0.05)。
图3 不同饲料利用效率奶牛细菌组成差异

A:门水平组成差异;B:属水平组成差异;C:种水平组成差异。A: phylum-level compositional difference; B: genus-level compositional difference; C: species-level compositional difference.

*表示差异显著(P<0.05); 在种水平上,LDA>2,P<0.05表示差异显著。* indicates significant difference (P<0.05); at the species level, LDA>2, P<0.05 indicates significant difference.

Bacteroidota:拟杆菌门;Firmicutes:厚壁菌门;Proteobacteria:变形菌门;Spirochaetota:螺旋体门;Patescibacteria:髌骨细菌门;Cyanobacteria:蓝细菌门;Actinobacteriota:放线菌门;Fibrobacterota:纤维杆菌门;Prevotella:普雷沃氏菌属; Succiniclasticum:解琥珀酸菌属; Succinivibrio:琥珀酸弧菌属;Ruminococcus:瘤胃球菌属;Eubacterium Q:真杆菌属。

Fig.3 Differences in bacterial composition of dairy cows with different feed utilization efficiencies

2.7 不同饲料利用效率奶牛瘤胃古菌差异

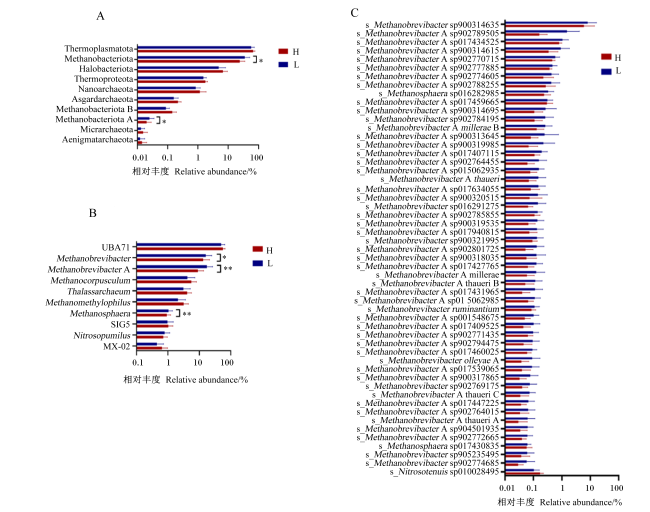
不同饲料利用效率的奶牛瘤胃古菌组成差异见图4。在门水平上,低饲料利用效率组奶牛甲烷杆菌门(Methanobacteriota)和甲烷杆菌门A(Methanobacteriota A)相对丰度显著高于高饲料利用效率组奶牛(P<0.05)(图4-A);在属水平上,低饲料利用效率组甲烷短杆菌属(Methanobrevibacter)相对丰度显著高于高饲料利用效率组(P<0.05),低饲料利用效率组奶牛甲烷短杆菌属A (Methanobrevibacter A)和甲烷球形菌属(Methanosphaera)相对丰度极显著高于高饲料利用效率组(P<0.01)(图4-B);在种水平上进行不同饲料利用效率的组间LEfSe差异统计,所有显著差异菌种见图4-C,共发现53个显著差异的菌种,其中1个菌种的相对丰度在高饲料利用效率组奶牛中相对较高,52个菌种的相对丰度在低饲料利用效率组中相对较高(LDA>2,P<0.05)。
图4 不同饲料利用效率奶牛瘤胃古菌组成差异

A:门水平组成差异;B:属水平组成差异;C:种水平组成差异。A: phylum-level compositional difference; B: genus-level compositional difference; C: species-level compositional difference. *表示差异显著(P<0.05), **表示差异极显著(P<0.01); 在种水平上,LDA>2,P<0.05表示差异显著。* indicates significant difference (P<0.05), ** indicates significant difference (P<0.01); at the species level, LDA>2, P<0.05 indicates significant difference.

Thermoplasmatota:热原体门;Methanobacteriota:甲烷杆菌门;Halobacteriota:嗜盐古菌门;Thermoproteota:热变形菌门;Nanoarchaeota:纳古菌门;Asgardarchaeota:阿斯加德古菌门;Micrarchaeota:微古菌门;Aenigmatarchaeota:谜古菌门;Methanocorpusculum:甲烷粒菌属;Thalassarchaeum:深海古菌属;Methanomethylophilus:嗜甲烷甲基菌属;Methanosphaera:甲烷球形菌属; Nitrosopumilus:亚硝化侏儒菌属; Nitrosotenuis sp010028495:细小亚硝化菌种sp010028495。

Fig.4 Differences in composition of rumen archaea of dairy cows with different feed utilization efficiencies

2.8 不同饲料利用效率奶牛瘤胃微生物与饲料利用效率指标的相关性分析

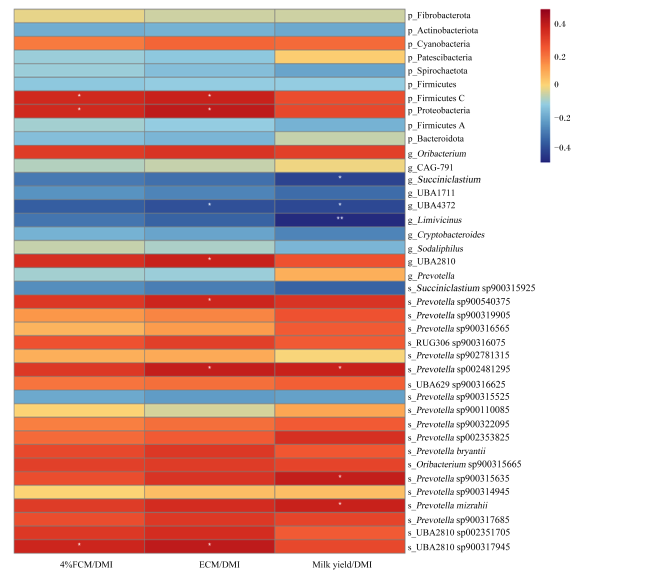
将饲料利用效率指标与瘤胃优势微生物进行Spearman相关性分析发现(图5),在门水平上,厚壁菌门C(Firmicutes C)和变形菌门(Proteobacteria)相对丰度与ECM/DMI和4%FCM/DMI呈显著正相关(P<0.05)。在属水平上,UBA4372、解琥珀酸菌属(Succiniclasticum)和Limivicinus相对丰度与产奶量/DMI呈显著或极显著负相关(P<0.05或P<0.01),UBA2810相对丰度与ECM/DMI呈显著正相关(P<0.05)。在种水平上,普雷沃氏菌属(Prevotella)sp900540375、Prevotella sp002481295、Prevotella sp900315635、米兹拉希普雷沃菌(Prevotella mizrahii)和UBA2810 sp900317945相对丰度与饲料利用效率指标呈显著正相关(P<0.05)。
图5 不同饲料利用效率奶牛瘤胃微生物与饲料利用效率的相关性分析

奶牛瘤胃优势微生物(门水平:前10;属水平:前10;种水平:前20)。*表示显著相关(P<0.05), **表示极显著相关(P<0.01)。图6同。Rumen dominant microorganisms of dairy cows (phylum level: top 10; genus level: top 10; species level: top 20). * indicates significant correlation (P<0.05), and ** indicates extremely significant correlation (P<0.01). 图6同 the same as Fig.6

Fibrobacterota:纤维杆菌门;Actinobacteriota:放线菌门;Cyanobacteria:蓝细菌门;Patescibacteria:髌骨细菌门;Spirochaetota:螺旋体门;Firmicutes:厚壁菌门;Proteobacteria:变形菌门;Bacteroidota:拟杆菌门; Succiniclasticum:解琥珀酸菌属; Prevotella:普雷沃氏菌属。图6同 the same as Fig.6

4%FCM/DMI:4%乳脂校正乳产量与干物质采食量的比值 the ratio of 4% fat-corrected milk yield to dry matter intake;ECM/DMI:能量校正乳产量与干物质采食量的比值the ratio of energy-corrected milk yield to dry matter intake;Milk yield/DMI:产奶量与干物质采食量的比值 the ratio of milk yield to dry matter intake。

Fig.5 Correlation analysis between rumen microorganisms and feed efficiency of dairy cows with different feed utilization efficiencies

2.9 不同饲料利用效率奶牛瘤胃微生物与瘤胃发酵参数的相关性分析

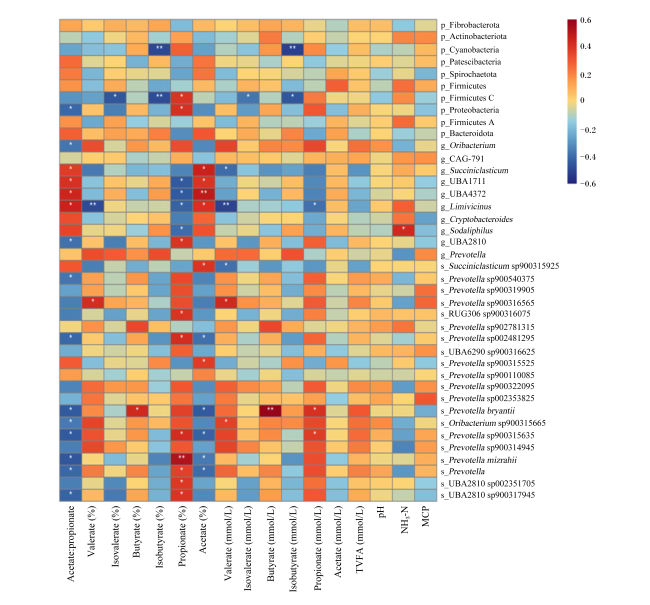
将瘤胃发酵参数与瘤胃优势微生物进行Spearman相关性分析(图6)发现,在门水平上,蓝细菌门(Cyanobacteria)的相对丰度与异丁酸的浓度和摩尔比例呈显著负相关(P<0.05),Firmicutes C相对丰度与异丁酸和异戊酸的浓度及摩尔比例呈显著负相关(P<0.05),Proteobacteria相对丰度与乙酸/丙酸呈显著负相关(P<0.05),与丙酸的摩尔比例呈显著正相关(P<0.05)。在属水平上,Succiniclasticum相对丰度与戊酸的浓度呈显著负相关(P<0.05),与乙酸的摩尔比例呈显著正相关(P<0.05),Sodaliphilus相对丰度与丙酸摩尔比例呈负相关(P<0.05),UBA4372和UBA1711相对丰度与乙酸的摩尔比例及乙酸/丙酸呈显著正相关(P<0.05),与丙酸的摩尔比例呈显著负相关(P<0.05),Limivicinus相对丰度与戊酸和丙酸的浓度及摩尔比例均呈显著负相关(P<0.05),UBA2810相对丰度与乙酸/丙酸呈显著负相关(P<0.05),与丙酸的摩尔比例呈显著正相关(P<0.05)。在种水平上,4个普雷沃氏菌种和2个UBA2810菌种相对丰度与乙酸的摩尔比例及乙酸/丙酸呈显著负相关(P<0.05),与丙酸的摩尔比例呈显著正相关(P<0.05),布莱恩特普雷沃菌(Prevotella bryantii)相对丰度与丁酸的浓度和摩尔比例及丙酸浓度均呈显著正相关(P<0.05)。
图6 不同饲料利用效率奶牛瘤胃微生物与瘤胃发酵参数的相关性分析

MCP:微生物蛋白microprotein;NH3-H:氨态氮ammoniacal nitrogen;TVFA:总挥发性脂肪酸 total volatile fatty acids。

Fig.6 Correlation analysis between rumen microbes and rumen fermentation parameters of dairy cows with different feed utilization efficiencies

3 讨论

3.1 不同饲料利用效率奶牛的生产性能及饲料利用效率

本研究发现,相同饲喂条件下,奶牛的生产性能和饲料利用效率指标存在显著的个体差异。在奶牛身体组织储备、健康和生产不受影响的情况下,低DMI和高产奶量对于提高饲料利用效率是最理想的。从本试验结果来看,高饲料利用效率组奶牛DMI与低饲料利用效率组相比有升高的趋势,高饲料利用效率组奶牛的产奶量显著高于低饲料利用效率组,这与Xue等[8]研究结果一致。可能的原因是本试验高饲料利用效率组奶牛的丙酸浓度高于低饲料利用效率组,丙酸是葡萄糖合成的前体物质,导致葡萄糖含量升高,而葡萄糖是合成乳糖的主要前体物质[13],进而提高了乳糖产量,在乳腺细胞合成乳糖的过程中,可能由于渗透压作用导致细胞外的水分进入细胞内,提高了产奶量[14]。薛茗元[15]研究也发现,丙酸浓度与产奶量之间呈正相关关系。但也有研究表明,高饲料利用效率组奶牛采食量极显著低于低饲料利用效率组,且2组间产奶量和ECM产量没有显著差异[7]。Nehme Marinho等[16]研究发现,泌乳中期的低RFI奶牛的DMI在前15周比高RFI奶牛少3.5 kg,减少了15%,而对产奶量、ECM产量和乳成分没有显著影响。
Lombardi等[17]研究也指出,高饲料利用效率奶牛的DMI显著低于低饲料利用效率奶牛。也有研究表明,低RFI的绵羊DMI显著低于中RFI和高RFI的绵羊[18]。这些研究结果可能的原因是较高的采食量会提高胃肠道充盈度,食糜在消化道内留存时间变短,流通排空速率增加,营养物质未能充分消化吸收,就会导致饲料消化率降低[19],进而使饲料利用效率下降。这些结果表明,在不影响动物生产性能的前提下,可以通过减少饲料消耗来提高饲料利用效率。而本试验结果中,高饲料利用效率组奶牛的DMI有升高的趋势,可能是因为高饲料利用效率组奶牛具有更高效的瘤胃发酵,促进了饲料消化,从而提高了DMI。且高饲料利用效率组奶牛产奶量显著增加,从而提高饲料利用效率。乳成分是评价牛奶质量的重要指标,包括乳脂率、乳蛋白率、乳糖率和乳尿素氮含量等。从本试验结果来看,高饲料利用效率组奶牛的乳脂率与低饲料利用效率组没有显著差异,这与Xi等[20]研究结果一致。乙酸是反刍动物脂肪和乳腺组织中脂质合成的主要前体物质[21],本试验中,2组乙酸浓度没有显著差异,这可能是2组奶牛乳脂率没有显著差异的原因。本试验高饲料利用效率组奶牛的乳蛋白产量和乳糖产量显著高于低饲料利用效率组,这与Arndt等[22]研究结果一致,可能的原因是高饲料利用效率组奶牛的丙酸浓度显著高于低饲料利用效率组,丙酸是葡萄糖合成的前体物质,导致葡萄糖含量升高,而葡萄糖是合成乳糖的主要前体物质[13],进而提高了乳糖产量。瘤胃中丙酸盐比例提高,刺激胰岛素分泌,增加对氨基酸的吸收[23]。此外,高饲料利用效率奶牛的乳腺上皮细胞利用氨基酸的效率较高[7],能合成更多的蛋白质,从而提高了乳蛋白产量。

3.2 不同饲料利用效率奶牛的瘤胃发酵参数

瘤胃VFA在反刍动物的碳水化合物营养上起着重要作用。而不同种类的VFA在机体代谢过程中转化的效率不同,因此VFA的产量和比例是饲料利用效率的重要影响因素。在本试验中,高饲料利用效率组奶牛的丁酸浓度、丙酸浓度以及丙酸的摩尔比例显著高于低饲料利用效率组,低饲料利用效率组奶牛的乙酸摩尔比例显著高于高饲料利用效率组。Guan等[4]研究发现,高饲料利用效率组肉牛中丁酸盐浓度和总VFA浓度较高,低饲料利用效率组肉牛中乙酸盐浓度较高,笔者认为可能是高效肉牛中的微生物活性增加导致的。McGovern等[24]发现,低RFI公牛的丁酸浓度有增加趋势,这与本试验的研究结果一致。高饲料利用效率组奶牛丙酸浓度高,可能的原因是琥珀酸弧菌属的相对丰度较高,琥珀酸弧菌属是丙酸生产菌,可以利用氢来产生琥珀酸[25],琥珀酸在瘤胃中不积累并迅速转化为丙酸[26]。高饲料利用效率奶牛瘤胃中较高丁酸浓度可能会增加瘤胃表面吸收面积,从而增加SCFA的吸收和能量的提供[27],瘤胃上皮细胞对SCFA的吸收增加会提高饲料利用效率[28]。乙酸/丙酸可以表示瘤胃发酵类型,本试验高饲料利用效率组奶牛乙酸/丙酸显著低于低饲料利用效率组,且丙酸浓度显著高于低饲料利用效率组,所以高饲料利用效率奶牛瘤胃趋向于丙酸发酵,丙酸型发酵能为奶牛提供更多的能量。此外,乙酸产生与H2的产生有关,丙酸的产生与H2利用有关,可能会降低甲烷产量,减少能量损失,从而提高饲料利用效率,这与本试验中产甲烷古菌在低饲料利用效率组奶牛中显著提高的结果相对应。异丁酸属于异位酸,异位酸有促进瘤胃内氨基酸的合成的作用[29]。在本试验中,高饲料利用效率组奶牛异丁酸摩尔比例有高于低饲料利用效率组的趋势。这表明高饲料利用效率组奶牛中瘤胃氨基酸合成代谢能力较强[7],这与本试验中高饲料利用效率奶牛乳蛋白产量高于低饲料利用效率奶牛相对应。
但也有研究发现,不同饲料利用效率的奶牛VFA浓度没有显著变化。瘤胃发酵受到饲粮类型、精粗比等众多因素的影响,可能导致研究结果不一致。另外,瘤胃VFA是瘤胃上皮吸收和微生物发酵共同作用的结果。

3.3 不同饲料利用效率奶牛瘤胃微生物α和β多样性

瘤胃是反刍动物至关重要的消化器官,其厌氧的环境中栖息着数目庞大、结构复杂的瘤胃微生物,这些微生物对反刍动物自身维持和生产性能的发挥起着重要作用。瘤胃微生物多样性是影响生产性能和饲料利用效率的重要因素[7]。在本试验中,2组奶牛的瘤胃菌群丰富度和多样性没有显著差异,对瘤胃细菌和瘤胃古菌进行PCoA,2组奶牛也没发现明显聚类。Shabat等[6]研究发现,高饲料利用效率奶牛瘤胃微生物区系更简单,多样性更低,这也得到了Guan等[4]的研究证实。然而,McGovern等[24]研究发现,高饲料利用效率奶牛与低饲料利用效率奶牛的微生物多样性和丰富度没有显著差异,这与本试验的研究结果一致。还有一些研究结果[30-33]与本试验一致,这些研究结果表明,较低微生物多样性可能不一定等同于更高饲料利用效率,并且微生物多样性受到饲粮成分和动物品种的影响。

3.4 不同饲料利用效率奶牛瘤胃微生物差异

细菌在瘤胃降解饲料营养物质的过程中起关键的作用。本试验分析不同饲料利用效率奶牛瘤胃细菌的差异,结果显示,在属水平上,低饲料利用效率组奶牛Limivicinus相对丰度显著高于高饲料利用效率组,Chaumeil等[34]将其归属于颤螺菌目和颤螺菌科。颤螺菌物种似乎不降解复合纤维,而是依赖于饲料微生物降解的降解产物,包括来自初级纤维定植细菌物种的中间发酵产物。此外,还发现颤螺菌与消瘦有关,因为它们利用宿主产生的黏蛋白降解释放的糖,这反过来迫使宿主消耗更多的能量来再生被降解的糖蛋白,包括肠黏蛋白[35],这可能解释了其在低饲料利用效率奶牛中较高的原因。但Limivicinus的作用还需进一步研究。在种水平进行LEfSe差异统计发现,Prevotella sp002391185、Prevotella sp905236755、NK4A136 sp900102065、UBA2897 sp002350105、Succinivibrio sp002473165、瘤胃球菌属D sp900319075 (Ruminococcus D sp900319075)、产乙酸糖发酵菌sp902782125 (Saccharofermentans sp902782125)、Eubacterium Q sp002349225、Ruminococcus sp900315975、NK4A136 sp000687675的相对丰度在高饲料利用效率组显著升高,普雷沃菌科及其属种能促进蛋白质和饲粮中的碳水化合物的分解[36-37],主要产生乙酸、琥珀酸和丙酸。Rius等[38]研究指出,与低饲料利用效率奶牛相比,高饲料利用效率奶牛的普雷沃氏菌属的丰度显著上调。Saccharofermentans可调控多种碳水化合物活性酶,并产生过氧化氢、延胡索酸、乳酸和乙酸作为淀粉和碳水化合物发酵的终产物[39]。琥珀酸弧菌可以利用氢来产生琥珀酸[25],琥珀酸盐在瘤胃中不积累并迅速转化为丙酸盐[26],其通过瘤胃壁转运出瘤胃并通过糖异生途径转化为葡萄糖。已有多项研究表明,高饲料利用效率奶牛中解琥珀酸弧菌种多于低饲料利用效率奶牛,能够提高反刍动物的饲料利用效率[8,40-41]。UBA2897 sp002350105属于月形单胞菌科,大多数月形单胞菌菌种可以利用淀粉产生乳酸盐,乙酸盐和丙酸盐作为最终产物[42-43]。Xue等[8]研究表明,高饲料利用效率奶牛瘤胃中月形单胞菌属相对丰度高于低饲料利用效率奶牛,且月形单胞菌与琥珀酸弧菌科细菌之间可能存在着积极的互作关系,并因其各自的功能而成为高效动物瘤胃的功能关键菌。NK4A136 sp900102065和Eubacterium Q sp002349225属于毛螺菌科,毛螺菌科菌种相对丰度与饲料利用效率呈正相关[6,38],而且毛螺菌科的一些成员是主要的丁酸产生者。因此,NK4A136和Eubacterium Q菌种可能导致高饲料利用效率动物的产丁酸的能力比低饲料利用效率动物高,从而解释了高饲料利用效率组奶牛的丁酸浓度高于低饲料利用效率组。瘤胃球菌科的成员具有分解纤维素和半纤维素的能力,并产生乙酸、丁酸、甲酸和氢[44]。Liu等[45]研究发现,高饲料利用效率奶牛中的瘤胃球菌科相对丰度显著高于低饲料利用效率组,瘤胃球菌科及其属相对丰度与RFI呈负相关[46],支持了这一结果。笔者推断较高瘤胃球菌相对丰度可能导致高饲料利用效率动物能量利用效率提高。
产甲烷菌能将CO2、H2、甲酸和乙酸等物质转化成甲烷,从中获得能量。本研究中,低饲料利用效率组奶牛瘤胃中MethanosphaeraMethanobrevibacter A等产甲烷菌相对丰度显著高于高饲料利用效率组,这与先前众多的研究结果[6,47-49]一致。瘤胃中产甲烷菌属相对丰度与饲料利用效率之间存在负相关关系[24,50],说明低饲料利用效率组奶牛可能产生更多的甲烷,造成了能量浪费,降低饲料利用效率。

3.5 不同饲料利用效率奶牛瘤胃微生物与饲料利用效率和瘤胃发酵参数的相关性

本试验分析不同饲料利用效率奶牛瘤胃优势微生物与饲料利用效率相关性,结果显示,Limivicinus相对丰度与饲料利用效率指标呈显著负相关,这与本试验Limivicinus在低饲料利用效率组奶牛中富集的结果相对应。UBA2810相对丰度与饲料利用效率指标呈正相关,UBA2810属于琥珀酸弧菌科,Xue等[8]研究指出琥珀酸弧菌科及其成员对饲料利用效率有着积极的影响。4个普雷沃氏菌属的菌种相对丰度与饲料利用效率指标呈显著正相关。Indugu等[51]发现,部分普雷沃氏菌株有利于瘤胃发酵,对饲料利用效率和泌乳性能有积极影响。然而,有些研究发现,瘤胃中普雷沃氏菌属的相对丰度与奶牛产奶性能及饲料利用率呈负相关[52-53]。这些试验中不一致的结果可能是由于普雷沃氏菌属具有多种功能各异的菌株,及微生物间的相互作用模式不同有关[54]。未来应将研究重点放在这些影响饲料转化效率的微生物上,利用宏基因组测序技术、菌株筛选和功能测试等手段,深入了解关键菌株如何调控奶牛的饲料利用效率。
本试验分析不同饲料利用效率奶牛瘤胃优势微生物与瘤胃发酵参数相关性,结果显示,大部分普雷沃氏菌种和UBA2810及其菌种相对丰度与乙酸/丙酸呈显著负相关,与丙酸的摩尔比例呈显著正相关。UBA2810属于琥珀酸弧菌科,琥珀酸弧菌代谢产物为琥珀酸,利用琥珀酸产丙酸[55-56]。Xue等[56]和Zhu等[57]的研究表明,普雷沃氏菌属和琥珀酸弧菌属的相对丰度与丙酸浓度呈正相关,这与本试验结果一致。Limivicinus相对丰度与丙酸浓度和丙酸摩尔比例呈负相关,与乙酸摩尔比例呈正相关。该菌属在低饲料利用效率组奶牛中相对丰度更高,这与本试验中高饲料利用效率组奶牛的丙酸浓度和丙酸摩尔比例更高,低饲料利用效率组奶牛的乙酸摩尔比例更高的结果对应。通过相关性结果,进一步验证了高饲料利用效率组奶牛瘤胃更趋向于丙酸发酵,进而对饲料利用效率产生积极的影响。

4 结论

高饲料利用效率奶牛瘤胃中普雷沃氏菌属、琥珀酸弧菌属和毛螺菌科成员菌种的相对丰度较高,提高了丙酸和丁酸的浓度,使瘤胃倾向于丙酸型发酵,能为奶牛提供更多的能量和营养物质,且高饲料利用效率奶牛的产甲烷菌属的相对丰度更低,改善了瘤胃发酵和生产性能。
[1]
ABECIA L, MARTÍNEZ-FERNANDEZ G, WADDAMS K, et al. Analysis of the rumen microbiome and metabolome to study the effect of an antimethanogenic treatment applied in early life of kid goats[J]. Frontiers in Microbiology, 2018, 9:2227.

DOI PMID

[2]
ZHANG J, SHI H T, WANG Y J, et al. Effect of limit-fed diets with different forage to concentrate ratios on fecal bacterial and archaeal community composition in Holstein heifers[J]. Frontiers in Microbiology, 2018, 9:976.

DOI PMID

[3]
PICKERING N K, ODDY V H, BASARAB J, et al. Animal board invited review:genetic possibilities to reduce enteric methane emissions from ruminants[J]. Animal, 2015, 9(9):1431-1440.

[4]
GUAN L L, NKRUMAH J D, BASARAB J A, et al. Linkage of microbial ecology to phenotype:correlation of rumen microbial ecology to cattle’s feed efficiency[J]. FEMS Microbiology Letters, 2008, 288(1):85-91.

[5]
HERNANDEZ-SANABRIA E, GOONEWARDENE L A, WANG Z Q, et al. Impact of feed efficiency and diet on adaptive variations in the bacterial community in the rumen fluid of cattle[J]. Applied and Environmental Microbiology, 2012, 78(4):1203-1214.

[6]
SHABAT S K B, SASSON G, DORON-FAIGENBOIM A, et al. Specific microbiome-dependent mechanisms underlie the energy harvest efficiency of ruminants[J]. The ISME Journal, 2016, 10(12):2958-2972.

[7]
谢云怡. 不同饲料效率奶牛的瘤胃微生物功能和乳腺氨基酸代谢差异及其机制研究[D].博士学位论文. 杭州: 浙江大学, 2021.

XIE Y Y. Variations in ruminal microbial function and mammary gland amino acid metabolism in dairy cows with different feed efficiency[D].Ph.D.Thesis. Hangzhou: Zhejiang University, 2021. (in Chinese)

[8]
XUE M Y, XIE Y Y, ZHONG Y F, et al. Integrated meta-omics reveals new ruminal microbial features associated with feed efficiency in dairy cattle[J]. Microbiome, 2022, 10(1):32.

[9]
户林其, 沈宜钊, 李妍, 等. 饲粮中棕榈酸与油酸的比例对泌乳早期奶牛瘤胃发酵参数与菌群组成的影响[J]. 动物营养学报, 2022, 34(8):5094-5106.

DOI

HU L Q, SHEN Y Z, LI Y, et al. Effects of dietary palmitic acid to oleic acid ratio on rumen fermentation parameters and bacterial community composition of early lactation dairy cows[J]. Chinese Journal of Animal Nutrition, 2022, 34(8):5094-5106. (in Chinese)

DOI

[10]
WEATHERBURN M W. Phenol-hypochlorite reaction for determination of ammonia[J]. Analytical Chemistry, 1967, 39(8):971-974.

[11]
ERWIN E S, MARCO G J, EMERY E M. Volatile fatty acid analyses of blood and rumen fluid by gas chromatography[J]. Journal of Dairy Science, 1961, 44(9):1768-1771.

[12]
MAKKAR H P, SHARMA O P, DAWRA R K, et al. Simple determination of microbial protein in rumen liquor[J]. Journal of Dairy Science, 1982, 65(11):2170-2173.

PMID

[13]
李子南, 李大彪, 邢媛媛, 等. 葡萄糖对奶牛乳腺上皮细胞增殖、葡萄糖摄取和酪蛋白合成相关基因表达的影响[J]. 动物营养学报, 2020, 32(6):2896-2903.

DOI

LI Z N, LI D B, XING Y Y, et al. Effects of glucose on cell proliferation,glucose uptake and expression of casein synthesis-related genes in mammary epithelial cells of dairy cows[J]. Chinese Journal of Animal Nutrition, 2020, 32(6):2896-2903. (in Chinese)

[14]
WICKRAMASINGHE S, RINCON G, ISLAS-TREJO A, et al. Transcriptional profiling of bovine milk using RNA sequencing[J]. BMC Genomics, 2012, 13(1):45.

[15]
薛茗元. 瘤胃微生态影响奶牛乳蛋白产量的作用机制[D].博士学位论文. 杭州: 浙江大学, 2020.

XUE M Y. Mechanism of rumen microbiome involved in milk protein yield in lactating dairy cows[D].Ph.D.Thesis. Hangzhou: Zhejiang University, 2020. (in Chinese)

[16]
NEHME MARINHO M, ZIMPEL R, PEÑAGARICANO F, et al. Assessing feed efficiency in early and mid lactation and its associations with performance and health in Holstein cows[J]. Journal of Dairy Science, 2021, 104(5):5493-5507.

[17]
LOMBARDI M C, NETO H D C D, COELHO S G, et al. Evaluation of ingestive behavior,ruminal and blood parameters,performance,and thermography as a phenotypic divergence markers of residual feed intake in rearing dairy heifers[J]. Animals, 2022, 12(3):331.

[18]
ZHANG X X, WANG W M, MO F T, et al. Association of residual feed intake with growth and slaughtering performance,blood metabolism,and body composition in growing lambs[J]. Scientific Reports, 2017, 7(1):12681.

[19]
CLAUSS M, STEWART M, PRICE E, et al. The effect of feed intake on digesta passage,digestive organ fill and mass,and digesta dry matter content in sheep (Ovis aries):flexibility in digestion but not in water reabsorption[J]. Small Ruminant Research, 2016, 138:12-19.

[20]
XI Y M, WU F, ZHAO D Q, et al. Biological mechanisms related to differences in residual feed intake in dairy cows[J]. Animal, 2016, 10(8):1311-1318.

DOI PMID

[21]
LIU C, LIU C P, GONG X Q, et al. PPARγ-AGPAT6 signaling mediates acetate-induced mTORC1 activation and milk fat synthesis in mammary epithelial cells of dairy cows[J]. The Journal of Dairy Research, 2022, 89(4):410-412.

[22]
ARNDT C, POWELL J M, AGUERRE M J, et al. Feed conversion efficiency in dairy cows:repeatability,variation in digestion and metabolism of energy and nitrogen,and ruminal methanogens[J]. Journal of Dairy Science, 2015, 98(6):3938-3950.

[23]
刘桂瑞, 李正洪, 李兆林. 影响牛奶乳蛋白含量的因素及调控措施[J]. 当代畜禽养殖业, 2012(5):18-22.

LIU G R, LI Z H, LI Z L. Factors affecting milk protein content of milk and regulatory measures[J]. Modern Livestock and Poultry Breeding Industry, 2012(5):18-22. (in Chinese)

[24]
MCGOVERN E, MCGEE M, BYRNE C J, et al. Investigation into the effect of divergent feed efficiency phenotype on the bovine rumen microbiota across diet and breed[J]. Scientific Reports, 2020, 10(1):15317.

DOI PMID

[25]
POPE P B, SMITH W, DENMAN S E, et al. Isolation of succinivibrionaceae implicated in low methane emissions from tammar wallabies[J]. Science, 2011, 333(6042):646-648.

DOI PMID

[26]
SUEN G, WEIMER P J, STEVENSON D M, et al. The complete genome sequence of Fibrobacter succinogenes S85 reveals a cellulolytic and metabolic specialist[J]. PLoS One, 2011, 6(4):e18814.

[27]
牛化欣, 胡宗福, 常杰, 等. 瘤胃微生物对反刍动物饲料效率和甲烷排放的影响及其营养调控研究进展[J]. 中国畜牧杂志, 2020, 56(8):50-56,62.

NIU H X, HU Z F, CHANG J, et al. Advances in effect of rumen microbiome on efficiency and methane emission of ruminants and its nutritional regulation[J]. Chinese Journal of Animal Science, 2020, 56(8):50-56,62. (in Chinese)

[28]
ZHANG J, SHI H T, WANG Y J, et al. Effect of dietary forage to concentrate ratios on dynamic profile changes and interactions of ruminal microbiota and metabolites in Holstein heifers[J]. Frontiers in Microbiology, 2017, 8:2206.

DOI PMID

[29]
张振威, 朱明霞, 王长法. 异位酸影响反刍动物瘤胃代谢和生产性能的研究进展[J]. 动物营养学报, 2022, 34(3):1408-1415.

DOI

ZHANG Z W, ZHU M X, WANG C F. Effects of isoacids on ruminal metabolism and performance in rumiants:a review[J]. Chinese Journal of Animal Nutrition, 2022, 34(3):1408-1415. (in Chinese)

[30]
PAZ H A, HALES K E, WELLS J E, et al. Rumen bacterial community structure impacts feed efficiency in beef cattle[J]. Journal of Animal Science, 2018, 96(3):1045-1058.

DOI PMID

[31]
LI F Y, GUAN L L. Metatranscriptomic profiling reveals linkages between the active rumen microbiome and feed efficiency in beef cattle[J]. Applied and Environmental Microbiology, 2017, 83(9):e00061-17.

[32]
马万浩, 梁玉生, 张智安, 等. 不同剩余采食量的湖羊生长性能和消化道微生物多样性差异的研究[J]. 动物营养学报, 2019, 31(9):4080-4091.

DOI

MA W H, LIANG Y S, ZHANG Z A, et al. Difference of growth performance and digestive tract microbial diversity of Hu sheep with different residual feed intake[J]. Chinese Journal of Animal Nutrition, 2019, 31(9):4080-4091. (in Chinese)

[33]
和东迁. 不同RFI滩羊瘤胃微生物多样性及代谢组学研究[D].硕士学位论文. 银川: 宁夏大学, 2022.

HE D Q. Study on rumen microbial diversity and metabolizable energy of rumen fluid of different RFI Tan sheep[D].Master’s Thesis. Yinchuan: Ningxia University, 2022. (in Chinese)

[34]
CHAUMEIL P A, MUSSIG A J, HUGENHOLTZ P, et al. GTDB-Tk:a toolkit to classify genomes with the Genome Taxonomy Database[J]. Bioinformatics, 2019, 36(6):1925-1927.

[35]
KONIKOFF T, GOPHNA U. Oscillospira:a central,enigmatic component of the human gut microbiota[J]. Trends in Microbiology, 2016, 24(7):523-524.

[36]
MOROTOMI M, NAGAI F, SAKON H, et al. Paraprevotella clara gen.nov.,sp.nov.and Paraprevotella xylaniphila sp.nov.,members of the family ‘Prevotellaceae’ isolated from human faeces[J]. International Journal of Systematic and Evolutionary Microbiology, 2009, 59(8):1895-1900.

[37]
SU X L, TIAN Q, ZHANG J, et al. Acetobacteroides hydrogenigenes gen.nov.,sp.nov.,an anaerobic hydrogen-producing bacterium in the family Rikenellaceae isolated from a reed swamp[J]. International Journal of Systematic and Evolutionary Microbiology, 2014, 64(Pt 9):2986-2991.

[38]
RIUS A G, KITTELMANN S, MACDONALD K A, et al. Nitrogen metabolism and rumen microbial enumeration in lactating cows with divergent residual feed intake fed high-digestibility pasture[J]. Journal of Dairy Science, 2012, 95(9):5024-5034.

DOI PMID

[39]
WANG S M, CHEN L, HE M Z, et al. Different rearing conditions alter gut microbiota composition and host physiology in Shaoxing ducks[J]. Scientific Reports, 2018, 8(1):7387.

[40]
LI F Y, LI C X, CHEN Y H, et al. Host genetics influence the rumen microbiota and heritable rumen microbial features associate with feed efficiency in cattle[J]. Microbiome, 2019, 7(1):92.

DOI PMID

[41]
ZHANG Y K, ZHANG X X, LI F D, et al. Characterization of the rumen microbiota and its relationship with residual feed intake in sheep[J]. Animal, 2021, 15(3):100161.

[42]
DEHORITY B A, GRUBB J A. Characterization of the predominant bacteria occurring in the rumen of goats (Capra hircus)[J]. Applied and Environmental Microbiology, 1977, 33(5):1030-1036.

DOI PMID

[43]
MIZRAHI I, WALLACE R J, MORAÏS S. The rumen microbiome: balancing food security and environmental impacts[J]. Nature Reviews Microbiology, 2021, 19(9):553-566.

DOI PMID

[44]
BIDDLE A, STEWART L, BLANCHARD J, et al. Untangling the genetic basis of fibrolytic specialization by Lachnospiraceae and Ruminococcaceae in diverse gut communities[J]. Diversity, 2013, 5(3):627-640.

[45]
LIU Y, WU H, CHEN W B, et al. Rumen microbiome and metabolome of high and low residual feed intake Angus heifers[J]. Frontiers in Veterinary Science, 2022, 9:812861.

[46]
MCGOVERN E, KENNY D A, MCCABE M S, et al. 16S rRNA sequencing reveals relationship between potent cellulolytic genera and feed efficiency in the rumen of bulls[J]. Frontiers in Microbiology, 2018, 9:1842.

DOI PMID

[47]
DELGADO B, BACH A, GUASCH I, et al. Whole rumen metagenome sequencing allows classifying and predicting feed efficiency and intake levels in cattle[J]. Scientific Reports, 2019, 9(1):11.

DOI PMID

[48]
LOPES D R G, DE SOUZA DUARTE M, LA REAU A J, et al. Assessing the relationship between the rumen microbiota and feed efficiency in Nellore steers[J]. Journal of Animal Science and Biotechnology, 2021, 12(1):79.

DOI PMID

[49]
XIE Y Y, SUN H Z, XUE M Y, et al. Metagenomics reveals differences in microbial composition and metabolic functions in the rumen of dairy cows with different residual feed intake[J]. Animal Microbiome, 2022, 4(1):19.

DOI PMID

[50]
CARBERRY C A, WATERS S M, KENNY D A, et al. Rumen methanogenic genotypes differ in abundance according to host residual feed intake phenotype and diet type[J]. Applied and Environmental Microbiology, 2014, 80(2):586-594.

DOI PMID

[51]
INDUGU N, VECCHIARELLI B, BAKER L D, et al. Comparison of rumen bacterial communities in dairy herds of different production[J]. BMC Microbiology, 2017, 17:190.

DOI PMID

[52]
JAMI E, WHITE B A, MIZRAHI I. Potential role of the bovine rumen microbiome in modulating milk composition and feed efficiency[J]. PLoS One, 2014, 9(1):e85423.

[53]
JEWELL K A, MCCORMICK C A, ODT C L, et al. Ruminal bacterial community composition in dairy cows is dynamic over the course of two lactations and correlates with feed efficiency[J]. Applied and Environmental Microbiology, 2015, 81(14):4697-4710.

DOI PMID

[54]
王砀砀. 奶山羊消化道微生物特征及其长期影响胃肠道发酵和生产性能的机制[D].博士学位论文. 杨凌: 西北农林科技大学, 2023.

WANG D D. The digestive tract microbiome features of dairy goats and their long-term effects on gastrointestinal fermentation and production performance[D].Ph.D.Thesis. Yangling: Northwest A & F University, 2023. (in Chinese)

[55]
XING B S, HAN Y L, WANG X C, et al. Persistent action of cow rumen microorganisms in enhancing biodegradation of wheat straw by rumen fermentation[J]. The Science of the Total Environment, 2020, 715:136529.

[56]
XUE M Y, SUN H Z, WU X H, et al. Assessment of rumen bacteria in dairy cows with varied milk protein yield[J]. Journal of Dairy Science, 2019, 102(6):5031-5041.

DOI PMID

[57]
ZHU Z G, KRISTENSEN L, DIFFORD G F, et al. Changes in rumen bacterial and archaeal communities over the transition period in primiparous Holstein dairy cows[J]. Journal of Dairy Science, 2018, 101(11):9847-9862.

DOI PMID

文章导航

/