研究论文

补饲富有机硒罗伊氏乳杆菌活菌对公牦牛血清代谢物的影响

  • 刘贵芳 , 1 ,
  • 刘明 2 ,
  • 武俊喜 3 ,
  • 曹婷婷 3 ,
  • 林文文 2 ,
  • 田发益 , 2, *
展开
  • 1 西藏自治区农牧科学院畜牧兽医研究所,拉萨 850000
  • 2 西藏农牧学院动物科学学院,林芝 860000
  • 3 中国科学院地理科学与资源研究所,北京 100101
* 田发益,教授,硕士生导师,E-mail:

刘贵芳(1995—),女,甘肃卓尼人,研究实习员,硕士,主要从事高原动物健康养殖及动物疫病方面的研究。E-mail:

Copy editor: 田艳明

收稿日期: 2024-11-26

  网络出版日期: 2025-07-12

基金资助

中国科学院战略性先导科技专项子课题及西藏中央引导地方资金配套项目-西藏高寒区生态草牧业科技示范(XDA26050501)

中国科学院战略性先导科技专项子课题及西藏中央引导地方资金配套项目-西藏高寒区生态草牧业科技示范(XZ202301YD0012C)

拉萨市区域科技协同创新专项-饲草料营养评价及牦牛专用草产品开发与利用技术研究与示范(QYXTZX-LS2022-01-04)

Effects of Supplementary Feeding of Live Lactobacillus reuteri Rich in Organic Selenium on Serum Metabolites of Male Yaks

  • LIU Guifang , 1 ,
  • LIU Ming 2 ,
  • WU Junxi 3 ,
  • CAO Tingting 3 ,
  • LIN Wenwen 2 ,
  • TIAN Fayi , 2, *
Expand
  • 1 Institute of Animal Husbandry and Veterinary Medicine, Tibet Academy of Agriculture and Animal Husbandry Science,Lhasa 850000, China
  • 2 College of Animal Science, Tibet Agriculture & Animal Husbandry University,Nyingchi 860000, China
  • 3 Institute of Geographic Sciences and Natural Resources Research,Chinese Academy of Sciences, Beijing 100101, China
* professor, E-mail:

Received date: 2024-11-26

  Online published: 2025-07-12

摘要

本试验旨在研究补饲富有机硒罗伊氏乳杆菌(Lactobacillus reuteri)活菌对公牦牛血清代谢物的影响。试验通过藏猪源罗伊氏乳杆菌进行无机硒转化,制备成富有机硒罗伊氏乳杆菌活菌菌剂。然后,选取体重(106~191 kg)和年龄(12~24月龄)接近的公牦牛8头,随机分为2组,分别为对照组和试验组,每组4头。对照组牦牛饲草不喷洒富有机硒罗伊氏乳杆菌活菌菌剂,试验组牦牛每天每头将80 mL富有机硒罗伊氏乳杆菌活菌菌剂(含18.5 mg有机硒)喷洒于饲草进行补饲。试验期60 d,试验结束后,分离牦牛血清并进行广靶代谢分析。结果表明:1)本试验在公牦牛血清中共检测出1 475种物质,其中试验组血清中有34种代谢物含量极显著高于对照组(P≤0.01),血清中有112种代谢物含量显著高于对照组(P≤0.05)。2)在上述差异代谢物中,不仅包括有利于牦牛生长的必需营养成分,如氨基酸、寡肽、脂肪酸、醇和植物源性生物碱等,还包括来源于饲草、消化道微生物和肝脏代谢中特殊产生的磷脂酰胆碱(16:0/2:0)、对甲酚硫酸、壬酸、1-(氨甲基)环己烷乙酸酯、贝那普利、薰衣草素、蕈状海鞘素G、双醋瑞因、球菌素、京尼平、氯苯那胺、双嘧啶、布林佐胺、尼司酮和利培酮等有利于维持内环境稳态的活性成分。3)与对照组相比,试验组公牦牛肌肉和内脏器官硒含量均极显著提高(P≤0.01)。综上所述,补饲富有机硒罗伊氏乳杆菌活菌不仅有利于提高公牦牛消化代谢和饲草利用率,还可预防牦牛消化道疾病,同时富硒肉又提高了牦牛肉产品的附加值。

本文引用格式

刘贵芳 , 刘明 , 武俊喜 , 曹婷婷 , 林文文 , 田发益 . 补饲富有机硒罗伊氏乳杆菌活菌对公牦牛血清代谢物的影响[J]. 动物营养学报, 2025 , 37(7) : 4620 -4633 . DOI: 10.12418/CJAN2025.378

Abstract

This experiment aimed to investigate the effects of supplementary feeding of live Lactobacillus reuteri rich in organic selenium on serum metabolites of male yaks. The experiment carried out the inorganic selenium conversion through Lactobacillus reuteri from Tibetan pigs to prepare live bacterial agents rich in organic selenium. Then, 8 male yaks with similar body weight (106 to 191 kg) and age (12 to 24 months) were selected and randomly divided into 2 groups, namely the control group and the experimental group, with 4 yaks in each group. In the control group, the forage for yaks was not sprayed with live Lactobacillus reuteri bacterial agent rich in organic selenium; in the experimental group, 80 mL of live Lactobacillus reuteri bacterial agent rich in organic selenium (containing 18.5 mg of organic selenium) was sprayed on the forage for each yak every day for supplementary feeding. The experimental period was 60 days. After the experiment, the yak serum was isolated and the widely targeted metabolomics analysis was conducted. The results showed as follows: 1) a total of 1 475 substances were detected in the serum of male yaks in this experiment. Among them, the contents of 34 metabolites in serum in the experimental group were extremely significantly higher than those in the control group (P≤0.01), and the contents of 112 metabolites in serum were significantly higher than those in the control group (P≤0.05). 2) Among the above-mentioned differential metabolites, there were not only essential nutrients beneficial to yak growth, such as amino acids, oligopeptides, fatty acids, alcohols and plant-based alkaloids, etc., but also included substances specially produced from forage, digestive tract microorganisms and liver metabolism, such as phosphatidylcholine (16:0/2:0), p-cresol sulfuric acid, nonanoic acid, 1-(aminomethyl) cyclohexane acetate, benazepril, lavendustin, eudistomin G, diacerein, nodularin, genipin, dichlorphenamide, bispyribac, brinzolamide, farnesylacetone and risperidone, etc., which were beneficial active ingredients for maintaining the homeostasis of the internal environment. 3) Compared with the control group, the selenium content in the muscles and internal organs of male yaks in the experimental group was extremely significantly increased (P≤0.01). In conclusion, the supplementary feeding of live Lactobacillus reuteri rich in organic selenium not only helps improve the digestive metabolism and forage utilization rate of male yaks, but also prevents digestive tract diseases of yaks. At the same time, selenium-enriched meat increases the added value of yak meat products.

据统计,我国西藏地区2023年末牲畜存栏总数为1 721.39万头(只、匹),其中牛710.41万头、羊940.18万只。同时,每年因疾病或自然原因导致死亡的牦牛数量占比为5%~10%,每年损失35亿元以上。牦牛的生长周期长,平均出栏时间在7年左右,严重制约了西藏牦牛产业的发展。开发一种可以改善牦牛消化道微环境,预防或降低牦牛发病率,特别是降低犊牛因腹泻而引起的高死亡率,同时也能提高牦牛肉品质的益生菌剂,是本研究的立足点。
硒(selenium)是畜体重要的痕量元素,但是无机硒除了毒性极强外,通过饲粮补饲时还极难被家畜吸收,或被肝脏截留后通过胆汁再次排出体外。硒在有机体内主要以硒蛋白(selenoprotein)的形式体现,并通过硒蛋白发挥相应功能。同时,硒还与多糖、氨基酸、核酸以及类脂(磷脂)等结合,以其衍生物形式存在于家畜体内。目前共发现硒蛋白有30种,分别为谷胱甘肽过氧化物酶(glutathione peroxidase,GPx)系8种(GPx1~GPx8)、碘化甲状腺原氨酸脱碘酶(iodothyronine deiodinase,DIO)系3种(DIO1~DIO3)、硫氧还蛋白还原酶(thioredoxin reductase,TXNRD)系3种(TXNRD1~TXNRD3)、硒磷酸合成酶(selenophosphate synthetase,SEPHS)2种(SEPHS1和SEPHS2)、蛋氨酸硫氧化物还原酶(methionine sulfoxide reductase,Msr)系2种(MsrB1和MsrB2)以及硒蛋白系(F/H/I/K/M/N/O/P/S/T/V/W)12种[1]。在这些硒蛋白中,已明确其生理功能的有25种。
本研究利用罗伊氏乳杆菌(Lactobacillus reuteri)对无机硒(亚硒酸钠)进行富集转化,利用转化的富有机硒罗伊氏乳杆菌活菌补饲牦牛,避免了无机硒的毒副作用和无机硒被家畜肝脏截留等问题,使有机硒顺利转化为牦牛肌肉硒。在反刍动物家畜体内,硒的代谢比单胃家畜更为复杂,涉及到宏大的前胃微生物对硒的代谢以及这些硒化合物吸收利用后在畜体内的二次代谢过程。因此,本研究通过广靶代谢组学法,对试验组和对照组牦牛血清中小分子物质含量的差异性进行分析,旨在掌握有机硒对牦牛代谢的主要影响因子,为有机硒在牦牛上的应用提供参考。

1 材料与方法

1.1 改良MRS培养基

MRS培养基包括:大豆蛋白胨114.67 g、酵母浸粉38.22 g、麦芽糖5.06 g、磷酸氢二钾2.00 g、葡萄糖10.13 g、红糖20.25 g、乙酸钠7.50 g、蜂蜜5.00 mL、七水硫酸镁0.098 g、柠檬酸氢二铵2.00 g、硫酸锰0.03 g、吐温-80 1.00 mL、琼脂粉(液体培养基可省去)15.00 g以及无菌蒸馏水1 000 mL。配制好后,121 ℃高压灭菌30 min,最后向液体培养基中添加亚硒酸钠(用灭菌烧杯称取亚硒酸钠,使液体培养基终浓度达100 μg/mL)。

1.2 富有机硒罗伊氏乳杆菌活菌的制备

罗伊氏乳杆菌由西藏农牧学院动物营养与饲料实验室从藏猪消化道内分离并通过基因鉴定。富有机硒罗伊氏乳杆菌通过改良MRS液体培养基培养48 h,1 110×g离心,使益生菌增殖达到6.08 g/L,菌体硒含量达3.7 mg/g(湿重),随即采用磷酸盐缓冲液(PBS)洗脱剩余无机硒及其他杂质2次。培养结束的罗伊氏乳杆菌采用菌体浓硫酸消煮法和3,3'-二氨基联苯胺(3,3'-diaminobenzidine,3,3'-DAB)分光光度法分析菌体硒的含量[2],将5 g菌体(湿重)加80 mL保存液制成富有机硒罗伊氏乳杆菌活菌产品(以瓶计)。

1.3 仪器及试剂

试剂:亚硒酸钠购自阿法埃莎(中国)化学有限公司,乙二胺四乙酸二钠(EDTA-2Na)购自成都市联合化工试剂研究所,3,3'-DAB购自国药集团化学试剂有限公司,甲苯和甲酸购自成都市科隆化学品有限公司,氢氧化钠购自成都金山化学试剂有限公司。以上试剂均为分析纯。
仪器:UV-5200型紫外分光光度计(上海元析仪器有限公司),SF-CJ垂直单向流双人净化工作台(郑州南北仪器设备有限公司),TOMY SX-500自动灭菌锅(日本Tomy Digital Biology公司),Eppendorf 5810R高速冷冻离心机[(艾本德(上海)国际贸易有限公司]。
数据采集仪器系统主要包括超高效液相色谱(ultra performance liquid chromatography,UPLC)仪(ExionLC AD,美国SCIEX公司)、四级杆飞行时间质谱(quadrupole-time-of-flight mass spectrometry,QTOF MS)仪(TripleTOF 6600,美国SCIEX公司)和串联质谱(tandem mass spectrometry,MS/MS)仪(QTRAP®,美国SCIEX公司)。

1.4 试验方法

1.4.1 富有机硒罗伊氏乳杆菌活菌的饲喂方法

本试验的动物护理和研究方案已获得西藏农牧学院实验动物伦理委员会批准(批准号:TAAHU-2024-138)。动物饲养试验在拉萨市林周净牧农牧发展有限公司牦牛养殖场进行。选取体重(106~191 kg)和年龄(12~24月龄)接近的公牦牛8头,随机分为2组,分别为对照组和试验组,每组4头。试验初期公牦牛信息见表1
表1 试验初期公牦牛信息

Table 1 Information of male yaks at the beginning of the experiment

项目 Items 编号 Number 性别 Sex 年龄 Age 体重 Weight/kg


对照组 Control group
mkq01 1.00 106.00
mkq02 1.00 113.00
mkq03 1.00 178.00
mkq04 2.00 191.00


试验组 Experimental group
msq01 2.00 160.00
msq02 2.00 183.50
msq03 1.50 126.00
msq04 2.00 114.00
对照组牦牛饲草不喷洒富有机硒罗伊氏乳杆菌活菌菌剂,试验组牦牛每天每头将1瓶富有机硒罗伊氏乳杆菌活菌菌剂喷洒于饲草进行补饲。牦牛粗饲料包括燕麦干草和玉米青贮,每头牛约3 kg/d;精饲料包括玉米、豆粕及微量元素预混料,每头牛约2 kg/d。试验期60 d。

1.4.2 血清代谢物分析

试验结束后,颈静脉抽取公牦牛全血,分离血清后送至北京中博华兴科技有限公司,利用UPLC仪进行物质成分及丰度测定,采用广靶代谢数据平台进行统计分析。
T3色谱条件如下:1)色谱柱,Waters ACQUITY UPLC HSS T3 C18,1.8 μm,2.1 mm×100 mm。2)流动相,A相为超纯水(0.1%的甲酸),B相为乙腈(0.1%的甲酸)。3)流速:0.4 mL/min;柱温:40 ℃;进样量:2 μL(广泛靶向检测)、5 μL(非靶向检测)。
亲水相互作用色谱(hydrophilic interaction chromatography,HILIC)色谱条件如下:1)色谱柱,Waters ACQUITY UPLC BEH HILIC Column,1.7 μm,1 mm×100 mm。2)流动相A:20 mmol/L甲酸铵,30%水,10%甲醇,60%乙腈,用氨水调节pH至10.6;流动相B:20 mmol/L甲酸铵,60%水,40%乙腈,用氨水调节pH至10.6。3)仪器柱温:40 ℃;流速:0.4 mL/min;进样量:2 μL(广泛靶向检测)、5 μL(非靶向检测)。

1.4.3 肌肉和内脏器官硒含量测定

试验结束后,对试验牦牛进行屠宰取样,委托拉萨中检综合产品检验检测有限公司测定牦牛肌肉和内脏器官硒含量。

1.5 数据统计分析

试验数据采用SPSS 25软件进行t检验分析,结果数据采用“平均值±标准差”形式表示,P≤0.01表示差异极显著,P≤0.05表示差异显著。

2 结果与分析

2.1 公牦牛血清代谢物差异分析

本试验在公牦牛血清中共检测出1 475种物质,其中66种代谢物含量在2组间差异极显著(P≤0.01),148种代谢物含量在2组间差异显著(P≤0.05)。
表2可知,试验组公牦牛血清中有34种代谢物含量极显著高于对照组(P≤0.01)。其中,补饲富有机硒罗伊氏乳杆菌活菌对公牦牛血清中含量影响较大的代谢物有磷脂酰胆碱(16:0/2:0)、消化道微生物产生的对甲酚硫酸、长链脂肪酸壬酸、镇静物质1-(氨甲基)环己烷乙酸酯、血管紧张素的拮抗剂贝那普利、抗坏血酸、抗炎和镇定成分薰衣草素、病毒增殖抑制成分蕈状海鞘素G以及大量的氨基酸、寡肽、脂肪酸、醇和植物源性生物碱等物质。试验组公牦牛血清中的这些成分,基本来自于消化道饲草和微生物的分解产物,对牦牛物质沉积及吸收代谢具有正向促进作用,部分物质对细菌和病毒的增殖具有良好的抑制效果。
表2 试验组公牦牛血清中含量极显著高于对照组的代谢物(P≤0.01)

Table 2 Serum metabolite contents of male yaks in experimental group which were extremely significantly higher than those in control group (P≤0.01)cps

代谢物 Metabolites 对照组 Control group 试验组 Experimental group PP-value
磷脂酰胆碱(16:0/2:0) C26H52NO8P 318 158 940.8±9 188 971.6 416 138 414.8±44 477 673.9 0.010
对甲酚硫酸 C7H8O4S 67 717 205.0±20 923 486.9 182 212 036.9±47 451 427.8 0.009
壬酸 C9H16O4 57 699 815.5±22 552 735.6 147 502 172.8±32 226 090.6 0.007
1-(氨甲基)环己烷乙酸酯 C9H17NO2 28 298 857.2±9 123 989.5 116 538 644.6±33 287 776.4 0.004
贝那普利 C24H28N2O5 15 698 383.0±1 313 092.4 19 755 492.1±1 229 473.3 0.008
抗坏血酸 C6H8O6 6 917 069.5±983 053.9 11 398 713.5±1 354 681.1 0.004
薰衣草素 C14H13NO5 4 323 232.3±1 331 645.8 10 611 509.5±2 206 985.3 0.006
蕈状海鞘素G C15H12BrN3 1 970 805.8±652 965.9 9 022 627.3±2 300 905.4 0.002
脯氨酸-羟脯氨酸 C10H16N2O4 4 188 410.9±711 421.2 7 149 458.2±956 291.3 0.005
3-(3'-甲硫基)丙基苹果酸 C8H14O5S 2 280 078.6±268 862.2 6 039 026.4±1 207 722.1 0.002
1,2-二油酰-sn-甘油-3-磷脂酰胆碱 C44H84NO8P 2 708 548.8±805 037.1 5 630 612.8±609 808.1 0.002
L-精氨酰-L-谷氨酰胺-L-亮氨酸 L-Arg-L-Gln-L-Leu 1 330 635.7±105 482.8 2 037 556.4±295 064.5 0.008
(±)-6-甲基-5-庚烯基-2-醇 C8H16O 1 385 234.4±205 273.6 1 927 993.5±107 323.9 0.007
槲皮素 C21H20O11 829 528.3±106 781.9 1 466 886.5±259 787.2 0.008
2,5-二甲基-2,3-二氢呋喃-3-酮 C6H8O2 842 290.8±60 891.9 1 182 869.3±117 123.2 0.004
N-苯基乙酰甘氨酸 C10H11NO3 246 634.9±76 598.4 1 031 861.0±325 905.0 0.007
2-甲基马尿酸 C10H11NO3 246 634.9±76 598.4 1 031 861.0±325 905.0 0.007
3-甲基马尿酸 C10H11NO3 250 958.7±87 905.8 1 018 935.5±285 326.1 0.004
4-甲基马尿酸 C10H11NO3 250 958.7±87 905.8 1 018 935.5±285 326.1 0.004
2-戊基-3-苯基-2-丙烯醛 C14H18O 665 387.9±80 796.7 899 438.0±58 114.7 0.007
6-[1-(2H-1,3-苯并间二氧杂环戊烯-5-基)-3-(6-羟基-4-甲氧基-1-苯并
呋喃-5-基)-1,3-二氧代丙-2-基]-3,4,5-三羟基氧烷-2-羧酸 C25H22O13
535 945.2±64 806.7 872 262.1±26 721.8 <0.001
L-异亮氨酸-L-脯氨酸-L-异亮氨酸 L-Ile-L-Pro-L-Ile 348 545.0±101 805.3 717 334.1±111 746.6 0.006
脯氨酸-谷氨酸 Pro-Glu 395 548.4±67 504.0 669 276.1±56 449.3 0.002
L-焦谷氨酸 L-pyroglutamic acid 482 959.8±23 051.4 612 240.7±51 965.8 0.008
5,6,7-三甲氧基香豆素 C12H12O5 180 432.9±36 220.4 602 916.5±192 122.6 0.010
伪麻黄碱 C10H15NO 316 573.4±78 056.9 591 231.7±48 063.1 0.002
2,3-二巯基琥珀酸 C4H6O4S2 270 864.0±49 988.5 497 942.1±86 626.9 0.008
天冬氨酸 Asp 210 457.4±42 280.2 486 211.7±108 249.7 0.006
(2S)-2-氨基-3-[4-羟基-3-(磺氧基)苯基]-2-甲基丙酸 C10H13NO7S 158 336.9±36 225.1 370 720.6±72 341.4 0.004
L-谷氨酰-L-谷氨酰胺 L-Glu-L-Gln 114 995.8±6 655.6 162 257.0±11 878.4 0.001
环(脯氨酸-苯丙氨酸) Cyclo (Pro-Phe) 72 796.0±11 309.2 123 696.0±18 549.0 0.007
环(L-苯丙氨酸-L-脯氨酸) Cyclo (L-Phe-L-Pro) 72 796.0±11 309.2 123 696.0±18 549.0 0.007
十四烷酸 C14H28O2 59 227.4±4 310.6 74 912.3±5 260.9 0.007
姜黄素 C21H20O6 24 225.3±2 698.2 31 919.9±1 995.1 0.007

表中数值相同的物质为同分异构体,在液相中无法进行判定,由测定数据库生成。表3同。

Substances with the same values in the table are isomers and cannot be determined in the liquid phase, and they are generated by the determination database. The same as Table 3.

表3可知,试验组公牦牛血清中有112种代谢物含量显著高于对照组(P≤0.05),其中,营养物质包括长链和短链脂肪酸、氨基酸和寡肽、醇以及植物源性生物碱。试验组公牦牛血清中黄曲霉毒素M1含量显著高于对照组(P≤0.05),主要源于在喷洒有机硒过程中,长期没有清理饲槽而由黄曲霉产生。试验组公牦牛血清中抑制白细胞介素-1和促进软骨生成的双醋瑞因含量显著高于对照组(P≤0.05)。与对照组相比,试验组公牦牛血清中来自于消化道抑制病原细菌生长的球菌素含量显著提高(P≤0.05),具有蛋白质调节、抗肿瘤和抗炎症的京尼平含量显著提高(P≤0.05),抗组织胺类成分氯苯那胺、菌源性抑菌成分双嘧啶、血管收缩成分布林佐胺、抗过敏成分法尼司酮以及多巴胺D2和5-羟色胺2受体拮抗剂利培酮含量显著提高(P≤0.05)。试验组中公牦牛血清中含量显著升高的这些代谢物大部分来自于瘤胃微生物代谢产物。
表3 试验组公牦牛血清中含量显著高于对照组的代谢物(P≤0.05)

Table 3 Serum metabolite contents of male yaks in experimental group which were significantly higher than those in control group (P≤0.05)cps

代谢物 Metabolites 对照组 Control group 试验组 Experimental group PP-value
棕榈油酸 C16H30O2 25 847 032.3±14 314 237.1 54 795 893.8±14 029 164.0 0.046
2-邻苯二甲酸-乙基己酯 C24H38O4 31 594 589.9±6 076 520.4 53 096 095.0±13 160 036.4 0.042
对甲酚葡糖苷酸 C13H16O7 8 134 360.5±2 204 990.5 42 803 936.1±16 300 870.7 0.011
溶血磷脂酰乙醇胺(0:0/18:2) C23H44NO7P 23 044 551.6±2 872 085.4 32 922 577.1±4 310 605.3 0.016
溶血磷脂酰乙醇胺(18:2/0:0) C23H44NO7P 23 044 551.6±2 872 085.4 32 922 577.1±4 310 605.3 0.016
烟酰胺 C6H6N2O 11 655 372.3±5 321 840.7 22 331 874.9±2 542 663.9 0.020
3-吲哚羧酸葡糖苷酸 C15H15NO8 4 700 777.7±1 429 309.9 20 771 252.7±11 215 652.1 0.049
2-{[羟基(6-羟基-1-氧代-1H-异色烯-3-基)亚甲基]氨基}乙酸 C12H9NO6 8 769 986.8±1 307 791.4 12 051 888.0±1 330 060.8 0.023
半胱氨酸-酪氨酸 Cys-Tyr 2 069 208.2±781 536.2 11 033 906.6±4 781 311.3 0.018
六甘醇 C12H26O7 4 123 074.2±763 787.9 6 671 632.3±1 364 135.4 0.030
曲酸 C6H6O4 5 426 175.9±134 477.1 5 772 313.6±179 691.8 0.037
3-氨基苯甲酰胺 C7H8N2O 3 327 431.2±846 859.4 5 577 658.0±1 349 966.3 0.050
2-甲基鸟苷 C11H15N5O5 2 323 209.8±525 665.2 3 844 543.4±894 706.4 0.044
7-甲基鸟苷 C11H15N5O5 2 323 209.8±525 665.2 3 844 543.4±894 706.4 0.044
1-甲基鸟苷 C11H15N5O5 2 323 209.8±525 665.2 3 844 543.4±894 706.4 0.044
2-(甲酰胺基)-N1-(5-磷酸-D-核糖基)乙脒 C6H12N3O8P 2 455 337.0±442 565.0 3 460 017.8±521 125.6 0.044
庚乙二烯乙二醇 C14H30O8 1 911 794.9±303 514.7 3 451 360.1±946 382.3 0.036
双醋瑞因 C19H12O8 431 538.8±106 883.4 3 295 212.1±1 507 885.8 0.017
溶血磷脂酰乙醇胺(18:0/0:0) C23H48NO7P 2 209 648.6±136 653.7 3 160 182.2±630 842.9 0.043
水杨酸乙酯 C9H10O3 2 608 227.2±217 472.2 3 063 450.4±117 601.0 0.019
乙硫酰胺 C8H10N2S 2 608 227.2±217 472.2 3 063 450.4±117 601.0 0.019
L-谷氨酸 L-Glu 1 839 109.0±40 926.6 2 654 539.6±411 153.1 0.014
L-苏式-3-甲基天冬氨酸 C5H9NO4 1 839 109.0±40 926.6 2 654 539.6±411 153.1 0.014
京尼平 C11H14O5 553 585.6±166 312.7 2 504 987.1±904 531.2 0.010
三缩四乙二醇 C8H18O5 1 347 297.2±426 602.7 2 435 152.2±553 166.5 0.036
棘苷 C28H32O15 144 052.5±68 493.0 2 373 646.6±1 166 004.7 0.016
4-羟甲基苯磺酸盐 C7H8O4S 1 126 652.4±157 117.9 2 300 056.4±601 056.5 0.017
溶血磷脂酰胆碱(18:0/0:0) C26H54NO7P 1 041 643.7±391 523.4 2 055 500.3±446 158.1 0.025
4-羧基-2-羟基黏康酸半醛 C7H6O6 1 107 414.7±241 741.1 1 983 721.4±466 322.2 0.028
N-苯乙酰基-L-谷氨酰胺 Phenylacetyl-L-Glu 278 088.8±170 687.0 1 499 494.6±557 593.4 0.011
球菌素 C41H60N8O10 600 806.6±139 160.8 1 327 319.7±425 769.8 0.031
肉碱 C14H25NO4 870 110.0±61 503.7 1 061 615.8±71 460.7 0.013
1-萘酚-D-葡萄糖醛酸苷 C16H16O7 471 586.1±98 320.1 1 050 403.6±268 244.1 0.013
10-羟基硬脂酸 C18H36O3 824 879.3±85 058.2 1 032 198.4±69 615.7 0.017
氯苯那胺 C6H6Cl2N2O4S2 513 900.1±125 552.2 994 061.7±297 155.6 0.042
1-脱氧戊酸 C15H22O2 696 342.9±64 525.9 935 463.7±135 282.7 0.033
4-羟基-2,2',4',6'-四氯联苯 C12H6Cl4O 447 108.8±127 034.6 908 850.5±241 944.8 0.026
双嘧啶 C19H18N4O8 135 297.2±68 664.0 892 681.9±393 293.2 0.017
1-甲基肌苷 C11H14N4O5 456 658.8±166 169.5 858 839.3±101 899.3 0.012
氨来诺 C16H14N2O4 394 899.9±161 011.5 858 514.8±238 846.2 0.032
黄曲霉毒素M1 C17H12O7 251 625.3±59 873.0 858 236.8±283 152.7 0.011
N-乙酰基-α-D-葡糖胺1-磷酸 C8H16NO9P 296 264.5±162 270.8 846 070.6±255 570.7 0.020
N-甲基-D-天冬氨酸 C5H9NO4 472 507.6±38 959.0 845 563.6±205 809.1 0.022
谷氨酰-赖氨酸 Glu-Lys 598 968.4±71 325.7 774 734.7±67 981.5 0.021
苏糖酸 C4H8O5 465 675.4±79 967.2 680 131.7±80 811.3 0.017
乙唑胺 C9H10N2O3S2 424 067.3±34 528.2 609 765.5±102 976.1 0.025
L-丝氨酸-L-脯氨酸 L-Ser-L-Pro 359 043.3±42 274.5 599 647.4±146 006.8 0.034
尼氟酸 C13H9F3N2O2 276 195.2±51 282.9 584 885.3±183 269.1 0.031
布林佐胺 C12H21N3O5S3 236 652.0±132 855.7 569 300.8±156 753.4 0.031
3,8-二羟基-1-甲基蒽醌-2-羧酸 C16H10O6 383 261.3±52 332.4 568 292.0±84 864.2 0.018
(R)-3-羟基十四酸 C14H28O3 440 145.1±19 623.4 558 209.5±58 924.4 0.017
鞘氨醇(d18:1) C18H37NO2 373 413.1±26 849.3 536 516.6±92 202.2 0.026
2-{[3,4-二羟基-5-(3,4,5-三羟基苯甲酰氧基)苯基](羟基)亚甲基}
氨基乙酸 C16H13NO10
328 642.1±86 209.0 535 884.2±88 379.2 0.027
曲古他汀A C17H22N2O3 123 349.4±35 600.2 498 092.8±186 865.7 0.014
2,4-二氯-N-丙基苯甲酰胺 C10H11Cl2NO 135 095.7±84 108.8 480 263.2±168 542.4 0.019
法尼司酮 C18H30O 266 855.9±34 857.5 477 354.0±129 685.0 0.035
十六醛 C16H32O 266 855.9±34 857.5 477 354.0±129 685.0 0.035
Tenovin-6 C25H34N4O2S 269 712.0±12 947.9 475 228.3±125 672.1 0.030
苯诺沙克 C11H11Cl2NO2 129 140.9±48 822.6 452 904.6±185 689.6 0.027
1-棕榈酰基-2-油酰基-sn-甘油-3-磷酸乙醇胺 C39H76NO8P 255 364.0±40 754.6 446 713.5±118 593.7 0.038
1,3-二环己基脲 C13H24N2O 325 571.3±8 265.3 355 141.6±17 885.7 0.041
E-64 C15H27N5O5 152 243.4±32 896.6 334 922.9±84 043.4 0.013
磺胺嘧啶 C8H20O5P2S2 190 815.5±18 261.7 311 280.8±67 243.6 0.024
3,6-二吡喃葡萄糖基-5,7-二羟基-4'-甲氧基黄酮 C28H32O15 42 367.3±18 327.3 298 125.5±140 596.0 0.020
亚氨基二乙酸 C4H7NO4 179 707.9±13 765.3 293 531.7±76 355.4 0.044
溶血磷脂酰乙醇胺(18:1/0:0) C26H52NO7P 166 505.7±46 093.4 266 894.7±47 763.1 0.040
溶血磷脂酰乙醇胺(0:0/18:1) C26H52NO7P 166 505.7±46 093.4 266 894.7±47 763.1 0.040
1-O-十六烷基-2-硫代乙酰基-2-脱氧-sn-甘油基-3-
磷酰胆碱 C26H54NO6PS
166 505.7±46 093.4 266 894.7±47 763.1 0.040
13-甲基肉豆蔻酸 C15H30O2 143 073.9±23 069.7 229 927.9±33 759.8 0.010
长春唑啉M2 C11H11Cl2NO2 83 609.9±45 320.0 205 038.8±69 883.6 0.045
胡椒酸 C8H6O4 176 897.9±10 732.3 204 938.0±15 151.8 0.040
(S)-2-甲基-3,4,5,6-四氢嘧啶-4-羧酸 C6H10N2O2 113 559.9±26 193.0 199 696.1±43 792.9 0.027
表没食子儿茶素 C15H14O7 37 363.6±11 823.3 194 248.8±82 841.0 0.018
利培酮 C23H27FN4O2 84 503.6±21 378.0 185 458.3±46 440.6 0.014
油酰乙醇酰胺 C20H39NO2 90 260.7±19 242.7 175 015.5±56 515.0 0.049
3-[5,7-二羟基-2-(4-羟基-3-甲氧基苯基)-4-氧代-3,4-二氢-2H-1-
苯并吡喃-8-基]-5,7-二羟基-2-(4-羟基苯基)-3,4-二氢-
2H-1-苯并吡喃-4-酮 C31H24O11
42 866.2±16 895.0 159 254.2±52 419.8 0.011
5-氨基咪唑核糖核苷酸 C8H14N3O7P 102 503.3±9 230.8 149 628.4±30 783.7 0.044
藜芦碱 C32H49NO9 77 752.2±6 328.1 149 206.0±49 590.4 0.048
L-色氨酸-L-丝氨酸 L-Trp-L-Ser 94 620.6±9 599.0 134 313.9±19 731.1 0.020
半乳糖醇 C6H14O6 96 385.5±18 304.9 126 023.4±8 883.0 0.045
山梨糖醇 C6H14O6 96 385.5±18 304.9 126 023.4±8 883.0 0.045
甘露醇 C6H14O6 96 385.5±18 304.9 126 023.4±8 883.0 0.045
环(苯丙氨酸-谷氨酸) Cyclo (Phe-Pro) 63 791.6±7 402.7 121 189.5±33 125.8 0.026
L-甘氨酸-L-异亮氨酸 L-Gly-L-Ile 732 87.6±13 075.0 116 442.5±19 463.8 0.019
γ-L-谷氨酸-L-谷氨酰胺γ-L-Glu-L-Gln 69 584.9±6 549.1 110 540.0±24 465.1 0.031
β-柠檬苷 C30H40O2 85 383.9±9 894.9 108 460.0±8 260.8 0.021
N-乙二醇神经氨酸 C11H19NO10 61 959.3±10 433.7 106 894.7±29 100.5 0.045
[(3S)-3-氨基-4-[(3-己基苯基)氨基]-4-氧代丁基]磷酸 C16H27N2O4P 60 652.6±4 988.6 9 9145.7±17 478.1 0.010
磺胺苯甲酰胺 C13H12N2O3S 535 64.0±11 231.5 88 148.8±20 902.6 0.045
海柯配基 C27H42O4 40 402.5±23 466.7 86 698.0±20 048.2 0.041
芍药苷-3-葡萄糖苷 C22H23 O 11 + 27 147.4±13 482.2 84 281.2±34 255.5 0.036
桂竹香苷 C11H21NO11S3 29 795.7±11 489.7 80 385.5±29 990.4 0.034
5-溴-3-环己基-2-羟基苯甲酰胺 C13H16BrNO2 41 106.7±11 259.8 73 179.4±12 784.7 0.017
2,4-二硝基苯甲醚 C7H6N2O5 31 408.0±6 403.6 46 803.8±5 729.3 0.021
环(L-亮氨酸-L-脯氨酸) Cyclo (L-Pro-L-Leu) 11 129.7±3 921.6 21 118.7±5 375.7 0.041
(2R)-1-O-β-D-吡喃半乳糖基甘油 C9H18O8 6 713.7±3 820.2 13 635.6±1 099.8 0.024

2.2 公牦牛血清代谢物有效性检验

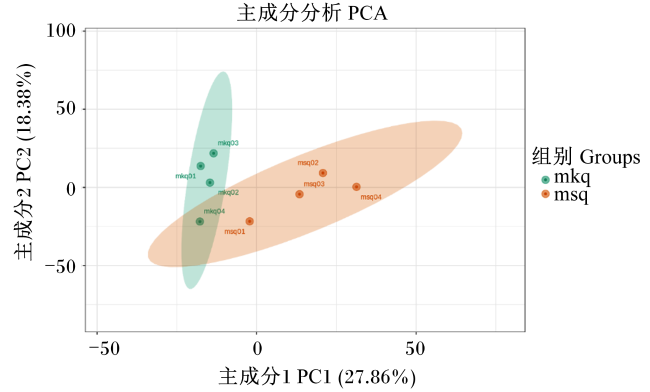
通过对本试验测定的公牦牛血清中的1 475种小分子物质进行主成分分析(PCA)发现(图1),主成分1(PC1)和主成分2(PC2)2个主成分贡献率共为46.24%,影响试验组和对照组的2个主成分因子,可预测1个为罗伊氏乳杆菌活菌,另1个为有机硒。同时,试验组4头牦牛间血清代谢物齐性较为分散,代谢物含量可能受补饲富有机硒罗伊氏乳杆菌活菌剂量和个体差异性影响;对照组4头牦牛间血清代谢物齐性较好,总体说明补饲富有机硒罗伊氏乳杆菌活菌对公牦牛的养分代谢具有显著的影响。
图1 公牦牛血清代谢物PCA

mkq为对照组,msq为试验组。下图同。

Fig.1 PCA of serum metabolites of male yaks

mkq mean control group, and msq mean experimental group. The same as below.

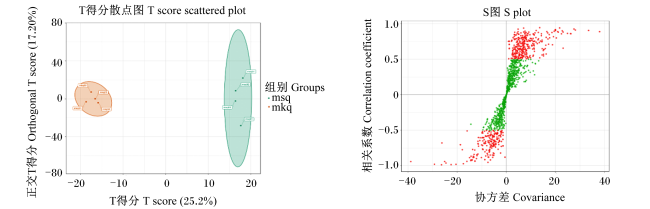
图2所示,正交偏最小二乘法判别分析(OPLS-DA)结果显示,T得分散点图中T得分(T score)对数据的解释度为25.2%,说明试验组和对照组间公牦牛血清代谢物差异较为显著;正交T得分(orthogonal T score)对数据的解释度为17.2%,由此可知,对照组公牦牛血清代谢物齐性较高,而试验组齐性较差。在OPLS-DA S图中,横坐标表示主成分与代谢物的协方差,纵坐标表示主成分与代谢物的相关系数;红色代谢物的灭点(vanishing point,VP)值大于等于1,说明对试验的重要性具有关键作用,绿色代谢物的VP值小于等于1,贡献较小。
图2 OPLS-DA T得分散点图(左)和S图(右)

Fig.2 OPLS-DA T score scattered plot (left) and S plot (right)

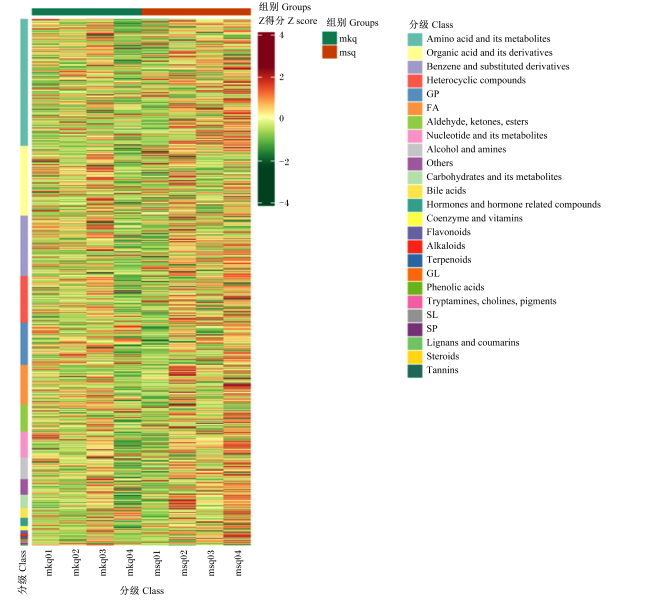
图3所示,聚类分析结果表明,补饲富有机硒罗伊氏乳杆菌活菌对公牦牛血清中含量影响较大的代谢物依次为氨基酸及其代谢产物、有机酸及其衍生物、苯和取代衍生物、杂环化合物、甘油磷脂类、脂肪酰类、醛和酮及酯类、核苷酸及其代谢物、醇和胺类、未知成分(其他)、碳水化合物及其代谢物、胆汁酸、激素和激素相关化合物、辅酶和维生素、黄酮类、生物碱类、萜类、糖脂类、酚酸类、色氨类和胆碱及色素、鞘脂类、鞘磷脂、木脂素和香豆素类、类固醇及鞣酸类。
图3 公牦牛血清代谢物Z得分聚类图

Amino acid and its metabolites:氨基酸及其代谢物;Organic acid and its derivatives:有机酸及其衍生物;Benzene and substituted derivatives:苯和取代衍生物;Heterocyclic compounds:杂环化合物;GP:甘油磷脂类 glycerophospholipids;FA:脂肪酰类 fatty acyls;Aldehyde, ketones, esters:醛和酮及酯类;Nucleotide and its metabolites:核苷酸及其代谢物;Alcohol and amines:醇和胺类;Others:其他;Carbohydrates and its metabolites:碳水化合物及其代谢物;Bile acids:胆汁酸;Hormones and hormone related compounds:激素和激素相关化合物;Coenzyme and vitamins:辅酶和维生素;Flavonoids:黄酮类;Alkaloids:生物碱类;Terpenoids:萜类;GL:糖脂类 glycolipids;Phenolic acids:酚酸类;Tryptamines, cholines, pigments:色氨类和胆碱及色素;SL:鞘脂类 sphingolipids;SP:鞘磷脂 sphingomyelin;Lignans and coumarins:木脂素和香豆素类;Steroids:类固醇;Tannins:鞣酸类。

Fig.3 Cluster map of Z scores of serum metabolites of male yaks

2.3 公牦牛肌肉和内脏器官硒含量

表4可知,试验组公牦牛肌肉硒含量为0.19~0.28 mg/kg,内脏器官硒含量为0.41~1.89 mg/kg,均达到《富硒农产品》(GH/T 1135—2017)中肉类的标准(0.15~0.50 mg/kg)。同时,与对照组相比,试验组公牦牛肌肉和内脏器官硒含量均极显著提高(P≤0.01)。
表4 公牦牛肌肉和内脏器官硒含量

Table 4 Selenium contents in muscle and internal organs of male yaksmg/kg

项目
Items
对照组
Control group
试验组
Experimental group
P
P-value
肌肉 Muscle
臂头肌 Brachiocephalic muscle 0.01±0.00 0.28±0.02 <0.001
臂三头肌 Triceps brachii muscle 0.01±0.01 0.22±0.05 <0.001
背腰最长肌 Longissimus dorsalis lumbois muscle 0.07±0.01 0.19±0.04 <0.001
股四头肌 Quadriceps femoris muscle 0.00±0.00 0.19±0.03 <0.001
内脏器官 Internal organs
肝脏 Liver 0.16±0.02 1.89±1.59 0.003
肾脏 Kidney 0.07±0.01 1.51±1.04 0.007
脾脏 Spleen 0.04±0.01 0.67±0.42 <0.001
心脏 Heart 0.02±0.00 0.41±0.06 <0.001

3 讨论

罗伊氏乳杆菌是一种在消化道中栖息的益生菌,不仅能调节瘤胃微环境,该菌产生的罗伊氏菌素作为一种3-羟基丙醛的单体物质,还能有效地抑制革兰氏阴性菌、阳性菌、酵母菌、霉菌和原生动物的生长,且不会产生耐药性。硒是畜体内一种重要的微量元素,在已知的30种硒蛋白中发挥着重要的作用,同时也是维持部分多糖、核酸和类脂(磷脂)结构的重要元素。
本试验中,与对照组相比,试验组公牦牛血清中含量极显著提高的主要物质为磷脂酰胆碱(16:0/2:0),其是由1个16碳饱和脂肪酸和1个2碳饱和脂肪酸构成的磷脂质,主要结构是1种磷脂酰胆碱,由1个甘油骨架、2个16饱和脂肪酸链、1个磷酸基和1个胆碱(或其他氨基酸)的头基构成,也是细胞膜和脂质代谢的运输载体。一般细菌中不含磷脂酰胆碱,而原虫细胞膜中含量丰富。这说明补饲富有机硒罗伊氏乳杆菌活菌有助于瘤胃大部分原虫的增殖,原虫的增殖可促进纤维素的机械分解及对瘤胃细菌的吞噬作用,有利于菌体蛋白的转化,增强牦牛机体免疫力,促进蛋白质和脂肪代谢的平衡调节,进而提高牦牛的生长速度和肉品质。对甲酚硫酸在心血管系统中可刺激血管内皮微粒子释放,诱导血管内皮细胞损伤[3],是一种具有副作用的代谢产物。壬酸是一种含有9个碳原子的天然饱和脂肪酸,可显著减少细菌移位,增强抗菌活性,并显著增加β-防御素1和β-防御素2的分泌[4],有效保护消化道黏膜外层益生菌占位,预防牦牛消化道致病菌在肠黏膜上的黏附。1-(氨甲基)环己烷乙酸酯(又名加巴喷丁脂),是γ-氨基丁酸(GABA)的衍生物,可增加机体GABA的合成,并抑制其降解,促进葡萄糖代谢和乙酰胆碱合成,加速血氨的转化及合成代谢,促进生长激素分泌,是一类抗惊厥的镇定物质,对家畜物质的合成代谢具有重要作用[5]。贝那普利在肝脏内水解后具备活性,是血管紧张素转换酶抑制剂,能有效抑制血管紧张素Ⅰ向血管紧张素Ⅱ的转换,使血管舒张,从而使得醛固酮分泌减少,抑制缓激肽的降解,极大降低心脏的负荷[6],有利于高原家畜抵抗高原缺氧,对牦牛抗逆环境具有重要作用。薰衣草素是一种香草素化合物,分为A、B、C和D等多种衍生物,参与细胞因子信号途径传导,对细胞增殖和凋亡进行调节,抑制酪氨酸激酶;薰衣草素具有清除自由基和抗炎性等功能,可抑制病原微生物的增殖;同时,由于其较强的抗炎活性,对抗肿瘤活性方面效果明显;薰衣草素可能来自于牧草,如鼠尾草属植物,也可能由肠道微生物合成[7]。蕈状海鞘素G早期是从海鞘中分离出来的一种活性成分,对蕈状海鞘素U衍生物的抗菌活性研究发现,通过改性的蕈状海鞘素,抗菌活性得到大幅度提高;同时,研究发现,蕈状海鞘素对病毒也有较佳的抑制效果[8],此类物质可能是瘤胃微生物代谢的产物,对其他异类微生物起着抑制作用。此外,在分析结果中,与对照组相比,试验组公牦牛血清中如黄酮类物质槲皮素、氨基酸及其衍生物以及脂肪酸及其衍生物含量都具有较大幅度提高,这些物质不仅能清除自由基,还能够促进牦牛吸收代谢和饲草的转化。
试验组中公牦牛血清中含量显著高于对照组的代谢物较多,具有生物效价和药理作用的物质也较丰富。双醋瑞因学名为二乙酰大黄酸,是一种蒽醌类化合物。研究发现,双醋瑞因灌胃大鼠后能够减轻胰岛β细胞的空泡化,改善胰岛素的分泌缺陷,提高血清胰岛素含量,起到降低血糖的作用;双醋瑞因也可降低血清中总胆固醇和甘油三酯含量,同时降低血清白细胞介素-1β、白细胞介素-6、白细胞介素-12和肿瘤坏死因子-α含量,提高血清白细胞介素-10含量;此外,双醋瑞因还可提高谷胱甘肽、血红素加氧酶-1、过氧化氢酶等含量或活性,加强机体抗氧化能力[9-10]。试验组公牦牛血清中检测出含量较高的上述物质,表明补饲富有机硒罗伊氏乳杆菌活菌对牦牛能量转化、清除自由基及维持机体的正常生理功能具有积极作用。
球菌素来自于消化道益生菌,亦或部分来自于补饲的罗伊氏乳杆菌,可抑制大多数革兰氏阳性菌,并对芽孢杆菌的孢子有强烈的抑制作用。球菌素还可以穿孔靶细胞,抑制肽聚糖合成,通过与核糖体或转运RNA相互作用抑制蛋白质的合成及直接降解致病菌的DNA[11]。此外,Ⅱ类肠球菌素可诱导致病菌胞膜透化,引起菌膜的分解[12],是消化道微环境中微生物相互调控的重要物质之一,可降低牦牛消化道发病率。京尼平苷是一类环烯醚苷类化合物,具有抗肿瘤、抗心肌功能障碍以及保护神经元纤维损伤和坏死的作用,同时还可激活谷胱甘肽过氧化物酶4(glutathione peroxidase 4,GPX4)[13]。GPX4也是一种硒蛋白,主要存在于肝脏和红细胞内,能够催化谷胱甘肽参与过氧化反应,清除细胞代谢过程中产生的大量过氧化物和羟基自由基。由此可知,补饲富有机硒罗伊氏乳杆菌活菌可提高公牦牛血清中此类物质的含量,对保护神经元活性、清除自由基和维持心脏的正常功能具有重要作用。
氯苯那胺是一种组胺H1受体拮抗剂,是扑尔敏的前体成分,可抑制H1受体介导的组胺作用,对牦牛炎症反应具有良好的药理效果。布林佐胺是一类β肾上腺素阻滞剂代谢产物,能够选择性地与β肾上腺素受体结合,拮抗神经递质和儿茶酚胺对β受体的激动作用。肾上腺素受体有3种类型,即β1受体、β2受体和β3受体,其中β1受体位于可激动心肌的肌纤维膜上,β2受体位于使支气管扩张、血管舒张、内脏平滑肌松弛的平滑肌膜上,β3受体主要存在于脂肪细胞上,可以加速体内脂肪分解。而布林佐胺可阻断这些受体,使心肌收缩舒缓,平滑肌纤维收缩,间接地对抗因高原引起的各类水肿病和缺氧等症状。Berreur-Bonnenfant等[14]研究发现,法尼司酮具有激素样性质,可通过分子修饰转录过程间接影响蛋白质合成代谢;同时,法尼司酮也是维生素E合成的中间体。利培酮是一种具有独特性质的单胺能拮抗剂,与5-羟色胺能的5-羟色胺2受体和多巴胺受体有很高的亲和力,还可以与肾上腺素受体结合,但不与胆碱能受体结合,其主要作用是抑制脑神经的过度兴奋,但不影响平滑肌和腺体的兴奋[15],对高原家畜能量保存和机体抵抗不利环境具有正向作用。
此外,与对照组相比,试验组公牦牛血清中含量显著提高的其他细菌代谢产物,如4-羧基-2-羟基黏康酸半醛是消化道大肠杆菌和假单胞菌的代谢物。黏康酸是一些微生物本身的代谢物质,如不动杆菌属、假单胞菌属和鞘氨醇杆菌属等均可产生,但这些微生物只有在以某些芳香族化合物如苯甲酸或邻苯二酚为碳源的情况下才能代谢产生黏康酸[16],此类物质也是细菌间相互调控的一类重要菌体代谢物质。马尿酸为苯酸和甘氨酸结合作用下产生的一种酰基甘氨酸,是一种正常的尿液成分,来自于食物中芳香化合物的代谢产物,由苯甲酸在肝脏代谢产生或肠道细菌直接分解而来。
本研究利用罗伊氏乳杆菌对无机硒进行富集转化,利用转化的富有机硒罗伊氏乳杆菌活菌补饲牦牛,结果表明,试验组公牦牛肌肉和内脏器官硒含量均极显著高于对照组,且试验组公牦牛肌肉和内脏器官硒含量均达到富硒肉类的标准,为富硒牦牛肉的生产提供了依据。

4 结论

富有机硒罗伊氏乳杆菌不仅能产生罗伊氏菌素,抑制其他致病菌的增殖,同时也对牦牛的血清代谢物产生较大影响。基于血清代谢物分析表明,补饲富有机硒罗伊氏乳杆菌活菌对牦牛物质转换、维持组织器官的正常功能、清除自由基、保护肠黏膜益生菌占位、提高瘤胃原虫活性以及对抗致病性病原菌的增殖具有良好的效果,能有效预防牦牛消化道疾病,促进牦牛健康生长,同时有助于富硒肉的生产。
[1]
AVERY J C, HOFFMANN P R. Selenium,selenoproteins,and immunity[J]. Nutrients, 2018, 10(9):1203.

[2]
陈永旭, 孔庆辉, 穷达卓玛, 等. 罗伊氏乳杆菌富集有机硒转化条件的研究[J]. 中国草食动物科学, 2024, 44(1):8-12.

CHEN Y X, KONG Q H, QIONGDA Z, et al. Research on the transformation conditions for enriching organic selenium by Lactobacillus reuteri[J]. China Herbivore Science, 2024, 44(1):8-12. (in Chinese)

[3]
GROSS P, MASSY Z A, HENAUT L, et al. Para-cresyl sulfate acutely impairs vascular reactivity and induces vascular remodeling[J]. Journal of Cellular Physiology, 2015, 230(12):2927-2935.

DOI PMID

[4]
RUSSAK E M, BEDNARCZYK E M. Impact of deuterium substitution on the pharmacokinetics of pharmaceuticals[J]. Annals of Pharmacotherapy, 2019, 53(2):211-216.

DOI PMID

[5]
屈丽虹, 雷世雄, 闫辉, 等. 乌司他丁联合加巴喷丁及芬太尼对神经病理性疼痛患者的镇痛效果及炎症因子的影响[J]. 海南医学, 2022, 33(21):2741-2744.

QU L H, LEI S X, YAN H, et al. Effects of ulinastatin combined with gabapentin and fentanyl on analgesic effect and inflammatory factor level in patients with neuropathic pain[J]. Hainan Medical Journal, 2022, 33(21):2741-2744. (in Chinese)

[6]
高欣彤, 杨慧慧. 肾衰宁颗粒联合贝那普利治疗糖尿病肾病对患者血糖及氧化应激指标的影响[J]. 海南医学, 2020, 31(23):3039-3042.

GAO X T, YANG H H. Effects of Shenshuaining granules combined with benazepril in the treatment of diabetic nephropathy and its effect on blood glucose and oxidative stress indexes[J]. Hainan Medical Journal, 2020, 31(23):3039-3042. (in Chinese)

[7]
潘妍, 范丽莉, 孙海霞, 等. 独活属植物香豆素类化合物及其生物活性研究进展[J]. 中国农学通报, 2023, 39(29):14-23.

DOI

PAN Y, FAN L L, SUN H X, et al. Coumarin compounds of genus Heracleum L. and their bioactivity:a review[J]. Chinese Agricultural Science Bulletin, 2023, 39(29):14-23. (in Chinese)

[8]
DAI J K, DAN W J, LI N, et al. Computer-aided drug discovery:novel 3,9-disubstituted eudistomin U derivatives as potent antibacterial agents[J]. European Journal of Medicinal Chemistry, 2018, 157:333-338.

[9]
SAMAHA M M, HELAL M G, EL-SHERBINY M, et al. Diacerein versus adipoRon as adiponectin modulators in experimentally-induced end-stage type 2 diabetes mellitus in rats[J]. Environmental Toxicology and Pharmacology, 2022, 90:103806.

[10]
WU C, BIAN Y Q, LU B J, et al. Rhubarb free anthraquinones improved mice nonalcoholic fatty liver disease by inhibiting NLRP3 inflammasome[J]. Journal of Translational Medicine, 2022, 20(1):294.

DOI PMID

[11]
李冰瑶, 郑茵, 王涓, 等. 细菌素的抑菌机制及其在食品工业中应用进展[J]. 现代食品科技, 2023, 39(11):323-332.

LI B Y, ZHENG Y, WANG J, et al. Advances in antibacterial modes of action of bacteriocin and food industry applications[J]. Modern Food Science & Technology, 2023, 39(11):323-332. (in Chinese)

[12]
李萍, 龙春昊, 赵轩, 等. Ⅱ类细菌素的生物合成及其在食品领域的应用[J]. 中国食品学报, 2021, 21(10):269-286.

LI P, LONG C H, ZHAO X, et al. Biosynthesis of class Ⅱ bacteriocin and its application in food preservation[J]. Journal of Chinese Institute of Food Science and Technology, 2021, 21(10):269-286. (in Chinese)

[13]
LIU L P, WU Q, CHEN Y P, et al. Updated pharmacological effects,molecular mechanisms,and therapeutic potential of natural product geniposide[J]. Molecules, 2022, 27(10):3319.

[14]
BERREUR-BONNENFANT J, LAWRENCE F. Comparative effect of farnesylacetone on macromolecular synthesis in gonads of crustaceans[J]. General and Comparative Endocrinology, 1984, 54(3):462-468.

[15]
刘丽红. 阿立哌唑的药理作用及治疗精神分裂症的疗效观察[J]. 中国继续医学教育, 2015, 7(9):216-217.

LIU L H. Observation of the curative effect of pharmacological effects and treatment of mental aripiprazole schizophrenia[J]. China Continuing Medical Education, 2015, 7(9):216-217. (in Chinese)

[16]
王杰. 代谢工程改造大肠杆菌合成粘康酸的研究[D].硕士学位论文. 无锡: 江南大学, 2015.

WANG J. Metabolic engineering of muconic acid production in Escherichia coli[D].Master’s Thesis. Wuxi: Jiangnan University, 2015. (in Chinese)

文章导航

/