研究论文

牦牛与荷斯坦奶牛乳源外泌体对脂多糖致牛乳腺上皮细胞损伤的治疗效果评价

  • 汪燕霞 , 1, 2 ,
  • 王靖雷 1, 2 ,
  • 何玉龙 3 ,
  • 任昱春 4 ,
  • 王萌 1, 2 ,
  • 于天军 5 ,
  • 许瑞华 1, 2 ,
  • 张瑞 1, 2 ,
  • 潘阳阳 , 1, 2, * ,
  • 徐庚全 , 1, 2, *
展开
  • 1 甘肃农业大学动物医学院,兰州 730070
  • 2 甘肃省家畜胚胎工程技术创新中心,兰州 730070
  • 3 酒泉市畜牧兽医总站,酒泉 735000
  • 4 中央农业广播电视学校天祝县分校,武威 733000
  • 5 肃北蒙古族自治县畜牧兽医技术服务中心,酒泉 735000
* 潘阳阳,副教授,硕士生导师,E-mail: ;
徐庚全,研究员,硕士生导师,E-mail:

汪燕霞(1997—),女,甘肃甘谷人,硕士研究生,从事兽医内科学与产科学研究。E-mail:

Copy editor: 菅景颖

收稿日期: 2024-11-11

  网络出版日期: 2025-07-12

基金资助

甘肃省重点研发计划-农业领域(24YFNA015)

甘肃省科技计划项目科技特派员(基地)专项(23CXNF0008)

Evaluation of Treatment Effect of Yak and Holstein Cow Milk-Derived Exosomes Against Lipopolysaccharide-Induced Bovine Mammary Epithelial Cell Injury

  • WANG Yanxia , 1, 2 ,
  • WANG Jinglei 1, 2 ,
  • HE Yulong 3 ,
  • REN Yuchun 4 ,
  • WANG Meng 1, 2 ,
  • YU Tianjun 5 ,
  • XU Ruihua 1, 2 ,
  • ZHANG Rui 1, 2 ,
  • PAN Yangyang , 1, 2, * ,
  • XU Gengquan , 1, 2, *
Expand
  • 1 College of Veterinary Medical, Gansu Agricultural University, Lanzhou 730070, China
  • 2 Gansu Innovation Centre for Livestock Embryo Engineering and Technology, Lanzhou 730070, China
  • 3 Jiuquan City Animal Husbandry and Veterinary Station, Jiuquan 735000, China
  • 4 Central Agricultural Radio and Television School Tianzhu County Branch, Wuwei 733000, China
  • 5 Subei Mongolian Autonomous County Animal Husbandry and Veterinary Technology Service Center, Jiuquan 735000, China
* PAN Yangyang, associate professor, E-mail: ;
XU Gengquan, professor, E-mail:

Received date: 2024-11-11

  Online published: 2025-07-12

摘要

本试验旨在探究同浓度的荷斯坦奶牛乳源外泌体(Cow-Exo)和牦牛乳源外泌体(Yak-Exo)对脂多糖(LPS)诱导的牛乳腺上皮细胞损伤的治疗效果。从同体积的牦牛和荷斯坦奶牛乳样中分离出外泌体,以同浓度的Cow-Exo和Yak-Exo作用于LPS诱导的乳腺上皮细胞(MAC-T细胞)体外炎症反应模型,通过CCK-8法检测乳源外泌体对细胞活力的影响,通过实时荧光定量PCR(RT-qPCR)、蛋白质免疫印迹(WB)、免疫荧光(IF)法检测乳源外泌体与LPS联合作用对细胞炎性因子、核因子-κB(NF-κB)信号通路相关因子和凋亡因子表达的影响。结果显示:1)对于从同体积牦牛和荷斯坦奶牛乳样中分离的外泌体,Yak-Exo中蛋白浓度显著高于Cow-Exo(P<0.05);2)MAC-T细胞对2种乳源外泌体的摄入量在24 h时显著大于6和12 h时(P<0.05);3)10 μg/mL LPS显著提高了MAC-T细胞中促炎因子白细胞介素-1β(IL-1β)、白细胞介素-6(IL-6)和白细胞介素-8(IL-8)的mRNA相对表达量(P<0.05),可用于建立炎症反应模型;4)Cow-Exo和Yak-Exo均可显著降低LPS诱导的MAC-T细胞中NF-κB信号通路相关因子P-p65/p65的蛋白相对表达量和p65的mRNA相对表达量(P<0.05),同时显著降低MAC-T细胞中促炎因子肿瘤坏死因子-α(TNF-α)和IL-1β以及凋亡因子半胱氨酸天冬氨酸蛋白酶-3(Caspase-3)和B细胞淋巴瘤-2关联X蛋白(Bax)/B细胞淋巴瘤-2(Bcl-2)的蛋白和mRNA相对表达量(P<0.05),并显著升高抗炎因子白细胞介素-10(IL-10)的蛋白相对表达量(P<0.05),且Yak-Exo的作用效果比Cow-Exo更显著(P<0.05)。综上所述,Yak-Exo和Cow-Exo均可通过降低促炎因子的分泌、抑制NF-κB信号通路相关因子和凋亡因子的表达缓解LPS诱导的奶牛乳腺上皮细胞炎症反应,且Yak-Exo抵抗炎症反应的效果显著优于Cow-Exo。

本文引用格式

汪燕霞 , 王靖雷 , 何玉龙 , 任昱春 , 王萌 , 于天军 , 许瑞华 , 张瑞 , 潘阳阳 , 徐庚全 . 牦牛与荷斯坦奶牛乳源外泌体对脂多糖致牛乳腺上皮细胞损伤的治疗效果评价[J]. 动物营养学报, 2025 , 37(7) : 4763 -4775 . DOI: 10.12418/CJAN2025.389

Abstract

This experiment aims to explore the treatment effects of Holstein dairy cow milk-derived exosome (Cow-Exo) and yak milk-derived exosome (Yak-Exo) at the same concentration on lipopolysaccharide (LPS)-induced injury of bovine mammary epithelial cells. Milk-derived exosomes were isolated from the milk samples of yak and Holstein cows with the same volume. The same concentration of Cow-Exo and Yak-Exo were used to construct the LPS-induced in vitro inflammatory response model of bovine mammary epithelial cells (MAC-T cells), and the effect of milk-derived exosomes on cell viability was detected by CCK-8 method. The effects of the combination of milk-derived exosomes and LPS on the expression of inflammatory factors, nuclear factor-κB (NF-κB) signaling pathway-related factors and apoptotic factors in cells were detected by real-time fluorescence quantitative PCR (RT-qPCR), Western Blotting (WB) and immunofluorescence (IF) methods. The results showed as follows: 1) for exosomes isolated from the milk samples of yaks and Holstein cows with the same volume, the protein concentration in Yak-Exo was significantly higher than that in Cow-Exo (P<0.05); 2) the intake of the two milk-derived exosomes by the MAC-T cells was significantly greater at 24 h than at 6 and 12 h (P<0.05); 3) 10 μg/mL LPS significantly promoted the relative expression levels of pro-inflammatory cytokines interleukin-1β (IL-1β), interleukin-6 (IL-6) and interleukin-8 (IL-8) mRNA (P<0.05), which was used to establish an inflammatory response model; 4) Cow-Exo and Yak-Exo could significantly reduce the relative expression levels of NF-κB signaling pathway-related factors P-p65/p65 protein and p65 mRNA (P<0.05), significantly reduce the relative expression levels of pro-inflammatory factors tumor necrosis factor-α (TNF-α) and IL-1β protein and mRNA, apoptotic factors cysteine aspartic protease-3 (Caspase-3) and B cell lymphoma-2 associated X protein (Bax)/B cell lymphoma-2 (Bcl-2) protein and mRNA (P<0.05), and significantly increase the relative expression level of anti-inflammatory factor interleukin-10 (IL-10) protein (P<0.05), and the effect of Yak-Exo was more significant than that of Cow-Exo (P<0.05). In summary, Yak-Exo and Cow-Exo both can alleviate LPS-induced inflammatory response of bovine mammary epithelial cells by reducing the secretion of pro-inflammatory factors, inhibiting the expression of NF-κB pathway-related factors and apoptotic factors, and the anti-inflammatory effect of Yak-Ex is significantly better than that of Cow-Exo.

环境条件的变化和自然选择过程促进了动物物种和品种的多样化,这导致了不同哺乳动物乳汁营养成分的差异[1]。荷斯坦奶牛是目前世界上产奶量和饲养数量最多,也是我国是存栏数量最大的奶牛品种,具有极高的经济价值[2]。牦牛被称为“高原之舟”,其生长在高寒环境,牦牛乳在牧区具有不可代替的经济地位[3]。奶牛乳腺炎是由于细菌感染乳腺导致的炎症,严重影响奶牛的泌乳能力和乳品质。脂多糖(LPS)是革兰氏阴性菌细胞壁外膜具有的内毒素,被鉴定为乳腺炎的重要毒力因子,它可以使机体产生强烈的免疫原性反应,激活核因子-κB(NF-κB)信号通路,使得NF-κB抑制蛋白α(IκBα)发生磷酸化,p65易位到细胞核以调节靶基因表达,例如,增加白细胞介素-1β(IL-1β)、肿瘤坏死因子-α(TNF-α)和白细胞介素-10(IL-10)等炎性因子的转录,从而导致炎症反应[4-5];另外,激活后的NF-κB又会调节多细胞类型的凋亡并参与凋亡相关基因如B细胞淋巴瘤-2(Bcl-2)等的转录调控[6]。炎性介质参与的细胞稳态具有全身效应[7]。因此,抑制NF-κB信号通路的激活和促炎因子的释放对预防奶牛乳腺炎具有重要作用。奶牛乳腺炎如果治疗不及时或不彻底,很难恢复到正常泌乳状态,并且有复发和乳腺脓肿的风险。因此,抗炎处理对于乳腺炎的治疗非常重要。当前治疗奶牛乳腺炎的主要方法是使用抗菌药物,但存在易产生耐药性、药物残留和毒副作用等问题,因此,采取寻找天然治疗奶牛乳腺炎的药物迫在眉睫。
外泌体(exosomes,Exo)是天然的纳米颗粒,直径在30~200 nm,是生物体液中发现的细胞膜衍生结构,其代表了一种新的细胞间通讯途径,在参与调节细胞间的通讯和细胞内运输中起关键作用[8]。外泌体因具有调节机体免疫、细胞凋亡[9]等能力而备受关注。乳中含有丰富的外泌体,乳源外泌体功能的多样性与产生外泌体的机体生理状态相关联。Lakkaraju等[10]报道,牛乳外泌体中含有调节细胞免疫的蛋白、mRNA和miRNA,这些由外泌体分泌的成分被转移到免疫相关细胞中调节细胞信号。近年来,大量研究阐述了乳源外泌体和炎症相互作用的分子机制,并确定NF-κB信号通路对乳源外泌体调节炎症损伤十分重要[11-12]。Gao等[13]研究表明,牦牛和奶牛乳源外泌体均可缓解脂多糖(LPS)诱导的肠上皮细胞炎症。外泌体已被证明广泛参与体内的各种生理和病理过程,在早期诊断、靶向治疗和疾病机制分析方面显示出巨大的应用潜力。虽然大量研究已经证实乳源外泌体与炎症反应关系密切,但人们对乳源外泌体介导的细胞间通讯在乳腺炎中的作用知之甚少,仍需要进一步的探索和研究;此外,乳源外泌体在奶牛乳腺炎中的作用和具体机制目前尚缺乏深入了解。
本研究从牦牛和荷斯坦奶牛乳样中分离外泌体,探究同浓度荷斯坦奶牛乳源外泌体(Cow-Exo)和牦牛乳源外泌体(Yak-Exo)抵抗LPS诱导的乳腺上皮细胞炎症反应的效果,旨在为进一步深入研究奶牛乳腺炎的发病机理、筛选可有效防控乳腺炎的乳源外泌体提供数据支撑。

1 材料与方法

1.1 样品采集

牦牛乳样采自甘肃省临夏回族自治州某养殖场,荷斯坦奶牛乳样采自甘肃省兰州市某奶牛场。选取2~4胎次、成年的10头处于常乳期(产后2个月左右,乳汁成分相对稳定)的健康牦牛和10头处于泌乳平稳期(产后4个月左右)的荷斯坦奶牛,采集乳样之前用温水清洗乳房并用酒精对乳头擦拭消毒,弃去前3把乳汁,将采集到的乳样混匀后,用冰袋冷藏运回实验室,尽快对乳样进行分装、标记并存储于-80 ℃冰箱。牛乳腺上皮细胞MAC-T购自青旗(上海)生物技术发展有限公司,经实验室传代后保存备用。

1.2 主要试剂及仪器

LPS(E.coil O111:B4,L4391)和PKH-26红色荧光染料试剂盒(MINI26-1KT)购于Sigma-Aldrich公司;TransZol试剂盒(ET101-01-V2)购于北京全式金生物技术股份有限公司;BCA蛋白检测试剂盒(PC0020)、CCK-8细胞增殖及毒性检测试剂盒(CA1210)、高效RIPA裂解液(R0010)和4×蛋白上样缓冲液(P1015)购于Solarbio公司;Evo M-MLV反转录预混型试剂盒(AG11728)购于湖南艾科瑞生物工程有限公司;一步法TUNEL细胞凋亡检测试剂盒(绿色荧光)(C1086)购于上海碧云天生物技术有限公司。
蛋白质免疫印迹(WB)试验中用到的抗体:热休克蛋白70(HSP70)(1:1 000,bs-0244R,Bioss)、四跨膜蛋白家族成员分化簇81(CD81)(1:1 000,T55742F,Abmart)、肿瘤易感基因101(TSG101)(1:1 000,T55985F,Abmart)、p65(1:1 000,AF5006,Affinity)、磷酸化p65(P-p65)(1:1 000,AF2006,Affinity)、IκBα(1:1 000,AF5002,Affinity)、磷酸化NF-κB抑制蛋白α(P-IκBα)(1:1 000,AF2002,Affinity)、IL-1β(1:1 000,16806-1-AP,Proteintech)、TNF-α(1:1 000,60291-1-Ig,Proteintech)、IL-10(1:1 000,DF6894,Affinity)、Bcl-2关联X蛋白(Bax)(1:500,bs-0127M,Bioss)、Bcl-2(1:500,bs-4563R,Bioss)、半胱氨酸天冬氨酸蛋白酶-3(Caspase-3)(1:500,bs-0081R,Bioss)、β-肌动蛋白(β-actin)(1:8 000,AF7018,Affinity)、辣根过氧化物酶标记山羊抗鼠免疫球蛋白G(Goat Anti-Mouse IgG/HRP)(1:8 000,M21001S,Abmart)、辣根过氧化物酶标记山羊抗兔免疫球蛋白G(Goat Anti-Rabbit IgG/HRP)(1:8 000,bs-0295G,Bioss)。
主要试验仪器:实时荧光定量PCR仪(LightCycler 96 SW1.1,Roche,瑞士)、十二烷基硫酸钠-聚丙烯酰胺凝胶电泳(SDS-PAGE)槽(Rio-Rad,美国)、超灵敏多功能成像仪(Amersham Imager 600,GE Healthcare,美国)。

1.3 乳源外泌体的提取与鉴定

参照赵莹等[14]的方法提取乳源外泌体,根据所需乳样的不同进行了部分调整,具体提取的步骤如下:1)取200 mL乳样于26 ℃条件下缓慢复融;2)按1 mL乳样添加4 μL冰乙酸溶液使pH在5.0,静置7 min沉淀酪蛋白;3)4 ℃下以16 500×g的离心力离心2次,每次30 min,去除细胞、酪蛋白和脂肪等,将脱脂的上清液用0.22 μm过滤器除去细菌和凋亡小体等;4)将上清液转移至超高速离心管,离心(4 ℃,110 000×g)2 h去除上清液,加磷酸盐缓冲液(PBS)重悬沉淀;5)将重悬液转移至超高速离心管,离心(4 ℃,110 000×g)1 h取沉淀,沉淀即为乳源外泌体,将沉淀用100 μL PBS重悬用于后续鉴定。使用透射电镜(TEM)观察乳源外泌体的形态,使用纳米颗粒跟踪分析仪测定乳源外泌体的粒径和浓度,采用WB法检测乳源外泌体的标志蛋白TSG101、CD81、HSP70的表达情况,并采用BCA蛋白检测试剂盒测定乳源外泌体的蛋白浓度。

1.4 细胞培养

将MAC-T细胞复苏,用含有100 U/mL青霉素、10 μg/mL链霉素和10%胎牛血清的DMEM/F-12培养基培养,置于培养箱(37 ℃、5% CO2)中使其细胞贴壁生长,在细胞生长到90%时,用0.25%胰蛋白酶消化传代到细胞培养瓶中,通过显微镜观察细胞生长形态,待细胞状态稳定后开展后续试验。

1.5 免疫荧光(IF)法筛选MAC-T细胞摄入乳源外泌体的最佳时间

取1 mL PHK-26试剂盒中的稀释液C将乳源外泌体沉淀重悬,再加入6 μL的PKH-26染料避光孵育5 min,加入1 mL的10%牛血清白蛋白(BSA)终止标记反应;超高速离心收集标记的乳源外泌体,用DMEM/F-12培养基重悬;将生长状态良好的MAC-T细胞爬片置于35 mm的细胞培养皿的盖玻片,待细胞长至60%时,换成DMEM/F-12培养基饥饿处理12 h。空白组不添加乳源外泌体,试验组分别添加标记好的Cow-Exo和Yak-Exo,与MAC-T细胞共孵育6、12、24 h后,弃去培养液,用PBS洗2次,在室温下用2%多聚甲醛溶液固定30 min,PBST洗3 min×5次,用4',6-二脒基-2-苯基吲哚(DAPI)避光染细胞核4 min,PBST洗3 min×6次,用抗荧光淬灭剂封片液封片后,用荧光显微镜观察并拍照。

1.6 CCK-8法检测乳源外泌体对MAC-T细胞活力的影响

将MAC-T细胞接种到96孔板中,每孔含7 500个细胞,待细胞长至60%时,更换为DMEM/F-12培养基饥饿处理12 h。试验组用不同浓度[0(对照组)、20、40、60、80、100、120 μg/mL]的Cow-Exo和Yak-Exo处理细胞24 h,以仅添加DMEM/F-12培养基的组为空白对照组。每孔加100 μL的CCK-8工作液(按照CCK-8母液:DMEM/F-12培养基=1:9配制),37 ℃孵育1 h,用酶标仪检测450 nm处的吸光度(OD)值。
细胞活力(%)=100×[OD(试验组)-OD(空白对照组)]/[OD(对照组)-OD(空白对照组)]。

1.7 LPS诱导MAC-T细胞体外炎症反应模型的建立

将生长状态稳定且良好的MAC-T细胞铺到6孔板,待细胞融合至60%,更换为DMEM/F-12培养基饥饿处理12 h。用0(对照)和10 μg/mL LPS处理细胞24 h后,参照1.6中方法测定10 μg/mL LPS对细胞活力的影响;提取细胞RNA,实时荧光定量PCR(RT-qPCR)法检测炎性因子白细胞介素-8(IL-8)、白细胞介素-6(IL-6)和IL-1β的mRNA相对表达量。

1.8 乳源外泌体联合LPS试验分组与处理

将生长状态稳定且良好的MAC-T细胞铺到6孔板,待细胞融合至60%,更换为DMEM/F-12培养基饥饿处理12 h。将细胞分为6组,依次为Control组(不添加LPS、Cow-Exo和Yak-Exo)、Cow-Exo组(添加Cow-Exo)、Yak-Exo组(添加Yak-Exo)、LPS组(添加LPS)、LPS+Cow-Exo组(添加LPS和Cow-Exo)、LPS+Yak-Exo组(添加LPS和Yak-Exo),LPS作用浓度为10 μg/mL,Cow-Exo和Yak-Exo作用浓度均为100 μg/mL,共孵育24 h,用于后续试验。

1.9 RT-qPCR法检测细胞炎症和凋亡相关基因的表达

利用TransZol试剂盒提取处理完的MAC-T细胞的总RNA,利用反转录预混型试剂盒将RNA反转录为cDNA;从GenBank数据库NCBI中查询并设计试验所需引物序列,由生工生物工程(上海)股份有限公司合成,以β-actin为内参基因,引物具体信息见表1。反应体系为20 μL:cDNA模板1 μL,上、下游引物各0.8 μL,2×SYBR Green 10 μL,ddH2O 7.4 μL。三步法反应条件:95 ℃预变性10 min;95 ℃变性10 s,60 ℃退火30 s,72 ℃延伸18 s,40个循环,得到熔解曲线和对应的Ct值,分析细胞炎症和凋亡相关基因的mRNA相对表达量。
表1 本研究使用的RT-qPCR引物

Table 1 RT-qPCR primers used in this study

基因
Genes
引物序列
Primer sequences (5'—3')
GenBank登录号
GenBank accession
number
产物大小
Product size/bp
白细胞介素-1β
IL-1β
F:CTGGCAAAAACCATGGCACA
R:ACCCGGAAATTGGTTCCACA
NM_174093.1 198
白细胞介素-6
IL-6
F:CTTCACAAGCGCCTTCACTC
R:GCGCTTAATGAGAGCTTCGG
NM_173923.2 166
白细胞介素-8
IL-8
F:CATTCCACACCTTTCCACCC
R:AGGCAGACCTCGTTTCCATTG
NM_173925.2 116
白细胞介素-10
IL-10
F:GCCAAGCCTTGTCGGAAATG
R:CAGTGAGTTCACGTGCTCCT
NM_174088.1 98
肿瘤坏死因子-α
TNF-α
F:TCTTCTCCTTCCTCCTGG
R:TCTTCTCCTTCCTCCTGG
NM_173966.3 194
p65 F:TTGGCAACAACACTGACCCT
R:CCATGGGTACACCCTGGTTC
NM_001080242.2 93
NF-κB抑制蛋白α
IκBα
F:TCACCTACCAGGGCTACTCC
R:CGGCAGTGTCTGAAGGTTCT
NM_001045868.1 107
Bcl-2相关X蛋白
Bax
F:GCTCTGAGCAGATCATGAAGACA
R:AGACACTCGCTCAGCTTCTTG
NM_173894.1 145
B淋巴细胞瘤-2
Bcl-2
F:CTTTGAGTTCGGAGGGGTCA
R:AAATCAAACAGGGGCCGCAT
NM_001166486.1 182
半胱氨酸天冬氨酸蛋白酶-3
Caspase-3
F:AGCGTCGTAGCTGAACGTAAA
R:TTCCAGAGTCCATTGATTTGCT
NM_001077840.1 124
β-肌动蛋白
β-actin
F:CCGTGACATCAAGGAGAAG
R:AGGAAGGAAGGCTGGAAG
NM_173979.3 174

1.10 WB法检测乳源外泌体标志性蛋白以及炎性因子和凋亡因子的表达

按照RIPA细胞裂解液说明书裂解乳源外泌体和试验分组处理的MAC-T细胞制成蛋白样,按照4×蛋白上样缓冲液说明书对蛋白变性。根据所需目标蛋白的大小,进行SDS-PAGE,采用湿转法将蛋白转移到聚偏二氟乙烯(PVDF)膜;室温(26 ℃)用5%脱脂奶粉(根据目标蛋白特性,磷酸化蛋白用5% BSA进行封闭)封闭2 h;4 ℃过夜孵育一抗(TSG101、CD81、HSP70、p65、P-p65、IκBɑ、P-IκBɑ、IL-1β、TNF-α、IL-10、Bax、Bcl-2和Caspase-3);用磷酸盐吐温缓冲液(PBST)洗脱目标蛋白的一抗[磷酸化蛋白用Tris缓冲盐水含Tween 20(TBST)洗脱液]5 min×10次;室温(26 ℃)孵育二抗(根据所需目标蛋白的特性,二抗选择对应的Goat Anti-Rabbit IgG/HRP或Goat Anti-Mouse IgG/HRP)1 h,用PBST洗脱二抗(磷酸化蛋白用TBST洗脱液)5 min×10次,用电化学发光(ECL)试剂显色曝光,保存成像。

1.11 TUNEL法染色检测MAC-T细胞凋亡水平

将生长状态良好的MAC-T细胞爬片于35 mm细胞培养皿的盖玻片中,待细胞融合至60%后饥饿12 h。按照1.8中作用浓度,以LPS或LPS与乳源外泌体联合作用MAC-T细胞24 h后,使用一步法TUNEL细胞凋亡检测试剂盒处理,按照说明书进行操作;洗完孵育的TUNEL检测液后,用DAPI避光染细胞核4 min,PBST洗3 min×5次,再用抗荧光淬灭剂封片液封片后,用荧光显微镜观察并拍照。

1.12 数据处理与分析

利用Image J 2.6.0软件分析WB蛋白条带的积分光密度(IOD)值,根据IOD值分析目的蛋白的相对表达量(目的蛋白的相对表达量=IOD目的/IOD内参)。RT-qPCR数据采用2-ΔΔCt法进行分析。所有数据的绘图用GraphPad Prism 9.5.1软件完成。试验数据用SPSS 23.0软件进行统计学分析,2组间比较采用独立样本t检验,多组间比较采用单因素方差分析和LSD法。以P<0.05为差异有统计学意义。

2 结果与分析

2.1 Cow-Exo和Yak-Exo的鉴定

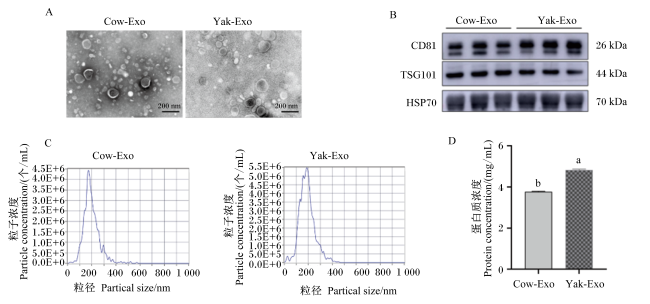
图1-A显示,Cow-Exo和Yak-Exo在结构上均呈现多个大小不一的圆形“茶托样”,具有双层膜结构的小囊泡。图1-B为乳源外泌体标志性蛋白的表达情况,在Cow-Exo和Yak-Exo中,外泌体的标志性蛋白CD81、TSG101和HSP70均有表达。纳米颗粒跟踪分析仪检测乳源外泌体的纳米粒径大小,结果见图1-C:Cow-Exo不均一,粒子浓度为2.4×10¹² 个/mL,峰值主要集中于183.8 nm,Yak-Exo粒子浓度为3.6×10¹² 个/mL,只有1个峰,峰值为181.6 nm。BCA试剂盒对同体积牦牛和荷斯坦奶牛乳样中提取乳源外泌体的蛋白进行定量,结果如图1-D所示,Yak-Exo中蛋白浓度显著高于Cow-Exo(P<0.05)。上述结果证实牦牛和荷斯坦奶牛乳样中存在外泌体,并显示出外泌体的所有特征[15-16]
图1 Cow-Exo和Yak-Exo的表征

Cow-Exo:荷斯坦奶牛乳源外泌体;Yak-Exo:牦牛乳源外泌体。CD81:分化簇81;TSG101:肿瘤易感基因101;HSP70:热休克蛋白70。数据柱标注相同小写字母表示差异不显著(P>0.05),不同小写字母差异表示差异显著(P<0.05)。下图同。

Fig.1 Identification of Cow-Exo and Yak-Exo

Cow-Exo: Holstein cow milk-derived exosome; Yak-Exo: yak milk-derived exosome. CD81: cluster designation 81; TSG101: tumor susceptibility gene 101; HSP70: heat shock protein 70. Data columns with the same lowercase letters mean no significant difference (P>0.05), while with different lowercase letters mean significant difference (P<0.05). The same as below.

2.2 Cow-Exo和Yak-Exo对MAC-T细胞活力的影响

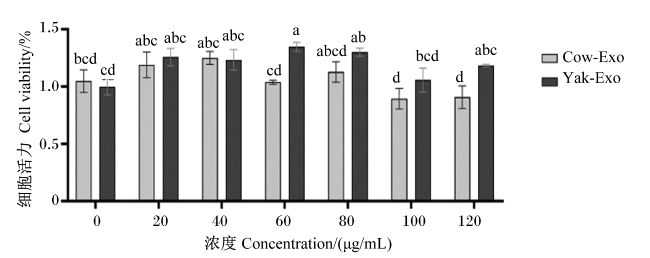
为了确定Cow-Exo和Yak-Exo的适宜剂量,采用CCK-8法评估Cow-Exo和Yak-Exo对MAC-T细胞的潜在细胞毒性作用。如图2所示,与对照组相比,Cow-Exo和Yak-Exo作用MAC-T细胞24 h,浓度至120 μg/mL时均不会对其活力产生显著影响(P>0.05),对细胞无毒性作用。结合乳源外泌体摄入试验,选择Cow-Exo和Yak-Exo作用浓度为100 μg/mL开展后续试验。
图2 Cow-Exo和Yak-Exo对MAC-T细胞活力的影响

Fig.2 Effects of Cow-Exo and Yak-Exo on MAC-T cell viability

2.3 MAC-T细胞对Cow-Exo和Yak-Exo的摄取

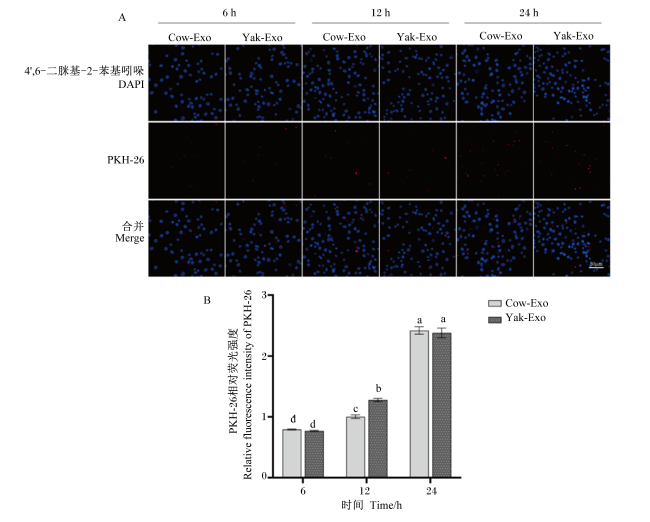
IF检测结果如图3所示,MAC-T细胞中Cow-Exo和Yak-Exo的荧光强度随时间递增显著增强(P<0.05),且在作用24 h时荧光强度约是6和12 h时的2倍,说明作用24 h时MAC-T细胞对Cow-Exo和Yak-Exo的摄入量最大。根据上述结果,选用乳源外泌体作用细胞24 h开展后续试验。
图3 MAC-T细胞对Cow-Exo和Yak-Exo的摄取

Fig.3 Uptake of Cow-Exo and Yak-Exo by MAC-T cells

2.4 构建LPS诱导的MAC-T细胞体外炎症反应模型

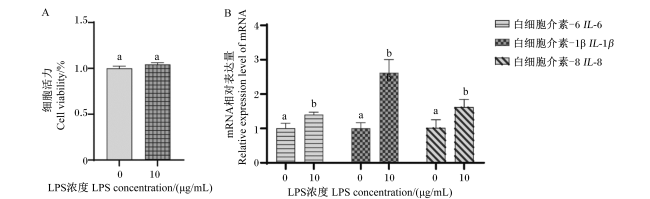
MAC-T细胞活力检测结果如图4-A所示,10 μg/mL LPS对细胞活力无显著影响(P>0.05);MAC-T细胞中炎性因子IL-6、IL-1βIL-8的mRNA相对表达量检测结果如图4-B所示,10 μg/mL LPS处理MAC-T细胞24 h显著提高了IL-6、IL-1βIL-8的mRNA相对表达量(P<0.05)。由上述结果可知,10 μg/mL LPS成功建立了乳腺上皮细胞炎症反应模型。
图4 LPS对MAC-T细胞活力以及MAC-T细胞中炎性因子基因表达的影响

Fig.4 Effects of LPS on MAC-T cell viability and expression of inflammatory factor genes in MAC-T cells

2.5 Cow-Exo和Yak-Exo对LPS诱导的MAC-T细胞中NF-κB信号通路相关因子表达的影响
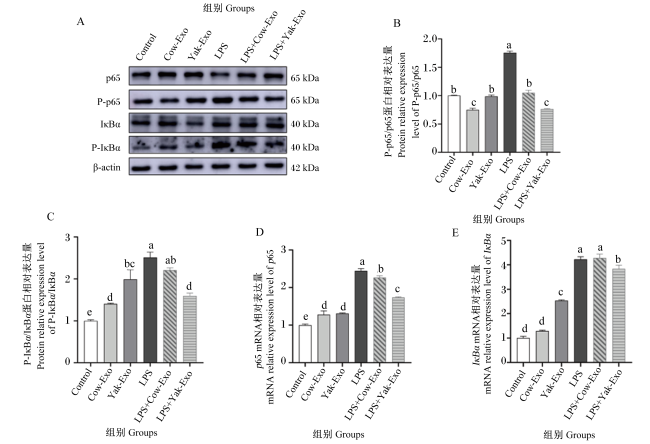
WB结果如图5-A所示,对应的P-p65/p65和P-IκBα/IκBα的蛋白相对表达量分别如图5-B图5-C。RT-qPCR检测p65和IκBα的mRNA相对表达量,结果分别见图5-D图5-E。与Control组相比,LPS组P-p65/p65、P-IκBα/IκBα的蛋白相对表达量及p65和IκBα的mRNA相对表达量均显著升高(P<0.05)。与LPS组相比,LPS+Cow-Exo组和LPS+Yak-Exo组P-p65/p65的蛋白相对表达量和p65的mRNA相对表达量均显著降低(P<0.01);此外,LPS+Yak-Exo组P-IκBα/IκBα的蛋白相对表达量和IκBα的mRNA相对表达量显著降低(P<0.05)。综合WB和RT-qPCR结果,LPS+Cow-Exo组和LPS+Yak-Exo组相比较,可发现同浓度的Yak-Exo能更显著抑制LPS诱导的MAC-T细胞中NF-κB信号通路的激活。
图5 Cow-Exo和Yak-Exo对LPS诱导的MAC-T细胞中NF-κB信号通路相关因子表达的影响

P-p65:磷酸化p65 phosphorylated p65;IκBα:核因子-κB抑制蛋白α inhibitor α of nuclear factor-κB; P-p65:磷酸化核因子-κB抑制蛋白α phosphorylated inhibitor α of nuclear factor-κB; β-actin:β-肌动蛋白。

Fig.5 Effects of Cow-Exo and Yak-Exo on expression of factors related to NF-κB in signaling pathway in LPS-induced MAC-T cells

2.6 Cow-Exo和Yak-Exo对LPS诱导的MAC-T细胞中炎性因子表达的影响

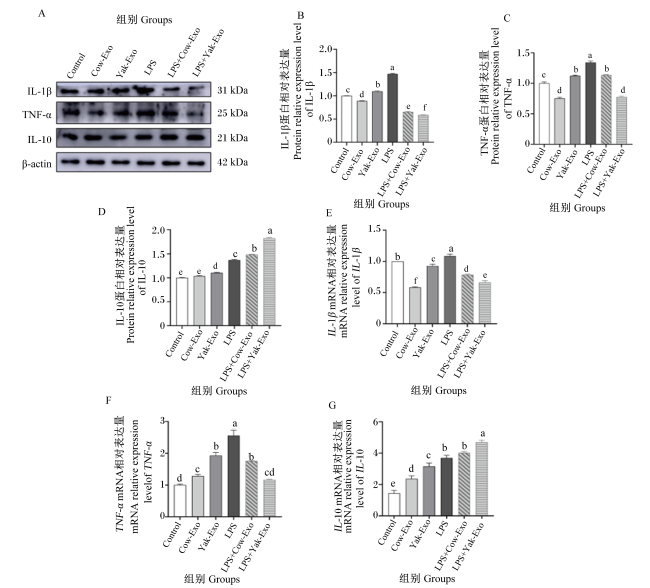
WB结果如图6-A所示,对应的IL-1β、TNF-α和IL-10的蛋白相对表达量分别如图6-B图6-C图6-D所示。RT-qPCR检测IL-1βTNF-αIL-10的mRNA相对表达量,结果分别见图6-E图6-F图6-G。与Control组相比,LPS组IL-1β、TNF-α和IL-10的蛋白和mRNA相对表达量均显著升高(P<0.05)。与LPS组相比,LPS+Cow-Exo组和LPS+Yak-Exo组IL-1β和TNF-α的蛋白和mRNA相对表达量均显著降低(P<0.05),IL-10的蛋白相对表达量显著升高(P<0.05);此外,LPS+Yak-Exo组IL-10的mRNA相对表达量显著升高(P<0.05)。与LPS+Cow-Exo组相比,LPS+Yak-Exo组IL-1β和TNF-α的蛋白和mRNA相对表达显著降低(P<0.05),IL-10蛋白和mRNA相对表达量显著升高(P<0.05)。
图6 Cow-Exo和Yak-Exo对LPS诱导的MAC-T细胞中炎性因子表达的影响

IL-1β:白细胞介素-1β interleukin-1β;TNF-α:肿瘤坏死因子-α tumor necrosis factor-α;IL-10:白细胞介素-10 interleukin-10; β-actin:β-肌动蛋白。

Fig.6 Effects of Cow-Exo and Yak-Exo on expression of inflammatory factors in LPS-induced MAC-T cells

2.7 Cow-Exo和Yak-Exo对LPS诱导的MAC-T细胞凋亡的影响

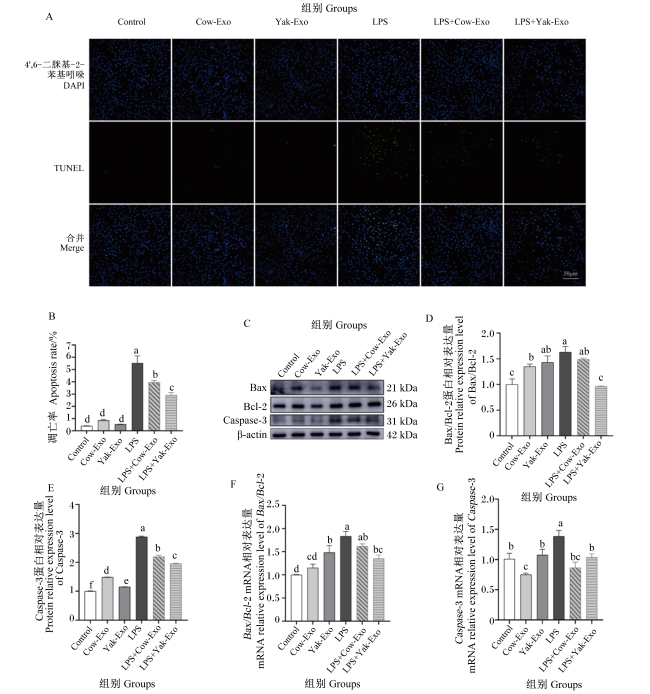
IF检测结果如图7-A所示,对应的凋亡荧光强度(凋亡率)分析结果见图7-B。WB结果如图7-C所示,对应的凋亡相关因子Bax/Bcl-2和Caspase-3的蛋白相对表达量分别见图7-D图7-E;RT-qPCR检测凋亡相关因子Bax/Bcl-2和Caspase-3的mRNA相对表达量,结果分别见图7-F图7-G。与Control组相比,LPS组细胞凋亡率显著升高(P<0.05),Bax/Bcl-2、Caspase-3的蛋白和mRNA相对表达量显著升高(P<0.05)。与LPS组相比,LPS+Cow-Exo组和LPS+Yak-Exo组细胞凋亡率较LPS组显著降低(P<0.05),Caspase-3的蛋白和mRNA相对表达量显著降低(P<0.05);此外,LPS+Yak-Exo组的Bax/Bcl-2蛋白和mRNA相对表达量显著降低(P<0.05)。对LPS+Cow-Exo组和LPS+Yak-Exo组进行比较可发现,同浓度的Yak-Exo较Cow-Exo能更显著地降低LPS引起的MAC-T细胞凋亡率以及Caspase-3和Bax/Bcl-2蛋白相对表达量的升高(P<0.05)。
图7 Cow-Exo和Yak-Exo对LPS诱导的MAC-T细胞凋亡的影响

Bax:B细胞淋巴瘤-2关联X蛋白 B cell lymphoma-2 associated X protein;Bcl-2:B细胞淋巴瘤-2 B cell lymphoma-2;Caspase-3:半胱氨酸天冬氨酸蛋白酶-3 cysteine aspartic protease-3; β-actin:β-肌动蛋白。

Fig.7 Effects of Cow-Exo and Yak-Exo on apoptosis of LPS-induced MAC-T cells

3 讨论

奶牛乳腺炎是奶牛养殖业中危害最严重的疾病之一,严重影响奶牛生产性能和乳制品质量。目前,奶牛乳腺炎主要是感染期间通过使用抗生素进行治疗,但过度依赖抗生素控制乳腺炎增加了抗生素耐药性和残留风险[17],抗生素通过食物链进入人体,给食品安全和公共卫生带来了新的问题[18-19]。因此,筛选治疗乳腺炎更安全有效的药物和方法是兽医临床研究重点之一。MAC-T细胞作为乳腺中主要的功能性分泌细胞,与免疫细胞具有某些共同的特性,在病原体识别和先天免疫启动中起着重要作用[20]。利用LPS诱导MAC-T细胞构建体外炎症反应模型在乳腺炎的防治研究中被广泛应用[21-22]。通常以细胞活力变化或细胞促炎因子IL-1βIL-6等表达量的增加来衡量体外炎症模型是否建立成功[23]。本研究采用10 μg/mL LPS作用于MAC-T细胞,结果显示10 μg/mL LPS处理MAC-T细胞24 h后可显著升高炎性因子IL-6、IL-1βIL-8的mRNA相对表达量,成功构建体外乳腺炎症模型。
外泌体可以参与调节细胞间的通讯和细胞内运输[8,24],从而改变靶细胞的生理和病理过程[25]。炎症是疾病的发病机制的基础,在体外和体外试验中,巨噬细胞和中性粒细胞可以主动摄入乳源外泌体[26-27],这种天然有效靶向的结合,显示出外泌体在早期诊断、靶向治疗和疾病机制分析方面巨大的应用潜力。本研究证实Cow-Exo和Yak-Exo均可被MAC-T细胞摄入,且在24 h时细胞摄入量最高,验证了Franzen等[28]得出的受体细胞对外泌体的摄入量与时间呈依赖性。乳源外泌体的生物活性已得到证实,但其对乳腺炎治疗的研究相对较少。外泌体的治疗潜力需要进行大规模的前瞻性临床试验来探究其治疗效果和不良反应,然后才能应用于临床实践。
近年来,功能性食品成分在治疗各种炎症疾病方面成为研究热点[29]。牛奶是目前产出外泌体最多的生物体液,并在抗炎和抗凋亡作用方面已有报道。NF-κB信号通路是炎性因子产生和调节凋亡相关基因表达的关键介质。本试验证实,Cow-Exo和Yak-Exo均可抵抗LPS诱导的NF-κB活化,减弱IκBα磷酸化,降低促炎因子IL-1β和TNF-α蛋白和mRNA的表达,增加抗炎因子IL-10蛋白和mRNA的表达。Gao等[11]报道,母乳衍生的外泌体治疗能够抑制由LPS诱导的损伤引起的促炎反应,且不同时期的外泌体对损伤的治疗效果有所不同。本研究中,Cow-Exo和Yak-Exo对LPS诱导引起的炎性反应的逆转效果不同,同浓度下Yak-Exo可更显著地抵抗LPS诱导的MAC-T细胞炎症反应。
细胞凋亡是宿主对感染因子反应的一个重要方面。在乳腺炎病症发展过程中,细胞因子含量的上升会加剧乳腺上皮细胞的凋亡进程,进而致使乳腺上皮屏障遭受破坏。Bharti等[30]报道,LPS攻击导致NF-κB信号通路激活,调节许多细胞凋亡相关基因表达,使促凋亡蛋白Caspase-3和Bax的表达增加以及抗凋亡蛋白Bcl-2的表达降低。本研究结果与上述研究结果一致,LPS可导致MAC-T细胞中Caspase-3和Bax/Bcl-2的蛋白和mRNA相对表达量显著升高。Zhang等[31]报道,鸡蛋蛋白外泌体可进入IPEC-J2细胞,减轻LPS诱导的细胞凋亡,抑制促凋亡蛋白Caspase-3和Bax的过度表达。Xie等[12]报道,猪乳源外泌体对LPS刺激的上皮细胞有抑制凋亡作用,可显著抑制Caspase-3等的活性。与上述研究结果一致,本试验显示Cow-Exo和Yak-Exo均可显著降低LPS诱导的MAC-T细胞中促凋亡蛋白Caspase-3和Bax/Bcl-2表达的显著升高,表现出抗凋亡活性。吴方南等[32]研究表明,外泌体干预LPS诱导的细胞后抑制细胞凋亡,并发现TUNEL阳性表达颗粒数量显著降低。与上述研究结果一致,本试验显示Cow-Exo和Yak-Exo作用LPS诱导的MAC-T细胞后细胞凋亡率显著降低。此外,Gao等[13]报道,相较于牛奶来源的外泌体,牦牛乳来源的外泌体在抵御LPS诱导的结肠炎方面展现出更强的保护能力。同样,在本试验中,同浓度下Yak-Exo较Cow-Exo抵抗LPS诱导的凋亡作用效果更显著。

4 结论

同体积牦牛和荷斯坦奶牛乳样中分离的外泌体,Yak-Exo中蛋白浓度显著高于Cow-Exo。Yak-Exo和Cow-Exo可以通过抑制NF-κB信号通路的激活,下调相关炎性因子和凋亡因子的过度表达而缓解LPS诱导的牛乳腺上皮细胞损伤,且这种抗炎和抗凋亡效果在同浓度下以Yak-Exo更显著。
[1]
YANG Y X, ZHENG N, YANG J H, et al. Animal species milk identification by comparison of two-dimensional gel map profile and mass spectrometry approach[J]. International Dairy Journal, 2014, 35(1):15-20.

[2]
徐迪. 世界著名奶牛品种及其生产性能的分析[J]. 现代畜牧科技, 2018(12):24.

XU D. Analysis of the world famous dairy cow varieties and their production performance[J]. Modern Animal Husbandry Science & Technology, 2018(12):24. (in Chinese)

[3]
郭宪, 裴杰, 王宏博, 等. 牦牛乳及乳产品的研究与开发利用[J]. 安徽农业科学, 2014, 42(19):6256-6257.

GUO X, PEI J, WANG H B, et al. Research and development and utilization of yak milk and milk products[J]. Journal of Anhui Agricultural Science, 2014, 42(19):6256-6257. (in Chinese)

[4]
HE X X, LIU W J, SHI M Y, et al. Docosahexaenoic acid attenuates LPS-stimulated inflammatory response by regulating the PPARγ/NF-κB pathways in primary bovine mammary epithelial cells[J]. Research in Veterinary Science, 2017, 112:7-12.

DOI PMID

[5]
BAKER R G, HAYDEN M S, GHOSH S. NF-κB,inflammation,and metabolic disease[J]. Cell Metabolism, 2011, 13(1):11-22.

[6]
DUTTA J, FAN Y, GUPTA N, et al. Current insights into the regulation of programmed cell death by NF-κB[J]. Oncogene, 2006, 25(51):6800-6816.

[7]
WANG X, ANTONY V, WANG Y, et al. Pattern recognition receptor-mediated inflammation in diabetic vascular complications[J]. Medicinal Research Reviews, 2020, 40(6):2466-2484.

[8]
MONTECALVO A, LARREGINA A T, SHUFESKY W J, et al. Mechanism of transfer of functional microRNAs between mouse dendritic cells via exosomes[J]. Blood, 2012, 119(3):756-766.

DOI PMID

[9]
EL-KATTAWY A M, ALGEZAWY O, ALFAIFI M Y, et al. Therapeutic potential of camel milk exosomes against HepaRG cells with potent apoptotic,anti-inflammatory,and anti-angiogenesis effects for colostrum exosomes[J]. Biomedicine & Pharmacotherapy, 2021, 143:112220.

[10]
LAKKARAJU A, RODRIGUEZ-BOULAN E. Itinerant exosomes:emerging roles in cell and tissue polarity[J]. Trends in Cell Biology, 2008, 18(5):199-209.

[11]
GAO R N, ZHANG R, QIAN T, et al. A comparison of exosomes derived from different periods breast milk on protecting against intestinal organoid injury[J]. Pediatric Surgery International, 2019, 35(12):1363-1368.

DOI PMID

[12]
XIE M Y, HOU L J, SUN J J, et al. Porcine milk exosome MiRNAs attenuate LPS-induced apoptosis through inhibiting TLR4/NF-κB and p53 pathways in intestinal epithelial cells[J]. Journal of Agricultural and Food Chemistry, 2019, 67(34):9477-9491.

[13]
GAO H N, HU H, WEN P C, et al. Yak milk-derived exosomes alleviate lipopolysaccharide-induced intestinal inflammation by inhibiting PI3K/AKT/C3 pathway activation[J]. Journal of Dairy Science, 2021, 104(8):8411-8424.

[14]
赵莹, 王靖雷, 王萌, 等. 奶牛乳源外泌体提取方法的优化及效果评价[J]. 动物营养学报, 2024, 36(2):1265-1276.

DOI

ZHAO Y, WANG J L, WANG M, et al. Optimization and evaluation of extraction methods of milk exosomes from dairy cows[J]. Chinese Journal of Animal Nutrition, 2024, 36(2):1265-1276. (in Chinese)

DOI

[15]
CLAYTON A, COURT J, NAVABI H, et al. Analysis of antigen presenting cell derived exosomes,based on immuno-magnetic isolation and flow cytometry[J]. Journal of Immunological Methods, 2001, 247(1/2):163-174.

[16]
THÉRY C, AMIGORENA S, RAPOSO G, et al. Isolation and characterization of exosomes from cell culture supernatants and biological fluids[J]. Current Protocols in Cell Biology, 2006, 30(1):3.22.1-3.22.2.

[17]
DYSON R, CHARMAN N, HODGE A, et al. A survey of mastitis pathogens including antimicrobial susceptibility in southeastern Australian dairy herds[J]. Journal of Dairy Science, 2022, 105(2):1504-1518.

[18]
SHARUN K, DHAMA K, TIWARI R, et al. Advances in therapeutic and managemental approaches of bovine mastitis:a comprehensive review[J]. Veterinary Quarterly, 2021, 41(1):107-136.

[19]
LOPES T S, FONTOURA P S, OLIVEIRA A, et al. Use of plant extracts and essential oils in the control of bovine mastitis[J]. Research in Veterinary Science, 2020, 131:186-193.

DOI PMID

[20]
BRUCKMAIER R M, WELLNITZ O. Triennial lactation symposium/bolfa:pathogen-specific immune response and changes in the blood-milk barrier of the bovine mammary gland[J]. Journal of Animal Science, 2017, 95(12):5720-5728.

[21]
MA H, ZHANG Y F, WANG J X, et al. Palmatine attenuates LPS-induced inflammatory response in mouse mammary epithelial cells through inhibiting ERK1/2,P38 and Akt/NF-κB signalling pathways[J]. Journal of Animal Physiology and Animal Nutrition, 2021, 105(1):183-190.

[22]
MENG M J, HUO R, MA N N, et al. β-carotene alleviates LPS-induced inflammation through regulating STIM1/ORAI1 expression in bovine mammary epithelial cells[J]. International Immunopharmacology, 2022, 113(Pt A):109377.

[23]
倪志宇. CCK-8对炎症反应中促炎及抗炎性细胞因子表达的调控机制研究[D].博士学位论文. 石家庄: 河北医科大学, 2005.

NI Z Y. The regulatory mechanism of CCK-8 on the expression of pro-inflammatory and anti-inflammatory cytokines in inflammatory response[D].Ph.D.Thesis. Shijiazhuang: Hebei Medical University, 2005. (in Chinese)

[24]
KOUREMBANAS S. Exosomes:vehicles of intercellular signaling,biomarkers,and vectors of cell therapy[J]. Annual Review of Physiology, 2015, 77:13-27.

[25]
EL ANDALOUSSI S, MÄGER I, BREAKEFIELD X O, et al. Extracellular vesicles:biology and emerging therapeutic opportunities[J]. Nature Reviews Drug Discovery, 2013, 12(5):347-357.

[26]
IZUMI H, TSUDA M, SATO Y, et al. Bovine milk exosomes contain microRNA and mRNA and are taken up by human macrophages[J]. Journal of Dairy Science, 2015, 98(5):2920-2933.

DOI PMID

[27]
SANTOS-COQUILLAT A, GONZÁLEZ M I, CLEMENTE-MORAGÓN A, et al. Goat milk exosomes as natural nanoparticles for detecting inflammatory processes by optical imaging[J]. Small, 2022, 18(6):2105421.

[28]
FRANZEN C A, SIMMS P E, VAN HUIS A F, et al. Characterization of uptake and internalization of exosomes by bladder cancer cells[J]. BioMed Research International, 2014, 2014(1):619829.

[29]
ZHU L, SHEN H, GU P Q, et al. Baicalin alleviates TNBS-induced colitis by inhibiting PI3K/AKT pathway activation[J]. Experimental and Therapeutic Medicine, 2020, 20(1):581-590.

DOI PMID

[30]
BHARTI A C, DONATO N, SINGH S, et al. Curcumin (diferuloylmethane) down-regulates the constitutive activation of nuclear factor-kappa B and IkappaBalpha kinase in human multiple myeloma cells,leading to suppression of proliferation and induction of apoptosis[J]. Blood, 2003, 101(3):1053-1062.

[31]
ZHANG F D, YUE Y R, CHEN J, et al. Albumen exosomes alleviate LPS-induced inflammation of intestinal epithelial cells via miR-22/ATM/p53/NF-κB axis[J]. International Journal of Biological Macromolecules, 2024, 267(Pt 1):131241.

[32]
吴方南, 李卓, 田振军. 有氧运动通过心肌细胞吞运内皮细胞来源外泌体抑制细胞凋亡[J]. 体育科学, 2020, 40(10):82-90.

WU F N, LI Z, TIAN Z J. Aerobic exercise suppresses apoptosis by promoting endothelial exosomes from cardiomyocytes[J]. China Sport Science, 2020, 40(10):82-90. (in Chinese)

文章导航

/