研究论文

葡萄籽原花青素提取物对体外瘤胃发酵参数、营养物质消化率和微生物区系的影响

  • 覃一耕 , 1 ,
  • 王莹 1 ,
  • 蒋林树 1 ,
  • 赵玉超 , 1, * ,
  • 郭刚 , 2, *
展开
  • 1 北京农学院动物科学技术学院,北京 102206
  • 2 北京首农畜牧发展有限公司,北京 100176
* 赵玉超,副教授,硕士生导师,E-mail: ;
郭 刚,正高级畜牧师,E-mail:

覃一耕(1999—),男,广西河池人,硕士研究生,研究方向为奶牛营养与免疫。E-mail:

Copy editor: 武海龙

收稿日期: 2024-12-13

  网络出版日期: 2025-07-12

基金资助

家畜产业技术体系北京市创新团队(BAIC05-2022)

北京首农食品集团有限公司——乳业全产业链“绿色数智”技术集成创新与产业化应用(SNSPKJ-2022)

北京农学院青年教师科研创新能力提升计划(QJKC-2023)

Effects of Grape Seed Proanthocyanidin Extract on Rumen Fermentation Parameters, Nutrient Digestibility and Microbial Flora in Vitro

  • QIN Yigeng , 1 ,
  • WANG Ying 1 ,
  • JIANG Linshu 1 ,
  • ZHAO Yuchao , 1, * ,
  • GUO Gang , 2, *
Expand
  • 1 Animal Science and Technology College, Beijing University of Agriculture, Beijing 102206, China
  • 2 Beijing Shounong Animal Husbandry Development Co., Ltd., Beijing 100176, China
* ZHAO Yuchao, associate professor, E-mail: ;
GUO Gang, senior livestock specialist, E-mail:

Received date: 2024-12-13

  Online published: 2025-07-12

摘要

本试验旨在研究葡萄籽原花青素提取物(GSPE)对体外瘤胃发酵参数、营养物质消化率和微生物区系的影响。试验分为2组,分别为对照组(CON组)和葡萄籽原花青素提取物组(GSPE组),2组的GSPE添加量分别为0、50 mg/g DM底物。每组设置10个重复。体外发酵24 h。结果表明:1)与CON组相比,GSPE组的丁酸、异丁酸、异戊酸、戊酸、氨态氮(NH3-N)和甲烷(CH4)含量显著降低(P<0.05)。2)与CON组相比,在细菌中,GSPE组的普雷沃氏菌属(Prevotella)、普雷沃氏菌UCG-001(Prevotellaceae_UCG-001)和琥珀酸弧菌属(Succinivibrio)相对丰度显著提高(P<0.05),双歧杆菌属(Bifidobacterium)相对丰度显著降低(P<0.05);在古菌中,GSPE组的甲烷短杆菌属(Methanobrevibacter)相对丰度显著降低(P<0.05),甲烷球形菌属(Methanosphaera)和未分类的嗜甲烷菌科(norank_f_Methanomethylophilaceae)相对丰度显著提高(P<0.05)。由此可见,添加50 mg/g DM的GSPE可以改变瘤胃发酵模式,抑制甲烷短杆菌属的相对丰度,从而降低CH4生成,为开发GSPE作为反刍动物甲烷抑制剂提供了理论基础。

本文引用格式

覃一耕 , 王莹 , 蒋林树 , 赵玉超 , 郭刚 . 葡萄籽原花青素提取物对体外瘤胃发酵参数、营养物质消化率和微生物区系的影响[J]. 动物营养学报, 2025 , 37(7) : 4823 -4836 . DOI: 10.12418/CJAN2025.394

Abstract

This experiment aimed to investigate the effects of grape seed proanthocyanidin extract (GSPE) on rumen fermentation parameters, nutrient digestibility and microbial flora in vitro. The experiment was divided into two groups, namely the control group (CON group) and the grape seed proanthocyanidin extract group (GSPE group). The addition amounts of GSPE in the two groups were 0 and 50 mg/g DM substrate, respectively. Set 10 replicates for each group. Fermentation in vitro for 24 hours. The results showed as follows: 1) compared with the CON group, the contents of butyric acid, isobutyric acid, isovaleric acid, valeric acid, ammonia nitrogen (NH3-N) and methane (CH4) in the GSPE group were significantly decreased (P<0.05). 2) Compared with the CON group, among the bacteria, the relative abundances of Prevotella, Prevotellaceae_UCG-001 and Succinivibrio in the GSPE group were significantly increased (P<0.05), the relative abundance of Bifidobacterium was significantly decreased (P<0.05); among the archaea, the relative abundance of Methanobrevibacter in the GSPE group was significantly decreased (P<0.05), the relative abundances of Methanosphaera and norank_f_Methanomethylophilaceae were significantly increased (P<0.05). In conclusion, the addition of 50 mg/g DM GSPE can change the rumen fermentation pattern, inhibit the relative abundance of Methanobacillus, thereby reducing the production of CH4, providing a theoretical basis for the development of GSPE as a methane inhibitor for ruminants.

温室效应造成的全球气候变化问题已经引起了社会的广泛关注,温室效应加剧的直接原因是温室气体的大量排放,主要包括二氧化碳(CO2)、甲烷(CH4)和一氧化二氮(N2O)等天然温室气体[1-2]。农业系统是大气温室气体排放的重要来源,约占人为排放总量的30%,其中畜牧业是温室气体的重要来源,占全球排放总量的14.5%[3]。CO2、CH4和N2O是农场动物排放的3种主要温室气体[4],除CO2这一最重要的温室气体之外,排量占比相对较小的CH4也逐渐受到科学家的关注,CH4的增温潜势是CO2的25倍[5]。反刍动物胃肠道发酵是畜牧业CH4排放的主要来源,其损失的能量占总摄入能量的2%~12%[6]。因此,降低瘤胃发酵排放是提高能量利用效率、缓解温室效应的重要策略。
近年来,植物提取物因其天然、安全和多样性受到广泛关注,特别是多酚类化合物因其抗氧化、抗炎和抗微生物活性而备受青睐。研究表明,植物多酚可通过改变瘤胃微生物群的组成,直接抑制产甲烷菌(methanogens)的活性,减少氢气(H2)转化为CH4的过程[7];此外,有些多酚对纤维分解菌的抑制作用可间接减少CH4生成[8-9]。以往的研究显示,缩合单宁的抑制CH4效果最明显,无论反刍动物采食富含单宁的牧草[10-11]、单宁提取物的体外评价[12-15],还是通过直接饲喂单宁提取物[16-17],缩合单宁均能显著抑制瘤胃CH4的排放。原花青素是缩合单宁的一个亚类,普遍存在于葡萄籽等植物副产物中。研究显示,奶牛饲喂富含原花青素、没食子酸、儿茶素、白藜芦醇等多酚的葡萄皮可以显著降低CH4排放[18]。然而,原花青素作为葡萄籽的主要多酚化合物,其抑制瘤胃CH4排放的微生物学机制仍不清楚。因此,本试验旨在通过体外瘤胃发酵方法,研究葡萄籽原花青素提取物(grape seed proanthocyanidin extract,GSPE)对体外瘤胃发酵参数、CH4生成和营养物质消化率的影响,并采用16S rRNA测序技术分析体外瘤胃发酵液细菌和古菌的相对丰度,从而揭示GSPE调控瘤胃生态系统和减排CH4的潜在机制,为奶牛上的低碳减排饲料添加剂开发提供理论基础。

1 材料与方法

1.1 试验设计

在北京延庆某牛场选取4头装有永久性瘘管的荷斯坦泌乳奶牛作为瘤胃液供体牛。每日饲喂3次(06:30、13:00和18:00),自由采食和饮水。收集晨饲前的供体牛瘤胃液,每头牛采集500 mL,混合后4层纱布过滤,装入提前39 ℃预热的保温瓶中并通入CO2,1 h之内带回到实验室。试验分为2组,分别为对照组(CON组)和葡萄籽原花青素提取物组(GSPE组),2组的GSPE添加量分别为0、50 mg/g DM底物。每组设置10个重复。

1.2 试验方法和样品采集

体外发酵底物与供体牛饲喂的全混合日粮(TMR)相同(表1)。TMR在55 ℃下烘干48 h,粉碎过1 mm筛,称取约0.5 g发酵底物于每个发酵瓶中,瘤胃液与人工唾液盐(人工唾液盐组成见表2)1:2(质量体积比)混合成75 mL,装入120 mL的培养瓶中,并持续向瓶中通入CO2 5 s,然后用盖子密封发酵瓶,将气体收集袋连接到发酵瓶上用于收集发酵产生的气体。将所有处理好的发酵瓶放入黑暗的39 ℃恒温培养箱中发酵24 h。发酵过程中每隔一段时间摇晃发酵瓶,确保发酵底物与瘤胃液充分混合。发酵24 h后,发酵瓶放入冰水中终止发酵[19]。过滤发酵液,立即使用便携式pH计测量pH,将发酵液分装到10 mL离心管中,一部分样品于-20 ℃保存,用于挥发性脂肪酸(VFA)和氨态氮(NH3-N)含量的分析;另一部分样品液氮冷冻后,送至上海美吉生物医药科技有限公司进行DNA提取与测序。滤渣用于测定干物质、中性洗涤纤维(NDF)、酸性洗涤纤维含量(ADF)含量。
表1 全混合日粮组成及营养水平(风干基础)

Table 1 Composition and nutrient levels of the total mixed ration (air-dry basis)%

项目 Items 含量 Content
原料 Ingredients
玉米青贮 Corn silage 35.59
燕麦干草 Oat hay 4.63
苜蓿干草 Alfalfa hay 12.55
玉米压片 Flaked corn 0.98
粉碎玉米 Crush corn 18.03
豆粕 Soybean meal 10.26
菜籽粕 Rapeseed meal 2.90
甜菜颗粒粕 Sugar beet pellet meal 0.66
预混料 Premix1) 3.87
脂肪粉 Fat powder 1.33
全棉籽 Whole cottonseed 7.62
甘蔗蜜糖 Cane molasses 1.58
合计 Total 100.00
营养水平 Nutrient levels2)
干物质 Dry matter 50.20
粗蛋白质 Crude protein 16.00
中性洗涤纤维 Neutral detergent fiber 28.40
酸性洗涤纤维 Acid detergent fiber 18.50
淀粉 Starch 30.10
粗脂肪 Ether extract 5.31
钙 Ca 0.77
磷 P 0.39
产奶净能 NEL/(MJ/kg) 6.95

1)预混料为每千克饲粮提供 The premix provided the following per kg of the diet:Zn 1 218 mg,Fe 186 mg,Se 6.93 mg,Cu 370 mg,VA 272 000 IU,VD 75 000 IU,VE 2 080 IU。
2)产奶净能为计算值,其他为实测值。NEL was a calculated value, while others were measured values.

表2 人工唾液盐组成

Table 2 Composition of artificial saliva

项目 Items 成分 Ingredients
微量元素溶液
Trace element solution(A)
FeCl3·6H2O(8.0 g)、MnCl2·4H2O(10.0 g)、CoCl2·6H2O(1.0 g)、
CaCl2·2H2O(13.2 g)、蒸馏水(100 mL)
碳酸盐缓冲液
Carbonate buffered aline(B)
NH4HCO3(4.0 g)、NaHCO3(35.0 g)、
蒸馏水(1 000 mL)
磷酸盐缓冲液
Phosphate buffered aline(C)
Na2HPO4(5.7 g)、K2HPO4(6.2 g)、
MgSO4·H2O(0.6 g)、蒸馏水(1 000 mL)
指示剂 Indicator (D) 刃天青(0.1 g)、蒸馏水(100 mL)
还原液 Reducing solution (E) NaOH(160 mg)、Na2S·9H2O(625 mg)、蒸馏水(100 mL)

A:B:C:D:E=0.1:200:200:1:40。

1.3 样品测定分析

1.3.1 饲粮营养成分

干物质、粗蛋白质、NDF、ADF、粗脂肪、淀粉、钙、磷含量分别根据GB/T 6435—2014、GB/T 6432—2018、GB/T 20806—2022、NY/T 1459—2007、GB/T 6433—2006、GB/T 20194—2018、GB/T 6436—2018、GB/T 6437—2018的方法测定。产奶净能根据NRC(2021)计算得出。

1.3.2 瘤胃发酵参数和营养物质消化率

通过气相色谱仪(Agilent 7890B,美国安捷伦公司)测定体外发酵液VFA含量[20]。取瘤胃液样品5 mL于10 mL试管中,10 000×g离心10 min,转移上清液1.5 mL到离心管中,加入偏磷酸后,用涡旋混合器摇匀,然后10 000×g离心15 min,取1.5 mL上清液,经0.22 μm滤膜过滤后转移到样品瓶中进行气相色谱分析。气相色谱条件如下,色谱柱:DB-FFAP(30 m×0.25 mm×0.25 μm),柱温:180 ℃;检测器温度:280 ℃;进样口温度:250 ℃;空气流速:400 mL/min;总流量:54 mL/min;吹扫流量:3 mL/min;恒压:21.8 kPa;分流比:1:50,进样量:1 μL。
采用苯酚/次氯酸盐法测定体外发酵液NH3-N浓度。取瘤胃液样品6 mL,12 000×g离心20 min,移液枪吸取上清液40 μL,至10 mL离心管中,分别吸取A液2.5 mL和B液2.0 mL加入到每个样品试管中,涡旋后,将试管放入37 ℃水浴中显色30 min,在550 nm波长处测定样品吸光度值。
通过气相色谱仪(Agilent 7890B,美国安捷伦公司)测定体外发酵液CH4含量。气相色谱条件如下:色谱柱:GS-CarbonPLOT(30 m×0.32 mm×3.00 μm),进样量1 mL,气化室温度:75 ℃,柱温:38 ℃,检测室温度:100 ℃,电流量:15 mA,空气流速:8 mL/min;总流量:28 mL/min;吹扫流量:3 mL/min;进样量:2 μL。最终经标品浓度比对后计算得出CH4含量。
发酵瓶中的残渣用尼龙袋过滤,用自来水反复冲洗,至滤出的水变得清澈,在(105±2) ℃烘箱中烘4 h,取出后放入干燥皿中冷却,称量并计算干物质含量。滤渣NDF和ADF的含量使用全自动纤维分析仪(ANKOM A2000I,深圳市安康检测科技有限公司)进行检测。计算干物质消化率(dry matter digestibility,DMD)、中性洗涤纤维消化率(neutral detergent fiber digestibility,NDFD)和酸性洗涤纤维消化率(acid detergent fiber digestibility,ADFD)。计算公式为:
DMD(%)={[初始干物质含量-(发酵残留干物质含量-空白残留干物质含量)]/初始干物质含量}×100;
NDFD(%)={[初始NDF含量-(酵残留NDF含量-空白残留含量NDF)]/初始NDF含量}×100;
ADFD(%)={[初始ADF含量-(发酵残留ADF含量-空白残留ADF含量)]/初始ADF含量}×100。

1.3.3 实时荧光定量PCR

使用试剂盒[天根生化科技(北京)有限公司]提取瘤胃液样品中的微生物DNA。使用实时荧光定量PCR定量10种特定瘤胃微生物的相对丰度,包括甲烷短杆菌属(Methanobrevibacter)、甲烷杆菌目(Methanobacteriales)、甲烷球形菌属(Methanosphaera)、解脂厌氧弧菌(Anaerovibrio lipolytica)、解朊丁酸弧菌(Butyvibrio proteoclasticus)、洪氏丁酸弧菌(Butyrivibrio hungatei)、溶纤维丁酸杆菌(Butyrivibrio fibrisolvens)、产琥珀酸纤维杆菌(Fibrobacter succinogenes)、白色瘤胃球菌(Rumicoccus albus)、黄色瘤胃球菌(Rumicoccus flavefaciens),目标微生物群的引物序列见表3
表3 目标微生物群的引物序列

Table 3 Primer sequences of target microorganisms

项目
Items
引物序列
Primer sequence(5'—3')
参考文献
References
总细菌
Total bacteria
F:GGATTAGATACCCTGGTAGT
R:CACGACACGAGCTGACG
[21]
总古菌
Total archaea
F:CCGGAGATGGAACCTGAGAC
R:CGGTCTTGCCCAGCTCTTATTC
[22]
甲烷短杆菌属
Methanobrevibacter
F:TTTCGCCTAAGGATGGGTCT
R:CGATTTCTCACATTGCGGAG
[23]
甲烷杆菌目
Methanobacteriales
F:CGAAGGGAAGCTGTTAAGTC
R:TACCGTCGTCCACTCCTTC
[24]
甲烷球形菌属
Methanosphaera
F:TAAGTCTTTGGTGAAAGCTT
R:GTTACTCACCGTCAAGAT
[23]
解脂厌氧弧菌
Anaerovibrio lipolytica
F:GAAATGGATTCTAGTGGCAAACG
R:ACATCGGTCATGCGACCAA
[21]
解朊丁酸弧菌
Butyvibrio proteoclasticus
F:GGGCTTGCTTTGGAAACTGTT
R:CCCACCGATGTTCCTCCTAA
[25]
洪氏丁酸弧菌
Butyrivibrio hungatei
F:AGGGTAATGCCTGTAGCTC
R:TCACCCTCGCGGGAT
[26]
溶纤维丁酸杆菌
Butyrivibrio fibrisolvens
F:ACACACCGCCCGTACCA
R:TCCTTACGGTTGGGTCACAGA
[27]
产琥珀酸纤维杆菌
Fibrobacter succinogenes
F:GCGGGTAGCAAACAGGATTAGA
R:CCCCCGGACACCCAGTAT
[28]
白色瘤胃球菌
Rumicoccus albus
F:ACGTCRTCCMCACCTTCCTC
R:CCTCCTTGCGGTTAGAACA
[29]
黄色瘤胃球菌
Rumicoccus flavefaciens
F:CGAACGGAGATAATTTGAGTTTACTTAGG
R:CGGTCTCTGTATGTTATGAGGTATTACC
[30]
通过实时荧光定量PCR仪(LightCycler 96,美国Roche公司)在20 μL反应系统中进行扩增,该反应体系由10 μL SYBR Green Pro Taq HS Premix Ⅱ、0.2 μmol的上、下游引物和2 μL的cDNA(40 ng/μL)组成。反应程序为:95 ℃ 1 min的初始变性,95 ℃ 30 s(40个循环)的循环;引物60 ℃退火30 s,在68 ℃下退火1 min进行延伸。根据目标微生物与总细菌、总古菌的循环阈值(Ct),采用2-△△ct法计算目标微生物的相对丰度。

1.3.4 DNA提取与16S rRNA扩增子测序

每组选取6个样本进行16S rRNA扩增子测序。提取DNA后,使用NanoDrop分光光度计评估DNA的质量。使用1%琼脂糖凝胶电泳测定DNA的纯度和完整性。细菌使用引物338F(5'-ACTCCTACGGGAGGCAGCAG-3')和806R(5'-GGACTACHVGGGTWTCTAAT -3')通过PCR进行扩增。古菌使用引物524F(5'-TGYCAGCCGCCGCGGTAA-3')和958R(5'-YCCGGCGTTGAVTCCAATT-3')用于扩增DNA片段。PCR反应体系为:5×TransStart FastPfu缓冲液4 μL,2.5 mmol/L dNTPs 2 μL,上游引物(5 μmol/L)0.8 μL,下游引物(5 μmol/L)0.8 μL,TransStart FastPfu DNA聚合酶0.4 μL,模板DNA 10 ng,补足至20 μL。使用AxyPrepDNA凝胶提取试剂盒(美国Axygen公司)纯化,并使用QuantiFluor-ST微型荧光计(美国Promega公司)进行定量。使用NEXTFLEX Rapid DNA-Seq Kit对纯化后的PCR产物进行建库。最后,将纯化的扩增子以等量合并,在Illumina PEMiSeq 300平台上进行测序。原始数据上传至NCBI SRA数据库(序列号:PRJNA1211180)。
使用Fastp v0.19.6软件对双端原始测序序列进行质控,使用FLASH v1.2.11软件进行拼接。使用UPARSE v7.1软件,根据97%的相似度对质控拼接后的序列进行操作分类单元(operational taxonomic unit,OTU)聚类。利用RDP classifier v 2.11软件比对Silva 16S rRNA基因数据库(v138)进行OTU物种分类学注释。

1.4 数据处理与统计

采用SPSS 21.0软件对瘤胃发酵参数、营养物质消化率和目标菌群的相对丰度等数据进行单因素方差分析。使用Wilxocon秩和检验进行细菌和古菌Alpha多样性的组间差异分析;使用基于Bray-Curtis距离算法的主坐标分析(PCoA)检验样本间微生物群落结构的差异,并进行相似性检验(analysis of similarities,ANOSIM)。采用Wilxocon秩和检验分析细菌和古菌在门水平、属水平上的微生物分类差异。结果以平均值±标准差表示,P<0.05为差异显著。

2 结果与分析

2.1 GSPE对体外瘤胃发酵参数、营养物质消化率和发酵气体产量的影响

表4可知,与CON组相比,GSPE组的发酵液pH与总挥发性脂肪酸(total volatile fatty acids,TVFA)、乙酸、丙酸含量和乙酸/丙酸没有显著差异(P>0.05),发酵液丁酸、异丁酸、异戊酸、戊酸和NH3-N含量显著降低(P<0.05)。
表4 GSPE对体外瘤胃发酵参数的影响

Table 4 Effects of GSPE on rumen fermentation parameters in vitro

项目
Items
组别 Groups P
P-value
CON GSPE
pH 6.58±0.04 6.58±0.06 0.733
总挥发性脂肪酸 TVFA/(mmol/L) 60.89±16.66 46.77±17.26 0.079
乙酸 Acetate/(mmol/L) 30.86±8.23 24.50±8.82 0.113
丙酸 Propionate/(mmol/L) 17.70±4.60 14.24±5.32 0.137
丁酸 Butyrate/(mmol/L) 8.26±2.94 5.57±2.22 0.030
异丁酸 Isobutyrate/(mmol/L) 0.69±0.23 0.42±0.17 0.013
戊酸 Valerate/(mmol/L) 1.90±0.58 1.18±0.44 0.013
异戊酸 Isovalerate/(mmol/L) 1.46±0.52 0.86±0.32 0.014
氨态氮 NH3-N/(mg/dL) 27.06±3.14 18.47±3.86 0.097
乙酸/丙酸 A/P 1.75±0.11 1.72±0.04 0.498
表5可知,与CON组相比,GSPE组的DMD、ADFD、NDFD和总产气量没有显著差异(P>0.05),发酵液CH4含量显著降低(P<0.05)。
表5 GSPE对体外营养物质消化率和发酵气体产量的影响

Table 5 Effects of GSPE on nutrients digestibility and fermentation gas production in vitro

项目
Items
组别 Groups P
P-value
CON GSPE
干物质消化率 DMD/% 70.59±6.98 60.89±19.00 0.149
酸性洗涤纤维消化率 ADFD/% 22.49±0.02 21.04±0.02 0.063
中性洗涤纤维消化率 NDFD/% 54.69±0.04 57.57±0.12 0.472
总产气量 Total gas production/mL 54.62±12.11 58.60±5.23 0.568
CH4含量 CH4 content/% 10.75±0.61 8.48±0.97 0.033

2.2 GSPE对体外瘤胃微生物相对丰度的影响

表6可知,与CON组相比,GSPE组的体外瘤胃甲烷短杆菌属和黄色瘤胃球菌相对丰度显著降低(P<0.05),体外瘤胃产琥珀酸纤维杆菌和白色瘤胃球菌相对丰度显著提高(P<0.05)。
表6 GSPE对体外瘤胃微生物相对丰度的影响

Table 6 Effects of GSPE on relative abundance of rumen microorganisms in vitro%

项目
Items
组别 Groups P
P-value
CON GSPE
甲烷短杆菌属 Methanobrevibacter 0.50±0.07 0.35±0.12 0.031
甲烷杆菌目 Methanobacteriales/×10-3 1.07±11.90 11.20±8.05 0.123
甲烷球形菌属 Methanosphaera/×10-3 6.88±2.21 8.05±5.51 0.642
解脂厌氧弧菌 Anaerovibrio lipolytica/×10-4 14.56±5.35 9.83±1.49 0.059
解朊丁酸弧菌 Butyvibrio proteoclasticus/×10-3 2.78±0.72 3.10±0.79 0.477
洪氏丁酸弧菌属 Butyrivibrio hungatei/×10-5 5.71±2.62 6.05±2.52 0.833
溶纤维丁酸弧菌 Butyrivibrio fibrisolven×10-5 1.66±0.46 3.35±0.97 0.153
产琥珀酸纤维杆菌 Fibrobacter succinogenes/×10-3 2.67±0.86 5.52±1.39 0.007
白色瘤胃球菌 Rumicoccus albus/×10-5 3.36±4.71 30.43±13.50 0.003
黄色瘤胃球菌 Rumicoccus flavefaciens/×10-3 60.70±53.04 9.80±1.97 0.006

2.3 GSPE对体外瘤胃微生物区系的影响

2.3.1 对瘤胃细菌的影响

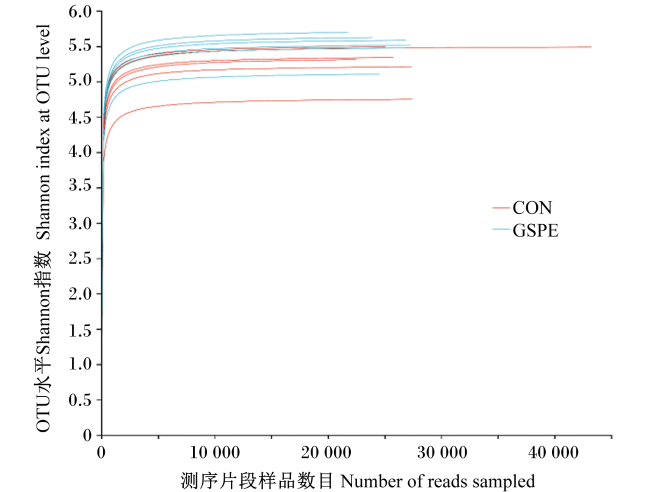
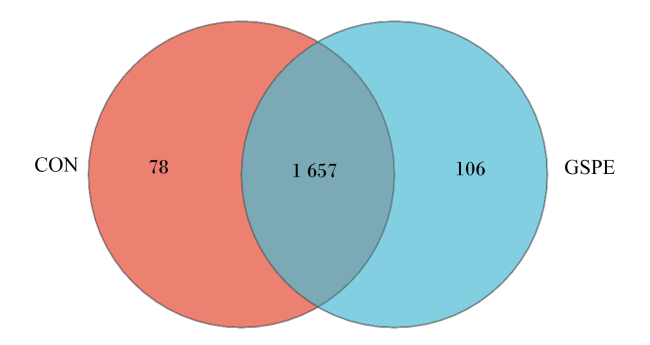
对12个体外发酵液样本进行16S rRNA测序分析,共得到596 953个细菌序列,每个序列平均长度为419 bp,共鉴定出1个界、17个门、29个纲、60个目、100个科、227个属和512个种。图1为细菌测序稀释曲线,曲线末端趋向平坦,说明测序数据量合理。由图2可以看出,2组共有1 657个OTU,CON组独有78个OTU,GSPE组独有106个OTU。
图1 测序稀释曲线(细菌)

CON:CON组 CON group;GSPE:GSPE组 GSPE group。下图同 the same as below。

Fig.1 Sequencing dilution curve (bacteria)

图2 OTU水平的维恩图(细菌)

Fig.2 Venn plot at OTU level (bacteria)

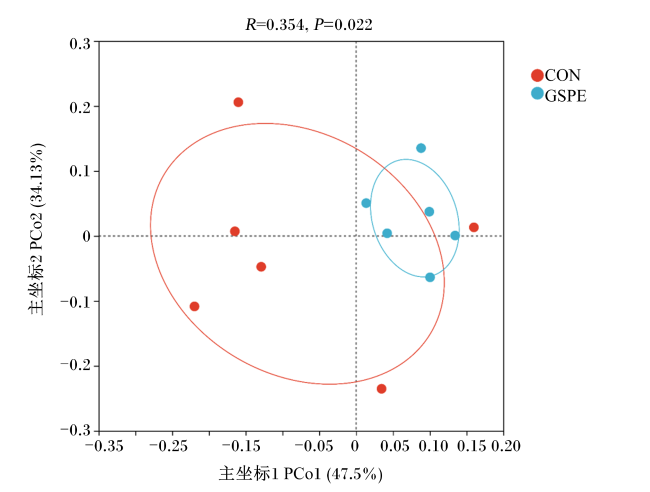
表7可知,与CON组相比,GSPE组的细菌Shannon和Simpson指数没有显著差异(P>0.05),细菌Ace指数显著降低(P<0.05),细菌Chao和Sobs指数显著提高(P<0.05),说明GSPE改变了瘤胃体外发酵的细菌α多样性。使用PCoA(图3)以表征瘤胃液细菌群落的β多样性,发现2组之间细菌明显分离,ANOSIM显示GSPE对发酵液的细菌菌群结构有显著影响(P<0.05)。
表7 GSPE对体外发酵细菌α多样性的影响

Table 7 Effects of GSPE on bacterial α diversity in vitro fermentation

项目
Items
组别 Groups P
P-value
CON GSPE
覆盖度 Coverage 0.99±0.00 0.99±0.00 0.374
Ace指数 Ace index 1 643.00±67.31 1 572.90±81.15 0.031
Chao指数 Chao index 1 471.50±78.18 1 576.90±74.79 0.039
Sobs指数 Sobs index 1 182.70±39.34 1 302.70±71.96 0.009
Shannon指数 Shannon index 5.26±0.28 5.50±0.12 0.118
Simpson指数 Simpson index 0.03±0.00 0.02±0.01 0.343
图3 基于加权Unifrac距离的PCoA图(细菌)

Fig.3 PCoA plot based on weighted Unifrac distance (bacteria)

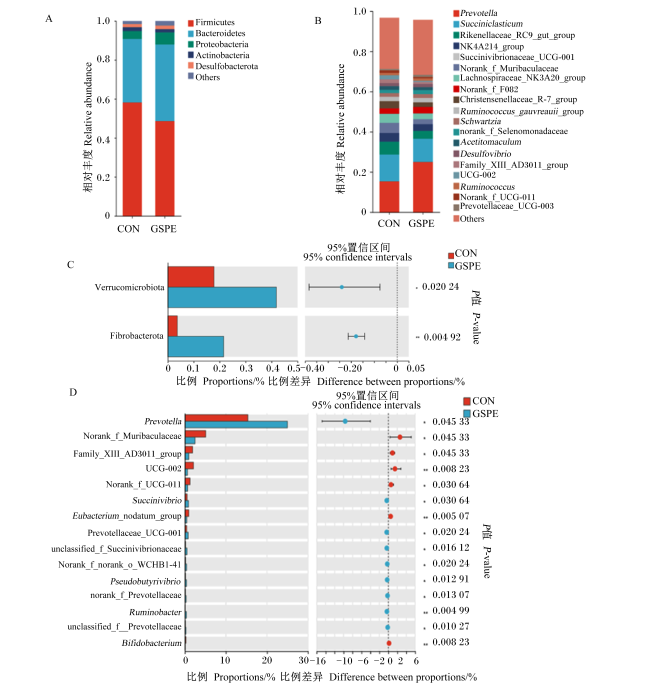
图4可以看出,厚壁菌门和拟杆菌门为门水平上的优势菌门,约占群落总数的90%(图4-A),普雷沃氏菌属、NK4A214群、解琥珀酸菌属、解琥珀酸菌属、理研菌科RC9肠道群为属水平上的优势菌属(图4-B)。与CON组相比,在门水平上,GSPE组的疣微菌门和纤维杆菌门相对丰度显著提高(P<0.05)(图4-C);在属水平上,GSPE组的普雷沃氏菌属、琥珀酸弧菌属、普雷沃氏菌UCG-001、未分类的琥珀酸弧菌科、假丁酸弧菌属、norank_f_norank_o_WCHB1-41、未分类的普雷沃氏菌科和瘤胃杆菌属相对丰度显著提高(P<0.05),而norank_f_Muribaculaceae、Family_ⅩⅢ_AD3011_group、UCG-002、未分类的UCG-011、真杆菌nodatum群和双歧杆菌属相对丰度显著降低(P<0.05)(图4-C)。
图4 细菌组成与差异分析

A:门水平细菌组成 bacterial composition at phylum level;B:属水平细菌组成 bacterial composition at genus level;C:门水平细菌差异 bacterial difference at phylum level;D:属水平细菌差异 bacterial differencetaxa at phylum level。

Firmicutes:厚壁菌门;Bacteroidetes:拟杆菌门;Proteobacteria:变形菌门;Actinobacteria:放线菌门;Desulfobacterota:脱硫杆菌门;Verrucomicrobiota:疣微菌门;Fibrobacterota:纤维杆菌门;Others:其他;Prevotella:普雷沃氏菌属;Succiniclasticum:解琥珀酸菌属;Rikenellaceae_RC9_gut_group:理研菌科RC9肠道群;NK4A214_group:NK4A214群;Succinivibrionaceae_UCG-001:琥珀酸弧菌科UCG-001;Lachnospiraceae_NK3A20_group:毛螺菌科NK3A20群;Christensenellaceae_R-7_group:克里斯滕森氏菌科R-7群;Ruminococcus_gauvreauii_group:高氏瘤胃球菌群;Schwartzia:施氏菌属;norank_f_Selenomonadaceae:未分类的硒藻科;Acetitomaculum:聚乙酸菌属;Desulfovibrio:脱硫弧菌属;Ruminococcus:瘤胃球菌属;Prevotellaceae_UCG-003:普雷沃氏菌科UCG-003;Succinivibrio:琥珀酸弧菌属;Eubacterium_nodatum_group:真杆菌nodatum群;unclassified_f_Succinivibrionaceae:未分类的琥珀酸弧菌科;Pseudobutyrivibrio:假丁酸弧菌属;norank_f_Prevotellaceae:未分类的普雷沃氏菌科;Ruminobacter:瘤胃杆菌属;unclassified_f_Prevotellaceae:未分类的普雷沃氏菌科;Bifidobacterium:双歧杆菌属。

Fig.4 Bacterial composition and differential analysis

2.3.2 GSPE对瘤胃古菌的影响

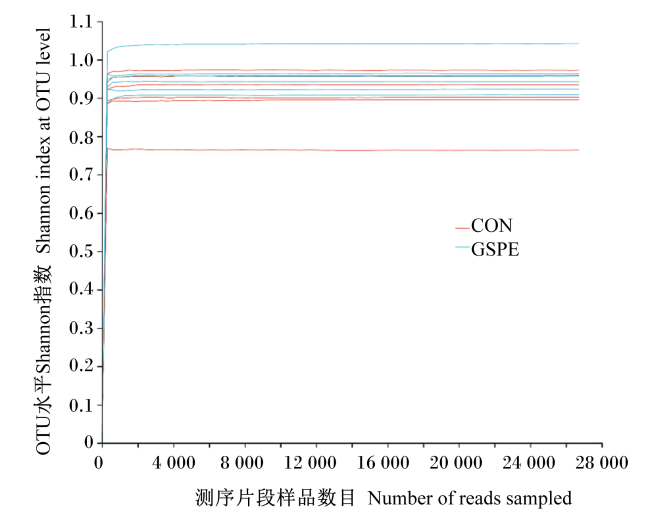
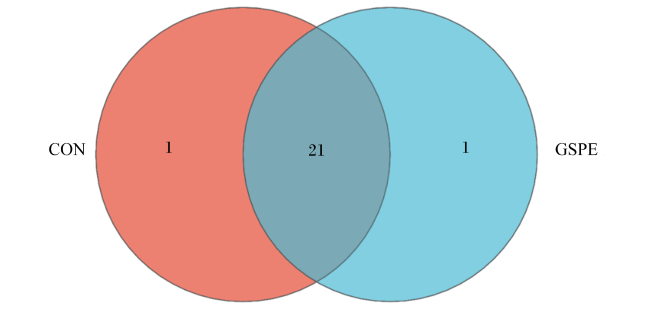
对12个体外发酵液样本进行16S rRNA测序分析,共得到446 958个古菌序列,每个序列平均长度为429 bp,共鉴定出1个界、4个门、5个纲、5个目、5个科、12个属和16个种。图5为古菌测序稀释曲线,曲线末端趋向平坦,说明测序数据量合理。由图6可以看出,2组共有21个OTU,CON组独有1个OTU,GSPE组独有1个OTU。
图5 测序稀释曲线(古菌)

Fig.5 Sequencing dilution curve (archaea)

图6 OTU水平的维恩图(古菌)

Fig.6 Venn plot at OTU levels (archaea)

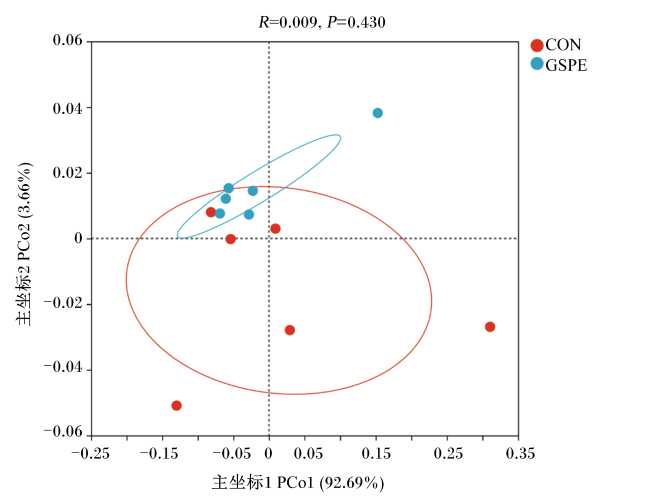
表8可知,与CON组相比,GSPE组的古菌α多样性指数没有显著差异(P>0.05)。使用PCoA(图7)以表征瘤胃液古菌群落的β多样性,发现2组之间古菌没有明显分离。ANOSIM分析,ANOSIM显示GSPE对发酵液的细菌菌群结构没有显著影响(P>0.05)。
表8 GSPE对体外发酵古菌α多样性的影响

Table 8 Effects of GSPE on archaea α diversity in vitro fermentation

项目
Items
组别 Groups P
P-value
CON GSPE
覆盖度 Coverage 1.00±0.00 1.00±0.00 0.548
Ace指数 Ace index 17.33±4.52 18.66±5.10 0.641
Chao指数 Chao index 14.43±2.62 17.39±4.34 0.179
Sobs指数 Sobs index 12.67±2.42 15.17±2.64 0.124
Shannon指数 Shannon index 0.90±0.08 0.96±0.05 0.183
Simpson指数 Simpson index 0.51±0.06 0.48±0.04 0.398
图7 基于加权Unifrac距离的PCoA图(古菌)

Fig.7 PCoA diagram based on weighted Unifrac distance (archaea)

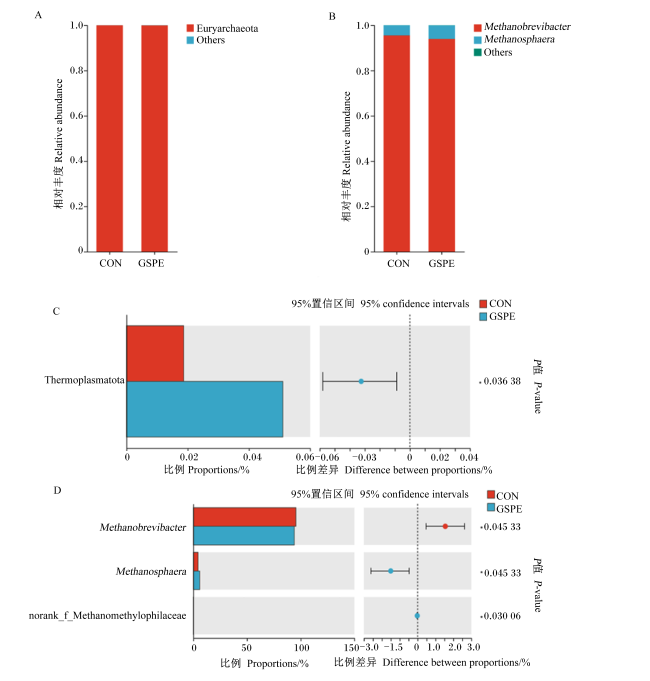
图8可以看出,广古菌门为门水平上的优势菌门(图8-A),甲烷短杆菌属、甲烷球形菌属为属水平上的优势菌属(图8-B)。与CON组相比,在门水平上,GSPE组的热原体门相对丰度显著提高(P<0.05)(图8-C);在属水平上,GSPE组的甲烷短杆菌属相对丰度显著降低(P<0.05),而甲烷球形菌属和未分类的嗜甲烷菌科相对丰度显著提高(P<0.05)(图8-D)。
图8 古菌组成与差异分析

A:门水平古菌组成 archaea composition at phylum level;B:属水平古菌组成 archaea composition at genus level;C:门水平古菌差异 archaea difference at phylum level;D:属水平古菌差异 archaea differencetaxa at phylum level。

Euryarchaeota:广古菌门;Thermoplasmatota:热原体门;Others:其他;Methanobrevibacter:甲烷短杆菌属;Methanosphaera:甲烷球形菌属;norank_f_Methanomethylophilaceae:未分类的嗜甲烷菌科。

Fig.8 Archaea composition and differential analysis

3 讨论

瘤胃VFA、pH和NH3-N是评价瘤胃功能和瘤胃微生态系统稳定性的重要指标。本试验中,2组瘤胃液pH均处于适宜范围内,且没有显著差异。瘤胃微生物利用机体内对营养物质的代谢产生VFA,形成具有特定结构与功能的微生物蛋白,并为反刍动物机体供应能量及蛋白质。然而,这种发酵过程会产生CH4,造成能量损失,可能会对动物生产性能造成影响,同时,CH4排放会加剧温室效应[31]。瘤胃液NH3-N主要由食糜中的蛋白氮和非蛋白氮降解产生,主要用于微生物蛋白的合成,导致饲料中大量的氮素损失[32]。本研究中,添加GSPE可以导致瘤胃液中NH3-N含量的降低。单宁主要通过单宁-蛋白质复合物的形成来降低微生物蛋白的降解,这可能是NH3-N含量降低的原因[33]。Reed[34]指出,缩和单宁可能通过降低瘤胃NH3-N含量,促进尿素流入瘤胃,从而提高氮素再循环到瘤胃的效率,也可增加唾液糖蛋白含量,刺激唾液生成,从而增加氮素再循环到瘤胃。Kim等[35]指出,牛乳中的氮是饲料中用于合成瘤胃微生物蛋白的氮或含氮化合物,代谢的剩余氮被吸收到血液中,然后转移到乳腺,因此,NH3-N含量的降低有助于乳蛋白的合成。此外,Cobellis等[36]认为,瘤胃中NH3-N含量的降低可能是对产氨细菌的抑制作用。瘤胃微生物将饲粮中碳水化合物发酵后产生大量VFA,包括乙酸、丙酸、丁酸等,占据了TVFA的95%,是反刍动物能量的主要来源[37]
本试验中,乙酸、丙酸是体外瘤胃液内含量较高的VFA,与CON组相比,GSPE组的乙酸、丙酸含量未发生明显变化,说明GSPE不会对瘤胃发酵造成负面影响;添加GSPE后,丁酸含量显著降低。研究表明,当葡萄糖代谢成乙酸、丙酸或丁酸时,动物的能量效率分别为62%、109%和78%,因此,瘤胃中乙酸和丁酸的含量越低,合成CH4的原料越少,能量效率越高[38]。Akter等[18]研究表明,奶牛饲喂富含原花青素、没食子酸、儿茶素、白藜芦醇等多酚化合物的葡萄皮可以显著降低CH4排放,但不影响产奶量,然而并未对瘤胃微生物进行研究。
瘤胃微生物群是一个复杂的系统,容易受到饲粮的影响,可以通过调整饲粮改变瘤胃微生物群来调节瘤胃发酵[39]。黄色瘤胃球菌、白色瘤胃球菌以及产琥珀酸纤维杆菌等在消化纤维素类的过程占据着主导地位[40]。在本研究中,添加GSPE增加了白色瘤胃球菌和产琥珀酸纤维杆菌的相对丰度,表明GSPE能显著促进某些纤维素分解菌的生长。在门水平上,拟杆菌门和厚壁菌门是本研究中的优势细菌。拟杆菌门主要负责蛋白质水解和碳水化合物降解,而厚壁菌门在能量利用中起着重要作用[41],主要参与半纤维素和纤维素的降解利用[42]。本研究中,GSPE组纤维杆菌门相对丰度显著高于CON组。纤维杆菌门通过产生纤维素酶和半纤维素酶在纤维降解中起着至关重要的作用。Saminathan等[43]研究表明,纤维杆菌的相对丰度随着缩合单宁的增加而增加,这也与本试验研究结果一致。普雷沃氏菌属是从山羊和牛的瘤胃和后肠中培养出的微生物数量最多的菌群[44]。它参与蛋白质、纤维素、半纤维素和果胶的降解[45-46],本试验中,添加GSPE增加了瘤胃液中普雷沃氏菌属和普雷沃氏菌UCG-001等菌属的相对丰度。这些纤维素利用菌也同样是氨利用菌,这也可能是NH3-N含量降低的原因之一。然而,本研究中TVFA和ADFD在GSPE组有降低的趋势,说明GSPE还可能通过影响其他细菌影响纤维素降解和瘤胃发酵,可能的原因仍需进一步研究。
在本试验中,GSPE组中CH4含量显著低于CON组。甲烷短杆菌属是奶牛瘤胃古菌中相对丰度最高的菌属,是瘤胃中最主要的产甲烷菌,它通常被认为是主要的氢营养产甲烷菌,可以将H2和CO2等转化为CH4[47],氢营养产甲烷菌途径贡献了82%的CH4产量[48]。尽管甲烷球形菌属相对丰度在GSPE组中更高,但甲烷球形菌属主要参与甲基还原途径[19],产生的CH4占比很小,这可能是GSPE通过调节产甲烷菌降低CH4生成的原因。与本研究结果类似,Liu等[49]采用体外短期发酵方法,发现多酚化合物——迷迭香酸降低了甲烷短杆菌属的相对丰度,提高了甲烷球形菌属的相对丰度,降低了CH4生成。甲烷短杆菌属能够促进ATP的合成,因此,饲粮营养水平越高甲烷短杆菌属的相对丰度越高[50]。而普雷沃氏菌属可通过琥珀酸或丙烯酸酯途径分别发酵糖或乳酸来隔离H2,减少CH4合成原料,可达到降低CH4生成的效果[51-52],而产琥珀酸纤维杆菌又可以为普雷沃氏菌属提供琥珀酸,协同作用进一步减少CH4生成底物,所以增加普雷沃氏菌属和解脂厌氧弧菌等产丙酸盐的菌种有助于减少CH4的产生[53]。本试验中,添加GSPE显著降低了瘤胃甲烷短杆菌的相对丰度。此外,GSPE组中甲烷球菌形属和未分类的嗜甲烷菌属的相对丰度显著升高,但由于瘤胃甲烷短杆菌的数量占总古菌的数量的95%左右,甲烷球形菌属以及其他菌属的数量仅占5%左右,其相对于甲烷短杆菌的作用微乎其微。因此,添加GSPE可降低奶牛瘤胃中甲烷短杆菌属的相对丰度,增加普雷沃氏菌属和解脂厌氧弧菌的相对丰度,从而显著降低瘤胃CH4排放量。
由此可见,GSPE可作为天然植物添加剂减少瘤胃CH4生成,但降低CH4生成的微生物互作机制仍需进一步研究。

4 结论

添加GSPE对体外瘤胃发酵pH、DMD和NDFD等无显著影响,但显著降低了丁酸、异丁酸、戊酸、异戊酸以及NH3-N含量,减少了瘤胃中氮素损失;GSPE抑制了甲烷短杆菌属的相对丰度,降低了CH4排放量,说明GSPE可以通过抑制产甲烷菌降低体外瘤胃CH4生成。
[1]
SARI N F, RAY P, RYMER C, et al. Garlic and its bioactive compounds:implications for methane emissions and ruminant nutrition[J]. Animals, 2022, 12(21):2998.

[2]
UGBOGU E A, ELGHANDOUR M M M Y, IKPEAZU V O, et al. The potential impacts of dietary plant natural products on the sustainable mitigation of methane emission from livestock farming[J]. Journal of Cleaner Production, 2019, 213:915-925.

[3]
BEKELE W, GUINGUINA A, ZEGEYE A, et al. Contemporary methods of measuring and estimating methane emission from ruminants[J]. Methane, 2022, 1(2):82-95.

[4]
CARDOSO-GUTIERREZ E, ARANDA-AGUIRRE E, ROBLES-JIMENEZ L E, et al. Effect of tannins from tropical plants on methane production from ruminants:a systematic review[J]. Veterinary and Animal Science, 2021, 14:100214.

[5]
MIN B R, WILLIS W, CASEY K, et al. Condensed and hydrolyzable tannins for reducing methane and nitrous oxide emissions in dairy manure—a laboratory incubation study[J]. Animals, 2022, 12(20):2876.

[6]
JOHNSON K A, JOHNSON D E. Methane emissions from cattle[J]. Journal of Animal Science, 1995, 73(8):2483-2492.

DOI PMID

[7]
VASTA V, DAGHIO M, CAPPUCCI A, et al. Invited review:plant polyphenols and rumen microbiota responsible for fatty acid biohydrogenation,fiber digestion,and methane emission:experimental evidence and methodological approaches[J]. Journal of Dairy Science, 2019, 102(5):3781-3804.

[8]
JONES G A, MCALLISTER T A, MUIR A D, et al. Effects of sainfoin (Onobrychis viciifolia Scop.) condensed tannins on growth and proteolysis by four strains of ruminal bacteria[J]. Applied and Environmental Microbiology, 1994, 60(4):1374-1378.

[9]
BHAT T K, SINGH B, SHARMA O P. Microbial degradation of tannins—a current perspective[J]. Biodegradation, 1998, 9(5):343-357.

[10]
ACOSTA-LOZANO N, BARROS-RODRÍGUEZ M, GUISHCA-CUNUHAY C, et al. Potential effect of dietary supplementation of tannin-rich forage on mitigation of greenhouse gas production,defaunation and rumen function[J]. Veterinary Science, 2023, 10(7):467.

[11]
KHEJORNSART P, JUNTANAM T, GUNUN P, et al. Effect of high-tannin and polyphenol plant material supplement on rumen fermentation,nitrogen partitioning and nutrient utilization in beef cattle[J]. Animals, 2024, 14(21):3092.

[12]
JAYANEGARA A, LEIBER F, KREUZER M. Meta-analysis of the relationship between dietary tannin level and methane formation in ruminants from in vivo and in vitro experiments[J]. Journal of Animal Physiology and Animal Nutrition, 2012, 96(3):365-375.

[13]
CHEN L, BAO X Y, GUO G, et al. Evaluation of gallnut tannin and Lactobacillus plantarum as natural modifiers for alfalfa silage:ensiling characteristics,in vitro ruminal methane production,fermentation profile and microbiota[J]. Journal of Applied Microbiology, 2022, 132(2):907-918.

[14]
CHOI Y, LEE S J, KIM H S, et al. Red seaweed extracts reduce methane production by altering rumen fermentation and microbial composition in vitro[J]. Frontiers in Veterinary Science, 2022, 9:985824.

[15]
BATTELLI M, COLOMBINI S, PARMA P, et al. In vitro effects of different levels of quebracho and chestnut tannins on rumen methane production,fermentation parameters,and microbiota[J]. Frontiers in Veterinary Science, 2023, 10:1178288.

[16]
ALVES T P, DALL-ORSOLETTA A C, RIBEIRO-FILHO H M N. The effects of supplementing Acacia mearnsii tannin extract on dairy cow dry matter intake,milk production, and methane emission in a tropical pasture[J]. Tropical Animal Health and Production, 2017, 49(8):1663-1668.

[17]
ZHANG F Y, LI B H, BAN Z B, et al. Evaluation of origanum oil,hydrolysable tannins and tea saponin in mitigating ruminant methane:in vitro and in vivo methods[J]. Journal of Animal Physiology and Animal Nutrition, 2021, 105(4):630-638.

[18]
AKTER A, LI X, GREY E, et al. Grape pomace supplementation reduced methane emissions and improved milk quality in lactating dairy cows[J]. Journal of Dairy Science, 2025, 108(3):2468-2480.

DOI PMID

[19]
WEI X, OUYANG K H, LONG T H, et al. Dynamic variations in rumen fermentation characteristics and bacterial community composition during in vitro fermentation[J]. Fermentation, 2022, 8(6):276.

[20]
TAN J, WANG Y, NIU H Y, et al. Metagenomic insights into the mechanistic differences of plant polyphenols and nitrocompounds in reducing methane emissions using the rumen simulation technique[J]. Science of the Total Environment, 2024, 953:176135.

[21]
ABDELMEGEID M K, ELOLIMY A A, ZHOU Z, et al. Rumen-protected methionine during the peripartal period in dairy cows and its effects on abundance of major species of ruminal bacteria[J]. Journal of Animal Science and Biotechnology, 2018, 9:17.

DOI PMID

[22]
LIU C, ZHU Z P, LIU Y F, et al. Diversity and abundance of the rumen and fecal methanogens in Altay sheep native to Xinjiang and the influence of diversity on methane emissions[J]. Archives of Microbiology, 2012, 194(5):353-361.

[23]
GOBERNA M, GADERMAIER M, GARCÍA C, et al. Adaptation of methanogenic communities to the cofermentation of cattle excreta and olive mill wastes at 37 degrees C and 55 degrees C[J]. Applied and Environmental Microbiology, 2010, 76(19):6564-6571.

DOI PMID

[24]
KLEVENHUSEN F, MEILE L, KREUZER M, et al. Effects of monolaurin on ruminal methanogens and selected bacterial species from cattle,as determined with the rumen simulation technique[J]. Anaerobe, 2011, 17(5):232-238.

[25]
李东尧. 低聚糖对肠道轴向微生物代谢功能的影响及机制[D].博士学位论文. 无锡: 江南大学, 2020.

LI D Y. Bacterial biogeography and functional microbiome of the murine digest tract,effect of oligofructose and lactulose on microbial metabolism along this tract and the underlying mechanism[D].Ph.D.Thesis. Wuxi: Jiangnan University, 2020. (in Chinese)

[26]
马秀花. 多不饱和脂肪酸组合对滩羊生产性能、肉品质及体脂CLA调控作用的影响[D].硕士学位论文. 银川: 宁夏大学, 2022.

MA X H. Effects of polyunsaturated fatty acid combination on the production performance,meat quality and body fat CLA regulation of Tan sheep[D].Master’s Thesis. Yinchuan: Ningxia University, 2022. (in Chinese)

[27]
KLIEVE A V, HENNESSY D, OUWERKERK D, et al. Establishing populations of Megasphaera elsdenii YE 34 and Butyrivibrio fibrisolvens YE 44 in the rumen of cattle fed high grain diets[J]. Journal of Applied Microbiology, 2003, 95(3):621-630.

[28]
STEVENSON D M, WEIMER P J. Dominance of Prevotella and low abundance of classical ruminal bacterial species in the bovine rumen revealed by relative quantification real-time PCR[J]. Applied Microbiology and Biotechnology, 2007, 75(1):165-174.

[29]
ZHAN J S, LIU M M, WU C X, et al. Effects of alfalfa flavonoids extract on the microbial flora of dairy cow rumen[J]. Asian-Australasian Journal of Animal Sciences, 2017, 30(9):1261-1269.

DOI PMID

[30]
CERRATO-SAÁNCHEZ M, CALSAMIGLIA S, FERRET A. Effect of the magnitude of the decrease of rumen pH on rumen fermentation in a dual-flow continuous culture system1[J]. Journal of Animal Science, 2008, 86(2):378-383.

[31]
CALSAMIGLIA S, BUSQUET M, CARDOZO P W, et al. Invited review:essential oils as modifiers of rumen microbial fermentation[J]. Journal of Dairy Science, 2007, 90(6):2580-2595.

[32]
张萧, 李璇玥, 王蕾, 等. 核桃青皮提取物对绵羊瘤胃体外发酵及微生物区系的影响[J]. 中国畜牧兽医, 2024, 51(3):967-977.

DOI

ZHANG X, LI X Y, WANG L, et al. Effects of walnut green husk extracts on in vitro rumen fermentation and microbiota community in sheep[J]. China Animal Husbandry & Veterinary Medicine, 2024, 51(3):967-977. (in Chinese)

[33]
RIRA M, MORGAVI D P, ARCHIMÈDE H, et al. Potential of tannin-rich plants for modulating ruminal microbes and ruminal fermentation in sheep[J]. Journal of Animal Science, 2015, 93(1):334-347.

DOI PMID

[34]
REED J D. Nutritional toxicology of tannins and related polyphenols in forage legumes[J]. Journal of Animal Science, 1995, 73(5):1516-1528.

DOI PMID

[35]
KIM T B, LEE J S, CHO S Y, et al. In vitro and in vivo studies of rumen-protected microencapsulated supplement comprising linseed oil,vitamin E,rosemary extract,and hydrogenated palm oil on rumen fermentation,physiological profile,milk yield,and milk composition in dairy cows[J]. Animals, 2020, 10(9):1631.

[36]
COBELLIS G, TRABALZA-MARINUCCI M, YU Z T. Critical evaluation of essential oils as rumen modifiers in ruminant nutrition:a review[J]. Science of the Total Environment, 2016, 545/546:556-568.

[37]
于国杰. 单宁酸与茶多酚对奶牛瘤胃发酵、甲烷排放及生产性能的影响[D].硕士学位论文. 晋中: 山西农业大学, 2022.

YU G J. Effect of tannin acid and tea polyphenols on rumen fermentation,methane emission and production performance of dairy cows[D].Master’s Thesis. Jinzhong: Shanxi Agricultural University, 2022. (in Chinese)

[38]
MIN B R, LEE S, JUNG H, et al. Enteric methane emissions and animal performance in dairy and beef cattle production:strategies,opportunities,and impact of reducing emissions[J]. Animals, 2022, 12(8):948.

[39]
AHMED E, YANO R, FUJIMORI M, et al. Impacts of mootral on methane production,rumen fermentation,and microbial community in an in vitro study[J]. Frontiers in Veterinary Science, 2020, 7:623817.

[40]
郝凌魁, 刘世雄, 李冬芳, 等. 酵母发酵饲料对瘤胃菌群数量及多样性的影响[J]. 中国畜牧杂志, 2021, 57(2):116-124.

HAO L K, LIU S X, LI D F, et al. Effects of yeast fermented feed on quantity and diversity of rumen microorganism[J]. Chinese Journal of Animal Science, 2021, 57(2):116-124. (in Chinese)

[41]
CHEN Y B, LAN D L, TANG C, et al. Effect of DNA extraction methods on the apparent structure of yak rumen microbial communities as revealed by 16S rDNA sequencing[J]. Polish Journal of Microbiology, 2015, 64(1):29-36.

[42]
WANG B, LUO H L. Effects of mulberry leaf silage on antioxidant and immunomodulatory activity and rumen bacterial community of lambs[J]. BMC Microbiology, 2021, 21(1):250.

DOI PMID

[43]
SAMINATHAN M, SIEO C C, GAN H M, et al. Modulatory effects of condensed tannin fractions of different molecular weights from a Leucaena leucocephala hybrid on the bovine rumen bacterial community in vitro[J]. Journal of the Science of Food and Agriculture, 2016, 96(13):4565-4574.

[44]
HUO W J, ZHU W Y, MAO S Y. Impact of subacute ruminal acidosis on the diversity of liquid and solid-associated bacteria in the rumen of goats[J]. World Journal of Microbiology and Biotechnology, 2014, 30(2):669-680.

[45]
KOIKE S, KOBAYASHI Y. Development and use of competitive PCR assays for the rumen cellulolytic bacteria:Fibrobacter succinogenes,Ruminococcus albus and Ruminococcus flavefaciens[J]. FEMS Microbiology Letters, 2001, 204(2):361-366.

[46]
CHANG M N, MA F T, WEI J Y, et al. Live Bacillus subtilis natto promotes rumen fermentation by modulating rumen microbiota in vitro[J]. Animals, 2021, 11(6):1519.

[47]
ZHANG F, ZHANG Z W, WEN Y, et al. The action potential of antioxidant grape seed proanthocyanidin as a rumen modifier to mitigate rumen methanogenesis in vitro[J]. Fermentation, 2023, 9(6):513.

[48]
WANG K, XIONG B H, ZHAO X. Could propionate formation be used to reduce enteric methane emission in ruminants?[J]. The Science of the Total Environment, 2023, 855:158867.

[49]
LIU Y L, LI X P, DIAO Q Y, et al. In silico and in vitro studies revealed that rosmarinic acid inhibited methanogenesis via regulating composition and function of rumen microbiota[J]. Journal of Dairy Science, 2024, 107(10):7904-7917.

[50]
LIU Y C, WHITMAN W B. Metabolic,phylogenetic,and ecological diversity of the methanogenic archaea[J]. Annals of the New York Academy of Sciences, 2008, 1125:171-189.

[51]
STROBEL H J. Vitamin B12-dependent propionate production by the ruminal bacterium Prevotella ruminicola 23[J]. Applied and Environmental Microbiology, 1992, 58(7):2331-2333.

[52]
PURUSHE J, FOUTS D E, MORRISON M, et al. Comparative genome analysis of Prevotella ruminicola and Prevotella bryantii:insights into their environmental niche[J]. Microbial Ecology, 2010, 60(4):721-729.

[53]
BETANCUR-MURILLO C L, AGUILAR-MARÍN S B, JOVEL J. Prevotella:a key player in ruminal metabolism[J]. Microorganisms, 2022, 11(1):1.

文章导航

/