综述

植物多酚对猪肠道健康的调控作用及其作用机制

  • 王一涵 , 1, 2 ,
  • 王玉珏 1, 2 ,
  • 张瑞阳 2 ,
  • 余苗 , 1, *
展开
  • 1 广东省农业科学院动物科学研究所,猪禽种业国家重点实验室,农业部华南动物营养与饲料重点实验室,广东省畜禽育种与营养研究重点实验室,广东省畜禽肉品质量安全控制与评定工程技术研究中心,广州 510640
  • 2 沈阳农业大学动物科学与医学学院,沈阳 110866
*余 苗,副研究员,硕士生导师,E-mail:

王一涵(2001—),女,辽宁锦州人,硕士研究生,从事单胃动物生态健康养殖研究。E-mail:

Copy editor: 陈鑫

收稿日期: 2025-01-17

  网络出版日期: 2025-08-14

基金资助

国家自然科学基金项目(32372928)

广东省基础与应用基础研究基金(2024A1515030187)

广东省农业科学院科技创新战略-农业科研主力军建设项目(R2023PY-JX015)

广东省农业科学院科技创新战略-农业科研主力军建设项目(020YJ-YB2002)

广东省农业科学院科技创新战略-农业科研主力军建设项目(25工作站13)

广东省乡村振兴战略专项资金(2025TS-3)

猪禽种业全国重点实验室自主研发项目(2023GZ16)

猪禽种业全国重点实验室自主研发项目(023QZ-NK09)

猪禽种业全国重点实验室自主研发项目(QQZ-03)

Regulatory Roles and Their Mechanism of Action of Porcine Intestinal Health by Plant Polyphenols

  • WANG Yihan , 1, 2 ,
  • WANG Yujue 1, 2 ,
  • ZHANG Ruiyang 2 ,
  • YU Miao , 1, *
Expand
  • 1 Guangdong Engineering and Technology Research Center for Quality and Safety Control and Evaluation of Livestock and Poultry Meat, Guangdong Key Laboratory of Livestock and Poultry Breeding and Nutrition, South China Key Laboratory of Animal Nutrition and Feed, Ministry of Agriculture, State Key Laboratory of Livestock and Poultry Breeding, Institute of Animal Science, Guangdong Academy of Agricultural Sciences, Guangzhou 510640, China
  • 2 College of Veterinary and Animal Science, Shenyang Agricultural University, Shenyang 110866, China
*associate professor, E-mail:

Received date: 2025-01-17

  Online published: 2025-08-14

摘要

肠道是营养物质消化和吸收场所,健康的肠道可提高猪饲料转化率,促进其生长发育。因此,维系肠道健康对猪健康养殖至关重要。植物多酚类化合物是广泛存在于植物中的次生代谢产物,同时具有抗氧化、抗菌、抗肿瘤等生物学特性。研究表明,植物多酚可通过调节肠道氧化应激、改善肠道形态结构以及增强肠道屏障功能等方式来维系猪肠道健康,作为绿色安全的饲料添加剂在猪养殖业中已被广泛应用。本文就植物多酚的理化性质、组成以及其对猪肠道氧化平衡状态、肠道形态和肠黏膜屏障完整性的调控及作用机制进行综述,以期为植物多酚类物质在猪健康养殖中的合理应用提供参考。

本文引用格式

王一涵 , 王玉珏 , 张瑞阳 , 余苗 . 植物多酚对猪肠道健康的调控作用及其作用机制[J]. 动物营养学报, 2025 , 37(8) : 4912 -4925 . DOI: 10.12418/CJAN2025.401

Abstract

Intestinal tract is the main digestion and absorption site of nutrients, and a healthy intestinal tract can improve the feed conversion rate of pigs and promote their growth and development, therefore, maintaining intestinal health is crucial for healthy pig breeding. Plant polyphenols are secondary metabolites widely present in plant tissues, with biological properties such as antioxidant, anti-inflammatory, antibacterial and antitumour. Many studies have shown that plant polyphenols can maintain the intestinal health of pigs by regulating intestinal oxidative stress, improving intestinal morphology and structure, and enhancing the intestinal barrier function, etc. They have been widely used as green and safe feed additives in pig production. This paper reviews the physicochemical properties and composition of plant polyphenols, as well as their regulation and mechanism of action on the state of oxidative balance, intestinal morphology and intestinal mucosal barrier integrity of the pig intestinal tract, with a view to providing theoretical basis for the rational application of plant polyphenols in healthy pig breeding.

肠道作为动物机体的消化吸收场所和抵御微生物感染的首道重要防线,对维持机体的正常代谢以及免疫功能防御起到关键的作用。因此,维持肠道结构完整和功能健全是猪高效健康养殖的前提和基本保障。长久以来,肠道健康问题已成为制约猪养殖产业高质量发展的瓶颈。现如今,如何采用有效的营养调控手段来维系其肠道健康是保障猪养殖业健康发展的基础,也是实现猪养殖节本增效的关键所在。
植物多酚类化合物具有抗氧化、抗炎、抗肥胖、抗肿瘤等生物学功能,同时还具有安全性高、来源广泛、无生物残留等特点[1],在猪生产中具有广泛的开发潜力。鉴于植物多酚类化合物种类多、来源广、成分复杂多样,且存在对猪肠道健康调控的潜在作用机制不明确和效果不稳定等问题,本文在充分查阅植物多酚类化合物对猪肠道健康功能影响的相关文献基础上,结合本实验室的研究,综述了植物多酚改善猪肠道氧化平衡状态、调节肠道形态以及维持肠黏膜屏障完整性等方面的内容,旨在为研究植物多酚类化合物作为绿色功能性添加剂在猪养殖业中的合理应用提供参考。

1 植物多酚组成及理化性质

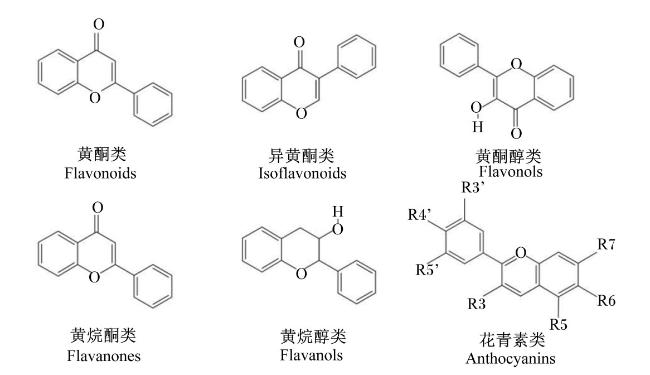
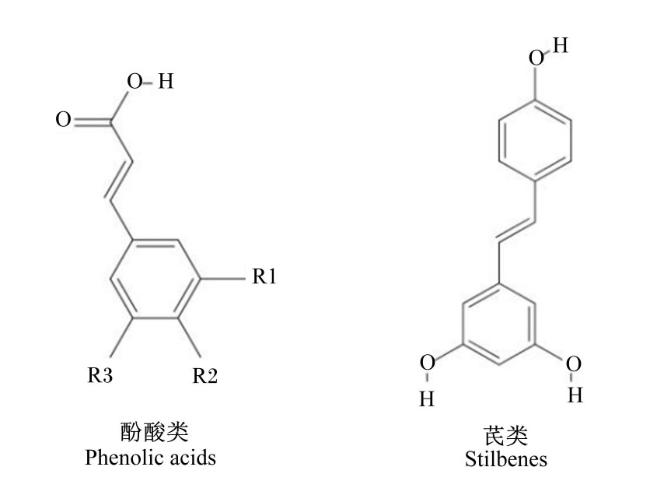
植物多酚类化合物是一类广泛存在于各种植物体(如蔬菜、水果和茶叶等)中且含有多个羟基的酚类化合物的总称。根据结构的差异,可将植物多酚分为水解多酚及缩合多酚;根据分子结构的不同,又分为聚黄烷醇类多酚及聚棓酸酯类多酚;根据多酚中苯环结构的不同,将其分为类黄酮多酚及非类黄酮多酚[2]。其中类黄酮多酚主要包括黄酮类、异黄酮类、黄酮醇类、黄烷酮类、黄烷醇类和花青素类6个亚类;非类黄酮多酚主要包括2个亚类,分别为酚酸类和芪类[3]。类黄酮多酚与非类黄酮多酚各亚类化学结构式分别如图1图2所示。
图1 类黄酮多酚各亚类的一般结构

Fig.1 General structure of various subclasses of flavonoids and polyphenols[4]

图2 非类黄酮多酚各亚类的一般结构

Fig.2 General structure of various subclasses of non-flavonoids and polyphenols[4]

植物多酚是由多个羟基团和多个酚基团组成的化合物,常温下为无固定型黄色粉末状物质,少数为黄棕色,在植物中发挥显色的作用并伴有吸湿性。另外,植物多酚的苯环上具有还原性的羟基基团,能够产生较多反应。

2 植物多酚改善猪肠道健康的途径

研究表明,植物多酚类化合物可通过调节肠道氧化平衡状态、肠道形态结构以及黏膜屏障完整性等方式来维系猪的肠道健康,本节结合猪以及猪小肠上皮细胞的相关研究,阐明植物多酚类化合物改善猪肠道健康可能涉及的主要作用途径。

2.1 维系猪肠道氧化平衡状态

动物机体积累过多自由基而使抗氧化与氧化系统之间失衡造成氧化应激,其过程中产生过量的活性氧(reactive oxygen species,ROS)可破坏细胞信号途径及功能。由于肠道可与外界环境接触且具有较复杂的生理环境,因此对氧化应激极为敏感,易造成肠道损伤甚至产生疾病[5]。植物多酚可通过调节线粒体自噬、抗氧化酶活性及相关基因表达等方式来清除过量自由基以维持猪肠道的氧化平衡稳态,继而保护其肠道健康。

2.1.1 线粒体自噬

线粒体是氧化损伤的主要靶细胞器,受损的线粒体产生过量的ROS可激活半胱氨酸蛋白酶(Caspase)和p53等蛋白质而破坏细胞。因此,有效识别并去除细胞中受损线粒体对改善肠道氧化应激、保护其健康至关重要[6]。已有研究表明,植物多酚可通过调节线粒体自噬基因表达、线粒体功能及去极化等途径,调节肠道氧化平衡状态,进而缓解肠道功能损伤[7]
据报道,氧化应激易损害线粒体内大分子,从而导致其功能障碍并加剧线粒体介导的ROS生成。Chen等[8]研究发现,类黄酮多酚中的紫檀芪可抑制敌草快诱导仔猪空肠内线粒体超氧阴离子的过度产生,同时提高线粒体复合物和ATP活性及细胞色素c蛋白表达,使多数线粒体保持正常形态,以减轻肠道氧化应激。另外,电压依赖性阴离子通道(voltage dependent anion channels,VDAC)是一类位于线粒体外膜的孔蛋白离子通道,可调节线粒体外膜代谢和能量通量,同时抑制素1(Prohibitin 1,PHB1)在线粒体功能和形态中也起到重要作用[9]。而非类黄酮多酚中的白藜芦醇可通过增加仔猪回肠中VDAC和PHB1的蛋白含量,继而缓解仔猪肠道损伤[6]
多酚修饰线粒体自噬已被认为是一种有效缓解氧化应激的策略,且可通过单磷酸腺苷活化的蛋白激酶(adenosine monophosphate activated protein kinase,AMPK)-PTEN诱导激酶1(PTEN induced putative kinase 1,PINK1)-蛋白连接酶活性帕金森病蛋白(Parkinson protein,Parkin)及核因子E2相关因子2(nuclear factor E2 related factor 2,Nrf2)等信号通路调节自噬,用于保护肠道健康[10]。其中,AMPK是影响线粒体自噬的重要能量代谢信号通路;Nrf2可与AMPK的抗氧化反应原件结合位点结合,促进AMPK通路激活,进而调节ROS水平[11]。类黄酮多酚,如姜黄素可通过AMPK-TFEB信号通路促进Parkin依赖性线粒体自噬,从而改善氧化应激诱导的肠道屏障损伤和线粒体损伤[12]。而黄岑苷能通过下调ROS水平,提高Kelch样环氧氯丙烷相关蛋白1(Kelch-like ECH-associated protein 1,Keap1)与sestrin 2蛋白(SESN2)基因表达,以激活AMPK-Nrf2信号通路,继而抑制IPEC-J2细胞受损[13]

2.1.2 调节抗氧化酶活性及相关基因表达

抗氧化酶作为机体抗氧化体系的关键部分,对调节肠道氧化平衡状态具有重要作用。而植物多酚可通过调控猪肠道抗氧化酶活性以及相关基因表达改善肠道氧化损伤,进而维系肠道健康。
类黄酮多酚中的葛根素可增强猪流行性腹泻病毒感染仔猪的肠道功能,提高其肠道内总超氧化物歧化酶活性,并降低髓过氧化物酶活性,以缓解肠道应激[14]。在生物系统中,氧化还原性金属(如铜和铁)可促进催化自由基产生反应,使机体处于氧化应激状态[15]。研究发现,在猪饲粮中添加富含花青素的葡萄渣,能够促进氧化效应并与金属形成络合物,减少自由基生成,最终起到保护猪肠道健康的作用[16]。Chen等[17]研究发现,非类黄酮多酚中的绿原酸可不同程度提高仔猪肠道内谷胱甘肽过氧化酶(glutathione-peroxidase,GSH-Px)、超氧化物歧化酶(superoxide dismutase,SOD)及过氧化氢酶(catalase,CAT)活性,降低丙二醛含量,提高肠道抗氧化功能,改善肠道屏障功能并减轻腹泻。
肠道抵御氧化应激可通过调控细胞外信号调节激酶(extracellular signal-regulated protein kinase,ERK)-Nrf2-血红素加氧酶-1(heme oxygenase-1,HO-1)、Nrf2-HO-1和磷酸肌醇3-激酶(phosphoinositide 3-kinase,PI3K)-苏氨酸激酶(serine-threonine kinase,Akt)-Nrf2等信号通路发挥关键作用[18]。饲粮中添加类黄酮多酚,如二氢杨梅素(dihydromyricetin,DHM)可上调育肥猪空肠内核Nrf2、HO-1和鲲氧化还原酶-1(quinone oxidoreductase-1,NQO-1)蛋白表达量,从而激活Nrf2并驱动其下游抗氧化靶基因;还可促进IPEC-J2细胞中Nrf2核易位与ERK磷酸化,表明DHM能通过激活ERK-Nrf2-HO-1信号通路,继而增强肠道抗氧化能力[19]。而黄岑苷可激活Nrf2-HO-1和哺乳动物雷帕霉素靶蛋白(mammalian target of rapamycin,mTOR)信号通路,以保护IPEC-J2细胞的正常生理功能[20]。另有研究发现,非类黄酮多酚中的白藜芦醇可通过激活PI3K-Akt介导的Nrf2信号传导途径,减轻IPEC-J2细胞氧化应激[5]
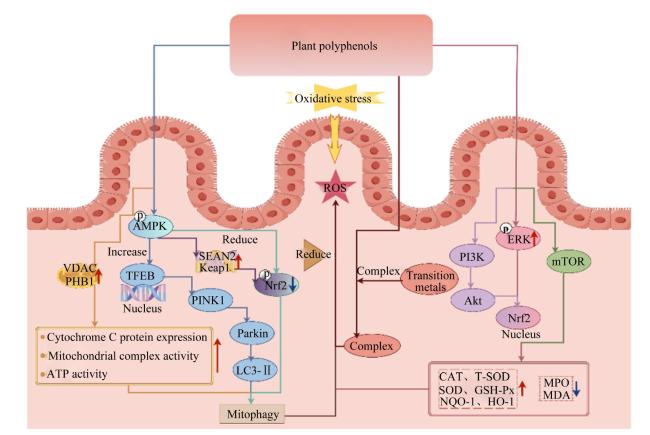
综上所述,植物多酚既可以通过降低线粒体自噬基因的mRNA和蛋白表达量、激活AMPK-TFEB、AMPK-Nrf2及Nrf2等信号通路,进而增强线粒体功能,清除多余ROS;还可通过激活ERK-Nrf2-HO-1、PI3K-Akt-Nrf2、Nrf2-HO-1及mTOR等信号通路,提高HO-1和NQO-1等抗氧化因子表达量及CAT、SOD和GSH-Px等抗氧化酶活性,以维持肠道氧化平衡状态。植物多酚调节猪肠道氧化平衡的潜在作用途径如图3所示。
图3 植物多酚调节猪肠道氧化平衡的作用机制

Plant polyphenols:植物多酚;Oxidative stress:氧化应激;ROS:活性氧 reactive oxygen species;AMPK:一磷酸腺苷激活的蛋白激酶 adenosine monophosphate activated protein kinase;PHB1:抑制素1 prohibitin 1;Cytochrome C protein expression:细胞色素c蛋白表达;Mitochondrial complex activity:线粒体复合物活性;TFEB:转录因子EB transcription factor EB;Nucleus:核;PINK1:PTEN诱导激酶1 PTEN induced putative kinase 1;parkin:帕金森病蛋白 Parkinson protein;LC3-Ⅱ:轻链3-磷脂酰乙醇胺偶联物 light chain 3-phosphatidylethanolamine conjugate;Keap1:Kelch样环氧氯丙烷相关蛋白1 Kelch-like ECH-associated protein 1;Mitophagy:线粒体自噬;Transition metals:过渡金属;Complex:络合;Complex:络合物;Akt:苏氨酸激酶;ERK:磷酸化细胞外信号调节激酶 extracellular signal-regulated protein kinase;CAT:过氧化氢酶 catalase;T-SOD:总超氧化物歧化酶 total-superoxide dismutase;SOD:超氧化物歧化酶 superoxide dismutase;GSH-Px:谷胱甘肽过氧化酶 glutathione-peroxidase;NQO-1:鲲氧化还原酶-1 quinone oxidoreductase-1;HO-1:血红素加氧酶-1 heme oxygenase-1;MPO:髓过氧化物酶 myeloperoxidase;MDA:丙二醛 malondialdehyde。

Fig.3 Mechanism of plant polyphenols in regulating intestinal oxidation balance of pigs

2.2 改善肠道形态结构

肠道形态结构的完整程度决定宿主的消化吸收能力,继而反映肠道的健康状况。隐窝深度(crypt depth,CD)、绒毛高度(villus height,VH)及绒隐比(villus height/crypt depth ratio,V/C)是衡量肠道消化吸收效果的关键指标。研究表明,植物多酚可提高猪的不同生理阶段肠道VH及V/C。在仔猪断奶阶段,类黄酮多酚中的槲皮素也可增加仔猪回肠与空肠VH和V/C,表明其对肠绒毛形态发育产生积极影响[21];在育肥猪阶段,饲粮中添加不同水平的B2型原花青素、茶多酚和苹果多酚等植物多酚均可不同程度提高空肠、回肠及十二指肠VH和V/C,降低肠道CD,增大肠道吸收面积,增强育肥猪的消化吸收能力[22]。此外,母体补充非类黄酮多酚如白藜芦醇可通过哺乳来提高仔猪回肠VH与V/C,继而加快仔猪肠道对营养物质的吸收效率[23]。综上所述,植物多酚具有促进肠绒毛发育、扩大肠道吸收面积的作用,并可通过改变肠道形态加强其对营养物质吸收能力,进而维系动物肠道健康。

2.3 增强肠道黏膜屏障完整性

肠道黏膜屏障由上皮细胞构成且受宿主分泌的黏膜层保护,可起到抵御病原菌侵袭、促进营养物质吸收的作用[24]。由于功能存在差异,肠道黏膜屏障可分为免疫屏障、物理屏障、化学屏障和生物屏障4大类,其完整性是反映猪肠道健康的重要标志之一。若其完整性被破坏则造成肠道发生功能性紊乱,导致机体出现炎症或产生疾病,进而影响机体健康[25]。因此,维系宿主肠黏膜屏障功能的完整性至关重要。植物多酚类物质可通过减弱炎症反应、抑制肠上皮细胞凋亡、调节消化酶活性及维持微生态平衡等途径,进而维系猪肠道屏障完整性。

2.3.1 免疫屏障

免疫屏障主要由肠黏膜淋巴组织、炎症细胞因子、防御因子以及与肠黏膜相关的抗体组成,机体可通过准确分辨自身及外源性抗原,激发肠道免疫应答功能,平衡其免疫稳态[26]。植物多酚可通过调节肠道细胞免疫及体液免疫来提高肠道免疫屏障功能。

2.3.1.1 植物多酚对肠道细胞免疫的影响

肠道细胞是肠道稳态的重要介质,能够建立允许共生细菌定植的免疫环境。白细胞介素-1β(interleukin-1β,IL-1β)及肿瘤坏死因子-α(tumor necrosis factor-α,TNF-α)等细胞因子可通过促进细胞损伤和炎症过程,使其在肠道炎症反应中发挥关键作用。植物多酚可通过降低肠道内促炎因子或提高抗炎因子的分泌与表达,增强肠道细胞免疫功能,进而维持肠道免疫稳态。
在育肥猪的研究中发现,饲喂类黄酮多酚,如富含花青素的葡萄籽和葡萄渣粕提取物能不同程度降低其十二指肠、回肠及结肠中细胞间黏附分子1、IL-1β、白细胞介素-8(interleukin-8,IL-8)和TNF-α的mRNA表达量,进而缓解炎症反应引发的肠道损伤[27]。在仔猪的研究中发现,姜黄素可提高空肠内IL-10的mRNA表达量,以改善仔猪的免疫状态[28]。此外,非类黄酮多酚,如白藜芦醇亦可缓解DON造成的肠道损伤,显著降低断奶仔猪回肠内促炎因子的mRNA及蛋白表达量[29]
植物多酚可干扰促炎因子的合成与表达并通过丝裂原活化蛋白激酶(mitogen-activated protein kinases,MAPKs)、Toll样受体(Toll like receptor,TLR)和NF-κB等信号通路调节肠道免疫能力[30]。Zhang等[31]研究表明,MAPK信号通路与适应性和先天性免疫应答密切相关。存在于类黄酮多酚中的槲皮素可降低育肥猪空肠内促炎因子的mRNA表达量,促使MAPKs中的细胞外信号调节激酶1/2(extracellular signal-regulated protein kinase 1/2,ERK1/2)、c-Jun氨基末端激酶及Akt信号通路失活,继而阻碍肠道中炎症反应的进行[32]。黏膜细菌已被证实能通过上皮细胞刺激促炎基因转录,TLR被病原体相关分子模式(pathogen-associated molecular patterns,PAMPs)激活,促使衔接蛋白分子髓性分化原发应答基因88(myeloid differentiation primary response gene 88,MyD88)刺激NF-κB易位到细胞核,从而导致促炎因子转录增加造成肠炎[33]。Huang等[34]指出,由肠道细胞产生的转化生长因子-β1(transforming growth factor-β1,TGF-β1)是一种参与肠道屏障稳态的细胞因子,可编码TGF-β家族配体并结合不同的TGF-β受体,以调节基因表达维持肠道平衡。羟基酪醇通过下调等促炎因子及MyD88基因表达,以抑制NF-κB信号通路激活;同时增加TGFB1基因表达,激活TGF-β信号通路,继而保护IPEC-J2细胞免受鼠伤寒沙门氏菌感染[35]。此外,由潘氏细胞、中性粒细胞和上皮细胞产生的抗菌肽,如β-防御素对细胞免疫也具有调控作用。非类黄酮多酚中的绿原酸是防御素基因的有效调节因子,其可增加猪肠黏膜β-防御素的mRNA表达,从而增强肠道免疫屏障功能[36]。另有研究表明,Nrf2-HO-1信号通路具有下调抗原呈递细胞的功能,减少有害免疫激活的作用[37]。而绿原酸可通过激活PI3K-Akt和Nrf2-HO-1信号通路,从而减轻IPEC-J2细胞免疫损伤[38]。据报道,芳香烃受体(aryl hydrocarbon receptor,AhR)是一种可被配体激活的转录因子,通过调节细胞色素P450家族1亚家族A成员1(cytochrome P450 family 1 subfamily A member 1,CYP1A1)靶标转录以改善肠道免疫功能,且Nrf2的转录受AhR直接调控已得到充分证实[39]。Xun等[40]研究发现,白藜芦醇可激活仔猪空肠黏膜中AhR和下游CYP1A1基因表达,继而激活AhR-Nrf2信号通路,最终抑制肠道炎症反应,提高肠道免疫功能。Lin等[41]指出,许多炎症疾病的产生与NOD样受体蛋白3(NOD-like receptor protein 3,NLRP3)失调有关。单宁酸则可下调促炎因子的表达,抑制TLR4-NF-κB-NLRP3信号途径,以增强IPEC-J2细胞免疫功能[42]。上述研究表明,植物多酚可通过NF-κB、TLR4等信号途径提高肠道细胞免疫能力。植物多酚对猪肠道模型中炎症因子表达的影响见表1
表1 植物多酚对猪肠道模型中炎症因子表达的影响

Table 1 Effects of plant polyphenols on expression of inflammatory factors in pig intestinal model

植物多酚分类
Classification of
plant polyphenols
植物多酚
Plant
polyphenols
体内/体外模型
In vivo/
in vitro model
剂量
Dose
刺激
Stimuli
表达量
Expression
参考文献
Reference

类黄酮多酚
Flavonoids
polyphenols
羟基酪醇 仔猪回肠 500 mg/kg 敌草快 TNF-αIL-1βIL-6 mRNA
表达量降低
IL-10 mRNA表达量提高
[43]

花青素
育肥猪十二指肠
1%

-
IL-8 mRNA表达量降低
[27]
育肥猪回肠 IL-1βIL-8和TNF-α
mRNA表达量降低
育肥猪结肠 IL-1βIL-8和TNF-α
mRNA表达量降低
姜黄素 仔猪空肠 300和
400 mg/kg
ETEC IL-1βTNF-α mRNA
表达量降低
IL-10 mRNA表达量提高
[28]
槲皮素 育肥猪空肠 25 mg/kg - TNF-αIL-1βIL-6
mRNA表达量降低
[32]
白皮杉醇 IPEC-J2 100 μmol/L DON TNF-αIL-1β
IL-6 mRNA表达量降低
IL-1β蛋白表达量降低
[44]
单宁酸 IPEC-J2 2和4 g/kg ETEC K88 TNF-αIL-1β
mRNA及蛋白表达量降低
[42]

非类黄酮多酚
Non-flavonoid
polyphenols
白藜芦醇 仔猪回肠 300 mg/kg DON TNF-αIL-6和IL-1β
mRNA及蛋白表达量降低
[29]
阿魏酸 IPEC-J2 60 μmol/L DON IL-6、IL-8、IL-1βIFN-γ
mRNA及蛋白表达量降低
[45]
绿原酸 IPEC-J2 1 000 mg/kg 敌草快 IL-6、IL-1βTNF-α
mRNA及蛋白表达量降低
[38]
咖啡酸 仔猪结肠
500 mg/kg
LPS TNF-αIL-6及IL-1β
mRNA表达量降低
IL-10 mRNA表达量提高
[46]

表中“-”表示体内或体外模型未经受刺激。In the table, “-” indicates that the in vivo or in vitro model had not been stimulated.

ETEC:产肠毒素大肠杆菌 enterotoxigenic Escherichia coli;IPEC-J2:猪小肠上皮细胞 intestinal porcine epithelial cell line-J2;DON:脱氧雪腐镰刀菌烯醇 deoxynivalenol;ETEC K88:产肠毒素大肠杆菌K88;TNF-α:肿瘤坏死因子-α tumor necrosis factor-α;IL-1β:白细胞介素-1β interleukin-1β;IL-8:白细胞介素-8 interleukin-8;IFN-γ:干扰素-γ interferon-γ;IL-10:白细胞介素-10 interleukin-10;LPS:脂多糖 lipopolysaccharide。

2.3.1.2 植物多酚对肠道体液免疫的影响

肠道体液免疫系统主要依靠免疫球蛋白发挥关键作用,其可通过防止病原微生物黏附、中和抗原、活化补体等方式保护免疫屏障[47]。而植物多酚可通过促进免疫球蛋白的生成以防止肠黏膜免疫屏障受损。
研究发现,类黄酮多酚,如姜黄素、苹果多酚等均可促进仔猪肠道及血清中免疫球蛋白的分泌,且通过抑制TLR4或TLR4-NF-κB信号通路激活,以提高肠道免疫屏障功能[48]。此外,MAPK级联反应是调节机体免疫反应的关键信号通路。表没食子儿茶素-3-没食子酸酯可通过p38裂原活化MAPK依赖性途径诱导抗菌肽(porcine B-defensins,pBD)-2的mRNA及蛋白质表达和非依赖性途径促进pBD-1的表达,以增强IPEC-J2细胞的免疫功能[49]。研究发现,母猪分泌的初乳中存在的免疫球蛋白可促进仔猪肠道免疫系统的建立,且乳汁衍生的microRNA(miRNAs)可能会影响后代肠道健康及免疫系统发育[50]。Hong等[23]证实,母体补充非类黄酮多酚中的白藜芦醇可通过泌乳显著增加仔猪肠道分泌型免疫球蛋白A(secretory immunoglobulin A,sIgA)分泌及其相关因子多聚免疫球蛋白受体(polymeric immunoglobulin receptor,P-IgR)、转化生长因子(transforming growth factor,TGF)等表达、益生菌的相对丰度和短链脂肪酸(short chain fatty acid,SCFA)的产生,一方面可能通过免疫球蛋白-微生物-SCFA轴提高仔猪肠道免疫力;另一方面,猪乳小细胞外囊泡通过抑制其衍生的miR-221-5p来增强P-IgR表达以刺激肠道sIgA的产生。初乳外泌体衍生的miRNAs的靶基因,如TGF-β和增殖诱导配体(aproliferation-inducing ligand,APRIL)也参与免疫球蛋白A(immunoglobulin A,IgA)合成肠道免疫基因,表明母猪初乳外泌体来源的miRNAs影响哺乳仔猪肠道sIgA的产生,从而改善仔猪肠道免疫功能。
综上所述,植物多酚一方面可通过抑制炎症因子表达,调控MAPKs、TLR4-NF-κB、TGF-β和Nrf2-HO-1等与细胞免疫相关信号通路,或增加猪肠黏膜β-防御素的mRNA表达,进而减轻肠道炎症反应;另一方面可通过增加免疫球蛋白的分泌量,调节TLR4、TLR4-NF-κB及MAPK等信号途径、miRNAs基因和免疫球蛋白-微生物-SCFA轴,以提高肠道免疫屏障功能。

2.3.2 物理屏障

动物肠道的物理屏障由肠上皮细胞及细胞间紧密连接(tight junctions,TJs)蛋白组成,是抵御有害物质入侵肠道的首道防线,也是维持内环境稳态和肠道屏障功能的基础[51]。植物多酚可通过影响肠上皮细胞增殖与凋亡、调节TJs蛋白表达与分布等方式,进而维护物理屏障的完整性。

2.3.2.1 植物多酚对肠上皮细胞增殖和凋亡的影响

肠上皮组织是一个动态且具有半渗透作用的屏障,可防御有害物质、病原体入侵,也可同时选择性吸收营养物质。植物多酚可通过促进肠上皮细胞增殖、抑制凋亡等方式维持肠黏膜屏障完整性,以防肠道疾病的发生。
黏蛋白(mucin,MUC)2是肠黏液层的关键调节因子,能够维持肠道物理屏障完整性。类黄酮多酚中的羟基酪醇可提高仔猪回肠内MUC2的表达量,以促使肠上皮细胞增殖及肠道屏障的再生[43]。非类黄酮多酚中的咖啡酸通过改善仔猪肠道超微结构,减少细胞脱落并增强再生能力,表明其可促进肠道上皮细胞增殖和分化,进而强化物理屏障[52]。细胞周期蛋白D1(cyclin D1,CCND1)是一个促进细胞分裂增殖的细胞周期家族成员,而穿孔素(perforin,PRF)则可自我修复受损细胞,与颗粒酶(granzyme,GZM)共同裂解靶细胞,继而调节肠道屏障功能[53]。鞣花酸可提高断奶仔猪空肠内CCND1基因表达量,加速细胞增殖,同时下调PRF1、颗粒酶B(granzyme B,GZMB)基因表达量,减慢正常细胞的凋亡速度,最终起到保护肠道物理屏障功能的作用[54]
细胞凋亡途径主要包括线粒体依赖性细胞凋亡和空肠脂肪酸合成酶依赖性细胞凋亡[55]。Yan等[56]研究发现,类黄酮多酚中的姜黄素可通过显著降低仔猪空肠内热休克蛋白70、Bcl-2相关X蛋白(B-cell lymphoma-2-associated X protein,Bax)、B细胞淋巴瘤-2(B-cell lymphoma-2,Bcl-2)和Caspase的mRNA表达,从而抑制肠上皮细胞凋亡,以增强肠黏膜屏障完整性。而非类黄酮多酚,如绿原酸可降低仔猪十二指肠及空肠中脂肪酸合成酶(fatty acid synthase,Fas)、Caspase-3和Caspase-9的mRNA表达量,提高肠道抗细胞凋亡能力,以加强肠黏膜屏障完整程度[57]
除上述方式外,植物多酚还可通过调节Wnt/β-连环蛋白(β-catenin)、AMPK及Caspase-3-Bcl-Bax等信号通路,以影响猪肠上皮细胞的增殖与凋亡。类黄酮多酚,如花青素通过激活IPEC-J2细胞中Wnt/β-catenin信号通路,上调β-catenin核转位,促进隐窝干细胞向功能性上皮细胞分化,从而增强物理屏障功能[58]。AMPK是一种必不可少的细胞能量传感器,能够有效调节细胞代谢及功能[59]。而Bcl-2基因家族已被证实为具有抑制细胞凋亡作用的基因。黄岑苷可通过激活AMPK及Caspase-3-Bcl-Bax信号通路,抑制IPEC-J2细胞凋亡,以增强肠黏膜屏障完整性[13]。Shen等[60]指出,沉默交配型信息调节2同系物-1(silent mating type information regulation 2 homolog-1,SIRT-1)能控制和调节许多重要的信号转导级联过程,如细胞凋亡等。非类黄酮多酚中的白藜芦醇一方面可通过激活SIRT-1信号通路,减轻IPEC-1细胞损伤,同时上调细胞周期相关蛋白[如细胞周期素D1(recombinant cyclin D1,CCDN1)和细胞周期蛋白依赖性激酶4(cyclin-dependent kinase 4,CDK4)]的表达,促进受损上皮细胞的修复和增殖;另一方面可通过促进ERK1/2和Akt信号通路的活化,以起到阻碍IPEC-J2细胞凋亡的作用[61];其还可通过激活Wnt/β-catenin信号通路,进而激活G蛋白偶联受体,促进肠道基底部生长因子的表达,增强IPEC-J2细胞的修复功能,以提高肠黏膜物理屏障功能[62]。此外,另有研究发现,TLR4-NF-κB信号通路也在细胞凋亡中发挥关键作用[63]

2.3.2.2 植物多酚对肠上皮TJs蛋白表达与分布的影响

肠上皮TJs蛋白主要包括带状闭合蛋白(zonula occluden,ZO)、闭锁蛋白(Occludin)、闭合蛋白(Claudins)等,而其磷酸化、表达水平和分布情况在调节肠道细胞旁通透性、维持肠道物理屏障功能完整性方面发挥显著作用[64]。植物多酚可通过提高TJs蛋白mRNA及蛋白表达量,调节TJs蛋白分布等方式来保证物理屏障完整性及功能的正常发挥。
Liang等[13]发现,存在于类黄酮多酚中的黄岑苷可上调TJs蛋白的mRNA表达量来修复IPEC-J2细胞的受损屏障。血清中的D-乳酸(D-lactic acid,DLA)浓度及二胺氧化酶(diamine oxidase,DAO)活性是黏膜屏障通透性的重要标志。单宁酸也可通过提高腹泻的断奶仔猪小肠内TJs蛋白表达,同时下调血清中DAO活性和DLA浓度,以降低仔猪肠黏膜通透性[65]
TJs蛋白表达及分布受AMPK、JNK和TLR4-NF-κB等信号通路调控[66]。TJ功能是AMPK的下游靶标,可通过激活AMPK信号通路而促进其功能的发挥。类黄酮多酚,如姜黄素一方面可抑制Claudin-1弥散分布,并通过激活该信号途径,起到改善IPEC-J2细胞内TJ功能损伤的作用[67];另一方面可通过提高断奶仔猪空肠黏膜ZO-1及Claudin mRNA表达量,与抑制p38 MAPK和JNK通路的激活,从而提高肠道物理屏障功能[68]。而非类黄酮多酚中的绿原酸可上调断奶仔猪空肠、回肠中Claudin-1的mRNA表达量,调节TJs蛋白分布,并可能通过抑制TLR4-NF-κB信号通路活化,以改善肠炎对仔猪肠道物理屏障完整性的破坏[17]。Nrf2是一种对氧化应激高度敏感的转录因子,而白藜芦醇可上调IPEC-J2细胞中TJs蛋白的mRNA表达量,激活PI3K-Akt介导的Nrf2信号通路,表明其可潜在保护肠黏膜屏障功能[5]
综上所述,植物多酚不仅可通过提高MUC表达量、细胞周期相关蛋白及基因表达,激活Wnt/β-catenin信号通路,以促进肠上皮细胞增殖,还通过调节Caspase、Fas蛋白和mRNA表达量、降低热休克蛋白70、PRF1与GZMB基因表达量、并经Caspase-3-Bcl-Bax、AMPK、SIRT-1及TLR4-NF-κB等信号通路调控,抑制肠上皮细胞凋亡而保持肠黏膜屏障完整性;也可通过增加TJs蛋白的mRNA和蛋白表达量,改善TJs蛋白分布情况、调节血清DAO活性及DLA浓度、调控AMPK、p38MAPK、JNK、PI3K-Akt-Nrf2及TLR4-NF-κB等信号通路来维持肠道物理屏障功能,继而保护肠道健康。

2.3.3 化学屏障

胃肠道分泌的各种消化酶、消化液等化学物质和肠道微生物产生的SCFAs等杀菌、抑菌物质构成了肠道黏膜化学屏障[69]。植物多酚可通过影响消化液分泌、SCFAs合成及消化酶活性等方式,以维持肠道黏膜化学屏障稳态。
胆汁中的胆汁酸(bile acid,BA)已被证实在调节肠道屏障功能方面具有至关重要的作用[70]。Wen等[43]研究发现,类黄酮多酚,如羟基酪醇可促进BA的合成、分泌及正常代谢,从而起到保护仔猪肠道健康的作用。SCFAs是肠上皮细胞重要的能量来源,可维持肠道化学屏障功能并促进营养物质的消化吸收[71]。槲皮素可提高断奶仔猪肠道和粪便中的SCFAs含量,推测槲皮素可调控仔猪肠道化学屏障并维持其正常功能[72]。消化酶是反映肠道消化能力的关键指标,可水解肠道中大分子营养物质。非类黄酮多酚中的咖啡酸可通过提高仔猪十二指肠中α-淀粉酶活性,继而增强仔猪肠道消化吸收能力[73]。绿原酸则可提高断奶仔猪空肠及回肠中麦芽糖酶、蔗糖酶和碱性磷酸酶的活性,间接起到提高其肠道化学屏障功能的作用[74]
综上所述,植物多酚可以通过提高消化酶活性、促进BA合成及增加SCFAs生成量等方式来调控肠道化学屏障功能,起到保护肠黏膜完整性,进而有利于肠道对营养物质吸收的作用。

2.3.4 生物屏障

生物屏障是由肠道内抵御外来菌入侵的常驻细菌构成的微生态体系。植物多酚可通过调控肠道微生态平衡,防止各类肠道疾病的发生。
本实验室前期研究也发现,饲粮中添加类黄酮多酚如槲皮素等植物多酚能通过提高断奶仔猪粪便中瘤胃球菌属、乳杆菌属和双歧杆菌属等有益菌数量,减少大肠杆菌数量,进而维护肠道生物屏障功能,降低仔猪的腹泻率[25]。富含儿茶素的夏秋茶叶粉可通过增加仔猪盲肠和回肠中双歧杆菌属、乳酸杆菌属及拟杆菌门(Bacteroidetes)数量,抑制大肠杆菌定植,以调节肠道微生态菌群结构组成;且厚壁菌门(Firmicutes)/Bacteroidetes比值是脂肪沉积作用的标志,其还可通过降低Firmicutes/Bacteroidetes比值,减少脂肪沉积相关基因[如过氧化物酶体增殖物激活受体-γ(peroxisome proliferators-activated receptor-γ,PPAR-γ)]表达,增强仔猪脂代谢速率,从而减少肠道疾病的产生[75]。Fiesel等[27]指出,富含花青素的葡萄籽和葡萄渣提取物能降低链球菌属数量,且可能通过抑制TLR4及NF-κB信号通路,来优化育肥猪肠道微生物菌群组成并缓解肠道炎症。β-防御素是已知的抗菌肽,参与调节并维持肠道微生物群的稳态。Ferlisi等[35]研究表明,羟基酪醇能抑制β-防御素基因[包括防御素β1(defensin beta 1,DEFB1)和防御素β4A(defensin beta 4A,DEFB4A)]表达,从而抵御鼠伤寒沙门氏菌对IPEC-J2细胞入侵,继而恢复肠道稳态。
Zhang等[36]研究发现,非类黄酮多酚中的绿原酸能增加仔猪回肠中乳酸菌(包括罗伊氏乳杆菌和桥黏液乳杆菌)的相对丰度,罗伊氏乳杆菌与肠道中猪β防御素2(porcine β-defensin 2,pBD2)、猪β防御素3(porcine β-defensin 3,pBD3)、猪β防御素114(porcine β-defensin 114,pBD114)和猪β防御素129(porcine β-defensin 129,pBD129)的分泌有关,结果表明绿原酸对改善仔猪的肠道生物屏障功能产生积极作用。SCFAs是肠腔内微生物发酵产生的代谢产物,是维持肠道pH稳定的重要因素[71]。白藜芦醇通过提高仔猪结肠内SCFA水平(尤其是丁酸),调节肠道pH处于稳态,增加放线菌门及普雷沃氏菌属丰度,以提高仔猪肠道生物屏障强度[76]。据报道,肠道中的细菌可将初级BAs(PBAs)和次级BAs(SBAs)进行生物转化,其中,该SBAs的一部分被末端回肠和结肠吸收[77]。咖啡酸可以通过增加仔猪肠道有益菌(如乳酸菌)来维持BAs代谢稳定性并调节BAs细菌转化,最终维持断奶仔猪肠道微生物稳态[46]
综上所述,植物多酚在肠道微生态调节方面有显著效果,其可选择性调控菌群繁殖,抑制有害菌定植,维持肠道微生态平衡;抑制TLR4及NF-κB信号途径和β-防御素表达;促进pBD分泌及SCFAs合成与表达,保持肠道内适宜pH,调节BAs代谢稳定,从而调整肠道内菌群数量与组成,丰富微生物多样性,最终增强肠道生物屏障功能。

3 小结及展望

由此可见,植物多酚可通过多种信号途径和肠道微生物代谢等机制,显著改善猪肠道氧化还原平衡状态、优化肠道形态结构并增强肠黏膜屏障功能,从而有效维持宿主肠道健康。然而,过量添加可能诱发肠道内容物黏度增加、消化酶活性抑制等负面效应,导致腹泻率升高、饲料转化率下降及神经递质代谢紊乱等问题。因此,未来研究应系统构建不同来源植物多酚的剂量效应曲线模型,建立基于猪只生长阶段和健康状况的动态添加体系,为精准化饲粮配方提供科学依据。
[1]
ZHANG H, TSAO R. Dietary polyphenols,oxidative stress and antioxidant and anti-inflammatory effects[J]. Current Opinion in Food Science, 2016,8:33-42.

[2]
SINGLA R K, DUBEY A K, GARG A, et al. Natural polyphenols:chemical classification,definition of classes,subcategories,and structures[J]. Journal of AOAC International, 2019, 102(5):1397-1400.

[3]
WANG S H, DU Q Y, MENG X L, et al. Natural polyphenols:a potential prevention and treatment strategy for metabolic syndrome[J]. Food & Function, 2022, 13(19):9734-9753.

[4]
GAO J X, YANG Z, ZHAO C Q, et al. A comprehensive review on natural phenolic compounds as alternatives to in-feed antibiotics[J]. Science China:Life Sciences, 2023, 66(7):1518-1534.

[5]
ZHUANG Y, WU H R, WANG X X, et al. Resveratrol attenuates oxidative stress-induced intestinal barrier injury through PI3K/Akt-mediated Nrf2 signaling pathway[J]. Oxidative Medicine and Cellular Longevity, 2019,2019:7591840.

[6]
HUANG Y J, ZHENG C B, SONG B, et al. Resveratrol ameliorates intestinal damage challenged with deoxynivalenol through mitophagy in vitro and in vivo[J]. Frontiers in Veterinary Science, 2021,8:807301.

[7]
CHANDRASEKARAN V, HEDIYAL T A, ANAND N, et al. Polyphenols,autophagy and neurodegenerative diseases:a review[J]. Biomolecules, 2023, 13(8):1196.

[8]
CHEN Y N, ZHANG H, JI S L, et al. Resveratrol and its derivative pterostilbene attenuate oxidative stress-induced intestinal injury by improving mitochondrial redox homeostasis and function via SIRT1 signaling[J]. Free Radical Biology and Medicine, 2021,177:1-14.

[9]
TATSUTA T, MODEL K, LANGER T. Formation of membrane-bound ring complexes by prohibitins in mitochondria[J]. Molecular Biology of the Cell, 2005, 16(1):248-259.

DOI PMID

[10]
HARDIE D G, ROSS F A, HAWLEY S A. AMPK:a nutrient and energy sensor that maintains energy homeostasis[J]. Nature Reviews Molecular Cell Biology, 2012, 13(4):251-262.

[11]
CHEN X, ZHU Y J, SHI X Q, et al. Ming-Mu-Di-Huang-Pill activates SQSTM1 via AMPK-mediated autophagic Keap1 degradation and protects RPE cells from oxidative damage[J]. Oxidative Medicine and Cellular Longevity, 2022,2022:5851315.

[12]
CAO S T, WANG C C, YAN J T, et al. Curcumin ameliorates oxidative stress-induced intestinal barrier injury and mitochondrial damage by promoting Parkin dependent mitophagy through AMPK-TFEB signal pathway[J]. Free Radical Biology & Medicine, 2020,147:8-22.

[13]
LIANG J H, ZHOU Y, CHENG X Y, et al. Baicalin attenuates H2O2-induced oxidative stress by regulating the AMPK/Nrf2 signaling pathway in IPEC-J2 cells[J]. International Journal of Molecular Sciences, 2023, 24(11):9435.

[14]
WU M J, YI D, ZHANG Q, et al. Puerarin enhances intestinal function in piglets infected with porcine epidemic diarrhea virus[J]. Scientific Reports, 2021, 11(1):6552.

DOI PMID

[15]
GUO Q, ZHAO B L, LI M F, et al. Studies on protective mechanisms of four components of green tea polyphenols against lipid peroxidation in synaptosomes[J]. Biochimica et Biophysica Acta:Lipids and Lipid Metabolism, 1996, 1304(3):210-222.

[16]
BEŠLO D, GOLUBIĆ N, RASTIJA V, et al. Antioxidant activity,metabolism,and bioavailability of polyphenols in the diet of animals[J]. Antioxidants, 2023, 12(6):1141.

[17]
CHEN J L, YU B, CHEN D W, et al. Chlorogenic acid improves intestinal barrier functions by suppressing mucosa inflammation and improving antioxidant capacity in weaned pigs[J]. The Journal of Nutritional Biochemistry, 2018,59:84-92.

[18]
KOZIEŁ M J, KOWALSKA K, PIASTOWSKA-CIESIELSKA A W. Nrf2:a main responsive element in cells to mycotoxin-induced toxicity[J]. Archives of Toxicology, 2021, 95(5):1521-1533.

[19]
WEI C, CHEN X L, CHEN D W, et al. Dihydromyricetin enhances intestinal antioxidant capacity of growing-finishing pigs by activating ERK/Nrf2/HO-1 signaling pathway[J]. Antioxidants, 2022, 11(4):704.

[20]
BAO M L, LIANG M, SUN X Y, et al. Baicalin alleviates LPS-induced oxidative stress via NF-κB and Nrf2-HO1 signaling pathways in IPEC-J2 cells[J]. Frontiers in Veterinary Science, 2022,8:808233.

[21]
曹沛文. 包膜单宁酸对断奶仔猪生长性能、腹泻和肠道功能影响的研究[D]. 硕士学位论文. 杭州: 浙江大学, 2021.

CAO P W. Effects of coated tannic acid on growth performance,diarrhea and intestinal function of weaned piglets[D]. Master’s Thesis. Hangzhou: Zhejiang University, 2021. (in Chinese)

[22]
任中帅. 黑果腺肋花楸果渣对猪生长性能的影响及机制研究[D]. 硕士学位论文. 长春: 吉林大学, 2023.

REN Z S. Effects and mechanism of Aronia melanocarpa pomace on the growth performance of pigs[D]. Master’s Thesis. Changchun: Jilin University, 2023. (in Chinese)

[23]
HONG C M, HUANG Y J, YANG G, et al. Maternal resveratrol improves the intestinal health and weight gain of suckling piglets during high summer temperatures:the involvement of exosome-derived microRNAs and immunoglobin in colostrum[J]. Animal Nutrition, 2024,17:36-48.

[24]
GUO C E, CUI Q Y, CHENG J H, et al. Probiotic-fermented Chinese dwarf cherry[Cerasus humilis(Bge.) Sok.]juice modulates the intestinal mucosal barrier and increases the abundance of Akkermansia in the gut in association with polyphenols[J]. Journal of Functional Foods, 2021,80:104424.

[25]
SPECIALE A, MOLONIA M S, MUSCARà C, et al. An overview on the cellular mechanisms of anthocyanins in maintaining intestinal integrity and function[J]. Fitoterapia, 2024,175:105953.

[26]
GROSCHWITZ K R, HOGAN S P. Intestinal barrier function: molecular regulation and disease pathogenesis[J]. The Journal of Allergy and Clinical Immunology, 2009, 124(1):3-20.

DOI PMID

[27]
FIESEL A, GESSNER D K, MOST E, et al. Effects of dietary polyphenol-rich plant products from grape or hop on pro-inflammatory gene expression in the intestine,nutrient digestibility and faecal microbiota of weaned pigs[J]. BMC Veterinary Research, 2014,10:196.

[28]
XUN W J, SHI L G, ZHOU H L, et al. Effects of curcumin on growth performance,jejunal mucosal membrane integrity,morphology and immune status in weaned piglets challenged with enterotoxigenic Escherichia coli[J]. International Immunopharmacology, 2015, 27(1):46-52.

[29]
QIU Y Q, NIE X Z, YANG J, et al. Effect of resveratrol supplementation on intestinal oxidative stress,immunity and gut microbiota in weaned piglets challenged with deoxynivalenol[J]. Antioxidants, 2022, 11(9):1775.

[30]
WANG Y Q, TANG Q C, DUAN P B, et al. Curcumin as a therapeutic agent for blocking NF-κB activation in ulcerative colitis[J]. Immunopharmacology and Immunotoxicology, 2018, 40(6):476-482.

[31]
ZHANG Y L, DONG C. MAP kinases in immune responses[J]. Cellular & Molecular Immunology, 2005, 2(1):20-27.

[32]
ZOU Y, WEI H K, XIANG Q H, et al. Protective effect of quercetin on pig intestinal integrity after transport stress is associated with regulation oxidative status and inflammation[J]. Journal of Veterinary Medical Science, 2016, 78(9):1487-1494.

PMID

[33]
RAZZUOLI E, AMADORI M, LAZZARA F, et al. Salmonella serovar-specific interaction with jejunal epithelial cells[J]. Veterinary Microbiology, 2017,207:219-225.

[34]
HUANG T H, HUANG X L, SHI B M, et al. Regulators of salmonella-host interaction identified by peripheral blood transcriptome profiling:roles of TGFB1 and TRP53 in intracellular Salmonella replication in pigs[J]. Veterinary Research, 2018, 49(1):121.

[35]
FERLISI F, DE CIUCIS C G, TRABALZA-MARINUCCI M, et al. Olive mill waste-water extract enriched in hydroxytyrosol and tyrosol modulates host-pathogen interaction in IPEC-J2 cells[J]. Animals, 2024, 14(4):564.

[36]
ZHANG B B, TIAN M, WU J, et al. Chlorogenic acid enhances the intestinal health of weaned piglets by inhibiting the TLR4/NF-κB pathway and activating the Nrf2 pathway[J]. International Journal of Molecular Sciences, 2024, 25(18):9954.

[37]
HULL T D, AGARWAL A, GEORGE J F. The mononuclear phagocyte system in homeostasis and disease:a role for heme oxygenase-1[J]. Antioxidants & Redox Signaling, 2014, 20(11):1770-1788.

[38]
CHEN J L, LUO Y H, LI Y, et al. Chlorogenic acid attenuates oxidative stress-induced intestinal epithelium injury by co-regulating the PI3K/Akt and IκBα/NF-κB signaling[J]. Antioxidants, 2021, 10(12):1915.

[39]
WANG K, LV Q, MIAO Y M, et al. Cardamonin,a natural flavone, alleviates inflammatory bowel disease by the inhibition of NLRP3 inflammasome activation via an AhR/Nrf2/NQO1 pathway[J]. Biochemical Pharmacology, 2018,155:494-509.

[40]
XUN W J, FU Q Y, SHI L G, et al. Resveratrol protects intestinal integrity,alleviates intestinal inflammation and oxidative stress by modulating AhR/Nrf2 pathways in weaned piglets challenged with diquat[J]. International Immunopharmacology, 2021,99:107989.

[41]
LIN Y Q, LUO T Y, WENG A L, et al. Gallic acid alleviates gouty arthritis by inhibiting NLRP3 inflammasome activation and pyroptosis through enhancing Nrf2 signaling[J]. Frontiers in Immunology, 2020,11:580593.

[42]
LIU W H, GUO K K. Tannic acid alleviates ETEC K88-induced intestinal damage through regulating the p62-keap1-Nrf2 and TLR4-NF-κB-NLRP3 pathway in IPEC-J2 cells[J]. Journal of the Science of Food and Agriculture, 2024, 104(9):5186-5196.

[43]
WEN X B, WAN F, ZHONG R Q, et al. Hydroxytyrosol alleviates intestinal oxidative stress by regulating bile acid metabolism in a piglet model[J]. International Journal of Molecular Sciences, 2024, 25(11):5590.

[44]
ZHU M, LU E Q, FANG Y X, et al. Piceatannol alleviates deoxynivalenol-induced damage in intestinal epithelial cells via inhibition of the NF-κB pathway[J]. Molecules, 2024, 29(4):855.

[45]
MENG X Y, YU W Y, DUAN N, et al. Protective effects of ferulic acid on deoxynivalenol-induced toxicity in IPEC-J2 cells[J]. Toxins, 2022, 14(4):275.

[46]
WEN X B, WAN F, WU Y, et al. Caffeic acid modulates intestinal microbiota,alleviates inflammatory response,and enhances barrier function in a piglet model challenged with lipopolysaccharide[J]. Journal of Animal Science, 2024,102:skae233.

[47]
HEIDEBRECHT H J, KULOZIK U. Fractionation of casein micelles and minor proteins by microfiltration in diafiltration mode.Study of the transmission and yield of the immunoglobulins IgG,IgA and IgM[J]. International Dairy Journal, 2019,93:1-10.

[48]
GAN Z D, WEI W Y, LI Y, et al. Curcumin and resveratrol regulate intestinal bacteria and alleviate intestinal inflammation in weaned piglets[J]. Molecules, 2019, 24(7):1220.

[49]
WAN M L Y, LING K H, WANG M F, et al. Green tea polyphenol epigallocatechin-3-gallate improves epithelial barrier function by inducing the production of antimicrobial peptide pBD-1 and pBD-2 in monolayers of porcine intestinal epithelial IPEC-J2 cells[J]. Molecular Nutrition & Food Research, 2016, 60(5):1048-1058.

[50]
MIURA H, JIMBO I, ODA M, et al. Effect of porcine colostral exosomes on T cells in the peripheral blood of suckling piglets[J]. Animals, 2022, 12(17):2172.

[51]
丛馨, 张艳, 俞光岩, 等. 上皮细胞间紧密连接功能的研究进展[J]. 生理学报, 2016, 68(4):492-504.

CONG X, ZHANG Y, YU G Y, et al. Research progress on the function of epithelial tight junction[J]. Acta Physiologica Sinica, 2016, 68(4):492-504. (in Chinese)

[52]
WEN X B, WAN F, WU Y, et al. Caffeic acid supplementation ameliorates intestinal injury by modulating intestinal microbiota in LPS-challenged piglets[J]. Food & Function, 2023, 14(16):7705-7717.

[53]
DOGANAY M, AYGEN B. Human brucellosis:an overview[J]. International Journal of Infectious Diseases, 2003, 7(3):173-182.

[54]
赵铭伟. 鞣花酸对断奶仔猪小肠黏膜形态及肠黏膜屏障功能的影响[D]. 硕士学位论文. 南宁: 广西大学, 2020.

ZHAO M W. Effect of ellagic acid on intestinal mucosal morphology and intestinal mucosal barrier function in weaned piglets[D]. Master’s Thesis. Nanning: Guangxi University, 2020. (in Chinese)

[55]
ZHU L H, ZHAO K L, CHEN X L, et al. Impact of weaning and an antioxidant blend on intestinal barrier function and antioxidant status in pigs[J]. Journal of Animal Science, 2012, 90(8):2581-2589.

DOI PMID

[56]
YAN E F, ZHANG J Q, HAN H L, et al. Curcumin alleviates IUGR jejunum damage by increasing antioxidant capacity through Nrf2/Keap1 pathway in growing pigs[J]. Animals, 2019, 10(1):41.

[57]
CHEN J L, XIE H M, CHEN D W, et al. Chlorogenic acid improves intestinal development via suppressing mucosa inflammation and cell apoptosis in weaned pigs[J]. ACS Omega, 2018, 3(2):2211-2219.

DOI PMID

[58]
VEREDIANO T A. Effect of black corn(Zea mays L.)on adipogenesis,inflammation,oxidative stress and intestinal health in vivo[D].Ph.D.Thesis. Viçosa: Universidade Federal de Viçosa, 2023.

[59]
FAN Y Q, YANG Q, YANG Y J, et al. SIRT6 suppresses high glucose-induced mitochondrial dysfunction and apoptosis in podocytes through AMPK activation[J]. International Journal of Biological Sciences, 2019, 15(3):701-713.

DOI PMID

[60]
SHEN P, DENG X, CHEN Z, et al. SIRT1:a potential therapeutic target in autoimmune diseases[J]. Frontiers in Immunology, 2021,12:779177.

[61]
LUO X, WU S Z, JIA H, et al. Resveratrol alleviates enterotoxigenic Escherichia coli K88-induced damage by regulating SIRT-1 signaling in intestinal porcine epithelial cells[J]. Food & Function, 2022, 13(13):7346-7360.

[62]
LING K H, WAN M L Y, EL-NEZAMI H, et al. Protective capacity of resveratrol,a natural polyphenolic compound,against deoxynivalenol-induced intestinal barrier dysfunction and bacterial translocation[J]. Chemical Research in Toxicology, 2016, 29(5):823-833.

[63]
BEN D F, YU X Y, JI G Y, et al. TLR4 mediates lung injury and inflammation in intestinal ischemia-reperfusion[J]. Journal of Surgical Research, 2012, 174(2):326-333.

[64]
YONG Y H, LI J Y, GONG D L, et al. ERK1/2 mitogen-activated protein kinase mediates downregulation of intestinal tight junction proteins in heat stress-induced IBD model in pig[J]. Journal of Thermal Biology, 2021,101:103103.

[65]
YU J, SONG Y Y, YU B, et al. Tannic acid prevents post-weaning diarrhea by improving intestinal barrier integrity and function in weaned piglets[J]. Journal of Animal Science and Biotechnology, 2020,11:87.

[66]
GONZÁLEZ-MARISCAL L, TAPIA R, CHAMORRO D. Crosstalk of tight junction components with signaling pathways[J]. Biochimica et Biophysica Acta:General Subjects, 2008, 1778(3):729-756.

[67]
曹舒婷. AMPK-PINK1/Parkin介导的线粒体自噬在氧化应激仔猪肠屏障修复中的作用及姜黄素的调控机制[D]. 博士学位论文. 杭州: 浙江大学, 2020.

CAO S T. The role of AMPK-PINK1/Parkin-mediated mitophagy in intestinal barrier repair in oxidative stress piglets and the regulatory mechanism of curcumin[D]. Ph.D.Thesis. Hangzhou: Zhejiang University, 2020. (in Chinese)

[68]
刘昊, 张备, 牟晓阳, 等. 姜黄素对断奶仔猪生长性能、腹泻率、抗氧化指标和免疫指标的影响[J]. 当代畜禽养殖业, 2024, 44(2):11-14.

LIU H, ZHANG B, MOU X Y, et al. Effects of curcumin on growth performance, diarrhea rate, antioxidant indexes and immune indexes of weaned piglets[J]. Modern Livestock and Poultry Breeding Industry, 2024, 44(2):11-14. (in Chinese)

[69]
REN Z H, GUO C Y, YU S M, et al. Progress in mycotoxins affecting intestinal mucosal barrier function[J]. International Journal of Molecular Sciences, 2019, 20(11):2777.

[70]
CHU H K, DUAN Y, YANG L, et al. Small metabolites, possible big changes:a microbiota-centered view of non-alcoholic fatty liver disease[J]. Gut, 2019, 68(2):359-370.

[71]
LIU C, HUA H Y, ZHU H K, et al. Aloe polysaccharides ameliorate acute colitis in mice via Nrf2/HO-1 signaling pathway and short-chain fatty acids metabolism[J]. International Journal of Biological Macromolecules, 2021,185:804-812.

[72]
梅华迪, 李袁飞, 马现永, 等. 槲皮素对动物肠道黏膜屏障功能的影响及其调控机制[J]. 动物营养学报, 2022, 34(9):5475-5488.

DOI

MEI H D, LI Y F, MA X Y, et al. Effects and regulatory mechanisms of quercetin on animal intestinal mucosal barrier function[J]. Chinese Journal of Animal Nutrition, 2022, 34(9):5475-5488. (in Chinese)

DOI

[73]
乔天磊. 饲粮中添加咖啡酸对断奶仔猪生长性能和肠道屏障功能的影响[D]. 硕士学位论文. 雅安: 四川农业大学, 2023.

QIAO T L. Effects of dietary caffeic acid on growth performance and intestinal barrier function of weaned piglets[D]. Master’s Thesis. Ya’an: Sichuan Agricultural University, 2023. (in Chinese)

[74]
CHEN J L, LI Y, YU B, et al. Dietary chlorogenic acid improves growth performance of weaned pigs through maintaining antioxidant capacity and intestinal digestion and absorption function[J]. Journal of Animal Science, 2018, 96(3):1108-1118.

DOI PMID

[75]
何梦晓. 夏秋茶叶粉对仔猪肠道微生态和脂肪代谢的影响[D]. 硕士学位论文. 合肥: 安徽农业大学, 2017.

HE M X. Effects of summer-autumn tea powder on intestinal microecology and lipid metabolism of piglets[D]. Master’s Thesis. Hefei: Anhui Agricultural University, 2017. (in Chinese)

[76]
GAO Y N, MENG Q W, QIN J W, et al. Resveratrol alleviates oxidative stress induced by oxidized soybean oil and improves gut function via changing gut microbiota in weaned piglets[J]. Journal of Animal Science and Biotechnology, 2023, 14(1):54.

DOI PMID

[77]
BAI X W, WEI H, LIU W X, et al. Cigarette smoke promotes colorectal cancer through modulation of gut microbiota and related metabolites[J]. Gut, 2022, 71(12):2439-2450.

DOI PMID

文章导航

/