研究论文

谷胱甘肽对免疫应激断奶仔猪肌肉游离氨基酸含量、肌纤维发育和脂质代谢相关基因表达的影响

  • 王天丽 , 1, 2 ,
  • 王霞 3 ,
  • 鲁帆 1, 2 ,
  • 何流琴 , 1, 4, * ,
  • 许岗 5 ,
  • 赵强 5 ,
  • 印遇龙 1, 2 ,
  • 李铁军 , 1, 2, *
展开
  • 1 中国科学院亚热带农业生态研究所,动物营养生理与代谢过程湖南省重点实验室,畜禽养殖污染控制与资源化技术国家工程实验室,长沙 410125
  • 2 中国科学院大学现代农业科学学院,北京 100049
  • 3 广西师范大学生命科学学院,珍稀濒危动植物生态与环境保护教育部重点实验室,桂林 541006
  • 4 湖南师范大学生命科学学院,动物肠道功能调控湖南省重点实验室,长沙 410081
  • 5 湖南福来格生物技术有限公司,长沙 410100
*何流琴,教授,博士生导师,E-mail: ;李铁军,研究员,博士生导师,E-mail:

赵三川(2002—),男,安徽阜阳人,硕士研究生,从事动物营养与肉质调控研究。E-mail:

Copy editor: 靳爽

收稿日期: 2024-12-31

  网络出版日期: 2025-08-14

基金资助

长春市科技发展计划项目(24SH16)

广西重点研发计划(桂科AB22035039)

国家自然科学基金(U23A20233)

国家自然科学基金(32172755)

湖南省科技创新计划(2023RC1054)

Effects of Glutathione on Muscle Free Amino Acid Contents, Expression of Genes Related to Muscle Fiber Development and Lipid Metabolism of Weaned Piglets under Immune Stress

  • WANG Tianli , 1, 2 ,
  • WANG Xia 3 ,
  • LU Fan 1, 2 ,
  • HE Liuqin , 1, 4, * ,
  • XU Gang 5 ,
  • ZHAO Qiang 5 ,
  • YIN Yulong 1, 2 ,
  • LI Tiejun , 1, 2, *
Expand
  • 1 Hunan Provincial Key Laboratory of Animal Nutritional Physiology and Metabolic Process, National Engineering Laboratory for Pollution Control and Waste Utilization in Livestock and Poultry Production, Institute of Subtropical Agriculture, Chinese Academy of Sciences, Changsha 410125, China
  • 2 College of Advanced Agricultural Sciences, University of Chinese Academy of Sciences, Beijing 100049, China
  • 3 Key Laboratory of Ecology of Rare and Endangered Species and Environmental Protection, Ministry of Education, College of Life Science, Guangxi Normal University, Guilin 541006, China
  • 4 Hunan Province Key Laboratory of Animal Intestinal Function and Regulation, College of Life Sciences, Hunan Normal University, Changsha 410081, China
  • 5 Hunan Flag Bio-Technology Co., Ltd., Changsha 410100, China
*HE Liuqin, professor, E-mail: ; LI Tiejun, professor, E-mail:

Received date: 2024-12-31

  Online published: 2025-08-14

摘要

本试验旨在研究谷胱甘肽(GSH)对免疫应激断奶仔猪肌肉游离氨基酸含量、肌纤维发育及脂质代谢相关基因表达的影响。选取35头28日龄的健康“杜×长×大”断奶仔猪,预饲5 d基础饲粮后,按体重[(9.52±0.20) kg]相近的原则随机分为5组,每组7个重复,每个重复1头猪。对照组(CON组)和免疫应激组(PQ组)饲喂基础饲粮,0.01% GSH+免疫应激组(LGSH+PQ组)、0.03% GSH+免疫应激组(MGSH+PQ组)和0.06% GSH+免疫应激组(HGSH+PQ组)分别饲喂在基础饲粮中添加0.01%、0.03%和0.06% GSH的饲粮。正试期28 d。PQ组和各GSH+PQ组断奶仔猪分别于正试期第23、25、27天腹腔注射8 mg/kg BW的百草枯(PQ),CON组注射等量的0.9%生理盐水,第28天进行屠宰取样。结果表明:1)与CON组相比,PQ组与各GSH+PQ组背最长肌、股二头肌和腰大肌甘氨酸含量和呈味氨基酸/总氨基酸均显著降低(P<0.05),背最长肌和腰大肌必需氨基酸/总氨基酸显著升高(P<0.05);PQ组股二头肌和腰大肌半胱氨酸含量显著升高(P<0.05)。与PQ组相比,MGSH+PQ组股二头肌和腰大肌半胱氨酸含量显著降低(P<0.05)。2)PQ处理未导致各部位肌肉出现明显炎症反应。3)与CON组相比,PQ组背最长肌和股二头肌生肌决定因子(MyoD)的mRNA相对表达量显著降低(P<0.05),腰大肌肌球蛋白重链Ⅱx(MyHC Ⅱx)的mRNA相对表达量显著升高(P<0.05)。与PQ组相比,LGSH+PQ组背最长肌MyoD的mRNA相对表达量显著升高(P<0.05);MGSH+PQ组和HGSH+PQ组股二头肌和腰大肌生肌调节因子5(Myf5)的mRNA相对表达量均显著升高(P<0.05)。4)与CON组相比,各GSH+PQ组背最长肌激素敏感脂酶(HSL)的mRNA相对表达量显著升高(P<0.05);PQ组腰大肌HSL的mRNA相对表达量则显著降低(P<0.05)。与PQ组相比,MGSH+PQ组背最长肌脂肪酸转运蛋白1(FATP1)的mRNA相对表达量显著升高(P<0.05);MGSH+PQ组和HGSH+PQ组股二头肌FATP1的mRNA相对表达量显著升高(P<0.05);各GSH+PQ组腰大肌HSLFATP1的mRNA相对表达量均显著升高(P<0.05)。综上所述,免疫应激未使断奶仔猪肌肉出现明显的炎症反应,但会导致肌肉呈味氨基酸含量降低、肌纤维发育受阻、肌纤维类型转化及脂质代谢异常。饲粮中添加GSH能在一定程度上缓解免疫应激引发的断奶仔猪上述负面影响,其中以0.03%添加量的缓解效果较好。

本文引用格式

王天丽 , 王霞 , 鲁帆 , 何流琴 , 许岗 , 赵强 , 印遇龙 , 李铁军 . 谷胱甘肽对免疫应激断奶仔猪肌肉游离氨基酸含量、肌纤维发育和脂质代谢相关基因表达的影响[J]. 动物营养学报, 2025 , 37(8) : 5084 -5098 . DOI: 10.12418/CJAN2025.415

Abstract

This experiment was conducted to investigate the effects of glutathione (GSH) on muscle free amino acid contents, expression of genes related to muscle fiber development and lipid metabolism of weaned piglets under immune stress. Thirty-five healthy 28-day-old “Duroc×Landrace×Yrokshire” weaned piglets were selected. After a 5-day pre-feeding with a basal diet, they were randomly divided into 5 groups according to the principle of similar body weight [(9.52±0.20) kg], with 7 replicates per group and 1 piglet per replicate. The control group (CON group) and immune stress group (PQ group) were fed a basal diet, while the 0.01%GSH+immune stress group (LGSH+PQ group), 0.03%GSH+immune stress group (MGSH+PQ group) and 0.06%GSH+immune stress group (HGSH+PQ group) were fed diets supplemented with 0.01%, 0.03% and 0.06% GSH in the basal diet, respectively. The formal trial period was 28 days. The piglets in PQ group and each GSH+PQ group were intraperitoneally injected with 8 mg/kg BW of paraquat (PQ) on days 23, 25 and 27 of the formal trial period, while the piglets in CON group were injected with the same amount of 0.9% normal saline. Slaughter and sampling were conducted on day 28. The results showed as follows: 1) compared with the CON group, the glycine content and the ratio of flavor amino acids to total amino acids in longissimus dorsi, biceps femoris and psoas major of the PQ group and each GSH+PQ group were significantly decreased (P<0.05), while the ratio of essential amino acids to total amino acids in longissimus dorsi and psoas major was significantly increased (P<0.05). The cysteine content in biceps femoris and psoas major of the PQ group was significantly increased (P<0.05). Compared with the PQ group, the cysteine content in biceps femoris and psoas major of the MGSH+PQ group was significantly decreased (P<0.05). 2) PQ treatment did not cause obvious inflammatory responses in muscles of various sites. 3) Compared with the CON group, the mRNA relative expression level of myogenic determination factor (MyoD) in longissimus dorsi and biceps femoris of the PQ group was significantly decreased (P<0.05), while the mRNA relative expression level of myosin heavy chain Ⅱx (MyHC Ⅱx) in psoas major was significantly increased (P<0.05). Compared with the PQ group, the mRNA relative expression level of MyoD in longissimus dorsi of the LGSH+PQ group was significantly increased (P<0.05); the mRNA relative expression level of myogenic regulatory factor 5 (Myf5) in biceps femoris and psoas major of the MGSH+PQ and HGSH+PQ groups was significantly increased (P<0.05). 4) Compared with the CON group, the mRNA relative expression level of hormone-sensitive lipase (HSL) in longissimus dorsi of each GSH+PQ group was significantly increased (P<0.05); while the mRNA relative expression level of HSL in psoas major of the PQ group was significantly decreased (P<0.05). Compared with the PQ group, the mRNA relative expression level of fatty acid transport protein 1 (FATP1) in longissimus dorsi of the MGSH+PQ group was significantly increased (P<0.05); the mRNA relative expression level of FATP1 in biceps femoris of the MGSH+PQ and HGSH+PQ groups was significantly increased (P<0.05); the mRNA relative expression levels of both HSL and FATP1 in psoas major of each GSH+PQ group were significantly increased (P<0.05). In conclusion, immune stress did not induce obvious inflammatory responses in muscles of weaned piglets. However, it led to a reduction in flavor amino acid content, impaired muscle fiber development, transformation of muscle fiber types and abnormal lipid metabolism. Dietary supplementation with GSH can alleviate these negative effects on weaned piglets to some extent, with the optimal alleviating effect observed at a supplementation level of 0.03%.

断奶仔猪阶段是生猪养殖的关键时期。由于自身生理特点,该阶段的仔猪极易受到环境和营养等因素的影响,从而出现各种应激反应。其中,由细菌、病毒等因素刺激免疫系统所引发的免疫应激,是抑制仔猪生长的重要因素之一[1-2]。目前,用于研究动物免疫应激的模型主要有脂多糖模型[3-4]、百草枯模型[5-6]等。建立免疫应激模型有助于寻找合适的抗应激物质,进而通过营养调控手段缓解动物的应激反应。百草枯(paraquat,PQ)是一种广泛使用的除草剂,主要通过在细胞内发生氧化还原反应,产生大量活性氧(reactive oxide species,ROS),引起氧化应激损伤,进而激活免疫细胞和相关信号通路,最终导致免疫应激反应[5]。谷胱甘肽(glutathione,GSH)作为一种重要的抗氧化剂,已被广泛证实具有改善生长性能、缓解动物断奶应激及氧化应激、改善肉品质等生理作用。本课题组前期研究表明,使用PQ建立免疫应激模型后,仔猪的平均日增重显著降低;而补饲0.03%和0.06% GSH可使免疫应激仔猪平均日增重分别提高17.14%和54.29%[7],这说明GSH具有缓解免疫应激对生长性能造成的不良影响的潜力。在动物的生长过程中,骨骼肌的生长发育极为关键,其不仅直接影响机体的生长性能、肌肉产量等重要指标,还与养殖经济效益密切相关[8]。然而,现有研究多集中于GSH对动物整体生长性能和抗氧化能力的影响方面,关于其在免疫应激条件下对骨骼肌发育及相关基因表达的影响方面研究较少。因此,本试验在课题组前期研究[7]的基础上,探究GSH对免疫应激断奶仔猪不同部位骨骼肌中游离氨基酸含量以及炎性因子、肌纤维发育和脂质代谢相关基因表达的影响,以期为缓解断奶仔猪免疫应激提供新的营养干预策略。

1 材料与方法

1.1 试验材料

PQ购于成都某化学试剂有限公司。GSH由湖南某生物技术有限公司提供,纯度≥95.51%。

1.2 试验设计及饲养管理

饲养试验在中国科学院亚热带农业生态研究所动物房开展,试验过程符合相关动物福利标准,且已通过动物福利伦理审查(审查编号:ISA-2024-0098)。选取35头28日龄的健康“杜×长×大”断奶仔猪,预饲5 d基础饲粮后,按体重[(9.52±0.20) kg]相近的原则随机分为5组,每组7个重复,每个重复1头猪。对照组(CON组)和免疫应激组(PQ组)饲喂基础饲粮,0.01% GSH+免疫应激组(LGSH+PQ组)、0.03% GSH+免疫应激组(MGSH+PQ组)和0.06% GSH+免疫应激组(HGSH+PQ组)分别饲喂在基础饲粮中添加0.01%、0.03%和0.06% GSH的饲粮。正试期28 d。PQ组和各GSH+PQ组断奶仔猪分别于正试期第23、25、27天腹腔注射8 mg/kg BW的PQ,CON组注射等量的0.9%生理盐水[7],第28天进行屠宰取样。基础饲粮参照NRC(2012)推荐的10~30 kg猪的营养需要配制,其组成及营养水平见表1。试验期间,仔猪单栏饲养,自由采食和饮水,遵循“少添勤加”原则,当料槽内剩料量较少时及时补料。
表1 基础饲粮组成及营养水平(风干基础)

Table 1 Composition and nutrient levels of the basal diet (air-dry basis) %

项目Items 含量Content
原料Ingredients
熟化玉米Cooked corn 31.45
熟化大米Cooked rice 25.60
面粉Flour 12.50
膨化大豆Extruded soybean 6.40
鱼粉Fish meal 3.50
熟化豆粕Cooked soybean meal 5.00
发酵豆粕Fermented soybean meal 5.00
氯化胆碱Choline chloride (50%) 0.10
磷酸氢钙CaHPO4 0.80
石粉Limestone 0.50
葡萄糖Glucose 2.50
蔗糖Sucrose 2.80
大豆油Soybean oil 1.25
食盐NaCl 0.40
L-赖氨酸盐酸盐L-Lys·HCl 0.77
L-苏氨酸L-Thr 0.36
DL-蛋氨酸DL-Met 0.38
L-色氨酸L-Trp 0.12
项目Items 含量Content
L-缬氨酸L-Val 0.38
预混料Premix1) 0.19
合计Total 100.00
营养水平Nutrient levels2)
净能NE/(MJ/kg) 10.25
粗蛋白质CP 17.32
粗脂肪EE 3.76
粗纤维CF 2.18
钙Ca 0.63
总磷TP 0.54
赖氨酸Lys 1.39
蛋氨酸Met 0.65
色氨酸Trp 0.29
苏氨酸Thr 0.95
缬氨酸Val 1.15

1)预混料为每千克饲粮提供The premix provided the following per kg of the diet:VA 10 000 IU,VE 30 mg,VD 3 000 IU,VK3 4 mg,VB1 4 mg,VB2 10 mg,VB6 6 mg,VB12 0.04 mg,烟酸 nicotinic acid 40 mg,泛酸 pantothenic acid 20 mg,叶酸 folic acid 2 mg,生物素 biotin 0.2 mg,Cu (as copper sulfate pentahydrate) 25 mg,Fe (as ferrous sulfate) 100 mg,Mn (as manganese sulfate) 25 mg,Zn (as zinc sulfate) 80 mg,I (as Calcium iodate) 0.8 mg,Se (as sodium selenite) 0.35 mg,Co (as cobalt chloride) 0.5 mg。
2)净能参考NRC(2012)计算得出,其余为实测值。NE was calculated according to NRC (2012), while the others were measured values.

1.3 样品采集

在正试期第28天,禁食12 h后,将所有仔猪颈动脉放血后进行屠宰,采集背最长肌、股二头肌和腰大肌,快速冷冻于液氮中,置于-80 ℃保存。

1.4 饲粮营养成分含量测定

饲粮粗蛋白质含量参照GB/T 6432—2018使用连续流动分析仪(AA3,Seal,德国)进行测定;粗脂肪含量参照GB/T 6433—2006使用索氏抽提仪(Soxtherm 6,Gerhardt,德国)进行测定;粗纤维含量参照GB/T 6434—2022使用全自动纤维分析仪(Fibretherm FT12,Gerhardt,德国)进行测定;钙、总磷含量参照NY/T 1653—2008使用电感耦合等离子体发射光谱仪(5110 ICP-OES,Agilent,美国)进行测定;氨基酸含量参照GB/T 18246—2019使用全自动氨基酸分析仪(L8900,日立,日本)进行测定[9]

1.5 肌肉游离氨基酸含量测定

称取0.5 g冻干肌肉样品,加入5~10 mL 0.01 mmol/L盐酸,充分混匀后超声浸提30 min,离心后将上清液转移至10 mL离心管中,重复操作2~3次,合并上清液并定容。摇匀后,准确吸取2 mL滤液至10 mL离心管中,加入2 mL正己烷进行脱脂处理,摇匀后静置,取1 mL下层滤液,加入1 mL 8%磺基水杨酸,混匀后静置15 min。以5 180×g的离心力离心10 min,用注射器吸取1.5 mL上清液,通过滤塞过滤后加入样品瓶中,使用全自动氨基酸分析仪(L-8900,日立,日本)对样品进行测定。

1.6 肌肉基因mRNA相对表达量测定

采用AG RNAex Pro RNA提取试剂(湖南艾科瑞生物工程有限公司)提取背最长肌、股二头肌和腰大肌中总RNA,经NanoDrop 2000微量紫外分光光度计(Thermo Fisher Scientific,Waltham,美国)测定浓度后,采用Evo M-MLV反转录预混型试剂盒(湖南艾科瑞生物工程有限公司)将其反转录为cDNA。以cDNA为模板,甘油醛-3-磷酸脱氢酶(GAPDH)为内参基因,采用SYBR®Green Pro Taq HS预混型qPCR试剂盒(湖南艾科瑞生物工程有限公司)及LightCycler 480Ⅱ(Roche,瑞士)进行相对定量测定。利用NCBI Primer-BLAST(https://www.ncbi.nlm.nih.gov/tools/primer-blast/)在线工具设计目的基因的引物序列(表2),引物由北京擎科生物科技有限公司合成。采用2-ΔΔCt法计算目的基因的mRNA相对表达量。目的基因包括白细胞介素-10(IL-10)、核因子-κB(NF-κB)、慢肌肌球蛋白重链(MyHC-slow)、生肌调节因子5(Myf5)、生肌决定因子(MyoD)、肌球蛋白重链Ⅱa(MyHC Ⅱa)、肌球蛋白重链Ⅱb(MyHC Ⅱb)、肌球蛋白重链Ⅱx(MyHC Ⅱx)、脂肪酸转运蛋白1(FATP1)、脂肪酸合成酶(FASN)和激素敏感脂酶(HSL)。
表2 PCR引物序列

Table 2 PCR primer sequences

基因
Genes
引物序列
Primer sequences (5'—3')
登录号
Accession number
产物长度
Product length/bp
甘油醛-3-磷酸脱氢酶GAPDH F:TCGGAGTGAACGGATTTGGC
R:TGACAAGCTTCCCGTTCTCC
NM_001206359.1 189
白细胞介素-10 IL-10 F:TGCATCCACTTCCCAACCAG
R:GGCAACCCAGGTAACCCTTA
NM_214041.1 154
核因子-κB NF-κB F:GGACAACTACGAGGTCTCCG
R:GCCTGAGAGGTGGTCTTCAC
NM_001048232.1 150
慢肌肌球蛋白重链MyHC-slow F:ATCGCTGAGTCCCAGGTCAA
R:CTTTGTTGCGCCCTCAGGAT
NM_213855.2 119
生肌调节因子5 Myf5 F:CTGTCCGCAGAAGATGGACC
R:CTCAAACTCGTCCCCGAACT
NM_001278775.1 112
生肌决定因子MyoD F:GAGAGCACTACAGCGGTGAC
R:GCTGTAATAGGTGCCGTCGT
NM_001002824.1 128
肌球蛋白重链Ⅱa MyHCa F:TATCCACCAGCCTGAACCTT
R:CTTGTGTCCCCGCATAATTCTC
XM_021066217.1 140
肌球蛋白重链Ⅱb MyHCb F:AGATGCCTCTGTCCTGTCCTT
R:TAGCCATTTCCTGGTCGGAAC
XM_021066035.1 151
肌球蛋白重链Ⅱx MyHCx F:ACAAGTTGCGGGTCAAGAGT
R:TTGTGTGCATTTCTTTGGTCAC
XM_021066024.1 97
脂肪酸转运蛋白1 FATP1 F:CCTGAACTTCTGGGAGCTGG
R:CAGCAACCATAGCAGGACCA
NM_001083931.1 101
脂肪酸合成酶FASN F:TCCCCGGATCACTACCTTGT
R:ACGTCCTCAAACACCACAGG
NM_001099930.1 143
激素敏感脂酶HSL F:CCCCTGTCCTTTCTGGATGAG
R:GGGACTGCCGACTATGGCTA
XM_013988600.2 116

1.7 数据统计与分析

数据经Excel 2021初步处理后,利用SPSS 26.0软件进行单因素方差分析(one-way ANOVA),并采用Duncan氏法进行多重比较,使用GraphPad Prism 8.0软件作图。结果以平均值±标准误表示,P<0.05为差异显著。

2 结果与分析

2.1 GSH对免疫应激断奶仔猪肌肉游离氨基酸含量的影响

表3表4表5可知,与CON组相比,PQ组与各GSH+PQ组背最长肌、股二头肌和腰大肌甘氨酸含量和呈味氨基酸/总氨基酸均显著降低(P<0.05),背最长肌和腰大肌必需氨基酸/总氨基酸显著升高(P<0.05);PQ组股二头肌和腰大肌半胱氨酸含量显著升高(P<0.05)。与PQ组相比,各GSH+PQ组背最长肌、股二头肌和腰大肌半胱氨酸含量均降低,其中MGSH+PQ组股二头肌和腰大肌半胱氨酸含量显著降低(P<0.05);MGSH+PQ组的各部位肌肉非必需氨基酸含量、呈味氨基酸含量、氨基酸总量均升高,但差异不显著(P>0.05)。
表3 GSH对免疫应激断奶仔猪背最长肌游离氨基酸含量的影响

Table 3 Effects of GSH on contents of free amino acids in longissimus dorsi of weaned piglets under immune stress μg/g

项目
Items
组别Groups P
P-value
CON PQ LGSH+PQ MGSH+PQ HGSH+PQ
必需氨基酸EAA
苏氨酸Thr 157.99±16.55 137.19±14.20 138.83±15.11 137.70±17.73 146.72±19.68 0.883
缬氨酸Val 229.48±38.91 167.67±32.90 137.78±4.80 169.27±42.42 161.02±18.51 0.287
蛋氨酸Met 69.74±5.01 73.23±3.81 84.10±5.72 79.54±5.98 79.61±2.69 0.261
异亮氨酸Ile 69.12±3.71d 82.51±6.53cd 127.67±7.18a 98.67±5.91bc 119.80±12.58ab <0.001
亮氨酸Leu 180.25±5.84c 210.32±13.05bc 251.75±13.74ab 245.34±13.75ab 260.98±21.20a 0.003
苯丙氨酸Phe# 237.76±6.11b 295.75±21.78a 326.20±13.56a 324.74±18.07a 323.70±16.37a 0.004
赖氨酸Lys 228.57±27.37 164.66±18.89 188.35±12.63 217.43±34.32 206.47±41.54 0.560
非必需氨基酸NEAA
天冬氨酸Asp# 44.51±4.98 29.75±6.22 32.13±5.35 45.21±7.20 26.69±3.80 0.082
丝氨酸Ser 176.18±3.65 157.32±17.63 167.63±11.89 205.29±32.98 166.28±13.92 0.440
谷氨酸Glu# 596.37±38.19 340.55±69.98 398.49±50.67 558.56±164.30 450.01±59.00 0.269
甘氨酸Gly# 1 144.16±142.22a 585.92±96.26b 405.15±36.86b 605.19±189.25b 397.32±28.80b <0.001
丙氨酸Ala# 1 022.52±61.81 771.50±97.56 783.20±38.84 908.29±140.18 776.31±62.62 0.218
半胱氨酸Cys 28.99±5.32 58.88±8.10 52.96±9.90 44.75±4.71 49.89±5.92 0.067
酪氨酸Tyr 218.21±7.10 239.02±14.95 257.56±16.42 265.66±23.97 231.87±12.97 0.251
组氨酸His 19.43±0.94c 29.97±2.64bc 44.10±4.32a 32.04±2.17b 41.77±6.35ab 0.001
精氨酸Arg 70.06±2.82b 94.39±9.24ab 123.43±12.40a 120.67±14.29a 121.82±20.25a 0.028
脯氨酸Pro 211.67±23.11 174.32±25.41 135.94±7.40 146.27±33.59 137.63±13.60 0.128
必需氨基酸EAA 1 193.85±83.18 1 225.15±95.62 1 322.03±76.80 1 299.44±115.22 1 323.12±113.18 0.820
非必需氨基酸NEAA 3 736.86±243.57 2 601.95±338.13 2 401.99±168.84 3 202.39±674.85 2 417.23±199.50 0.076
呈味氨基酸FAA 3 191.53±198.70a 2 123.29±283.71b 1 952.68±129.33b 2 650.21±557.01ab 2 086.09±163.01b 0.043
总氨基酸TAA 4 777.46±255.79 3 827.10±404.54 3 724.02±243.87 4 631.48±813.98 3 740.35±308.56 0.347
必需氨基酸/总氨基酸
EAA/TAA
0.26±0.01b 0.35±0.01a 0.36±0.00a 0.35±0.01a 0.36±0.00a <0.001
呈味氨基酸/总氨基酸
FAA/TAA
0.63±0.01a 0.53±0.01b 0.52±0.01b 0.54±0.01b 0.52±0.01b <0.001

#表示呈味氨基酸。同行数据肩标无字母或相同字母表示差异不显著(P>0.05),不同小写字母表示差异显著(P<0.05)。下表同。

# indicated flavor amino acids. In the same row, values with no letter or the same letter superscripts mean no significant difference (P>0.05), while with different small letter superscripts mean significant difference (P<0.05). The same as below.

表4 GSH对免疫应激断奶仔猪股二头肌游离氨基酸含量的影响

Table 4 Effects of GSH on contents of free amino acids in biceps femoris of weaned piglets under immune stress μg/g

项目
Items
组别Groups P
P-value
CON PQ LGSH+PQ MGSH+PQ HGSH+PQ
必需氨基酸EAA
苏氨酸Thr 190.24±15.18 189.18±13.18 203.07±46.86 178.77±25.75 149.99±21.63 0.646
缬氨酸Val 222.22±36.52 182.14±24.63 133.33±8.65 181.94±41.06 152.95±17.93 0.312
蛋氨酸Met 80.06±3.07 73.07±3.89 77.19±8.39 68.26±5.64 74.67±5.91 0.640
异亮氨酸Ile 89.39±3.96 106.10±10.54 111.17±7.47 128.66±11.45 111.97±7.18 0.053
亮氨酸Leu 223.22±8.07b 262.69±12.94ab 248.94±10.45ab 288.85±22.43a 249.09±14.92ab 0.046
苯丙氨酸Phe# 307.25±9.78 331.57±18.47 323.40±8.25 336.58±26.73 277.60±15.61 0.135
赖氨酸Lys 268.76±13.56 201.80±22.04 222.06±44.54 262.17±49.16 189.64±36.32 0.401
非必需氨基酸NEAA
天冬氨酸Asp# 84.32±12.27 44.68±6.57 53.29±11.92 91.60±29.16 40.29±3.59 0.082
丝氨酸Ser 201.22±7.74 205.20±14.24 179.43±15.46 229.47±32.30 176.06±16.12 0.291
谷氨酸Glu# 609.10±77.88 467.82±88.87 506.56±112.28 799.22±260.04 492.00±60.89 0.642
甘氨酸Gly# 1 085.20±90.91a 519.41±80.58b 403.67±49.15b 565.42±168.27b 332.65±24.63b <0.001
丙氨酸Ala# 1 161.19±39.15a 940.50±79.80ab 926.60±82.54ab 1 131.67±130.29a 827.45±56.46b 0.031
半胱氨酸Cys 42.26±4.04bc 58.01±4.26a 50.69±3.85ab 32.66±4.78c 47.50±2.98ab 0.004
酪氨酸Tyr 264.28±3.31a 250.82±9.44a 251.13±24.24a 267.76±21.69a 199.82±10.11b 0.025
组氨酸His 26.56±0.98 38.90±3.96 39.10±7.08 36.26±3.87 35.70±1.95 0.106
精氨酸Arg 94.09±5.89 130.12±9.00 112.37±10.60 155.35±23.14 109.87±15.82 0.061
脯氨酸Pro 208.91±22.93 149.51±11.07 158.86±30.93 157.88±26.34 126.98±13.96 0.079
必需氨基酸EAA 1 447.31±61.41 1 378.05±47.73 1 240.52±95.15 1 541.92±168.48 1 300.10±143.55 0.473
非必需氨基酸NEAA 3 856.34±222.11 2 799.81±263.65 2 578.34±302.16 3 752.26±762.31 2 520.20±228.48 0.058
呈味氨基酸FAA 3 347.54±176.73a 2 313.10±232.95abc 2 119.49±229.83bc 3 131.47±645.25ab 2 026.47±172.91c 0.025
总氨基酸TAA 5 257.65±289.68 4 498.62±349.52 3 818.86±395.37 5 294.18±918.13 3 820.30±366.99 0.126
必需氨基酸/总氨基酸
EAA/TAA
0.27±0.00b 0.35±0.02a 0.32±0.00a 0.31±0.02ab 0.35±0.01a 0.002
呈味氨基酸/总氨基酸
FAA/TAA
0.63±0.00a 0.54±0.02b 0.55±0.01b 0.58±0.02b 0.54±0.01b <0.001
表5 GSH对免疫应激断奶仔猪腰大肌游离氨基酸含量的影响

Table 5 Effects of GSH on contents of free amino acids in psoas major of weaned piglets under immune stress μg/g

项目
Items
组别Groups P
P-value
CON PQ LGSH+PQ MGSH+PQ HGSH+PQ
必需氨基酸EAA
苏氨酸Thr 165.76±14.55 163.57±14.58 135.29±13.33 147.01±9.84 140.81±16.78 0.483
缬氨酸Val 191.63±28.82 187.90±24.78 147.24±7.40 181.68±36.13 147.33±8.92 0.498
甲硫氨酸Met 68.19±2.09 82.51±2.25 78.36±4.39 80.97±4.42 70.72±7.36 0.177
异亮氨酸Ile 64.40±2.79b 109.65±9.12a 100.93±6.35a 97.15±4.00a 107.26±10.44a 0.003
亮氨酸Leu 170.49±9.86b 278.41±8.58a 259.48±15.27a 270.02±18.96a 257.97±17.75a <0.001
苯丙氨酸Phe# 247.02±10.56b 345.92±12.99a 342.17±16.57a 334.92±23.30a 332.78±27.01a 0.004
赖氨酸Lys 215.17±13.55a 174.78±16.38ab 145.60±11.32b 173.95±16.68ab 151.70±17.91b 0.033
非必需氨基酸NEAA
天冬氨酸Asp# 76.05±8.43 44.68±6.11 48.54±4.31 80.77±25.73 41.45±7.70 0.120
丝氨酸Ser 168.72±7.10 207.56±15.12 179.31±8.45 198.73±18.91 187.57±20.59 0.395
谷氨酸Glu# 585.43±42.76 497.35±58.13 433.16±32.47 576.03±127.38 445.69±31.66 0.302
甘氨酸Gly# 984.38±36.62a 479.35±67.89b 324.49±31.76b 547.25±152.40b 365.70±38.84b <0.001
丙氨酸Ala# 1 077.82±40.33 1 020.75±102.35 896.27±16.99 1 043.92±124.65 885.73±80.89 0.409
半胱氨酸Cys 27.95±3.27c 69.66±4.96a 49.22±10.33b 34.57±6.79bc 41.73±2.93bc <0.001
酪氨酸Tyr 173.42±5.27 230.33±19.16 205.08±13.53 212.85±26.99 201.62±24.59 0.391
组氨酸His 22.31±1.99b 44.79±4.33a 49.83±3.39a 46.16±1.58a 41.20±3.35a <0.001
精氨酸Arg 77.32±4.96b 139.88±10.56a 104.53±9.36ab 120.14±11.23a 133.86±17.53a 0.004
脯氨酸Pro 187.32±9.54 155.88±20.16 153.22±19.17 153.82±25.48 153.82±17.12 0.625
必需氨基酸EAA 1 121.69±30.94 1 446.65±79.57 1 249.63±77.15 1 391.15±131.26 1 210.39±107.65 0.098
非必需氨基酸NEAA 3 308.95±68.04 3 058.86±306.96 2 470.23±129.27 3 362.50±595.77 2 516.71±220.69 0.214
呈味氨基酸FAA 2 892.03±71.14 2 565.39±257.37 2 086.47±89.86 2 868.58±514.36 2 101.35±164.35 0.145
总氨基酸TAA 4 430.63±93.82 4 505.50±349.02 3 686.29±158.83 4 753.65±718.22 3 727.10±309.18 0.265
必需氨基酸/总氨基酸
EAA/TAA
0.25±0.00b 0.34±0.01a 0.34±0.01a 0.31±0.02a 0.33±0.01a <0.001
呈味氨基酸/总氨基酸
FAA/TAA
0.65±0.00a 0.55±0.01c 0.56±0.01c 0.59±0.02b 0.58±0.01bc <0.001

2.2 GSH对免疫应激断奶仔猪肌肉炎性因子基因表达的影响

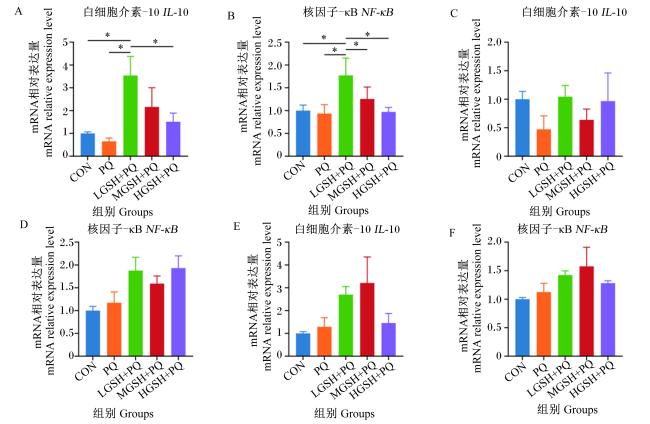
图1可知,LGSH+PQ组背最长肌IL-10的mRNA相对表达量显著高于其他4组(P<0.05),背最长肌NF-κB的mRNA相对表达量显著高于除MGSH+PQ组外的其他3组(P<0.05)。各组间股二头肌和腰大肌IL-10和NF-κB的mRNA相对表达量均无显著差异(P>0.05)。
图1 GSH对免疫应激断奶仔猪肌肉炎性因子基因表达的影响

A、B:背最长肌;C、D:股二头肌;E、F:腰大肌。A and B: longissimus dorsi; C and D: biceps femoris; E and F: psoas major.

*表示差异显著(P<0.05)。下图同。* indicated significant difference (P<0.05). The same as below.

Fig.1 Effects of GSH on expression of inflammatory factor genes in muscle of weaned piglets under immune stress

2.3 GSH对免疫应激断奶仔猪肌肉肌纤维发育相关基因表达的影响

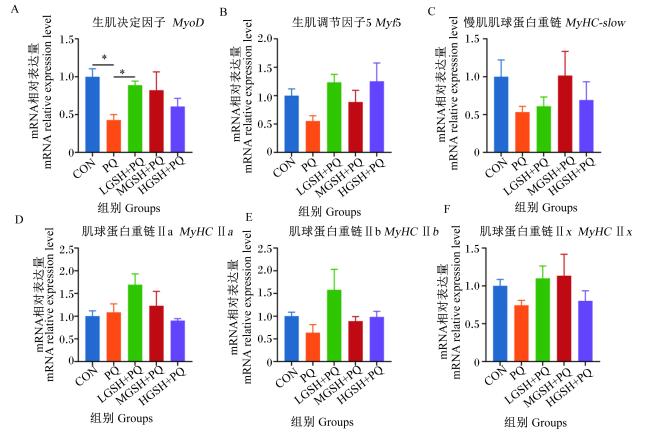
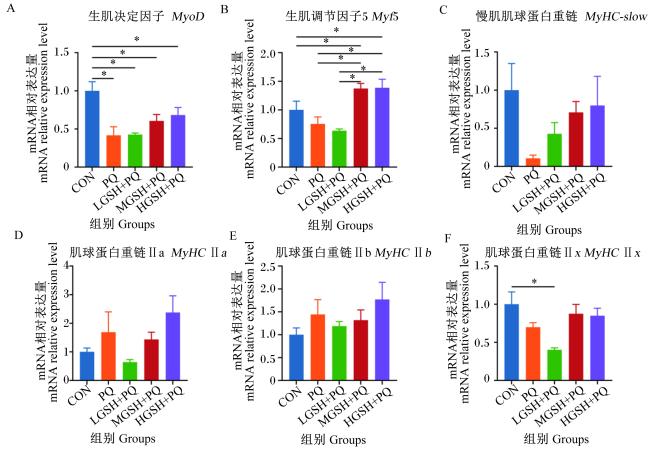
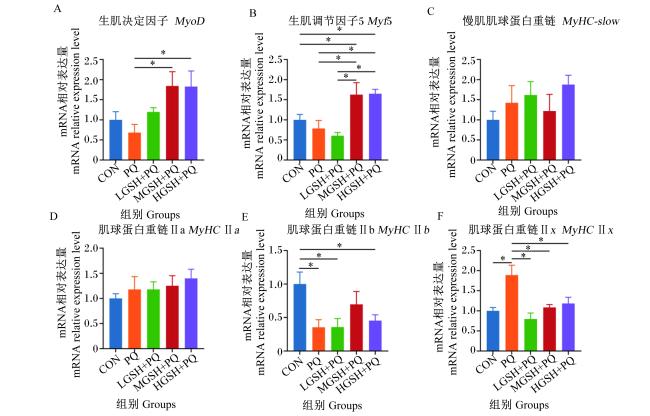
图2图3图4可知,与CON组相比,PQ组各部位肌肉MyoDMyf5的mRNA相对表达量均降低,其中,背最长肌和股二头肌MyoD的mRNA相对表达量显著降低(P<0.05);PQ组背最长肌和股二头肌MyHC-slowMyHCx的mRNA相对表达量均降低,但差异不显著(P>0.05),腰大肌MyHC Ⅱx的mRNA相对表达量显著升高(P<0.05)。与PQ组相比,LGSH+PQ组背最长肌MyoD的mRNA相对表达量显著升高(P<0.05);MGSH+PQ组和HGSH+PQ组股二头肌和腰大肌Myf5的mRNA相对表达量均显著升高(P<0.05)。
图2 GSH对免疫应激断奶仔猪背最长肌肌纤维发育相关基因表达的影响

Fig.2 Effects of GSH on expression of genes related to muscle fiber development in longissimus dorsi of weaned piglets under immune stress

图3 GSH对免疫应激断奶仔猪股二头肌肌纤维发育相关基因表达的影响

Fig.3 Effects of GSH on expression of genes related to muscle fiber development in biceps femoris of weaned piglets under immune stress

图4 GSH对免疫应激断奶仔猪腰大肌肌纤维发育相关基表达的影响

Fig.4 Effects of GSH on expression of genes related to muscle fiber development in psoas major of weaned piglets under immune stress

2.4 GSH对免疫应激断奶仔猪肌肉脂质代谢相关基因表达的影响

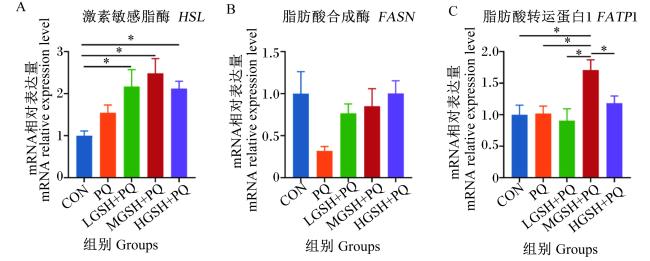
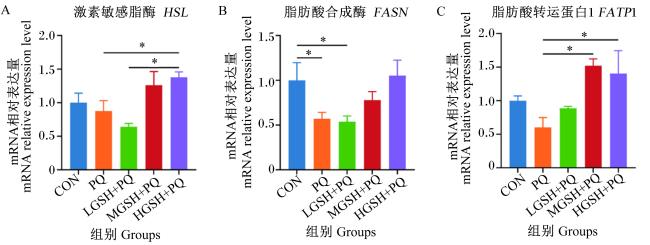
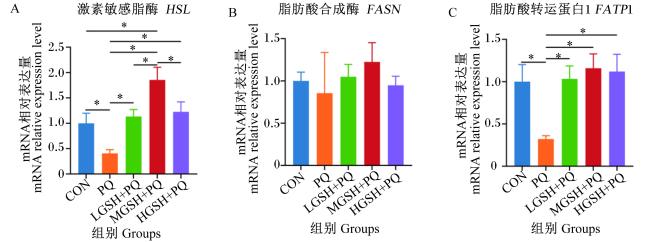
图5图6图7可知,与CON组相比,PQ组与各GSH+PQ组背最长肌HSL的mRNA相对表达量均升高,并且各GSH+PQ组背最长肌HSL的mRNA相对表达量显著升高(P<0.05);PQ组腰大肌HSL的mRNA相对表达量则显著降低(P<0.05)。与PQ组相比,MGSH+PQ组背最长肌FATP1的mRNA相对表达量显著升高(P<0.05);MGSH+PQ组和HGSH+PQ组股二头肌FATP1的mRNA相对表达量显著升高(P<0.05);各GSH+PQ组腰大肌HSLFATP1的mRNA相对表达量均显著升高(P<0.05)。
图5 GSH对免疫应激断奶仔猪背最长肌脂质代谢相关基因表达的影响

Fig.5 Effects of GSH on expression of genes related to lipid metabolism in longissimus dorsi of weaned piglets under immune stress

图6 GSH对免疫应激断奶仔猪股二头肌脂质代谢相关基因表达的影响

Fig.6 Effects of GSH on expression of genes related to lipid metabolism in biceps femoris of weaned piglets under immune stress

图7 GSH对免疫应激断奶仔猪腰大肌脂质代谢相关基因表达的影响

Fig.7 Effects of GSH on expression of genes related to lipid metabolism in psoas major of weaned piglets under immune stress

3 讨论

3.1 GSH对免疫应激断奶仔猪肌肉游离氨基酸含量的影响

氨基酸在动物的营养供给和健康维系中发挥着重要作用,其含量和比例对于评估肉类的营养价值和口感至关重要。研究发现,当动物处于应激状态时,其体内游离氨基酸的含量会发生一定变化[10-11]。本研究结果显示,免疫应激会使断奶仔猪背最长肌、股二头肌和腰大肌的甘氨酸含量及呈味氨基酸/总氨基酸显著下降,而股二头肌和腰大肌的半胱氨酸含量则显著升高。甘氨酸既是合成GSH、肌酸、核酸等分子的前体物质,也是一般蛋白质合成的必需成分。本研究中断奶仔猪肌肉甘氨酸含量的下降表明,免疫应激可能对肌肉的蛋白质合成及肉质造成了不良影响;呈味氨基酸/总氨基酸下降则说明免疫应激会使肌肉风味变差,进而影响肉品质。GSH的合成主要分为2步:首先,γ-谷氨酰半胱氨酸合成酶将谷氨酸和半胱氨酸连接起来形成γ-谷氨酰-半胱氨酸;然后,谷胱甘肽合成酶将γ-谷氨酰-半胱氨酸与甘氨酸连接,最终形成GSH分子[12]。作为GSH合成原料的甘氨酸减少,会抑制GSH的合成,推测这可能是导致肌肉中半胱氨酸沉积增加的原因。本研究发现,饲粮中添加0.03% GSH可以提高免疫应激条件下断奶仔猪背最长肌、股二头肌和腰大肌的甘氨酸含量及呈味氨基酸/总氨基酸,且显著降低股二头肌和腰大肌的半胱氨酸含量,其原因可能是饲粮中添加GSH增强了机体的抗氧化能力,从而抑制了脂质和蛋白质氧化的发生,进而间接减少了氨基酸的损失。最终,甘氨酸损失减少,半胱氨酸的利用增加,从而使机体自身合成GSH增多。这表明,饲粮中添加0.03% GSH能够改善免疫应激对断奶仔猪肌肉造成的损伤,并且能够缓解免疫应激对肌肉游离氨基酸含量造成的不良影响。

3.2 GSH对免疫应激断奶仔猪肌肉炎症因子基因表达的影响

在本课题组前期的研究中,PQ攻毒后,断奶仔猪血清中促炎因子水平显著升高,抗炎因子水平显著降低[7],通过这一结果可判定断奶仔猪免疫应激模型成功建立。PQ攻毒容易使机体产生过量的ROS,而在一定条件下,ROS会通过激活NF-κB通路,增加促炎细胞因子的产生,诱发炎症反应[13-14]。本试验结果及前期研究[7]结果与Liu等[4]的研究结果类似,仔猪在免疫应激后,肝脏表现出明显的炎症反应,但肌肉并未表现出明显的炎症反应。由此推测,免疫应激的炎症介质具有组织分布特异性,这可能是导致断奶仔猪肝脏和肌肉出现不同炎症反应的原因,但其具体的炎症介质还有待进一步研究。

3.3 GSH对免疫应激断奶仔猪肌肉肌纤维发育相关基因表达的影响

肌纤维生长发育对仔猪生长性能至关重要,其直接影响着肌肉组织的增长和肉品质,并决定仔猪的生长速度和饲料转化效率。本研究与周文涛等[15]和段浩楠等[16]的研究侧重点相似,均选择关键基因的mRNA相对表达量作为衡量肌纤维生长发育的指标。肌源性调节因子(myogenic regulatory factors,MRFs)家族基因的表达与肌肉发生进程密切相关,主导着肌细胞的增殖与分化活动。在该家族中,MyoD具有将多种细胞类型诱导转化为成肌细胞的功能,在肌肉特异性基因转录调控中起决定性作用;Myf5则在生肌细胞系定向分化进程中发挥重要调节功能,且与猪的肌纤维生长发育、瘦肉率、胴体背膘厚度以及肌内脂肪含量等关键经济性状存在显著关联性[17-18]。Ardite等[19]研究发现,GSH耗竭会导致肌细胞MyoD蛋白表达水平降低,并通过持续激活NF-κB损害肌细胞的成肌分化。此外,ROS的过量产生会破坏线粒体稳态,下调MyoDMyf5、肌细胞生成素(MyoG)和肌球蛋白重链(MyHC)的mRNA相对表达量和蛋白表达水平,可能通过抑制肌肉发育诱发肌肉减少症[20-21]。本研究结果与之相似,且在断奶仔猪背最长肌中尤为明显。骨骼肌肌纤维亚型大致分为MyHC Ⅰ型和MyHC Ⅱ型,其组成与肌肉品质直接相关。MyHC Ⅰ型纤维直径较细,肌红蛋白和血红蛋白含量高,因此MyHC Ⅰ型纤维比例高的肌肉嫩度更高、色泽更红;MyHC Ⅱ型纤维主要通过糖原酵解供能,易产生并积聚大量乳酸,肌红蛋白和血红蛋白含量低,因此MyHC Ⅱ型纤维比例高的肌肉易出现白肌肉(PSE肉),即肉色苍白、质地松软、缺乏弹性且表面有汁液渗出[22]。在仔猪的生长发育过程中,受到多种因素影响,肌纤维类型会发生转化,如脂多糖诱导的仔猪免疫应激能促使肌纤维类型由MyHC Ⅰ型转向MyHC Ⅱ型[23],本研究结果与之基本一致,而饲粮中添加GSH可以在一定程度上促进肌纤维发育及改善肌纤维类型转换,从而缓解免疫应激对断奶仔猪肌肉发育造成的损伤。机体主要通过抗氧化酶和还原性物质来保护自身免受氧化损伤,外源补充GSH能够显著提高机体GSH含量,一定程度上可能填补体内抗氧化酶不足的抗氧化物质空缺,并减轻应激导致的线粒体损伤[24],推测饲粮中添加GSH可缓解免疫应激肌肉损伤与此相关,但其调控肌纤维类型转换的作用机制尚不明确。

3.4 GSH对免疫应激断奶仔猪肌肉脂质代谢相关基因表达的影响

肌肉中的脂质代谢过程包括脂肪分解、脂肪合成和脂肪酸氧化。HSL作为脂肪分解的限速酶,能够催化甘油三酯水解,其水解产物进入血液循环,为机体各组织提供氧化利用的底物,进而参与脂肪的氧化代谢[25]。FASN在脂肪合成中起关键作用,其表达水平可通过调控动物体脂沉积影响肉品质[26]。FATP1是脂肪酸转运蛋白家族的一员,在催化脂肪酸摄取及脂肪酸过程氧化中发挥重要作用[27]。PQ会对电子传递链造成负面影响,通过降低嘌呤水平改变能量利用率,干扰能量产生;此外,PQ与ROS的产生直接相关,其代谢产生大量自由基和非自由基反应性物质致器官损伤,进而影响机体糖代谢,而糖代谢异常又会打破机体脂质代谢的正常稳态[28]。前人研究表明,通过测定脂质代谢相关基因的表达可以在一定程度上反应机体的脂质代谢状况[29-30]。基于此,本研究对肌肉中脂质代谢基因的mRNA相对表达量进行了测定,结果表明,免疫应激对断奶仔猪不同部位肌肉脂质代谢的影响存在差异:在背最长肌中,免疫应激会上调HSL的mRNA相对表达量;而在腰大肌中,免疫应激会显著下调HSL的mRNA相对表达量。这可能与正常生理条件下不同部位肌肉脂质代谢存在差异有关,并且不同类型的肌肉对免疫应激的反应不同,背最长肌可能通过增加脂肪动员来应对免疫应激,而腰大肌可能通过减少脂肪分解来适应其特定的生理需求。本研究还发现,在股二头肌和腰大肌中,免疫应激会导致FATP1的mRNA相对表达量下降,而饲粮中添加GSH则会上调免疫应激条件下断奶仔猪股二头肌和腰大肌FATP1的mRNA相对表达量。此外,饲粮中添加0.03% GSH对背最长肌FATP1的mRNA相对表达量也有显著上调作用。推测这可能是由于饲粮中添加GSH缓解了免疫应激对线粒体造成的损伤及对机体造成的能量抑制,上调了FATP1的表达,从而调节肌肉脂质代谢。

4 结论

在本试验条件下,免疫应激会造成断奶仔猪肌肉氨基酸谱改变、肌纤维发育受阻、肌纤维类型转化及脂质代谢异常。饲粮中添加GSH能在一定程度上缓解免疫应激引发的断奶仔猪上述负面影响,其中以0.03%添加量的缓解效果较好。
[1]
SHAN Z R, JIA J F, WANG Q J, et al. Network pharmacology-based analysis on geniposide,a component of gardenia jasminoides,beneficial effects to alleviate LPS-induced immune stress in piglets[J]. International Immunopharmacology, 2023,117:109894.

[2]
JIN S S, HE L Q, YANG C B, et al. Crosstalk between trace elements and T-cell immunity during early-life health in pigs[J]. Science China Life Sciences, 2023, 66(9):1994-2005.

[3]
TAN H Q, ZHEN W R, BAI D Y, et al. Effects of dietary chlorogenic acid on intestinal barrier function and the inflammatory response in broilers during lipopolysaccharide-induced immune stress[J]. Poultry Science, 2023, 102(5):102623.

[4]
LIU J, JIANG Y D, JIANG Z, et al. Distinct patterns of GR transcriptional regulation in liver and muscle of LPS-challenged weaning piglets[J]. International Journal of Molecular Sciences, 2022, 23(15):8072.

[5]
QI M, WANG N, XIAO Y X, et al. Ellagic acid ameliorates paraquat-induced liver injury associated with improved gut microbial profile[J]. Environmental Pollution, 2022,293:118572.

[6]
DU J, YU L Y, YANG X Y, et al. Regulation of NCOA4-mediated iron recycling ameliorates paraquat-induced lung injury by inhibiting ferroptosis[J]. Cell Communication and Signaling, 2024, 22(1):146.

DOI PMID

[7]
项轩. 日粮补饲谷胱甘肽对断奶仔猪免疫应激损伤的作用机制研究[D]. 硕士学位论文. 长沙: 中国科学院亚热带农业生态研究所, 2023.

XIANG X. Study on the mechanism of dietary supplementation of glutathione on immune stress injury in weaned piglets[D]. Master’s Thesis. Changsha: Institute of Subtropical Agriculture,Chinese Academy of Sciences, 2023. (in Chinese)

[8]
张维, 高祥, 崔清明, 等. 基于组学技术分析猪肌肉生长发育的研究进展[J]. 中国畜牧杂志, 2024, 60(6):14-20.

ZHANG W, GAO X, CUI Q M, et al. Research progress on analyzing the muscle growth and development of pigs based on omics technologies[J]. Chinese Journal of Animal Science, 2024, 60(6):14-20. (in Chinese)

[9]
TANG W J, XIANG X, WANG H F, et al. Zinc lactate alleviates oxidative stress by modulating crosstalk between constitutive androstane receptor signaling pathway and gut microbiota profile in weaned piglets[J]. Animal Nutrition, 2024,16:23-33.

[10]
YIN J, LIU M F, REN W K, et al. Effects of dietary supplementation with glutamate and aspartate on diquat-induced oxidative stress in piglets[J]. PLoS One, 2015, 10(4):e0122893.

[11]
ZHOU X H, HE L Q, WU C R, et al. Serine alleviates oxidative stress via supporting glutathione synthesis and methionine cycle in mice[J]. Molecular Nutrition & Food Research, 2017, 61(11):1700262.

[12]
WU G Y, FANG Y Z, YANG S, et al. Glutathione metabolism and its implications for health[J]. The Journal of Nutrition, 2004, 134(3):489-492.

[13]
LIU Z N, WANG X F, LI L, et al. Hydrogen sulfide protects against paraquat-induced acute liver injury in rats by regulating oxidative stress,mitochondrial function,and inflammation[J]. Oxidative Medicine and Cellular Longevity, 2020,2020:6325378.

[14]
TANG W J, WU J, JIN S S, et al. Glutamate and aspartate alleviate testicular/epididymal oxidative stress by supporting antioxidant enzymes and immune defense systems in boars[J]. Science China Life Sciences, 2020, 63(1):116-124.

[15]
周文涛, 王晨昱, 周辉, 等. 单宁酸对免疫应激断奶仔猪肌肉形态、风味氨基酸及肌纤维相关基因表达的影响[J]. 畜牧兽医学报, 2025,56:1290-1301.

ZHOU W T, WANG C Y, ZHOU H, et al. Effects of tannic acid on muscle morphology,flavor amino acids,and expression of muscle fiber-related genes in immunostressed weaned piglets[J]. Acta Veterinaria et Zootechnica Sinica, 2025,56:1290-1301. (in Chinese)

[16]
段浩楠, 武殿阁, 申帅峰, 等. 胍基乙酸对育肥猪生长性能、屠宰性能、血清生化指标、肌纤维特性及肌肉发育相关调节因子基因表达的影响[J]. 动物营养学报, 2023, 35(9):5619-5628.

DOI

DUAN H N, WU D G, SHEN S F, et al. Effects of guanidinoacetic acid on growth performance,slaughter performance,serum biochemical indexes,muscle fiber characteristics and gene expression of regulatory factors related to muscle development of finishing pigs[J]. Chinese Journal of Animal Nutrition, 2023, 35(9):5619-5628. (in Chinese)

[17]
朱麒, 谭家明, 夏琴, 等. 陆川猪Myf5基因克隆及其在背最长肌中发育性变化表达研究[J]. 黑龙江畜牧兽医, 2019(11):6-10,16.

ZHU L, TAN J M, XIA Q, et al. Cloning of Myf5 gene and it’s developmental expression in longissimus dorsi muscle of Luchuan pig[J]. Heilongjiang Animal Science and Veterinary Medicine, 2019(11):6-10,16. (in Chinese)

[18]
刘宁, 邓雪娟, 王建平, 等. 生肌调节因子及肌生成调控因素研究进展[J]. 中国畜牧兽医, 2015, 42(10):2644-2649.

DOI

LIU N, DENG X J, WANG J P, et al. Research progress on regulation factors of myogenic regulatory factors and myogenesis[J]. China Animal Husbandry & Veterinary Medicine, 2015, 42(10):2644-2649. (in Chinese)

[19]
ARDITE E, BARBERA J A, ROCA J, et al. Glutathione depletion impairs myogenic differentiation of murine skeletal muscle C2C12 cells through sustained NF-kappaB activation[J]. The American Journal of Pathology, 2004, 165(3):719-728.

[20]
LU J W, LI H X, YU D B, et al. Heat stress inhibits the proliferation and differentiation of myoblasts and is associated with damage to mitochondria[J]. Frontiers in Cell and Developmental Biology, 2023,11:1171506.

[21]
刘延莹, 冯庆鲲, 杨海平. 线粒体稳态失衡与肌肉减少症发生[J]. 肇庆学院学报, 2020, 41(2):81-85.

LIU Y Y, FENG Q K, YANG H P. Mitochondrial homeostasis imbalance and myopenia[J]. Journal of Zhaoqing University, 2020, 41(2):81-85. (in Chinese)

[22]
贾安峰. 慢性免疫应激对仔猪骨骼肌纤维亚型的影响及机制初探[D]. 硕士学位论文. 北京: 中国农业科学院, 2015.

JIA A F. Effects of immunological stress on skeletal muscle fiber type of piglets and its mechanism preliminarily[D]. Master’s Thesis. Beijing: Chinese Academy of Agricultural Sciences, 2015. (in Chinese)

[23]
JIA A F, FENG J H, ZHANG M H, et al. Effects of immunological challenge induced by lipopolysaccharide on skeletal muscle fiber type conversion of piglets[J]. Journal of Animal Science, 2015, 93(11):5194-5203.

DOI PMID

[24]
蔡林林, 傅海龙, 张卿卿, 等. 还原型谷胱甘肽保护线粒体并减轻大鼠肝脏缺血再灌注损伤[J]. 第二军医大学学报, 2015, 36(12):1300-1303.

CAI L L, FU H L, ZHANG Q Q, et al. Glutathione protects mitochondrion and alleviates liver ischemia-reperfusion injury in rats[J]. Academic Journal of Second Military Medical University, 2015, 36(12):1300-1303. (in Chinese)

[25]
王钰滨, 陈奎蓉, 王梦影, 等. 大白猪不同脂肪部位脂质代谢相关基因的表达差异分析[J]. 基因组学与应用生物学, 2024, 43(4):636-645.

WANG Y B, CHEN K R, WANG M Y, et al. Analysis of different expression of lipid metabolism related genes in different fat parts of large white pigs[J]. Genomics and Applied Biology, 2024, 43(4):636-645. (in Chinese)

[26]
吴正明, 龚绍荣, 赵加鼎, 等. FASN基因在保山猪3个组织中的表达量与背肌营养物质含量的关联分析[J]. 中国畜牧杂志, 2022, 58(8):229-234.

WU Z M, GONG S R, ZHAO J D, et al. Association analysis of FASN gene expression and dorsal muscle nutrient content in three tissues of Baoshan pig[J]. Chinese Journal of Animal Science, 2022, 58(8):229-234. (in Chinese)

[27]
SEBASTIÁN D, GUITART M, GARCÍA-MARTÍNEZ C, et al. Novel role of FATP1 in mitochondrial fatty acid oxidation in skeletal muscle cells[J]. Journal of Lipid Research, 2009, 50(9):1789-1799.

DOI PMID

[28]
NOVAES R D, GONÇALVES R V, CUPERTINO M C, et al. Acute paraquat exposure determines dose-dependent oxidative injury of multiple organs and metabolic dysfunction in rats:impact on exercise tolerance[J]. International Journal of Experimental Pathology, 2016, 97(2):114-124.

[29]
SUN Z, CHANG Y D, HUANG L Y, et al. Effects of acorns on meat quality and lipid metabolism-related gene expression in muscle tissues of Yuxi black pigs[J]. Metabolites, 2024, 14(11):578.

[30]
ZHANG Y, CAO Z, WANG L D, et al. Effects of linseed oil supplementation duration on fatty acid profile and fatty acid metabolism-related genes in the muscles of Chinese crested white ducks[J]. Poultry Science, 2023, 102(10):102896.

文章导航

/