研究论文

包被叶酸和棕榈脂肪粉对围产期奶牛泌乳性能和肝脏脂质代谢的影响

  • 韩晨辉 ,
  • 张玉杰 ,
  • 刘泽锋 ,
  • 霍文婕 ,
  • 郭刚 ,
  • 刘强 , * ,
  • 王聪
展开
  • 山西农业大学动物科学学院,太谷 030801
*刘 强,教授,博士生导师,E-mail:

韩晨辉(2000—),男,山西翼城人,硕士研究生,从事反刍动物营养与饲料科学研究。E-mail:

Copy editor: 田艳明

收稿日期: 2025-01-07

  网络出版日期: 2025-08-14

基金资助

国家自然科学基金项目(32272824)

中央引导地方科技发展资金项目(YDZJSX2022A039)

山西省现代农业牛产业技术体系建设项目(2025CYJSTX13)

Effects of Coated Folic Acid and Palm Fat Powder on Lactation Performance and Liver Lipid Metabolism of Perinatal Dairy Cows

  • HAN Chenhui ,
  • ZHANG Yujie ,
  • LIU Zefeng ,
  • HUO Wenjie ,
  • GUO Gang ,
  • LIU Qiang , * ,
  • WANG Cong
Expand
  • College of Animal Science, Shanxi Agricultural University, Taigu 030801, China
*professor, E-mail:

Received date: 2025-01-07

  Online published: 2025-08-14

摘要

本试验旨在研究包被叶酸(CFA)和棕榈脂肪粉(PFP)对围产期奶牛泌乳性能、血液指标和肝脏脂质代谢的影响。选取胎次、体重、上一泌乳期产奶量和预产期相近的荷斯坦奶牛32头,按随机区组设计分为4组,每组8头牛。对照组(CON组)饲喂基础饲粮,CFA组、PFP组和CFA+PFP组分别补充6.75 g/d CFA、500 g/d PFP和6.75 g/d CFA+500 g/d PFP。奶牛产前42 d进入试验,产后21 d试验结束。结果表明:1)补充CFA后奶牛产前体重变化(BWC,增加),实际乳、4%乳脂校正乳(FCM)、乳脂和乳蛋白产量,乳总4~15碳脂肪酸含量和饲料效率(FE)均显著高于CON组(P<0.05);产前和产后血清非酯化脂肪酸(NEFA)和β-羟丁酸(BHBA)含量以及产后肝脏总脂和甘油三酯(TG)含量显著低于CON组(P<0.05)。2)补充PFP后奶牛产前BWC(增加),实际乳、4% FCM和乳脂产量,乳总16碳脂肪酸含量和FE显著高于CON组(P<0.05)。3)CFA与PFP对奶牛BWC、泌乳性能、血液指标和肝脏脂质含量均无显著互作效应(P>0.05)。4)产后21 d肝脏组织转录组测序表明,CFA组脂肪酸合成酶(FASN)、硬脂酰辅酶A去饱和酶1(SCD1)和固醇调节元件结合蛋白-1c(SREBP-1c)表达量显著高于CON组(P<0.05),类视黄醇X受体γ(RXRγ)、脂肪酸转位酶(CD36)、载脂蛋白A1(APOA1)、3-羟基-3-甲基戊二酰辅酶A合成酶2(HMGCS2)和脂联素受体2(ADIPOR2)表达量显著低于CON组(P<0.05);PFP组FASN表达量显著高于CON组(P<0.05),RXRγ、长链脂酰辅酶合成酶4(ACSL4)和CD36表达量显著低于CON组(P<0.05);CFA+PFP组FASNCD36和SCD1表达量显著高于CON组(P<0.05),RXRγAPOA1和甘油激酶(GK)表达量显著低于CON组(P<0.05)。由此可见,奶牛围产期补充CFA或PFP均能改善泌乳性能,且CFA降低了肝脏脂质含量;CFA调控肝脏脂质代谢的关键通路和基因为单磷酸腺苷活化蛋白激酶(AMPK)信号通路和CD36,PFP为PPAR信号通路和ACSL1、CD36;不推荐CFA和PFP联合补充。

本文引用格式

韩晨辉 , 张玉杰 , 刘泽锋 , 霍文婕 , 郭刚 , 刘强 , 王聪 . 包被叶酸和棕榈脂肪粉对围产期奶牛泌乳性能和肝脏脂质代谢的影响[J]. 动物营养学报, 2025 , 37(8) : 5279 -5291 . DOI: 10.12418/CJAN2025.429

Abstract

The study evaluated the effects of coated folic acid (CFA) and palm fat powder (PFP) on lactation performance, blood indices and liver lipid metabolism of perinatal dairy cows. Thirty-two Holstein cows with similar parity, body weight, milk yield during the previous lactation and expected delivery date were assigned in a randomized block design to 4 groups with 8 cows in each group. Cows in the control group (CON group) were fed a basal diet, and those in CFA group, PFP group and CFA+PFP group were fed the basal diet supplemented with 6.75 g/d CFA, 500 g/d PFP and 6.75 g/d CFA+500 g/d PFP, respectively. The experiment period was from 42 days of prepartum to 21 days of postpartum. The results showed as follows: 1) compared with CON group, the body weight change (BWC, increased) of cows in prepartum, yields of actual milk, 4% fat-corrected milk (FCM), milk fat and milk protein, as well as milk total 4 to 15 carbon fatty acid content and feed efficiency (FE) were significantly greater after CFA supplementation (P<0.05); the serum contents of non-esterified fatty acid (NEFA) and β-hydroxybutyric acid (BHBA) in both prepartum and postpartum and the liver contents of total lipid and triglyceride (TG) in postpartum were significantly lower (P<0.05). 2) Compared with CON group, the BWC (increased) of cows in prepartum, yields of actual milk, 4% FCM and milk fat, as well as total 16 carbon fatty acid content and FE were significantly greater after PFP supplementation (P<0.05). 3) The interaction between CFA and PFP was not significant on BWC, lactation performance, blood indices and liver lipid content (P>0.05). 4) The results of transcriptome sequencing of liver tissues on day 21 of postpartum showed that the expressions of fatty acid synthase (FASN), stearoyl-CoA desaturase 1 (SCD1) and sterol regulatory element-binding protein-1c (SREBP-1c) of cows in CFA group were significantly greater compared with CON control (P<0.05), and the expressions of retinoid X receptor gamma (RXRγ), fatty acid translocase (CD36), apolipoprotein A1 (APOA1), 3-hydroxy-3-methylglutaryl-CoA synthase 2 (HMGCS2) and adiponectin receptor 2 (ADIPOR2) were significantly lower (P<0.05); the FASN expression in PFP group was significantly greater compared with CON control (P<0.05), and the expressions of RXRγ, long-chain acyl-CoA synthetase 4 (ACSL4) and CD36 were significantly lower (P<0.05); the expressions of FASN, CD36 and SCD1 in CFA+PFP group were significantly greater compared with CON control (P<0.05), and the expressions RXRγ, APOA1 and glycerol kinase (GK) were significantly lower (P<0.05). In conclusion, the supplementation of CFA or PFP can improve the lactation performance of perinatal dairy cows, and the supplementation of CFA can decrease the liver lipid content; the regulation of CFA on liver lipid metabolism is via AMPK signaling pathway and CD36, and PFP is via PPAR signaling pathway and ACSL1 and CD36; however, the supplementation of CFA and PFP together is not recommended.

围产期奶牛内分泌状态改变和干物质采食量(dry matter intake,DMI)降低,导致机体脂肪组织动员,血液非酯化脂肪酸(non-esterified fatty acid,NEFA)和肝脏甘油三酯(triglyceride,TG)含量增加,引发脂肪肝、酮病等营养代谢病,影响了奶业长效健康发展[1]。提高饲粮养分利用率和能量水平是缓解围产期奶牛能量负平衡、降低血液NEFA含量的有效营养调控措施。叶酸(folic acid,FA)是一碳循环中重要的甲基载体,是瘤胃纤维分解菌的必需营养因子,对维持动物消化道结构和功能正常发挥着重要作用,并且FA和FA受体α是奶牛乳蛋白合成的必需因子[2-4]。研究发现,泌乳奶牛补充包被叶酸(coated folic acid,CFA)能够提高养分表观消化率以及乳和乳蛋白产量[5-7];围产期奶牛血液NEFA和β-羟丁酸(β-hydroxybutyric acid,BHBA)含量与FA含量呈负相关[8];而且补充FA能够促进泌乳早期奶牛肝脏组织再生[9];围产期奶牛肝脏中脂质含量升高,与血液NEFA含量提高有关[1]。因此,CFA或许能通过减少NEFA进入肝脏,从而降低围产期奶牛肝脏脂质含量。
补充棕榈脂肪粉(palm fat powder,PFP)提高饲粮能量水平是生产中常用的缓解围产期奶牛能量负平衡的营养调控措施[1]。PFP中的16碳脂肪酸是乳脂合成的前体,并能作为信号分子调控营养物质重新分配,使更多的能量分配到乳腺中参与乳合成代谢[1,10]。研究发现,奶牛围产期饲粮中添加由棕榈酸和硬脂酸组成的饱和长链脂肪酸,产后10 d肝脏转录因子过氧化物增殖物激活受体(PPAR)以及调控TG合成和NEFA吸收的基因长链脂酰辅酶A合成酶1(ACSL1)和脂肪酸转位酶(CD36)表达下调[11],这表明围产期补充PFP能调控奶牛肝脏脂质代谢,且与肝脏对NEFA的吸收减少有关。
由此可知,CFA能改善养分利用率,PFP能提高饲粮能量水平,且二者对肝脏脂质代谢的调控均与肝脏对NEFA的吸收有关。据此,本试验提出假设,奶牛围产期联合补充CFA和PFP对提高产奶性能和降低肝脏TG含量比二者单独补充更有效。因此,本试验旨在探究CFA、PFP和CFA+PFP对围产期奶牛泌乳性能、血液指标、肝脏脂质含量以及脂质代谢的影响,明确CFA和/或PFP对奶牛肝脏脂质代谢调控的关键通路和基因,以期为后续研究和奶业生产提供参考。

1 材料与方法

1.1 试验材料和动物

试验所用FA纯度为98%;CFA中FA含量为2%,在瘤胃和小肠的释放率分别为22%和65%;PFP中含88.4%棕榈酸和4.8%硬脂酸。试验在忻州银山湖奶牛养殖有限公司开展,动物的使用和管理由山西农业大学实验动物伦理委员会批准(批准编号:SXAU-EAW-2023CO.MC.011029225)。

1.2 试验设计

选取胎次[(2.60±0.72)胎]、体重[(681.0±26.7) kg]、上一泌乳期产奶量[(9 177±335)kg]和预产期相近的围产期奶牛32头,依据随机区组设计分为4组,每组8头牛。试验采用2×2因子设计,对照组(CON组)饲喂基础饲粮,CFA组、PFP组和CFA+PFP组分别在基础饲粮的基础上添加6.75 g/d CFA、500 g/d PFP和6.75 g/d CFA+500 g/d PFP。基础饲粮依据NASEM(2021)[1]配制,其组成及营养水平见表1。饲粮泌乳净能参照NASEM(2021)[1]计算,FA含量委托青岛市华测检测技术有限公司采用高效液相色谱法测定,其他营养成分参照AOAC(2006)[12]的方法测定。饲养试验从奶牛产前42 d开始,至产后21 d结束。
表1 基础饲粮组成及营养水平(干物质基础)

Table 1 Composition and nutrient levels of basal diets (DM basis) %

项目
Items
产前
Prepartum
产后
Postpartum
原料Ingredients
玉米秸秆Corn stalk 36.00 26.00
苜蓿干草Alfalfa hay 13.00
燕麦草Oat hay 24.00 11.00
玉米Corn 15.10 24.00
麸皮Wheat bran 6.00 6.00
豆粕Soybean meal 10.00 10.60
菜籽粕Rapeseed meal 2.40 2.50
棉籽粕Cottonseed meal 4.20 5.00
碳酸氢钙Ca(HCO3)2 0.70 0.60
食盐NaCl 0.60 0.50
磷酸氢钙CaHPO4 0.40 0.30
预混料Premix1) 0.60 0.50
合计Total 100.00 100.00
营养水平Nutrient levels2)
有机物OM 94.52 94.48
粗蛋白质CP 15.96 17.17
粗脂肪EE 3.16 3.18
中性洗涤纤维NDF 35.29 31.13
酸性洗涤纤维ADF 21.47 19.35
钙Ca 0.70 0.73
磷P 0.47 0.48
叶酸FA/(mg/kg) 0.31 0.33
泌乳净能NEL/(MJ/kg) 6.41 6.68

1)每千克预混料含有 One kilogram of the premix contained the following:Fe 20 000 mg,Cu 1 600 mg,Mn 8 000 mg,Zn 7 500 mg,I 120 mg,Se 60 mg,Co 20 mg,VA 820 000 IU,VD 300 000 IU,VE 10 000 IU。
2)泌乳净能为计算值,其他营养水平为实测值。NEL was a calculated value, while the other nutrient levels were measured values.

1.3 饲养管理

试验牛饲养于同一圈舍,单栏(15 m2)饲养,每日饲喂2次,产后每日挤奶2次,自由采食和饮水。早晨饲喂前,将CFA和PFP与约500 g饲粮混匀,待牛全部采食后再饲喂剩余饲粮。

1.4 样品采集及指标测定

1.4.1 采食量和体重测定

产前21 d至产后21 d,每天记录每头牛的喂料量和剩料量,计算DMI。产前21 d晨饲前、产后2 h以及产后21 d挤奶后、晨饲前,记录每头牛的体重,分别计算产前和产后体重变化(body weight change,BWC)。

1.4.2 奶样的采集及泌乳性能测定

产后4~21 d,记录每头牛每天的产奶量,并分别采集产后7、14和21 d奶样。奶样分2份,一份保存于装有2-溴-2-硝基-1,3-丙二醇的100 mL奶样瓶中,采用MK-120型红外乳品分析仪测定乳脂、乳蛋白和乳糖含量;另一份装于50 mL EP管中,-20 ℃保存,采用6890N型气相色谱仪测定乳脂肪酸含量。

1.4.3 血液样品的采集及指标测定

产前21 d和产后21 d,挤奶后和晨饲前,采集每头牛尾静脉血液约15 mL,2 000×g离心15 min,分离血清,-20 ℃保存。依据试剂盒(上海笃玛生物科技有限公司)说明书,采用酶标仪(DR200-Bn)测定血清葡萄糖、总蛋白、白蛋白、BHBA和FA含量,并采用分光光度计(UV759)测定NEFA含量。

1.4.4 肝脏组织的采集及指标测定

产后21 d,挤奶后和晨饲前,每组随机选择3头奶牛,采用穿刺法采集肝脏组织样品,每头牛连续采集2次,样品总量约1.5 g,液氮速冻后,-80 ℃保存。依据Becart等[13]的方法测定每克鲜样组织中总脂和TG含量。肝脏组织RNA序列分析、差异表达基因实时荧光定量PCR(qRT-PCR)和Western blot验证由北京百迈客生物科技有限公司完成[14]。qRT-PCR内参基因为β-肌动蛋白(β-actin),引物信息见表2
表2 qRT-PCR引物信息

Table 2 qRT-PCR primer information

基因
Genes
引物序列
Primer sequences (5'—3')
产物大小
Product size/bp
退火温度
Tm/℃
脂肪酸合成酶
FASN
F:GCATCGCTGGCTACTCCTAC
R:GTGTAGGCCATCACGAAGGT
136 60
类视黄醇X受体γ
RXRγ
F:CAGAGGACATCAAGCCCTTACCA
R:AGGTCTTTCCTTATGGTTCTCTTGA
187 59
硬脂酰辅酶A去饱和酶1
SCD1
F:TTATTCCGTTATGCCCTTGG
R:GGTAGTTGTGGAAGCCCTCA
151 60
载脂蛋白A1
APOA1
F:AGCAATCAAGGATAGTGGCAGAG
R:TGCCACTTCTTCTGGAACTCGT
269 60
3-羟基-3-甲基戊二酰辅酶A合成酶2
HMGCS2
F:GCCCAATATGTGGACCAAAC
R:ATGGTCTCAGTGCCCACTTC
209 60
脂联素受体2
ADIPOR2
F:CCCGGCAAGTGTGACATCT
R:TTCGAGACCCCGTGGAAGT
92 60
β-肌动蛋白
β-actin
F:ACTTGCGCAGAAAACGAGAT
R:GCACCAGCCGATCTACAAAAG
121 60

1.5 数据处理和统计分析

奶牛产前和产后DMI、BWC、血液指标、肝脏脂质含量和产后泌乳性能分别采用SAS 9.2软件中的混合模型进行方差分析,P<0.05为差异显著,0.05≤P<0.10为差异有显著趋势;基于差异倍数(FC)≥2、P(校正)<0.05且错误发现率(FDR)<0.01的标准筛选肝脏差异表达基因;肝脏基因和蛋白质表达量采用SAS 9.2软件中的ANOVA程序进行t检验,P<0.05为差异显著,P<0.01为差异极显著。

2 结果与分析

2.1 CFA和PFP对围产期奶牛体重和泌乳性能的影响

表3可知,与CON组相比,补充CFA和PFP对围产期奶牛产前和产后DMI和体重均无显著影响(P>0.05);补充CFA显著提高产前BWC(P<0.05),对产后BWC无显著影响(P>0.05);补充PFP显著提高产前BWC(P<0.05),有提高产后BWC的趋势(P=0.088);补充CFA和PFP显著提高实际乳、4%乳脂校正乳(FCM)和乳脂产量以及乳脂含量和饲料效率(FE)(P<0.05),对乳糖产量、乳糖含量和总>16碳脂肪酸含量无显著影响(P>0.05);补充CFA显著提高乳蛋白产量和含量以及总4~15碳脂肪酸含量(P<0.05),对总16碳脂肪酸含量无显著影响(P>0.05);补充PFP对乳蛋白产量和总4~15碳脂肪酸含量无显著影响(P>0.05),但显著降低乳蛋白含量(P<0.05),显著提高总16碳脂肪酸含量(P<0.05)。CFA与PFP对围产期奶牛DMI、BWC、泌乳性能和FE均无显著互作效应(P>0.05)。
表3 CFA和PFP对围产期奶牛体重和泌乳性能的影响

Table 3 Effects of CFA and PFP on body weight and lactation performance of perinatal dairy cows

项目
Items
组别Groups 均值
标准误
SEM
PP-value
CON CFA PFP CFA+PFP 包被叶酸
CFA
棕榈
脂肪粉
PFP
包被叶酸×
棕榈脂肪粉
CFA×PFP
干物质采食量DMI/(kg/d)
产前Prepartum 7.82 8.10 8.48 8.67 0.132 0.351 0.402 0.401
产后Postpartum 16.38 17.03 16.83 16.79 0.263 0.144 0.113 0.417
体重BW/kg
产前21 d Prepartum 21 d 688.36 680.96 675.22 675.41 9.123 0.734 0.303 0.834
产后2 h Postpartum 2 h 690.67 685.03 681.87 681.74 8.932 0.781 0.401 0.843
产后21 d Postpartum 21 d 655.35 647.66 644.89 647.38 8.454 0.886 0.758 0.796
体重变化BWC/kg
产前Prepartum 3.21 4.50 6.79 7.99 0.172 0.009 0.022 0.991
产后Postpartum -35.96 -37.22 -36.77 -35.21 0.283 0.124 0.088 0.209
乳产量Milk yield/(kg/d)
实际乳Actual milk 28.12 29.31 29.46 30.81 0.423 0.016 0.023 0.187
4%乳脂校正乳4% FCM 24.97 26.42 27.02 28.69 0.392 0.017 0.028 0.166
乳脂Milk fat 0.91 0.97 1.01 1.10 0.038 0.046 0.032 0.278
乳蛋白Milk protein 0.88 0.98 0.91 1.07 0.043 0.014 0.138 0.433
乳糖Lactose 1.34 1.41 1.42 1.48 0.076 0.276 0.198 0.241
乳成分含量Milk component content/%
乳脂Milk fat 3.25 3.32 3.43 3.56 0.013 0.014 0.021 0.334
乳蛋白Milk protein 3.13 3.35 3.07 3.46 0.024 0.019 0.032 0.123
乳糖Lactose 4.76 4.82 4.83 4.81 0.044 0.306 0.387 0.421
总4~15碳脂肪酸
Total 4 to 15 carbon fatty acids
28.53 29.59 27.98 28.97 0.675 0.032 0.275 0.316
总16碳脂肪酸
Total 16 carbon fatty acids
26.46 27.01 27.77 27.59 0.489 0.174 0.031 0.451
总>16碳脂肪酸
Total>16 carbon fatty acids
43.11 41.48 42.19 41.93 1.163 0.142 0.211 0.362
饲料效率FE 1.52 1.60 1.55 1.71 0.015 0.042 0.013 0.294

2.2 CFA和PFP对围产期奶牛血液指标和肝脏脂质含量的影响

表4可知,与CON组相比,补充CFA和PFP对围产期奶牛产前和产后血清葡萄糖含量均无显著影响(P>0.05),显著提高血清总蛋白含量(P<0.05);补充CFA显著提高产前和产后血清白蛋白和FA含量(P<0.05),显著降低血清NEFA和BHBA含量(P<0.05);补充PFP显著提高产前血清白蛋白含量(P<0.05),对产后血清白蛋白含量无显著影响(P>0.05),同时对产前和产后血清NEFA、BHBA和FA含量均无显著影响(P>0.05)。与CON组相比,补充CFA显著降低围产期奶牛产后肝脏总脂和TG含量(P<0.05),补充PFP对产后肝脏总脂和TG含量均无显著影响(P>0.05)。CFA与PFP对围产期奶牛血液指标和肝脏脂质含量均无显著互作效应(P>0.05)。
表4 CFA和PFP对围产期奶牛血液指标和肝脏脂质含量的影响

Table 4 Effects of CFA and PFP on blood indices and liver lipid content of perinatal dairy cows

项目
Items
组别Groups 均值
标准误
SEM
PP-value
CON CFA PFP CFA+PFP 包被叶酸
CFA
棕榈
脂肪粉
PFP
包被叶酸×
棕榈脂肪粉
CFA×PFP
产前Prepartum
葡萄糖Glucose/(mmol/L) 2.27 2.49 2.37 2.53 0.233 0.321 0.164 0.532
总蛋白Total protein/(g/L) 64.78 72.32 74.55 78.19 0.624 0.001 0.001 0.153
白蛋白Albumin/(g/L) 26.51 28.97 29.86 32.97 0.384 0.004 0.001 0.738
非酯化脂肪酸NEFA/(mmol/L) 1.62 1.25 1.62 1.29 0.104 0.011 0.273 0.344
β-羟丁酸BHBA/(μmol/L) 460.19 361.43 472.97 389.35 6.487 0.001 0.152 0.572
叶酸FA/(μmol/L) 14.27 16.53 15.88 16.91 0.263 0.009 0.078 0.274
产后Postpartum
葡萄糖Glucose/(mmol/L) 2.34 2.68 2.47 2.80 0.271 0.211 0.423 0.906
总蛋白Total protein/(g/L) 62.17 71.33 74.16 78.50 1.054 0.008 0.001 0.283
白蛋白Albumin/(g/L) 28.15 31.62 28.82 30.21 0.343 0.005 0.604 0.182
非酯化脂肪酸NEFA/(mmol/L) 1.37 1.16 1.35 1.20 0.181 0.001 0.752 0.434
β-羟丁酸BHBA/(μmol/L) 506.37 385.81 515.10 441.41 13.770 0.001 0.194 0.413
叶酸FA/(μmol/L) 15.56 18.42 15.39 18.56 0.172 0.001 0.983 0.461
肝脏总脂Liver total lipid/(mg/g) 49.72 44.57 48.19 44.11 1.031 0.037 0.158 0.326
肝脏甘油三酯Liver TG/(mg/g) 22.56 20.59 21.81 20.08 0.877 0.015 0.333 0.415

2.3 奶牛肝脏转录组测序差异表达基因筛选

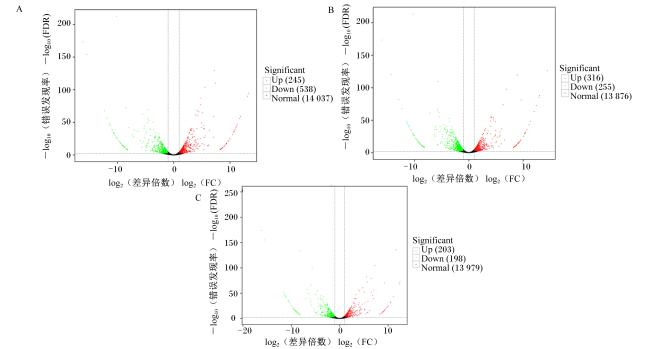
奶牛产后21 d肝脏组织转录组测序分析结果显示,每个样品的Q30碱基百分比为92.98%~93.70%,与参考基因组比对效率为94.70%~96.82%。如图1所示,在肝脏组织差异表达基因数量中,CFA组vs CON组有783个,其中245个上调、538个下调(P<0.05);PFP组vs CON组有571个,其中316个上调、255个下调(P<0.05);CFA+PFP组vs CON组有401个,其中203个上调、198个下调(P<0.05)。
图1 奶牛肝脏组织差异表达基因

A:CFA组vs CON组 CFA group vs CON group;B:PFP组vs CON组 PFP group vs CON group;C:CFA+PFP组vs CON组 CFA+PFP group vs CON group。

Significant:显著性;Up:显著上调 significantly up-regulated;Down:显著下调 significantly down-regulated;Normal:无显著差异 no significant difference。

Fig.1 Differentially expressed genes in dairy cow liver tissues

2.4 奶牛肝脏组织差异表达基因脂质代谢相关通路富集分析

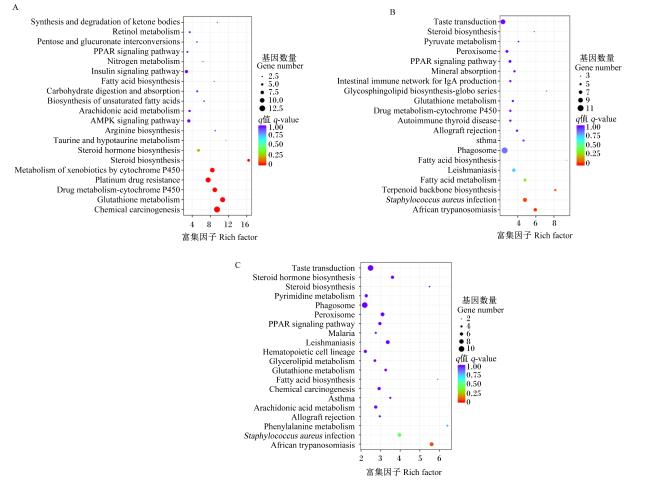
图2所示,在奶牛肝脏组织差异表达基因京都基因与基因组百科全书(KEGG)富集分析的前20条通路中,与脂质代谢相关的通路,CFA组vs CON组为酮体的合成和降解、PPAR信号通路、脂肪酸生物合成、不饱和脂肪酸生物合成和单磷酸腺苷活化蛋白激酶(AMPK)信号通路;PFP组vs CON组为PPAR信号通路、脂肪酸生物合成和脂肪酸代谢;CFA+PFP组vs CON组为PPAR信号通路、脂肪酸生物合成和甘油酯代谢。
图2 奶牛肝脏组织差异表达基因KEGG富集分析

A:CFA组vs CON组 CFA group vs CON group;B:PFP组vs CON组 PFP group vs CON group;C:CFA+PFP组vs CON组 CFA+PFP group vs CON group。

Synthesis and degradation of ketone bodies:酮体的合成和降解;Retinol metabolism:视黄醇代谢;Pentose and glucuronate interconversions:戊糖和葡萄糖醛酸相互转化;PPAR signaling pathway:过氧化物增殖物激活受体信号通路;Nitrogen metabolism:氮代谢;Insulin signaling pathway:胰岛素信号通路;Fatty acid biosynthesis:脂肪酸生物合成;Carbohydrate digestion and absorption:碳水化合物消化和吸收;Biosynthesis of unsaturated fatty acids:不饱和脂肪酸生物合成;Arachidonic acid metabolism:花生四烯酸代谢;AMPK signaling pathway:单磷酸腺苷活化蛋白激酶信号通路;Arginine biosynthesis:精氨酸生物合成;Taurine and hypotaurine metabolism:牛磺酸和次牛磺酸代谢;Steroid hormone biosynthesis:类固醇激素生物合成;Steroid biosynthesis:类固醇生物合成;Metabolism of xenobiotics by cytochrome P450:细胞色素P450对外源性物质的代谢;Platinum drug resistance:铂耐药;Drug metabolism-cytochrome P450:药物代谢-细胞色素P450;Glutathione metabolism:谷胱甘肽代谢;Chemical carcinogenesis:化学致癌;Taste transduction:味觉传导;Pyruvate metabolism:丙酮酸代谢;Peroxisome:过氧化物酶体;Mineral absorption:矿物质吸收;Intestinal immune network for IgA production:免疫球蛋白A产生的肠道免疫网络;Glycosphingolipid biosynthesis-globo series:鞘糖脂生物合成-globo系列;Autoimmune thyroid disease:自身免疫性甲状腺病;Allograft rejection:同种移植排斥;Asthma:哮喘;Phagosome:吞噬体;Leishmaniasis:利什曼病;Fatty acid metabolism:脂肪酸代谢;Terpenoid backbone biosynthesis:萜类骨架生物合成;Staphylococcus aureus infection:金黄色葡萄球菌感染;African trypanosomiasis:非洲锥虫病;Pyrimidine metabolism:嘧啶代谢;Malaria:疟疾;Hematopoietic cell lineage:造血细胞谱系;Glycerolipid metabolism:甘油酯代谢;Phenylalanine metabolism:苯丙烷代谢。

Fig.2 KEEG enrichment analysis of differentially expressed genes in dairy cow liver tissues

表5可知,在奶牛肝脏组织富集于脂质代谢通路的差异表达基因中,CFA组vs CON组有8个,其中脂肪酸合成酶(FASN)、硬脂酰辅酶A去饱和酶1(SCD1)和固醇调节元件结合蛋白-1c(SREBP-1c)表达显著上调(P<0.05),类视黄醇X受体基因γ(RXRγ)、CD36、载脂蛋白A1(APOA1)、3-羟基-3-甲基戊二酰辅酶A合成酶2(HMGCS2)和脂联素受体2(ADIPOR2)表达显著下调(P<0.05);PFP组vs CON组有4个,其中FASN表达显著上调(P<0.05),RXRγ、长链脂酰辅酶合成酶4(ACSL4)和CD36表达显著下调(P<0.05);CFA+PFP组vs CON组有6个,其中FASNCD36和SCD1表达显著上调(P<0.05),RXRγAPOA1和甘油激酶(GK)表达显著下调(P<0.05)。在共有的差异表达基因中,CFA组vs CON组、PFP组vs CON组和CFA+PFP组vs CON组为FASNRXRγCD36,CFA组vs CON组和CFA+PFP组vs CON组为SCD1和APOA1。
表5 奶牛肝脏组织脂质代谢通路差异表达基因

Table 5 Differentially expressed genes in lipid metabolism pathways in dairy cow liver tissues

项目Items 基因Genes 表达Expression

CFA组vs CON组
CFA group vs CON group
FASNSCD1、SREBP-1c 上调
RXRγCD36、APOA1、HMGCS2、ADIPOR2 下调

PFP组vs CON组
PFP group vs CON group
FASN 上调
RXRγACSL4、CD36 下调

CFA+PFP组vs CON组
CFA+PFP group vs CON group
FASNCD36、SCD1 上调
RXRγAPOA1、GK 下调

FASN:脂肪酸合成酶 fatty acid synthase;SCD1:硬脂酰辅酶A去饱和酶1 stearoyl-CoA desaturase 1;SREBP-1c:固醇调节元件结合蛋白-1c sterol regulatory element-binding protein-1c;RXRγ:类视黄醇X受体γ retinoid X receptor gamma;CD36:脂肪酸转位酶 fatty acid translocase;APOA1:载脂蛋白A1 apolipoprotein A1;HMGCS2:3-羟基-3-甲基戊二酰辅酶A合成酶2 3-hydroxy-3-methylglutaryl-CoA synthase 2;ADIPOR2:脂联素受体2 adiponectin receptor 2;ACSL4:长链脂酰辅酶合成酶4 long-chain acyl-CoA synthetase 4;GK:甘油激酶 glycerol kinase。图3图4同 the same as Fig.3 and Fig.4

2.5 奶牛肝脏组织差异表达基因qRT-PCR和Western blot验证
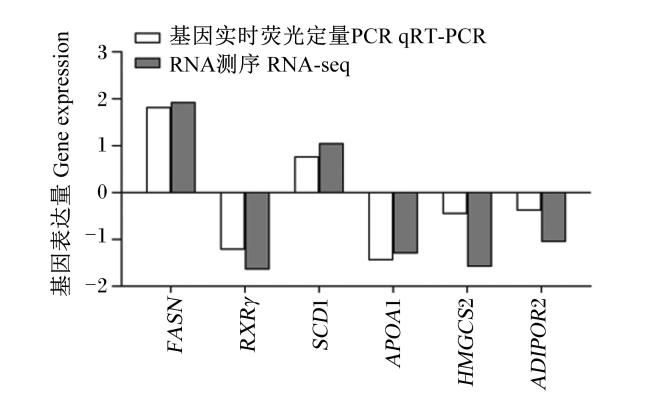
随机选取CFA组vs CON组、PFP组vs CON组和CFA+PFP组vs CON组共有差异表达基因FASNRXRγ,CFA组vs CON组和CFA+PFP组vs CON组共有差异表达基因SCD1和APOA1,CFA组vs CON组差异表达基因HMGCS2和ADIPOR2进行qRT-PCR验证,结果如图3所示,qRT-PCR结果与转录组测序结果一致。
图3 qRT-PCR和RNA测序结果比较

Fig.3 Comparison of qRT-PCR and RNA-seq results

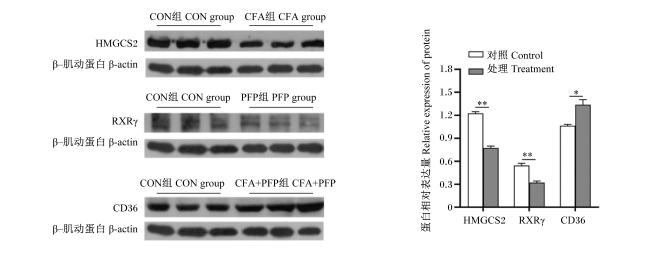
随机选取差异表达基因HMGCS2、RXRγCD36进行Western blot检测,结果如图4所示,CFA组HMGCS2蛋白相对表达量极显著低于CON组(P<0.01),PFP组RXRγ蛋白相对表达量极显著低于CON组(P<0.01),PFP+CFA组CD36蛋白相对表达量显著高于CON组(P<0.05),与转录组测序结果一致。
图4 差异表达基因蛋白表达Western blot验证结果

左为Western blot条带图,右为Western blot条带统计图。*表示P<0.05,**表示P<0.01。

Fig.4 Results of protein expression verification of differentially expressed genes by Western blot

Left was Western blot band map, and right was Western blot band statistics map. * mean P<0.05, and ** mean P<0.01.

3 讨论

3.1 CFA和PFP对围产期奶牛体重和泌乳性能的影响

本试验中,围产期补充CFA对奶牛产前DMI无显著影响,表明BWC的增加归因于饲粮养分利用率的提高,即补充CFA促进了母体和胎儿生长。对鼠的研究已经发现,母体补充FA能促进胚胎生长[15]。补充CFA后,奶牛产后DMI和BWC与CON组相比无显著差异,因此4% FCM、乳蛋白和乳脂产量以及乳总4~15碳脂肪酸含量的增加,归因于养分利用率和乳腺乳合成能力的提高。研究发现,FA是瘤胃纤维分解菌生长和奶牛乳蛋白合成的必需因子[2-4]。瘤胃纤维分解菌降解饲粮中纤维产生的乙酸是乳中4~15碳脂肪酸合成的前体,而且乙酸能通过调控胰岛素的分泌使更多的NEFA进入乳腺组织参与乳脂合成[16-17]。体内和体外试验均发现,补充FA能提高瘤胃乙酸产量[5,18]。类似的研究同样发现,奶牛围产期补充FA或CFA,泌乳早期DMI无显著变化,但是产奶量显著提高[7,19]
本试验中,奶牛围产期补充500 g/d PFP对产前和产后DMI均无显著影响。其他研究也发现,饲粮中添加1.5%或2.5%棕榈酸对泌乳早期奶牛DMI无显著影响[10,20-21]。补充PFP后,奶牛产前BWC(增加)显著提高,产后BWC(降低)有提高的趋势,PFP组和CON组奶牛产后BWC分别为-36.77和-35.96 kg。可以推断,补充PFP可能促进了奶牛产前体重的增加[1]。饲粮中补充1.5%棕榈酸的试验同样发现,泌乳早期奶牛BWC提高了0.76 kg/d[21]。本试验中,补充PFP后奶牛4% FCM和乳脂产量以及乳总16碳脂肪酸含量和FE提高,归因于16碳脂肪酸供应和饲粮能量水平的提高。本试验用PFP中含88.4%16碳脂肪酸。饲粮中的16碳脂肪酸有15%~35%被转化为乳脂[1],而且饲粮能量水平的提高使营养物质发生重新分配,导致更多的能量被分配到乳腺参与乳合成[10]。体外试验发现,补充16碳脂肪酸能促进乳腺细胞合成乳脂[22]。其他研究发现,奶牛产后立即补充棕榈酸,乳中16碳脂肪酸产量显著增加,但是1~24 d产奶量无显著变化[20-21]。这些研究[20-21]与本试验奶牛产奶量变化结果不一致,可能与补充脂肪的时间不同有关。奶牛补充脂肪,需要经过一段时间才能观察到对产奶量的促进效果[1]。另外,本试验观察到补充PFP后奶牛乳蛋白含量显著低于CON组,这与饲粮中脂肪对乳蛋白分泌的负面影响有关[1],也与饲粮中补充棕榈酸的试验结果[23]一致。

3.2 CFA和PFP对围产期奶牛血液指标和肝脏脂质含量的影响

本试验中,补充CFA后奶牛产前和产后血清葡萄糖含量与CON组相比无显著差异,这与乳糖产量和含量无显著变化的结果一致。补充CFA后奶牛产前和产后血清总蛋白和白蛋白含量显著高于CON组,这与乳蛋白产量和含量提高的结果一致,表明补充CFA提高了饲粮蛋白质利用率,改善了奶牛免疫状态。血液蛋白质主要在肝脏中合成,可作为衡量饲粮蛋白质利用率和动物免疫状态的指标[1]。养分利用和免疫状态的改善均能使更多的养分和能量分配到乳腺参与乳合成[17]。前期试验发现,荷斯坦公牛补充CFA,瘤胃微生物蛋白质产量、小肠蛋白酶活性和饲粮粗蛋白质表观消化率提高,肝脏蛋白质合成代谢关键基因表达上调[6,10,24]。其他试验发现,饲粮中添加CFA改善了围产期奶牛的免疫状态[7],提高了妊娠羊血清总蛋白和白蛋白含量[25]。奶牛血液中的NEFA主要来源于体脂肪动员[1]。因此,补充CFA后奶牛产前血清NEFA和BHBA含量显著低于CON组,这与BWC显著高于CON组的结果一致。然而,补充CFA后奶牛产后血清NEFA和BHBA含量降低与BWC不显著的结果不一致,表明更多的NEFA被分配到乳腺参与乳脂合成,这也是肝脏总脂和TG含量降低以及乳脂产量提高的原因。
本试验中,补充PFP后,奶牛产前和产后血清葡萄糖含量均无显著变化,这与饲粮中补充棕榈酸的研究结果[20]一致。补充PFP后,奶牛产前血清总蛋白和白蛋白含量以及产后血清总蛋白含量显著提高,表明饲粮蛋白质利用率提高,这与荷斯坦公牛试验结果[26]一致。补充PFP后,奶牛产前和产后血清NEFA和BHBA含量无显著变化,这与奶牛产前BWC显著提高和产后BWC不显著的结果一致,也是奶牛产后肝脏总脂和TG含量变化不显著的原因。试验结果进一步表明,补充PFP后奶牛产奶量的提高源于饲粮能量水平的提高。其他研究也发现,围产期饲粮中添加由棕榈酸和硬脂酸组成的饱和长链脂肪酸对奶牛产后10 d血浆NEFA和肝脏TG含量无显著影响[11]

3.3 CFA和PFP对奶牛肝脏脂质代谢通路和基因表达的影响

AMPK信号通路是调控PPAR信号通路、酮体的合成和降解、脂肪酸生物合成以及不饱和脂肪酸生物合成的上游通路[27-28]。AMPK磷酸化水平提高能使PPAR的表达和转录活性增加,进而上调脂肪酸β-氧化关键基因的表达[27-28]。本试验差异表达基因KEGG富集结果表明,AMPK信号通路可能是CFA调控奶牛肝脏脂质代谢的关键通路。对模型动物鼠的研究也发现,FA通过AMPK信号通路调控肝脏脂质代谢[29]。AMPK信号通路在肝脏能量状态下降时被激活,通过上调分解代谢和下调合成代谢相关的基因或蛋白表达调控肝脏能量平衡[27-28]。在CFA组vs CON组与脂质代谢相关的差异表达基因中,FASN是长链脂肪酸从头合成的限速酶,受上游靶基因SREBP-1c的调控;SCD1是催化不饱和脂肪酸合成的关键酶;CD36负责将血液中的NEFA转运至肝脏;ADIPOR2、APOA1和RXRγ是调控肝脏脂肪酸β-氧化的关键基因;HMGCS2是脂肪酸不完全氧化生成酮体的限速酶[30-31]。与CON组相比,CFA组奶牛肝脏SREBP-1cSCD1和FASN表达上调,APOA1、ADIPOR2、RXRγHMGCS2和CD36表达下调,显示补充CFA促进了脂肪酸合成,抑制了脂肪酸β-氧化、酮体生成和对血液中NEFA的吸收,表明AMPK代谢通路被抑制,肝脏的能量与健康状态改善。这一结果解释了补充CFA奶牛肝脏总脂、TG和血清BHBA含量降低的原因,也表明血清NEFA降低是由于较多的NEFA被分配到乳腺参与乳脂合成。进入肝脏的NEFA增加是导致围产期奶牛肝脏脂质积累的主要原因[1]。因此,AMPK信号通路和CD36可能是CFA调控围产期奶牛肝脏脂质代谢的关键通路和关键基因。
PFP组vs CON组奶牛肝脏差异表达基因富集的脂质代谢通路主要有PPAR信号通路、脂肪酸生物合成和脂肪酸代谢,其中PPAR信号通路为上游调控通路[27]。PPAR负责调控肝脏中TG和脂肪酸的氧化,RXRγ是其下游靶基因[27]。在PFP组vs CON组与脂质代谢相关的差异表达基因中,ACSL4负责催化进入肝脏的脂肪酸生成脂酰辅酶A,进而合成TG[32]。研究发现,ACSL4表达下调能减少TG合成,降低肝脏脂质沉积[32]。与CON组相比,PFP组奶牛肝脏FASN表达上调,ACSL4、RXRγCD36表达下调,显示脂肪酸合成被促进,TG合成、脂肪酸β-氧化和对血液中NEFA的吸收被抑制。试验结果表明,围产期补充PFP能改善奶牛肝脏的能量供应和健康状态。其他试验也发现,围产期饲粮中添加由棕榈酸和硬脂酸组成的饱和长链脂肪酸,奶牛产后10 d肝脏转录因子PPAR和基因ACSL1、CD36表达下调[11]。因此,PPAR信号通路、ACSL1和CD36可能是PFP调控围产期奶牛肝脏脂质代谢的关键通路和关键基因。
CFA+PFP组vs CON组差异表达基因富集的脂质代谢通路为PPAR信号通路、脂肪酸生物合成和甘油酯代谢,其中PPAR信号通路为上游调控通路[27]。在CFA+PFP组vs CON组与脂质代谢相关的差异表达基因中,GK是肝脏中催化甘油转化为3-磷酸甘油进入糖异生途径的限速酶[33]。本试验中,与CON组相比,CFA+PFP组奶牛肝脏SCD1、FASNCD36表达上调,APOA1、RXRγGK表达下调,显示联合补充CFA和PFP促进了肝脏脂肪酸合成和对血液NEFA的吸收,抑制了脂肪酸β-氧化和甘油的利用。比较CFA、PFP和CFA+PFP对奶牛肝脏脂质代谢基因表达的影响发现,单独补充CFA或PFP,CD36表达下调;联合补充CFA和PFP,CD36表达上调。CD36主要负责将血液中的长链脂肪酸转运至肝脏[30-31]。因此,本试验结果显示,与单独补充相比,围产期奶牛联合补充CFA和PFP可能会使进入肝脏的NEFA增加。

4 结论

① 围产期奶牛补充CFA,产奶量提高,肝脏总脂和TG含量降低;CFA调控肝脏脂质代谢的关键通路和基因为AMPK信号通路和CD36。
② 围产期奶牛补充PFP,产奶量提高,肝脏总脂和TG含量无显著变化;PFP调控肝脏脂质代谢的关键通路和基因为PPAR信号通路与ACSL1和CD36。
③ 与单独补充相比,联合补充CFA和PFP不能进一步提高奶牛泌乳性能。
[1]
National Academies of Sciences,Engineering,and Medicine, Division on Earth and Life Studies, Board on Agriculture and Natural Resources, et al. Nutrient requirements of dairy cattle[S]. 8th ed.Washington,D. C.:National Academies Press, 2021.

[2]
SLYTER L L, WEAVER J M. Tetrahydrofolate and other growth requirements of certain strains of Ruminococcus flavefaciens[J]. Applied and Environmental Microbiology, 1977, 33(2):363-369.

[3]
LIU J B, CHEN D W, MAO X B, et al. Effects of maternal folic acid supplementation on morphology and apoptosis-related gene expression in jejunum of newborn intrauterine growth retarded piglets[J]. Archives of Animal Nutrition, 2011, 65(5):376-385.

PMID

[4]
MENZIES K K, LEFÈVRE C, SHARP J A, et al. A novel approach identified the FOLR1 gene,a putative regulator of milk protein synthesis[J]. Mammalian Genome, 2009, 20(8):498-503.

[5]
LI H Q, LIU Q, WANG C, et al. Effects of dietary supplements of rumen-protected folic acid on lactation performance, energy balance,blood parameters and reproductive performance in dairy cows[J]. Animal Feed Science and Technology, 2016,213:55-63.

[6]
WANG C, LIU Q, GUO G, et al. Effects of rumen-protected folic acid on ruminal fermentation,microbial enzyme activity,cellulolytic bacteria and urinary excretion of purine derivatives in growing beef steers[J]. Animal Feed Science and Technology, 2016,221:185-194.

[7]
KHAN M Z, LIU L, ZHANG Z C, et al. Folic acid supplementation regulates milk production variables,metabolic associated genes and pathways in perinatal Holsteins[J]. Journal of Animal Physiology and Animal Nutrition, 2020, 104(2):483-492.

[8]
DUPLESSIS M, CHORFI Y, GIRARD C L. Longitudinal data to assess relationships among plasma folate,vitamin B12,non-esterified fatty acid,and β-hydroxybutyrate concentrations of Holstein cows during the transition period[J]. Metabolites, 2023, 13(4):547.

[9]
OUATTARA B, BISSONNETTE N, DUPLESSIS M, et al. Supplements of vitamins B9 and B12 affect hepatic and mammary gland gene expression profiles in lactating dairy cows[J]. BMC Genomics, 2016, 17(1):640.

[10]
LIU E, VANDEHAAR M J, LOCK A L. Effects of supplementing Holstein cows with soybean oil compared with palmitic acid-enriched triglycerides on milk production and nutrient partitioning[J]. Journal of Dairy Science, 2020, 103(9):8151-8160.

DOI PMID

[11]
AKBAR H, SCHMITT E, BALLOU M A, et al. Dietary lipid during late-pregnancy and early-lactation to manipulate metabolic and inflammatory gene network expression in dairy cattle liver with a focus on PPARs[J]. Gene Regulation and Systems Biology, 2013,7:103-123.

[12]
AOAC. Official method of analysis[S]. 18th ed. Gaithersburgs: Association of Official Analytical Chemists, 2006.

[13]
BECART I, CHEVALIER C, BIESSE J P. Quantitative analysis of phospholipids by HPLC with a light scattering evaporating detector-application to raw materials for cosmetic use[J]. Journal of High Resolution Chromatography, 1990, 13(2):126-129.

[14]
张臻. 叶酸和棕榈脂肪粉调控围产期奶牛肝脏脂质代谢的机制研究[D]. 博士学位论文. 晋中: 山西农业大学, 2019.

ZHANG Z. Mechanism research of folic acid and palm fat powder regulating hepatic lipid metabolism of transition dairy cows[D]. Ph.D. Thesis. Jinzhong: Shanxi Agricultural University, 2019. (in Chinese)

[15]
ZHOU R, ZHE L, CHEN F Y, et al. Maternal folic acid and vitamin B12 supplementation during medium to late gestation promotes fetal development via improving placental antioxidant capacity,angiogenesis and amino acid transport[J]. Journal of the Science of Food and Agriculture, 2024, 104(5):2832-2841.

[16]
陈美庆, 张养东, 郑楠, 等. 短链脂肪酸调控奶牛乳腺乳脂合成作用机制的研究进展[J]. 动物营养学报, 2022, 34(3):1426-1433.

DOI

CHEN M Q, ZHANG Y D, ZHENG N, et al. Advances in mechanism of short-chain fatty acids regulating milk fat synthesis in bovine mammary gland[J]. Chinese Journal of Animal Nutrition, 2022, 34(3):1426-1433. (in Chinese)

[17]
PIANTONI P, VANDEHAAR M J. Symposium review:the impact of absorbed nutrients on energy partitioning throughout lactation[J]. Journal of Dairy Science, 2023, 106(3):2167-2180.

[18]
PARNIAN-KHAJEHDIZAJ F, TAGHIZADEH A, HOSSEINKHANI A, et al. Evaluation of dietary supplementation of B vitamins and HMBi on fermentation kinetics,ruminal or post-ruminal diet digestibility using modified in vitro techniques[J]. Journal of BioScience and Biotechnology, 2018, 7(2/3):125-133.

[19]
GRAULET B, MATTE J J, DESROCHERS A, et al. Effects of dietary supplements of folic acid and vitamin B12 on metabolism of dairy cows in early lactation[J]. Journal of Dairy Science, 2007, 90(7):3442-3455.

[20]
DE SOUZA J, STRIEDER-BARBOZA C, CONTRERAS G A, et al. Effects of timing of palmitic acid supplementation during early lactation on nutrient digestibility,energy balance,and metabolism of dairy cows[J]. Journal of Dairy Science, 2019, 102(1):274-287.

[21]
DE SOUZA J, LOCK A L. Effects of timing of palmitic acid supplementation on production responses of early-lactation dairy cows[J]. Journal of Dairy Science, 2019, 102(1):260-273.

DOI PMID

[22]
TZOMPA-SOSA D A, VAN AKEN G, et al.VAN HOOIJDONK A C M, Influence of C16∶0 and long-chain saturated fatty acids on normal variation of bovine milk fat triacylglycerol structure[J]. Journal of Dairy Science, 2014, 97(7):4542-4551.

[23]
DE SOUZA J, GARVER J L, PRESEAULT C L, et al. Effects of prill size of a palmitic acid-enriched fat supplement on yield of milk and milk components and nutrient digestibility of dairy cows[J]. Journal of Dairy Science, 2017, 100(1):379-384.

[24]
LIU Y Q, WANG C, LIU C, et al. Effects of coated folic acid and coated methionine on growth performance,nutrient digestibility and rumen fermentation in Simmental bulls[J]. Animal Feed Science and Technology, 2023,298:115596.

[25]
EL-TARABANY M S, ATTA M A, EMARA S S, et al. Folic acid and flaxseed oil supplements in Ossimi ewes:effect on body weight changes,progesterone profile,blood chemistry,and litter traits[J]. Tropical Animal Health and Production, 2020, 52(1):301-308.

[26]
任阳奇. 棕榈酸和叶酸对育成牛生长性能和脂质代谢基因表达的影响[D]. 硕士学位论文. 晋中: 山西农业大学, 2019.

REN Y Q. Effects of palm acid and folie acid on growth performance and lipid metabolism gene expression in growing Holstein dairy bulls[D]. Master’s Thesis. Jinzhong: Shanxi Agricultural University, 2019. (in Chinese)

[27]
MANDARD S, MÜLLER M, KERSTEN S. Peroxisome proliferator-activated receptor α target genes[J]. Cellular and Molecular Life Sciences, 2004, 61(4):393-416.

[28]
FANG C Q, PAN J H, QU N, et al. The AMPK pathway in fatty liver disease[J]. Frontiers in Physiology, 2022,13:970292.

[29]
SID V, WU N, SARNA L K, et al. Folic acid supplementation during high-fat diet feeding restores AMPK activation via an AMP-LKB1-dependent mechanism[J]. American Journal of Physiology.Regulatory,Integrative and Comparative Physiology, 2015, 309(10):R1215-R1225.

[30]
STOECKMAN A K, TOWLE H C. The role of SREBP-1c in nutritional regulation of lipogenic enzyme gene expression[J]. The Journal of Biological Chemistry, 2002, 277(30):27029-27035.

[31]
HA N T, DRÖGEMÜLLER C, REIMER C, et al. Liver transcriptome analysis reveals important factors involved in the metabolic adaptation of the transition cow[J]. Journal of Dairy Science, 2017, 100(11):9311-9323.

DOI PMID

[32]
KILLION E A, REEVES A R, EL AZZOUNY M A, et al. A role for long-chain acyl-CoA synthetase-4 (ACSL4) in diet-induced phospholipid remodeling and obesity-associated adipocyte dysfunction[J]. Molecular Metabolism, 2018,9:43-56.

[33]
DIPPLE K M, ZHANG Y H, HUANG B L, et al. Glycerol kinase deficiency:evidence for complexity in a single gene disorder[J]. Human Genetics, 2001, 109(1):55-62.

文章导航

/