研究论文

低鱼粉饲料中添加酶解鱼溶浆粉对中华鳖生长性能、血清指标及肠道健康的影响

  • 包洁 , 1 ,
  • 柏美娟 2 ,
  • 胡毅 1 ,
  • 蔡明浪 1 ,
  • 朱波 1 ,
  • 谢凯 1 ,
  • 郑爽 1 ,
  • 陈开健 , 1, * ,
  • 张俊智 , 1, *
展开
  • 1 湖南农业大学水产学院,长沙 410128
  • 2 湖南普菲克生物科技有限公司,长沙 410153
*陈开健,副教授,硕士生导师,E-mail: ;
张俊智,教授,硕士生导师,E-mail:

包 洁(1999—),女,贵州铜仁人,硕士研究生,研究方向为水产动物营养与饲料。E-mail:

Copy editor: 靳爽

收稿日期: 2024-12-20

  网络出版日期: 2025-08-14

基金资助

湖南省现代农业(水产)产业技术体系项目(HARS-07)

Effects of Low Fish Meal Diet Supplemented with Stickwater Hydrolysate Meal on Growth Performance, Serum Indexes and Intestinal Health of Chinese Soft-Shelled Turtles (Pelodiscus sinensis)

  • BAO Jie , 1 ,
  • BO Meijuan 2 ,
  • HU Yi 1 ,
  • CAI Minglang 1 ,
  • ZHU Bo 1 ,
  • XIE Kai 1 ,
  • ZHENG Shuang 1 ,
  • CHEN Kaijian , 1, * ,
  • ZHANG Junzhi , 1, *
Expand
  • 1 College of Aquatic Sciences, Hunan Agricultural University, Changsha 410128, China
  • 2 Hunan Perfly Biotech Co., Ltd., Changsha 410153, China
*CHEN Kaijian, associate professor, E-mail: ;
ZHANG Junzhi, professor, E-mail:

Received date: 2024-12-20

  Online published: 2025-08-14

摘要

本试验旨在研究低鱼粉饲料中添加酶解鱼溶浆粉对中华鳖生长性能、血清指标及肠道健康的影响。配制4种等氮等脂的试验饲料:含50%鱼粉的FM50饲料(正对照组),含40%鱼粉的FM40饲料(负对照组),在FM40饲料基础上分别添加3%和6%酶解鱼溶浆粉的SHM3和SHM6饲料。选取360只健康、体格均匀、初始体重为(9.84±0.27) g的中华鳖,随机分为4组,每组3个重复,每个重复30只。各组中华鳖分别饲喂上述4种试验饲料,进行为期56 d的养殖试验。结果表明:1)与FM50组相比,FM40组饲料转化率显著提高(P<0.05),血清谷草转氨酶(GOT)、碱性磷酸酶(AKP)、酸性磷酸酶(ACP)、溶菌酶(LZM)、超氧化物歧化酶(SOD)、过氧化氢酶(CAT)活性及补体3(C3)、补体4(C4)和免疫球蛋白M(IgM)含量显著降低(P<0.05),肠道绒毛高度、胰蛋白酶(TPS)和α-淀粉酶(α-AMS)活性显著降低(P<0.05),肠道Toll样受体4(TLR4)、Toll样受体5(TLR5)和Toll样受体8(TLR8)的mRNA相对表达量显著提高(P<0.05)。2)与FM40组相比,SHM3组和SHM6组饲料转化率显著降低(P<0.05),特定生长率和增重率显著提高(P<0.05),血清GOT、AKP、ACP、LZM、SOD、CAT活性及C3、C4、IgM含量显著提高(P<0.05),肠道绒毛高度、TPS和α-AMS活性显著提高(P<0.05),肠道TLR4和TLR8的mRNA相对表达量表显著降低(P<0.05)。综上所述,摄食低鱼粉饲料会导致中华鳖生长性能降低、免疫功能下降、肠道消化吸收能力减弱以及肠道健康受损;而添加适量酶解鱼溶浆粉可有效缓解这些负面影响。

本文引用格式

包洁 , 柏美娟 , 胡毅 , 蔡明浪 , 朱波 , 谢凯 , 郑爽 , 陈开健 , 张俊智 . 低鱼粉饲料中添加酶解鱼溶浆粉对中华鳖生长性能、血清指标及肠道健康的影响[J]. 动物营养学报, 2025 , 37(8) : 5421 -5432 . DOI: 10.12418/CJAN2025.440

Abstract

This experiment was conducted to investigate the effects of low fish meal diet supplemented with stickwater hydrolysate meal on growth performance, serum indexes and intestinal health of Chinese soft-shelled turtles (Pelodiscus sinensis). Four isonitrogenous and isolipidic experimental diets were formulated: the FM50 diet containing 50% fish meal (positive control group), the FM40 diet containing 40% fish meal (negative control group), and the SHM3 and SHM6 diets, which were prepared by adding 3% and 6% stickwater hydrolysate meal respectively, to the FM40 diet. Three hundred and sixty healthy Chinese soft-shelled turtles with uniform body size and an initial body weight of (9.84±0.27) g were selected and randomly divided into 4 groups, with 3 replicates per group and 30 turtles per replicate. The turtles in each group were fed the four experimental diets described above and a 56-day feeding trial was conducted. The results showed as follows: 1) compared with the FM50 group, the feed conversion ratio in the FM40 group was significantly increased (P<0.05), the activities of serum glutamic-oxaloacetic transaminase (GOT), alkaline phosphatase (AKP), acid phosphatase (ACP), lysozyme (LZM), serum superoxide dismutase (SOD) and catalase (CAT), as well as the contents of complement 3 (C3), complement 4 (C4) and immunoglobulin M (IgM) were significantly decreased (P<0.05), intestinal villus height and the activities of trypsin (TPS) and α-amylase (α-AMS) were significantly decreased (P<0.05), and the mRNA relative expression levels of intestinal Toll-like receptor 4 (TLR4), Toll-like receptor 5 (TLR5) and Toll-like receptor 8 (TLR8) were significantly increased (P<0.05). 2) Compared with the FM40 group, the FCR in the SHM3 and SHM6 groups was significantly decreased (P<0.05), while specific growth rate and weight gain rate were significantly increased (P<0.05), the activities of serum GOT, AKP, ACP, LZM, SOD and CAT, as well as the contents of C3, C4 and IgM were significantly increased (P<0.05), intestinal villus height and the activities of TPS and α-AMS were significantly increased (P<0.05), and the mRNA relative expression levels of intestinal TLR4 and TLR8 were significantly decreased (P<0.05). In conclusion, feeding low fish meal diets results in reduced growth performance, decreased immune function and intestinal digestion-absorption capacity, as well as impaired intestinal health in Chinese soft-shelled turtles; however, appropriate supplementation of stickwater hydrolysate meal can alleviate the above negative effects caused by low fish meal diets.

鱼粉因蛋白质含量高、氨基酸平衡,且富含维生素、矿物质、必需脂肪酸等鱼类生长发育所需物质,同时具有良好的适口性与较高的消化率,故而被广泛用作水产动物的蛋白质来源[1-2]。当前受过度捕捞与环境污染等多重因素影响,鱼粉资源日趋紧缺。然而,水产养殖业的扩张使得对鱼粉的需求日益增加,这种供需失衡导致鱼粉价格急剧上升,严重制约了水产养殖业的发展[3]。在水产饲料行业,减少饲料中鱼粉使用量以降低成本,已成为企业提升经济效益的常用策略[4]。但降低饲料鱼粉水平并改用其他蛋白质源替代时,常引发鱼类氨基酸失衡、功能性物质减少、饲料利用率和适口性下降等问题,最终影响鱼类的生长与健康[5-6]。因此,缓解低鱼粉饲料对水产动物造成的负面影响成为亟待解决的关键问题。鱼溶浆(stickwater,SW)是鱼粉生产过程中的副产物,酶解鱼溶浆粉(stickwater hydrolysate meal,SHM)则是通过在鱼溶浆中添加菠萝蛋白酶或木瓜蛋白酶等水解酶,于50~55 ℃下反应3~5 h,再经120~140 ℃的喷雾干燥工艺制得的产品。相较于鱼粉,酶解鱼溶浆粉富含游离氨基酸、小分子肽及牛磺酸等营养因子,能够增强饲料诱食性,提升肠道吸收利用率[7-8]。已有研究表明,饲料中添加5%的酶解鱿鱼肽或酶解鱼肽可显著提高凡纳滨对虾(Litopenaeus vannamei)的生长性能[9];饲料中添加1%的酶解鱼溶浆可显著促进大菱鲆(Scophthalmus maximus)幼鱼的生长,提高肠道胰蛋白酶活性与消化吸收能力[10];酶解鱼溶浆粉替代部分鱼粉还可提高黄鳝(Monopterus albus)的非特异性免疫能力[11]。由此可见,酶解鱼溶浆粉在提高水产动物生长性能、促进肠道发育与消化吸收以及增强机体免疫力等方面表现优异,具备替代饲料鱼粉的潜力。
中华鳖(Pelodiscus sinensis),又称甲鱼、团鱼或水鱼,在动物分类体系中隶属爬行纲龟鳖目鳖科鳖属,是我国重要的特色淡水养殖品种之一。据渔业年鉴统计,2023年其产量达到49万t,同比增长33.13%。研究显示,中华鳖对饲料中蛋白质的需求量约为50%,且多以鱼粉作为主要蛋白质源[12],这导致养殖成本大幅增加。目前,关于酶解鱼溶浆粉在中华鳖养殖方面的研究鲜有报道。因此,本试验通过在低鱼粉饲料中添加酶解鱼溶浆粉,探究其对中华鳖生长性能、血清指标及肠道健康的影响,评估其能否减轻低鱼粉饲料导致的负面影响,以期为酶解鱼溶浆粉在中华鳖饲料中的应用提供理论依据。

1 材料与方法

1.1 试验饲料

以白鱼粉、毛塔红鱼粉、鸡肉粉及大豆浓缩蛋白为主要蛋白质源,大豆油为脂肪源,α-淀粉为糖源和黏合剂,配制4种等氮等脂的粉状饲料:含50%鱼粉的FM50饲料(正对照组),含40%鱼粉的FM40饲料(负对照组),在FM40饲料基础上分别添加3%和6%酶解鱼溶浆粉的SHM3和SHM6饲料。为确保4种饲料满足等氮等脂要求,在确定鱼粉与酶解鱼溶浆粉添加比例后,通过调整鸡肉粉、大豆浓缩蛋白及大豆油的含量配平饲料配方,试验饲料组成及营养水平见表1。白鱼粉、毛塔红鱼粉和酶解鱼溶浆粉均为市售产品,其营养水平见表2。饲料原料经超微粉碎后,按配方精确称量并逐级混合均匀,再置于搅拌机中搅拌均匀,存放于阴凉避光处备用。投喂前,向饲料中加入20%的水,揉制成面团状后进行投喂,并于1 h后收集残饵,晒干称重。
表1 试验饲料组成及营养水平(干物质基础)

Table 1 Composition and nutrient levels of experimental diets (DM basis) %

项目
Items
饲料Diets
FM50 FM40 SHM3 SHM6
原料Ingredients
白鱼粉Whitefish meal 35.00 30.00 30.00 30.00
毛塔红鱼粉Mauta redfish meal 15.00 10.00 10.00 10.00
鸡肉粉Chicken meal 8.00 14.50 12.00 8.00
酶解鱼溶浆粉Stickwater hydrolysate meal 3.00 6.00
大豆浓缩蛋白Soybean protein concentrate 8.00 11.70 11.70 13.20
发酵豆粕Fermented soybean meal 5.00 5.00 5.00 5.00
α-淀粉α-starch 21.80 21.80 21.80 21.80
大豆油Soybean oil 3.76 3.56 3.06 2.56
磷酸二氢钙Ca(H2PO4)2 2.00 2.00 2.00 2.00
预混料Premix1) 1.00 1.00 1.00 1.00
胆碱Choline chloride 0.40 0.40 0.40 0.40
抗氧化剂Antioxidant2) 0.01 0.01 0.01 0.01
防霉剂Mould inhibitor3) 0.03 0.03 0.03 0.03
合计Total 100.00 100.00 100.00 100.00
营养水平Nutrient levels4)
粗蛋白质CP 46.47 46.51 46.53 46.54
粗脂肪EE 8.42 8.32 8.43 8.37
粗灰分Ash 11.54 11.18 11.32 11.43

1)每千克预混料提供One kilogram of premix provided the following:VA 150 000 IU,VD3 110 000 IU,VE 4 000 mg,VK3 4 000 mg,VB1 800 mg,VB2 1 450 mg,VB6 2 500 mg,VB12 3 mg,VC 16 000 mg,D-泛酸钙 D-pantothenate calcium 1 250 mg,烟酰胺 nicotinamide 8 000 mg,叶酸 folic acid 250 mg,生物素 biotin 10 mg,肌醇 inositol 6 000 mg,Mg 6 000 mg,Zn 4 300 mg,Mn 650 mg, Fe 5 900 mg,Co 100 mg,I 75 mg,Se 25 mg。
2)抗氧化剂的主要成分为乙氧基喹啉。The main component of antioxidant was ethoxyquinoline.
3)防霉剂主要成分为丙酸钙。The main component of mould inhibitor was calcium propionate.
4)营养水平为实测值。The nutrient levels were measured values.

表2 白鱼粉、毛塔红鱼粉和酶解鱼溶浆粉营养水平(干物质基础)

Table 2 Nutrient levels of whitefish meal, Mauta redfish meal and stickwater hydrolysate meal (DM basis) %

项目
Items
白鱼粉
Whitefish meal
毛塔红鱼粉
Mauta redfish meal
酶解鱼溶浆粉
Stickwater hydrolysate meal
粗蛋白质CP 66.00 68.00 55.85
粗脂肪EE 6.00 8.00 30.61
粗灰分Ash 20.00 16.00 5.30
总磷TP 3.00 2.00 0.50
钙Ca 6.50 4.00 0.40
游离氨基酸Free amino acids
苏氨酸Thr 3.00 3.00 3.50
蛋氨酸Met 2.00 2.00 2.50
赖氨酸Lys 5.00 5.30 5.80
牛磺酸Tau 0.30 0.37 2.25
肽Peptide 6.50 6.83 60.13

肽含量来源于产品说明,其余为实测值。

The peptide content was derived from the product specifications, while the others were measured values.

1.2 试验动物及饲养管理

本研究已获得湖南农业大学生物医学研究伦理委员会审批,批准号为湖南农业大学伦审科第(180)号。参与试验人员严格遵循伦理道德规范,并按照相应规章制度开展相关工作。
中华鳖购自常德天诚水产养殖有限公司,试验于张家界市慈利县汪家桥村甲鱼基地开展。中华鳖入箱后禁食48 h,随后进行为期7 d的驯食,驯食期间投喂FM50饲料。驯食结束后,禁食24 h,挑选360只健康、体格均匀的中华鳖,初始体重为(9.84±0.27) g,随机分为4组,每组3个重复,每个重复30只,分别饲喂4种等氮等脂的试验饲料,养殖周期为56 d。以重复为单位将中华鳖饲养于同一水池的12个帆布池(1.5 m×1.5 m×1.0 m)中,每天于06:30—07:30和17:30—18:30各投喂1次,日投喂量为中华鳖体重的3%~5%,并每隔7 d根据生长情况调整投喂量。试验期间,每日观察并记录中华鳖的摄食情况,定期清理残饵,监测池内水温,保持水温为(30.60±0.24) ℃,溶解氧含量≥5.0 mg/L,氨氮含量<0.4 mg/L,pH为7.5~8.0。

1.3 样品采集及指标测定

1.3.1 生长性能

养殖试验结束后,禁食24 h,记录每个帆布池中中华鳖数量以及重量,计算成活率(survival rate,SR)、增重率(weight gain rate,WGR)、特定生长率(specific growth rate,SGR)、摄食量(feed intake,FI)和饲料转化率(feed conversion rate,FCR)。从每个帆布池中随机选取3只中华鳖,测量体长和体重;解剖后分离内脏与肝脏,称量内脏重和肝脏重,计算肥满度(condition factor,CF)、脏体比(viscerosomatic index,VSI)和肝体比(hepatosomatic index,HSI)。计算公式如下:

成活率(%)=100×终末只数/初始只数;

增重率(%)=100×(末均重-初均重)/初均重;

特定生长率(%/d)=100×(ln末均重-ln初均重)/试验天数;

摄食量(g)=总投喂量-总剩饵量;

饲料转化率=平均饲料摄入量/(末均重-初均重);

肥满度(g/cm3)=100×体重/体长3;

脏体比(%)=100×内脏重/体重;

肝体比(%)=100×肝脏重/体重。

1.3.2 饲料营养成分及鳖体成分

养殖试验结束后,禁食24 h,每帆布池随机选取3只中华鳖用于体成分测定。饲料、鱼粉、酶解鱼溶浆粉和鳖体的粗蛋白质含量采用凯氏定氮法(GB/T 6432—2018)测定,粗脂肪含量采用索氏抽提法(GB/T 6433—2006)测定,粗灰分含量采用550 ℃灼烧法(GB/T 6438—2007)测定;鳖体水分含量采用105 ℃烘箱干燥恒重法(GB/T 6435—2006)测定;鱼粉和酶解鱼溶浆粉钙含量采用乙二胺四乙酸二钠(EDTA)络合滴定法(GB/T 6436—2018)测定,总磷含量采用分光光度法(GB/T 6437—2018)测定,游离氨基酸含量采用离子交换色谱法(GB 5009.124—2016)测定,牛磺酸含量采用高效液相色谱法(GB 5009.169—2016)测定。

1.3.3 血清生化、免疫及抗氧化指标

养殖试验结束后,禁食24 h,每帆布池随机选取5只中华鳖进行采血,将血液放入1.5 mL无酶管中,4 ℃静置12 h后,以590×g的离心力离心10 min取上层血清,然后将样品置于-80 ℃冰箱中保存备用。血清检测指标如下:1)生化指标:白蛋白(ALB)和总蛋白(TP)含量,谷草转氨酶(GOT)和谷丙转氨酶(GPT)活性;2)免疫指标:免疫球蛋白M(IgM)、补体3(C3)和补体4(C4)含量,溶菌酶(LZM)、碱性磷酸酶(AKP)和酸性磷酸酶(ACP)活性;3)抗氧化指标:过氧化氢酶(CAT)和超氧化物歧化酶(SOD)活性,丙二醛(MDA)含量和总抗氧化能力(T-AOC)。以上指标均采用南京建成生物工程研究所生产的试剂盒进行测定,具体操作步骤参照试剂盒说明书。

1.3.4 肠道消化酶活性

养殖试验结束后,禁食24 h,从每个帆布池中随机选取6只中华鳖,在放有冰袋的解剖盘上解剖,迅速采集肠道组织并放入1.5 mL无核酸酶离心管中,于-80 ℃冰箱中保存备用。测定前,先将样品解冻,随后称取约1 g肠道组织样本。依据相应试剂盒所提供的匀浆基质,对组织样本进行匀浆处理。匀浆完成后,4 ℃下以590×g的离心力离心10 min,取上清液。肠道胰蛋白酶(TPS)、α-淀粉酶(α-AMS)和脂肪酶(LPS)活性均采用南京建成生物工程研究所生产的试剂盒测定,具体操作步骤参照试剂盒说明书。

1.3.5 肠道组织结构的观察

小心分离1.3.4中6只中华鳖的中肠组织,置于4%多聚甲醛溶液中固定,24 h后更换新鲜固定液进行短期保存。取固定后的中华鳖中肠样本进行石蜡包埋切片,切片厚度约5 μm,经苏木精-伊红(HE)染色后,在光学显微镜下观察并拍照。利用KF-Viewer图像软件分析肠道组织形态,并测量绒毛高度、绒毛宽度及肌层厚度。

1.3.6 肠道炎症相关基因表达

采集1.3.4中6只中华鳖的肠道组织,放入1.5 mL无核酸酶离心管中,于-80 ℃冰箱中保存备用。RNA提取、检测及cDNA的合成的操作步骤均参照本实验室前期方法[13],采用BIO-RAD CFX96TM Real-Time System荧光定量PCR仪,基于MonAmpTM Fast SYBR® Green qPCR Mix试剂盒进行实时荧光定量PCR反应。反应程序为:1)95 ℃预变性30 s;2)扩增循环(95 ℃变性5 s; 60 ℃退火30 s; 72 ℃延伸30 s);3)反应终止。以甘油醛-3-磷酸脱氢酶(GAPDH)作为内参基因,每个待测样品设置3个技术重复,采用2-△△Ct法测定目的基因的mRNA相对表达量。基因引物序列见表3
表3 引物序列

Table 3 Primer sequences

基因
Genes
上游引物序列
Forward primer sequences (5'—3')
下游引物序列
Reverse primer sequences (5'—3')
Toll样受体4 TLR4 AGCCTTCTATGGTTTGG TGTTGGACTTCAGACTCAG
Toll样受体5 TLR5 ACTACTGGCTCCTTTTC GTATCTTGTTGTCCCCTA
Toll样受体8 TLR8 GACAACGGGGCTTTCTC CTGGCAGGGATGCTAGT
甘油醛-3-磷酸脱氢酶GAPDH AGAACATCATTCCAGCATCCA CTTCATCACCTTCTTAATGTCGTC

1.4 数据处理与分析

利用Excel 2019对试验数据进行初步处理,采用SPSS 24.0软件进行单因素方差分析(one-way ANOVA),差异显著者采用Duncan氏法进行多重比较,结果用“平均值±标准误”表示,以P<0.05为差异显著。

2 结果

2.1 低鱼粉饲料中添加酶解鱼溶浆粉对中华鳖生长性能的影响

表4可知,各组间成活率、肝体比和脏体比均无显著差异(P>0.05)。与FM50组相比,FM40组饲料转化率显著提高(P<0.05),增重率、特定生长率和摄食量下降,但差异不显著(P>0.05)。与FM40组相比,SHM3组和SHM6组饲料转化率显著降低(P<0.05),特定生长率和增重率显著提高(P<0.05),且特定生长率和增重率与FM50组无显著差异(P>0.05)。FM50组、FM40组和SHM6组之间摄食量无显著差异(P>0.05),但均显著低于SHM3组(P<0.05)。
表4 低鱼粉饲料中添加酶解鱼溶浆粉对中华鳖生长性能的影响

Table 4 Effects of low fish meal diet supplemented with stickwater hydrolysate meal on growth performance of Chinese soft-shelled turtles

项目
Items
组别Groups
FM50 FM40 SHM3 SHM6
初均重IBW/g 9.58±0.39 10.01±0.09 9.81±0.16 9.97±0.10
末均重FBW/g 18.73±0.07ab 18.33±0.25a 20.77±0.26c 20.39±0.68bc
成活率SR/% 100.00±0.00 100.00±0.00 100.00±0.00 97.78±2.22
增重率WGR/% 96.18±8.27ab 83.08±0.96a 111.84±5.84b 104.73±8.45b
特定生长率SGR/(%/d) 1.34±0.08ab 1.21±0.01a 1.50±0.05b 1.43±0.08b
摄食量FI/g 295.55±2.91a 288.57±5.64a 337.14±6.34b 303.95±12.74a
饲料转化率FCR 1.08±0.04b 1.16±0.05c 1.03±0.05b 0.99±0.04a
肥满度CF/(g/cm3) 1.66±0.06a 1.80±0.05ab 1.79±0.06ab 1.82±0.02b
肝体比HSI/% 4.98±0.59 4.71±0.60 4.70±0.70 5.68±0.66
脏体比VSI/% 17.55±0.72 19.21±0.49 18.51±0.57 20.06±0.38

同行数据肩标无字母或相同字母表示差异不显著(P>0.05),不同小写字母表示差异显著(P<0.05)。下表同。

In the same row, values with no letter or the same letter superscripts mean no significant difference (P>0.05), while with different small letter superscripts mean significant difference (P<0.05). The same as below.

2.2 低鱼粉饲料中添加酶解鱼溶浆粉对中华鳖体成分的影响

表5可知,各组间中华鳖的水分、粗蛋白质、粗脂肪及粗灰分含量均无显著差异(P>0.05)。
表5 低鱼粉饲料中添加酶解鱼溶浆粉对中华鳖体成分的影响

Table 5 Effects of low fish meal diet supplemented with stickwater hydrolysate meal on body composition of Chinese soft-shelled turtles %

项目
Items
组别Groups
FM50 FM40 SHM3 SHM6
水分Moisture 78.61±0.23 78.35±0.44 79.00±0.18 79.35±0.32
粗蛋白质CP 55.85±0.52 55.13±0.33 54.98±0.81 56.19±0.43
粗脂肪EE 13.32±0.33 13.51±0.62 12.25±0.57 12.65±0.09
粗灰分Ash 21.31±0.91 21.21±1.26 21.71±0.18 20.97±0.39

水分含量为鲜重基础,粗蛋白质、粗脂肪和粗灰分含量为干物质基础。

Moisture content was based on fresh weight, while the contents of CP, EE and Ash were based on dry matter.

2.3 低鱼粉饲料中添加酶解鱼溶浆粉对中华鳖血清生化及免疫指标的影响

表6可知,各组间血清ALB、TP含量及GPT活性均无显著差异(P>0.05)。与FM50组相比,FM40组血清GOT、AKP、ACP、LZM活性及C3、C4、IgM含量显著降低(P<0.05)。与FM40组相比,SHM3组和SHM6组血清上述指标活性或含量显著提高(P<0.05),且除AKP活性外与FM50组均无显著差异(P>0.05)。SHM3组血清AKP活性显著高于FM50组(P<0.05)。
表6 低鱼粉饲料中添加酶解鱼溶浆粉对中华鳖血清生化及免疫指标的影响

Table 6 Effects of low fish meal diet supplemented with stickwater hydrolysate meal on serum biochemical and immune indexes of Chinese soft-shelled turtles

项目
Items
组别Groups
FM50 FM40 SHM3 SHM6
白蛋白ALB/(g/L) 6.55±0.35 6.25±0.46 7.28±0.18 6.96±0.38
总蛋白TP/(mg/mL) 55.38±2.66 54.39±1.03 55.32±1.89 53.99±1.51
谷草转氨酶GOT/(U/L) 7.81±0.23b 6.08±0.16a 8.14±0.51b 8.49±0.20b
谷丙转氨酶GPT/(U/L) 49.81±0.58 44.70±1.33 47.69±2.89 47.82±0.58
碱性磷酸酶AKP/(U/L) 9.41±0.27b 8.09±0.39a 10.49±0.23c 10.06±0.20bc
酸性磷酸酶ACP/(U/L) 22.00±0.25b 19.33±0.24a 23.20±0.48b 22.68±0.79b
补体3 C3/(g/L) 0.26±0.00b 0.20±0.01a 0.27±0.00b 0.26±0.01b
补体4 C4/(g/L) 0.23±0.02b 0.18±0.01a 0.23±0.01b 0.22±0.01b
溶菌酶LZM/(U/L) 24.35±0.10b 22.74±0.85a 24.94±0.34b 25.83±0.15b
免疫球蛋白M IgM/(g/L) 0.36±0.01b 0.26±0.01a 0.37±0.01b 0.37±0.00b

2.4 低鱼粉饲料中添加酶解鱼溶浆粉对中华鳖血清抗氧化指标的影响

表7可知,各组间血清MDA含量和T-AOC无显著差异(P>0.05)。与FM50组相比,FM40组血清SOD和CAT活性显著降低(P<0.05)。与FM40组相比,SHM3组和SHM6组血清SOD和CAT活性显著提高(P<0.05),且与FM50组无显著差异(P>0.05)。
表7 低鱼粉饲料中添加酶解鱼溶浆粉对中华鳖血清抗氧化指标的影响

Table 7 Effects of low fish meal diet supplemented with stickwater hydrolysate meal on serum antioxidant indexes of Chinese soft-shelled turtles

项目
Items
组别Groups
FM50 FM40 SHM3 SHM6
丙二醛MDA/(nmol/mL) 17.55±1.57 16.75±1.76 17.53±2.58 16.96±1.75
总抗氧化能力T-AOC/(U/mL) 1.38±0.16 1.39±0.13 1.42±0.18 1.39±0.15
超氧化物歧化酶SOD/(U/mL) 141.73±6.07b 91.85±6.46a 134.34±7.25b 137.35±9.24b
过氧化氢酶CAT/(U/mL) 18.08±2.01b 13.83±2.82a 18.59±0.78b 19.27±2.92b

2.5 低鱼粉饲料中添加酶解鱼溶浆粉对中华鳖肠道形态结构的影响

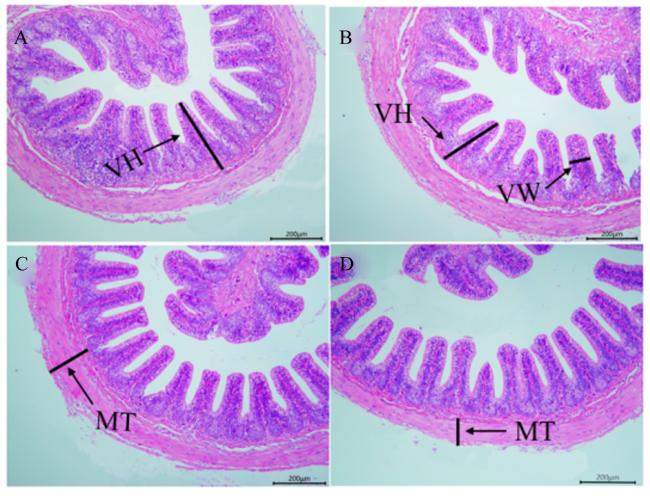
表8可知,各组间肠道绒毛宽度和肌层厚度无显著差异(P>0.05)。与FM50组相比,FM40组肠道绒毛高度显著降低(P<0.05)。与FM40组相比,SHM3组和SHM6组肠道绒毛高度显著提高(P<0.05),且与FM50组无显著差异(P>0.05)。光学显微镜观察结果(图1)显示,各组中华鳖的肠道切片均未出现明显病理症状。
表8 低鱼粉饲料中添加酶解鱼溶浆粉对中华鳖肠道形态结构的影响

Table 8 Effects of low fish meal diet supplemented with stickwater hydrolysate meal on intestinal morphology structure of Chinese soft-shelled turtles μm

项目
Items
组别Groups
FM50 FM40 SHM3 SHM6
绒毛高度Villi height 207.08±3.68b 185.50±3.33a 209.68±1.07b 207.34±1.51b
绒毛宽度Villi width 73.43±0.28 72.03±0.48 72.36±0.34 72.72±0.52
肌层厚度Muscular thickness 50.73±0.58 50.01±0.33 51.08±0.43 50.81±0.25
图1 肠道形态结构

A、B、C和D分别代表FM50组、FM40组、SHM3组和SHM6组。VH:绒毛高度;VW:绒毛宽度;MT:肌层厚度。

Fig.1 Intestinal morphology structure (100×)

A, B, C and D represented groups FM50, FM40, SHM3 and SHM6, respectively. VH: villi height; VW: villi width; MT: muscle thickness.

2.6 低鱼粉饲料中添加酶解鱼溶浆粉对中华鳖肠道消化酶活性的影响

表9可知,各组间肠道LPS活性无显著差异(P>0.05)。与FM50组相比,FM40组肠道TPS和α-AMS活性显著降低(P<0.05);与FM40组相比,SHM3组和SHM6组肠道TPS和α-AMS活性显著提高(P<0.05),且与FM50组无显著差异(P>0.05)。
表9 低鱼粉饲料中添加酶解鱼溶浆粉对中华鳖肠道消化酶活性的影响

Table 9 Effects of low fish meal diet supplemented with stickwater hydrolysate meal on intestinal digestive enzymes activities of Chinese soft-shelled turtles

项目
Items
组别Groups
FM50 FM40 SHM3 SHM6
胰蛋白酶TPS/(U/g prot) 103.45±19.34b 78.98±33.40a 108.35±41.96b 103.75±5.37b
脂肪酶LPS/(U/g prot) 19.17±0.56 17.51±0.44 19.07±0.59 18.86±0.44
α-淀粉酶α-AMS/(U/mg prot) 4.06±0.04b 3.67±0.10a 4.40±0.09b 4.21±0.25b

2.7 低鱼粉饲料中添加酶解鱼溶浆粉对中华鳖肠道炎症相关基因表达的影响

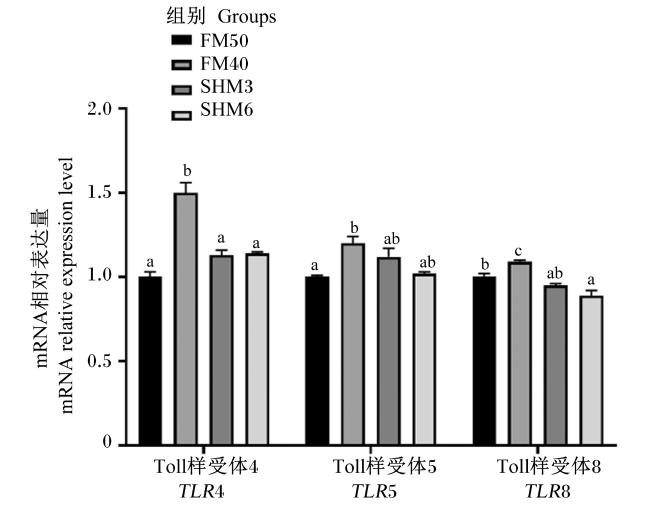
图2可知,与FM50组相比,FM40组肠道TLR4、TLR5和TLR8的mRNA相对表达量显著提高(P<0.05);与FM40组相比,SHM3组和SHM6组肠道TLR4和TLR8的mRNA相对表达量表显著降低(P<0.05),TLR5的mRNA相对表达量下降,但差异不显著(P>0.05)。
图2 低鱼粉饲料中添加酶解鱼溶浆粉对中华鳖肠道炎症相关基因表达的影响

数据柱形标注不同字母表示差异显著(P<0.05)。

Fig.2 Effects of low fish meal diet supplemented with stickwater hydrolysate meal on expression of genes related to intestinal inflammation of Chinese soft-shelled turtles

Value columns with different letters mean significant difference (P<0.05).

3 讨论

3.1 低鱼粉饲料中添加酶解鱼溶浆粉对中华鳖生长性能、肠道形态结构及消化酶活性的影响

本试验结果表明,摄食低鱼粉饲料使中华鳖增重率、特定生长率和摄食量下降,而添加3%或6%酶解鱼溶浆粉后上述指标有所提高,这与鲍清华等[9]和张亚伟等[14]的研究结果相似。鱼粉除为鱼类提供优质蛋白质外,还含有多种鱼类必需营养物质和促摄食物质(如色氨酸、苏氨酸等)[15]。低鱼粉饲料中必需营养物质含量降低,导致其无法满足中华鳖维持正常生理机能的需求;同时,促摄食物质含量降低会影响中华鳖的摄食量。添加酶解鱼溶浆粉可有效弥补低鱼粉饲料中缺失的必需营养物质。此外,与鱼粉相比,酶解鱼溶浆粉富含小肽,作为蛋白质营养代谢过程中的重要中间体,小肽可被动物体直接吸收利用,其不仅利用效率高于游离氨基酸,还能协调促进其他营养成分的吸收,进而提高动物的生产性能[16-17]。鱼类的生长依赖于机体对食物营养物质的消化吸收能力[18],而肠道消化酶活性是反映机体对营养物质消化能力的关键指标。肠道黏膜上皮细胞是营养物质吸收的主要场所,其中肠道绒毛高度、绒毛宽度和肌层厚度是反映肠道黏膜形态结构及功能最直接的指标[19]。本试验结果表明,摄食低鱼粉饲料使中华鳖肠道绒毛高度和TPS、α-AMS活性显著降低,而添加3%或6%酶解鱼溶浆粉后上述指标显著提高,与生长性能结果相似。Yang等[20]和袁向阳[21]研究表明,饲料中适量添加酶解蛋白产物可提高鱼体生长性能及消化酶活性。小肽作为肠腔内的主要吸收物质,可促进绒毛生长、改善肠道发育并增强肠道消化酶活性[22]。其作用机制可能在于:小肽与游离氨基酸的快速吸收可触发细胞内钙离子介导的信号转导通路,进而诱导肠道分泌更多的消化酶[23]

3.2 低鱼粉饲料中添加酶解鱼溶浆粉对中华鳖血清生化及免疫指标的影响

血液中的免疫物质水平是反映动物健康的重要指标,脊椎动物的免疫力受非特异性免疫和获得性免疫共同调控[22]。其中,ACP和AKP在非特异性免疫系统中发挥着重要作用。血浆中ACP活性变化通常与LZM活性呈一致趋势[24]。本试验结果表明,摄食低鱼粉饲料使中华鳖ACP、AKP和LZM活性显著降低,而添加3%或6%酶解鱼溶浆粉后这些酶的活性显著提高,这与Khosravi等[25]在真鲷(Pagrus major)上所得的研究结果一致。此外,C3、C4和IgM等在获得性免疫中发挥重要作用。IgM是硬骨鱼类获得性免疫的核心效应分子。补体是鱼类免疫系统的重要组成部分,C3和C4可以通过附着于细菌表面来增强免疫细胞的吞噬作用[26-27]。当机体相应组织细胞受损及细胞通透性增加时,血液中GOT和GPT的活性会升高[28]。本试验结果表明,摄食低鱼粉饲料使中华鳖血清C3、C4、IgM含量和GOT活性显著降低,而添加3%或6%酶解鱼溶浆粉后这些指标显著提高,与张婷婷等[29]的研究结果相似,表明适量添加鱼蛋白酶解产物能够激活补体蛋白,提升中华鳖的获得性免疫能力。这主要是因为酶解后的蛋白质会产生多种分子质量的活性肽,这些生物活性肽具有抗菌和免疫调节功能,可增强动物机体的免疫力[25]

3.3 低鱼粉饲料中添加酶解鱼溶浆粉对中华鳖血清抗氧化指标的影响

当动物体内活性氧(ROS)的产生与清除之间的平衡被扰乱时,会引发氧化应激反应,进而诱导疾病发生[30]。动物体内的抗氧化防御系统包含抗氧化酶(如SOD、CAT)和其他低分子质量物质等。其中,SOD作为关键抗氧化酶,在清除自由基、防止生物分子损伤中起重要作用;CAT可将过氧化氢(H2O2)分解为氧分子和水,是组织中主要的抗氧化酶。MDA是机体内自由基作用于脂质发生过氧化反应的终产物,其含量可反映机体脂质过氧化程度[31]。在本试验中,摄食低鱼粉饲料使中华鳖血清SOD和CAT活性显著降低,抗氧化能力下降,这与符策峰等[30]的研究结果相似。而添加3%或6%的酶解鱼溶浆粉则显著提高了中华鳖血清SOD和CAT活性,表明低鱼粉饲料中添加酶解鱼溶浆粉能提高中华鳖抗氧化能力,这与许聪等[32]的研究结果相似。这可能是因为酶解鱼溶浆粉中富含小肽,小肽中的某些基团能够与自由基结合,还原自由基,从而显著提升中华鳖的抗氧化能力。此外,添加酶解鱼溶浆粉还可以补充牛磺酸。相关研究表明,低鱼粉饲料中适量添加牛磺酸,能够有效调节机体正常的生理活动,增强细胞膜的抗氧化防御能力[23]

3.4 低鱼粉饲料中添加酶解鱼溶浆粉对中华鳖肠道炎症相关基因表达的影响

肠道黏膜屏障可以维持内环境平衡,有效阻止细菌及致病性抗原的入侵,其主要由生物屏障、化学屏障、机械屏障和免疫屏障组成[33-34]。固有免疫是动物机体的一种早期非特异性免疫防御机制,通过吞噬、溶解、杀死病原体及激活天然杀伤细胞等方式来保护机体免受感染。Toll样受体(TLRs)是固有免疫系统中的重要组成部分,广泛分布于肠道上皮细胞和免疫细胞表面[35]。其中,TLR4主要识别革兰氏阴性细菌的脂多糖(LPS),对肠道屏障完整性与炎症反应调控具有双重作用[36];TLR5识别细菌鞭毛蛋白,在调节肠道菌群平衡和黏膜免疫中发挥重要作用[37];TLR8则通过识别单链RNA参与抗病毒免疫反应,同时影响肠道抗原递呈细胞的活性及其与T细胞的相互作用,进而调节肠道炎症环境[38]。本试验中,饲喂低鱼粉饲料显著上调了中华鳖肠道TLR4、TLR5和TLR8的表达。这可能是由于低鱼粉饲料导致中华鳖肠道免疫屏障受损,Toll样受体被激活,进而诱发炎症因子释放或内环境稳态失衡,这与郝甜甜等[10]的研究结果相似。而添加3%或6%酶解鱼溶浆粉后,中华鳖肠道TLR4、TLR5和TLR8的表达显著下调,这可能是由于酶解鱼溶浆粉缓解了低鱼粉饲料导致的肠道免疫屏障的损伤,避免Toll样受体过度激活。此外,酶解鱼溶浆粉中核苷酸含量丰富,其不仅能促进肠道黏膜创伤的有效愈合,还能增强机体的抗病性和抗应激能力,减少肠炎的发生[39],其含有的活性物质可能直接激活肠道免疫信号通路[40]

4 结论

综上所述,在低鱼粉饲料中添加3%或6%的酶解鱼溶浆粉,可通过提高血清免疫物质含量或活性、增强血清抗氧化酶与肠道消化酶活性及降低肠道Toll样受体表达水平,有效缓解低鱼粉饲料导致的中华鳖免疫功能下降、肠道健康受损及消化吸收能力降低等问题,从而改善其饲料效率与生长性能。
[1]
李健鹏, 陈怀定, 方彰胜. 鱼类氨基酸代谢机制对促进生长的机理[J]. 吉林农业, 2018(14):72-73.

LI J P, CHEN H D, FANG Z S. Mechanism of amino acid metabolism mechanism on growth promotion in fish[J]. Jilin Agriculture, 2018(14):72-73. (in Chinese)

[2]
卞宇嵘. 发酵蚕蛹替代鱼粉饲喂大口黑鲈研究[D]. 硕士学位论文. 镇江: 江苏科技大学, 2021.

BIAN Y R.Study on partial replacement of fish meal with fermented silkworm pupae meal in feeding largemouth bass, Micropterus salmoides[D]. Master’s Thesis. Zhenjiang: Jiangsu University of Science and Technology, 2021. (in Chinese)

[3]
曹素会. 大菱鲆饲料中酶解羽毛粉替代鱼粉蛋白的可行性研究[D]. 硕士学位论文. 上海: 上海海洋大学, 2020.

CAO S H. Assessing feasibility of replacement of fishmeal with enzyme-treated feather meal in the diet of juvenile turbot (Scophthalmus maximus L.)[D]. Master’s Thesis. Shanghai: Shanghai Ocean University, 2020. (in Chinese)

[4]
BORLONGAN I G, EUSEBIO P S, WELSH T. Potential of feed pea (Pisum sativum) meal as a protein source in practical diets for milkfish (Chanos chanos Forsskal)[J]. Aquaculture, 2003, 225(1/2/3/4):89-98.

[5]
冷向军. 低鱼粉水产饲料的研究与应用[J]. 饲料工业, 2020, 41(22):1-8.

LENG X J. The research and application of low fish meal diets in aquaculture[J]. Feed Industry, 2020, 41(22):1-8. (in Chinese)

[6]
鄢朝. 对虾饲料蛋白源开发的研究进展[J]. 广东饲料, 2024, 33(1):44-46.

YAN Z. Research progress of development of shrimp feed protein sources[J]. Guangdong Feed, 2024, 33(1):44-46. (in Chinese)

[7]
AKSNES A, HOPE B, HØSTMARK Ø, et al. Inclusion of size fractionated fish hydrolysate in high plant protein diets for Atlantic cod,Gadus morhua[J]. Aquaculture, 2006, 261(3):1102-1110.

[8]
KOTZAMANIS Y P, GISBERT E, GATESOUPE F J, et al. Effects of different dietary levels of fish protein hydrolysates on growth,digestive enzymes, gut microbiota,and resistance to Vibrio anguillarum in European sea bass (Dicentrarchus labrax) larvae[J]. Comparative Biochemistry and Physiology Part A:Molecular & Integrative Physiology, 2007, 147(1):205-214.

[9]
鲍清华, 夏辉, 杨煜洁, 等. 三种酶解蛋白肽分别替代部分鱼粉对凡纳滨对虾幼虾生长、体组成和抗氧化性能的影响[J]. 河北渔业, 2024(1):1-8.

BAO Q H, XIA H, YANG Y J, et al. Effects of three enzymatic protein peptides replacing fishmeal on growth,body composition and antioxidant properties of juvenile Litopenaeus vannamei[J]. Hebei Fisheries, 2024(1):1-8. (in Chinese)

[10]
郝甜甜, 许聪, 王际英, 等. 酶解鱼溶浆和植物精油对大菱鲆幼鱼生长、肠道消化酶活力及TOR相关基因表达的影响[J]. 大连海洋大学学报, 2022, 37(3):441-449.

HAO T T, XU C, WANG J Y, et al. Effects of dietary stickwater hydrolysate and plant essential oils on growth performance,immunity,digestive enzyme activity and TOR related gene expression of juvenile turbot Scophthalmus maximus[J]. Journal of Dalian Fisheries University, 2022, 37(3):441-449. (in Chinese)

[11]
柳远香, 石勇, 马学坤, 等. 酶解鱼溶浆粉替代部分鱼粉对黄鳝生长、血清生化及免疫指标的影响[J]. 饲料工业, 2024, 45(16):85-91.

LIU Y X, SHI Y, MA X K, et al. Effects of replacing some fishmeal with stickwater hydrolysate meal on growth,serum biochemical and immunological indices of rice field eel (Monopterus albus)[J]. Feed Industry, 2024, 45(16):85-91. (in Chinese)

[12]
罗皓, 胡亚军, 朱波, 等. 中华鳖营养与饵料学研究进展[J]. 现代畜牧兽医, 2022(11):91-96.

LUO H, HU Y J, ZHU B, et al. Advances in nutrition and feed science of Chinese soft-shelled turtle (Trionyx sinensis)[J]. Modern Journal of Animal Husbandry and Veterinary Medicine, 2022(11):91-96. (in Chinese)

[13]
石勇. 穿心莲内酯对黄鳝免疫功能的影响及机制研究[D]. 硕士学位论文. 长沙: 湖南农业大学, 2020.

SHI Y. The effects of andrographolide on immune function of rice field eel (Monopterus albus) and the molecular mechanism[D]. Master’s Thesis. Changsha: Hunan Agricultural University, 2020. (in Chinese)

[14]
张亚伟. 酶解鱼膏和酶解虾膏在大口黑鲈(Micropterus salmoides)幼鱼膨化饲料中的应用研究[D]. 硕士学位论文. 舟山: 浙江海洋大学, 2021.

ZHANG Y W. Application of enzymatic fish paste and enzymatic shrimp paste in expanded feed for largemouth bass (Micropterus salmoides) juveniles[D]. Master’s Thesis. Zhoushan: Zhejiang Ocean University, 2021.

[15]
SHAHIDI F, BOTTA J R. Seafoods:chemistry, processing technology and quality[M]. New York: Springer,1995.

[16]
GARDNER M L. Intestinal assimilation of intact peptides and proteins from the diet-a neglected field?[J]. Biological Reviews of the Cambridge Philosophical Society, 1984, 59(3):289-331.

[17]
GILBERT E R, WONG E A, WEBB K E,Jr. Board-invited review:peptide absorption and utilization:implications for animal nutrition and health[J]. Journal of Animal Science, 2008, 86(9):2135-2155.

[18]
HAKIM Y, UNI Z, HULATA J, et al. Relationship between intestinal brush border enzymatic activity and growth rate in tilapias fed diets containing 30% or 48% protein[J]. Aquaculture, 2006, 257(1/2/3/4):420-428.

[19]
SHEIKHZADEH N, TAYEFI-NASRABADI H, OUSHANI A K, et al. Effects of haematococcus pluvialis supplementation on antioxidant system and metabolism in rainbow trout (Oncorhynchus mykiss)[J]. Fish Physiology and Biochemistry, 2012, 38(2):413-419.

DOI PMID

[20]
YANG Y H, AI Q H, MAI K S, et al. Effects of dietary soy protein concentrate on growth performance,digestion,and protein metabolism of juvenile darkbarbel catfish Pelteobagrus vachelli[J]. The Israeli Journal of Aquaculture-Bamidgeh, 2014,66:1064.

[21]
袁向阳. 酶解蛋白产物替代鱼粉对鱼生长、抗氧化和免疫的影响研究[D]. 博士学位论文. 南京: 南京农业大学, 2019.

YUAN X Y. Study on effects of replacing fish meal with protein hydrolysates on groth,antioxidation and immune in fish[D]. Ph.D.Thesis. Nanjing: Nanjing Agricultural University, 2019. (in Chinese)

[22]
陈文雅, 计成, 王碧莲. 生物活性肽的功能与应用[J]. 饲料研究, 2014(21):38-41.

CHEN W Y, JI C, WANG B L. Functions and applications of bioactive peptides[J]. Feed Research, 2014(21):38-41. (in Chinese)

[23]
LI M, LAI H, LI Q, et al. Effects of dietary taurine on growth,immunity and hyperammonemia in juvenile yellow catfish Pelteobagrus fulvidraco fed all-plant protein diets[J]. Aquaculture, 2016,450:349-355.

[24]
CHENG T C. Immunology deficiency disease in marine mollusks:measurements of some variables[J]. Journal of Aquatic Animal Health, 1989, 1(3):209-216.

[25]
KHOSRAVI S, RAHIMNEJAD S, HERAULT M, et al. Effects of protein hydrolysates supplementation in low fish meal diets on growth performance,innate immunity and disease resistance of red sea bream Pagrus major[J]. Fish & Shellfish Immunology, 2015, 45(2):858-868.

[26]
WATTS M, MUNDAY B L, BURKE C M. Immune responses of teleost fish[J]. Australian Veterinary Journal, 2001, 79(8):570-574.

PMID

[27]
JENKINS J A, OURTH D D. Opsonic effect of the alternative complement pathway on channel catfish peripheral blood phagocytes[J]. Veterinary Immunology and Immunopathology, 1993, 39(4):447-459.

PMID

[28]
李赟, 汝少国. 久效磷对金鱼肝脏和血浆谷丙、谷草转氨酶活性的影响[J]. 安全与环境学报, 2008, 8(5):9-12.

LI Y, RU S G. Effects of monocrotophos on GPT and GOT activities in the goldfish (Carassius auratus) livers and serum[J]. Journal of Safety and Environment, 2008, 8(5):9-12.

[29]
张婷婷, 陈效儒, 梁萌青, 等. 不同蛋白水解物对花鲈(Lateolabrax japonicus)生长性能及非特异性免疫的影响[J]. 渔业科学进展, 2017, 38(6):96-105.

ZHANG T T, CHEN X R, LIANG M Q, et al. Effects of different protein hydrolysates on growth performance and non-specific immunity of Japanese seabass (Lateolabrax japonicus)[J]. Progress in Fishery Sciences, 2017, 38(3):96-105.

[30]
符策峰, 李松林, 代敏, 等. 海洋性动物水解蛋白对珍珠龙胆石斑鱼生长、饲料利用及体组成的影响[J]. 上海海洋大学学报, 2021, 30(4):624-633.

FU C F, LI S L, DAI M, et al. Effects of marine animal protein hydrolysates on growth,feed utilization and body composition of hybrid grouper (Epinephelus fuscoguttatus ♀×Epinephelus lanceolatus ♂)[J]. Journal of Shanghai Ocean University, 2021, 30(4):624-633. (in Chinese)

[31]
张明, 王雷, 郭振宇, 等. 脂多糖和弧菌对中国对虾血清磷酸酶、超氧化物歧化酶和血蓝蛋白的影响[J]. 海洋科学, 2004, 28(7):22-25.

ZHANG M, WANG L, GUO Z Y, et al. Effect of lipopolysaccharide and Vibrio anguillarum on the activities of phosphatase,superoxide dismutase and the content of hemocyanin in the serum of Fenneropenaeus chinesis[J]. Marine Sciences, 2004, 28(7):22-25. (in Chinese)

[32]
许聪, 王际英, 郝甜甜, 等. 发酵鱼溶浆替代鱼粉对大菱鲆幼鱼生长、抗氧化能力、蛋白质代谢及相关基因表达的影响[J]. 渔业科学进展, 2023, 44(1):90-102.

XU C, WANG J Y, HAO T T, et al. The effect of replacing fish meal with fermented stickwater on growth,antioxidant capacity,protein metabolism and related gene expression of juvenile turbot (Scophthalmus maximus L.)[J]. Progress In Fishery Sciences, 2023, 44(1):90-102. (in Chinese)

[33]
蔡巧利, 陈晓雯, 宋翔, 等. 益生菌对肠道黏膜屏障的影响[J]. 饲料研究, 2022, 45(13):141-144.

CAI Q L, CHEN X W, SONG X, et al. Effect of probiotics on intestinal mucosal barrier in animals[J]. Feed Research, 2022, 45(13):141-144. (in Chinese)

[34]
VANCAMELBEKE M, VERMEIRE S. The intestinal barrier:a fundamental role in health and disease[J]. Expert Review of Gastroenterology & Hepatology, 2017, 11(9):821-834.

[35]
嵇星铎, 吴云平, 闫丽, 等. Toll样受体及其抗病原感染作用的研究进展[J]. 中国预防兽医学报, 2024, 46(4):437-446.

JI X D, WU Y P, YAN L, et al. Research progress on Toll-like receptors and their role in antimicrobial infection[J]. Chinese Journal of Preventive Veterinary Medicine, 2024, 46(4):437-446. (in Chinese)

[36]
LIOU A P, CHAVEZ D I, ESPERO E, et al. Protein hydrolysate-induced cholecystokinin secretion from enteroendocrine cells is indirectly mediated by the intestinal oligopeptide transporter PepT1[J]. American Journal of Physiology:Gastrointestinal and Liver Physiology, 2011, 300(5):G895-G902.

[37]
刘学良, 敖大, 姜森, 等. 动物Toll样受体8的免疫学功能研究进展[J]. 动物医学进展, 2022, 43(2):107-111.

LIU X L, AO D, JIANG S, et al. Progress on immunological function of animal Toll-like receptor 8[J]. Progress in Veterinary Medicine, 2022, 43(2):107-111. (in Chinese)

[38]
PLUTA L, YOUSEFI B, DAMANIA B, et al. Endosomal TLR-8 senses microRNA-1294 resulting in the production of NFκB dependent cytokines[J]. Frontiers in Immunology, 2019,10:2860.

[39]
黄国平, 林建国. 鱼浆蛋白的开发利用[J]. 饲料工业, 2008, 29(24):54-56.

HUANG G P, LIN J G. Extraction and application of fish plasma protein[J]. Feed Industry, 2008, 29(24):54-56. (in Chinese)

[40]
DUARTE J, VINDEROLA G, RITZ B, et al. Immunomodulating capacity of commercial fish protein hydrolysate for diet supplementation[J]. Immunobiology, 2006, 211(5):341-350.

DOI PMID

文章导航

/