研究论文

乳酸菌胞外多糖对羔羊胃肠道组织形态和肠道组织紧密连接相关基因及蛋白表达的影响

  • 赵濛 , 1 ,
  • 谢淑玲 2 ,
  • 李晓奇 1 ,
  • 马博 3 ,
  • 白海涛 3 ,
  • 王潇 3 ,
  • 杜瑞平 , 1, *
展开
  • 1 内蒙古自治区农牧业科学院动物营养与饲料研究所,呼和浩特 010031
  • 2 辽宁农业职业技术学院,营口 115009
  • 3 内蒙古大学生命科学学院,呼和浩特 010018
*杜瑞平,研究员,硕士生导师,E-mail:

赵 濛(1988—),男,内蒙古呼和浩特人,助理研究员,博士,研究方向为动物营养与饲料科学。E-mail:

Copy editor: 菅景颖

收稿日期: 2024-12-13

  网络出版日期: 2025-08-14

基金资助

内蒙古农牧业创新基金项目“牛羊高效健康养殖关键饲养技术研究与示范”(2022CXJJM05)

Effects of Extracellular Polysaccharides from Lactic Acid Bacteria on Morphology of Gastrointestinal Tissues and Expression of Tight Junction Related Genes and Proteins in Intestinal Tissues of Lambs

  • ZHAO Meng , 1 ,
  • XIE Shuling 2 ,
  • LI Xiaoqi 1 ,
  • MA Bo 3 ,
  • BAI Haitao 3 ,
  • WANG Xiao 3 ,
  • DU Ruiping , 1, *
Expand
  • 1 Institute of Animal Nutrition and Feed Science, Inner Mongolia Academy of Agricultural & Animal Husbandry Science, Hohhot 010031, China
  • 2 Liaoning Agricultural Vocational and Technical College, Yingkou 115009, China
  • 3 School of Life Science, Inner Mongolia University, Hohhot 010018, China
*professor, E-mail:

Received date: 2024-12-13

  Online published: 2025-08-14

摘要

本试验旨在研究乳酸菌胞外多糖对羔羊胃肠道组织形态和肠道组织紧密连接相关基因及蛋白表达的影响。选取24只体重[(7.07±1.73) kg]相近、体况健康的15日龄左右的苏尼特羔羊,随机分为4组,分别为空白对照组、攻毒对照组、攻毒+黄芪多糖组和攻毒+乳酸菌胞外多糖组,每组6只羔羊,公母各3只。每日对各组羔羊经口腔灌服等体积的不同溶液,空白对照组和攻毒对照组为生理盐水,攻毒+黄芪多糖组按照1 mg/(只·d)的剂量灌胃黄芪多糖溶液,攻毒+乳酸菌胞外多糖组按照1 mg/(只·d)的剂量灌胃乳酸菌胞外多糖,每日连续灌服,至试验结束共计灌服49 d。于灌服处理的第43天和第44天,对攻毒对照组、攻毒+黄芪多糖组和攻毒+乳酸菌胞外多糖组试验羊进行大肠杆菌攻毒处理,攻毒剂量为109 CFU/只。于灌服处理第49天,每组随机选取3只试验羊进行屠宰,采集试验羊胃肠道组织样本用于形态学分析和紧密连接相关基因及蛋白表达检测。结果显示:1)相较于空白对照组,在大肠杆菌攻毒处理后,攻毒对照组羔羊瘤胃、皱胃、十二指肠、空肠和回肠组织黏膜受到一定程度的损坏,表现胃肠道黏膜细胞排列松散,细胞间隙增大,绒毛糜烂,而攻毒+乳酸菌胞外多糖组胃肠道组织黏膜基本正常,仅有绒毛扁平化趋势。2)攻毒+乳酸菌胞外多糖组瘤胃乳头高度显著高于攻毒对照组和空白对照组(P<0.05),瘤胃乳头宽度显著低于攻毒对照组和空白对照组(P<0.05)。攻毒+乳酸菌胞外多糖组十二指肠、空肠和回肠绒毛高度均显著高于攻毒对照组(P<0.05),十二指肠隐窝深度显著低于攻毒对照组(P<0.05)。3)攻毒+乳酸菌胞外多糖组的十二指肠组织中闭合蛋白-1(Claudin-1)、咬合蛋白(Occludin)以及空肠组织中Claudin-1、闭合蛋白-4(Claudin-4)和Occludin与回肠组织中Claudin-1和Claudin-4的mRNA相对表达量显著高于攻毒对照组(P<0.05)。4)攻毒+乳酸菌胞外多糖组十二指肠和回肠组织中Claudin-1、Claudin-4和Occludin以及空肠组织中Claudin-1和Occludin的蛋白相对表达量显著高于攻毒对照组(P<0.05)。综上所述,乳酸菌胞外多糖可以很大程度上缓解大肠杆菌引起的羔羊胃肠道黏膜结构的损伤,促进瘤胃乳头和肠道绒毛的生长发育,并通过提高紧密连接相关基因和蛋白的表达保护十二指肠、空肠和回肠黏膜结构的完整性,是一种潜在的可以缓解羔羊大肠杆菌性腹泻的微生态制剂。

本文引用格式

赵濛 , 谢淑玲 , 李晓奇 , 马博 , 白海涛 , 王潇 , 杜瑞平 . 乳酸菌胞外多糖对羔羊胃肠道组织形态和肠道组织紧密连接相关基因及蛋白表达的影响[J]. 动物营养学报, 2025 , 37(8) : 5446 -5462 . DOI: 10.12418/CJAN2025.442

Abstract

The aim of this experiment was to investigate the effects of extracellular polysaccharides from lactic acid bacteria (LAB-EPS) on the morphology of gastrointestinal tissues and the expression of tight junction related genes and proteins in intestinal tissues of lambs. Twenty-four Sunite lambs with similar body weight [(7.07±1.73) kg] and healthy physical condition at the age of 15 days were randomly divided into four groups: blank control group, challenge control group, challenge+Astragalus polysaccharide (ASP) group and challenge+extracellular polysaccharides (EPS) group. There were 6 lambs in each group, with 3 males and 3 females. Daily oral gavage of equal volumes of different solutions were administered to lambs in each experimental group. The blank control group and the challenge control group were given physiological saline, while the challenge+ASP group received a dose of 1 mg/(lamb·d) of ASP. The challenge+EPS group received a dose of 1 mg/(lamb·d) of EPS. Daily continuous administration until the end of the experiment for a total of 49 days. On the 43rd and 44th day of the experiment, the lambs in the challenge control group, challenge+ASP group, and challenge+EPS group were selected for Escherichia coli challenge treatment, with a challenge dose of 109 CFU per lamb. Finally, on the 49th day of gavage treatment, three lambs were randomly selected from each group for slaughter. Gastrointestinal tissue samples were collected from the lambs for morphological analysis and expression detection of tight junction related genes and proteins. The results showed as follows: 1) compared with the blank control group, the challenge control group suffered some degree of damage to the intestinal mucosal tissue of lambs under Escherichia coli challenge treatment, manifested as pathogenic Escherichia coli causing loose arrangement of intestinal mucosal cells, increased intercellular space, and villous erosion. In contrast, the challenge+EPS group had normal gastrointestinal mucosal tissue, with only a tendency towards villous flattening. 2)The height of rumen papillae in the challenge+EPS group was significantly higher than that in the challenge control group and the blank control group (P<0.05), while the width of rumen papillae in the challenge+EPS group was significantly lower than that in the challenge control group and the blank control group (P<0.05). The villus height of the duodenum, jejunum and ileum in the challenge+EPS group was significantly higher than that in the challenge control group (P<0.05), and the crypt depth of the duodenum in the challenge+EPS group was significantly lower than that in the challenge control group (P<0.05). 3) The mRNA relative expression levels of Claudin-1 and Occludin in the duodenal tissue, the Claudin-1, Claudin-4 and Occludin in the jejunal tissue, and the Claudin-1, Claudin-4 in the ileal tissue were significantly increased in the challnege+EPS group compared with the challenge control group (P<0.05). 4) The protein relative expression levels of Claudin-1, Claudin-4 and Occludin in the duodenal and ileal tissues and the Claudin-1 and Occludin in the jejunal tissue were significantly increased in the challnege+EPS group compared with the challenge control group (P<0.05). In summary, LAB-EPS can greatly alleviate gastrointestinal mucosal damage in lambs induced by Escherichia coli, promote the development of ruminal papillae and intestinal villi, and protect the mucosal integrity of the duodenum, jejunum and ileum by upregulating tight junction related genes and proteins. These findings indicate LAB-EPS as a promising probiotic agent for mitigating Escherichia coli-induced diarrhea in lambs.

肉羊生产集约化现代化程度的提高在使生产效率提升的同时,也伴随着风险的增加。集约化现代化生产意味着肉羊生产逐渐工业化和机械化,在机械化生产过程中采用同期发情和人工授精等繁育技术手段人为干预肉羊繁育,导致短时间内大量生产羔羊,集中产羔往往容易忽略对羔羊的保护和培育,同时由于羔羊抗病性及免疫机能尚弱,随机械化生产而来的便是羔羊出现一定的应激现象,其中生产过程中羔羊因致病性大肠杆菌造成的腹泻、急性炎症、脱水甚至死亡都带来不可忽略的牧场经济损失,因此针对肉羊集约化生产过程中羔羊的特殊培育及营养调控技术成为肉羊产业集约化进程中亟待解决的问题。
致病性大肠杆菌多存在于感染宿主的粪便或污染的水源中,是引起羔羊腹泻的常见病原菌。致病性大肠杆菌可突破宿主肠道屏障致宿主消化道发生感染,引起炎症反应、腹泻甚至死亡。反刍动物肠道屏障是一个复杂而有效的免疫系统,这一屏障功能以动态方式运行,维持肠道完整性和免疫内稳态[1]。反刍动物胃肠道黏膜屏障与其组织结构的完整性有直接关系,胃肠道黏膜有多层结构,这些结构有助于胃肠道黏膜发挥物理、化学和生物防御屏障功能。肠黏膜结构的最外层是黏液层,包含有肠道共生菌及分泌物,中间是上皮细胞构成的中间层,中间层细胞主要通过跨膜蛋白家族的蛋白复合体形成紧密连接,其决定着细胞间的通透性,从而影响肠道的屏障功能,所以中间层是肠道维持屏障功能的关键,最内层是由适应性免疫细胞如T细胞、B细胞等构成的固有层[2]。研究发现,致病性大肠杆菌分泌黏附素和肠毒素[3],可使胃肠道黏膜发生形态变化[4];此外,致病性大肠杆菌还可分泌志贺毒素引起幼畜严重腹泻和脱水[5-6]
乳酸菌广泛分布于自然界,是公认的安全级微生物,并已作为益生菌的候选菌株[7],在动物生产中其已被用于控制沙门氏菌和大肠杆菌[8-9]。乳酸菌的抑菌作用与其分泌的次级代谢产物胞外多糖(EPS)有关,乳酸菌胞外多糖已被研究证实具有抗过敏和抗炎特性[10],其可以直接作用于免疫细胞来调节免疫反应,还可以改善胃肠道菌群结构[11]。研究表明,乳酸菌胞外多糖可以有效改善微生物区系,从而保护反刍动物胃肠道健康[12-15],并且具有抗菌、抗病毒和免疫调节的生理活性[16]。作为乳酸菌的次级代谢产物,乳酸菌胞外多糖可通过发酵工程在短时间内低成本大量生产。目前针对乳酸菌胞外多糖在反刍动物抗应激及抗腹泻上的应用研究还鲜有报道。因此,本试验针对致病性大肠杆菌攻毒条件下乳酸菌胞外多糖对羔羊胃肠道上皮组织形态和紧密连接相关基因及蛋白表达的影响进行研究,探究乳酸菌胞外多糖对致病性大肠杆菌引起的羔羊胃肠道黏膜组织形态和屏障功能损伤的缓解作用,旨在进一步补充乳酸菌胞外多糖在反刍动物抗腹泻及抗应激上的应用研究数据,为肉羊产业化生产中加强羔羊培育体系开辟新的技术元素,以期解决肉羊产业实际问题,助力产业健康可持续发展。

1 材料与方法

1.1 试验动物选择与分组

选取24只体重[(7.07±1.73) kg]相近、体况健康的15日龄左右的苏尼特羔羊,随机分为4组,分别为空白对照组、攻毒对照组、攻毒+黄芪多糖组和攻毒+乳酸菌胞外多糖组,每组6只羔羊,公母各3只。不同组羔羊进行分群管理,各组内羔羊采用混群饲养并随母哺乳。

1.2 试验设计与饲养管理

本研究的动物试验在内蒙古乌兰察布市四子王旗内蒙古自治区农牧业科学院综合试验示范基地进行,试验过程中涉及到的动物福利与动物试验伦理等符合内蒙古自治区农牧业科学院科研处要求,且试验得到批准,批准号2022CXJJM05。
试验用乳酸菌胞外多糖提取纯化自课题组前期鉴定保存的干酪乳杆菌WXD30(Lactobacillus casei WXD30)[17],黄芪多糖购自上海麦克林生化科技有限公司,CAS编码为89250-26-0,货号为A860847。黄芪多糖和乳酸菌胞外多糖均使用生理盐水溶解后无菌分装备用。试验各组于每日09:00使用羔羊灌胃器进行黄芪多糖和乳酸菌胞外多糖的灌服,灌服剂量均为1 mg/(只·d),空白对照组和攻毒对照组使用等量生理盐水替代,每日连续灌服,至试验结束共计灌胃49 d。
于灌服处理第43天和第44天,对攻毒对照组、攻毒+黄芪多糖组和攻毒+乳酸菌胞外多糖组试验羊进行大肠杆菌攻毒试验,攻毒处理选择经口腔下胃管直接灌胃的方式进行,所用大肠杆菌菌种为大肠杆菌ATCC 25922[18],攻毒剂量为 10 9   C F U / [19-22],空白对照组不做处理。于试验灌胃处理第49天,每组随机选取3只试验羊进行屠宰,采集胃肠道组织样本用于后续分析。
试验期间试验羊按照牧场管理模式进行管理,羊舍通风、光照良好,卫生条件良好,羔羊随母哺乳,羔羊给予适量优质青干草和开食料,自由采食和饮水。

1.3 样本采集

对屠宰的每只试验羊分别采集瘤胃壁组织、真胃壁组织、十二指肠壁组织、空肠壁组织和回肠壁组织样本,各组织样本采集部位选择器官主体部位,样本采集大小为5 cm2,采样后用生理盐水反复冲洗掉内容物,用于组织形态学分析的样本浸泡于4%中性多聚甲醛溶液中固定保存,用于基因及蛋白表达分析的样本放入液氮中保存。

1.4 胃肠道组织形态学观察

取出在4%中性多聚甲醛溶液中固定保存的胃肠道组织样本,使用JB-L8型包埋机对进行石蜡包埋,将石蜡包埋好的组织块经莱卡RM2245切片机切成厚度为3 μm的切片,经脱水、苏木精-伊红(HE)染色及封片等步骤后,使用OLYMPUS DP26型号显微镜对胃肠道组织进行形态学观察。

1.5 肠道组织紧密连接相关基因的实时荧光定量PCR检测

将液氮保存的各肠道组织取出,经液氮研磨后采用TRIzol法提取总RNA,使用Revert Aid First Strand cDNA Synthesis Kit(Thermo)反转录获得cDNA。选择与肠道组织紧密连接相关的基因闭合蛋白-1(Claudin-1)、闭合蛋白-4(Claudin-4)、咬合蛋白(Occludin)作为目的基因,以甘油醛-3-磷酸脱氢酶(GAPDH)作为内参基因,使用2×SYBR Green qPCR Master Mix试剂盒进行实时荧光定量PCR。反应完成后,使用ABI 7500软件读取各实时荧光定量PCR的Ct值,采用2-ΔΔCt法计算目的基因的mRNA相对表达量。实时荧光定量PCR所用引物信息如表1所示。
表1 实时荧光定量PCR所用引物信息

Table 1 Primer information used in RT-qPCR

基因名称
Gene names
NCBI编号
NCBI No.
引物序列
Primer sequence (5'—3')
产物大小
Product size/bp
闭合蛋白-1
Claudin-1
NM_001185016.1 F:TTCAGGTCTGGCTGTTTTGGTTG
R:GTGTTGGGTAAGATGTTGTTTTCCG
203
闭合蛋白-4
Claudin-4
NM_001185017.2 F:TCCGTGACTTCTACAACCCCCTG
R:GTCCCCCCAAGCATCAGCAAG
106
咬合蛋白
Occludin
XM_069556237.1 F:TATGATGAGCAGCCTCCCAATGTG
R:GGATACGGTCGCTTCTCGTTCAC
155
甘油醛-3-磷酸脱氢酶
GAPDH
NM_001190390.1 F:AAGTTCCACGGCACAGTCAAGG
R:GCACCAGCATCACCCCACTTG
113

1.6 肠道组织紧密连接相关蛋白的蛋白质免疫印迹(Western Blot)检测

取液氮保存的各肠道组织样本0.1 g,加入1 mL RIPA裂解液,使用组织研磨仪进行匀浆,组织匀浆液置于4 ℃冰箱中裂解30 min,随后于4 ℃离心机12 880×g离心10 min,取上清液为提取的总蛋白,使用BCA蛋白浓度测定试剂盒(上海碧云天生物技术有限公司)按照说明书操作对样本中总蛋白进行定量。根据总蛋白定量结果取80 μg总蛋白加入适量5×蛋白上样缓冲液,混匀后水浴锅沸水中变性10 min,短暂离心后进行十二烷基硫酸钠-聚丙烯酰胺凝胶电泳(SDS-PAGE)上样,使用新鲜配制电泳缓冲液140 V电泳直至蛋白上样缓冲液跑出分离胶停止电泳。将电泳完成后的SDS-PAGE胶放入1×转膜液中平衡20 min,同时裁剪大小合适的聚偏二氟乙烯(PVDF)膜和薄滤纸,使用甲醇激活后放入转膜液中平衡20 min,随后按照负极-薄滤纸-SDS-PAGE胶-PVDF膜-薄滤纸-正极的顺序进行放置,200 mA恒流转膜1 h。使用1×TBST配制5%脱脂奶粉溶液进行封闭,随后抗体孵育中抗体按照说明书稀释,加入6 μL的一抗,4 ℃摇床孵育过夜,然后使用1×TBST清洗3次,每次10 min,将清洗后的膜放入稀释好的二抗中,室温摇床孵育1 h,然后使用1×TBST清洗3次,每次10 min。选用GAPDH作为内参蛋白,使用ECL显色获得目标蛋白的相对灰度值,使用灰度值软件Gelpro32对条带进行灰度值分析,将样本中目标蛋白与内参蛋白的灰度值比值作为目标蛋白的相对表达量。蛋白质免疫印迹所用抗体信息见表2
表2 蛋白质免疫印迹所用抗体信息

Table 2 Antibody information used in Western Blot

类别
Categories
名称
Name
来源
Origin
生产商
Manufacture
货号
Number
稀释比例
Dilution ratio

一抗Primary antibodies
Claudin-1 艾迪生 ADS-YS-632 1∶1 000
Claudin-4 艾迪生 ADS-YS-637 1∶1 000
Occludin 艾迪生 ADS-YS-642 1∶1 000
GAPDH 优抗 UM4002 1∶2 000
二抗Secondary antibodies 羊抗兔IgG-HRP 山羊 Affinity S0001 1∶4 000

Claudin-1:闭合蛋白-1;Claudin-4:闭合蛋白-4;Occludin:咬合蛋白;GAPDH:甘油醛-3-磷酸脱氢酶 glyceraldehyde-3-phosphate dehydrogenase;IgG:免疫球蛋白G immunoglobulin G;HRP:辣根过氧化物酶 horseradish peroxidase。

1.7 数据分析

目的基因mRNA相对表达量及目的蛋白相对表达量数据使用Excel 2019软件进行初步整理计算后,采用SPSS 23.0统计软件进行单因素方差分析(one-way ANOVA),并结合方差齐性检验及Duncan氏法进行多重比较,采用Excel 2019及GraphPad Prism 9.1.0软件制作图表展示。结果用平均值和均值标准误表示,差异显著标准为P<0.05表示。

2 结果与分析

2.1 乳酸杆菌胞外多糖对大肠杆菌攻毒处理下羔羊胃肠道壁组织黏膜结构的影响
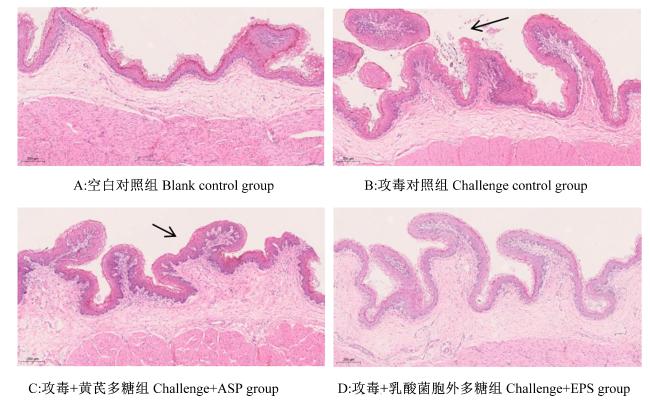
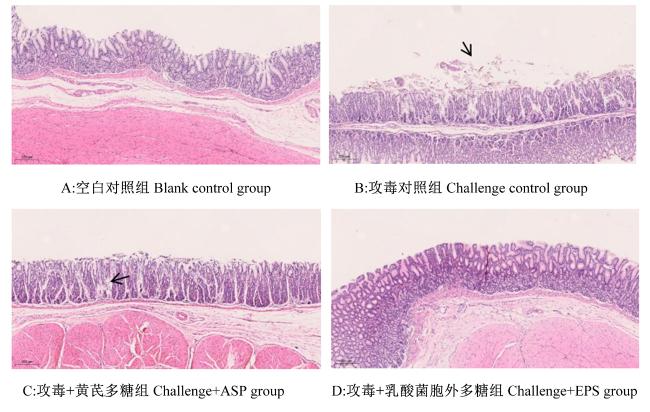
图1-A可知,空白对照组瘤胃壁组织整体结构正常,黏膜被覆上皮细胞结构正常,黏膜下层及肌层未见异常。由图1-B可知,攻毒对照组瘤胃壁组织整体结构出现一定破损,乳头黏膜层细胞结构松散(图中黑色箭头所示),黏膜下层及肌层未见异常,组织内未见明显的炎症细胞浸润。由图1-C可知,攻毒+黄芪多糖组瘤胃壁组织整体结构基本正常,黏膜层基本正常,黏膜被覆角化型扁平上皮(图中黑色箭头所示),黏膜下层及肌层未见异常,组织内未见明显的炎症细胞浸润。由图1-D可知,攻毒+乳酸菌胞外多糖组瘤胃壁组织整体结构正常,黏膜层细胞结构正常,黏膜下层及肌层未见异常,组织内未见明显的炎症细胞浸润。
图1 各组瘤胃壁组织石蜡包埋切片HE染色图

Fig.1 HE staining images of paraffin embedded sections of rumen tissue in each group (5×)

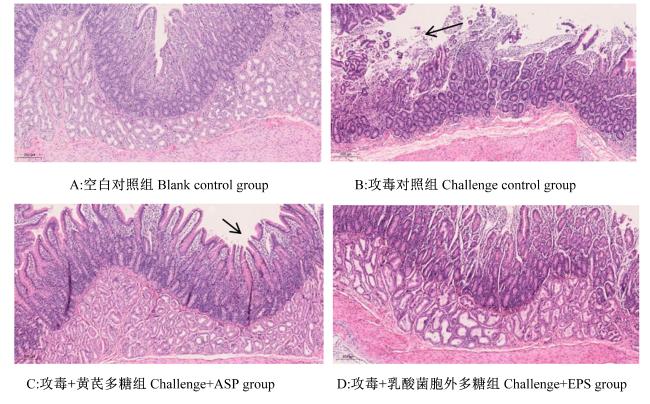
图2-A可知,空白对照组真胃壁组织整体结构正常,黏膜层细胞结构正常,黏膜腺体排列规则整齐,黏膜下层及肌层未见异常,组织内未见明显的炎症细胞浸润。由图2-B可知,攻毒对照组真胃壁组织整体结构松散,黏膜细胞排列松散,黏膜细胞出现糜烂(图中黑色箭头所示),细胞间连接松散。由图2-C可知,攻毒+黄芪多糖组真胃壁组织整体结构松散,黏膜层细胞排列异常,细胞间隙变大(图中黑色箭头所示)。由图2-D可知,攻毒+乳酸菌胞外多糖组真胃壁组织整体结构正常,黏膜层细胞排列正常,黏膜腺体排列正常,黏膜下层及肌层未见异常,组织内未见明显的炎症细胞浸润。
图2 各组真胃壁组织石蜡包埋切片HE染色图

Fig.2 HE staining images of paraffin embedded sections of abomasum tissue in each experimental group (5×)

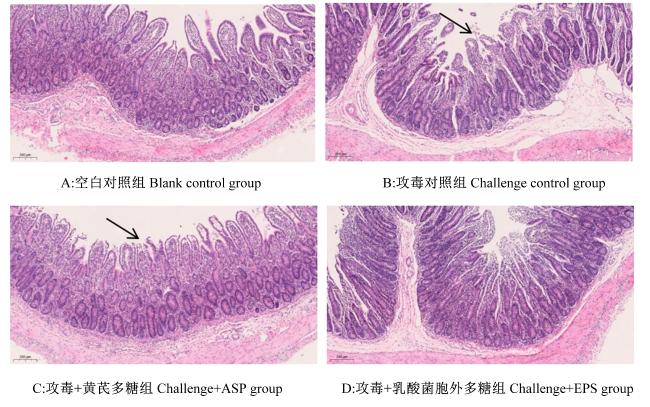
图3-A可知,空白对照组十二指肠壁组织整体结构正常,黏膜层正常,绒毛结构正常,黏膜下层及肌层未见异常。图3-B可知,攻毒对照组十二指肠壁组织整体结构松散,黏膜层细胞间隙变大,绒毛糜烂(图中黑色箭头所示),黏膜下层及肌层未见异常。图3-C可知,攻毒+黄芪多糖组十二指肠壁组织整体结构基本正常,绒毛轻度糜烂(图中黑色箭头所示),肌层未见异常。图3-D可知,攻毒+乳酸菌胞外多糖组十二指肠壁组织整体结构基本正常,黏膜层基本正常,绒毛基本正常,肌层未见异常。
图3 各组十二指肠壁组织石蜡包埋切片HE染色图

Fig.3 HE staining images of paraffin embedded sections of duodenum tissue in different groups (5×)

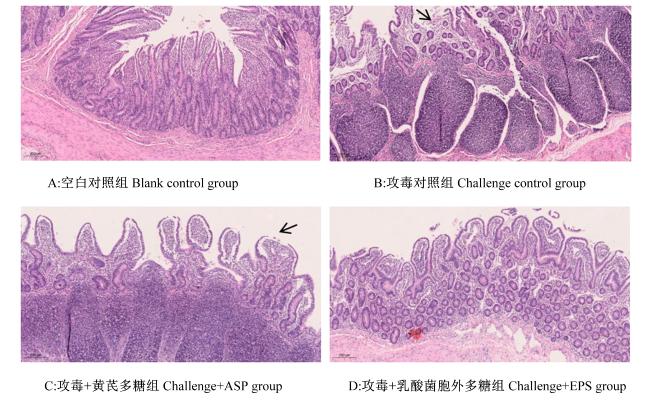
图4-A可知,空白对照组空肠壁组织整体结构正常,黏膜层正常,黏膜腺体排列规则整齐,绒毛结构正常,黏膜下层及肌层未见异常。由图4-B可知,攻毒对照组空肠壁组织整体松散,黏膜层细胞排列松散,黏膜细胞间隙变大,绒毛糜烂(图中黑色箭头所示),肌层未见异常。由图4-C可知,攻毒+黄芪多糖组空肠壁组织整体结构基本正常,黏膜层细胞排列基本正常,绒毛轻度糜烂(图中黑色箭头所示),黏膜下层及肌层未见异常。由图4-D可知,攻毒+乳酸菌胞外多糖组空肠壁组织整体结构正常,黏膜层细胞排列正常,绒毛正常,黏膜下层及肌层未见异常。
图4 各组空肠壁组织石蜡包埋切片HE染色图

Fig.4 HE staining images of paraffin embedded sections of jejunum tissue in different groups (5×)

图5-A可知,空白对照组回肠壁组织整体结构正常,黏膜层正常,黏膜腺体排列规则整齐,绒毛结构正常,肌层未见异常。由图5-B可知,攻毒对照组回肠壁组织整体结构松散,黏膜层细胞排列松散,间隙变大,绒毛结构糜烂且扁平化(图中黑色箭头所示),肌层未见异常。由图5-C可知,攻毒+黄芪多糖组回肠壁组织整体结构基本正常,黏膜层西跑排列松散,绒毛扁平化且间隙增大(图中黑色箭头所示),肌层未见异常。由图5-D可知,攻毒+乳酸菌胞外多糖组回肠壁组织整体结构基本正常,黏膜层细胞排列基本正常,绒毛扁平化,肌层未见异常。
图5 各组回肠壁组织石蜡包埋切片HE染色图

Fig.5 HE staining images of paraffin embedded sections of ileum tissue in different groups (5×)

由各组胃肠道壁组织石蜡切片HE染色图可知,相较于空白对照组,在大肠杆菌攻毒处理下,攻毒对照组羔羊胃肠道壁组织黏膜受到一定程度的损坏,表现为胃肠道壁组织黏膜细胞排列松散,细胞间隙增大,绒毛糜烂,攻毒+黄芪多糖组胃肠道壁组织黏膜受损情况相较于攻毒对照组轻,多表现为细胞排列松散,而攻毒+乳酸菌胞外多糖组胃肠道壁组织黏膜则基本正常,仅有绒毛扁平化趋势。
表4可知,攻毒+乳酸菌胞外多糖组瘤胃乳头高度为918.00 μm,显著高于攻毒对照组和空白对照组(P<0.05),瘤胃乳头宽度为300.40 μm,显著低于攻毒对照组和空白对照组(P<0.05),十二指肠、空肠和回肠绒毛高度分别为409.80、456.60和350.20 μm,均显著高于空白攻毒组(P<0.05),十二指肠、空肠和回肠隐窝深度分别为305.80、328.40和335.80 μm,其中十二指肠隐窝深度显著低于攻毒对照组(P<0.05)。
表4 各组瘤胃乳头高度、乳头宽度与肠道绒毛高度、隐窝深度测定结果

Table 4 Measurement results of nipple height and nipple width of rumen and villus height and crypt depth in intestine of different groupsμm

组织
Tissues
指标
Indexes
空白对照组
Blank control
group
攻毒对照组
Challenge
control group
攻毒+黄芪
多糖组
Challenge+
ASP group
攻毒+乳酸菌
胞外多糖组
Challenge+
EPS group
均值
标准误
SEM
P
P-value

瘤胃
Rumen
乳头高度 646.00b 515.00c 640.60b 918.00a 34.132 <0.001
乳头宽度 403.20b 819.80a 400.00b 300.40c 46.444 <0.001

十二指肠
Duodenum
绒毛高度 319.40b 240.60c 275.60bc 409.80a 17.564 <0.001
隐窝深度 468.00a 442.60a 312.80b 305.80b 22.665 <0.001

空肠
Jejunum
绒毛高度 342.20b 326.60b 361.60b 456.60a 17.605 0.025
隐窝深度 550.60a 264.40c 422.40b 328.40c 27.611 <0.001

回肠
Ileum
绒毛高度 379.40a 235.00b 337.20a 350.20a 15.176 <0.001
隐窝深度 418.80a 352.20b 419.80a 335.80b 12.753 0.015

同行数据肩标无字母或相同小写字母表示差异不显著(P>0.05),不同小写字母表示差异显著(P<0.05)。下表同。

In the same row, values with no letter or the same lowercase letter superscripts mean no significant difference (P>0.05), while with different lowercase letter superscripts mean significant difference (P<0.05). The same as below.

2.2 乳酸菌胞外多糖对大肠杆菌攻毒处理下羔羊肠道组织紧密连接相关基因表达的影响
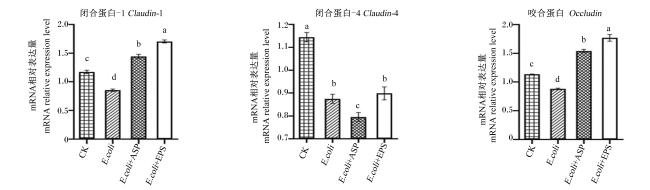
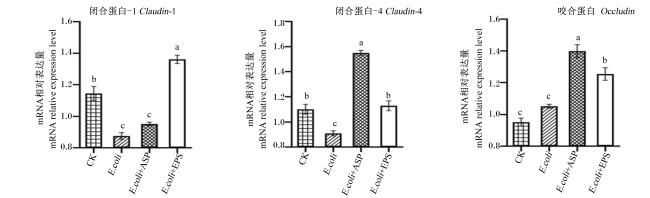
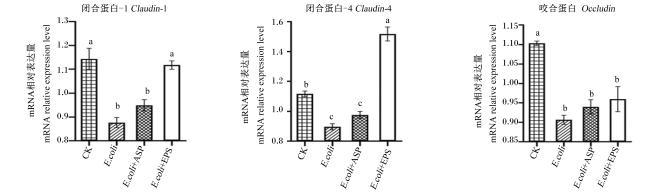
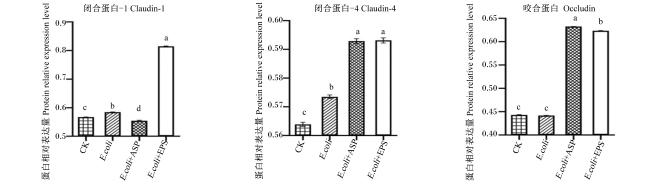
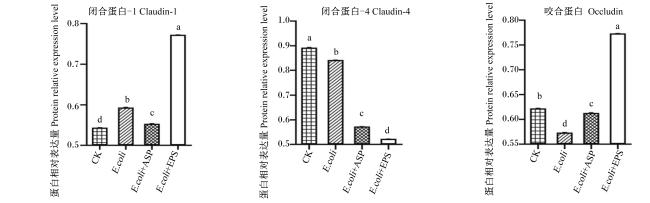
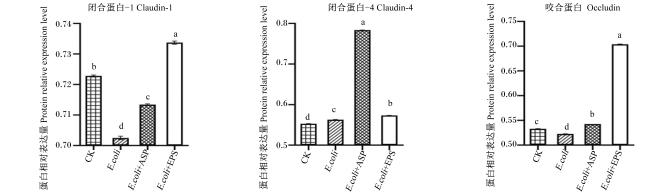
十二指肠、空肠和回肠组织中Claudin-1、Claudin-4和Occludin的mRNA相对表达量分别见图6图7图8。攻毒对照组的十二指肠和回肠组织中Claudin-1、Claudin-4和Occludin以及其空肠组织中Claudin-1和Claudin-4的mRNA相对表达量均显著低于空白对照组(P<0.05),说明大肠杆菌攻毒显著降低十二指肠、空肠和回肠组织中紧密连接相关基因的表达;而攻毒+乳酸菌胞外多糖组的十二指肠组织中Claudin-1和Occludin以及空肠组织中Claudin-1、Claudin-4和Occludin与回肠组织中Claudin-1和Claudin-4的mRNA相对表达量则显著高于攻毒对照组(P<0.05),说明乳酸菌胞外多糖对大肠杆菌造成的十二指肠、空肠和回肠组织中紧密连接相关基因表达的下降具有积极的缓解作用。
图6 十二指肠组织中Claudin-1、Claudin-4和Occludin的mRNA相对表达量

CK:空白对照组;E.coli:攻毒对照组;E.coli+ASP:攻毒+黄芪多糖组;E.coli+EPS:攻毒+乳酸菌胞外多糖组。数据柱标注相同小写字母表示差异不显著(P>0.05),不同小写字母表示差异显著(P<0.05)。下图同。

Fig.6 mRNA relative expression levels of Claudin-1, Claudin-4 and Occludin in duodenal tissue

CK: blank control group; E.coli: challenge control group; E.coli+ASP: challenge+ASP group; E.coli+EPS: challenge+EPS group. Data columns with the same lowercase letter mean no significant difference (P>0.05), while with different lowercase letters mean significant difference (P<0.05). The same as below.

图7 空肠组织中Claudin-1、Claudin-4和Occludin的mRNA相对表达量

Fig.7 mRNA relative expression levels of Claudin-1, Claudin-4 and Occludin in jejunal tissue

图8 回肠组织中Claudin-1、Claudin-4和Occludin的mRNA相对表达量

Fig.8 mRNA relative expression levels of Claudin-1, Claudin-4 and Occludin in ileal tissue

2.3 乳酸菌胞外多糖对大肠杆菌攻毒处理下羔羊肠道组织紧密连接相关蛋白表达的影响
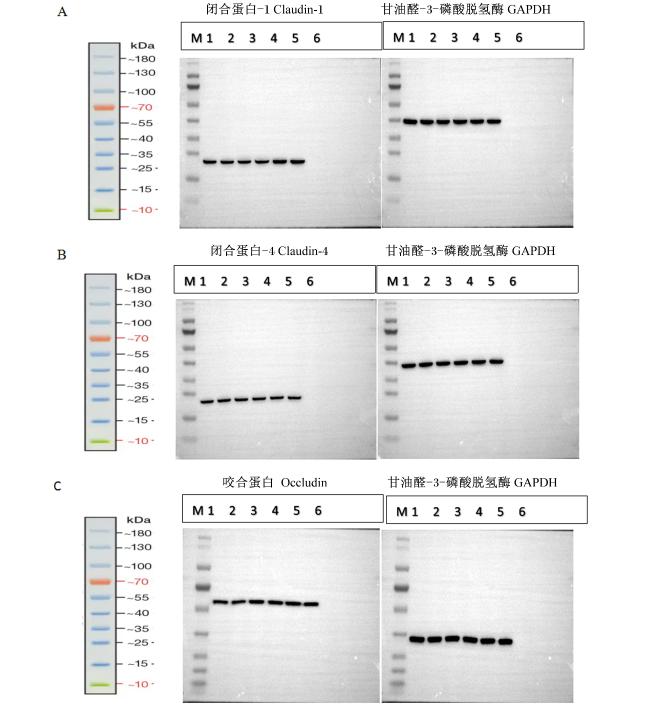
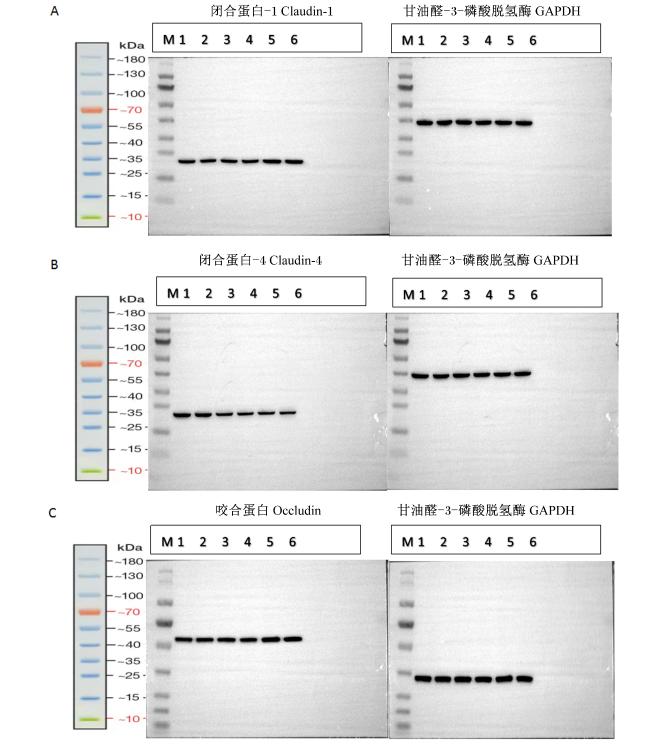
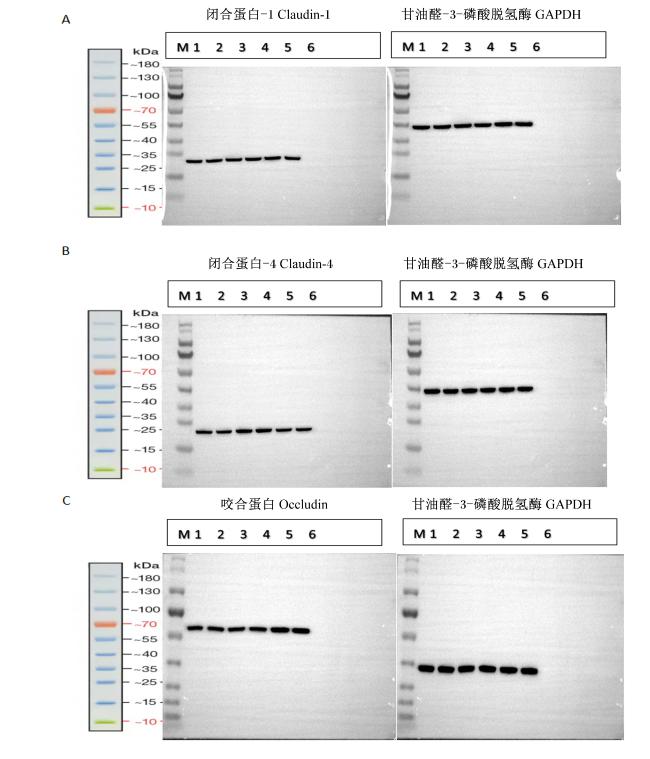
图9图10图11可知,十二指肠、空肠和回肠样本中Claudin-1、Claudin-4和Occludin蛋白的蛋白质免疫印迹检测条带清晰,目标蛋白大小准确,满足后续对目的蛋白进行相对定量分析的要求。
图9 十二指肠组织中紧密连接相关蛋白的蛋白质免疫印迹图

A:Claudin-1和GAPDH的蛋白质免疫印迹图;B:Claudin-4和GAPDH的蛋白质免疫印迹图;C:Occludin和GAPDH的蛋白质免疫印迹图。各蛋白质免疫印迹图中,M泳道为蛋白Marker,第1泳道为攻毒对照组,第2泳道为空白对照组,第3、4泳道为攻毒+黄芪多糖组,第5、6泳道为攻毒+乳酸菌胞外多糖组。下图同。

Fig.9 Western Blot images of tight junction related proteins in duodenal tissue

A: Western Blot images of Claudin-1 and GAPDH; B: Western Blot images of Claudin-4 and GAPDH; C: Western Blot images of Occluidn and GAPDH. In each Western Blot image, the lane M is protein Marker, the lane 1 is challenge control group, the lane 2 is blank control group, the lanes 3 and 4 are challenge+ASP group, and the lanes 5 and 6 are challenge+EPS group. The same as below.

图10 空肠组织中紧密连接相关蛋白的蛋白质免疫印迹图

Fig.10 Western Blot images of tight junction related proteins in jejunal tissue

图11 回肠组织中紧密连接相关蛋白的蛋白质免疫印迹图

Fig.11 Western Blot images of tight junction related proteins in ileal tissue

十二指肠、空肠和回肠组织中Claudin-1、Claudin-4和Occludin的蛋白相对表达量分别见图12图13图14。攻毒+乳酸菌胞外多糖组十二指肠和回肠组织中Claudin-1、Claudin-4和Occludin的蛋白相对表达量均显著高于攻毒对照组(P<0.05),空肠组织中Claudin-1和Occludin的蛋白相对表达量显著高于攻毒对照组(P<0.05),且Claudin-1、Claudin-4和Occludin蛋白的表达趋势与其基因的表达趋势一致,说明在大肠杆菌攻毒处理下,乳酸菌胞外多糖可以提高羔羊胃肠道紧密连接相关蛋白的表达,抵抗大肠杆菌对胃肠道黏膜造成的物理损伤。
图12 十二指肠组织中Claudin-1、Claudin-4和Occludin的蛋白相对表达量

Fig.12 Protein relative expression levels of Claudin-1, Claudin-4 and Occludin in duodenal tissue

图13 空肠组织中Claudin-1、Claudin-4和Occludin的蛋白相对表达量

Fig.13 Protein relative expression levels of Claudin-1, Claudin-4 and Occludin in jejunal tissue

图14 回肠组织中Claudin-1、Claudin-4和Occludin的蛋白相对表达量

Fig.14 Protein relative expression levels of Claudin-1, Claudin-4 and Occludin in ileal tissue

3 讨论

3.1 乳酸菌胞外多糖可以缓解大肠杆菌对羔羊胃肠道组织黏膜结构的损伤

胃肠道组织黏膜结构的完整性是胃肠道屏障功能中机械屏障作用的充分必要条件,当黏膜结构完整性受到破坏时,胃肠道屏障功能就会大幅减弱,胃肠腔内细菌、毒素等有害物质就会侵入血液循环系统,对机体产生不良影响。胃肠道屏障功能中的机械屏障作用就是黏膜组织结构完整性作用下的黏膜物理屏障,主要是由肠黏膜上皮细胞以及细胞间连接组成[23]。黏膜组织结构由构成黏膜的多种细胞及细胞间连接复合体构成,其中紧密连接是主要的连接方式,调控着水和小分子物质的跨膜运输,是细胞通透性的决定因素[24]。紧密连接是一种动态连接结构,可以控制肠黏膜的通透性,紧密连接的复杂性及结构完整性与肠黏膜屏障功能息息相关,紧密连接遭到破坏,会导致某些抗原和细菌的透过性增强,增加机体活性氧的产生,损害肠黏膜,从而引起一系列肠道疾病,如乳糜泻、炎症性肠道疾病和肠应激综合征等[25-27],因此紧密连接复合体结构在肠黏膜屏障功能中起到重要作用。研究表明,致病性大肠杆菌可分泌致病性效应蛋白,该蛋白作用于瘤胃上皮细胞可引起细胞骨架塌陷及细胞间紧密连接变松散[28],因此致病性大肠杆菌可以损害黏膜紧密连接结构,从而破坏胃肠道黏膜的结构完整性,引起胃肠道疾病。本试验中,胃肠道组织切片HE染色形态学观察结果显示,羔羊胃肠道黏膜组织在大肠杆菌攻毒处理下均受到一定程度的损坏,表现为胃肠道黏膜细胞排列松散,细胞间隙增大,绒毛糜烂,本试验结果与上述研究结果相似,证明大肠杆菌可以损害胃肠道黏膜结构完整性。研究表明,黄芪多糖是黄芪作为药物最重要的有效成分,具有提高免疫功能、延缓衰老、清除氧自由基、控制炎症反应和抑制细菌病毒等作用[29]。攻毒+黄芪多糖组羔羊在大肠杆菌攻毒下其胃肠道组织黏膜受损情况相较于攻毒对照组要轻,多表现为细胞排列松散,该部分研究结果与邓蓓蓓[30]的研究结果相似,佐证了黄芪多糖对胃肠道黏膜具有保护作用,从而降低大肠杆菌对胃肠道黏膜造成的损伤,缓解大肠杆菌引起的腹泻症状[31]
攻毒+乳酸菌胞外多糖组羔羊在大肠杆菌攻毒下胃肠道组织黏膜基本正常,仅有绒毛扁平化趋势,说明乳酸菌胞外多糖缓解致病性大肠杆菌对胃肠道黏膜损伤的作用要优于黄芪多糖。此外,致病性大肠杆菌攻毒处理下攻毒+乳酸菌胞外多糖组和攻毒+黄芪多糖组羔羊胃肠道黏膜结构的完整性均优于空白对照组,结合黏膜物理屏障作用推测乳酸菌胞外多糖缓解胃肠道黏膜损伤的作用机制是促进胃肠道黏膜紧密连接结构中的关键基因及蛋白的表达,从而加强胃肠道黏膜中紧密连接的作用。
胃肠道是养分消化吸收的主要器官,胃肠道中与养分接触的黏膜面积与养分消化吸收成正比关系,胃肠道绒毛及乳头的数量和长度可以增加胃肠道黏膜与养分接触的面积,因此通过测量胃肠道绒毛及乳头的数量和长度可以间接比较胃肠道对养分消化吸收速率的大小。肠道黏膜由多种细胞组成,除了形成伸向腔内的绒毛结构外还有内向折叠的隐窝结构,隐窝结构为肠黏膜中干细胞分化和增殖提供了环境[32-33],干细胞沿隐窝-绒毛轴增殖分化,最终形成不同类型的成熟细胞来起到吸收和屏障功能,因此,肠黏膜隐窝深度决定了干细胞的分化能力,也反映肠黏膜发育状态,隐窝越浅发育越好,隐窝越深发育越差[34]。本试验结果显示,羔羊瘤胃乳头高度和乳头宽度以及十二指肠、空肠和回肠绒毛高度和隐窝深度在不同处理下产生了显著差异,攻毒+乳酸菌胞外多糖组瘤胃乳头高度显著高于攻毒对照组和空白对照组,瘤胃乳头宽度显著低于攻毒对照组和空白对照组,十二指肠、空肠和回肠绒毛高度均显著高于攻毒对照组,说明乳酸菌胞外多糖组胃肠道黏膜吸收面积较空白对照组和攻毒对照组显著增加,乳酸菌胞外多糖可提高大肠杆菌攻毒处理下羔羊的养分吸收效率。而针对反映肠黏膜发育状态的隐窝深度结果显示,攻毒+乳酸菌胞外多糖组的十二指肠隐窝深度显著低于空白攻毒对照组和空白对照组,空肠和回肠隐窝深度显著低于空白对照组,说明乳酸菌胞外多糖可促进大肠杆菌攻毒处理下羔羊的肠黏膜发育,加快黏膜细胞更新代谢。

3.2 乳酸菌胞外多糖可以抑制大肠杆菌对羔羊肠道组织紧密连接相关基因及蛋白表达的下调

胃肠道黏膜结构中细胞的连接方式主要有紧密连接、黏着连接、间隙连接和桥粒连接[35],其中紧密连接是黏膜结构中最重要的细胞间连接方式,通过形成紧密连接复合体直接调控物质的跨膜转运[36-38]。紧密连接复合体中的结构蛋白是由跨膜蛋白家族和外周支架蛋白构成,其中跨膜蛋白家族中的闭合蛋白(Claudins)家族和Occludin是起到紧密连接作用的主要结构蛋白,二者形成细胞间连续网状结构,在细胞间隙间形成渗透屏障[39]
Claudin-1和Claudin-4是Claudins家族中的主要成员,在多种细胞和组织中均有表达,尤其在上皮细胞中表达量最高,参与上皮细胞之间的物理连接,构成黏膜的物理屏障功能[40]。研究表明,Claudin-1和Claudin-4表达量的下调可以增加肠道黏膜的通透性,并且Claudin-1和Claudin-4的表达量与肠道屏障功能具有正相关性[41-44]。此外,研究证实Claudin-1同样是构成呼吸道上皮屏障功能的主要蛋白之一,Claudin-1表达的下调与呼吸道上皮炎症、哮喘等疾病具有相关性[45]。还有研究显示,Claudin-1和Claudin-4的表达量呈显著正相关性,说明二者之间存在协同作用[46]。Occludin作为结构蛋白在细胞紧密连接作用中参与调节细胞通透性及构成紧密连接复合体,在维持上皮通透性、黏膜屏障功能中发挥关键作用[47]。Occludin的表达量与紧密连接作用具有强相关性,与肠道黏膜屏障作用具有强相关性,Occludin在溃肠性结肠炎[48]、腹泻[49]等疾病样本中的表达量降低。研究证实,紧密连接作为肠道上皮细胞之间的主要连接方式,对维持肠道物理屏障起到重要作用[50],紧密连接蛋白的表达或者位置改变会引起肠道物理屏障功能受损,从而引发炎症性肠病、肠易激综合征和乳糜泻[51-52]。本研究中紧密连接相关基因和蛋白的表达结果显示,攻毒对照组十二指肠、空肠和回肠组织中Claudin-1和Claudin-4等紧密连接相关基因的mRNA相对表达量显著低于空白对照组,而攻毒+乳酸菌胞外多糖组十二指肠、空肠和回肠组织中Claudin-1和Claudin-4等紧密连接相关基因的mRNA相对表达量则显著高于空白攻毒对照组,且Claudin-1和Claudin-4等紧密连接相关蛋白的相对表达量与基因的变化趋势一致。由此可知,肠道组织中紧密连接相关基因和蛋白的表达量与黏膜通透性及物理屏障完整性具有相关性,而乳酸菌胞外多糖可以上调相紧密连接关基因和蛋白的表达。研究表明,嗜酸乳杆菌可以通过Toll样受体2(TLR2)/Toll样受体1(TLR1)和TLR2/Toll样受体6(TLR6)复合物增强肠道的紧密连接结构,并通过靶向肠道紧密链接结构来预防葡聚糖硫酸钠(DSS)诱导的结肠炎[53-54];嗜酸乳杆菌LA85能通过上调物理屏障相关蛋白Occludin和Claudin-1表达及通过Notch信号通路促进肠道干细胞分化基因Math1的表达和杯状细胞产生来修复环磷酰胺(CP)引起的肠道损伤[55];乳酸乳球菌可以上调紧密连接蛋白基因的表达来缓解肠道屏障损伤[56];副干酪乳杆菌可以通过核因子-κB(NF-κB)-肌球蛋白轻链激酶(MLCK)信号通路提高紧密连接蛋白的表达来缓解大肠杆菌O8引起的小肠损伤[57];罗伊氏乳杆菌可以通过激活Wnt/β-连环蛋白(β-catenin)通路增加R-spondin表达刺激肠上皮细胞增殖,修复肠上皮损伤[58];干酪乳杆菌ATCC393可以通过Toll样受体(TLRs)信号通路以及抑制肥大细胞(MCs)活性,从而上调紧密连接蛋白Claudin-1和Occludin的表达减轻肠毒素大肠杆菌K88引起的肠屏障功能障碍[59];乳酸菌可通过其表面分子或者代谢产物与模式识别受体相结合,激活与NF-κB和丝裂原活化蛋白激酶(MAPK)信号相关的髓样分化因子88(MyD88),从而影响编码细胞因子、趋化因子和抗菌肽基因的表达[60]。根据上述研究结果推断,TLRs和MyD88可能是调节肠道物理屏障功能的关键因子,乳酸菌对肠道物理屏障功能的调节可能与它们相关。由本试验结果可知,大肠杆菌攻毒显著降低了羔羊十二指肠、空肠和回肠组织中紧密连接相关基因的表达,乳酸菌胞外多糖可抑制大肠杆菌攻毒引起的十二指肠、空肠和回肠组织中紧密连接相关基因表达的下调,并且紧密连接相关蛋白Claudin-1、Claudin-4和Occludin的表达与其基因的表达变化趋势一致。上述研究结果说明,在大肠杆菌攻毒处理下,乳酸菌胞外多糖可以通过提高肠道组织中紧密连接相关基因和蛋白的表达抵消大肠杆菌对肠道屏障功能造成的物理损伤。

4 结论

大肠杆菌攻毒处理损伤了羔羊胃肠道组织黏膜结构,而乳酸菌胞外多糖可以在很大程度上缓解大肠杆菌对羔羊胃肠道黏膜结构的损伤,促进瘤胃乳头及肠道绒毛的生长发育,并通过提高紧密连接相关基因及蛋白的表达保护黏膜上皮细胞的紧密连接结构,提高胃肠道物理屏障功能,从而对大肠杆菌引起胃肠道黏膜损伤起到缓解作用。因此,乳酸菌胞外多糖可以作为一种潜在的缓解羔羊大肠杆菌性腹泻的微生态制剂用于羔羊的健康养殖。
[1]
SALVO ROMERO E, ALONSO COTONER C, PARDO CAMACHO C, et al. The intestinal barrier function and its involvement in digestive disease[J]. Revista Espanola de Enfermedades Digestivas2015, 107(11):686-696.

[2]
VANCAMELBEKE M, VERMEIRE S. The intestinal barrier:a fundamental role in health and disease[J]. Expert Review of Gastroenterology & Hepatology, 2017, 11(9):821-834.

[3]
NAGY B, FEKETE P Z. Enterotoxigenic Escherichia coli in veterinary medicine[J]. International Journal of Medical Microbiology, 2005, 295(6/7):443-454.

[4]
ORSKOV I, ORSKOV F, JANN B, et al.Serology,chemistry,and genetics of O and K antigens of Escherichia coli[J]. Bacteriological Reviews, 1977, 41(3):667-710.

[5]
BEUTIN L, STRAUCH E. Identification of sequence diversity in the Escherichia coli fliC genes encoding flagellar types H8 and H40 and its use in typing of Shiga toxin-producing E.coli O8,O22,O111,O174,and O179 strains[J]. Journal of Clinical Microbiology, 2007, 45(2):333-339.

[6]
朱晶. 产肠毒素大肠杆菌、肠上皮细胞和乳酸菌相互关系的研究[D]. 博士学位论文. 上海: 上海交通大学, 2011.

ZHU J. Study on interaction between enterotoxigenic Escherichia coli,interestinal epithelial cells and lactic acid bacteria[D]. Ph.D.Thesis. Shanghai: Shanghai Jiao Tong University, 2011. (in Chinese)

[7]
张明芳, 吴国芳, 王磊. 乳酸菌在动物生产中的应用研究进展[J]. 家畜生态学报, 2024, 45(8):1-7.

ZHANG M F, WU G F, WANG L. Research progress on the application of lactic acid bacteria in animal production[J]. Acta Ecology Animals Domastici, 2024, 45(8):1-7. (in Chinese)

[8]
GILL H S, SHU Q, LIN H, et al. Protection against translocating Salmonella typhimurium infection in mice by feeding the immune-enhancing probiotic Lactobacillus rhamnosus strain HN001[J]. Medical Microbiology and Immunology, 2001, 190(3):97-104.

[9]
SHU Q, GILLL H S. Immune protection mediated by the probiotic Lactobacillus rhamnosus HN001 (DR20TM) against Escherichia coli O157:H7 infection in mice[J]. FEMS Immunology and Medical Microbiology, 2002, 34(1):59-64.

[10]
HACHIMURA S, TOTSUKA M, HOSONO A. Immunomodulation by food:impact on gut immunity and immune cell function[J]. Bioscience Biotechnology and Biochemistry, 2018, 82(4):584-599.

[11]
TANG C, DING R X, SUN J, et al. The impacts of natural polysaccharides on intestinal microbiota and immune responses—a review[J]. Food & Function, 2019, 10(5):2290-2312.

[12]
苗君莅, 于鹏, 肖杨, 等. 胞外多糖的研究现状与展望[J]. 食品科技, 2014, 39(10):226-231.

MIAO J L, YU P, XIAO Y, et al. Advances and prospect of exopolysaccharides[J]. Food Science and Technology, 2014, 39(10):226-231. (in Chinese)

[13]
任大勇. 益生乳酸杆菌的黏附及免疫调节作用研究[D]. 博士学位论文. 长春: 吉林大学, 2013.

REN D Y. Research on adhesion and immunoregulation of probiotic Lactobacillus strains[D]. Ph.D.Thesis. Changchun: Jilin University, 2013. (in Chinese)

[14]
LI S J, CHEN T T, XU F, et al. The beneficial effect of exopolysaccharides from Bifidobacterium bifidum WBIN03 on microbial diversity in mouse intestine[J]. Journal of the Science of Food and Agriculture, 2014, 94(2):256-264.

[15]
BÄCKHED F, MANCHESTER J K, SEMENKOVICH C F, et al. Mechanisms underlying the resistance to diet-induced obesity in germ-free mice[J]. Proceedings of the National Academy of Sciences of the United States of America, 2007, 104(3):979-984.

DOI PMID

[16]
CAGGIANIELLO G, KLEEREBEZEM M, SPANO G. Exopolysaccharides produced by lactic acid bacteria:from health-promoting benefits to stress tolerance mechanisms[J]. Applied Microbiology and Biotechnology, 2016, 100(9):3877-3886.

[17]
修磊. 乳酸菌胞外多糖的筛选、纯化及免疫活性研究[D]. 硕士学位论文. 呼和浩特: 内蒙古大学, 2017.

XIU L. Screening, purification and immunological activity of exopolysaccharides from lactic acid bacteria[D]. Master’s Thesis. Hohhot: Inner Mongolia University, 2017. (in Chinese)

[18]
LUPINDU A M. Epidemiology of Shiga toxin-producing Escherichia coli O157:H7 in Africa in review[J]. Southern African Journal of Infectious Diseases, 2018, 33(1):24-30.

[19]
李红丽, 闫巍文, 闫益波, 等. 牛源大肠杆菌对小鼠的致病性[J]. 中国兽医学报, 2023, 43(9):1845-1850.

LI H L, YAN W W, YAN Y B, et al. Experimental study on pathogenicity of bovine E.coli in mice[J]. Chinese Journal of Veterinary Science, 2023, 43(9):1845-1850. (in Chinese)

[20]
黎欢, 樊雨昕, 黄俊, 等. 布拉迪酵母与酵母衍生物对大肠杆菌K88攻毒仔猪生长性能、腹泻率和肠道健康的影响[J]. 中国畜牧杂志, 2024, 60(7):289-294.

LI H, FAN Y X, HUANG J, et al. The effects of Brady yeast and yeast derivatives on the growth performance,diarrhea rate,and intestinal health of piglets infected with Escherichia coli K88[J]. Chinese Journal of Animal Science, 2024, 60(7):289-294. (in Chinese)

[21]
李元元, 梁伟, 陈龙, 等. 牛源罗伊氏乳杆菌对产肠毒素大肠杆菌攻毒小鼠生长性能、免疫性能、抗氧化能力及肠道健康的影响[J]. 动物营养学报, 2024, 36(10):6768-6779.

DOI

LI Y Y, LIANG W, CHEN L, et al. Effects of Lactobacillus reuteri from cattle on growth performance,immune performance,antioxidant capacity and intestinal health of mice challenged with enterotoxigenic Escherichia coli[J]. Chinese Journal of Animal Nutrition, 2024, 36(10):6768-6779. (in Chinese)

[22]
王聪, 杨春涛, 屠焰, 等. 芦丁及其复合制剂对大肠杆菌攻毒诱导犊牛腹泻的改善及营养物质代谢和瘤胃发酵的影响[J]. 饲料工业, 2025, 46(2):94-103.

WANG C, YANG C T, TU Y, et al. Rutin and its compound preparation improve Escherichia coli-induced diarrhea in calves and their effects on nutrient metabolism and rumen fermentation[J]. Feed Industry, 2025, 46(2):94-103. (in Chinese)

[23]
曹海军, 陈李华. 肠屏障功能障碍的研究现状与展望[J]. 国际消化病杂志, 2007, 27(6):436-437,452.

CAO H J, CHEN L H. Research of intestinal mucosal barrier dysfunction[J]. International Journal of Digestive Diseases, 2007, 27(6):436-437,452. (in Chinese)

[24]
MARTÍNEZ C, GONZÉLEZ-CASTRO A, VICARIO M, et al. Cellular and molecular basis of intestinal barrier dysfunction in the irritable bowel syndrome[J]. Gut and Liver, 2012, 6(3):305-315.

DOI PMID

[25]
SLIFER Z M, HERNANDEZ L, PRIDGEN T A, et al. Larazotide acetate induces recovery of ischemia-injured porcine jejunum via repair of tight junctions[J]. PLoS One, 2021, 16(4):e0250165.

[26]
FARKAS A E, HILGARTH R S, CAPALDO C T, et al. HNF4α regulates claudin-7 protein expression during intestinal epithelial differentiation[J]. The American Journal of Pathology, 2015, 185(8):2206-2218.

[27]
FARKAS A E, CAPALDO C T, NUSRAT A. Regulation of epithelial proliferation by tight junction proteins[J]. Annals of the New York Academy of Sciences, 2012,1258:115-124.

[28]
郭洪冉. 粪菌移植缓解早期断奶羔羊营养性腹泻的作用机理研究[D]. 博士学位论文. 杨凌: 西北农林科技大学, 2024.

GUO H R. Study on the mechanism action of fecal microbiota transplantation in alleviating nutritional diarrhea in early weaned lambs[D]. Ph.D.Thesis. Yangling: Northwest A & F University, 2024. (in Chinese)

[29]
王义翠, 魏炳琦, 陈柳, 等. 黄芪多糖的生物学功能及其在畜禽生产中的应用研究进展[J]. 动物营养学报, 2024, 36(5):2830-2844.

DOI

WANG Y C, WEI B Q, CHEN L, et al. Advances in biological functions of Astragalus polysaccharide and its application in livestock and poultry production[J]. Chinese Journal of Animal Nutrition, 2024, 36(5):2830-2844. (in Chinese)

[30]
邓蓓蓓. 黄芪多糖对重症急性胰腺炎大鼠肠黏膜屏障损伤的保护作用[D]. 硕士学位论文. 长春: 吉林大学, 2017.

DENG B B. Protection of astragalus polysaccharin on intestinal barrier dysfunction in rats with severe acute pancreatitis[D]. Master’s Thesis. Changchun: Jilin University, 2017. (in Chinese)

[31]
陈俊, 薛晨曦, 刘梦林, 等. 黄芪多糖合生元对大肠杆菌性犊牛腹泻粪便评分和血清指标的影响[J]. 中国兽医报, 2024, 44(8):1807-1812.

CHEN J, XUE C X, LIU M L, et al. Effects of astragalus polysaccharide synbiotics onfecal scores and serum indices in calf diarrhea induced by Escherichia coli[J]. Chinese Journal of Veterinary Science, 2024, 44(8):1807-1812. (in Chinese)

[32]
JING X P, WANG W J, DEGEN A A, et al. Small intestinal morphology and sugar transporters expression when consuming diets of different energy levels:comparison between Tibetan and small-tailed Han sheep[J]. Animal, 2022, 16(3):100463.

[33]
KHANAL P, AXEL A M D, SAFAYI S N, et al. Prenatal over- and undernutrition differentially program small intestinal growth,angiogenesis,absorptive capacity,and endocrine function in sheep[J]. Physiological Reports, 2020, 8(12):e14498.

[34]
WANG H W, LIU J, ZHAO W P, et al. Effect of fluoride on small intestine morphology and serum cytokine contents in rats[J]. Biological Trace Element Research, 2019, 189(2):511-518.

[35]
HARHAJ N S, ANTONETTI D A. Regulation of tight junctions and loss of barrier function in pathophysiology[J]. The International Journal of Biochemistry & Cell Biology, 2004, 36(7):1206-1237.

[36]
TURNER J R. Intestinal mucosal barrier function in health and disease[J]. Nature Reviews Immunology, 2009, 9(11):799-809.

DOI PMID

[37]
MARCHIANDO A M, GRAHAM W V, TURNER J R. Epithelial barriers in homeostasis and disease[J]. Annual Review of Pathology, 2010,5:119-144.

[38]
TSUKITA S, FURUSE M, ITOH M. Multifunctional strands in tight junctions[J]. Nature Reviews Molecular Cell Biology, 2001, 2(4):285-293.

DOI PMID

[39]
TSCHEIK C, BLASIG I E, WINKLER L. Trends in drug delivery through tissue barriers containing tight junctions[J]. Tissue Barriers, 2013, 1(2):e24565.

[40]
DELUCO B, FOURIE K R, SIMKO O M, et al. Localization of claudin-3 and claudin-4 within the small intestine of newborn piglets[J]. Physiological Reports, 2021, 9(3):e14717.

[41]
PAN P F, BAI L L, HUA X L, et al. miR-155 regulates claudin1 expression in humans with intestinal mucosa dysfunction after brain injury[J]. Transplantation Proceedings, 2019, 51(10):3474-3480.

DOI PMID

[42]
鄂玉婷, 王静, 孙奕成, 等. miR-142-5p通过影响紧密连接蛋白CLDN1的表达介导旋毛虫Ts-DNaseⅡ-7的肠屏障损伤作用[J]. 中国兽医学报, 2024, 44(7):1458-1465,1482.

E Y T, WANG J, SUN Y C, et al. miR-142-5p promotes trichinella spiralis Ts-DNaseⅡ-7-mediated intestinal barrier damage by affecting the expression of tight junction protein CLDN1[J]. Chinese Journal of Veterinary Science, 2024, 44(7):1458-1465,1482. (in Chinese)

[43]
ZHOU Q Q, COSTINEAN S, CROCE C M, et al. MicroRNA 29 targets nuclear factor-κB-repressing factor and Claudin 1 to increase intestinal permeability[J]. Gastroenterology, 2015, 148(1):158-169.e8.

DOI PMID

[44]
ZONG Q F, HUANG Y J, WU L S, et al. Effects of porcine epidemic diarrhea virus infection on tight junction protein gene expression and morphology of the intestinal mucosa in pigs[J]. Polish Journal of Veterinary Sciences, 2019, 22(2):345-353.

DOI PMID

[45]
LI W, LIU L Y, DUANQING M, et al. CLDN1 silencing suppresses the proliferation and migration of airway smooth muscle cells by modulating MMP14[J]. Autoimmunity, 2024, 57(1):2331362.

[46]
杨文红, 丁红炜, 王魏, 等. 老年皮肤基底细胞癌患者miR-451、Tbx1表达及其与预后的相关性[J]. 中国老年学杂志, 2022, 42(15):3659-3663.

YANG W H, DING H W, WANG W, et al. The expression of miR-451 and Tbx1 in elderly patients with basal cell carcinoma of the skin and their correlation with prognosis[J]. Chinese Journal of Gerontology, 2022, 42(15):3659-3663. (in Chinese)

[47]
SAITO A C, HIGASHI T, FUKAZAWA Y, et al. Occludin and tricellulin facilitate formation of anastomosing tight-junction strand network to improve barrier function[J]. Molecular Biology of the Cell, 2021, 32(8):722-738.

DOI PMID

[48]
谭悦, 郑长清. 紧密连接蛋白occludin、ZO-1在溃疡性结肠炎中的表达及其临床意义[J]. 现代药物与临床, 2018, 33(7):1803-1808.

TAN Y, ZHENG C Q. Expression and clinical significance of tight junction protein occludin and ZO-1 in ulcerative colitis[J]. Drugs & Clinic, 2018, 33(7):1803-1808. (in Chinese)

[49]
刘泽伟, 于娇娇, 马晓蕊, 等. 肝郁脾虚证腹泻型IBS模型大鼠结肠紧密连接蛋白、AQP3及AQO4的变化[J]. 中国老年学杂志, 2023, 43(24):6044-6047.

LIU Z W, YU J J, MA X R, et al. Changes in colonic tight junction protein, AQP3,and AQO4 in diarrhea type IBS model rats with liver depression and spleen deficiency syndrome[J]. Chinese Journal of Gerontology, 2023, 43(24):6044-6047. (in Chinese)

[50]
SUZUKI T. Regulation of the intestinal barrier by nutrients:the role of tight junctions[J]. Animal Science Journal, 2020, 91(1):e13357.

[51]
FANNING A S, MA T Y, ANDERSON J M. Isolation and functional characterization of the actin binding region in the tight junction protein ZO-1[J]. FASEB Journal, 2002, 16(13):1835-1837.

DOI PMID

[52]
KARCZEWSKI J, TROOST F J, KONINGS I, et al. Regulation of human epithelial tight junction protein by Lactobacillus plantarum in vivo and protective effects on the epithelial barrier[J]. American Journal of Physiology:Gastrointestinal and Liver Physiology, 2010, 298(6):G851-G859.

[53]
AL-SADI R, NIGHOT P, NIGHOT M, et al. Lactobacillus acidophilus induces a strain-specific and Toll-like receptor 2-dependent enhancement of intestinal epithelial tight junction barrier and protection against intestinal inflammation[J]. The American Journal of Pathology, 2021, 191(5):872-884.

[54]
ARAKI A, KANAI T, ISHIKURA T, et al. MyD88-deficient mice develop severe intestinal inflammation in dextran sodium sulfate colitis[J]. Journal of Gastroenterology, 2005, 40(1):16-23.

PMID

[55]
XUE L Y, LI Z Q, XUE J B, et al. Lactobacillus acidophilus LA85 ameliorates cyclophosphamide-induced immunosuppression by modulating Notch and TLR4/NF-κB signal pathways and remodeling the gut microbiota[J]. Food & Function, 2022, 13(15):8107-8118.

[56]
DONG Y H, YANG Y Y, LIU J, et al. Inhibition of Aeromonas hydrophila-induced intestinal inflammation and mucosal barrier function damage in crucian carp by oral administration of Lactococcus lactis[J]. Fish & Shellfish Immunology, 2018,83:359-367.

[57]
REN S N, CHEN A, TIAN Y P, et al. Lactobacillus paracasei from koumiss ameliorates diarrhea in mice via tight junctions modulation[J]. Nutrition, 2022,98:111584.

[58]
WU H Q, XIE S, MIAO J F, et al. Lactobacillus reuteri maintains intestinal epithelial regeneration and repairs damaged intestinal mucosa[J]. Gut Microbes, 2020, 11(4):997-1014.

[59]
XU C L, YAN S Q, GUO Y, et al. Lactobacillus casei ATCC 393 alleviates enterotoxigenic Escherichia coli K88-induced intestinal barrier dysfunction via TLRs/mast cells pathway[J]. Life Sciences, 2020,244:117281.

[60]
LIU Q, YU Z M, TIAN F W, et al. Surface components and metabolites of probiotics for regulation of intestinal epithelial barrier[J]. Microbial Cell Factories, 2020, 19(1):23.

DOI PMID

文章导航

/