研究论文

叶酸和包被叶酸对围产期奶牛泌乳性能、瘤胃发酵和肝脏叶酸代谢的影响

  • 刘百峤 ,
  • 冯江 ,
  • 荆玉倩 ,
  • 孙楠 ,
  • 霍文婕 ,
  • 郭刚 ,
  • 刘强 , * ,
  • 王聪
展开
  • 山西农业大学动物科学学院,太谷 030801
* 刘 强,教授,博士生导师,E-mail:

刘百峤(2001—),男,内蒙古赤峰人,硕士研究生,从事反刍动物营养与饲料科学研究。E-mail:

Office editor: 田艳明

收稿日期: 2025-02-11

  网络出版日期: 2025-09-12

基金资助

国家自然科学基金项目(32272824)

中央引导地方科技发展资金项目(YDZJSX2022A039)

山西省现代农业牛产业技术体系建设项目(2025CYJSTX13)

Effects of Folic Acid and Coated Folic Acid on Lactation Performance, Rumen Fermentation and Hepatic Folic Acid Metabolism in Transition Dairy Cows

  • LIU Baiqiao ,
  • FENG Jiang ,
  • JING Yuqian ,
  • SUN Nan ,
  • HUO Wenjie ,
  • GUO Gang ,
  • LIU Qiang , * ,
  • WANG Cong
Expand
  • College of Animal Science, Shanxi Agricultural University, Taigu 030801, China
* professor, E-mail:

Received date: 2025-02-11

  Online published: 2025-09-12

摘要

本试验旨在研究叶酸(FA)和包被叶酸(CFA)对围产期奶牛泌乳性能、瘤胃发酵和肝脏FA代谢的影响。选取胎次[(2.03±0.18)胎]、体重[(676.0±33.6) kg]、上一泌乳期产奶量[(10 155.0±256.2) kg]和预产期相近的围产期奶牛80头,依据随机区组设计随机分为4组,每组20头牛。对照组(CON组)饲喂基础饲粮,试验组分别在基础饲粮的基础上添加6.75 g/d CFA(含有2%FA,CFA组)、135 mg/d FA(LFA组)和270 mg/d FA(HFA组)。奶牛产前35 d进入试验,产后0~21 d为样品采集期。结果表明:1)CFA组产奶量、4%乳脂校正乳产量、乳蛋白产量以及饲料效率显著高于CON组、LFA组和HFA组(P<0.05),乳脂产量显著高于CON组和LFA组(P<0.05)。2)与CON组相比,CFA组、LFA组和HFA组瘤胃FA含量、超氧化物歧化酶(SOD)和谷胱甘肽过氧化物酶(GSH-Px)活性以及总挥发性脂肪酸(TVFA)含量显著提高(P<0.05),瘤胃丙二醛(MDA)含量显著降低(P<0.05)。同时,与CFA组相比,LFA组和HFA组瘤胃SOD和GSH-Px活性以及TVFA含量显著提高(P<0.05),瘤胃MDA含量和乙酸/丙酸值显著降低(P<0.05)。3)各组间瘤胃菌群α多样性指数无显著差异(P>0.05)。在门水平上,LFA组瘤胃拟杆菌门相对丰度显著高于其他组(P<0.05),瘤胃厚壁菌门相对丰度显著低于其他组(P<0.05)。在属水平上,LFA组瘤胃未培养瘤胃细菌属和普雷沃氏菌科UCG-001相对丰度显著高于其他组(P<0.05),CFA组、LFA组和HFA组瘤胃理研菌科RC9肠道群相对丰度显著高于CON组(P<0.05),CFA组瘤胃瘤胃球菌科UCG-014相对丰度显著高于其他组(P<0.05)。4)CFA组肝脏FA含量以及二氢叶酸还原酶(DHFR)和5,10-亚甲基四氢叶酸还原酶(MTHFR)mRNA相对表达量显著高于其他组(P<0.05),肝脏同型半胱氨酸含量显著低于其他组(P<0.05)。综上所述,补充CFA提高了奶牛泌乳性能,与瘤胃发酵和肝脏FA代谢的改善有关;补充CFA促进了瘤胃纤维分解菌的生长,补充135 mg/d FA促进了瘤胃淀粉分解菌的生长。

本文引用格式

刘百峤 , 冯江 , 荆玉倩 , 孙楠 , 霍文婕 , 郭刚 , 刘强 , 王聪 . 叶酸和包被叶酸对围产期奶牛泌乳性能、瘤胃发酵和肝脏叶酸代谢的影响[J]. 动物营养学报, 2025 , 37(9) : 5998 -6008 . DOI: 10.12418/CJAN2025.488

Abstract

This experiment was conducted to investigate the effects of folic acid (FA) and coated folic acid (CFA) on lactation performance, rumen fermentation and hepatic FA metabolism in transition dairy cows. Eighty transition dairy cows with similar parity [(2.03±0.18) parities], body weight [(676.0±33.6) kg], milk production in the previous lactation period [(10 155.0±256.2) kg] and expected delivery date were assigned in a randomized block design into 4 groups with 20 cows in each group. Cows in the control group (CON group) were fed a basal diet, while those in the experimental groups were fed the basal diets supplemented with 6.75 g/d CFA (contained 2% FA, CFA group), 135 mg/d FA (LFA group) and 270 mg/d FA (HFA group), respectively. The experiment began from 35 days before calving, and the data and sample collection period was from 0 to 21 days after calving. The results showed as follows: 1) the milk yield, 4% fat-corrected milk yield, milk protein yield and feed efficiency in CFA group were significantly higher than those in CON group, LFA group and HFA group (P<0.05), and the milk fat yield was significantly higher than that in CON group and LFA group (P<0.05). 2) Compared with CON group, the rumen FA content, the activities of superoxide dismutase (SOD) and glutathione peroxidase (GSH-Px), and the total volatile fatty acid (TVFA) content in CFA group, LFA group and HFA group were significantly increased (P<0.05), while the rumen malondialdehyde (MDA) content was significantly decreased (P<0.05). Meanwhile, compared with CFA group, the activities of rumen SOD and GSH-Px and the TVFA content in LFA group and HFA group were significantly increased (P<0.05), while the rumen MDA content and the acetate to propionate ratio were significantly decreased (P<0.05). 3) There was no significant difference in the rumen microbiota α diversity indices among the groups (P>0.05). At the phylum level, the rumen Bacteroides relative abundance in LFA group was significantly higher than that in the other groups (P<0.05), while the rumen Firmicutes relative abundance was significantly lower than that in the other groups (P<0.05). At the genus level, the relative abundances of rumen uncultured_rumen_bacterium and Prevotellaceae_UCG-001 in LFA group was significantly higher than those in the other groups (P<0.05), the rumen Rikenellaceae_RC9_gut_group relative abundance in CFA group, LFA group and HFA group was significantly higher than that in CON group (P<0.05), and the rumen Ruminococcaceae_UCG-014 relative abundance in CFA group was significantly higher than that in the other groups (P<0.05). 4) The hepatic FA content and the mRNA relative expression levels of dihydrofolate reductase (DHFR) and 5,10-methylenetetrahydrofolate reductase (MTHFR) in CFA group were significantly higher than those in the other groups (P<0.05), while the hepatic homocysteine content was significantly lower than that in the other groups (P<0.05). In conclusion, the supplementation of CFA can enhance the lactation performance in dairy cows, which is related to the improvement of rumen fermentation and liver FA metabolism; the supplementation of CFA can stimulate the growth of rumen cellulolytic bacteria, and the supplementation of 135 mg/d FA can stimulate the growth of rumen amylolytic bacteria.

在生产实践中,补充叶酸(folic acid,FA)是提高围产期奶牛泌乳性能和降低肝脏脂肪沉积的有效营养调控方式[1-2]。研究发现,产奶量在32 kg/d以上的奶牛都需要补充FA,而且在奶牛整个泌乳期中,产后0~55 d血液中FA水平较低[2-3]。因此,围产期高产奶牛补充FA至关重要。FA缺乏将导致机体代谢效率降低,加剧围产期能量负平衡对奶牛的负面影响[2]。研究表明,补充FA后,奶牛瘤胃中碳水化合物降解菌数量以及纤维酶和淀粉酶活性提高,总挥发性脂肪酸(total volatile fatty acid,TVFA)产量增加[1]。瘤胃挥发性脂肪酸(volatile fatty acid,VFA)不仅是奶牛乳合成的能量和前体物来源,还可通过影响激素的分泌调控营养物质的重新分配,使更多的养分分配到乳腺参与乳合成代谢[4]。在以肌肉注射方式补充FA的研究中,约80%的结果显示对奶牛的产奶量无显著影响[5]。因此,FA对瘤胃菌群和VFA产生的调控可能是奶牛产奶量提高的主要原因[5]
在一碳循环中,FA是传递一碳基团的载体,不仅参与瘤胃微生物DNA、RNA和蛋白质的合成,而且具有抗氧化的营养特性[6]。早期的体外试验发现,FA调控瘤胃微生物甲基转移,是黄色瘤胃球菌的必需生长因子[7]。瘤胃微生物能够分泌超氧化物歧化酶(SOD)和谷胱甘肽过氧化物酶(GSH-Px),清除代谢过程中产生的自由基和过氧化氢,维持瘤胃上皮和内环境的健康与稳定[8]。饲粮中补充FA显著提高了妊娠母羊血液中SOD和GSH-Px活性[9]。因此,补充FA可能改善了奶牛瘤胃抗氧化状态,这也是瘤胃TVFA产量增加的原因。
目前,饲粮中添加FA对奶牛瘤胃抗氧化状态和菌群影响的研究还未见报道。在反刍动物生产中,为了避免瘤胃微生物对FA的过度降解与破坏,推荐使用包被叶酸(coated folic acid,CFA)添加剂[3,10-11]。然而,包被处理可能会影响FA对瘤胃发酵的调控,有必要开展FA和CFA对奶牛瘤胃代谢影响的比较研究。因此,本试验旨在研究饲粮中添加FA和CFA对围产期奶牛泌乳性能、瘤胃发酵和肝脏FA代谢的影响,以期明确FA和CFA对奶牛泌乳性能及瘤胃与组织代谢的调控特性,为后续研究和生产提供参考。

1 材料与方法

1.1 试验材料

试验用FA和CFA均为市售产品,其中FA为饲料级,纯度98%;CFA中含有2% FA、48%二氧化硅、17%棕榈脂肪、17%氢化椰子油和16%硬脂酸钙。选择4头26月龄、体重为(649.0±29.7) kg以及装有永久性瘤胃和十二指肠瘘管的荷斯坦公牛,采用半体内尼龙袋法[12]测定CFA中FA在瘤胃和小肠的释放率,分别为25.3%和68.4%。

1.2 试验设计

本试验遵照山西农业大学实验动物伦理委员会的规定(伦理批准编号:SXAU-EAW-2023CO.MC.011029225),在忻州银山湖奶牛养殖有限公司开展。选取胎次[(2.03±0.18)胎]、体重[(676.0±33.6) kg]、上一泌乳期产奶量[(10 155.0±256.2) kg]和预产期相近的围产期奶牛80头,依据随机区组设计随机分为4组,每组20头牛。对照组(CON组)饲喂基础饲粮,试验组分别在基础饲粮的基础上添加6.75 g/d CFA(CFA组)、135 mg/d FA(LFA组)和270 mg/d FA(HFA组)。奶牛产前35 d进入试验,产后0~21 d为样品采集期。FA和CFA添加水平依据前期试验结果[1]确定,奶牛饲粮依据NASEM(2021)[13]配制(基础饲粮组成及营养水平见表1),其中饲粮FA含量采用高效液相色谱法测定,饲粮其他营养成分含量依据AOAC(2006)[14]的方法测定,饲粮泌乳净能依据NASEM(2021)[13]计算。
表1 基础饲粮组成及营养水平(干物质基础)

Table 1 Composition and nutrient levels of basal diets (DM basis) %

项目
Items
产前
Prepartum
产后
Postpartum
原料Ingredients
玉米秸秆Corn stalk 36.00 26.00
苜蓿干草Alfalfa hay 13.00
燕麦草Oat hay 24.00 11.00
玉米Corn 15.10 24.00
麸皮Wheat bran 6.00 6.00
豆粕Soybean meal 10.00 10.60
菜籽粕Rapeseed meal 2.40 2.50
棉籽粕Cottonseed meal 4.20 5.00
碳酸氢钙Ca(HCO3)2 0.70 0.60
食盐NaCl 0.60 0.50
磷酸氢钙CaHPO4 0.40 0.30
预混料Premix1) 0.60 0.50
合计Total 100.00 100.00
营养水平Nutrient levels2)
有机物OM 94.52 94.48
粗蛋白质CP 15.96 17.17
粗脂肪EE 3.16 3.18
中性洗涤纤维NDF 35.29 31.13
酸性洗涤纤维ADF 21.47 19.35
钙Ca 0.70 0.73
磷P 0.47 0.48
叶酸FA/(mg/kg) 0.31 0.33
泌乳净能NEL/(MJ/kg) 6.41 6.63

1)每千克预混料含有 One kilogram of the premix contained the following:Fe 20 000 mg,Cu 1 600 mg,Mn 8 000 mg,Zn 7 500 mg,I 120 mg,Se 60 mg,Co 20 mg,VA 820 000 IU,VD 300 000 IU,VE 10 000 IU。

2)泌乳净能为计算值,其他营养水平为实测值。NEL was a calculated value, while the other nutrient levels were measured values.

1.3 饲养管理

试验牛饲养于同一圈舍,不同组之间用铁栏杆隔开,每天07:00和15:00饲喂,产后06:00、14:00和22:00挤奶,自由采食和饮水。每天晨饲前,先将FA或CFA与约500 g饲粮混匀后饲喂。

1.4 样品采集及指标测定

1.4.1 采食量和体重

称量并记录每头牛产后2 h和第21天早晨挤奶后空腹体重,计算产后0~21 d体重变化(BWC)。奶牛产后4~21 d,记录每组牛每天的喂料量和剩料量,计算干物质采食量(DMI)。

1.4.2 奶样品采集及指标测定

奶牛产后4~21 d,记录每头牛每天的产奶量,并计算饲料效率(FE);采集每头牛产后第7、14和21天3次挤奶的奶样,分别以牛为单位按4∶3∶3的比例制成混合样,采用红外乳品分析仪(MK-120,Foss,丹麦)测定乳脂、乳蛋白和乳糖含量。

1.4.3 瘤胃液样品采集及指标测定

奶牛产后第21天,晨饲后3 h,采用胃管式采样器采集每头牛瘤胃液样品约200 mL。先用便携式pH计[BPH-7100,贝尔分析仪器(大连)有限公司]测定瘤胃液pH,然后将瘤胃液用4层纱布过滤后保存,其中用于菌群测定的样品保存于-80 ℃,其余保存于-20 ℃。瘤胃液样品解冻后,在4 ℃条件下,12 000×g离心10 min,取上清液用于测定VFA和抗氧化指标,其中VFA采用内标法,利用气相色谱仪[安捷伦科技(中国)有限公司]测定[14];FA含量、SOD和GSH-Px活性以及丙二醛(MDA)含量依据试剂盒(上海笃玛生物科技有限公司)说明书,采用酶标仪(DR200-Bn,山东博科再生医学有限公司)测定。瘤胃液细菌测序采用双末端测序的方法,构建小段文库进行,测序工作委托北京百迈客生物科技有限公司完成。

1.4.4 肝脏样品采集及指标测定

奶牛产后第21天,早晨挤奶后和饲喂前,每组随机选择5头奶牛,用穿刺法采集肝脏组织样品约1.0 g,液氮速冻后,-80 ℃贮存。依据试剂盒说明书(上海笃玛生物科技有限公司),采用酶标仪(DR200-Bn,山东博科再生医学有限公司)测定肝脏中FA、同型半胱氨酸(Hcy)、蛋氨酸和肌酸含量。采用荧光定量PCR法测定肝脏中二氢叶酸还原酶(DHFR)、5,10-亚甲基四氢叶酸还原酶(MTHFR)、蛋氨酸合成酶(MS)和甘氨酸N-甲基转移酶(GNMT)mRNA相对表达量。肝脏组织DNA提取、cDNA合成和PCR反应体系构建均依据试剂盒[宝日医生物技术(北京)有限公司]说明书进行。待测基因引物委托深圳华大基因股份有限公司合成,以β-肌动蛋白(β-actin)作为内参基因,PCR引物信息见表2
表2 PCR引物信息

Table 2 PCR primer information

引物名称
Primer names
引物序列
Primer sequences (5'-3')
登录号
Accession number
产物大小
Product size/bp
二氢叶酸还原酶
DHFR
F:AGCTCCCTTTGGAGGTTC
R:TGGGTAGGAAGACCTGGTT
NM_101121421 104
5,10-亚甲基四氢叶酸还原酶
MTHFR
F:GGGAGCTCATTTTCTTGCCA
R:AGTCTAACATGGCCTGGCTT
NM_001077883.1 147
蛋氨酸合成酶
MS
F:CAAATCCATAAGGAGTACCTCCTAGC
R:GGGCAATAGAAGTGCTGCTGA
DQ084519 76
甘氨酸N-甲基转移酶
GNMT
F:TGACTCCACCTACGAAGACC
R:TCTCTACTTGCTCCACCACG
NM_182651.2 128
β-肌动蛋白
β-actin
F:ACTTGCGCAGAAAACGAGAT
R:GCACCAGCCGATCTACAAAAG
NM_205518.1 121

1.5 数据处理与统计分析

奶牛DMI、产奶量、乳成分产量和含量以及FE等数据,采用SAS 9.3软件中的混合模型进行方差分析,分析时以试验处理和采样时间为固定效应,以分区和奶牛为随机效应。本试验中,采样时间效应显著,但试验处理与采样时间之间的互作效应不显著,因此结果中未列出采样时间效应的P值以及试验处理与采样时间之间互作效应的P值;其他数据处理采用上述模型,但去除了试验处理与时间效应之间的互作分析,方差分析差异显著者,采用Duncan氏法进行组间多重比较。结果数据采用平均值和均值标准误(SEM)表示,以P<0.05为差异显著。

2 结果与分析

2.1 FA和CFA对奶牛泌乳性能的影响

表3可知,与CON组相比,CFA组、LFA组和HFA组奶牛BWC、DMI、乳糖产量、乳脂率、乳蛋白率和乳糖率均无显著差异(P>0.05)。CFA组产奶量、4%乳脂校正乳(FCM)产量、乳蛋白产量以及FE显著高于CON组、LFA组和HFA组(P<0.05),乳脂产量显著高于CON组和LFA组(P<0.05)。
表3 FA和CFA对奶牛泌乳性能的影响

Table 3 Effects of FA and CFA on lactation performance in dairy cows

项目
Items
组别Groups 均值标准误
SEM
P
P-value
CON CFA LFA HFA
体重变化BWC/kg -25.7 -23.5 -23.1 -25.0 1.032 0.146
干物质采食量DMI/(kg/d) 25.6 25.1 25.2 25.8 0.947 0.314
产奶量Milk yield/(kg/d) 39.1b 41.2a 38.9b 39.4b 0.676 0.027
4%乳脂校正乳产量4% FCM yield/(kg/d) 40.7b 43.3a 40.7b 41.4b 0.511 0.033
乳脂产量Milk fat yield/(kg/d) 1.66b 1.78a 1.67b 1.72ab 0.031 0.015
乳蛋白产量Milk protein yield/(kg/d) 1.33b 1.39a 1.31b 1.35b 0.041 0.042
乳糖产量Lactose yield/(kg/d) 2.13 2.23 2.11 2.14 0.068 0.137
乳脂率Milk fat ratio/% 4.27 4.34 4.31 4.34 0.027 0.111
乳蛋白率Milk protein ratio/% 3.40 3.38 3.36 3.44 0.035 0.226
乳糖率Lactose ratio/% 5.46 5.41 5.42 5.44 0.054 0.407
饲料效率FE 1.53b 1.64a 1.54b 1.53b 0.023 0.035

同行数据肩标相同字母或无字母表示差异不显著(P>0.05),不同字母表示差异显著(P<0.05)。下表同。

In the same row, values with no letter or the same letter superscripts mean no significant difference (P>0.05), while with different letter superscripts mean significant difference (P<0.05). The same as below.

2.2 FA和CFA对奶牛瘤胃抗氧化指标和发酵参数的影响

表4可知,与CON组相比,CFA组、LFA组和HFA组奶牛瘤胃FA含量以及SOD和GSH-Px活性显著提高(P<0.05),瘤胃MDA含量显著降低(P<0.05)。同时,CFA组瘤胃FA含量与LFA组和HFA组相比无显著差异(P>0.05),瘤胃SOD和GSH-Px活性显著低于LFA组和HFA组(P<0.05),瘤胃MDA含量显著高于LFA组和HFA组(P<0.05)。
表4 FA和CFA对奶牛瘤胃抗氧化指标和发酵参数的影响

Table 4 Effects of FA and CFA on rumen antioxidant indices and fermentation parameters in dairy cows

项目
Items
组别Groups 均值标准误
SEM
P
P-value
CON CFA LFA HFA
叶酸FA/(μmol/mL) 9.52b 12.60a 13.30a 13.10a 1.103 0.019
超氧化物歧化酶SOD/(U/mL) 18.3c 23.8b 28.1a 27.6a 2.471 0.032
谷胱甘肽过氧化物酶GSH-Px/(U/mL) 69.3c 88.4b 109.0a 106.0a 4.368 0.004
丙二醛MDA/(nmol/L) 4.22a 2.97b 2.41c 2.34c 0.332 0.026
pH 6.43 6.37 6.33 6.26 0.165 0.311
总挥发性脂肪酸TVFA/(mmol/L) 109c 118b 131a 126a 2.314 0.026
乙酸Acetate/% 62.60 63.50 63.00 63.00 1.173 0.165
丙酸Propionate/% 22.40 21.50 22.90 22.20 1.211 0.214
丁酸Butyrate/% 9.51 9.50 8.82 8.63 0.732 0.433
戊酸Valerate/% 2.45 2.45 2.30 2.50 0.146 0.216
异丁酸Isobutyrate/% 1.30 1.16 1.22 1.10 0.031 0.107
异戊酸Isovalerate/% 1.59 1.73 1.57 1.49 0.026 0.114
乙酸/丙酸Acetate/propionate 2.79b 2.97a 2.75b 2.83b 0.051 0.011
与CON组相比,CFA组、LFA组和HFA组瘤胃pH以及乙酸、丙酸、丁酸、戊酸、异丁酸和异戊酸摩尔比例均无显著差异(P>0.05),瘤胃TVFA含量显著提高(P<0.05)。同时,LFA组和HFA组瘤胃TVFA含量显著高于CFA组(P<0.05),CFA组瘤胃乙酸/丙酸值显著高于CON组、LFA组和HFA组(P<0.05)。

2.3 FA和CFA对奶牛瘤胃菌群的影响

表5可知,各组奶牛瘤胃菌群测序平均覆盖率为99.7%,表明测序结果能覆盖绝大多数菌群。同时,各组间瘤胃菌群Chao1、ACE、Shannon和Simpson指数均无显著差异(P>0.05)。
表5 FA和CFA对奶牛瘤胃菌群α多样性的影响

Table 5 Effects of FA and CFA on α diversity of rumen microbiota in dairy cows

项目
Items
组别Groups 均值标准误
SEM
P
P-value
CON CFA LFA HFA
Chao1指数Chao1 index 1 366 1 442 1 389 1 505 55.620 0.136
ACE指数ACE index 1 351 1 402 1 377 1 478 42.760 0.138
Shannon指数Shannon index 7.53 7.53 7.14 7.75 0.534 0.826
Simpson指数Simpson index 0.975 0.979 0.973 0.976 0.045 0.554
覆盖度Coverage 0.997 0.996 0.997 0.996 <0.001 0.461
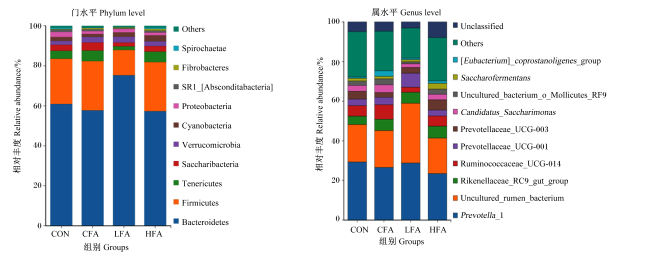
图1所示,在门水平上,拟杆菌门(Bacteroidetes)和厚壁菌门(Firmicutes)为奶牛瘤胃优势菌门,CON组、CFA组、LFA组和HFA组拟杆菌门和厚壁菌门相对丰度分别为83.6%、80.4%、87.9%和81.9%;在属水平上,普雷沃氏菌属1(Prevotella_1)和未培养瘤胃细菌属(uncultured_rumen_bacterium)为瘤胃优势菌属,CON组、CFA组、LFA组和HFA组普雷沃氏菌属1和未培养瘤胃细菌属相对丰度分别为48.2%、45.2%、59.0%和41.4%。
图1 FA和CFA对奶牛瘤胃菌群组成的影响

Bacteroidetes:拟杆菌门;Firmicutes:厚壁菌门;Tenericutes:软壁菌门;Saccharibacteria:糖杆菌门;Verrucomicrobia:疣微菌门;Cyanobacteria:蓝藻菌门;Proteobacteria:变形菌门;SR1_[Absconditabacteria]:隐秘菌门;Fibrobacteres:纤维杆菌门;Spirochaetae:螺旋体门;Others:其他;Prevotella_1:普雷沃氏菌属1;Uncultured_rumen_bacterium:未培养瘤胃细菌属;Rikenellaceae_RC9_gut_group:理研菌科RC9肠道群;Ruminococcaceae_UCG-014:瘤胃球菌科UCG-014;Prevotellaceae_UCG-001:普雷沃氏菌科UCG-001;Prevotellaceae_UCG-003:普雷沃氏菌科UCG-003;Uncultured_bacterium_o_Mollicutes_RF9:未培养柔膜菌纲RF9;Saccharofermentans:糖发酵菌属;[Eubacterium]_coprostanoligenes_group:产粪甾醇真杆菌群;Unclassified:未分类。

Fig.1 Effects of FA and CFA on rumen microbiota composition in dairy cows

表6可知,在门水平上,LFA组瘤胃拟杆菌门相对丰度显著高于CON组、CFA组和HFA组(P<0.05),瘤胃厚壁菌门相对丰度显著低于CON组、CFA组和HFA组(P<0.05);在属水平上,HFA组瘤胃普雷沃氏菌属1相对丰度显著低于CON组、CFA组和LFA组(P<0.05),LFA组瘤胃未培养瘤胃细菌属和普雷沃氏菌科UCG-001(Prevotellaceae_UCG-001)相对丰度显著高于CON组、CFA组和HFA组(P<0.05),CFA组、LFA组和HFA组瘤胃理研菌科RC9肠道群(Rikenellaceae_RC9_gut_group)相对丰度显著高于CON组(P<0.05),CFA组瘤胃瘤胃球菌科UCG-014(Ruminococcaceae_UCG-014)相对丰度显著高于CON组、LFA组和HFA组(P<0.05)。
表6 FA和CFA对奶牛瘤胃菌群在门和属水平上相对丰度的影响

Table 6 Effects of FA and CFA on relative abundances of rumen microbiota at phylum and genus levels in dairy cows %

项目
Items
组别Groups 均值标准误
SEM
P
P-value
CON CFA LFA HFA
拟杆菌门Bacteroidetes 60.90b 55.70b 75.30a 57.30b 3.562 0.042
厚壁菌门Firmicutes 22.70a 24.70a 12.60b 24.60a 1.814 0.033
普雷沃氏菌属1 Prevotella_1 29.30a 26.60a 28.80a 23.50b 1.162 0.043
未培养瘤胃细菌Uncultured_rumen_bacterium 18.90b 18.60b 30.20a 17.90b 1.321 0.013
理研菌科RC9肠道群Rikenellaceae_RC9_gut_group 4.15b 5.69a 5.53a 5.98a 0.786 0.024
瘤胃球菌科UCG-014 Ruminococcaceae_UCG-014 5.36b 7.26a 3.54b 5.18b 1.086 0.033
普雷沃氏菌科UCG-001 Prevotellaceae_UCG-001 3.26b 3.80b 7.05a 2.94b 0.872 0.047

2.4 FA和CFA对奶牛肝脏FA代谢物和关键酶基因表达的影响

表7可见,CFA组奶牛肝脏FA含量以及DHFRMTHFR mRNA相对表达量显著高于CON组、LFA组和HFA组(P<0.05),肝脏Hcy含量显著低于CON组、LFA组和HFA组(P<0.05)。与CON组相比,CFA组、LFA组和HFA组肝脏蛋氨酸和肌酸含量以及MSGNMT mRNA相对表达量无显著差异(P>0.05)。
表7 FA和CFA对奶牛肝脏FA代谢物和关键酶基因表达的影响

Table 7 Effects of FA and CFA on hepatic FA metabolites and key enzyme gene expression in dairy cows

项目
Items
组别Groups 均值标准误
SEM
P
P-value
CON CFA LFA HFA
叶酸FA/(μg/g) 8.02b 11.00a 8.17b 8.52b 0.764 0.025
同型半胱氨酸Hcy/(mmol/g) 4.03a 3.54b 3.89a 4.01a 0.097 0.013
蛋氨酸Methionine/(μmol/g prot) 50.6 51.6 52.2 52.8 3.458 0.654
肌酸Creatine/(μg/g) 138 141 145 139 5.324 0.098
二氢叶酸还原酶DHFR 1.09b 1.54a 1.12b 1.07b 0.042 0.042
5,10-亚甲基四氢叶酸还原酶MTHFR 1.01b 1.49a 1.12b 1.13b 0.057 0.033
蛋氨酸合成酶MS 1.02 1.15 1.13 1.09 0.041 0.113
甘氨酸N-甲基转移酶GNMT 1.07 1.14 1.16 1.12 0.057 0.234

3 讨论

3.1 FA和CFA对奶牛泌乳性能的影响

本试验中,围产期补充CFA对奶牛产后DMI和BWC无显著影响,因此显著提高的4% FCM、乳蛋白和乳脂产量以及FE,归因于瘤胃微生物和奶牛机体FA供应的改善。CFA组瘤胃TVFA和肝脏FA含量显著高于CON组,表明补充CFA增加了奶牛瘤胃和组织的FA供应。瘤胃VFA是奶牛乳合成的能量和前体物来源,FA和FA受体α是乳蛋白合成的必需因子[13,15]。前期试验同样发现,围产期补充CFA提高了奶牛泌乳性能[1]
比较不同添加方式的FA对奶牛泌乳性能的影响,本试验发现,补充FA对奶牛泌乳性能和FE无显著影响,即LFA组和HFA组产奶量、4% FCM和乳蛋白产量以及FE均显著低于CFA组,这与LFA组和HFA组瘤胃TVFA含量显著高于CFA组,以及瘤胃乙酸/丙酸值显著低于CFA组的结果不一致。结合LFA组和HFA组奶牛肝脏中FA含量和DHFRMTHFR mRNA相对表达量显著低于CFA组,且与CON组无显著差异的结果可以推断,本试验上述结果的不一致归因于添加135或270 mg/d FA不能改善奶牛FA供应,发挥不了FA对乳合成代谢的调控。据报道,奶牛饲粮中添加的FA约97%在瘤胃中被微生物利用、降解或破坏,2.5%~4.5%能到达静脉血液中,而血液中的FA只有约28%能被肝脏组织吸收[10-11]。Preynat等[16]研究发现,肌肉注射补充FA和维生素B12改善了泌乳早期奶牛蛋氨酸利用率,显著提高了产奶量和乳成分产量,表明FA对奶牛机体代谢的调控也是其提高产奶量的重要原因。与本试验结果类似,Lopreiato等[17]报道,围产期奶牛饲粮中添加50 mg/d FA对产后30 d泌乳性能和肝脏FA代谢关键酶基因表达无显著影响。然而,较高水平FA添加的试验发现,产前3周开始在饲粮中添加2.6 g/d FA显著提高了奶牛泌乳早期的产奶量和乳蛋白产量[18];泌乳早期饲粮中添加1.8或3.6 g/d FA显著提高了奶牛乳脂和乳蛋白产量[19]。因此,同时改善瘤胃微生物和奶牛的FA供应是CFA组奶牛泌乳性能和FE提高的原因,而且使用CFA添加剂能减少FA在奶牛饲粮中的添加水平。

3.2 FA和CFA对奶牛瘤胃抗氧化指标和发酵参数的影响

奶牛瘤胃液中的FA来源于饲粮供给和微生物自身合成。本试验中,补充CFA或FA显著提高了奶牛瘤胃液中FA含量,表明微生物FA供应得到改善,这与FA的外源添加以及瘤胃微生物数量增加而导致的合成量增加有关,也与CFA或FA添加组瘤胃TVFA含量显著高于CON组的结果一致。瘤胃微生物能够分泌SOD和GSH-Px,清除代谢过程中产生的自由基和过氧化氢,维持瘤胃上皮和内环境的健康与稳定[8]。本试验中,补充CFA或FA后,瘤胃SOD和GSH-Px活性显著提高,瘤胃MDA含量显著降低,表明微生物抗氧化能力提高,瘤胃内环境改善,这与FA抗氧化的营养生理功能以及对一碳代谢的调控有关。研究证实,5-甲基四氢叶酸具有抗氧化功能[20]。GSH-Px通过催化谷胱甘肽(GSH)和过氧化物反应生成水,清除细胞内自由基[21]。在一碳循环中,Hcy是GSH合成的前体,FA通过调控Hcy的代谢影响细胞中GSH的含量[6]。已有报道,补充FA后,大鼠肝细胞中GSH含量提高[21],母羊血清SOD和GSH-Px活性提高,血清MDA含量降低[9];添加5-甲基四氢叶酸后,人血管内皮细胞活性氧自由基含量降低[22]
本试验中,补充CFA或FA后,瘤胃TVFA含量显著提高,归因于瘤胃碳水化合物降解菌数量的增加,这与前期奶牛饲粮中补充CFA的试验结果[1]一致。FA参与微生物DNA和蛋白质的合成,是瘤胃微生物生长的必需因子[6-7]。瘤胃微生物分泌多糖分解酶,将饲粮中的碳水化合物降解为VFA。前期试验发现,补充CFA后,奶牛瘤胃液中细菌、真菌和原虫数量增加,纤维酶和淀粉酶活性提高[1]
比较CFA与FA对奶牛瘤胃代谢的影响发现,CFA组瘤胃FA含量与LFA组和HFA组相比无显著差异。然而,Girard等[19]试验发现,饲粮中添加FA显著提高了奶牛瘤胃FA含量,且高水平FA添加组瘤胃FA含量显著高于低水平FA添加组。试验结果的不同可能与测定FA含量时瘤胃液的前处理方法不同有关。本试验中,瘤胃液样品经离心后用于测定FA含量,Girard等[19]的试验中首先通过酸化处理将瘤胃液中微生物细胞壁溶解,然后离心后测定FA含量,试验结果包括了微生物细胞内的FA。据报道,瘤胃中的B族维生素主要存在于微生物细胞内[10]。因此,本试验瘤胃FA含量结果不能准确反映微生物的FA营养状态。本试验中,CFA组瘤胃SOD和GSH-Px活性以及TVFA含量显著低于LFA组和HFA组,表明CFA在瘤胃中释放的FA(34.2 mg/d)不能满足微生物生长和养分降解的需求。

3.3 FA和CFA对奶牛瘤胃菌群的影响

本试验结果显示,CFA组、LFA组和HFA组奶牛瘤胃菌群α多样性指数与CON组相比无显著差异,表明补充CFA或FA对奶牛瘤胃菌群丰富度和多样性无显著影响。本试验中,各组奶牛瘤胃优势菌门为厚壁菌门和拟杆菌门,优势菌属为普雷沃氏菌属1、未培养瘤胃细菌属和理研菌科RC9肠道群,与Sun等[23]的结果基本一致。Sun等[23]对334头奶牛瘤胃菌群测序的结果显示,厚壁菌门和拟杆菌门为优势菌门,在属水平上排前10的菌中,普雷沃氏菌属1相对丰度最高,其次为理研菌科RC9肠道群。瘤胃中降解碳水化合物的酶约43.8%来源于拟杆菌门,23.4%来源于厚壁菌门,其中拟杆菌门微生物主要负责将非纤维类物质降解为丙酸,厚壁菌门微生物主要负责将纤维类物质的降解为乙酸[24]。普雷沃氏菌属1、未培养瘤胃细菌属、理研菌科RC9肠道群和普雷沃氏菌科UCG-001属于拟杆菌门,其中未培养瘤胃细菌属被归为普雷沃氏菌属[24-25]
本试验中,LFA组瘤胃拟杆菌门相对丰度较高、厚壁菌门相对丰度较低,这与其未培养瘤胃细菌属和普雷沃氏菌科UCG-001相对丰度显著高于CON组、CFA组和HFA组的结果一致,表明补充135 mg/d FA改变了瘤胃菌群组成,即负责淀粉降解和丙酸生成的微生物数量增加。瘤胃球菌科UCG-014属于厚壁菌门,对降解纤维类物质起重要作用[24]。CFA组瘤胃瘤胃球菌科UCG-014相对丰度显著高于CON组、LFA组和HFA组,表明补充CFA有利于纤维分解菌的生长,这与CFA组瘤胃乙酸/丙酸值较高的结果一致。但是,依据本试验结果得不到适宜淀粉分解菌和纤维分解菌生长的最佳FA水平,因此还需进一步开展不同水平FA对瘤胃菌群和发酵类型影响的研究。

3.4 FA和CFA对奶牛肝脏FA代谢物和关键酶基因表达的影响

本试验中,补充CFA后,奶牛肝脏FA含量以及DHFRMTHFR mRNA相对表达量显著提高,表明肝脏FA供应增加、代谢效率提高,即一碳基团的传递速度可能加快了。在一碳循环中,DHFR催化二氢叶酸转化为四氢叶酸,后者接受并传递一碳基团,依次转化为5,10-亚甲基四氢叶酸、5-甲基四氢叶酸和四氢叶酸,完成FA循环,其中MTHFR是将5,10-亚甲基四氢叶酸还原为5-甲基四氢叶酸实现FA循环的关键酶[6]。另外,本试验发现,CFA组奶牛肝脏Hcy含量显著降低,但其蛋氨酸和肌酸含量以及MSGNMT mRNA相对表达量与CON组、LFA组和HFA组相比无显著差异。试验结果表明,补充CFA可能使肝脏中更多的Hcy转化为GSH,改善了肝脏抗氧化能力,但是对奶牛肝脏蛋氨酸和肌酸的供应无显著影响。在一碳代谢中,Hcy可以在胱硫醚-β-合成酶的催化下转化为GSH,也可以在MS的催化下接受5-甲基四氢叶酸的甲基转化为蛋氨酸,后者以S-腺苷蛋氨酸的形式在GNMT的催化下为胍基乙酸转化为肌酸的过程提供甲基[6]。其他试验也发现,补充FA提高了大鼠肝细胞中GSH含量[21];奶牛产前3周开始每周肌肉注射160 mg FA,对泌乳早期肝脏中MSGNMT mRNA相对表达量无显著影响[26]。据此可以推断,补充CFA可能有助于改善围产期奶牛肝脏抗氧化能力。
本试验通过比较不同添加形式FA对奶牛肝脏FA代谢物和关键酶基因表达的影响发现,与CFA组不同,LFA组和HFA组奶牛肝脏FA和Hcy含量以及DHFRMTHFR mRNA相对表达量与CON组相比无显著变化,表明补充135和270 mg/d FA对肝脏组织中FA含量和FA相关代谢无显著影响,这可能也是导致LFA组和HFA组奶牛瘤胃TVFA含量提高,泌乳性能却无显著变化的原因。已有报道,饲粮中添加的FA只有2.5%~4.5%能到达静脉血液,血液中的FA约28%能达到肝脏[11]。因此,反刍动物生产中应使用CFA添加剂。

4 结论

① 围产期奶牛补充CFA能实现对瘤胃发酵和肝脏FA代谢的调控,进而提高4% FCM、乳脂和乳蛋白产量。
② 补充FA能有效调控瘤胃发酵,但是到达肝脏的FA量有限,导致奶牛泌乳性能无显著变化。
③ 奶牛瘤胃菌群受FA添加水平的影响,本试验条件下,34.2 mg/d的FA(CFA组)有利于纤维分解菌的生长,135 mg/d的FA(LFA组)有利于淀粉分解菌的生长。
[1]
ZHANG Z, LA S K, ZHANG G W, et al. Diet supplementation of palm fat powder and coated folic acid on performance,energy balance,nutrient digestion,ruminal fermentation and blood metabolites of early lactation dairy cows[J]. Animal Feed Science and Technology, 2020,265:114520.

[2]
GIRARD C L, DUPLESSIS M. Review:state of the knowledge on the importance of folates and cobalamin for dairy cow metabolism[J]. Animal, 2023, 17(S3):100834.

[3]
ROBINSON P H. Vitamin B requirements and duodenal deliveries in lactating dairy cows:organization of a limited literature[J]. Livestock Science, 2019,226:48-60.

[4]
PIANTONI P, VANDEHAAR M J. Symposium review:the impact of absorbed nutrients on energy partitioning throughout lactation[J]. Journal of Dairy Science, 2023, 106(3):2167-2180.

[5]
WANG L, LI Z J, LEI X J, et al. Effect of folic acid supplementation on lactation performance of Holstein dairy cows:a Meta-analysis[J]. Animal Feed Science and Technology, 2023,296:115551.

[6]
BROSNAN M E, MACMILLAN L, STEVENS J R, et al. Division of labour:how does folate metabolism partition between one-carbon metabolism and amino acid oxidation?[J]. Biochemical Journal, 2015, 472(2):135-146.

[7]
SLYTER L L, WEAVER J M. Tetrahydrofolate and other growth requirements of certain strains of Ruminococcus flavefaciens[J]. Applied and Environmental Microbiology, 1977, 33(2):363-369.

[8]
GAZI M R, YOKOTA M, TANAKA Y, et al. Effects of protozoa on the antioxidant activity in the ruminal fluid and blood plasma of cattle[J]. Animal Science Journal, 2007, 78(1):34-40.

[9]
EL-TARABANY M S, ATTA M A, EMARA S S, et al. Folic acid and flaxseed oil supplements in Ossimi ewes:effect on body weight changes, progesterone profile,blood chemistry,and litter traits[J]. Tropical Animal Health and Production, 2020, 52(1):301-308.

DOI PMID

[10]
SANTSCHI D E, CHIQUETTE J, BERTHIAUME R, et al. Effects of the forage to concentrate ratio on B-vitamin concentrations in different ruminal fractions of dairy cows[J]. Canadian Journal of Animal Science, 2005,85:389-399.

[11]
GIRARD C L, LAPIERRE H, DESROCHERS A, et al. Net flux of folates and vitamin B12 through the gastrointestinal tract and the liver of lactating dairy cows[J]. The British Journal of Nutrition, 2001, 86(6):707-715.

[12]
李高. 三种过瘤胃胆碱的过瘤胃保护效果评定[D]. 硕士学位论文. 哈尔滨: 东北农业大学, 2016.

LI G. Evaluating the rumen protection effect of three kinds of rumen protected choline[D]. Master’s Thesis.Harbin: Northeast Agricultural University, 2016. (in Chinese)

[13]
National Academies of Sciences,Engineering,and Medicine. Nutrient requirements of dairy cattle[S]. 8th ed.Washington,D. C.:National Academies Press, 2021.

[14]
AOAC. Official method of analysis[S]. 18th ed. Gaithersburgs: Association of Official Analytical Chemists, 2006.

[15]
MENZIES K K, LEFÈVRE C, SHARP J A, et al. A novel approach identified the FOLR1 gene,a putative regulator of milk protein synthesis[J]. Mammalian Genome, 2009, 20(8):498-503.

[16]
PREYNAT A, LAPIERRE H, THIVIERGE M C, et al. Effects of supplements of folic acid,vitamin B12,and rumen-protected methionine on whole body metabolism of methionine and glucose in lactating dairy cows[J]. Journal of Dairy Science, 2009, 92(2):677-689.

[17]
LOPREIATO V, ALHARTHI A S, LIANG Y S, et al. Influence of cobalt source,folic acid,and rumen-protected methionine on performance,metabolism,and liver tissue one-carbon metabolism biomarkers in peripartal Holstein cows[J]. Animals, 2023, 13(13):2107.

[18]
GRAULET B, MATTE J J, DESROCHERS A, et al. Effects of dietary supplements of folic acid and vitamin B12 on metabolism of dairy cows in early lactation[J]. Journal of Dairy Science, 2007, 90(7):3442-3455.

[19]
GIRARD C L, BENCHAAR C, CHIQUETTE J, et al. Net flux of nutrients across the rumen wall of lactating dairy cows as influenced by dietary supplements of folic acid[J]. Journal of Dairy Science, 2009, 92(12):6116-6122.

DOI PMID

[20]
STROES E S, VAN FAASSEN E E, YO M, et al. Folic acid reverts dysfunction of endothelial nitric oxide synthase[J]. Circulation Research, 2000, 86(11):1129-1134.

DOI PMID

[21]
MOHAMMADIAN Z, EIDI A, MORTAZAVI P, et al. Effects of folic acid on dyslipidemia and serum homocysteine in a rat model of cholestasis and hepatic fibrosis[J]. Polish Journal of Pathology, 2015, 66(1):49-56.

PMID

[22]
RONCO A M, GARRIDO A, LLANOS M N, et al. Effect of homocysteine,folates,and cobalamin on endothelial cell-and copper-induced LDL oxidation[J]. Lipids, 2005, 40(3):259-264.

[23]
SUN H Z, XUE M Y, GUAN L L, et al. A collection of rumen bacteriome data from 334 mid-lactation dairy cows[J]. Scientific Data, 2019,6:180301.

[24]
COMTET-MARRE S, PARISOT N, LEPERCQ P, et al. Metatranscriptomics reveals the active bacterial and eukaryotic fibrolytic communities in the rumen of dairy cow fed a mixed diet[J]. Frontiers in Microbiology, 2017,8:67.

[25]
HUWS S A, KIM E J, LEE M R F, et al. As yet uncultured bacteria phylogenetically classified as Prevotella,Lachnospiraceae incertae sedis and unclassified Bacteroidales,Clostridiales and Ruminococcaceae may play a predominant role in ruminal biohydrogenation[J]. Environmental Microbiology, 2011, 13(6):1500-1512.

[26]
PREYNAT A, LAPIERRE H, THIVIERGE M C, et al. Effects of supplementary folic acid and vitamin B12 on hepatic metabolism of dairy cows according to methionine supply[J]. Journal of Dairy Science, 2010, 93(5):2130-2142.

文章导航

/