研究论文

饲料中不同水平绿原酸对瓦氏雅罗鱼生长性能、脂代谢、免疫功能及抗氧化能力的影响

  • 王吟涛 , 1, 2, 3 ,
  • 孟思彤 1, 2, 3 ,
  • 邹瑞兴 4 ,
  • 张立全 5 ,
  • 佟娜 6 ,
  • 吴莉芳 , 1, 2, 3, *
展开
  • 1 吉林农业大学动物科学技术学院,长春 130118
  • 2 动物生产及产品质量安全教育部重点实验室,长春 130118
  • 3 吉林省动物营养与饲料科学重点实验室,长春 130118
  • 4 农安县太平池水库管理中心,长春 130228
  • 5 集安市水产技术推广站,集安 134299
  • 6 那木乡综合服务中心,双辽 136400
* 吴莉芳,教授,博士生导师,E-mail:

王吟涛(2000—),男,吉林长春人,硕士研究生,研究方向为水生动物营养与饲料科学。E-mail:

Office editor: 陈鑫

收稿日期: 2024-12-02

  网络出版日期: 2025-09-12

基金资助

吉林省科技厅重点研发项目(20240303084NC)

Effects of Chlorogenic Acid Levels in Diets on Growth Performance, Lipid Metabolism, Immune Function and Antioxidant Capacity of Amur Ide (Leuciscus waleckii)

  • WANG Yintao , 1, 2, 3 ,
  • MENG Sitong 1, 2, 3 ,
  • ZOU Ruixing 4 ,
  • ZHANG Liquan 5 ,
  • TONG Na 6 ,
  • WU Lifang , 1, 2, 3, *
Expand
  • 1 College of Animal Science and Technology, Jilin Agricultural University, Changchun 130118, China
  • 2 Key Laboratory of Animal Production and Product Quality and Safety, Ministry of Education, Changchun 130118, China
  • 3 Key Experiments in Animal Nutrition and Feed Science in Jilin Province, Changchun 130118, China
  • 4 Taipingchi Reservoir Management Center of Nongan County, Changchun 130228, China
  • 5 Jian City Fisheries Technology Promotion Station,Ji’an 134299, China
  • 6 Namu Township Comprehensive Service Center, Shuangliao 136400, China
* professor, E-mail:

Received date: 2024-12-02

  Online published: 2025-09-12

摘要

为研究饲料中不同水平绿原酸(CGA)对瓦氏雅罗鱼生长性能、脂代谢、免疫功能及抗氧化能力的影响,本试验采用单因素析因试验设计,将600尾初始体质量为(3.24±0.05) g/尾的瓦氏雅罗鱼随机分为5组,每组3个重复,每个重复放养40尾。5组试验饲料分别添加不同水平[0(CK组)、0.02%(C1组)、0.04%(C2组)、0.06%(C3组)和0.08%(C4组)]的CGA,进行为期8周的饲养试验。结果表明:与CK组相比,添加0.04%~0.06% CGA显著提高生长性能及饲料利用等相关指标(P<0.05);添加0.04% CGA显著提高血清中高密度脂蛋白胆固醇(HDL-C)含量(P<0.05),显著降低血清低密度脂蛋白胆固醇(LDL-C)、甘油三酯(TG)和总胆固醇(TC)含量(P<0.05),显著升高肝胰脏中脂肪甘油三酯脂酶(ATGL)活性(P<0.05),显著降低肝胰脏中乙酰辅酶A羧化酶(ACC)、ATGL活性和TG含量(P<0.05),显著提高肝胰脏中过氧化物酶体增殖物激活受体-β(PPAR-β) mRNA相对表达量(P<0.05),显著降低肝胰脏中脂肪酸合成酶(FAS)、ACC-1和氧化物酶体增殖物激活受体-γ(PPAR-γ)mRNA相对表达量(P<0.05),促进了血清和肝胰脏中脂肪分解;添加0.04% CGA显著提高血清中免疫球蛋白M(IgM)、补体3(C3)、补体4(C4)含量和溶菌酶(LZM)、碱性磷酸酶(AKP)活性(P<0.05),显著提高肝胰脏中生长转化因子-β(TGF-β)mRNA相对表达量(P<0.05),显著降低肝胰脏中核转录因子-κBp65(NF-κBp65)、髓系分化因子88(MyD88)和肿瘤坏死因子-α(TNF-α)mRNA相对表达量(P<0.05),增强了免疫功能;添加0.04% CGA显著提高血清总抗氧化能力(T-AOC)及过氧化氢酶(CAT)、总超氧化物歧化酶(T-SOD)和谷胱甘肽过氧化物酶(GSH-Px)活性(P<0.05),显著降低血清丙二醛(MDA)含量(P<0.05);显著提高肝胰脏中T-AOC及T-SOD、CAT和GSH-Px活性(P<0.05),显著降低肝胰脏中MDA含量(P<0.05);添加0.04% CGA显著提高肝胰脏中核因子红系2相关因子2(Nrf2)、血红素氧合酶-1(HO-1)和CAT mRNA相对表达量(P<0.05),显著降低Kelch样环氧氯丙烷相关蛋白-1(Keap-1)mRNA相对表达量(P<0.05)。综上所述,饲料中添加0.04% CGA可以显著提高瓦氏雅罗鱼生长性能及饲料利用,促进肝胰脏脂肪分解,抑制脂质沉积,通过激活核转录因子信号通路提高免疫功能,激活Keap1-Nrf2信号通路增强抗氧化能力。

本文引用格式

王吟涛 , 孟思彤 , 邹瑞兴 , 张立全 , 佟娜 , 吴莉芳 . 饲料中不同水平绿原酸对瓦氏雅罗鱼生长性能、脂代谢、免疫功能及抗氧化能力的影响[J]. 动物营养学报, 2025 , 37(9) : 6136 -6152 . DOI: 10.12418/CJAN2025.499

Abstract

To investigate the effects of chlorogenic acid (CGA) levels in diets on growth performance, lipid metabolism, immune function and antioxidant capacity of Leuciscus waleckii, the single-factor factorial design was adopted in this study. A total of 600 fish with an initial body mass of (3.24±0.05) g/fish were randomly divided into 5 groups with 3 replicates per group and 40 fish in each replicate. The 5 groups were fed different levels of CGA [0 (CK group), 0.02% (C1 group), 0.04% (C2 group), 0.06% (C3 group) and 0.08% (C4 group)], respectively, and the feeding experiment lasted for 8 weeks. The results showed as follows: compared with CK group, adding 0.04% to 0.06% CGA significantly improved the growth performance and feed utilization of amur ide (P<0.05); adding 0.04% CGA significantly increased serum high-density lipoprotein cholesterol (HDL-C) content (P<0.05), and significantly decreased serum low-density lipoprotein cholesterol (LDL-C), triglyceride (TG) and total cholesterol (TC) contents (P<0.05); it significantly increased the activity of adipose triglyceride lipase (ATGL) in hepatopancreas (P<0.05), and decreased the activities of acetyl coenzyme A carboxylase (ACC) and ATGL and the content of TG in hepatopancreas (P<0.05); it also significantly increased the relative expression of peroxisome proliferator-activated receptor-β (PPAR-β) mRNA in hepatopancreas (P<0.05), and significantly decreased the relative expression levels of fatty acid synthase (FAS), ACC-1 and peroxisome proliferator-activated receptor-γ (PPAR-γ) mRNA in hepatopancreas (P<0.05). It promoted lipolysis in serum and hepatopancreas; the contents of immunoglobulin M (IgM), complement 3 (C3) and complement 4 (C4) in serum and the activities of lysozyme (LZM) and alkaline phosphatase (AKP) in serum were significantly increased by 0.04% CGA supplementation (P<0.05), and the relative expression level of growth transforming factor-β (TGF-β) mRNA in hepatopancreas was significantly increased (P<0.05); the relative expression level of nuclear factor-κBp65 (NF-κBp65), myeloid differentiation factor 88 (MyD88) and tumor necrosis factor-α (TNF-α) mRNA in hepatopancreas was significantly reduced (P<0.05), and the immune function was enhanced; adding 0.04% CGA significantly increased serum total antioxidant capacity (T-AOC) and activities of catalase (CAT), total superoxide dismutase (T-SOD) and glutathione peroxidase (GSH-Px) (P<0.05), and significantly decreased serum malondialdehyde (MDA) content (P<0.05); It significantly increased the activities of T-AOC, T-SOD, CAT and GSH-Px in hepatopancreas (P<0.05), and decreased the content of MDA in hepatopancreas (P<0.05); addition of 0.04% CGA significantly increased the relative expression levels of nuclear factor erythroid 2-related factor 2 (Nrf2), heme oxygenase-1 (HO-1) and CAT mRNA in hepatopancreas (P<0.05); it also significantly reduced the relative expression levels of Keap-1 mRNA (P<0.05). In conclusion, dietary supplementation of 0.04%CGA can significantly improve growth performance and feed utilization of amur ide, promote hepatopancreas lipdecomposition, inhibit lipid deposition, enhance immune function by activating nuclear transcription factor signaling pathway and enhance antioxidant capacity by activating Keap1-Nrf2 signaling pathway.

在替抗的背景和追求高品质水产品的需求下,发掘一种绿色无公害、天然无污染的植物提取物作为饲料添加剂十分重要。绿原酸(CGA)作为一种中草药天然植物提取物在水产饲料中的应用受到国内外学者广泛关注[1-2]。CGA是一种多酚类物质[3-4],广泛分布于水果[5]、蔬菜[6]、中草药[7]中,如苹果[8-9]、胡萝卜[10]、金银花[11]和杜仲[12]等。CGA具有多种药理功能[1],如抗炎[13]、抗氧化[4]和调节脂质代谢[14]等作用。Sun等[15]研究发现,在草鱼(Ctenopharynogodon idella)饲料中添加0.04% CGA可提高增重率(WGR),降低饲料效率(FER)。同样,黄河鲤(Cyprinus carpio)[16]和建鲤(Cyprinus carpio.var Jian)[17]的研究中均表明饲料中添加CGA均可提高生长性能和饲料效率。在青鱼(Mylopharyngodon piceus)[18]的研究发现,饲料中添加0.02% CGA可显著提高青鱼肌肉中的粗蛋白质含量。Wang等[19]研究发现,在低盐度和亚硝酸盐联合胁迫导致南美白对虾(Litopenaeus vannamei)氧化应激后添加0.02% CGA显著提高肝胰腺中谷胱甘肽过氧化物酶(GSH-Px)和过氧化氢酶(CAT)活性,提高了抗氧化能力。斑点叉尾鮰(Ictalurus punetaus)饲料中添加0.04% CGA后可缓解由氧化鱼油引起的炎症损伤[20]。在大口黑鲈(Micropterus salmoides)[21]的研究中表明,高脂饲料中添加0.06% CGA改善肝胰脏的脂肪沉积,提高抗氧化能力和免疫功能。
瓦氏雅罗鱼(Leuciscus waleckii)隶属于鲤科(Cyprinidae)、雅罗鱼亚科(Leuciscinae)、雅罗鱼属(Leuciscus),广泛分布于欧洲、西伯利亚、高加索、中国黑龙江流域。瓦氏雅罗鱼因其味道鲜美、肉质细嫩及富含蛋白质、蛋氨酸和赖氨酸等人体必需氨基酸、不饱和脂肪酸、维生素A和维生素D深受广大消费者的喜爱。其适温范围广,适合池塘高密度养殖,是一种深受市场欢迎的名贵经济鱼类,并在2022年被评为我国十大特色水产种质资源之一。然而截至目前,关于瓦氏雅罗鱼在营养调控方面的研究主要在N-乙酰半胱氨酸对其肝胰脏和肠道的影响及不同赖氨酸水平对其生长、饲料利用及肌肉营养成分的影响[22-23],鲜见有关于饲料中不同水平CGA对瓦氏雅罗鱼生长性能、脂代谢、免疫功能及抗氧化能力的影响。因此,本研究以瓦氏雅罗鱼为研究对象,探究饲料中添加不同水平CGA对其生长性能、脂代谢、免疫功能和抗氧化能力的影响,确定CGA在瓦氏雅罗鱼饲料中的适宜添加量,为新型功能性饲料添加剂CGA在水产饲料中的应用提供理论依据,为优化瓦氏雅罗鱼人工配合饲料和健康养殖提供参考。

1 材料与方法

1.1 试验饲料

以鱼粉、去皮豆粕和大豆浓缩蛋白为蛋白质源,鱼油和大豆油为脂肪源,CGA(纯度为98%)添加量分别为0(CK)、0.02%(C1)、0.04%(C2)、0.06%(C3)和0.08%(C4),配制5种等氮等脂的配合饲料。试验饲料原料经粉碎过60目筛,将各种饲料原料按饲料配方进行混合,挤压成粒径为1.5 mm的颗粒,晒干后置于-20 ℃冰柜中,保存备用。试验饲料组成及营养水平见表1
表1 试验饲料组成及营养水平(风干基础)

Table 1 Composition and nutrient levels of experimental diets (air-dry basis) %

项目
Items
饲料Diets
CK C1 C2 C3 C4
原料Ingredients
鱼粉Fish meal 30.00 30.00 30.00 30.00 30.00
去皮豆粕Peel soybean meal 11.53 11.53 11.53 11.53 11.53
大豆浓缩蛋白Soy protein concentrate 10.00 10.00 10.00 10.00 10.00
面粉Wheat meal 18.00 18.00 18.00 18.00 18.00
玉米蛋白粉Corn gluten meal 5.00 5.00 5.00 5.00 5.00
豆油Soybean oil 2.44 2.44 2.44 2.44 2.44
鱼油Fish oil 2.44 2.44 2.44 2.44 2.44
绿原酸Chlorogenic acid 0.02 0.04 0.06 0.08
预混料Premix1) 0.50 0.50 0.50 0.50 0.50
氯化胆碱Choline chloride 0.30 0.30 0.30 0.30 0.30
磷酸二氢钙Ca(H2PO4)2 2.00 2.00 2.00 2.00 2.00
维生素C酯Vitamin C ester 0.08 0.08 0.08 0.08 0.08
微晶纤维素Microcrystalline cellulose 3.07 3.05 3.03 3.01 2.99
糊精Dextrin 14.64 14.64 14.64 14.64 14.64
合计Total 100.00 100.00 100.00 100.00 100.00
营养水平Nutrient levels2)
粗蛋白质CP 36.71 36.74 36.77 36.71 36.67
粗脂肪EE 7.64 7.61 7.81 7.68 7.79
粗灰分Ash 6.35 6.44 6.33 6.35 6.39

1) 每千克预混料含有 One kg of premix contained as follows: VA 960 000 IU,VD 560 000 IU, VE 24 000 mg,VK 1 620 mg,烟酰胺 nicotinamide 4 580 mg,泛酸 pantothenic acid 7 020 mg,叶酸 folic acid 1 060 mg,生物素 biotin 40 mg,肌醇 inositol 30 200 mg,Cu 961 mg,Fe 40 600 mg,Mn 5 520 mg,Co 64 mg,I 134 mg,Zn 23 200 mg,Se 84 mg。

2)营养水平为测定值。Nutrient levels were measured values.

1.2 试验设计及饲养管理

本试验的动物实验经吉林农业大学机构动物保护与使用委员会批准(批准文号:20220923004)。试验所用瓦氏雅罗鱼购买于吉林省梅河口市杏岭乡永顺渔场。本试验为单因素析因试验设计,将600尾初始体质量为(3.24±0.05) g/尾的瓦氏雅罗鱼随机分为5组,分别饲喂5种试验饲料,每组3个重复,每个重复40尾,进行为期8周的饲养试验。
正式试验开始前,暂养2周。暂养期间投喂CK组饲料,并保持24 h曝气。饲养试验在吉林农业大学动物科技学院水产养殖室控温养殖系统中进行。饲养期间,采用人工撒投饵方式,每天投喂3次(07:00、12:00、17:00),投饵率为瓦氏雅罗鱼体重的3%~5%。养殖期间保持溶解氧含量>5 mg/L,水温在24~28 ℃,pH在7.5~8.5,氨氮含量<0.3 mg/L,亚硝酸盐含量<0.05 mg/L,每2 d换水1次,每次换总水量的1/3~1/4。

1.3 样品采集

饲养试验结束后,停食24 h,用丁香酚(1∶10 000)麻醉,称取每桶瓦氏雅罗鱼的总数量和总重量用于终末体质量(FBW)、WGR、特定生长率(SGR)、存活率(SR)等指标的计算。随机选取瓦氏雅罗鱼10尾,用于肥满度(CF)、肝体比(HSI)和脏体比(VSI)等指标的计算。使用注射器在尾静脉收集血液,静置24 h后,离心(3 000×g、4 ℃)10 min并收集血清,-80 ℃保存备用。在冰盘上进行解剖,收集15尾鱼肝胰脏并液氮冷冻后,-80 ℃保存备用,用于mRNA水平的测定;收集相同位置大小一致的肝胰脏,多聚甲醛中保存,用于油红染色观察;取侧线以上背鳍以下肌肉,保存于-20 ℃备用,用于肌肉营养成分测定。

1.4 生长性能和FER的计算

生长性能和FER计算公式如下:
WGR(%)=100×(Wt-W0)/W0;
SGR(%/d)=100×(lnWt-lnW0)/t;
FER(%)=100×(Wt-W0)/G;
蛋白质效率(PER,%)=100×(Wt-W0)/(F×P);
CF(g/cm3)=100×(Wt/ L t 3);
HSI(%)=100×(HW/Wt);
VSI(%)=100×(VW/Wt);
SR(%)=100×(Qt/Q0);
摄食率(FR,%/d))=It×2/[(Wt+W0t]×100。
式中:W0为试验开始鱼初始体质量(g);Wt为试验结束鱼FBW(g);F为摄入干饲料质量(g);Lt为试验结束鱼体长(cm);t为试验天数;G为摄入干饲料质量(g);P为饲料粗蛋白质含量;HW为肝胰脏质量(g);VW为内脏质量(g);Q0为试验开始鱼初始数量;Qt为试验结束鱼终末数量;It为摄入干饲料质量。

1.5 饲料和肌肉营养成分的测定

使用105 ℃常压干燥法(GB 5009.3—2016)测定饲料和肌肉中水分含量,使用索氏抽提法(GB 5009.6—2016)测定饲料和肌肉中粗脂肪含量,使用凯氏定氮法(GB 5009.5—2016)测定饲料和肌肉中粗蛋白质含量,使用马弗炉灼烧法(GB 5009.4—2016)测定饲料和肌肉中粗灰分含量。

1.6 脂代谢指标测定

使用南京建成生物工程研究所试剂盒测定瓦氏雅罗鱼血清中高密度脂蛋白胆固醇(HDL-C)、低密度脂蛋白胆固醇(LDL-C)、甘油三酯(TG)和总胆固醇(TC)含量及肝胰脏中乙酰辅酶A羧化酶(ACC)、脂肪甘油三酯脂酶(ATGL)和脂肪酸合成酶(FAS)活性。

1.7 免疫功能指标的测定

使用南京建成生物工程研究所试剂盒测定瓦氏雅罗鱼血清中溶菌酶(LZM)和碱性磷酸酶(AKP)活性;使用晶美生物工程有限公司试剂盒,采用酶联免疫吸附测定法(ELISA)测定血清中免疫球蛋白M(IgM)、补体3(C3)、补体4(C4)的含量。

1.8 抗氧化能力指标的测定

使用南京建成生物工程研究所试剂盒测定瓦氏雅罗鱼血清和肝胰脏中总抗氧化能力(T-AOC),过氧化氢酶(CAT)、总超氧化物歧化酶(T-SOD)、谷胱甘肽过氧化物酶(GSH-Px)活性及丙二醛(MDA)含量。

1.9 肝胰脏油红染色切片观察

瓦氏雅罗鱼肝胰脏中脂质积累采用油红O染色法观察。肝胰脏样品在组织固定液中固定后经过冷冻,用200和300 g/L蔗糖缓冲液处理24 h后,进行石蜡包埋并切成薄片,用60%油红O染色液进行染色,最后用荧光倒置显微镜(IX71,奥林巴斯公司,日本)进行观察和成像。

1.10 肝胰脏脂代谢、免疫及抗氧化相关基因mRNA表达水平的测定

采用Trizol试剂盒(B511311-0100,生工生物工程公司)从瓦氏雅罗鱼肝胰脏中提取mRNA,通过凝胶电泳仪(DYY-12,北京六一生物技术有限公司)和核酸蛋白测定仪(HD-2000, 上海嘉鹏科技有限公司)测定总RNA的质量和浓度,随后,以提取的总RNA为模板,合成cDNA[24-25],置于-80 ℃冰箱保存备用。使用TaKaRa的TB Green Premic Ex Taq Ⅱ试剂盒,通过荧光定量PCR仪(7500 Fast,Thermo Fisher Scientific,美国)进行实时荧光定量PCR(RT-qPCR),反应体系见表2,反应条件见表3,引物序列见表4。采用2-ΔΔCt方法[25]计算目的基因mRNA的相对表达量。
表2 实时荧光定量PCR反应体系

Table 2 RT-qPCR reaction system

试剂Reagents 用量Dosages/μL
2 × TransStart Green qPCR SuperMix 10
cDNA 1
上游引物Forward primer 1
下游引物Reverse primer 1
DEPC处理水DEPC-treated water 7
合计Total 20
表3 实时荧光定量PCR反应条件

Table 3 RT-qPCR reaction conditions

程序
Procedures
温度
Temperature/℃
时间
Time
预变形Predeformation 95 2 min
变性Denaturation 95 10 s
退火Anneal 55 20 s
延伸Extend 72 20 s
循环数Recurring number 40
表4 引物序列

Table 4 Primer sequences

基因
Genes
引物序列
Primer sequences (5'—3')
基因序列号
Gene sequence number
β-肌动蛋白
β-actin
F: CCCATCGAGCACGGTATTG
R: AAGGTGTGATGCCAGATCTTCTC
M24113.1
过氧化物酶体增殖物激活受体-β
PPAR-β
F: GAGGCCATATTTGCGATGCTC
R: TCTCTCGTCACAAAGCCCTTC
XM_042762213.1
过氧化物酶体增殖物激活受体-γ
PPAR-γ
F: TGCAAGGGATTCTTCCGCAG
R: AACGAATGGCGTTGTGTGAC
XM_019096045.1
乙酰辅酶A羧化酶-1
ACC-1
F: GTCACTGGCGTATGAGGATATT
R: TCCACCTGTATGGTTCTTTGG
XM_042757417.1
脂肪酸合成酶
FAS
F: GACAGGCCGCTATTGCTATT
R: TGCCGTAAGCTGAGGAAATC
GQ466045.1
核转录因子-κBp65
NF-κBp65
F: GAAGAAGGATGTGGGAGATG
R: TGTTGTCGTAGATGGGCTGAG
XM_042769966.1
肿瘤坏死因子-α
TNF-α
F: GGTGATGGTGTCGAGGAGGAA
R: TGTCATCCTTTCTGCTCTGGTT
XM_019088899.2
髓系分化因子88
MyD88
F: AAAAAGGTGTAAGAGGATGGTGG
R: CAGGGATTAGGCGTTTAGTGC
XM_019080073.2
生长转化因子-β
TGF-β
F: TACATTGACAGCAAGGTGGTG
R: TCTTGTTGGGGATGATGTAGTT
XM_019072371.2
核因子红系2相关因子2
Nrf2
F: TTCCCGCTGGTTTACCTTAC
R: CGTTTCTTCTGCTTGTCTTT
JX462955
Kelch样环氧氯丙烷相关蛋白-1
Keap-1
F: TCTATGTGATGGGAGGATACGA
R: GTGTCTCATGGAGGAGATGAAG
XM_019071157.1
血红素氧合酶-1
HO-1
F: TCAGCCCATCTACTTCCCTCA
R: GGCAGGCACTGTTACTCTCT
JX257180.1
过氧化氢酶
CAT
F: CTGACCCCGATTACTCCATCAG
R: GGGTTTCGGTTCAACACAAGG
XM_042715094.1

1.11 数据统计分析

采用SPSS 26.0软件对数据进行单因子方差分析(one-way ANOVA),若方差分析显著,则使用Duncan氏法进行多重比较,并通过正交多项式分析检验数据的线性和二次变化趋势,显著水平设置为P<0.05。

2 结果与分析

2.1 饲料中不同水平CGA对瓦氏雅罗鱼生长性能及肌肉营养成分的影响

表5所示,瓦氏雅罗鱼的FBW、WGR、SGR、FER、PER和CF与CGA添加水平呈显著的二次曲线变化(P<0.05)。与CK组相比,C1~C4组的FBW、WGR和SGR显著升高(P<0.05);C2和C3组的FER和CF显著升高(P<0.05),而C1和C4组无显著差异(P>0.05);C2组PER显著升高(P<0.05)。
表5 饲料中不同水平CGA对瓦氏雅罗鱼生长性能及饲料效率的影响

Table 5 Effects of different levels of CGA in diets on growth performance and feed utilization of amur ide

项目
Items
组别Groups PP-value
CK C1 C2 C3 C4 方差分析
ANOVA
线性
Linear
二次
Quadratic
初始体质量IBW/g 3.19±0.08 3.28±0.04 3.24±0.02 3.26±0.03 3.23±0.05
终末体质量FBW/g 9.51±0.48a 10.40±0.41b 10.97±0.32b 10.49±0.36b 10.38±0.44b 0.017 0.038 0.005
增重率WGR/% 197.93±8.07a 219.72±16.52b 238.51±10.97b 221.81±10.45b 221.64±8.32b 0.019 0.037 0.009
特定生长率
SGR/(%/d)
1.94±0.05a 2.07±0.09b 2.17±0.05b 2.09±0.05b 2.08±0.04b 0.017 0.031 0.008
饲料效率FER/% 67.66±1.81a 72.69±1.81ab 75.84±3.06b 73.51±4.19b 71.94±2.15ab 0.048 0.092 0.011
蛋白质效率PER/% 182.88±4.90a 196.45±4.90ab 204.97±8.23b 198.66±11.31ab 194.44±5.81ab 0.048 0.092 0.011
肥满度CF/(g/cm3) 1.38±0.03a 1.43±0.03ab 1.47±0.02b 1.41±0.02b 1.42±0.01ab 0.011 0.242 0.004
脏体比VSI/% 5.33±0.11 5.44±0.05 5.49±0.07 5.48±0.06 5.42±0.09 0.182 0.189 0.038
肝体比HSI/% 2.34±0.07 2.23±0.01 2.23±0.06 2.28±0.05 2.27±0.03 0.272 0.140 0.050
存活率SR/% 100.00±0.00 100.00±0.00 100.00±0.00 100.00±0.00 100.00±0.00 1.000 1.000 1.000
摄食率FR/(%/d) 2.62±0.03 2.57±0.04 2.56±0.05 2.55±0.09 2.61±0.03 0.537 0.695 0.113

同行数据肩标不同小写字母表示差异显著(P<0.05)。下表同。

In the same row, values with different small letter superscripts mean significant difference (P<0.05). The same as below.

表6所示,瓦氏雅罗鱼肌肉中粗蛋白质含量随CGA添加水平的升高呈显著的二次曲线变化(P<0.05)。与CK组相比,C1~C4组的粗蛋白质含量显著升高(P<0.05)。各组的粗脂肪、粗灰分和水分含量无显著差异(P>0.05)。
表6 饲料中不同水平CGA对瓦氏雅罗鱼肌肉营养成分的影响

Table 6 Effects of different levels of CGA in diets on nutrient composition in muscle of amur ide %

项目
Items
组别Groups PP-value
CK C1 C2 C3 C4 方差分析
ANOVA
线性
Linear
二次
Quadratic
粗蛋白质CP 17.35±0.11a 17.67±0.11b 17.65±0.11b 17.63±0.12b 17.63±0.10b 0.029 0.029 0.024
粗脂肪EE 1.34±0.08 1.24±0.09 1.26±0.08 1.25±0.09 1.26±0.12 0.774 0.458 0.402
粗灰分Ash 1.25±0.11 1.17±0.09 1.23±0.08 1.23±0.11 1.23±0.12 0.891 0.841 0.692
水分Moisture 78.64±1.11 78.83±1.00 78.49±1.15 78.53±0.78 78.22±0.88 0.958 0.547 0.781

2.2 饲料中不同水平CGA对瓦氏雅罗鱼脂代谢的影响

2.2.1 饲料中不同水平CGA对瓦氏雅罗鱼肝胰脏脂代谢脂肪沉积的影响
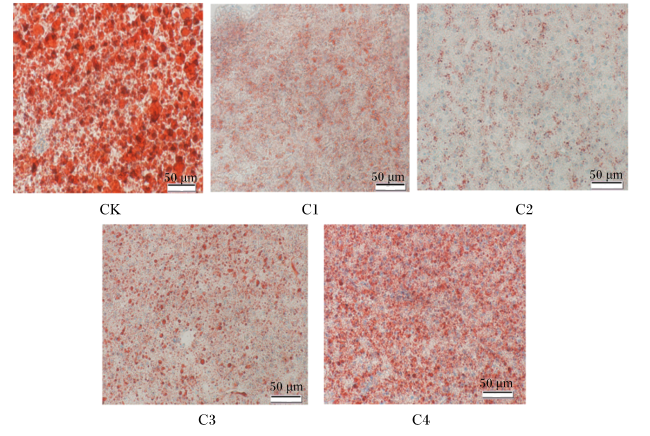
图1所示,与CK组相比,添加CGA后瓦氏雅罗鱼肝胰脏中脂滴数量明显减少。
图1 饲料中不同水平CGA对瓦氏雅罗鱼肝胰脏脂代谢脂肪沉积的影响

Fig.1 Effects of different levels of CGA in diets on lipid deposition in hepatopancreas of amur ide

图中标尺为50 μm。The scale in figures represents 50 μm.

2.2.2 饲料中不同水平CGA对瓦氏雅罗鱼血清脂代谢的影响

表7所示,瓦氏雅罗鱼血清中HDL-C、LDL-C、TC和TG含量与CGA添加水平呈显著的线性关系(P<0.05)。与CK组相比,C1~C4组血清中HDL-C含量显著上升(P<0.05),LDL-C、TC和TG含量显著下降(P<0.05)。
表7 饲料中不同水平CGA对瓦氏雅罗鱼血清脂代谢的影响

Table 7 Effects of different levels of CGA in diets on lipid metabolism in serum of amur ide mmol/L

项目
Items
组别Groups PP-value
CK C1 C2 C3 C4 方差分析
ANOVA
线性
Linear
二次
Quadratic
高密度脂蛋白
胆固醇
HDL-C
0.37±0.05a 0.65±0.01b 0.79±0.04c 0.62±0.05b 0.58±0.06b <0.001 0.001 <0.001
低密度脂蛋白
胆固醇
LDL-C
1.65±0.11b 0.99±0.12a 0.82±0.11a 0.89±0.09a 0.86±0.07a <0.001 <0.001 <0.001
总胆固醇TC 11.03±3.04b 4.88±1.36a 4.11±1.95a 3.27±2.28a 4.57±1.37a 0.007 0.004 0.008
甘油三酯TG 1.65±0.11b 0.99±0.12a 0.83±0.11a 0.89±0.10a 0.86±0.07a <0.001 <0.001 <0.001

2.2.3 饲料中不同水平CGA对瓦氏雅罗鱼肝胰脏脂代谢的影响

表8所示,瓦氏雅罗鱼肝胰脏中ACC、ATGL、FAS活性和TG含量与CGA添加水平呈显著的二次曲线变化(P<0.05)。与CK组相比,C1~C4组肝胰脏中ACC、FAS活性和TG含量显著下降(P<0.05),ATGL活性显著上升(P<0.05)。
表8 饲料中不同水平绿原酸对瓦氏雅罗鱼肝胰脏脂代谢的影响

Table 8 Effects of different levels of CGA in diets on lipid metabolism in hepatopancreas of amur ide

项目
Items
组别Groups PP-value
CK C1 C2 C3 C4 方差分析
ANOVA
线性
Linear
二次
Quadratic
乙酰辅酶A羧化酶
ACC/(nmol/g)
5.88±0.17d 4.81±0.33ab 4.68±179a 5.12±0.25bc 5.33±0.13bc 0.001 0.091 <0.001
脂肪甘油三酯脂酶
ATGL/(nmol/g)
4.05±0.25a 4.45±0.21b 5.35±0.22c 5.14±0.14c 4.67±0.13b <0.001 <0.001 <0.001
脂肪酸合成酶
FAS/(μmol/g)
19.94±0.51b 18.80±0.49ab 17.59±1.13a 17.96±0.56a 19.32±0.44b 0.010 0.124 0.008
甘油三酯
TG/(mmol/g)
2.60±0.83b 0.98±0.58a 0.95±0.49a 1.05±0.38a 1.27±0.59a 0.030 0.037 0.014

2.2.4 饲料中不同水平CGA对瓦氏雅罗鱼肝胰脏脂代谢相关mRNA表达水平的影响
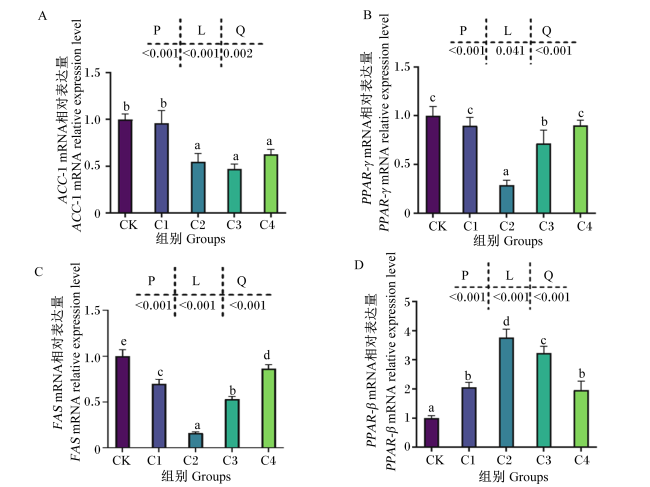
图2所示,瓦氏雅罗鱼肝胰脏中ACC-1、PPAR-γFASPPAR-β mRNA相对表达量与CGA添加水平呈显著的二次曲线变化(P<0.05)。与CK组相比,C1~C4组肝胰脏PPAR-β mRNA相对表达量显著升高(P<0.05),FASACC-1 mRNA相对表达量显著降低(P<0.05);C2和C3组肝胰脏PPAR-γ mRNA相对表达量显著下降(P<0.05)。
图2 饲料中不同水平CGA对瓦氏雅罗鱼肝胰脏脂代谢相关mRNA水平的影响

ACC-1:乙酰辅酶A羧化酶-1 acetyl-CoA carboxylase-1;FAS:脂肪酸合成酶 fatty acid synthase;PPAR-β:过氧化物酶体增殖物激活受体-β peroxisome proliferator-activated receptor-β;PPAR-γ:过氧化物酶体增殖物激活受体-γ peroxisome proliferator-activated receptor-γ。

Fig.2 Effects of different levels of CGA in diets on hepatopancreas lipid metabolism-related mRNA expression level of amur ide

不同小写字母表示差异显著(P<0.05)。P为方差分析P值,L为线性P值,Q为二次曲线P值。下图同。Different lowercase letters indicate significant difference (P<0.05). P represents the P-value from analysis of variance, L represents the P-value for linear, and Q represents the P-value for quadratic.The same as below.

2.3 饲料中不同水平CGA对瓦氏雅罗鱼免疫功能的影响

2.3.1 饲料中不同水平CGA对瓦氏雅罗鱼血清免疫指标的影响

表9所示,瓦氏雅罗鱼血清LZM、AKP活性及IgM、C3和C4含量与CGA添加水平呈显著的二次曲线关系(P<0.05)。与CK组相比,C1~C4组血清LZM活性、IgM和C4含量显著上升(P<0.05);C2组血清AKP活性显著上升(P<0.05);C2和C3组血清C3含量显著上升(P<0.05),C4组血清C3含量显著下降(P<0.05)。
表9 饲料中不同水平CGA对瓦氏雅罗鱼血清免疫指标的影响

Table 9 Effects of different levels of CGA in diets on immune indexes in serum of amur ide

项目
Items
组别Groups PP-value
CK C1 C2 C3 C4 方差分析
ANOVA
线性
Linear
二次
Quadratic
溶菌酶
LZM/(U/mL)
12.90
±1.61a
25.63
±1.35bc
27.42
±0.54c
26.52
±1.73c
23.47
±1.12b
<0.001 <0.001 <0.001
碱性磷酸酶
AKP/(U/L)
186.33
±14.37a
228.01
±21.11a
302.82
±10.69b
225.99
±43.30a
214.45
±29.06a
0.004 0.287 0.001
免疫球蛋白M
IgM/(mg/L)
12.08
±0.44a
13.13
±0.35bc
13.51
±0.29c
13.19
±0.34bc
12.77
±0.38b
0.007 0.053 0.001
补体3
C3/(mg/L)
1 393.11
±29.93b
1 329.71
±48.71b
1 563.41
±31.37d
1 469.20
±29.93c
1 164.85
±54.71a
<0.001 0.002 <0.001
补体4
C4/(mg/L)
492.63
±14.63a
607.96
±45.76bc
649.63
±17.90c
622.84
±17.34bc
585.63
±22.87b
<0.001 0.002 <0.001

2.3.2 饲料中不同水平CGA对瓦氏雅罗鱼肝胰脏炎症相关mRNA表达水平的影响
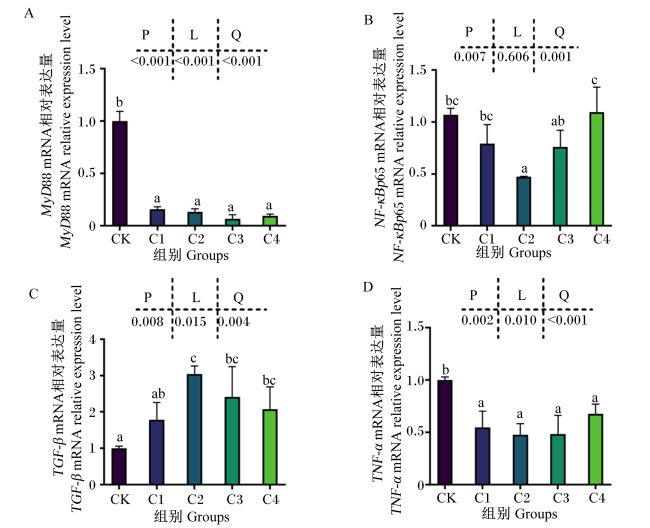
图3所示,瓦氏雅罗鱼肝胰脏MyD88、NF-κBp65、TGF-βTNF-α mRNA相对表达量与CGA添加水平呈显著的二次曲线变化(P<0.05)。与CK组相比,C1~C4组肝胰脏MyD88和TNF-α mRNA相对表达量显著下降(P<0.05),TGF-β mRNA相对表达量显著上升(P<0.05);C2组肝胰脏NF-κBp65 mRNA相对表达量显著下降(P<0.05)。
图3 饲料中不同水平CGA对瓦氏雅罗鱼肝胰脏炎症相关mRNA表达水平的影响

NF-κBp65:核转录因子-κB p65 nuclear factor kappa B p65;TNF-α:肿瘤坏死因子-α tumour necrosis factor-α;MyD88:髓系分化因子88 myeloid differentiation factor 88;TGF-β:生长转化因子-β transforming growth factor-β。

Fig.3 Effects of different levels of CGA in diets on hepatopancreas immune-related mRNA expression levels of amur ide

2.4 饲料中不同水平CGA对瓦氏雅罗鱼抗氧化能力的影响

2.4.1 饲料中不同水平CGA对瓦氏雅罗鱼血清抗氧化指标的影响

表10所示,瓦氏雅罗鱼血清中T-AOC,MDA含量、T-SOD、CAT和GSH-Px活性与CGA添加水平呈显著的二次曲线变化(P<0.05)。与CK组相比,C1~C4组T-SOD、CAT和GSH-Px活性显著上升(P<0.05),MDA含量显著下降(P<0.05);C2、C3组血清T-AOC显著上升(P<0.05)。
表10 饲料中不同水平CGA对瓦氏雅罗鱼血清抗氧化指标的影响

Table 10 Effects of different levels of CGA in diets on antioxidant indexes in serum of amur ide

项目
Items
组别Groups PP-value
CK C1 C2 C3 C4 方差分析
ANOVA
线性
Linear
二次
Quadratic
总抗氧化能力
T-AOC/(mmol/L)
0.46±0.01a 0.47±0.01ab 0.49±0.01c 0.48±0.01bc 0.47±0.01ab 0.006 0.072 0.001
丙二醛
MDA/(nmol/mL)
63.83±1.06c 30.49±6.23ab 22.69±5.35a 28.37±5.86ab 34.75±6.92b <0.001 <0.001 <0.001
总超氧化物歧化酶
T-SOD/(U/mL)
302.35±6.47a 330.78±.6.61b 343.17±4.65c 332.35±6.19b 324.31±5.59b <0.001 0.002 <0.001
过氧化氢酶
CAT/(U/mL)
46.52±2.36a 52.92±2.82b 58.79±2.64c 56.31±2.31bc 53.52±2.93b <0.001 0.002 <0.001
谷胱甘肽过氧化物酶
GSH-Px/(U/mL)
774.63±6.77a 836.42±31.11bc 863.52±7.84c 820.01±7.03b 715.14±20.51b 0.001 0.051 0.001

2.4.2 饲料中不同水平CGA对瓦氏雅罗鱼肝胰脏抗氧化指标的影响

表11所示,瓦氏雅罗鱼肝胰脏中T-AOC,MDA含量、T-SOD、CAT和GSH-Px活性与CGA添加水平呈显著的二次曲线变化(P<0.05);与CK组相比,C1~C4组肝胰脏中CAT和GSH-Px活性显著上升(P<0.05),MDA含量显著下降(P<0.05);C1~C3组肝胰脏T-SOD活性显著上升(P<0.05)。
表11 饲料中不同水平绿原酸对瓦氏雅罗鱼肝胰脏抗氧化指标的影响

Table 11 Effects of different levels of CGA in diets on antioxidant indexes in hepatopancreas of amur ide

项目
Items
组别Groups PP-value
CK C1 C2 C3 C4 方差分析
ANOVA
线性
Linear
二次
Quadratic
总抗氧化能力
T-AOC/(mmol/g)
0.43±0.07 0.59±0.13 0.68±0.09 0.59±0.07 0.53±0.08 0.079 0.251 0.012
丙二醛
MDA/(nmol/g)
3.75±0.06c 2.79±0.09b 2.39±0.13a 2.67±0.12b 2.73±0.18b <0.001 <0.001 <0.001
总超氧化物歧化酶
T-SOD/(U/mg)
138.02±2.34a 167.92±9.13c 174.24±9.37c 159.68±10.02bc 148.32±4.98ab 0.002 0.038 <0.001
过氧化氢酶
CAT/(U/mg)
133.34±11.78a 170.05±5.96c 181.77±5.87d 161.04±6.65bc 154.15±5.04b <0.001 0.038 <0.001
谷胱甘肽过氧化物酶
GSH-Px/(U/mg)
150.82±4.46a 224.43±33.62abc 268.27±21.57ac 242.71±47.51abc 182.35±45.42ab 0.012 0.225 0.001

2.4.3 饲料中不同水平CGA对瓦氏雅罗鱼肝胰脏抗氧化相关基因mRNA表达水平的影响
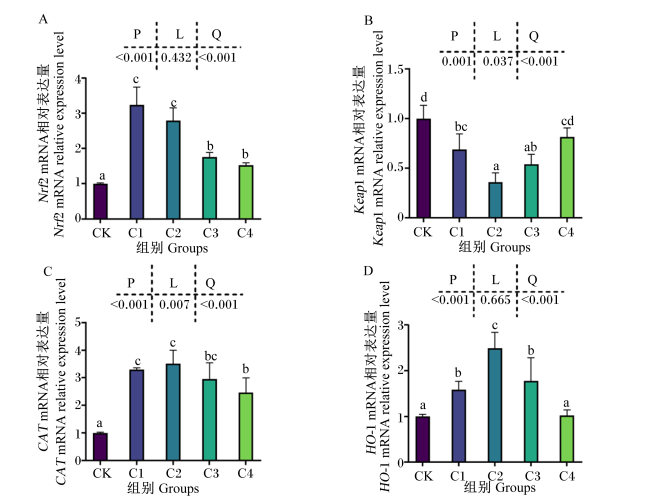
图4所示,瓦氏雅罗鱼肝胰脏中Nrf2、Keap-1、HO-1和CAT的mRNA相对表达量与CGA添加水平呈显著的二次曲线变化(P<0.05)。与CK组相比,C1~C4组肝胰脏Nrf2和CAT mRNA相对表达量显著上升(P<0.05);C1~C3组肝胰脏HO-1 mRNA相对表达量显著上升(P<0.05);与CK组相比,C1~C3组肝胰脏Keap-1 mRNA相对表达量显著下降(P<0.05)。
图4 饲料中不同水平CGA对瓦氏雅罗鱼肝胰脏抗氧化相关基因mRNA表达水平的影响

Nrf2:核因子红系2相关因子2 nuclear factor erythroid 2-related factor 2;Keap-1:Kelch样环氧氯丙烷相关蛋白-1 Kelch-like ECH-associated protein-1;HO-1:血红素氧合酶-1 heme oxygenases-1;CAT:过氧化氢酶catalase。

Fig.4 Effects of different levels of CGA in diets on hepatopancreas antioxidant-related gene mRNA expression levels of amur ide

3 讨论

3.1 饲料中不同水平CGA对瓦氏雅罗鱼生长性能及肌肉营养成分的影响

大量研究表明,饲料中添加适宜水平CGA可以促进水生动物生长性能[20-21]。本试验研究发现,饲料中添加0.04%~0.06%CGA显著提高了瓦氏雅罗鱼FBW、WGR、SGR、CF、FER和PER,表明添加CGA促进了生长性能及饲料效率。在大口黑鲈[20]的研究中表明,饲料中添加0.04%CGA能提高大口黑鲈的WGR和SGR。斑点叉尾鮰饲料中添加0.08%CGA后,与对照组相比,显著提高了FBW、WGR和SGR[21]。同样,在建鲤[17]、草鱼[26]和黄河鲤[16]的研究中均表明,饲料中添加CGA后显著提高了鱼体生长性能及饲料效率。这与本试验研究结果相似,表明饲料中添加CGA后能够促进水生动物的生长性能并提高饲料效率。这可能是因为CGA具有强抗氧化、抗炎和降脂等作用,有利于维持和改善水生动物的健康状况,从而提高水生动物的生长性能[21]
本研究中表明,饲料中添加CGA显著提高了瓦氏雅罗鱼肌肉中粗蛋白质含量。在黄河鲤的研究中发现,饲料中添加450 mg/kg CGA时,黄河鲤肌肉中粗蛋白质含量显著升高[16]。同样,在李乃顺等[26]和杨天俊等[27]的研究中均发现,饲料中添加CGA可以显著提高草鱼肌肉中粗蛋白质的含量,这与本试验的结果相似。这表明添加CGA可以改善鱼体肌肉营养价值,提升肌肉质量,而CGA如何改善水产动物肌肉中粗蛋白质的含量尚不明确,需要进一步研究。

3.2 饲料中不同水平CGA对瓦氏雅罗鱼脂代谢的影响

肝脏是水生动物脂质代谢过程中的重要器官,血清HDL-C含量下降表明脂代谢紊乱[28],血清TC、TG和LDL-C含量升高被视为脂类蓄积和脂代谢障碍的风险指标[29]。本试验中,饲料中添加0.04%CGA后瓦氏雅罗鱼血清中HDL-C含量显著上升,LDL-C、TG和TC含量显著下降,这表明饲料中添加0.04%CGA可以降低瓦氏雅罗鱼血清脂肪水平。在大口黑鲈[21]的研究中表明,添加0.04%CGA可改善由于高脂饲料引起的脂肪沉积,血清中TG、TC、LDL-C含量下降,HDL-C含量上升,这表明饲料中添加CGA可以促进水生动物脂肪分解,抑制脂质沉积。ATGL能够催化TG的水解,进而影响脂肪分解[30]。ACC是脂肪酸合成的关键限速酶[31]。FAS同样在脂肪合成中发挥重要作用,其活性受到ACC的调控[32]。PPAR-β通过调节负责编码β-氧化酶和炎症功能的靶基因表达来提高脂质利用率,PPAR-γ是脂肪细胞分化的主要调节因子,其激活与许多影响能量代谢的重要基因的表达有关。本试验结果表明,随着饲料中CGA水平的增加,瓦氏雅罗鱼肝胰脏ACC和FAS活性呈下降趋势,ATGL活性显著上升,且添加0.04%CGA时肝胰脏ACC-1、FASPPAR-γ mRNA相对表达量显著下降,PPAR-β mRNA相对表达量显著上升。
Zhao等[33]研究表明,高脂饲料中添加0.06%CGA降低了虹鳟肝脏FAS mRNA相对表达量。同样在大口黑鲈[21]的研究中表明,在高脂饲料中添加0.04%CGA显著降低了大口黑鲈肝脏FASPPAR-β mRNA相对表达量,调控了肝脏中脂质的沉积水平。这些结果与本试验结果相似,表明饲料中添加0.04%CGA可以促进瓦氏雅罗鱼脂肪分解,抑制脂肪合成,减少肝胰脏的脂肪沉积。此外,本试验结果发现,瓦氏雅罗鱼肝胰脏TG含量与血清中TG含量变化趋势一致,这说明饲料中添加0.04%CGA可以抑制瓦氏雅罗鱼肝胰脏脂肪沉积,这一结果与本试验油红染色肝胰脏脂肪含量相符合。血清与肝胰脏中脂代谢相关指标之间存在密切的关联,两者共同反映了机体脂代谢的整体状态。本试验发现,瓦氏雅罗鱼肝胰脏中TG含量的变化趋势与血清中TG含量一致,即饲料中添加0.04%的CGA显著降低了肝胰脏和血清中的TG含量。这表明CGA通过调节肝胰脏脂代谢相关指标和基因表达,减少了肝胰脏中的脂肪合成和沉积,进而降低了血清中的脂质水平。CGA通过下调肝胰脏中ACC和FAS的活性及ACCFAS mRNA相对表达量,抑制了脂肪酸的合成,减少了脂质在肝胰脏中的蓄积。CGA通过上调ATGL的活性,促进了TG的水解,加速了脂肪分解过程。CGA通过提高血清中HDL-C含量,增强了脂质向肝胰脏的转运能力,进一步减少了血清中的脂质蓄积。这些结果表明,CGA通过调节肝胰脏脂代谢相关指标和基因表达,改善了血清脂质指标,从而在整体上促进了脂代谢的平衡。综上所述,CGA通过抑制肝胰脏中脂肪合成关键指标的活性和基因表达,促进脂肪分解关键酶的活性,并调节PPAR-γPPAR-β的基因表达,减少了肝胰脏中的脂肪沉积。同时,CGA通过改善血清中HDL-C、LDL-C、TG和TC的含量,进一步降低了脂质在血液中的蓄积。血清脂质指标与肝胰脏脂代谢指标之间的关联性表明,CGA通过调节肝胰脏脂代谢,改善了机体的整体脂代谢状态,从而发挥了显著的脂代谢调节作用。这一作用机制为CGA在水产饲料中的应用提供了理论依据。

3.3 饲料中不同水平CGA对瓦氏雅罗鱼免疫功能的影响

鱼类正常的免疫功能是维持其健康生长所必需的[34]。AKP在机体清除异物和抵抗病原体感染过程中发挥着重要的作用[35-36]。LZM可以通过破坏细菌细胞壁进而清除革兰氏阳性菌和阴性菌[37]。C3和C4是补体系统的关键成员,可以通过激活补体系统来提高免疫功能[38]。抗原刺激诱导免疫球蛋白的产生,IgM是鱼类重要的免疫球蛋白[39]。本试验结果表明,饲料中添加0.04%CGA,显著提高了瓦氏雅罗鱼血清AKP、LZM活性和C3、C4和IgM含量,这表明适宜水平CGA对瓦氏雅罗鱼血清免疫功能有促进作用,且提高机体特异性免疫功能。在鲫(Carassius auratus)[40]的研究中发现,饲料中添加0.02%CGA可以显著提高血清中AKP和酸性磷酸酶(ACP)活性。同样,在大口黑鲈[21]、虹鳟[33]、泥鳅(Misgurnus anguillicaudatus)[41]和斑点叉尾鮰[20]的研究中均表明,添加CGA可以显著提高血清中C3、C4和IgM含量。本试验研究了与炎症反应密切相关的核转录因子-κB(NF-κB)信号通路。NF-κB家族存在于生物体中,作为转录因子调节许多参与炎症基因的表达[42]MyD88过表达会导致NF-κB的自发激活[43]。TNF-α是一种促炎细胞因子,而TGF-β是一种抗炎细胞因子,两者均在免疫调节中发挥重要作用[44]。本试验结果表明,饲料中添加0.04%CGA显著下调了肝胰脏NF-κBp65、MyD88和TNF-α mRNA相对表达量,上调了TGF-β mRNA相对表达量。在鲤[45]的研究中表明,饲料中添加0.04%CGA显著降低了鲤肝胰脏中NF-κBTNF-α mRNA相对表达量,同时上调TGF-β和白细胞介素-10(IL-10)抗炎细胞因子的mRNA相对表达量。因此,NF-κB信号通路可能是CGA调节炎症反应的关键信号通路。同样在斑点叉尾鮰[20]的研究中表明,氧化鱼油组NF-κBTNF-α mRNA相对表达量显著上调,而添加CGA显著下调了NF-κBTNF-α mRNA相对表达量。此外,在锦鲤(Cyprinus carpio)[46]、虹鳟[33]和大口黑鲈[21]的研究中均表明,饲料中添加CGA可以增强免疫功能,抑制炎症相关基因表达,减少炎症反应的发生。这说明CGA可通过抑制免疫细胞和免疫因子并活化免疫抑制因子等一系列抗炎反应,激活动物机体细胞免疫及体液免疫进而增强动物机体免疫功能。CGA通过提高免疫相关指标和调节炎症相关基因表达,从血清中酶活性到肝胰脏炎症基因调控全面增强了鱼类的免疫功能。血清中AKP、LZM活性及C3、C4和IgM的含量提高,直接增强了机体的免疫功能,而通过调控肝胰脏中NF-κBp65、MyD88、TNF-αTGF-β mRNA相对表达量显著抑制了肝胰脏炎症反应的发生,进一步维持了免疫系统的平衡。CGA通过抑制NF-κB信号通路的激活,减少促炎因子的产生,同时促进抗炎因子的表达,从而在细胞免疫和体液免疫2个层面上增强了机体的免疫功能。这种双重作用机制使得CGA在提高鱼类免疫机能方面表现出显著的效果。综上所述,CGA通过提高免疫相关指标、调节炎症相关基因表达以及抑制炎症反应,全面增强了鱼类的免疫功能。这一作用机制不仅体现在免疫相关指标的提高上,还通过调控炎症相关基因的表达,从分子水平上揭示了CGA增强免疫机能的深层机理。

3.4 饲料中不同水平CGA对瓦氏雅罗鱼抗氧化能力的影响

抗氧化能力是衡量机体健康状态的重要参数[47]。MDA是评价机体氧化损伤的关键标志物[48]。T-AOC可以反映生物体内抗氧化物质和抗氧化酶所构成的总抗氧化能力水平[49];T-SOD可以将体内过氧化物和自由基等活性氧(ROS)转化为H2O2,CAT又可以催化H2O2生成水和氧气[50];GSH-Px能够将过氧化物转化为羟基化合物,进而保护机体免受氧化损伤[51]。本试验结果发表明,饲料中添加0.04%~0.06%CGA,瓦氏雅罗鱼血清MDA含量显著下降,CAT、T-AOC、T-SOD和GSH-Px活性显著上升,表明适宜水平CGA可以提高瓦氏雅罗鱼抗氧化能力。在锦鲤[46]的研究中表明,饲料中添加0.04%CGA,血清CAT、GSH-Px活性和GSH含量明显升高,MDA含量降低。在鲤[45]的研究中表明,饲料中添加0.02%和0.08%的CGA显著提高血清中T-AOC及SOD、CAT和GSH-Px活性。此外在大口黑鲈研究中表明,CGA可以提高血清抗氧化相关酶活,增强机体抗氧化能力[21]。Keap1-Nrf2信号通路是动物体内一个关键的内源性抗氧化途径。在氧化应激下,ROS的产生激增,促进Nrf2从Keap1中解离。随后,Nrf2易位到细胞核,调节抗氧化基因的表达,从而对抗氧化应激[52]HO-1是Nrf2的关键靶基因,它可以在氧化应激时间被迅速激活,并抑制氧化应激反应的发生,发挥保护作用[53]CAT是动物酶促抗氧化防御的关键基因,负责中和过量的ROS[54]。本试验结果表明,饲料中添加0.02%~0.06% CGA,瓦氏雅罗鱼肝胰脏MDA含量显著下降,T-AOC,CAT、T-SOD和GSH-Px活性显著上升。此外,饲料中添加0.04%CGA显著提高瓦氏雅罗鱼肝胰脏Nrf2、HO-1和CAT mRNA相对表达量,下调Keap1 mRNA相对表达量。这说明饲料中添加CGA后激活了Keap1-Nrf2信号通路,调节抗氧化相关基因的表达,从而增强了机体的抗氧化能力。在泥鳅[41]的研究中表明,饲料中添加0.04%~0.06%CGA可以显著增强泥鳅肝脏中GSH-Px、SOD的活性和T-AOC以及谷胱甘肽(GSH)含量,降低MDA含量,这与本试验结果相似。在虹鳟[33]的研究中表明,添加0.06%CGA可以增强肝胰脏抗氧化相关酶活性,提高肝胰脏Nrf2、HO-1和SOD mRNA相对表达量。此外,在大口黑鲈[21]、鲤[45]和花鲈(Lateolabrax maculatus)[55]的研究中均表明,CGA可以增强肝胰脏T-AOC和SOD活性,降低MDA含量,并上调Nrf2、SODCATGSH-PxHO-1 mRNA相对表达量,减少氧化应激反应的发生,增强机体抗氧化能力。CGA通过提高抗氧化指标和调节抗氧化相关基因表达,从酶活性到基因调控全面增强了鱼类的抗氧化能力。血清和肝胰脏中T-AOC,T-SOD、CAT和GSH-Px活性的升高及MDA含量的下降,直接增强了机体的抗氧化能力,而通过调控肝胰脏中Nrf2、HO-1、CATKeap1的表达,激活了Keap1-Nrf2信号通路,进一步增强了机体的抗氧化反应。CGA通过抑制Keap1的表达,促进Nrf2的核转位,进而激活下游抗氧化基因的表达,从而在酶活性和基因表达2个层面上增强了机体的抗氧化能力。这种双重作用机制使得CGA在提高鱼类抗氧化机能方面表现出显著的效果。综上所述,CGA通过提高抗氧化相关指标、调节抗氧化相关基因表达以及激活Keap1-Nrf2信号通路,全面增强了鱼类的抗氧化能力。这一作用机制不仅体现在抗氧化酶活性的提高上,还通过调控抗氧化相关基因的表达,从分子水平上揭示了CGA增强抗氧化机能的深层机理。CGA的特殊分子结构(含有5个活性羟基和1个羧基)使其能够与自由基发生反应,形成具有抗氧化作用的氢自由基,从而降低羟基和超氧阴离子的活性,进一步发挥抗氧化作用。

4 结论

综上所述,饲料中添加CGA的适宜水平为0.04%,可提高瓦氏雅罗鱼生长性能及饲料效率,通过酶活性和基因表达调控等多种途径,抑制肝胰脏脂肪沉积,促进脂肪分解从而防止鱼体脂质过氧化,激活NF-κB信号通路减少炎症反应的发生,激活Keap1-Nrf2信号通路提高抗氧化能力。
[1]
NAVEED M, HEJAZI V, ABBAS M, et al. Chlorogenic acid (CGA):a pharmacological review and call for further research[J]. Biomedicine & Pharmacotherapy, 2018,97:67-74.

[2]
MIAO M S, XIANG L N. Pharmacological action and potential targets of chlorogenic acid[J]. Advances in Pharmacology, 2020,87:71-88.

[3]
SATO Y, ITAGAKI S, KUROKAWA T, et al. In vitro and in vivo antioxidant properties of chlorogenic acid and caffeic acid[J]. International Journal of Pharmaceutics, 2011, 403(1/2):136-138.

[4]
TOŠOVIĆ J, MARKOVIĆ S, DIMITRIĆ MARKOVIĆ J M, et al. Antioxidative mechanisms in chlorogenic acid[J]. Food Chemistry, 2017,237:390-398.

[5]
PONTES P V, MOREIRA R F A, TRUGO L C, et al. The content of chlorogenic acids in tropical fruits[J]. Journal of the Science of Food and Agriculture, 2002, 82(10):1177-1181.

[6]
KASAI H, FUKADA S, YAMAIZUMI Z, et al. Action of chlorogenic acid in vegetables and fruits as an inhibitor of 8-hydroxydeoxyguanosine formation in vitro and in a rat carcinogenesis model[J]. Food and Chemical Toxicology, 2000, 38(5):467-471.

[7]
ZHANG B, YANG R Y, ZHAO Y, et al. Separation of chlorogenic acid from honeysuckle crude extracts by macroporous resins[J]. Journal of Chromatography B, 2008, 867(2):253-258.

[8]
HULME A C. The isolation of chlorogenic acid from the apple fruit[J]. Biochemical Journal, 1953, 53(3):337-340.

PMID

[9]
AWAD M A, DE JAGER A, VAN WESTING L M. Flavonoid and chlorogenic acid levels in apple fruit:characterisation of variation[J]. Scientia Horticulturae, 2000, 83(3/4):249-263.

[10]
GASTÉLUM-ESTRADA A, RABADÁN-CHÁVEZ G, REZA-ZALDÍVAR E E, et al. Biofortified beverage with chlorogenic acid from stressed carrots:anti-obesogenic,antioxidant,and anti-inflammatory properties[J]. Foods, 2023, 12(21):3959.

[11]
CHAOWUTTIKUL C, PALANUVEJ C, RUANGRUNGSI N. Pharmacognostic specification,chlorogenic acid content,and in vitro antioxidant activities of Lonicera japonica flowering bud[J]. Pharmacognosy Research, 2017, 9(2):128-132.

[12]
LI H, CHEN B, YAO S Z. Application of ultrasonic technique for extracting chlorogenic acid from Eucommia ulmodies Oliv.(E.ulmodies)[J]. Ultrasonics Sonochemistry, 2005, 12(4):295-300.

[13]
LIANG N J, KITTS D D. Role of chlorogenic acids in controlling oxidative and inflammatory stress conditions[J]. Nutrients, 2015, 8(1):16.

[14]
MENG S X, CAO J M, FENG Q, et al. Roles of chlorogenic acid on regulating glucose and lipids metabolism:a review[J]. Evidence-Based Complementary and Alternative Medicine, 2013,2013:801457.

[15]
SUN W T, LI X Q, XU H B, et al. Effects of dietary chlorogenic acid on growth,flesh quality and serum biochemical indices of grass carp(Ctenopharyngodon idella)[J]. Aquaculture Nutrition, 2017, 23(6):1254-1263.

[16]
伏桂华, 石英, 王守志. 绿原酸对黄河鲤鱼生长性能、非特异性免疫功能和肌肉品质的影响[J]. 黑龙江畜牧兽医, 2018(20):179-182.

FU G H, SHI Y, WANG S Z. The effect of chlorogenic acid on the growth performance,non-specific immune property and meat quality of Cyprinus carpio haematoperus[J]. Heilongjiang Animal Science and Veterinary Medicine, 2018(20):179-182. (in Chinese)

[17]
张纯, 温安祥. 绿原酸对建鲤生长、非特异性免疫功能和抗氧化能力的影响[J]. 四川农业大学学报, 2012, 30(1):92-97.

ZHANG C, WEN A X. Different of chlorogenic acid doses on growth performance,non-specific immunity and antioxidant functions of Cyprinus carpio var.Jian[J]. Journal of Sichuan Agricultural University, 2012, 30(1):92-97. (in Chinese)

[18]
陈晓安. 绿原酸对青鱼生长、免疫及肌肉品质的影响[D]. 硕士学位论文. 长沙: 湖南农业大学, 2014.

CHEN X A. Effects of chlorogenic acid on growth performance,non-specific immunity funtions and meat quality of Mylopharyngodon piceus (Richardson)[D]. Master’s Thesis. Changsha: Hunan Agricultural University, 2014. (in Chinese)

[19]
WANG Y, LI Z, LI J, et al. Effects of dietary chlorogenic acid on growth performance,antioxidant capacity of white shrimp Litopenaeus vannamei under normal condition and combined stress of low-salinity and nitrite[J]. Fish & Shellfish Immunology, 2015, 43(2):337-345.

[20]
ZHANG J Z, WANG Z Q, SHI Y, et al. Protective effects of chlorogenic acid on growth,intestinal inflammation,hepatic antioxidant capacity,muscle development and skin color in channel catfish Ictalurus punctatus fed an oxidized fish oil diet[J]. Fish & Shellfish Immunology, 2023,134:108511.

[21]
YIN P, XIE S W, ZHUANG Z X, et al. Chlorogenic acid improves health in juvenile largemouth bass (Micropterus salmoides) fed high-fat diets:involvement of lipid metabolism,antioxidant ability,inflammatory response,and intestinal integrity[J]. Aquaculture, 2021,545:737169.

[22]
LI D L, ZHU R, MENG S T, et al. N-acetylcysteine increased the growth performance of Leuciscus waleckii by improving mitochondrial function,enhancing antioxidant and anti-inflammatory,and inhibiting apoptosis in the hepatopancreas and intestine[J]. Aquaculture Reports, 2025,40:102613.

[23]
左亚男, 郑伟, 夏长革, 等. 饲料赖氨酸水平对雅罗鱼生长、饲料利用及肌肉营养成分的影响[J]. 饲料工业, 2017, 38(8):29-35.

ZUO Y N, ZHENG W, XIA C G, et al. Effects of lysine levels on growth,feed utilization and nutritional composition of Leuciscus[J]. Feed Industry, 2017, 38(8):29-35. (in Chinese)

[24]
ZHU R, LI D L, ZHANG B Y, et al. Improving effect of N-acetylcysteine on growth and intestinal health in juvenile Cyprinus carpio involve the Nrf2/MAPK/NF-κB pathways[J]. Aquaculture, 2024,589:740971.

[25]
LI L, WANG Y T, MENG S T, et al. Effects of single or conjoint administration of poly-β-hydroxybutyrate and Bacillus subtilis on growth,antioxidant capacity and apoptosis of common carp (Cyprinus carpio)[J]. Animal Feed Science and Technology, 2024,318:116110.

[26]
李乃顺, 冷向军, 李小勤, 等. 绿原酸对草鱼鱼种生长、非特异性免疫和肉质的影响[J]. 水生生物学报, 2014, 38(4):619-626.

LI N S, LENG X J, LI X Q, et al. The effects of chlorogenic acid on the growth,non-specific immune index and the meat quality of juvenile grass carp (Ctenopharyngodon idellus)[J]. Acta Hydrobiologica Sinica, 2014, 38(4):619-626. (in Chinese)

[27]
杨天俊, 陈彦良, 刘文舒, 等. 高脂饲料中添加绿原酸对草鱼生长性能和脂质代谢的影响[J]. 动物营养学报, 2018, 30(8):3219-3228.

YANG T J, CHEN Y L, LIU W S, et al. Effects of chlorogenic acid on growth performance and lipid metabolism in grass carp (Ctenopharyngodon idellus) fed with high fat feed[J]. Journal of Animal Nutrition, 2018, 30(8):3219-3228. (in Chinese)

[28]
HUI N, BARTER P J, ONG K L, et al. Altered HDL metabolism in metabolic disorders:insights into the therapeutic potential of HDL[J]. Clinical Science, 2019, 133(21):2221-2235.

[29]
MING J H, WANG T, WANG T H, et al. Effects of dietary berberine on growth performance,lipid metabolism,antioxidant capacity and lipometabolism-related genes expression of AMPK signaling pathway in juvenile black carp (Mylopharyngodon piceus) fed high-fat diets[J]. Fish Physiology and Biochemistry, 2023, 49(5):769-786.

[30]
MIKŁOSZ A, ŁUKASZUK B, BARANOWSKI M, et al. Assessment of the main compounds of the lipolytic system in treadmill running rats:different response patterns between the right and left ventricle[J]. International Journal of Molecular Sciences, 2019, 20(10):2556.

[31]
VALVO V, IESATO A, KAVANAGH T R, et al. Fine-tuning lipid metabolism by targeting mitochondria-associated acetyl-CoA-carboxylase 2 in BRAFV600E papillary thyroid carcinoma[J]. Thyroid, 2021, 31(9):1335-1358.

[32]
XIE J, WANG Y, JIANG W W, et al. Moringa oleifera leaf petroleum ether extract inhibits lipogenesis by activating the AMPK signaling pathway[J]. Frontiers in Pharmacology, 2018,9:1447.

[33]
ZHAO W, YAO R, WEI H L, et al. Astaxanthin,bile acid and chlorogenic acid attenuated the negative effects of high-fat diet on the growth,lipid deposition,and liver health of Oncorhynchus mykiss[J]. Aquaculture, 2023,567:739255.

[34]
尚国俊, 张立全, 佟娜, 等. 新型替抗饲料添加剂绿原酸对水生动物的影响[J]. 中国饲料, 2024,(15):104-110.

SHANG G J, ZHANG L Q, TONG N, et al. Effects of the new antimicrobial feed additive chlorogenic acid on aquatic animals[J]. Chinese Feed, 2024,(15):104-110. (in Chinese)

[35]
YIN Y W, ZHANG P J, YUE X Y, et al. Effect of sub-chronic exposure to lead (Pb) and Bacillus subtilis on Carassius auratus gibelio:bioaccumulation,antioxidant responses and immune responses[J]. Ecotoxicology and Environmental Safety, 2018,161:755-762.

[36]
LIU F, QU Y K, WANG A M, et al. Effects of carotenoids on the growth performance,biochemical parameters,immune responses and disease resistance of yellow catfish (Pelteobagrus fulvidraco) under high-temperature stress[J]. Aquaculture, 2019,503:293-303.

[37]
NAYAK S, AL ASHHAB A, ZILBERG D, et al. Dietary supplementation with omega-6 LC-PUFA-rich microalgae regulates mucosal immune response and promotes microbial diversity in the zebrafish gut[J]. Biology, 2020, 9(6):119.

[38]
LI X H, FENG C, SHA H, et al. Tandem mass tagging-based quantitative proteomics analysis reveals damage to the liver and brain of Hypophthalmichthys molitrix exposed to acute hypoxia and reoxygenation[J]. Antioxidants, 2022, 11(3):589.

[39]
KIM J H, KANG J C. The immune responses and expression of metallothionein (MT) gene and heat shock protein 70 (HSP 70) in juvenile rockfish,sebastes schlegelii,exposed to waterborne arsenic (As3+)[J]. Environmental Toxicology and Pharmacology, 2016,47:136-141.

[40]
JIN X X, SU M Y, LIANG Y X, et al. Effects of chlorogenic acid on growth,metabolism,antioxidation,immunity,and intestinal flora of crucian carp (Carassius auratus)[J]. Frontiers in Microbiology, 2022,13:1084500.

[41]
刘晓蕊, 马喜波, 张南, 等. 饲料中绿原酸对泥鳅生长性能、消化酶活性、免疫功能及抗氧化能力的影响[J]. 水产学报, 2023, 47(10):97-110.

LIU X R, MA X B, ZHANG N, et al. Effects of chlorogenic acid in feed on the growth performance,digestive enzyme activity,immune function,and antioxidant capacity of loach (Misgurnus anguillicaudatus)[J]. Journal of Fisheries of China, 2023, 47(10):97-110. (in Chinese)

[42]
HAYDEN M S, GHOSH S. NF-κB in immunobiology[J]. Cell Research, 2011, 21(2):223-244.

DOI PMID

[43]
DEGUINE J, BARTON G M. MYD88:a central player in innate immune signaling[J]. F1000Prime Reports, 2014,6:97.

[44]
AKDIS M, AAB A, ALTUNBULAKLI C, et al. Interleukins (from IL-1 to IL-38),interferons,transforming growth factor β,and TNF-α:receptors,functions,and roles in diseases[J]. The Journal of Allergy and Clinical Immunology, 2016, 138(4):984-1010.

[45]
SHANG G J, LIU S Y, ZHU R, et al. Chlorogenic acid improves common carp (Cyprinus carpio) liver and intestinal health through Keap-1/Nrf2 and NF-κB signaling pathways:growth performance,immune response and antioxidant capacity[J]. Fish & Shellfish Immunology, 2024,146:109378.

[46]
XU G L, XING W, YU H H, et al. Evaluation of chlorogenic acid supplementation in koi (Cyprinus carpio) diet:growth performance,body color,antioxidant activity,serum biochemical parameters,and immune response[J]. Aquaculture Nutrition, 2022,2022:2717003.

[47]
WANG J, MAI K S, AI Q H. Conventional soybean meal as fishmeal alternative in diets of Japanese seabass (Lateolabrax japonicus):effects of functional additives on growth,immunity, antioxidant capacity and disease resistance[J]. Antioxidants, 2022, 11(5):951.

[48]
XU Z B, QIU Z Y, LIU Q, et al. Converting organosulfur compounds to inorganic polysulfides against resistant bacterial infections[J]. Nature Communications, 2018, 9(1):3713.

DOI PMID

[49]
REN W K, YIN Y L, LIU G, et al. Effect of dietary arginine supplementation on reproductive performance of mice with porcine circovirus type 2 infection[J]. Amino Acids, 2012, 42(6):2089-2094.

DOI PMID

[50]
ZHANG J W, LIU D M, ZHU D, et al. Endoplasmic reticulum subproteome analysis reveals underlying defense mechanisms of wheat seedling leaves under salt stress[J]. International Journal of Molecular Sciences, 2021, 22(9):4840.

[51]
LIGUORI I, RUSSO G, CURCIO F, et al. Oxidative stress,aging,and diseases[J]. Clinical Interventions in Aging, 2018,13:757-772.

[52]
SYKIOTIS G P. Keap1/Nrf2 signaling pathway[J]. Antioxidants, 2021, 10(6):828.

[53]
YE Q Y, HUANG B X, ZHANG X D, et al. Astaxanthin protects against MPP+-induced oxidative stress in PC12 cells via the HO-1/NOX2 axis[J]. BMC Neuroscience, 2012,13:156.

[54]
FAROMBI E O, ADELOWO O A, AJIMOKO Y R. Biomarkers of oxidative stress and heavy metal levels as indicators of environmental pollution in African cat fish (Clarias gariepinus) from Nigeria Ogun River[J]. International Journal of Environmental Research and Public Health, 2007, 4(2):158-165.

DOI PMID

[55]
MA J R, KONG L M, LIN H, et al. Effects of chlorogenic acid supplementation in high-fat diet on antioxidant capacity,immunity,and intestinal health of spotted sea bass (Lateolabrax maculatus)[J]. Aquaculture International, 2024, 32(4):4159-4176.

文章导航

/