研究论文

黄孢原毛平革菌发酵去皮蔗渣的固态发酵条件研究

  • 姚毅沛 , 1, 2, 3 ,
  • 魏才翔 1 ,
  • 梁煜阳 1 ,
  • 冯安东 1 ,
  • 顾啟超 1 ,
  • 黄建铭 1 ,
  • 颜志林 1 ,
  • 韦荃钟 1 ,
  • 覃毅 1 ,
  • 邹彩霞 , 1, 2, 3, * ,
  • 周俊华 1
展开
  • 1 广西大学动物科学技术学院,南宁 530004
  • 2 广西畜禽繁育与疾病防控重点实验室,南宁 530004
  • 3 广西扶绥乳业科技小院,崇左 532100
* 邹彩霞,研究员,博士生导师,E-mail:

姚毅沛(1999—),男,河南平顶山人,硕士研究生,研究方向为动物营养与饲料科学。E-mail:

Office editor: 武海龙

收稿日期: 2024-12-24

  网络出版日期: 2025-09-12

基金资助

十四五国家重点研发计划项目(2022YFD1300602)

广西科技计划项目(桂科AD23026011)

Study on Solid-State Fermentation Conditions of Phanerochaete chrysosporium Fermenting Peeled Bagasse

  • YAO Yipei , 1, 2, 3 ,
  • WEI Caixiang 1 ,
  • LIANG Yuyang 1 ,
  • FENG Andong 1 ,
  • GU Qichao 1 ,
  • HUANG Jianming 1 ,
  • YAN Zhilin 1 ,
  • WEI Quanzhong 1 ,
  • QIN Yi 1 ,
  • ZOU Caixia , 1, 2, 3, * ,
  • ZHOU Junhua 1
Expand
  • 1 College of Animal Science and Technology, Guangxi University, Nanning 530004, China
  • 2 Guangxi Key Laboratory of Animal Breeding, Disease Control and Prevention, Nanning 530004, China
  • 3 Science and Technology Backyard of Guangxi Fusui Dairy Industry, Chongzuo 532100, China
* professor, E-mail:

Received date: 2024-12-24

  Online published: 2025-09-12

摘要

试验旨在研究黄孢原毛平革菌发酵去皮蔗渣的固态发酵条件。试验采用4因素3水平正交试验设计,4个因素分别为黄孢原毛平革菌添加量(1%、3%、5%)、发酵时间(15、30、45 d)、蔗糖添加量(1%、3%、5%)、初始pH(4、5、6),每个因素3个水平,共分为9组(A组~I组),进行固态密闭发酵。结果表明:1)F组发酵去皮蔗渣的中性洗涤纤维(NDF)和半纤维素(HC)含量显著低于其他各组(P<0.05),E组和G组发酵去皮蔗渣的酸性洗涤纤维(ADF)含量显著低于其他各组(P<0.05),I组发酵去皮蔗渣的纤维素(CL)含量显著低于B组、D组、F组和H组(P<0.05),E组发酵去皮蔗渣的酸性洗涤木质素(ADL)含量显著低于C组、D组、G组、H组和I组(P<0.05)。2)F组发酵去皮蔗渣的氨态氮(NH3-N)含量显著低于其他各组(P<0.05),I组发酵去皮蔗渣的乳酸(LA)含量显著高于其他各组(P<0.05),E组发酵去皮蔗渣的pH显著低于其他各组(P<0.05),A组、E组和F组的发酵去皮蔗渣中均未检测出丁酸(BA)含量。3)B组的微生物Shannon指数显著高于E组(P<0.05),Simpson指数显著高于E组和H组(P<0.05)。在门水平上,厚壁菌门(Bacillota)相对丰度表现为B组>E组>H组;在属水平上,液体乳杆菌属(Liquorilactobacillus)相对丰度表现为E组>B组>H组;在种水平上,短小芽孢杆菌(Bacillus pumilus)相对丰度表现为E组>H组>B组。由此可见,通过正交分析结果以及综合评分表明,黄孢原毛平革菌添加量为3%、发酵时间为45 d、蔗糖添加量为5%、初始pH为4时为黄孢原毛平革菌发酵去皮蔗渣的最佳发酵条件。在此条件下,去皮蔗渣固态发酵的营养价值、发酵品质以及有益菌的相对丰度最佳。

本文引用格式

姚毅沛 , 魏才翔 , 梁煜阳 , 冯安东 , 顾啟超 , 黄建铭 , 颜志林 , 韦荃钟 , 覃毅 , 邹彩霞 , 周俊华 . 黄孢原毛平革菌发酵去皮蔗渣的固态发酵条件研究[J]. 动物营养学报, 2025 , 37(9) : 6434 -6447 . DOI: 10.12418/CJAN2025.522

Abstract

This experiment aimed to study the solid-state fermentation conditions of Phanerochaete chrysosporium fermenting peeled bagasse. The experiment used a four factors and three levels orthogonal experimental design, four factors were Phanerochaete chrysosporium addition amount (1%, 3% and 5%), fermentation time (15, 30 and 45 d), sucrose addition amount (1%, 3% and 5%) and initial pH (4, 5 and 6), with three levels in each factor, and a total of 9 groups (group A to group I), to solid-state closed fermentation. The results showed as follows: 1) the contents of neutral detergent fiber (NDF) and hemicellulose (HC) in fermented peeled bagasse of group F were significantly lower than those of other groups (P<0.05), the content of acid detergent fiber (ADF) in fermented peeled bagasse of groups E and G was significantly lower than that of other groups (P<0.05), the content of cellulose (CL) in fermented peeled bagasse of group I was significantly lower than that of groups B, D, F and H (P<0.05), and the content of acid detergent lignin (ADL) in fermented peeled bagasse of group E was significantly lower than that of groups C, D, G, H and I (P<0.05). 2) The content of ammonia nitrogen (NH3-N) in fermented peeled bagasse of group F was significantly lower than that of other groups (P<0.05), the content of lactic acid (LA) in fermented peeled bagasse of group I was significantly higher than that of other groups (P<0.05), the fermented peeled bagasse pH of group E was significantly lower than that of other groups (P<0.05), and the content of butyric acid (BA) in fermented peeled bagasse was no detected in groups A, E and F. 3) The microbial Shannon index of group B was significantly higher than that of group E (P<0.05), and the Simpson index was significantly higher than that of groups E and H (P<0.05). At the phylum level, the Bacillota relative abundance showed group B>group E>group H; at the genus level, the Liquorilactobacillus relative abundance showed group E>group B>group H; at the species level, the Bacillus pumilus relative abundance showed group E>group H>group B. In conclusion, the orthogonal analysis results and comprehensive scoring showed that the 3% Phanerochaete chrysosporium addition amount, 45 d fermentation time, 5% sucrose addition amount and 4 initial pH are the optimal fermentation conditions for the fermentation of peeled bagasse fermented by Phanerochaete chrysosporium. Under these conditions, the nutritional value, fermentation quality and the relative abundance of beneficial bacteria of the solid-state fermentation of peeled bagasse are the best.

甘蔗是全球重要的糖类原料,我国甘蔗产量位居于世界第3位,仅次于巴西和印度[1],广西是我国第一大蔗糖生产基地,其种植面积和蔗糖产量均占全国60%以上[2]。甘蔗在加工榨糖过程中会产生大量副产物,主要是蔗渣,每1 000 t甘蔗榨糖可产生270 t蔗渣[3]。我国每年会产生2 500万t以上的蔗渣,其中约90%被用于糖厂锅炉发电和供应蒸汽的燃料[4]。这种处理方式利用形式简单,产生的价值较低,容易造成资源浪费以及环境污染。除用做燃料以外,蔗渣的另一主要利用途径是造纸,但造纸时蔗渣需要进行脱髓预处理,即造纸所用的原料主要为蔗渣的皮质部,而髓质部,即去皮蔗渣,由于细胞种类和纤维长度的问题很难被利用于造纸,造成去皮蔗渣资源的浪费[5-6]。因此,如何提高去皮蔗渣的附加值,将其充分利用,成为了一个亟待解决的问题。蔗渣具有低蛋白质(粗蛋白质含量<3%,风干基础)、高纤维[半纤维素(HC)含量>35%、纤维素(CL)含量>40%、酸性洗涤木质素(ADL)含量>15%,风干基础]的类粗饲料特点,由于木质素含量高,导致其饲喂时的有机物消化率仅有20%~30%[7]。同时,高纤维的特点也导致蔗渣的适口性较差[8]。因此,以蔗渣作为粗饲料时,直接饲喂的效益较差,饲料化应用有一定难度。
研究发现,利用白腐菌固态发酵粗饲料,可将其转化为富含菌体蛋白、微生物等成分的优质生物蛋白质饲料,为动物养殖提供更理想的饲料来源[9]。黄孢原毛平革菌(Phanerochaete chrysosporium)是白腐菌的一种,属于真菌,是目前研究木质素降解的模式菌[10]。黄孢原毛平革菌可有效改善蔗渣木质素含量过高的问题,同时在粗饲料密闭发酵过程中,由于乳酸菌和其他微生物的活动,还会有pH、氨态氮(NH3-N)、乳酸(LA)、挥发性脂肪酸(VFA)等指标的变化。经黄孢原毛平革菌发酵后的粗饲料可用于牛、羊等反刍动物的饲喂[11]。由于白腐菌是好氧菌,因此目前对于白腐菌发酵蔗渣的研究多停留在好氧条件下进行发酵[12-13]。但在生产中粗饲料一般是经过厌氧发酵,利用乳酸菌的活动来进行发酵,而利用白腐菌进行发酵就要进行好氧+厌氧的二段发酵,造成操作更加复杂的问题。为解决这一问题,本试验在前期低氧发酵可行性探究的基础上,研究黄孢原毛平革菌添加量、发酵时间、蔗糖添加量和初始pH对固态发酵去皮蔗渣常规养分、发酵指标和微生物区系的影响,为去皮蔗渣资源的开发利用提供新思路。

1 材料与方法

1.1 试验材料

去皮蔗渣取自广西某糖厂,经风干后使用,其营养水平见表1。黄孢原毛平革菌购自于北京某公司,保藏编号(CHCC336258)。其他主要材料包括改良马丁培养基(蛋白胨5 g、酵母浸粉2 g、葡萄糖20 g、KH2PO3 1 g、MgSO4 0.5 g、琼脂15 g、蒸馏水1 L)、PDA培养基、PDB培养基、冰醋酸(分析纯)、蔗糖(分析纯)、蒸馏水、甘油。
表1 去皮蔗渣营养水平(风干基础)

Table 1 Nutrient levels of peeled bagasse (air-dry basis) %

项目Items 含量Content
干物质DM 91.43±1.23
中性洗涤纤维NDF 87.61±0.15
酸性洗涤纤维ADF 49.53±0.50
半纤维素HC 33.20±0.48
纤维素CL 41.52±0.21
酸性洗涤木质素ADL 10.84±0.72

实测值 Measured values。

1.2 试验方法

1.2.1 黄孢原毛平革菌的活化和扩繁

将黄孢原毛平革菌用蒸馏水溶解后,倒入PDA培养基中进行活化和扩繁,通过4区画线法扩繁2~3代富有活力后,转入PDB培养基中,设定摇床转速为140 r/min,温度为27 ℃,同时加入玻璃珠防止其凝结成菌团,培养2~3 d待菌液浑浊后,按照1∶1的比例加入20%甘油,置于-80 ℃的冰箱冷冻保藏,备用。

1.2.2 黄孢原毛平革菌的计数

使用改良马丁培养基对黄孢原毛平革菌菌液进行计数,并根据计数结果将保藏的菌液调节至1.5×10⁸ CFU/mL。

1.2.3 去皮蔗渣固态发酵正交试验

取一定量去皮蔗渣调节水分至60%~70%,放入发酵罐中进行密闭低氧固态发酵,样品密度约为500 g/L,使其内部仍残留部分氧气用于黄孢原毛平革菌在发酵前期进行活动。试验采用4因素3水平正交试验设计,分别设置黄孢原毛平革菌添加量、发酵时间、蔗糖添加量、初始pH 4个因素,每个因素3个水平,共分为9组,每组3个重复。黄孢原毛平革菌添加量和蔗糖添加量均为去皮蔗渣干物质质量的百分比。正交试验因素和水平见表2,正交试验设计见表3
表2 正交试验因素和水平

Table 2 Factors and levels of orthogonal experiment

因素
Factors
水平Levels
1 2 3
黄孢原毛平革菌添加量Phanerochaete chrysosporium addition amount/% (A) 1 3 5
发酵时间Fermentation time/d (B) 15 30 45
蔗糖添加量Sucrose addition amount/% (C) 1 3 5
初始pH Initial pH (D) 4 5 6
表3 正交试验设计

Table 3 Orthogonal experiment design

组别
Groups
因素Factors
黄孢原毛平革菌添加量
Phanerochaete chrysosporium
addition amount/%
发酵时间
Fermentation
time/d
蔗糖添加量
Sucrose addition
amount/%
初始pH
Initial pH
A 1 15 1 4
B 1 30 3 5
C 1 45 5 6
D 3 15 3 6
E 3 30 5 4
F 3 45 1 5
G 5 15 5 5
H 5 30 1 6
I 5 45 3 4

1.3 样品采集

开罐后取中间部分去皮蔗渣保留,并取其中20 g,加入180 mL林格氏液,浸泡30 min,搅拌1 min后用3层纱布过滤后分别装入15和45 mL的离心管中。15 mL离心管中的菌液于-20 ℃冷冻保藏,用于测定发酵指标;45 mL离心管中的菌液于-80 ℃冷冻保藏,用于测定微生物多样性。

1.4 样品测定

1.4.1 常规养分含量

样品在105 ℃烘箱烘4 h后,调节烘箱温度至65 ℃烘72 h,之后取出回潮24 h,利用粉碎机粉碎过40目筛后用于常规养分含量测定。中性洗涤纤维(NDF)、酸性洗涤纤维(ADF)含量分别参照GB/T 20806—2022、NY/T 1459—2022,采用全自动纤维分析仪(F2000,海能未来技术集团股份有限公司)测定;CL和ADL含量采用范式(Van Soest)法[14]进行测定;HC计算公式如下:
HC(%)=NDF-ADF。

1.4.2 发酵指标

pH(开罐pH)采用pH测定仪在室温25 ℃下测定;NH3-N含量采用苯酚-次氯酸盐法[15]测定;LA含量采用对羟基联苯比色法[16]测定;VFA[包括乙酸(AA)、丙酸(PA)、丁酸(BA)]含量参照Erwin等[17]的方法,使用气相色谱仪(7820A,安捷伦科技有限公司)测定。

1.4.3 微生物区系

选取具有代表性的B组、E组和H组,进行二代扩增子16S rRNA测序,每组3个重复,检测方为上海凌恩生物科技有限公司。

1.5 数据分析

试验数据采用Excel 2019初步整理后,用SPSS 26.0统计软件进行单因素方差分析,差异显著者采用Duncan氏法进行多重比较,结果以平均值±标准误表示。P>0.05表示差异不显著,P<0.05表示差异显著。正交试验分析采用极差法对4因素3水平进行主次顺序分析,极差(R)值越大则影响程度越大。

2 结果

2.1 不同发酵条件对发酵去皮蔗渣常规养分含量的影响

表4可知,与去皮蔗渣原料相比,各组发酵去皮蔗渣的NDF含量均显著降低(P<0.05)。F组发酵去皮蔗渣的NDF含量显著低于其他各组(P<0.05)。正交试验分析结果表明,对发酵去皮蔗渣NDF含量影响最大的因素为黄孢原毛平革菌添加量,4个影响因素的影响大小为黄孢原毛平革菌添加量>蔗糖添加量>初始pH>发酵时间。
表4 发酵去皮蔗渣常规养分含量正交试验结果及分析

Table 4 Orthogonal experimental results and analysis of conventional nutrient contents in fermented peeled bagasse %

项目
Items
因素Factors 中性洗
涤纤维
NDF
酸性洗
涤纤维
ADF
半纤维素
HC
纤维素
CL
酸性洗涤
木质素
ADL
黄孢原毛平革菌
添加量
Phanerochaete
chrysosporium
addition amount
(A)
发酵时间
Fermentation
time (B)
蔗糖添加量
Sucrose addition
amount (C)
初始pH
Initial
pH (D)
组别Groups
A 1 1 1 1 82.66±0.57c 56.21±1.23c 26.46±0.66c 43.40±0.64bc 9.07±0.41ab
B 1 2 2 2 85.82±0.51d 56.63±0.27cd 29.19±0.78d 45.42±0.31e 9.47±0.16abc
C 1 3 3 3 85.26±0.39d 57.59±0.11cde 27.67±0.28cd 43.49±0.41bc 11.35±0.99de
D 2 1 2 3 79.58±0.96b 57.85±0.55de 21.74±1.52b 45.01±0.24de 10.25±0.18bcd
E 2 2 3 1 79.94±0.51b 53.32±0.61b 26.62±1.12c 42.65±0.67ab 8.66±0.49a
F 2 3 1 2 78.10±0.11a 58.35±0.78e 19.75±0.66a 44.03±0.84cd 8.90±0.08a
G 3 1 3 2 81.65±0.19c 54.32±0.12b 27.33±0.32cd 43.41±0.04bc 11.87±0.29e
H 3 2 1 3 79.36±0.23b 56.91±0.24cde 22.45±0.01b 44.58±0.81cde 10.67±0.83cde
I 3 3 2 1 80.44±0.20b 56.92±0.94cde 23.53±1.13b 42.63±0.62ab 11.40±0.05de
CK 87.61±0.15e 49.53±0.50a 33.20±0.48e 41.52±0.21a 10.84±0.72de


中性洗涤纤维
NDF
k1 84.58 81.30 80.04 81.02

影响因素:A>C>D>B;最佳组合:A2B3C1D1
k2 79.21 81.71 81.95 81.85
k3 80.48 81.27 82.28 81.40
R 5.37 0.44 2.24 0.84


酸性洗涤纤维
ADF
k1 56.81 56.13 57.16 55.48

影响因素:C>B>D>A;最佳组合:A3B2C3D1
k2 56.51 55.62 57.13 56.43
k3 56.05 57.62 55.08 57.45
R 0.76 2.00 2.08 1.97


半纤维素
HC
k1 27.77 25.17 22.88 25.53

影响因素:A>C>B>D;最佳组合:A2B3C1D3
k2 22.70 26.09 24.82 25.42
k3 24.43 23.65 27.20 23.95
R 5.07 2.44 4.32 1.59


纤维素
CL
k1 44.10 43.94 44.00 42.90

影响因素:D>C>B>A;最佳组合:A3B3C3D1
k2 43.89 44.22 44.35 44.28
k3 43.54 43.38 43.18 44.36
R 0.56 0.84 1.17 1.46


酸性洗涤木质素
ADL
k1 9.96 10.40 9.55 9.71

影响因素:A>C>D>B;最佳组合:A2B2C1D1
k2 9.27 9.60 10.37 10.08
k3 11.31 10.55 10.63 10.76
R 2.04 0.95 1.08 1.04

CK代表去皮蔗渣原料,未进行任何处理。ki指该因素在i水平下该指标的平均值,R为同列ki值极差。同列数据肩标不同小写字母表示差异显著(P<0.05),相同或无字母表示差异不显著(P>0.05)。表5同。

CK represented the raw material of peeled bagasse, without any treatment. ki refered to the average value of the indicator at level i for this factor, and R is the range of ki values in the same column. In the same column, values with different small letter superscripts mean significant difference (P<0.05), while with the same or no letter superscripts mean no significant difference (P>0.05). The same as Table 5.

与去皮蔗渣原料相比,各组发酵去皮蔗渣的ADF含量均显著增加(P<0.05)。E组和G组发酵去皮蔗渣的ADF含量显著低于其他各组(P<0.05)。正交试验分析结果表明,对发酵去皮蔗渣ADF含量影响最大的因素为蔗糖添加量,4个影响因素的影响大小为蔗糖添加量>发酵时间>初始pH>黄孢原毛平革菌添加量。
与去皮蔗渣原料相比,各组发酵去皮蔗渣的HC含量均显著降低(P<0.05)。F组发酵去皮蔗渣的HC含量显著低于其他各组(P<0.05)。正交试验分析结果表明,对发酵去皮蔗渣HC含量影响最大的因素为黄孢原毛平革菌添加量,4个影响因素的影响大小为黄孢原毛平革菌添加量>蔗糖添加量>发酵时间>初始pH。
与去皮蔗渣原料相比,各组(除E组和I组)发酵去皮蔗渣的CL含量均显著增加(P<0.05)。I组发酵去皮蔗渣的CL含量与A组、C组、E组和G组无显著差异(P>0.05),显著低于B组、D组、F组和H组(P<0.05)。正交试验分析结果表明,对发酵去皮蔗渣CL含量影响最大的因素为初始pH,4个影响因素的影响大小为初始pH>蔗糖添加量>发酵时间>黄孢原毛平革菌添加量。
与去皮蔗渣原料相比,A组、B组、E组和F组发酵去皮蔗渣的ADL含量显著降低(P<0.05)。E组发酵去皮蔗渣的ADL含量与A组、B组和F组无显著差异(P>0.05),显著低于C组、D组、G组、H组和I组(P<0.05)。正交试验分析结果表明,对发酵去皮蔗渣ADL含量影响最大的因素为黄孢原毛平革菌添加量,4个影响因素的影响大小为黄孢原毛平革菌添加量>蔗糖添加量>初始pH>发酵时间。

2.2 不同发酵条件对发酵去皮蔗渣发酵指标的影响

表5可知,H组发酵去皮蔗渣的NH3-N含量显著高于其他各组(P<0.05),C组、E组和G组的发酵去皮蔗渣中均未检测出NH3-N含量,F组发酵去皮蔗渣的NH3-N含量显著低于其他各组(P<0.05)。正交试验分析结果表明,对发酵去皮蔗渣NH3-N含量影响最大的因素为蔗糖添加量,4个影响因素的影响大小为蔗糖添加量>黄孢原毛平革菌添加量>初始pH=发酵时间。
表5 发酵去皮蔗渣发酵指标正交试验结果及分析

Table 5 Orthogonal experimental results and analysis of fermentation indices in fermented peeled bagasse

项目
Items
因素Factors 氨态氮
NH3-N/
(mmol/L)
乳酸
LA/
(mg/L)
pH 乙酸
AA/
(mmol/L)
丁酸
BA/
(mmol/L)
黄孢原毛平革菌
添加量
Phanerochaete
chrysosporium
addition amount (A)
发酵时间
Fermentation
time (B)
蔗糖添加量
Sucrose addition
amount (C)
初始pH
Initial pH (D)
组别Groups
A 1 1 1 1 0.04±0.01b 52.59±3.13b 4.43±0.05c 10.17±0.26c -
B 1 2 2 2 0.09±0.00c 22.69±0.39a 5.33±0.03f 6.07±0.27b 8.96±0.14e
C 1 3 3 3 - 23.80±1.57a 6.38±0.14g 0.09±0.13a 0.35±0.01a
D 2 1 2 3 0.09±0.01c 21.45±2.54a 4.96±0.01d 14.09±0.24d 7.17±0.08f
E 2 2 3 1 - 181.69±15.07c 4.06±0.01a 22.92±2.01f -
F 2 3 1 2 0.01±0.01a 22.97±0.39a 8.52±0.07h - -
G 3 1 3 2 - 33.90±0.20a 5.15±0.02e - 5.61±0.10d
H 3 2 1 3 0.28±0.03d 26.57±4.30a 4.99±0.08d 12.50±0.81d 4.61±0.33c
I 3 3 2 1 0.11±0.02c 232.07±13.50d 4.19±0.01b 16.13±0.56e 2.98±0.15b


氨态氮
NH3-N/
(mmol/L)
k1 0.05 0.05 0.11 0.05

影响因素:C>A>D=B;最佳组合:A2B3C3D2
k2 0.03 0.13 0.10 0.03
k3 0.13 0.04 0.00 0.13
R 0.10 0.09 0.11 0.09


乳酸
LA/(mg/L)
k1 33.03 35.98 34.04 155.45

影响因素:D>A>C>B;最佳组合:A3B3C2D1
k2 75.37 76.99 92.07 26.52
k3 97.51 92.95 79.80 23.94
R 64.49 56.97 58.03 131.51


pH
k1 5.38 4.85 5.98 4.23

影响因素:D>B>C>A;最佳组合:A3B2C2D1
k2 5.85 4.80 4.83 6.33
k3 4.78 6.36 5.19 5.44
R 1.07 1.57 1.15 2.10


乙酸
AA/(mmol/L)
k1 8.17 12.13 11.33 24.61

影响因素:D>B>A>C;最佳组合:A2B2C2D1
k2 18.50 20.74 18.15 3.04
k3 14.32 8.11 11.50 13.34
R 10.33 12.63 6.82 21.57


丁酸
BA/(mmol/L)
k1 4.66 6.39 2.31 1.49

影响因素:C>D>B>A;最佳组合:A2B3C1D1
k2 3.59 6.79 9.56 7.29
k3 6.60 1.66 2.98 6.07
R 3.01 5.13 7.25 5.80

-:未检出 not detected。

I组发酵去皮蔗渣的LA含量显著高于其他各组(P<0.05),D组发酵去皮蔗渣的LA含量显著低于A组、E组和I组(P<0.05)。正交试验分析结果表明,对发酵去皮蔗渣LA含量影响最大的因素为初始pH,4个影响因素的影响大小为初始pH>黄孢原毛平革菌添加量>蔗糖添加量>发酵时间。
E组发酵去皮蔗渣的pH显著低于其他各组(P<0.05),F组发酵去皮蔗渣的pH显著高于其他各组(P<0.05)。正交试验分析结果表明,对发酵去皮蔗渣pH影响最大的因素为初始pH,4个影响因素的影响大小为初始pH>发酵时间>蔗糖添加量>黄孢原毛平革菌添加量。
E组发酵去皮蔗渣的AA含量显著高于其他各组(P<0.05),F组和G组的发酵去皮蔗渣中均未检测出AA含量,C组发酵去皮蔗渣的AA含量显著低于其他各组(P<0.05)。正交试验分析结果表明,对发酵去皮蔗渣AA含量影响最大的因素为初始pH,4个影响因素的影响大小为初始pH>发酵时间>黄孢原毛平革菌添加量>蔗糖添加量。
各组的发酵去皮蔗渣中均未检测出PA含量,因此表中未列出。A组、E组和F组的发酵去皮蔗渣中均未检测出BA含量,B组发酵去皮蔗渣的BA含量显著高于其他各组(P<0.05),C组发酵去皮蔗渣的BA含量显著低于其他各组(P<0.05)。正交试验分析结果表明,对去皮蔗渣BA含量影响最大的因素为蔗糖添加量,4个影响因素的影响大小为蔗糖添加量>初始pH>发酵时间>黄孢原毛平革菌添加量。

2.3 不同发酵条件对发酵去皮蔗渣微生物区系的影响

2.3.1 操作分类单元(OTU)数目
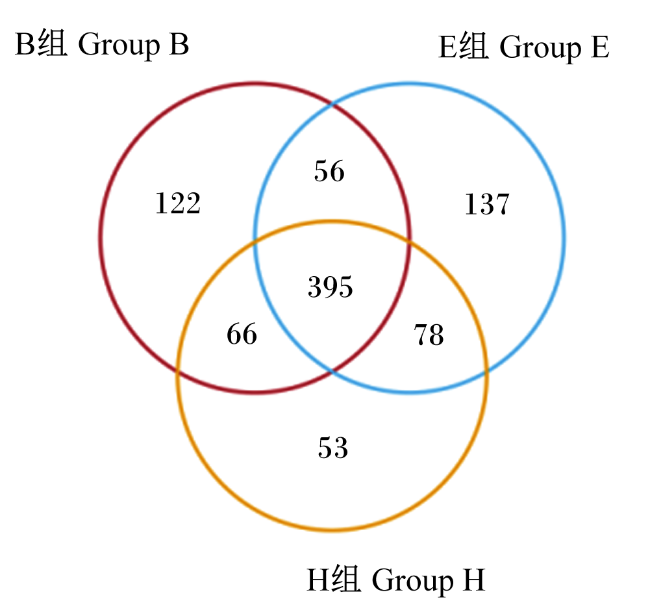
图1可知,测定了具有代表性的B组、E组和H组的微生物群落,共得到907个OTU;其中,B组特有的OTU数目为122个,占总数的13.5%;E组特有的OTU数目为137个,占总数的15.1%;H组特有的OTU数目为53个,占总数的5.8%;B组和E组共有的OTU数目为56个,占总数的6.2%;B组和H组共有的OTU数目为66个,占总数的7.3%;E组和H组共有的OTU数目为78个,占总数的8.4%;B组、E组和H组共有的OTU数目为395个,占总数的43.6%。
图1 微生物Venn图

Fig.1 Microbial Venn figure

2.3.2 Alpha多样性分析

表6可知,B组、E组和H组之间ACE指数和Chao1指数差异不显著(P>0.05);E组的ACE指数和Chao1指数均最高,B组的ACE指数最低,H组的Chao1指数最低。B组的Shannon指数最高,显著高于E组(P<0.05),与H组差异不显著(P>0.05)。B组的Simpson指数最高,显著高于E组和H组(P<0.05)。
表6 Alpha多样性指数分析

Table 6 Alpha diversity index analysis

项目Items B组Group B E组Group E H组Group H
ACE指数ACE index 493.77±22.47 514.35±40.09 496.15±18.71
Chao1指数Chao1 index 498.39±27.75 519.40±35.44 493.37±20.75
Shannon指数Shannon index 3.88±0.33b 3.17±0.05a 3.37±0.30ab
Simpson指数Simpson index 0.94±0.02b 0.86±0.00a 0.87±0.04a

同行数据肩标不同小写字母表示差异显著(P<0.05),相同或无字母表示差异不显著(P>0.05)。

In the same row, values with different small letter superscripts mean significant difference (P<0.05), while with the same or no letter superscripts mean no significant difference (P>0.05).

2.3.3 基于门水平的微生物群落结构分析

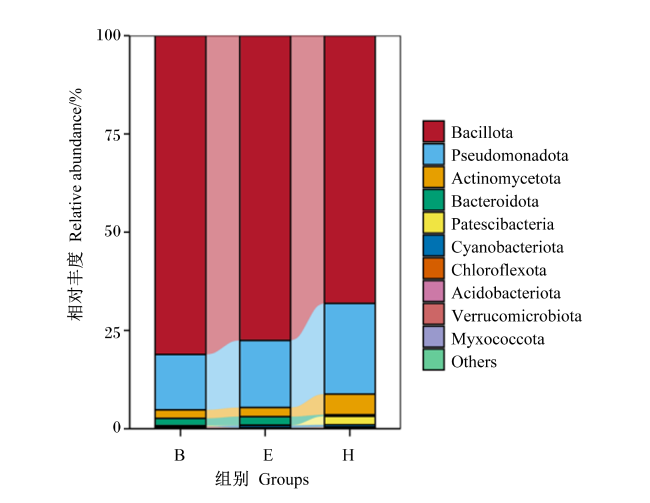
图2可知,B组、E组和H组门水平的微生物中均为厚壁菌门(Bacillota)相对丰度最高,厚壁菌门相对丰度表现为B组(81.11%)>E组(77.53%)>H组(68.10%)。
图2 门水平微生物相对丰度

Bacillota:厚壁菌门;Pseudomonadota:变形菌门;Actinomycetota:放线菌门;Bacteroidota:拟杆菌门;Patescibacteria:髌骨菌门;Cyanobacteriota:蓝菌门;Chloroflexota:绿弯菌门;Acidobacteriota:酸杆菌门;Verrucomicrobiota:疣微菌门;Myxococcota:黏菌门;Others:其他。

Fig.2 Relative abundance of microorganism at phylum level

2.3.4 基于属水平的微生物群落结构分析

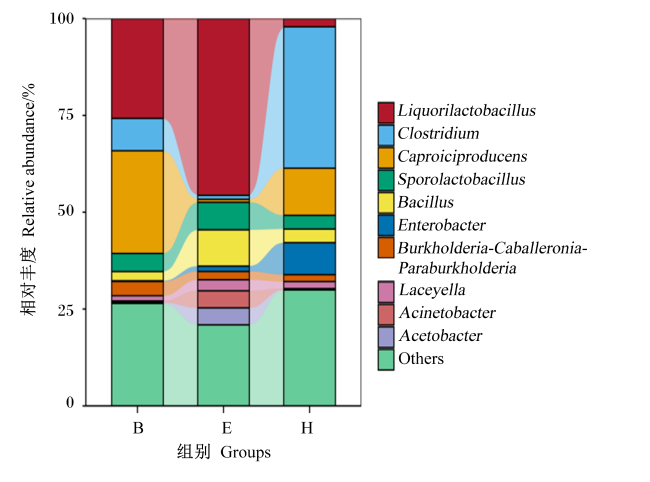
图3可知,B组属水平的微生物中产己酸菌属(Caproiciproducens)相对丰度最高,为26.50%;产己酸菌属相对丰度表现为B组(26.50%)>H组(12.19%)>E组(0.78%)。E组属水平的微生物中液体乳杆菌属(Liquorilactobacillus)相对丰度最高,为45.63%;液体乳杆菌属相对丰度表现为E组(45.63%)>B组(25.78%)>H组(2.14%)。H组属水平的微生物中梭菌属(Clostridium)相对丰度最高,为36.48%;梭菌属相对丰度表现为H组(36.48%)>B组(8.37%)>E组(1.04%)。
图3 属水平微生物相对丰度

Liquorilactobacillus:液体乳杆菌属;Clostridium:梭菌属;Caproiciproducens:产己酸菌属;Sporolactobacillus:芽孢乳杆菌属;Bacillus:芽孢杆菌属;Enterobacter:肠杆菌属;Burkholderia-Caballeronia-Paraburkholderia:伯克霍尔德氏菌属;Laceyella:莱斯氏菌属;Acinetobacter:不动杆菌属;Acetobacter:醋酸杆菌属;Others:其他。

Fig.3 Relative abundance of microorganism at genus level

2.3.5 基于种水平的微生物群落结构分析

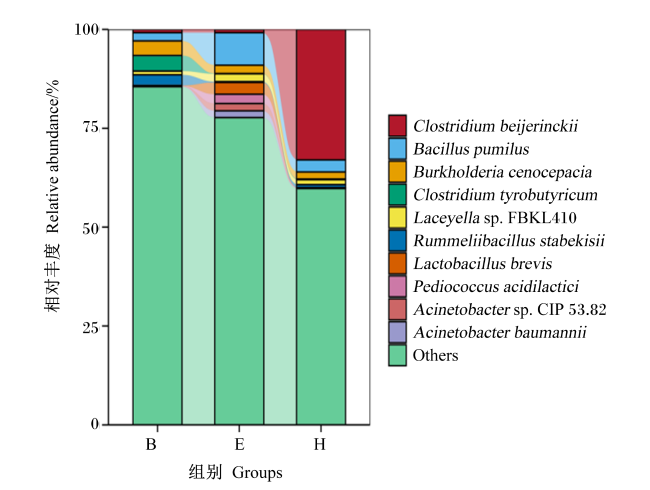
图4可知,B组种水平的微生物中酪丁酸梭菌(Clostridium tyrobutyricum)相对丰度最高,为3.94%;酪丁酸梭菌相对丰度表现为B组(3.94%)>H组(0.18%)>E组(0.06%)。E组种水平的微生物中短小芽孢杆菌(Bacillus pumilus)相对丰度最高,为8.21%;短小芽孢杆菌相对丰度表现为E组(8.21%)>H组(3.06%)>B组(2.08%)。H组种水平的微生物中拜氏梭菌(Clostridium beijerinckii)相对丰度最高,为33.01%,拜氏梭菌相对丰度表现为H组(33.01%)>E组(0.83%)>B组(0.82%)。
图4 种水平微生物相对丰度

Clostridium beijerinckii:拜氏梭菌;Bacillus pumilus:短小芽孢杆菌;Burkholderia cenocepacia:洋葱伯克霍尔德菌;Clostridium tyrobutyricum:酪丁酸梭菌;Laceyella sp. FBKL410:放线菌属FBKL410;Rummeliibacillus stabekisii:鲁梅利杆菌;Lactobacillus brevis:短乳杆菌;Pediococcus acidilactici:乳酸片球菌;Acinetobacter sp. CIP 53.82:不动杆菌属CIP53.82;Acinetobacter baumannii:鲍曼不动杆菌;Others:其他。

Fig.4 Relative abundance of microorganism at species level

2.4 正交试验综合评分法分析

参考宁奇等[18]的方法,根据各项常规养分含量及发酵指标进行综合评分。由表7可知,综合分析下,影响综合评分的4个影响因素的影响大小为初始pH>黄孢原毛平革菌添加量>蔗糖添加量>发酵时间,最佳组合为A2B3C3D1,即黄孢原毛平革菌添加量为3%、发酵时间为45 d、蔗糖添加量为5%、初始pH为4时,发酵效果最佳。
表7 正交试验综合评分法分析表

Table 7 Analysis table of orthogonal experiment comprehensive scoring method

项目
Items
因素Factors 综合评分
Comprehensive
score
黄孢原毛平革
菌添加量
Phanerochaete
chrysosporium
addition amount (A)
发酵时间
Fermentation
time (B)
蔗糖添加量
Sucrose addition
amount (C)
初始pH
Initial pH (D)
组别Groups
A 1 1 1 1 -0.53
B 1 2 2 2 -0.49
C 1 3 3 3 -0.49
D 2 1 2 3 -0.50
E 2 2 3 1 -0.58
F 2 3 1 2 -0.42
G 3 1 3 2 -0.46
H 3 2 1 3 -0.61
I 3 3 2 1 -0.63
k1 -0.55 -0.53 -0.53 -0.39

影响因素:
D>A>C>B;
最佳组合:
A2B3C3D1
k2 -0.46 -0.52 -0.53 -0.58
k3 -0.53 -0.50 -0.48 -0.57
R 0.08 0.03 0.05 0.19

3 讨论

3.1 不同发酵条件对发酵去皮蔗渣常规养分含量和发酵指标的影响

黄孢原毛平革菌对发酵去皮蔗渣的NDF、HC、ADL含量影响均最大,表明黄孢原毛平革菌能够分泌出降解HC和ADL的酶。发酵去皮蔗渣的NDF、HC、ADL含量均在黄孢原毛平革菌添加量为3%达到最低,而在黄孢原毛平革菌添加量为5%时均上升,且ADL含量高于去皮蔗渣原料。这表明黄孢原毛平革菌在发酵过程中会利用饲料本身的一些有机物,黄孢原毛平革菌添加量为5%时导致有机物的利用量要大于HC和ADL的分解量,从而使得在黄孢原毛平革菌添加量为5%时发酵去皮蔗渣的NDF、HC、ADL含量均出现了下降;随着黄孢原毛平革菌添加量的增加,有机物含量不断下降,且在黄孢原毛平革菌添加量为5%时出现了有机物的利用量要大于HC和ADL的分解量的情况,导致发酵去皮蔗渣的NDF、HC、ADL含量均上升。同时,在发酵时间上来看,发酵去皮蔗渣的ADL含量在发酵30 d之后出现了上升,但NDF和HC含量则继续下降,说明在发酵30 d后ADL不降解或降解很少,推测发酵30 d后黄孢原毛平革菌几乎无作用,导致NDF和HC含量继续下降的原因可能是乳酸菌或某些可适应较低pH的菌种在发挥作用。冯骁骋等[19]研究也表明,在仅添加乳酸菌作为外源发酵菌种发酵牧草的时候,可以降低NDF和HC含量。在发酵去皮蔗渣的ADF和CL含量上,黄孢原毛平革菌影响均最小,且各组ADF和CL含量均高于去皮蔗渣原料,这表明各组CL的降解量要低于对饲料本身有机物的利用量,从这一角度看,ADF和CL含量影响因素更多可能是影响了对饲料中有机物的利用情况,但从粗灰分含量的影响因素来看,并不完全一致,除初始pH外,ADF和CL含量的影响因素与粗灰分含量的影响因素均不一致,说明饲料中存在产纤维素酶的菌株,且其利用了添加的蔗糖,而黄孢原毛平革菌添加量为5%时ADF和CL含量最低,则说明黄孢原毛平革菌也能分泌纤维素酶,但其酶活性或是分泌量较低,主要发挥作用的可能是饲料中原本附着的一些微生物。
本试验结果表明,黄孢原毛平革菌对HC和ADL的降解能力较强,对CL的降解能力较弱,降解能力上来看,HC>ADL>CL,与翁辰[20]的研究结果一致。总体来看,1%的蔗糖添加量对ADL分解的效果最好,这是由于黄孢原毛平革菌所产生的可降解HC、CL、ADL的酶均产生于营养耗尽的次生代谢阶段[21],因此当蔗糖添加量较高时,会使得营养耗尽的时间变长,使得黄孢原毛平革菌分泌降解ADL的酶的能力减弱,从而使ADL含量降低的效果变差。同时,徐梓一[22]研究表明,黄孢原毛平革菌分泌的降解木质素的3种酶[锰过氧化物酶(manganese peroxidase,MnP)、漆酶(laccase,Lac)和木质素过氧化物酶(lignin peroxidase,LiP)]的活性均在pH为4.0~4.5时达到最高。因此,本试验中初始pH为4时发酵去皮蔗渣的ADL含量最低,同时CL含量也在初始pH为4时最低,因此推测可能主要是由于初始pH为4时有机物含量高,导致CL含量最低,而非初始pH为4时促进了一些微生物产纤维素酶从而使纤维素酶降解率提高。但随着初始pH的降低,HC含量逐渐增高,可能是初始pH的下降导致一些本身附着在去皮蔗渣上的可降解HC的其他微生物生长被抑制导致的。
初始pH对发酵去皮蔗渣LA、AA含量以及pH的影响均最大,且最佳条件均为初始pH为4。本研究调节pH所使用的试剂是冰醋酸,Schmidt等[23]研究表明,冰醋酸能够有效杀灭好氧微生物,防止饲料腐败变质。冰醋酸在发酵的初期杀灭一些好氧微生物,从而使乳酸菌有更多水溶性碳水化合物来利用产生LA,同时黄孢原毛平革菌会分解去皮蔗渣的ADL来产生一部分水溶性碳水化合物,以及添加的外源蔗糖,均可以被乳酸菌利用产生LA。因此,在黄孢原毛平革菌添加量为5%时,发酵去皮蔗渣的LA含量也最高;但在蔗糖添加量为3%时,发酵去皮蔗渣的LA含量比蔗糖添加量为5%时高,可能是因为过多的水溶性碳水化合物会被有害菌利用,进而增殖与乳酸菌进行竞争。从发酵时间上看,随着发酵时间的增加,发酵去皮蔗渣的LA含量逐渐增加,说明在发酵30 d之后,乳酸菌仍旧在进行活动,生产LA。发酵30 d时发酵去皮蔗渣的AA含量达到最高,黄孢原毛平革菌和蔗糖添加量为3%时,发酵去皮蔗渣的AA含量也比其添加量为5%更高。乳酸菌根据代谢途径的不同分为专性同型发酵乳酸菌、专性异型发酵乳酸菌和以兼性异型发酵乳酸菌3种类型[24]。各组的AA主要是依靠产乙酸细菌以及乳酸菌异型发酵所产生的。而异型发酵乳酸菌耐酸性较差,仅在发酵的早期阶段占主导地位,随着发酵时间的增加,异型发酵乳酸菌的优势地位会被同型发酵乳酸菌取代[25]。且兼性异型发酵乳酸菌在水溶性碳水化合物较低的时候才会进行异型发酵[26]
发酵去皮蔗渣的NH3-N含量在初始pH为5时最低,当初始pH进一步降低时,NH3-N出现上升,随着初始pH的下降,NH3-N含量出现了先降低后增加的现象,这一现象也出现在添加冰醋酸发酵其他饲料的情况下[27-28]。可能是随着冰醋酸添加量的增加使得饲料中存在的固氮菌的增殖产生了负面影响,造成游离的氮元素增加。黄孢原毛平革菌添加量为3%、发酵时间为45 d、蔗糖添加量为5%时NH3-N含量最低,可能是pH降低抑制有害菌以及含糖量较高使固氮菌增殖的结果。

3.2 不同发酵条件对发酵去皮蔗渣微生物区系的影响

Chao1和ACE为丰富度指数,Shannon和Simpson为多样性指数,说明不同发酵条件对发酵去皮蔗渣的微生物菌落的丰富度无显著影响,但低初始pH、高蔗糖添加量或低蔗糖添加量、高初始pH都会使微生物菌落的多样性下降,在初始pH为5、蔗糖添加量为3%时,微生物菌落的多样性最高。
从门水平、属水平以及种水平来看,B组、E组和H组的优势菌属以及优势菌种各不相同,较高初始pH、较低蔗糖添加量会造成梭菌属相对丰度上升;而较低初始pH、较高蔗糖添加量会造成梭菌属相对丰度下降,产戊酸菌属和液体乳杆菌属相对丰度上升;低初始pH、高蔗糖添加量会使梭菌属和产戊酸菌属相对丰度下降,液体乳杆菌属相对丰度上升。这说明当初始pH下降、蔗糖添加量上升更有利于乳酸菌增殖产生LA,提高发酵品质,结合LA的数据来看,主要是低初始pH的影响因素更大。但B组出现的结果却与属水平的结果并不一致,相较于H组,其LA含量更低,BA含量更高。结合种水平的结果来看,B组相对丰度最高的是酪丁酸梭菌,而H组相对丰度最高的是拜氏梭菌,而酪丁酸梭菌不仅可以利用糖,同时还可以利用LA来合成BA,因此会造成LA含量的下降以及BA含量的上升[29]。E组相对丰度最高的是短小芽孢杆菌,同时相较于B组和H组短乳杆菌(Lactobacillus brevis)和乳酸片球菌(Pediococcus acidilactici)相对丰度也明显升高,这2种菌分别进行异型发酵和同型发酵[30-31],因此E组的AA和LA含量均高于B组和H组。

4 结论

在本试验条件下,通过正交分析结果以及综合评分表明,黄孢原毛平革菌添加量为3%、发酵时间为45 d、蔗糖添加量为5%、初始pH为4时为黄孢原毛平革菌发酵去皮蔗渣的最佳发酵条件。在此条件下,去皮蔗渣固态发酵的营养价值、发酵品质以及有益菌的相对丰度最佳。
[1]
陈潇航, 张小秋, 黄海荣, 等. 广西甘蔗褐条病病原菌鉴定与杀菌剂敏感度测定[J]. 西南农业学报, 2024, 37(4):816-823.

CHEN X H, ZHANG X Q, HUANG H R, et al. Pathogen identification and fungicide sensitivity test of sugarcane brown stripe[J]. Southwest China Journal of Agricultural Sciences, 2024, 37(4):816-823. (in Chinese)

[2]
李炳杨. 广西甘蔗种植现状、问题及对策[J]. 热带农业科学, 2018, 38(4):119-127.

LI B Y. The present situation,problems and countermeasures of sugarcane cultivation in Guangxi[J]. Chinese Journal of Tropical Agriculture, 2018, 38(4):119-127. (in Chinese)

[3]
MARTINEZ-HERNANDEZ E, AMEZCUA-ALLIERI M A, SADHUKHAN J, et al. Sugarcane bagasse valorization strategies for bioethanol and energy production[M]// DE OLIVEIRA A B. Sugarcane-technologyand research.S.l.:s. n.],2018:137-144.

[4]
路贵龙, 王朔, 连玉珍, 等. 甘蔗制糖副产物的开发与利用[J]. 中国糖料, 2020, 42(2):75-80.

LU G L, WANG S, LIAN Y Z, et al. Development and utilization of sugarcane by-products in the sugar manufacturing process[J]. Sugar Crops of China, 2020, 42(2):75-80. (in Chinese)

[5]
林荣珍. 甘蔗渣综合利用发展现状探讨[J]. 企业科技与发展, 2020(6):62-64.

LIN R Z. Discussion on the current situation of comprehensive utilization of sugarcane bagasse[J]. Enterprise Science and Technology & Development, 2020(6):62-64. (in Chinese)

[6]
刘新亮. 蔗髓改性制备重金属离子吸附材料及其机理研究[D]. 博士学位论文. 南宁: 广西大学, 2012.

LIU X L. Study on preparation of adsorbent for heavy metal ions by modificating bagasse pith and its mechanism[D]. Ph.D.Thesis. Nanning: Guangxi University, 2012. (in Chinese)

[7]
SHELKE S K, CHHABRA A, PUNIYA A K, et al. In vitro degradation of sugarcane bagasse based ruminant rations using anaerobic fungi[J]. Annals of Microbiology, 2009, 59(3):415-418.

[8]
张肇富. 甘蔗渣的利用[J]. 中国物资再生, 1997(8):20.

ZHANG Z F. Utilization of sugarcane bagasse[J]. China Resources Comprehensive Utilization, 1997(8):20. (in Chinese)

[9]
唐浩洁, 江迪, 李阳, 等. 白腐真菌降解木质纤维素的研究进展[J/OL]. 食品工业科技, 2025:1-14(2025-02-25)[2025-03-05].https://doi.org/10.13386/j.issn1002-0306.2024090094.

TANG H J, JIANG D, LI Y, et al. Research progress on the degradation of lignocellulosic by white rot fungi[J/OL]. Science and Technology of Food Industry, 2025:1-14(2025-02-25)[2025-03-05].https://doi.org/10.13386/j.issn1002-0306.2024090094. (in Chinese)

[10]
李倩, 许之扬, 阮文权. 黄孢原毛平革菌后处理深度提升醋糟产甲烷潜力[J]. 浙江农业学报, 2020, 32(5):904-911.

DOI

LI Q, XU Z Y, RUAN W Q. Improvement of methane production potential by post-treatment of vinegar residue with Phanerochaete chrysosporium[J]. Acta Agriculturae Zhejiangensis, 2020, 32(5):904-911. (in Chinese)

[11]
曹家铭, 张健, 时君友, 等. 白腐菌预处理在生物质材料中的应用[J]. 林产工业, 2021, 58(3):16-20.

CAO J M, ZHANG J, SHI J Y, et al. Application of white-rot fungus pretreatment for biomass materials[J]. China Forest Products Industry, 2021, 58(3):16-20. (in Chinese)

[12]
杨奕凡, 高雁, 刘亚男, 等. 甘草渣发酵产非淀粉多糖酶菌株筛选及产酶的动态变化[J]. 新疆农业科学, 2024, 61(11):2733-2741.

DOI

YANG Y F, GAO Y, LIU Y N, et al. Screening of strains producing non-starch polysaccharide enzyme by fermentation of licorice residue and its dynamic changes[J]. Xinjiang Agricultural Sciences, 2024, 61(11):2733-2741. (in Chinese)

DOI

[13]
许锐. 酶改性麦麸及其在高膳食纤维面条制作中的应用[D]. 硕士学位论文. 北京: 中国农业科学院, 2024.

XU R. Enzyme-modified wheat bran and its application in the production of high dietary fiber[D]. Master’s Thesis. Beijing: Chinese Academy of Agricultural Sciences, 2024. (in Chinese)

[14]
SOEST P J V. Use of detergents in the analysis of fibrous feedsⅡ.A rapid method for the determination of fiber and lignin[J]. Journal of the Association of Official Agricultural Chemists, 1963, 46(5):829-835.

[15]
BRODERICK G A, KANG J H. Automated simultaneous determination of ammonia and total amino acids in ruminal fluid and in vitro media[J]. Journal of Dairy Science, 1980, 63(1):64-75.

[16]
梁琼, 鲁明波, 卢正东, 等. 对羟基联苯法定量测定发酵液中的乳酸[J]. 食品科学, 2008, 29(6):357-360.

LIANG Q, LU M B, LU Z D, et al. Determination of lactic acid in fermentation broth by p-hydroxybiphenol colorimetry[J]. Food Science, 2008, 29(6):357-360. (in Chinese)

[17]
ERWIN E S, MARCO G J, EMERY E M. Volatile fatty acid analyses of blood and rumen fluid by gas chromatography[J]. Journal of Dairy Science, 1961, 44(9):1768-1771.

[18]
宁奇, 孙培冬, 曹光群, 等. 山药粘液质多糖的酶法脱蛋白工艺及其性能研究[J]. 食品与生物技术学报, 2019, 38(9):118-124.

NING Q, SUN P D, CAO G Q, et al. Deproteinization technology by enzymic method of polysaccharide from yam mucilage and its performance study[J]. Journal of Food Science and Biotechnology, 2019, 38(9):118-124. (in Chinese)

[19]
冯骁骋, 尹强, 刘兴波, 等. 典型草原天然牧草青贮条件的研究[J]. 中国草地学报, 2014, 36(1):64-68.

FENG X C, YIN Q, LIU X B, et al. Study on conditions of natural forage ensiling in typical steppe[J]. Chinese Journal of Grassland, 2014, 36(1):64-68. (in Chinese)

[20]
翁辰. 黄孢原毛平革菌促进凤眼莲发酵产乙醇效率的研究[D]. 硕士学位论文. 上海: 华东师范大学, 2017.

WENG C. Stimulatory effect of Phanerochaete chrysosporium on Bioethanol production by water hyacinth[D]. Master’s Thesis. Shanghai: East China Normal University, 2017. (in Chinese)

[21]
江明锋. 黄孢原毛平革菌不同代谢阶段差异表达基因研究[D]. 博士学位论文. 成都: 四川大学, 2004.

JIANG M F. Studies on gene expression of different metabolic phase of Phanerochaete chrysosporium[D]. Ph.D.Thesis. Chengdu: Sichuan University, 2004. (in Chinese)

[22]
徐梓一. 诱导及激励物对黄孢原毛平革菌产木质素降解酶的调控和降解机理[D]. 硕士学位论文. 长沙: 湖南大学, 2017.

XU Z Y. Cooperative regulation and control of ligninolytic enzymes by Phanerochaete chrysosporium during inducing and incentive in lignin biodegradation[D]. Master’s Thesis. Changsha: Hunan University, 2017. (in Chinese)

[23]
SCHMIDT R J, KUNG L Jr. The effects of Lactobacillus buchneri with or without a homolactic bacterium on the fermentation and aerobic stability of corn silages made at different locations[J]. Journal of Dairy Science, 2010, 93(4):1616-1624.

[24]
张维清, 王博, 刘艳香, 等. 不同类型乳酸菌对全麦酸面团发酵特性的影响[J]. 中国食品学报, 2022, 22(11):247-255.

ZHANG W Q, WANG B, LIU Y X, et al. Effect of different types lactic acid bacteria on the fermentation characteristics of whole wheat sourdough[J]. Journal of Chinese Institute of Food Science and Technology, 2022, 22(11):247-255. (in Chinese)

[25]
MOON S H, KIM C R, CHANG H C. Heterofermentative lactic acid bacteria as a starter culture to control kimchi fermentation[J]. LWT, 2018,88:181-188.

[26]
吕仁龙, 蒋睿珂, 张雨书, 等. 不同青贮时间、水分和添加剂对百香果果皮发酵品质的影响[J]. 饲料工业, 2024, 45(18):106-113.

LYU R L, JIANG R K, ZHANG Y S, et al. Effects of different fermentation time,moisture and additives on fermentation quality of passion fruit peels[J]. Feed Industry, 2024, 45(18):106-113. (in Chinese)

[27]
李俊峰, 成启明, 卢强, 等. 乙酸添加量及青贮时间对紫花苜蓿青贮品质的影响[J]. 黑龙江畜牧兽医, 2021(8):114-118.

LI J F, CHENG Q M, LU Q, et al. Effect of acetic acid additives and silage time on alfalfa silage quality[J]. Heilongjiang Animal Science and Veterinary Medicine, 2021(8):114-118. (in Chinese)

[28]
李君风, 孙肖慧, 原现军, 等. 添加乙酸对西藏燕麦和紫花苜蓿混合青贮发酵品质和有氧稳定性的影响[J]. 草业学报, 2014, 23(5):271-278.

DOI

LI J F, SUN X H, YUAN X J, et al. Effect of adding acetic acid on fermentation quality and aerobic stability of mixed oat and alfalfa silage in Tibet[J]. Acta Prataculturae Sinica, 2014, 23(5):271-278. (in Chinese)

[29]
张腾薇. 不同籽粒破碎程度对全株大麦青贮品质、细菌群落结构及代谢物的影响[D]. 硕士学位论文. 北京: 中国农业科学院, 2023.

ZHANG T W. Effects of different grains breaking on silage quality、bacterial community structure and metabolites of whole-crop barley[D]. Master’s Thesis. Beijing: Chinese Academy of Agricultural Sciences, 2023. (in Chinese)

[30]
LANCETTI R, SCIARINI L, PÉREZ G T, et al. Technological performance and selection of lactic acid bacteria isolated from Argentinian grains as starters for wheat sourdough[J]. Current Microbiology, 2021, 78(1):255-264.

DOI PMID

[31]
GAO J L, WANG P, ZHOU C H, et al. Chemical composition and in vitro digestibility of corn stover during field exposure and the fermentation characteristics of silage prepared with microbial additives[J]. Asian-Australasian Journal of Animal Sciences, 2019, 32(12):1854-1863.

文章导航

/