综述

纳米硒的生物学功能及其在畜禽生产中的应用

  • 苏梦容 ,
  • 甘尚权 ,
  • 冯耀昌 ,
  • 马健 , *
展开
  • 广东海洋大学滨海农业学院,湛江 524088
*马 健,讲师,硕士生导师,E-mail:

苏梦容(2002—),女,广西贵港人,硕士研究生,从事反刍动物营养与饲料资料开发利用研究。E-mail:

Office editor: 菅景颖

收稿日期: 2025-03-31

  网络出版日期: 2025-10-15

基金资助

广东海洋大学科研启动经费资助项目(060302052308)

广东海洋大学科研启动经费资助项目(060302052318)

广东省普通高校创新团队项目(2024KCXTD040)

Biological Functions of Nano-Selenium and Its Application in Livestock and Poultry Production

  • SU Mengrong ,
  • GAN Shangquan ,
  • FENG Yaochang ,
  • MA Jian , *
Expand
  • College of Coastal Agricultural Sciences, Guangdong Ocean University, Zhanjiang 524088, China
*lecturer, E-mail:

Received date: 2025-03-31

  Online published: 2025-10-15

摘要

硒是畜禽生长发育过程中必需的微量元素之一,具有抗氧化、提高繁殖性能和生长性能、增强免疫力及改善肉品质等生物学功能。近年来,纳米硒由于具有生物利用度高、毒性低及安全性高等优良特性而备受国内外研究学者关注,在畜牧生产中的应用前景广阔。本文就纳米硒的理化性质、合成方式、在动物体内的吸收和转运途径、生物学功能及其在畜禽生产中的应用现状进行综述,为纳米硒在畜禽生产中的进一步研究提供参考。

本文引用格式

苏梦容 , 甘尚权 , 冯耀昌 , 马健 . 纳米硒的生物学功能及其在畜禽生产中的应用[J]. 动物营养学报, 2025 , 37(10) : 6572 -6582 . DOI: 10.12418/CJAN2025.534

Abstract

Selenium is one of the essential trace elements in the growth and development of livestock and poultry, which has multiple biological functions including anti-oxidation, enhancement of reproductive and growth performance, fortification of immunity and improvement of meat quality. In recent years, nano-selenium has attracted widespread attention from researchers globally due to its high bioavailability, low toxicity and excellent safety profile, demonstrating broad application potential in livestock production. This review summarized the physicochemical properties, synthesis methods, absorption and transport pathways in animals, biological functions and current applications of nano-selenium in livestock and poultry production, aiming to provide references for further research and utilization of nano-selenium in livestock and poultry production.

硒是动物营养中不可或缺的一种微量元素,对动物生长、繁殖、免疫及甲状腺合成和代谢具有重要意义。硒在动物体内无法合成,必须通过食物或水从外界环境中获取,自然界中的硒通常以有机和无机2种形式存在[1]。相关研究表明,无机硒具有生物利用度低、加速氧化过程及在高浓度可能有毒的特点,可以溶解在饲料的水分中并转化为挥发性化合物而丢失,并可被饲料中的一些营养物质还原成不可用的金属物质[2-3]。相比之下,相同剂量条件下的有机硒表现出低毒性、高生物利用度和高催化效率[4]。但近年来研究发现,有机硒也容易引起动物中毒,其利用受到了限制。在相同剂量和暴露途径下,纳米硒(nano-selenium,SeNPs)的毒性显著低于有机硒,虽略高于惰性的元素硒,但因其高效低毒的特性,整体安全性更高。因此,优化硒补充剂的形式及浓度有助于维持动物生产力、免疫力及繁殖性能等。
作为一种新型硒补充剂,SeNPs是目前被证实急性毒性最低的补硒制剂,具有生物利用率高、催化能力和抗菌功效强等特性,在畜牧生产中应用广泛。SeNPs可维持动物的生殖功能,在发情周期补充SeNPs会显著影响动物的发情反应和受孕率。Ali等[5]研究发现,在饲粮中按照0.2 mg/只的剂量添加SeNPs可提高母羊的卵巢卵泡质量、发情反应及受孕率。Reda等[6]研究表明,饲粮中添加0.4和0.6 g/kg的SeNPs可促进鹌鹑生长,提高血液中天冬氨酸转氨酶活性以及机体抗氧化能力和肠道中乳酸菌数量,并降低大肠杆菌等致病菌数量。此外,Hassan等[7]指出,SeNPs对家禽的肠道健康、生产性能及消化效率等具有重要的促进作用。本文归纳了SeNPs的理化性质、合成方式、在动物体内的吸收和转运途径,介绍了SeNPs的生物学功能,并综述了SeNPs在畜禽生产中的应用现状,以期为SeNPs深入研究提供参考。

1 SeNPs的理化性质及合成方式

在自然状态下,硒主要以灰色为主,而灰色元素硒和黑色元素硒几乎没有生物活性且具有毒性。然而,单质硒的理化性质与其形态结构密切相关,通过生物分子介导的定向调控等方式可制备出具有纳米结构的红色单质硒,即SeNPs。SeNPs的制备基于蛋白质的酰胺平面能够吸附红色元素硒的原理,最终形成以蛋白质为核及分散剂,红色元素硒为膜的纳米粒子。该纳米颗粒呈高分散性,粒径在20~60 nm,对热较为稳定,不会转化形成无生物活性的灰色或黑色元素硒。SeNPs作为一种新型的营养补充剂,具有性质相对稳定、颗粒微小、吸附性强及易溶于水等优良特性[8]。研究表明,SeNPs、无机硒(硒酸钠、亚硒酸钠)和有机硒(富硒酵母、硒蛋白)都具有较高的生物活性,但由于SeNPs颗粒具有均匀细小、表面原子比例高及比表面积大的特性,其表现出更高的生物利用率,是目前饲料添加剂研究领域的热点之一。
SeNPs的形貌和粒径不同,其具有的生物活性也不同,而SeNPs的合成方式会影响前者。目前,SeNPs的合成方式主要包括物理合成法、化学还原法和生物合成法,它们都有其各自的优缺点,其预期前途决定了其适用性[9-11]。物理合成法制得的产品纯度高且回收率也高,但操作复杂、难度大,难以推广;化学还原法回收率高且制备过程相对简单,但会残留有害试剂。由于生物合成法制得的SeNPs结构均匀稳定、耐高温、粒径小及安全等,已成为制备SeNPs的主流方式。生物合成法根据原料的不同可分为植物合成法和微生物合成法,其中,微生物合成法合成的SeNPs稳定性强、生物利用度高及培养条件温和,应用前景广阔。然而,这些方法主要局限于实验室小批量生产,难以实现高效率及低成本的工业化生产。此外,SeNPs的表面修饰和功能化研究尚处于起步阶段,这限制了其在生物成像与诊断、靶向药物递送及污染物降解等领域的应用。未来有必要设计一种稳定性好、便于储存及多功能性的大规模生产SeNPs的技术。

2 SeNPs在动物体内的吸收和转运

十二指肠是硒的主要吸收部位,虽然目前关于小肠对硒的吸收机制有了一定的了解,但尚未完全清晰,且不同形式的硒源在畜禽体内的吸收方式有所不同。例如,无机硒以被动扩散的方式被小肠吸收;有机硒在小肠内首先会被转化为相应的氨基酸硒,因此,其遵循氨基酸的吸收机制,为主动转运[12];SeNPs通过被动扩散和主动转运在小肠内吸收[13]。在同等剂量条件下,相较于无机硒和有机硒,SeNPs的吸收率更高,这主要归因于其纳米级尺寸和独特的结构特性。此外,畜禽的种类不同,对SeNPs的吸收部位也有所差异,单胃动物主要在回肠吸收SeNPs,反刍动物吸收SeNPs的主要部位为整段小肠。SeNPs在动物体内的吸收受到多种因素的影响,较小的粒径及特定的表面电荷有利于增加其与肠壁的接触面积,延长接触时间,以提高其吸收效率;动物种类和生物状态及饲粮成分可能也会影响其吸收,未来仍需进一步的研究。
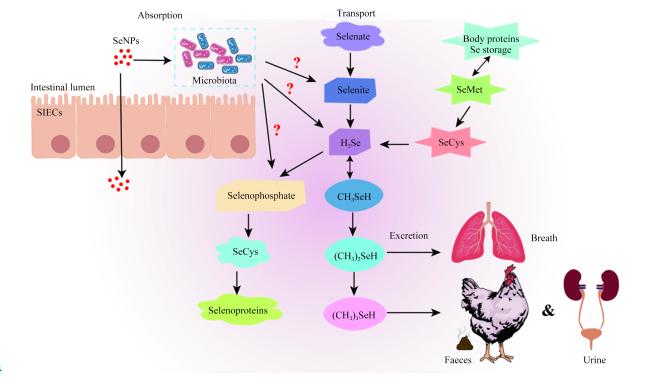
被机体吸收后的SeNPs由血液循环进行转运,一部分会迅速结合到红细胞膜上并进入红细胞,一部分与血浆蛋白结合。如图1所示,SeNPs在体内被还原为硒化氢(hydrogen selenide,H2Se),经代谢生成硒代半胱氨酸(selenocysteine,SeCys),后者通过特异性翻译机制整合到硒蛋白中,硒蛋白随血液循环被运输到各个组织器官,进而发挥功能。然而,SeNPs如何转化为硒蛋白的研究仍处于初步阶段,其转化过程仍未完全清晰。据报道,SeNPs可以转化为硒代磷酸,再进一步参与硒蛋白的合成,但缺乏直接的试验验证[14]。此外,有学者认为,肠道微生物可通过合成硒蛋白将SeNPs氧化为亚硒酸盐,或将其还原为H2Se[15-16],这是因为SeNPs在被吸收之前,肠道内的微生物可以将其溶解并氧化为硒的无机氧阴离子,但其具体的机制尚不明确。研究还表明,微生物通过参与氧化和还原反应在环境中的硒循环中起着重要的作用[3]。SeNPs除了合成硒蛋白之外,还直接发挥抗氧化作用。SeNPs在动物体内经过一系列代谢过程后,最终通过粪便、尿液及汗液等途径排出体外。
图1 SeNPs在动物体内的吸收和转运示意图

SeNPs:纳米硒 nano-selenium;Absorption:吸收;Transport:转运;Body proteins:体蛋白;Excretion:排泄;Intestinal lumen:肠腔;Microbiota:微生物群;Se storage:硒储存;Selenophosphate:硒代磷酸盐;Selenoproteins:硒蛋白;Selenate:硒酸盐;Selenite:亚硒酸盐;Breath:呼吸;Faeces:粪便;Urine:尿液; SIECs:小肠上皮细胞 small intestinal epithelial cells;SeMet:硒代甲硫氨酸 selenomethionine;SeCys:硒代半胱氨酸 selenocysteine;H2Se:硒化氢 hydrogen selenide;CH3SeH:甲基硒醇 methyl hydroselenide;(CH3)2SeH:二甲基硒醇 dimethyl hydroselenide;(CH3)3SeH:三甲基硒醇 trimethyl hydroselenide。

Fig.1 Schematic diagram of absorption and transport of SeNPs in animals[3]

3 SeNPs的生物学功能

3.1 抗氧化作用

硒是谷胱甘肽过氧化物酶(glutathion peroxidase,GSH-Px)的主要成分,常以SeCys的形式参与构成GSH-Px,主要作用是催化谷胱甘肽(glutathione,GSH)对过氧化氢(hydrogen peroxide,H2O2)的还原反应,使有毒的H2O2还原成无毒的羟基化合物,并促进H2O2的分解,从而起到保护细胞膜结构与功能完整的作用,有效防止氧化应激。SeNPs具有提高机体GSH-Px活性、清除有害过氧化物等生物学功能。研究表明,SeNPs可通过调节p38丝裂原活化蛋白激酶(p38 mitogen-activated protein kinase,p38 MAPK)、凋亡信号调节激酶1/c-Jun氨基末端激酶(apoptosis signal-regulating kinase 1/c-Jun N-terminal kinase,ASK1/JNK)等多种信号通路,从而清除过量的活性氧(ROS),抑制脂质过氧化,发挥其抗氧化功能,进而抑制氧化应激诱导的细胞凋亡[17]。一项研究表明,生物源性SeNPs可以激活核因子E2相关因子2(nuclear factor erythroid 2-related factor 2,Nrf2),并增加如硫氧还蛋白还原酶(thioredoxin reductase,TrxR)、NAD(P)H:醌氧化还原酶-1[NAD(P)H:quinone oxidoreductase-1,NQO-1]、血红素氧合酶-1(hemeoxygenase-1,HO-1)等下游基因的表达,这些基因负责抗氧化剂的合成,且该研究还发现Nrf2的降低会阻碍SeNPs的抗氧化作用[18]。除了抗氧化酶外,一些非酶化合物如维生素C也具有抗氧化作用,但其清除自由基的能力没有SeNPs强。同时,相较于相同剂量下其他形式的硒源,SeNPs的抗氧化作用更为优越且生物活性更好[19-20],因此,SeNPs被广泛应用于畜禽生产。Bień等[21]研究表明,在不影响鸡胸肌和肝脏超微结构的情况下,增加SeNPs的剂量可以保护肝细胞免受线粒体损伤并增强抗氧化能力,维持鸡的生产性能,改善机体健康。Alagawany等[22]研究膳食中添加化学纳米硒(Che-SeNPs)对鹌鹑抗氧化能力的影响时发现,与对照组(只饲喂基础饲粮)相比,在饲粮中添加Che-SeNPs可显著提高血液中超氧化物歧化酶(superoxide dismutase,SOD)、GSH-Px的活性,降低丙二醛(malondialdehyde,MDA)含量,这些血液指标的改善表明Che-SeNPs增强了鹌鹑的机体抗氧化能力。此外,Lee等[23]研究了不同形式的硒源(剂量均为0.30 mg/kg)对GSH-Px活性的影响,结果表明,与对照组(无硒添加)和亚硒酸钠组相比,热熔挤压SeNPs和硒代蛋氨酸在1期(第0~14天)和2期(第15~28天)显著增加了猪血清中GSH-Px的活性,且猪肝脏中硒蛋白W、GSH-Px1、GSH-Px2、GSH-Px3、GSH-Px4及GSH-Px5的表达上调,表现出更强的抗氧化能力。然而,从以上研究可以看出,目前研究多集中在体外试验或动物模型上,还需要更多的体内试验探究其具体分子机制,如SeNPs如何调控抗氧化酶活性等;此外,SeNPs与其他抗氧化剂的协同抗氧化机制也需要进一步研究。

3.2 改善繁殖性能

硒是维持雄性动物可育性所必需的微量元素之一,作为在精子形成过程中的一种结构蛋白的辅酶,缺硒可能会引起动物生殖激素分泌失调、与生殖相关的酶活性降低及生殖器官的组织结构发生变异等,严重影响生殖细胞的发生与成熟及它们的生存和发育环境,导致动物繁殖性能降低[24-25]。此外,在线粒体的周围围绕着许多富硒代胱氨酸的多肽,在精细胞生成过程中起到维持线粒体状态稳定的作用,因此,当机体缺硒时会影响线粒体的正常功能,进而也会影响动物的繁殖性能[26]。硒不仅可促进激素分泌、雄性动物生殖器官发育以及精子的形成与发育等,还能保护精子细胞免受损害,提高精子活力,从而改善受精能力,促进胚胎发育[27-29]。此外,在饲粮中补充硒还能提高雄性动物的性欲[30]。硒缺乏和硒过量均会抑制睾丸中的磷脂酰肌醇3-激酶(PI3K)和蛋白激酶B(AKT)基因表达,导致细胞凋亡相关蛋白如半胱天冬酶3(Caspase 3)、活化型半胱天冬酶3(cleaved-Caspase 3)、P53和B细胞淋巴瘤/白血病-2(Bcl-2)的表达上调,而细胞增殖相关蛋白和信号分子磷酸化哺乳动物雷帕霉素靶蛋白(p-mTOR)、真核翻译起始因子4E结合蛋白1(4E-BP1)、磷酸化真核翻译起始因子4E结合蛋白1(p-4E-BP1)和磷酸化p70核糖体蛋白S6激酶(p-p70S6K)的表达下调,最终导致睾丸中的精子发生障碍,影响动物的繁殖性能[31]。因此,给畜禽补充适量的硒对维持正常繁殖性能至关重要。相关研究发现,与无机硒(亚硒酸钠)相比,SeNPs在肉鸡胸肌和十二指肠组织中的生物利用度最高,其次是有机硒(硒代蛋氨酸),且无机硒在参与解毒过程的器官中蓄积量增加,而SeNPs未出现器官毒性累积[32]。因此,SeNPs通过降低毒性(较无机硒)和优化吸收效率(较有机硒),缓解了传统硒补充剂毒性高和生物利用率低的问题,为安全补硒提供了新策略。El-Kazaz等[33]比较了在饲粮中添加SeNPs对日本鹌鹑生殖性能及性行为等的影响,该研究将鹌鹑分为3组,在饲粮中分别添加0.2 mg/kg无机硒以及0.1、0.2 mg/kg SeNPs,结果发现,补充SeNPs显著增加了性行为,通过提高血浆睾酮水平和精子质量特征(精子数量、活力和生存能力)改善了睾丸功能,且在0.1 mg/kg SeNPs剂量下的效果更为明显。El-Shobokshy等[34]研究发现,在雌兔饲粮中补充0.3 mg/kg无机硒和0.2 mg/kg伊维菌素对其生长和繁殖性能产生了负面影响,而补充相同剂量的SeNPs则可改善由于长期注射伊维菌素对雌兔生长及繁殖性能的不良影响。

3.3 增强免疫力

适量的SeNPs可促进动物机体免疫细胞如自然杀伤细胞(NK细胞)、中性粒细胞及淋巴细胞等的增殖与分化,使机体有更多的免疫细胞抵御病原微生物,显著提高免疫力[35]。近年来,相关试验证明了SeNPs能刺激动物机体的体液、细胞及非特异性免疫,尤其是加强非特异性免疫,可增强吞噬细胞及NK细胞的活性,在抗肿瘤与抵御疾病上都具有重要的作用,可有效减少疾病的发生概率[36]。SeNPs还可通过增强真核翻译起始因子5A-1(eukaryotic translation initiation factor 5A-1,eIF5A-1)和蛋白质合成进而提高免疫球蛋白G(immunoglobulin G,IgG)和免疫球蛋白M(immunoglobulin M,IgM)的水平[37]。Salam等[38]研究发现,饲粮中补充0.1和0.2 mg/kg SeNPs组母羊所产的羔羊血清中免疫球蛋白的含量高于注射同等剂量条件下亚硒酸钠组,而对照组血清中免疫球蛋白含量最低,这说明给妊娠母羊补硒可提高哺乳期羔羊的免疫力,且补充0.1 mg/kg SeNPs时效果最佳。Gangadoo等[32]研究证明,SeNPs作为饲料添加剂,可有效改善肉鸡的免疫反应并维持健康。此外,Yehia等[39]研究通过将灭活的H5N1型人类高致病性禽流感(HPAI-H5N1)病毒与SeNPs联合使用观察能否增强鸡的免疫力,结果表明,不管是先饲喂含SeNPs(0.25、0.5和1 mg/kg)的饲粮后接种疫苗还是先饲喂不含SeNPs的饲粮后在0.5 mL疫苗中添加0.02、0.06和0.10 mg/剂量的SeNPs,接种后3周使用同源病毒攻毒,这2种方法均显著增加了白细胞介素-2(interleukin-2,IL-2)、白细胞介素-6(interleukin-6,IL-6)和干扰素γ(interferon γ,IFNγ)的表达,且均显示出病毒释放减少,肺脏、脾脏、肝脏及气管炎症减轻,说明在饲粮中添加SeNPs和在疫苗中添加SeNPs均可通过增强细胞免疫和减少炎症来提高免疫效力,以更好地保护鸡免受HPAI-H5N1病毒感染。综上所述,现有的关于SeNPs增强畜禽免疫力的研究多集中于效果观察,缺乏对SeNPs如何通过分子或细胞途径影响免疫系统的研究,未来需明确其免疫调节机制。

3.4 抑菌和抗癌

流行病学研究表明,体内硒含量低与患肺癌、结肠癌及前列腺癌的风险增加有关[40]。相关研究发现,SeNPs可通过不同的机制诱导癌细胞发生凋亡,对正常细胞产生的副作用较小,这是其发挥抗癌作用的重要分子机制[41]。Liu等[42]研究发现,补充功能化香菇多糖硒纳米颗粒(LET-SeNPs),将硒引入恶性胸腔积液中后,LET-SeNPs与NK细胞表面受体结合,并在细胞内进一步转化为TrxR1,随后通过调节TrxR1-白细胞介素18受体辅助蛋白(IL18RAP)-磷酸化信号转导和转录激活因子3(pSTAT3)途径促进NK细胞活化,导致肺癌细胞的根除并减少胸腔积液的产生。由于SeNPs具有抗癌活性强、生物利用度高及细胞毒性低等特点,目前已经成为了一种极具前途的抗癌药物,不仅在人肺癌及乳腺癌等上有相关研究,在畜禽生产上也有相关研究。此外,SeNPs还会限制细菌和真菌的生长,从而增强动物机体的抗菌性,作为广谱抗菌剂具有巨大的潜力[43]。SeNPs还可通过破坏DNA的结构[44]、抑制蛋白质的合成[45]及消耗细胞内的ATP,抑制细菌的呼吸代谢,进而达到抑菌的作用[46]。研究发现,在饲粮中添加0.4 g/kg的Che-SeNPs可以降低鹌鹑肠道内大肠杆菌、金黄色葡萄球菌、单核增生乳杆菌及蜡样芽胞杆菌等致病菌的数量,而乳酸杆菌的数量增多,有效减少了肠道致病菌[22]。同时,相关研究还发现,SeNPs对白色念珠菌、大肠杆菌、金黄色葡萄球菌、鼠伤寒沙门氏菌及铜绿假单胞菌等均具有生长抑制作用[47]。Sheiha等[48]开展的研究旨在通过比较生物法和化学法合成的SeNPs对热应激兔的影响,探究SeNPs对兔的抗菌活性,结果表明,生物法合成的SeNPs对致病菌的抑制效果比化学法合成的SeNPs更有效,且SeNPs对金黄色葡萄球菌和鼠伤寒沙门菌的抑制作用更为明确;同时,SeNPs与土霉素或黏菌素联合使用均提高了这2种抗生素对病原体的作用效率。
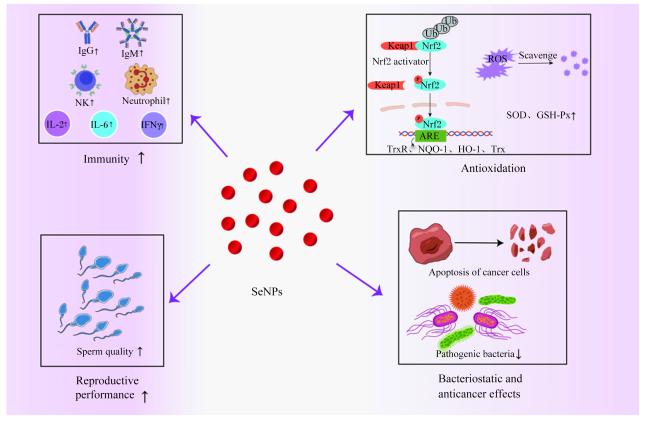
除了上述生物学功能(图2)外,SeNPs还能改善畜禽肠道屏障功能和肉品质、促进肠道健康发育、拮抗重金属毒性及预防动脉粥硬化等。研究发现,在饲粮中添加0.2 mg/kg SeNPs可通过激活鸡肠道NLR家族Pyrin域蛋白3(NLR family pyrin domain containing protein 3,NLRP3)信号通路,降低21日龄肉仔鸡肠道氧化应激和炎症反应,有效促进肠道杯状细胞的发育,从而增强肠道屏障功能[49]。未来仍需结合基因组学及蛋白质组学等技术揭示SeNPs更多靶点及多途径的作用机制。此外,还需研究不同制备方法、不同形态的SeNPs在生物学功能上的差异,探讨其结构与功能的关系。
图2 SeNPs的生物学功能示意图

SeNPs:纳米硒 nano-selenium;Immunity:免疫力;Antioxidation:抗氧化作用;Reproductive performance:繁殖性能;Bacteriostatic and anticancer effects:抑菌和抗癌作用;IgG:免疫球蛋白G immunoglobulin G;IgM:免疫球蛋白M immunoglobulin M;NK:自然杀伤细胞 natural killer cell;neutrophil:中性粒细胞;IL-2:白细胞介素-2 interleukin-2;IL-6:白细胞介素-6 interleukin-6;IFNγ:干扰素γ interferon γ;Nrf2:核因子E2相关因子 nuclear factor erythroid 2-related factor;Keap1:Kelch样相关蛋白1 Kelch-like ECH-associated protein 1;ARE:抗氧化反应元件 antioxidant response element;ROS:活性氧 reative oxygen species;SOD:超氧化物歧化酶 superoxide dismutase;GSH-Px:谷胱甘肽过氧化物酶 glutathion peroxidase;TrxR:硫氧还蛋白还原酶 thioredoxin reductase;NQO-1:NAD(P)H:醌氧化还原酶-1 NAD(P)H:quinone oxidoreductase-1;HO-1:血红素氧合酶-1 hemeoxygenase-1;Trx:硫氧还蛋白 thioredoxin;Nrf2 activator:Nrf2激活;Scavenge:清除;Sperm quality:精子质量;Apoptosis of cancer cells:癌细胞凋亡;Pathogenic bacteria:致病菌。

Fig.2 Schematic diagram of biological functions of SeNPs

4 SeNPs在畜禽生产中的应用

4.1 SeNPs在家禽生产中的应用

硒是维持家禽生长、健康及各种生理功能所必需的,在机体代谢中起着至关重要的作用。缺硒会导致家禽肌肉萎缩症、渗出性素质病及脑软化症等一系列症状,若摄入过多的硒则会导致中毒,而给家禽补充适量的硒可提高生产性能、产蛋性能及改善蛋和肉的品质等。Mohammadi等[50]研究了饲粮中添加不同硒源对肉鸡的影响,结果发现,添加0.3 mg/kg SeNPs可显著提高肉仔鸡胸肉中硒含量、生长性能和体液免疫,作用效果优于相同剂量的有机硒(富硒酵母)和无机硒(亚硒酸钠)。此外,Bień等[51]研究表明,相较于在肉鸡饲粮中添加无机硒和有机硒,添加0.5 mg/kg SeNPs生物利用度更高、毒性风险也较低,对活性氧引起的脂质过氧化损伤保护作用也更强。Zhou等[52]研究了甘氨酸纳米硒对蛋鸡的影响,结果表明,在饲粮中添加甘氨酸纳米硒可提高蛋鸡血液中的GSH-Px、SOD活性及总抗氧化能力,进而提高抗氧化能力,同时还可改善小肠结构,但对蛋品质和生产性能无显著影响,这可能是由于物种和剂量上的差异造成的,因此,需结合具体的养殖目标调整添加策略。相关研究发现,在基础饲粮中添加0.2 mg/kg SeNPs不会影响热应激生长鹌鹑的胴体性状、血液参数或基因表达,该剂量下SeNPs可提高鹌鹑的生长性能[53]。肉鸡腹水综合征(ascites syndrome,AS)是威胁肉鸡健康的主要疾病之一,表现为肉鸡腹腔积液,对心脏、肝脏和肾脏等器官造成损害,而内质网应激(endoplasmic reticulum stress,ERS)参与多种心脏疾病的发生,是调控心肌细胞在应激刺激下死亡/生存机制。Yang等[54]通过建立肉鸡心肌细胞凋亡模型和肉鸡腹水综合征模型研究SeNPs对AS心脏损伤的影响,采用蛋白质印迹(WB)法检测肉仔鸡心脏组织中ERS相关信号通路的表达,结果表明,SeNPs可通过抑制ERS标志基因转录激活因子6(ATF6)、葡萄糖调节蛋白78(GRP78)、半胱天冬酶12(Caspase 12)和C/EBP同源蛋白(CHOP)及其下游凋亡相关蛋白Caspase 3、半胱天冬酶9(Caspase 9)和Bcl-2相关X蛋白(Bax)的表达,提高Bcl-2的表达水平,维持内质网稳态,从而减轻肉仔鸡心肌细胞凋亡,减轻心肌损伤。目前,关于SeNPs在家禽生产中的安全范围及最佳添加剂量的研究尚不充分,同时,在饲粮中添加SeNPs时需要综合考虑家禽的品种、饲养条件及生长阶段等因素。

4.2 SeNPs在猪生产中的应用

研究发现,在母猪的基础饲粮中添加0.50 mg/kg SeNPs显著提高了仔猪血清和肝脏SOD、过氧化氢酶(catalase,CAT)、GSH-Px的活性及IgG和免疫球蛋白A(immunoglobulin A,IgA)的水平,并降低了仔猪MDA含量及肿瘤坏死因子-α(tumor necrosis factor-α,TNF-α)、IL-6和白细胞介素-1β(interleukin-1β,IL-1β)水平,表明饲喂母猪SeNPs饲粮可提高仔猪抗氧化能力和免疫功能,缓解了仔猪氧化损伤[55]。此外,SeNPs在公猪上也有一定的应用研究。相较于体细胞,精子细胞中的抗氧化酶表达水平显著下调,更容易受到氧化应激的影响,因此精子质量在长时间储存过程中会逐渐恶化,最终降低精子活力和生育能力。Paul等[56]研究表明,在贝尔茨维尔稀释液中添加SeNPs提高了公猪在15 ℃下短期保存的精液质量,1 μg/mL的SeNPs对公猪的精子活力及质膜、顶体和DNA完整性、线粒体膜电位的影响高于其他剂量的SeNPs,同时受孕率也最高。SeNPs的抗氧化作用在缓解猪肠上皮功能障碍上也有积极作用。Yan等[57]通过建立猪肠上皮细胞(IPEC-J2细胞)氧化应激模型研究SeNPs通过线粒体途径发挥抗氧化活性的机制,结果表明,SeNPs可有效拮抗H2O2对IPEC-J2细胞的毒性,上调闭合蛋白(occludin)和封闭蛋白-1(claudin-1)的表达水平,抑制雷帕霉素靶蛋白(mTOR)的磷酸化水平以及Unc-51样激酶1(ULK1)、微管相关蛋白1轻链3(LC3)-Ⅱ/LC3-Ⅰ、PTEN诱导激酶1(PINK1)和Parkin蛋白的表达水平,说明SeNPs可通过调节mTOR-PINK1介导的线粒体自噬,有效缓解H2O2诱导的肠上皮功能障碍。SeNPs在猪生产中的应用多集中在短期效应上,其在家畜体内的长期效应和安全性尚未完全评估,这增加了其在实际应用中的难度。目前,关于SeNPs提高猪生长性能的研究较少,现有成果多集中于鱼类和家禽领域。未来需进一步开展针对猪及其他畜禽的系统研究,明确SeNPs在不同生长阶段的促生长效应,并揭示其剂量依赖性和分子调控机制。

4.3 SeNPs在反刍动物生产中的应用

由于反刍动物瘤胃内的微生物会将如亚硒酸钠等硒补充剂还原为难以利用的零价硒或硒化物,导致硒利用率显著低于单胃动物(如猪、禽)。而SeNPs因具有纳米级颗粒及稳定的化学结构等特性而绕过瘤胃微生物的过度还原,显著提高了硒的利用率。Nateq等[58]研究了SeNPs对公羊精液的抗氧化作用,结果表明,与对照组和2 μg/mL SeNPs相比,1 μg/mL SeNPs可显著提高可公羊精子活力、总活力及质膜完整性,降低顶体膜损伤和异常精子,说明在稀释液中添加1 μg/mL的SeNPs可改善公羊精液的解冻后品质和贮藏过程中的氧化指标。Sadeghian等[59]研究了SeNPs对绵羊中性粒细胞和血液学指标的影响,结果发现,与对照组相比,1 mg/kg的SeNPs可增加中性粒细胞的数量、存活时间和活性,而淋巴细胞数量显著减少。硒在一定的剂量范围内才能提高反刍动物的免疫功能和抗氧化能力,反之则可能导致相反甚至中毒的结果。Li等[60]研究发现,相较于对照组,在饲粮中添加5 mg/kg SeNPs会使得乌蒙半细毛羊血红蛋白、红细胞计数及堆积细胞体积显著降低,血清乳酸脱氢酶、谷草转氨酶等活性显著升高;血清IgG、IgA、IgM、IL-2、TNF-α水平显著降低,而IL-6、IL-1β水平显著升高;血清SOD、CAT、GSH-Px活性及总抗氧化能力显著降低,而MDA含量显著升高,表明SeNPs中毒会使乌蒙半细毛羊的免疫功能和抗氧化能力大大降低。此外,研究发现,在奶牛饲粮中添加SeNPs可通过刺激瘤胃发酵、营养物质消化及乳腺发育和乳脂合成有关的基因和蛋白的表达,进而提高产奶量和饲料效率,其中,0.3 mg/kg SeNPs可促进过氧化物酶体增殖物激活受体γ(PPARγ)、固醇调节元件结合蛋白1(SREBP1)、乙酰辅酶A羧化酶(ACACA)、脂肪酸合酶(FASN)、硬脂酰辅酶A去饱和酶(SCD)、细胞周期蛋白A2(CCNA2)、细胞周期蛋白D1(CCND1)、增殖细胞抗原(PCNA)及Bcl-2 mRNA和蛋白的表达,降低BaxCaspase 3和Caspase 9 mRNA和蛋白的表达[61]。SeNPs有助于提高反刍动物抗氧化、繁殖性能及免疫力,但关于SeNPs如何影响瘤胃内微生物的生长、繁殖及代谢过程,进一步影响反刍动物的生产性能和整体健康状况,其作用机制尚不完全清楚。

5 小结

SeNPs具有生物利用度高、毒性低、表面积大及缓释活性等优点,在增强抗氧化和免疫力、提高繁殖性能和生长性能及改善畜禽肉品质等方面有重要的生物学意义,在畜禽养殖中发挥着重要作用,可解决硒应用的治疗窗口窄和毒性范围小的问题。但SeNPs在细胞、亚细胞和基因水平上的吸收、同化和作用的分子机制尚未完全阐明;SeNPs是否可以在体内建立任何硒储备仍需进一步探索;目前SeNPs的生产工艺尚处于实验室阶段,难以实现大规模、低成本生产,这限制了其在畜禽养殖中的推广应用;在畜禽营养中使用SeNPs是否会有长期的负面影响仍需进一步的研究。未来的研究要明确SeNPs在不同畜禽不同生长阶段的饲喂剂量,包括最佳添加量和中毒量,加强SeNPs的长期毒性评估和安全性研究。
[1]
CHILALA P, SKALICKOVA S, HORKY P. Selenium status of Southern Africa[J]. Nutrients, 2024, 16(7):975.

[2]
HOSSEINTABAR-GHASEMABAD B, KVAN O V, SHEIDA E V, et al. Nano selenium in broiler feeding:physiological roles and nutritional effects[J]. AMB Express, 2024, 14(1):117.

[3]
SURAI P F, KOCHISH I I, VELICHKO O A. Nano-Se assimilation and action in poultry and other monogastric animals:is gut microbiota an answer?[J]. Nanoscale Research Letters, 2017, 12(1):612.

[4]
PEDRO D, ROSA A P, LONDERO A, et al. Performance of broiler breeders supplemented with organic and inorganic minerals[J]. Anais da Academia Brasileira de Ciencias, 2021, 93(2):e20191048.

[5]
ALI M E, ABD-ELKARIEM M F A, FAHMY S, et al. Dietary supplementation with different nano and organic selenium doses improves ovarian activity,fertility rate,and progesterone level in Ossimi ewes[J]. Italian Journal of Animal Science, 2023, 22(1):651-659.

[6]
REDA F M, ALAGAWANY M, SALAH A S, et al. Biological selenium nanoparticles in quail nutrition:biosynthesis and its impact on performance,carcass,blood chemistry,and cecal microbiota[J]. Biological Trace Element Research, 2024, 202(9):4191-4202.

[7]
HASSAN S, HASSAN F U, REHMAN M S U. Nano-particles of trace minerals in poultry nutrition:potential applications and future prospects[J]. Biological Trace Element Research, 2020, 195(2):591-612.

[8]
CHEN J, GUO Y X, ZHANG X L, et al. Emerging nanoparticles in food:sources,application,and safety[J]. Journal of Agricultural and Food Chemistry, 2023, 71(8):3564-3582.

[9]
PYRZYNSKA K, SENTKOWSKA A. Biosynthesis of selenium nanoparticles using plant extracts[J]. Journal of Nanostructure in Chemistry, 2022, 12(4):467-480.

[10]
CHEN N, YAO P, ZHANG W, et al. Selenium nanoparticles:enhanced nutrition and beyond[J]. Critical Reviews in Food Science and Nutrition, 2023, 63(33):12360-12371.

[11]
RUIZ-FRESNEDA M A, STAICU L C, LAZUÉN-LÓPEZ G, et al. Allotropy of selenium nanoparticles:colourful transition,synthesis,and biotechnological applications[J]. Microbial Biotechnology, 2023, 16(5):877-892.

[12]
DU C D, WANG P Y, LI Y, et al. Investigation of selenium and selenium species in Cardamine violifolia using in vitro digestion coupled with a Caco-2 cell monolayer model[J]. Food Chemistry, 2024,444:138675.

[13]
LIU G Y, JI T, PAN J W, et al. Study on the digestion and absorption property of Lycium barbarum polysaccharide-protein stabilized selenium nanoparticles from the perspective of stability in vitro[J]. LWT-Food Science and Technology, 2024,198:115921.

[14]
MIZUTANI T, GOTO C, TOTSUKA T. Mammalian selenocysteine tRNA,its enzymes and selenophosphate[J]. Journal of Health Science, 2000, 46(6):399-404.

[15]
LOESCHNER K, HADRUP N, HANSEN M, et al.Absorption, distribution,metabolism and excretion of selenium following oral administration of elemental selenium nanoparticles or selenite in rats[J]. Metallomics, 2014, 6(2):330-337.

[16]
BAO P, CHEN S C, XIAO K Q. Dynamic equilibrium of endogenous selenium nanoparticles in selenite-exposed cancer cells:a deep insight into the interaction between endogenous SeNPs and proteins[J]. Molecular BioSystems, 2015, 11(12):3355-3361.

[17]
SADEK K M, LEBDA M A, ABOUZED T K, et al. Neuro- and nephrotoxicity of subchronic cadmium chloride exposure and the potential chemoprotective effects of selenium nanoparticles[J]. Metabolic Brain Disease, 2017, 32(5):1659-1673.

DOI PMID

[18]
SONG D G, CHENG Y Z, LI X X, et al. Biogenic nanoselenium particles effectively attenuate oxidative stress-induced intestinal epithelial barrier injury by activating the Nrf2 antioxidant pathway[J]. ACS Applied Materials & Interfaces, 2017, 9(17):14724-14740.

[19]
CAI S J, WU C X, GONG L M, et al. Effects of nano-selenium on performance, meat quality,immune function,oxidation resistance,and tissue selenium content in broilers[J]. Poultry Science, 2012, 91(10):2532-2539.

[20]
CEMIN H S, VIEIRA S L, STEFANELLO C, et al. Broiler responses to increasing selenium supplementation using Zn-L-selenomethionine with special attention to breast myopathies[J]. Poultry Science, 2018, 97(5):1832-1840.

DOI PMID

[21]
BIEÑ D, MICHALCZUK M, ŁYSEK-GŁADYSIÑSKA M, et al. Nano-sized selenium maintains performance and improves health status and antioxidant potential while not compromising ultrastructure of breast muscle and liver in chickens[J]. Antioxidants, 2023, 12(4):905.

[22]
ALAGAWANY M, QATTAN S Y A, ATTIA Y A, et al. Use of chemical nano-selenium as an antibacterial and antifungal agent in quail diets and its effect on growth,carcasses,antioxidant,immunity and caecal microbes[J]. Animals, 2021, 11(11):3027.

[23]
LEE J, HOSSEINDOUST A, KIM M, et al. Supplemental hot melt extruded nano-selenium increases expression profiles of antioxidant enzymes in the livers and spleens of weanling pigs[J]. Animal Feed Science and Technology, 2020,262:114381.

[24]
MACIEJEWSKI R, RADZIKOWSKA-BÜCHNER E, FLIEGER W, et al. An overview of essential microelements and common metallic nanoparticles and their effects on male fertility[J]. International Journal of Environmental Research and Public Health, 2022, 19(17):11066.

[25]
UNAR A, AFRIDI H I, ALI A, et al. Determination of electrolytes and trace elements in biological samples from patients with altered semen parameters:a correlational analysis[J]. Biological Trace Element Research, 2025, 203(3):1383-1394.

[26]
AHSAN U, KAMRAN Z, RAZA I, et al. Role of selenium in male reproduction—a review[J]. Animal Reproduction Science, 2014, 146(1/2):55-62.

[27]
GIBB Z, BLANCO-PRIETO O, BUCCI D. The role of endogenous antioxidants in male animal fertility[J]. Research in Veterinary Science, 2021,136:495-502.

[28]
GHAFARIZADEH A A, VAEZI G, SHARIATZADEH M A, et al. Effect of in vitro selenium supplementation on sperm quality in asthenoteratozoospermic men[J]. Andrologia, 2018, 50(2):e12869.

[29]
KEYVANSHOKOOH S, SALATI A P, GHASEMI A, et al. Reproductive benefits of dietary selenium nanoparticles (SeNPs) in Asian seabass (Lates calcarifer) male broodstock[J]. Marine Biotechnology, 2025, 27(1):45.

DOI PMID

[30]
MARIANI N, ZAHARI M W, MARINI A, et al. The libido,scrotal circumference,sperm quality,and testosterone levels of matured Boer bucks supplemented with selenium[J]. Tropical Animal Science Journal, 2022, 45(2):154-163.

[31]
XU Z J, LIU M, NIU Q J, et al. Both selenium deficiency and excess impair male reproductive system via inducing oxidative stress-activated PI3K/AKT-mediated apoptosis and cell proliferation signaling in testis of mice[J]. Free Radical Biology & Medicine, 2023,197:15-22.

[32]
GANGADOO S, DINEV I, WILLSON N L, et al. Nanoparticles of selenium as high bioavailable and non-toxic supplement alternatives for broiler chickens[J]. Environmental Science and Pollution Research, 2020, 27(14):16159-16166.

[33]
EL-KAZAZ S E, ABO-SAMAHA M I, HAFEZ M H, et al. Dietary supplementation of nano-selenium improves reproductive performance,sexual behavior and deposition of selenium in the testis and ovary of Japanese quail[J]. Journal of Advanced Veterinary and Animal Research, 2020, 7(4):597-607.

[34]
EL-SHOBOKSHY S A, ABO-SAMAHA M I, EL-RHEEM S M A, et al. Dietary supplementation of nano-selenium eliminates the negative effects of long-term ivermectin injection on growth and reproductive performance of female rabbits[J]. Journal of Advanced Veterinary and Animal Research, 2022, 9(1):128-137.

[35]
SHABANI R, FAKHRAEI J, YARAHMADI H M, et al. Effect of different sources of selenium on performance and characteristics of immune system of broiler chickens[J]. Revista Brasileira de Zootecnia, 2019,48:e20180256.

[36]
JU H, YU C, ZHANG X D, et al. Recent trends in anti-cancer activities of terrestrial plants-based polysaccharides:a review[J]. Carbohydrate Polymer Technologies and Applications, 2023,6:100341.

[37]
SOLIMAN E S, MAHMOUD F F, FADEL M A, et al. Prophylactic impact of nano-selenium on performance,carcasses quality,and tissues’ selenium concentration using reversed-phase high-performance liquid chromatography during microbial challenge in broiler chickens[J]. Veterinary World, 2020, 13(9):1780-1797.

[38]
SALAM A, EL-SHAMAA I S, METWALLY A M, et al. Effect of selenium administration on reproductive outcome and biochemical parameters to ewes and their lambs[J]. Journal of Animal and Poultry Production, 2021, 12(12):379-386.

[39]
YEHIA N, ABDELSABOUR M A, ERFAN A M, et al. Selenium nanoparticles enhance the efficacy of homologous vaccine against the highly pathogenic avian influenza H5N1 virus in chickens[J]. Saudi Journal of Biological Sciences, 2022, 29(4):2095-2111.

DOI PMID

[40]
RAYMAN M P. Selenium and human health[J]. The Lancet, 2012, 379(9822):1256-1268.

[41]
KHURANA A, TEKULA S, SAIFI M A, et al. Therapeutic applications of selenium nanoparticles[J]. Biomedicine & Pharmacotherapy, 2019,111:802-812.

[42]
LIU S W, LI N J, LAI H Q, et al. Selenium nanoparticles enhance NK cell-mediated tumoricidal activity in malignant pleural effusion via the TrxR1-IL-18RAP-pSTAT3 pathway[J]. Advanced Functional Materials, 2024, 34(30):2401264.

[43]
ABBAS H S, ABOU BAKER D H, AHMED E A. Cytotoxicity and antimicrobial efficiency of selenium nanoparticles biosynthesized by Spirulina platensis[J]. Archives of Microbiology, 2021, 203(2):523-532.

[44]
AHMED F, ZHANG D W, TANG X Y, et al. Targeting spore-forming bacteria:a review on the antimicrobial potential of selenium nanoparticles[J]. Foods, 2024, 13(24):4026.

[45]
WANG L H, YANG H, KONG Y, et al. Research progress on bacteriostasis of nano selenium[J]. Asian Agricultural Research, 2021, 13(4):34-47.

[46]
HUANG T, HOLDEN J A, HEATH D E, et al. Engineering highly effective antimicrobial selenium nanoparticles through control of particle size[J]. Nanoscale, 2019, 11(31):14937-14951.

DOI PMID

[47]
NGUYEN T H D, VARDHANABHUTI B, LIN M S, et al. Antibacterial properties of selenium nanoparticles and their toxicity to Caco-2 cells[J]. Food Control, 2017,77:17-24.

[48]
SHEIHA A M, ABDELNOUR S A, ABD EL-HACK M E, et al. Effects of dietary biological or chemical-synthesized nano-selenium supplementation on growing rabbits exposed to thermal stress[J]. Animals, 2020, 10(3):430.

[49]
CHEN Y H, WU W, ZHOU H J, et al. Selenium nanoparticles improved intestinal health through modulation of the NLRP3 signaling pathway[J]. Frontiers in Nutrition, 2022,9:907386.

[50]
MOHAMMADI E, JANMOHAMMADI H, OLYAYEE M, et al. Nano selenium improves humoral immunity,growth performance and breast-muscle selenium concentration of broiler chickens[J]. Animal Production Science, 2020, 60(16):1902-1910.

[51]
BIEÑ D, MICHALCZUK M, SZKOPEK D, et al. Changes in lipids metabolism indices as a result of different form of selenium supplementation in chickens[J]. Scientific Reports, 2022, 12(1):13817.

DOI PMID

[52]
ZHOU W T, MIAO S S, ZHU M K, et al. Effect of glycine nano-selenium supplementation on production performance,egg quality,serum biochemistry,oxidative status,and the intestinal morphology and absorption of laying hens[J]. Biological Trace Element Research, 2021, 199(11):4273-4283.

[53]
MAHMOUD R, SALAMA B, SAFHI F A, et al. Assessing the impacts of different levels of nano-selenium on growth performance,serum metabolites,and gene expression in heat-stressed growing quails[J]. Veterinary Sciences, 2024, 11(6):228.

[54]
YANG X Q, LIU X, LIU J Q, et al. Selenium nanoparticles reduce cardiomyocyte apoptosis in ascites syndrome in broiler chickens via the ATF6-DR5 signaling pathway[J]. Animal Diseases, 2023,3:22.

[55]
LIU C L, LI Y F, LI H Y, et al. Nano-selenium and macleaya cordata extracts improved immune functions of intrauterine growth retardation piglets under maternal oxidation stress[J]. Biological Trace Element Research, 2022, 200(9):3975-3982.

[56]
PAUL D R, TALUKDAR D, AHMED F A, et al. Effect of selenium nanoparticles on the quality and fertility of short-term preserved boar semen[J]. Frontiers in Veterinary Science, 2023,10:1333841.

[57]
YAN S Q, QIAO L, DOU X N, et al. Biogenic selenium nanoparticles by Lactobacillus casei ATCC 393 alleviate the intestinal permeability,mitochondrial dysfunction and mitophagy induced by oxidative stress[J]. Food & Function, 2021, 12(15):7068-7080.

[58]
NATEQ S, MOGHADDAM G, ALIJANI S, et al. The effects of different levels of nano selenium on the quality of frozen-thawed sperm in ram[J]. Journal of Applied Animal Research, 2020, 48(1):434-439.

[59]
SADEGHIAN S, KOJOURI G A, MOHEBBI A. Nanoparticles of selenium as species with stronger physiological effects in sheep in comparison with sodium selenite[J]. Biological Trace Element Research, 2012, 146(3):302-308.

DOI PMID

[60]
LI Y F, HE J, SHEN X Y. Effects of nano-selenium poisoning on immune function in the Wumeng semi-fine wool sheep[J]. Biological Trace Element Research, 2021, 199(8):2919-2924.

[61]
LIU Y P, ZHANG J, BU L J, et al. Effects of nanoselenium supplementation on lactation performance,nutrient digestion and mammary gland development in dairy cows[J]. Animal Biotechnology, 2024, 35(1):2290526.

文章导航

/