研究论文

犊牛期瘤胃微生物干预对其泌乳期生产性能的影响

  • 朱宽 , 1, 2 ,
  • 沈宜钊 3, * ,
  • 徐宏建 1, 2 ,
  • 张志宏 4 ,
  • 王美美 1, 2 ,
  • 马峰涛 1, 2 ,
  • 李妍 2, 5 ,
  • 李云飞 1, 2 ,
  • 马宇飞 1, 2 ,
  • 杨二红 6 ,
  • 张秀江 7 ,
  • 高艳霞 , 1, 2, 8, 9, ** ,
  • 李建国 , 1, 2, 8, 9, **
展开
  • 1 河北农业大学动物科技学院,保定 071001
  • 2 农业农村部奶牛健康养殖重点实验室(部省共建),保定 071001
  • 3 山东农业大学动物科技学院,泰安 271000
  • 4 君乐宝乳业集团有限公司,石家庄 050000
  • 5 河北农业大学动物医学院,保定 071001
  • 6 保定弘达牧业有限公司,保定 072154
  • 7 保定市畜牧工作站,保定 071001
  • 8 河北省牛羊胚胎技术创新中心,保定 071001
  • 9 河北省乳制品产业技术研究院,石家庄 050000
**高艳霞,研究员,硕士生导师,E-mail: ;
李建国,教授,博士生导师,E-mail:

*同等贡献作者

朱 宽(1999—),男,河北保定人,硕士研究生,研究方向为动物营养与饲料科学。E-mail:

Office editor: 陈 鑫

收稿日期: 2025-02-27

  网络出版日期: 2025-10-15

基金资助

财政部和农业农村部-国家现代农业产业技术体系资助(CARS-36-20)

河北省自然科学基金生物联合基金(C2022204247)

河北省现代农业产业技术体系奶牛创新团队项目(HBCT2023180207)

河北省高端人才项目(6012018)

河北农业大学精准畜牧学科群建设项目(1090064)

Effects of Rumen Microbiota Intervention during Calf Period on Performance in Lactation Period

  • ZHU Kuan , 1, 2 ,
  • SHEN Yizhao 3 ,
  • XU Hongjian 1, 2 ,
  • ZHANG Zhihong 4 ,
  • WANG Meimei 1, 2 ,
  • MA Fengtao 1, 2 ,
  • LI Yan 2, 5 ,
  • LI Yunfei 1, 2 ,
  • MA Yufei 1, 2 ,
  • YANG Erhong 6 ,
  • ZHANG Xiujiang 7 ,
  • GAO Yanxia , 1, 2, 8, 9, ** ,
  • LI Jianguo , 1, 2, 8, 9, **
Expand
  • 1 College of Animal Science and Technology, Agricultural University of Hebei, Baoding 071001, China
  • 2 Key Laboratory of Healthy Dairy Breeding of Dairy Cattle of the Ministry of Agriculture and Rural Affairs (Jointly Established by the Ministry and Province), Baoding 071001, China
  • 3 College of Animal Science and Technology, Shandong Agricultural University, Tai’an 271000, China
  • 4 Junlebao Dairy Group Co., Ltd., Shijiazhuang 050000, China
  • 5 College of Veterinary Medicine, Agricultural University of Hebei, Baoding 071001, China
  • 6 Baoding Hongda Animal Husbandry Co., Ltd., Baoding 072154, China
  • 7 Institute of Animal Husbandry and Veterinary Medicine of Hebei Province, Baoding 071001, China
  • 8 Hebei Province Cattle and Sheep Embryo Technology Innovation Center, Baoding 071001, China
  • 9 Hebei Dairy Industry Technology Research Institute, Shijiazhuang 050000, China
**GAO Yanxia, professor, E-mail: ;
LI Jianguo, professor, E-mail:

*Contributed equally

Received date: 2025-02-27

  Online published: 2025-10-15

摘要

本试验旨在研究犊牛期瘤胃微生物干预对其泌乳期生产性能的影响。试验选择初生重相近、健康的新生荷斯坦犊牛36头,采用完全随机试验设计,将犊牛分为3组:对照组(CON组)、瘤胃微生物移植组(RMT组)、瘤胃液移植组(RFT组),每组12头。在犊牛时期,CON组饲喂生鲜乳;RMT组将带有活菌的瘤胃液立即与牛乳混合饲喂;RFT组将采集的瘤胃液经高压蒸汽灭菌锅灭菌后冷却至常温,并于次日与RMT组同一时间饲喂。其中,RMT组和RFT组瘤胃液的添加量在7~11日龄、21~25日龄和42~46日龄3个阶段分别为50、80和110 mL。对试验犊牛进行长期追踪,在第2泌乳期的第26~28天采集饲粮、粪便、血液、瘤胃液和牛奶样品,对犊牛期瘤胃微生物干预的长期效应进行探索,试验期3年。样品采集时,CON组采集8头,RMT组采集10头,RFT组采集11头。结果显示:1)各组干物质采食量、乳脂率、乳脂产量、乳糖率、乳糖产量、3.5%乳脂校正乳含量、脂蛋比、总固形物含量、体细胞数和乳尿素氮含量差异不显著(P>0.05),但相对于CON组和RFT组,RMT组产奶量、乳蛋白率和乳蛋白产量显著提高(P<0.05),并且有提高能量校正乳含量的趋势(P=0.056)。2)各组干物质、有机物、粗蛋白质、粗脂肪、半纤维素和非纤维性碳水化合物的表观消化率无显著差异(P>0.05)。但与CON组和RFT组相比,RMT组中性洗涤纤维和酸性洗涤纤维的表观消化率显著提高(P<0.05)。3)各组血清甘油三酯、葡萄糖、总蛋白、白蛋白、球蛋白、尿素氮、非酯化脂肪酸、β-羟丁酸、丙二醛含量,白蛋白/球蛋白,谷丙转氨酶、超氧化物歧化酶活性和总抗氧化能力均无显著差异(P>0.05),但与CON组相比,RMT组血清谷胱甘肽过氧化物酶活性有增加的趋势(P=0.074)。4)各组瘤胃液pH、氨态氮和挥发性脂肪酸含量差异不显著(P>0.05),但相对于CON组和RFT组,RMT组微生物蛋白含量显著提高(P<0.05)。5)各组奶牛瘤胃微生物丰富度和多样性指数没有显著差异(P>0.05)。在门水平上,与CON组相比,RMT组放线菌门相对丰度极显著升高(P<0.01)。在科水平上,与CON组相比,RMT组双歧杆菌科相对丰度极显著升高(P<0.01)。在属水平上,与CON组相比,RMT组巨型球菌属相对丰度显著升高(P<0.05),RFT组巨型球菌属相对丰度极显著升高(P<0.01)。在种水平上,与CON组相比,RMT组埃氏巨型球菌、Fibrobacter_sp_UWH4、Pseudoscardovia radai和产琥珀酸丝状杆菌相对丰度显著升高(P<0.05),RFT组埃氏巨型球菌、Fibrobacter_sp_UWH4和Pseudoscardovia radai相对丰度极显著升高(P<0.01)。综上所述,犊牛期通过灌服来自成年牛瘤胃液的方式进行早期干预可以影响其成年后瘤胃微生物群落和奶牛表型,在成年期依然表现出纤维消化率和抗氧化能力的提高,同时提高了产奶量和乳蛋白率,改善了乳品质,因此,犊牛期瘤胃微生物移植可能是一种适宜的奶牛高效培育技术。

本文引用格式

朱宽 , 沈宜钊 , 徐宏建 , 张志宏 , 王美美 , 马峰涛 , 李妍 , 李云飞 , 马宇飞 , 杨二红 , 张秀江 , 高艳霞 , 李建国 . 犊牛期瘤胃微生物干预对其泌乳期生产性能的影响[J]. 动物营养学报, 2025 , 37(10) : 6867 -6879 . DOI: 10.12418/CJAN2025.559

Abstract

This experiment was conducted to study the effects of rumen microbiota intervention during calf period on performance in lactation period. Thirty-six healthy newborn Holstein calves with similar birth weight were randomly divided into three groups: the control group (CON group), the rumen microbiota transplantation group (RMT group), and the rumen fluid transplantation group (RFT group), with 12 calves in each group. During calf period, the CON group was fed fresh raw milk. The RMT group: rumen fluid containing live microbiota was immediately mixed with milk for feeding. The RFT group: rumen fluid was sterilized using an autoclave, cooled to room temperature, and fed at the same time as the RMT group on the next day. A volume of 50, 80 and 110 mL of ruminal fluid was fed at 7 to 11 days of age, 21 to 25 days of age, and 42 to 46 days of age, respectively. A long-term tracking study was conducted on the experimental calves, feed, feces, blood, rumen fluid, and milk samples were collected on days 26 to 28 of the second lactation to explore the long-term effects of rumen microbiota intervention. The experiment period was 3 years. At the time of sample collection, there were 8 cows in the CON group, 10 cows in the RMT group, and 11 cows in the RFT group. The results showed as follows: 1) although there were no significant differences in dry matter intake, milk fat percentage, milk fat yield, lactose percentage, lactose yield, 3.5% fat-corrected milk, fat-to-protein ratio, total solids content, somatic cell count, and milk urea nitrogen content (P>0.05), the milk yield, milk protein percentage, and milk protein yield in RMT group were significantly higher than those in CON and RFT groups (P<0.05), and the energy-corrected milk in RMT group tended to increase (P=0.056). 2) There were no significant effects of different treatments on the apparent digestibility of dry matter, organic matter, crude protein, ether extract, hemicellulose, and non-fiber carbohydrates (P>0.05). However, the apparent digestibility of neutral detergent fiber and acid detergent fiber in the RMT group was significantly higher than that in the CON and RFT groups (P<0.05). 3) There were no significant effects of different treatments on serum triglycerides, glucose, alanine aminotransferase, total protein, albumin, globulin, urea nitrogen, non-esterified fatty acids, β-hydroxybutyrate, malondialdehyde contents, albumin-to-globulin ratio, superoxide dismutase and superoxide dismutase activities and total antioxidant capacity (P>0.05). However, serum glutathione peroxidase activity in RMT group tended to increase (P=0.074). 4) There were no significant differences in rumen fluid pH, ammonia nitrogen, and volatile fatty acids contents among the groups (P>0.05). However, the rumen microbial protein content in RMT group was significantly higher than that in CON and RFT groups (P<0.05). 5) There were no significant differences in rumen microbial richness and diversity indexes among the groups (P>0.05). At the phylum level, the relative abundance of Actinobacteria in RMT group was significantly higher than that in CON group (P<0.01). At the family level, the relative abundance of Bifidobacteriaceae in RMT group was also significantly higher than that in CON group (P<0.01). At the genus level, the relative abundance of Megasphaera in RMT group was significantly higher than that in CON group (P<0.05), with an even more pronounced increase observed in RFT group (P<0.01). At the species level, the relative abundances of Megasphaera elsdenii, Fibrobacter_sp_UWH4, Pseudoscardovia radai, and Fibrobacter succinogenes in RMT group were significantly higher than that in CON group (P<0.05), while the relative abundance of Megasphaera elsdenii, Fibrobacter_sp_UWH4, and Pseudoscardovia radai in RFT group was also significantly higher than that in CON group (P<0.01). In summary, early intervention by feeding rumen fluid from adult cows with live bacteria during calf period can influence the rumen microbial community and phenotypes in adulthood, improvements in fiber digestibility and antioxidant capacity are still observed, along with increased milk yield and milk protein percentage, which enhances milk quality. Therefore, rumen microbial transplantation during calf period may be a suitable technique for the efficient breeding of dairy cows.

牛奶中含有大量易被人体吸收的营养物质、矿物质、维生素和重要的生物活性成分,有助于维持人体的新陈代谢,降低多种疾病发生的风险,对人体健康产生有益影响[1]。随着收入增长和营养健康意识增强,未来奶类消费仍有较大增长空间。因此,提高我国奶牛生产性能是当前我国奶牛生产的重中之重。
反刍动物的机体代谢[2]、免疫功能[3]和泌乳性能[4-5]等与消化道微生物菌群密切相关。奶牛作为反刍动物,消化道微生物菌群结构和稳定是影响其生产性能的重要因素。因此,定向改变奶牛的消化道微生物菌群可能是定向改善奶牛生产性能的重要手段。瘤胃微生物移植已被广泛应用于重塑瘤胃微生物菌群和恢复瘤胃发酵[6]。Mu等[7]研究发现,瘤胃内容物移植改变了瘤胃微生物群落,但是会在短期内恢复到移植前水平。Kong等[8]研究表明,给新产牛灌服泌乳高峰期奶牛瘤胃液,发现这个处理对于新产牛产奶量的改善是较为短暂的。以上研究表明,成年牛微生物移植只能在短期内影响奶牛生产性能,无法保持长期稳定的效果,可能是由于成年牛消化道发育比较成熟,微生物菌群相对稳定,外源微生物不易定植。而犊牛瘤胃发育不完善,犊牛阶段作为消化道微生物菌群的建立阶段,可能是微生物移植定向调控瘤胃微生物区系的适宜阶段[9]。此期定向调控的微生物区系可能不仅仅具有短期效应,可能对奶牛的一生的都有影响。本课题组前期研究发现,将高粗料饲粮供体牛的新鲜瘤胃液添加到牛乳中饲喂犊牛,能显著提高犊牛的纤维消化率,同时能够提高犊牛的抗氧化能力,显著提高犊牛的饲养水平[10]。然而,瘤胃微生物移植对生产性能的长期效应尚不明确。因此,本研究将在前期的研究基础上对犊牛期瘤胃微生物干预的长期效应进行探索。

1 材料与方法

1.1 试验时间与地点

2020年8月进行犊牛期瘤胃微生物移植试验,2023年试验牛36月龄产犊后,进行后续样品采集。试验期3年,在河北保定宏达牧业进行。

1.2 试验设计

所有试验动物样品采集方案均经过河北农业大学实验动物伦理委员会审核通过,编号YS19003。
本试验为前期犊牛试验牛只的追踪试验[10],以3头健康、体况和月龄相近的装有永久性瘘管的成年荷斯坦阉牛作为瘤胃液供体牛。供体牛饲粮类型为高粗料饲粮,中性洗涤纤维(NDF)含量为50.16%,酸性洗涤纤维(ADF)含量为31.15%。试验分为3组,每组12头牛。对照组(CON组)犊牛饲喂生鲜牛乳,瘤胃微生物移植组(RMT组)将带有活菌的瘤胃液立即与牛乳混合饲喂,瘤胃液移植组(RFT组)将采集的瘤胃液经高压蒸汽灭菌锅灭菌后冷却至常温,并于次日与RMT组同一时间饲喂。其中,RMT组和RFT组瘤胃液的添加量在7~11日龄、21~25日龄和42~46日龄3个阶段分别为50、80和110 mL/d。饲养过程中,严格遵循单一变量原则,其他因素均保持一致。在第2泌乳期第26~28天采集饲粮、粪便、血液、瘤胃液和牛奶样品,对犊牛期瘤胃微生物干预的长期效应进行探索。样品采集时,CON组采集8头,RMT组采集10头,RFT组采集11头。

1.3 饲养管理及饲粮

所有饲喂管理方式按照该牧场管理标准执行,牛群自由采食和饮水,保证5%的剩料。每日挤奶3次(06:00、13:30和21:00),饲喂2次(08:00、16:00)。牛舍定期消毒,保持牛舍内外的干燥、通风卫生。基础饲粮组成及营养水平见表1
表1 基础饲粮组成及营养水平(干物质基础)

Table 1 Composition and nutrient levels of the basal diet (DM basis) %

项目Items 含量Content
原料Ingredients
全株玉米青贮Whole corn silage 34.30
苜蓿干草Alfalfa hay 12.40
燕麦干草Oat hay 4.30
蒸汽压片玉米Steam flaked corn 17.20
豆粕Soybean meal 14.16
甜菜颗粒Pelleted sugar beet pulp 4.03
菜籽粕Rapeseed meal 1.15
大豆皮Soybean hull 1.74
小麦麸皮Wheat bran 1.38
全棉籽Whole cottonseed 6.25
脂肪粉Fat powder 0.65
氧化镁MgO 0.12
磷酸氢钙CaHPO4 0.64
小苏打NaHCO3 0.45
食盐NaCl 0.18
石粉Limestone 0.35
碳酸钾K2CO3 0.07
预混料Premix1) 0.61
脱霉剂Mold remover 0.02
合计Total 100.00
营养水平Nutrient levels2)
泌乳净能NEL/(MJ/kg) 7.28
有机物OM 92.20
粗蛋白质CP 17.60
粗脂肪EE 5.21
中性洗涤纤维NDF 32.20
酸性洗涤纤维ADF 20.50
钙Ca 0.82
磷P 0.46

1)每千克预混料含量 One kg of premix contained the following:VA 710 000 IU,VD3 280 000 IU,VE 11 000 mg,Cu 1 800 mg,Fe 1 700 mg,Zn 7 215 mg,Mn 4 000 mg,Co 58 mg,Se 60 mg,I 110 mg。2)泌乳净能是参照NASEM(2021)计算,其他营养水平为测定值。NEL was a calculated value according to NASEM (2021), while other nutrient levels were measured values.

1.4 样品采集与处理

1.4.1 饲粮样品、粪便样品的采集

试验期间记录泌乳第22~28天投料量和剩料量,用四分法采集饲粮样品,测定营养物质含量,并计算干物质采食量。泌乳第26~28天,直肠采集奶牛粪便样品。将粪便分成2份,一份样品直接装入自封样品袋制备成风干样品,用于干物质(DM)、有机物(OM)、粗脂肪(EE)、NDF、ADF和粗灰分(Ash)含量的测定,另一份样品按照每100 g新鲜粪便加入20 mL浓度为10%的H2SO4处理,并于-20 ℃保存,用于测定粪便粗蛋白质(CP)含量。

1.4.2 奶样的采集

试验期间记录泌乳第22~28天产奶量。泌乳第26~28天采集奶样。将早、中、晚收集的奶样按4∶3∶3的比例混匀,加入重铬酸钾防腐剂混合均匀4 ℃冷藏,用于乳成分测定。

1.4.3 瘤胃液样品的采集

泌乳第28天晨饲前,用口腔采样法采集瘤胃液,为减少口腔和食道中唾液和黏液的污染,初始采集100 mL的瘤胃液被丢弃。随后将收集到的瘤胃液经4层纱布过滤后取得滤液,一份直接装于冻存管中,立即放置在液氮罐中,实验室转移至-80 ℃冰箱冷冻保存,用于分析瘤胃微生物。其余分装在10 mL离心管中,一份立即测定pH,一份加入0.1 mL 6 mol/L盐酸固氮,置于-20 ℃的环境中保存,用于氨态氮(NH3-N)含量测定;另外2份-20 ℃保存,经处理后用于微生物蛋白(MCP)和挥发性脂肪酸(VFA)含量测定。

1.4.4 血液样品的采集

泌乳第28天晨饲前,通过尾静脉采血于肝素钠抗凝管和促凝管中,37 ℃水浴30 min,1 240×g离心15 min分离出上清,用尖嘴吸管吸取上清,分装于1.5 mL离心管中,-20 ℃冷冻保存,用于测定奶牛的血清生化指标和抗氧化指标。

1.5 样品测定

1.5.1 营养物质表观消化率的测定

DM含量参照GB/T 6435—2014的方法测定,EE含量参照GB/T 6433—2025的方法测定,CP含量参照GB/T 6432—2018的方法测定,Ash含量参考GB/T 6438—2025的方法测定,NDF含量参照GB/T 20806—2022的方法测定,ADF含量参照NY/T 1459—2022的方法测定,钙和磷含量分别参照GB/T 6436—2018和GB/T 6437—2018的方法测定,OM含量通过100%减去Ash含量(%)计算得出。酸不溶灰分法(GB/T 23742—2009)测定营养物质表观消化率,计算公式如下:
营养物质表观消化率(%)=[(a/c-b/d)/(a/c)]×100。
式中:a为饲粮中该营养物质含量(%);b为粪便中该营养物质含量(%);c为饲粮中酸不溶灰分含量(%);d为粪便中酸不溶灰分含量(%)。

1.5.2 乳成分的测定

奶样送往河北省DHI检测中心,进行乳脂率、乳蛋白率、乳糖率、总固形物和乳尿素氮含量、体细胞数的测定。3.5%乳脂校正乳(3.5%FCM)和能量校正乳(ECM)计算公式如下:

3.5%FCM(kg/d)=[0.432 3×产奶量(kg/d)]+[16.216×乳脂产量(kg/d)];

ECM(kg/d)=[0.327×产奶量(kg/d)]+[12.95×乳脂产量(kg/d)]+[7.20×乳蛋白产量(kg/d)]。

1.5.3 瘤胃发酵参数的测定

瘤胃液pH使用酸度计(Denver UB-7,美国)测定。MCP含量采用考马斯亮蓝法[11]测定。NH3-N含量采用苯酚-次氯酸钠法[12]测定。VFA含量采用气相色谱法测定(Agilent,7890A,30 m × 0.32 mm × 0.25 mm;柱温150 ℃;进样器温度200 ℃;检测器温度250 ℃)。

1.5.4 血清生化指标的测定

采用南京建成生物工程研究所的商业试剂盒测定血清中总蛋白(TP)、白蛋白(ALB)、葡萄糖(GLU)、尿素氮(UN)、甘油三酯(TG)含量。使用酶联免疫吸附试验(ELISA)分析血清中的β-羟丁酸(BHBA)和非酯化脂肪酸(NEFA)含量、总抗氧化能力(T-AOC)、谷胱甘肽过氧化物酶(GSH-Px)活性、丙二醛(MDA)含量、超氧化物歧化酶(SOD)活性。

1.5.5 瘤胃微生物测定

从采集的瘤胃液样本中提取微生物基因组DNA(QIAamp Fast DNA Stool Mini Kit)后构建文库并质检(Agilent 2100 Bioanalyzer)。质检合格后利用华大智造DNBSEQ-T7平台进行宏基因组测序。随后,从原始数据中去污染序列(Kneaddata)并进行微生物基因组的重头组装(MetaBat)。

1.6 数据统计与分析

使用MetaPhlAn2软件制作微生物分类图谱。使用QIIME 2计算Observed species丰富度和Shannon、Simpson等Alpha多样性指数和Beta多样性距离矩阵,基于Bray-Curtis距离的主坐标分析(PCoA)使用R(v3.6.0)软件,通过序列分析(SAMSA)软件包,在域、门、纲、目、科、属和种水平上进行分类分析,并使用Kruskal-Wallis H检验比较组间微生物的相对丰度。其余数据采用SAS 9.4的PROC MIXED模型进行单因素方差分析,采用Duncan氏法进行多重比较,P<0.01为差异极显著,P<0.05为差异显著,0.05≤P<0.10为有显著趋势。

2 结果

2.1 犊牛期瘤胃微生物干预对其泌乳期采食量和泌乳性能的影响

表2可知,各组间干物质采食量、乳脂率、乳脂产量、乳糖率、乳糖产量、3.5%FCM含量、脂蛋比、总固形物含量、体细胞数和乳尿素氮含量无显著差异(P>0.05),但相对于CON组和RFT组,RMT组产奶量、乳蛋白率和乳蛋白产量显著提高(P<0.05),并且ECM有提高的趋势(P=0.056)。
表2 犊牛期瘤胃微生物干预对其泌乳期采食量和泌乳性能的影响

Table 2 Effects of rumen microbiota intervention during calf period on feed intake and milk performance in lactation period

项目
Items
组别Groups SEM P
P-value
CON RMT RFT
干物质采食量DMI/(kg/d) 21.53 21.55 21.20 0.322 0.685
产奶量Milk yield/(kg/d) 31.15b 34.69a 30.58b 1.163 0.034
乳脂率Milk fat percentage/% 3.86 3.91 3.74 0.217 0.835
乳脂产量Milk fat yield/(kg/d) 1.20 1.36 1.14 0.093 0.220
乳蛋白率Milk protein percentage/% 3.15b 3.52a 3.16b 0.112 0.042
乳蛋白产量Milk protein yield/(kg/d) 0.98b 1.22a 0.97b 0.060 0.010
乳糖率Lactose percentage/% 5.13 5.09 5.17 0.048 0.508
乳糖产量Lactose yield/(kg/d) 1.60 1.77 1.58 0.068 0.105
3.5%乳脂校正乳3.5%FCM/(kg/d) 32.97 37.12 31.78 1.879 0.113
能量校正乳ECM/(kg/d) 32.81 37.83 31.81 1.847 0.056
脂蛋比FPR 1.23 1.11 1.19 0.066 0.444
总固形物Total solids/% 12.71 13.03 12.58 0.297 0.528
体细胞数SCC/(×104个/mL) 19.25 18.80 19.00 2.072 0.989
乳尿素氮MUN/(mg/dL) 11.08 10.46 10.83 0.466 0.661

同行数据肩标不同字母表示差异显著(P<0.05),相同或无字母表示差异不显著(P>0.05)。下表同。

In the same row, values with different letter superscripts mean significant difference (P<0.05), while with the same or no letter superscripts mean no significant difference (P>0.05). The same as below.

2.2 犊牛期瘤胃微生物干预对其泌乳期营养物质表观消化率的影响

表3可知,各组间DM、OM、CP、EE、半纤维素(HEMID)和非纤维性碳水化合物(NFC)的表观消化率无显著差异(P>0.05),但与CON组和RFT组相比,RMT组NDF和ADF的表观消化率显著提高(P<0.05)。
表3 犊牛期瘤胃微生物干预对其泌乳期营养物质表观消化率的影响

Table 3 Effects of rumen microbiota intervention during calf period on nutrient apparent digestibility in lactation period %

项目
Items
组别Groups SEM P
P-value
CON RMT RFT
干物质DM 70.18 71.59 70.29 1.236 0.668
有机物OM 73.06 74.45 72.75 1.175 0.543
粗蛋白质CP 72.60 72.93 72.10 1.155 0.865
中性洗涤纤维NDF 43.63b 48.90a 44.56b 1.241 0.013
酸性洗涤纤维ADF 39.96b 43.82a 40.52b 0.898 0.011
粗脂肪EE 81.03 82.16 81.16 1.218 0.772
半纤维素HEMID 49.28 56.73 50.78 2.664 0.134
非纤维性碳水化合物NFC 96.05 94.78 94.80 1.536 0.818

2.3 犊牛期瘤胃微生物干预对其泌乳期血清生化指标的影响

表4可知,各组TG、GLU、ALT、TP、ALB、GLB、UN、NEFA和BHBA含量及ALB/GLB均无显著差异(P>0.05)。
表4 犊牛期瘤胃微生物干预对其泌乳期血清生化指标的影响

Table 4 Effects of rumen microbiota intervention during calf period on serum biochemical indexes in lactation period

项目
Items
组别Groups SEM P
P-value
CON RMT RFT
甘油三酯TG/(mmol/L) 0.09 0.11 0.11 0.008 0.304
葡萄糖GLU/(mmol/L) 2.48 2.36 2.42 0.158 0.860
谷丙转氨酶ALT/(U/L) 29.35 31.23 28.90 1.477 0.484
总蛋白TP/(g/L) 67.44 66.38 63.48 1.488 0.162
白蛋白ALB/(g/L) 29.09 29.79 29.19 0.527 0.604
球蛋白GLB/(g/L) 38.35 36.60 34.29 1.523 0.190
白蛋白/球蛋白ALB/GLB 0.78 0.83 0.86 0.040 0.328
尿素氮UN/(mmol/L) 6.24 6.10 6.14 0.339 0.958
非酯化脂肪酸NEFA/(μmol/mL) 0.13 0.14 0.16 0.017 0.528
β-羟丁酸BHBA/(mmol/L) 0.67 0.64 0.66 0.078 0.961

2.4 犊牛期瘤胃微生物干预对其泌乳期血清抗氧化指标的影响

表5可知,虽然各组血清MDA含量、SOD活性、T-AOC差异不显著(P>0.05),但RMT组血清GSH-Px活性有增加的趋势(P=0.074)。
表5 犊牛期瘤胃微生物干预对其泌乳期血清抗氧化指标的影响

Table 5 Effects of rumen microbiota intervention during calf period on serum antioxidant indexes in lactation period

项目
Items
组别Groups SEM P
P-value
CON RMT RFT
丙二醛MDA/(nmol/mL) 1.57 1.51 1.55 0.052 0.766
超氧化物歧化酶SOD/(U/mL) 44.99 48.04 46.70 1.572 0.428
谷胱甘肽过氧化物酶GSH-Px/(μmol/L) 29.72 37.00 32.41 2.119 0.074
总抗氧化能力T-AOC/(U/mL) 9.02 8.75 8.64 0.173 0.320

2.5 犊牛期瘤胃微生物干预对其泌乳期瘤胃发酵参数的影响

表6可知,虽然各组瘤胃液pH,NH3-N和VFA含量差异不显著(P>0.05),但相对于CON组和RFT组,RMT组MCP含量显著提高(P<0.05)。
表6 犊牛期瘤胃微生物干预对其泌乳期瘤胃发酵参数的影响

Table 6 Effects of rumen microbiota intervention during calf period on ruminal fermentation parameters in lactation period

项目
Items
组别Groups SEM P
P-value
CON RMT RFT
pH 6.38 6.46 6.41 0.095 0.816
氨态氮NH3-N/(mg/dL) 10.37 10.55 9.99 0.978 0.911
微生物蛋白MCP/(μg/mL) 106.73b 127.25a 107.65b 5.059 0.011
总挥发性脂肪酸Total VFA/(mmol/L) 99.35 100.90 100.38 2.626 0.921
乙酸Acetate/% 60.72 61.57 62.01 0.765 0.510
丙酸Propionate/% 23.88 24.32 23.31 0.822 0.663
丁酸Butyrate/% 11.48 10.26 10.66 0.446 0.188
戊酸Valerate/% 1.44 1.35 1.35 0.073 0.642
异丁酸Isobutyrate/% 0.80 0.78 0.83 0.049 0.750
异戊酸Isovalerate/% 1.68 1.71 1.84 0.130 0.661
乙酸/丙酸A/P 2.59 2.57 2.68 0.116 0.757
乙酸Acetate/(mmol/L) 60.35 62.13 62.18 1.723 0.721
丙酸Propionate/(mmol/L) 23.66 24.55 23.42 1.005 0.693
丁酸Butyrate/(mmol/L) 11.42 10.36 10.76 0.611 0.500
戊酸Valerate/(mmol/L) 1.43 1.36 1.35 0.078 0.750
异丁酸Isobutyrate/(mmol/L) 0.80 0.79 0.83 0.051 0.798
异戊酸Isovalerate/(mmol/L) 1.69 1.72 1.83 0.136 0.737

2.6 犊牛期瘤胃微生物干预对其泌乳期瘤胃微生物的影响

2.6.1 瘤胃微生物Alpha多样性分析

表7可知,各组Observed_species、Shannon和Simpson指数均无显著差异(P>0.05)。
表7 犊牛期瘤胃微生物干预对其泌乳期瘤胃微生物多样性的影响

Table 7 Effects of rumen microbiota intervention during calf period on rumen microbial diversity in lactation period

项目
Items
组别Groups SEM P
P-value
CON RMT RFT
Observed species指数Observed species index 74.00 79.00 74.00 3.100 0.407
Shannon指数Shannon index 2.35 2.47 2.31 0.071 0.224
Simpson指数Simpson index 0.81 0.83 0.79 0.019 0.356

2.6.2 瘤胃微生物Beta多样性分析

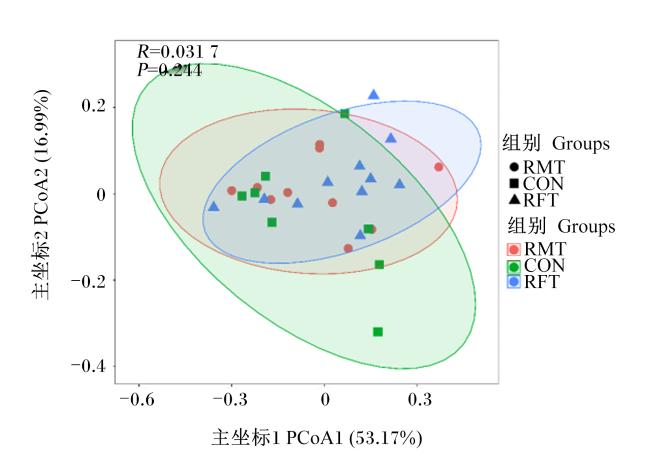
基于Bray-Curtis算法对瘤胃液样本进行PCoA,如图1所示,各组未在PCoA上表现出明显分离。
图1 基于Bray-Curtis距离的PCoA

Fig.1 PCoA based on Bray-Curtis distance

2.6.3 犊牛期瘤胃微生物干预对其泌乳期瘤胃微生物组成的影响

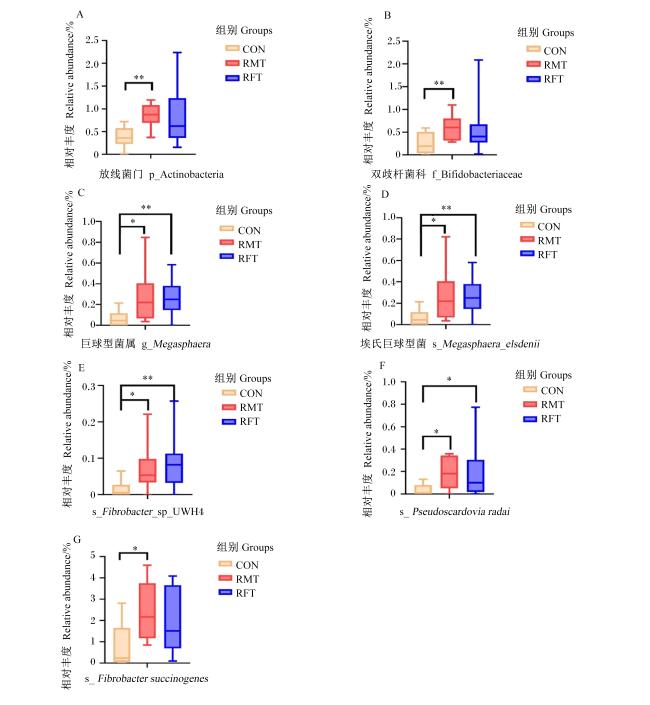
图2所示,在门水平上,与CON组相比,RMT组放线菌门相对丰度极显著升高(P<0.01)(图2-A)。在科水平上,与CON组相比,RMT组双歧杆菌科相对丰度极显著升高(P<0.01)(图2-B)。在属水平上,与CON组相比,RMT组巨型球菌属相对丰度显著升高(P<0.05),RFT组巨型球菌属相对丰度极显著升高(P<0.01)(图2-C)。在种水平上,与CON组相比,RMT组埃氏巨型球菌、Fibrobacter sp UWH4、Pseudoscardovia radai和产琥珀酸丝状杆菌相对丰度显著升高(P<0.05),RFT组埃氏巨型球菌、Fibrobacter sp UWH4和Pseudoscardovia radai相对丰度极显著升高(P<0.01)(图2-D图2-E图2-F图2-G)。
图2 瘤胃差异微生物

*表示差异显著(P<0.05),* *表示差异极显著(P<0.01)。

Fig.2 Rumen differential microbes

*mean significant difference (P<0.05), * * mean extremely significant difference (P<0.01).

3 讨论

3.1 犊牛期瘤胃微生物干预对其泌乳期采食量和泌乳性能的影响

成年反刍动物的瘤胃微生物菌群结构已经成熟,能够维持相对稳,很难引入新的菌群[13],因此,成年反刍动物微生物移植一般以短期效应为主。而犊牛菌群组成尚不成熟[14],具有很大的调节空间。本研究发现,在不影响采食量的情况下,RMT组奶牛生产性能有所提高,而RFT组无显著影响,说明犊牛期移植的微生物代谢产物对奶牛无显著影响,而RMT组奶牛生产性能的提高可能与该组的菌群变化有关。谢云怡[15]的研究发现,高产奶牛和低产奶牛消化道微生物组成存在显著差异。Rager等[16]给术后奶牛移植新鲜的高产奶牛瘤胃液,发现产奶量显著提高,而Weimer等[17]将高产与低产奶牛95%的瘤胃内容物进行交换,也发现低产奶牛的产奶效率得到提升,说明产奶量这一表型性状能通过定向的微生物移植来提高,而本研究是在犊牛期进行的微生物移植,说明犊牛期的微生物移植可能长期稳定存在,并实现成年期表型的定向调控。Furman等[18]研究发现,早期定植的微生物可以对动物产生长远的影响。Wang等[19]的研究也发现,幼龄时期的微生物能在消化道稳定存在,并影响成年表型,均支持了该假设。
奶牛瘤胃微生物消化代谢为乳成分合成提供能量和前体物质[20],乳蛋白的合成主要依赖于氨基酸的供应[21]。本研究中,RMT组乳蛋白率和乳蛋白产量显著提高,可能是因为瘤胃中MCP合成增加导致的。MCP是奶牛合成氨基酸的重要来源,瘤胃MCP合成提高,小肠可吸收利用的氨基酸增加,导致乳蛋白合成增加。Schwab等[22]综述了MCP在奶牛氨基酸需求中的关键作用,也证实了提高MCP的合成有利于乳蛋白的合成。

3.2 犊牛期瘤胃微生物干预对其泌乳期营养物质表观消化率的影响

营养物质表观消化率反映了动物对饲粮中营养成分的消化和吸收能力。本研究发现,RMT组奶牛NDF和ADF表观消化率显著提高,可能与微生物变化有关。Chen等[23]将奶山羊的瘤胃微生物移植到小鼠体内,发现纤维降解菌能够定植到小鼠肠道,并改善其纤维降解能力,并且具有长期影响,说明微生物移植是调控肠道瘤胃微生物的有效方法。本研究发现,RMT组纤维消化率提高,且与犊牛时期的结果一致,说明犊牛期的微生物移植可能稳定存在,并长期影响奶牛表型。Yu等[24]通过给新生羔羊灌服新鲜瘤胃液,发现微生物移植能提高饲料消化率,并且具有长期影响,与本试验结果一致。此外,RMT组纤维消化率的提高也可能是产奶量增加的原因之一[25]

3.3 犊牛期瘤胃微生物干预对其泌乳期血清生化指标和抗氧化指标的影响

血液GLU、NEFA和BHBA是奶牛能量代谢中的重要指标。GLU可以为机体提供能量,当GLU含量不足以维持机体需要时,机体会分解脂肪。NEFA是脂肪动员的产物,当奶牛处于能量负平衡时,脂肪组织中的甘油三酯被分解为甘油和脂肪酸,这些脂肪酸进入血液循环,成为NEFA。当氧化反应超过自身能力阈值时,部分NEFA在肝脏中氧化时,就会转化为BHBA[26-28]。本研究发现,各组血清GLU、NEFA和BHBA含量均无显著差异,因此不同处理的牛能量代谢未受影响。TP是血液中所有蛋白质的总量,主要包括ALB和GLB,可以反映奶牛蛋白质的营养水平,本研究发现各组血清TP、ALB和ALB含量均无显著差异,说明处理没有影响牛蛋白质平衡。抗氧化能力对奶牛健康和生产性能至关重要[29-30]。T-AOC是指生物体中所有抗氧化物质和抗氧化酶的总抗氧化水平,T-AOC越高,抗氧化能力越强[31]。GSH-Px能特异性地催化过氧化氢等物质的解毒反应,防止因自由基产生的有氧代谢物对细胞结构造成损伤[32-33]。本研究发现,虽然RMT组奶牛T-AOC没有像犊牛时期的提高,但是GSH-Px活性提高了,也说明奶牛抗氧化能力有所提高。

3.4 犊牛期瘤胃微生物干预对其泌乳期瘤胃发酵参数的影响

反刍动物瘤胃NH3-N含量是反映瘤胃氮代谢的重要指标,NH3-N含量与瘤胃壁吸收和微生物的利用密切相关,在瘤胃保持动态平衡。本研究发现,各组瘤胃NH3-N含量无显著差异,而血液和牛奶的尿素氮是由瘤胃吸收的NH3-N在肝脏合成或由肝脏外周组织的氨基酸分解代谢产生的,这可能是本试验MUN和血清UN含量无显著差异的原因。NH3-N也是合成MCP的主要原料,RMT组MCP含量高,可能是因为瘤胃微生物对NH3-N的利用效率高导致的。MCP合成能力与乳蛋白产量密切相关[34]。MCP不仅在代谢蛋白质中占主要比例,而且其氨基酸质量也非常高,其中的必需氨基酸组成与牛奶中的氨基酸高度相似[22],并且MCP中的氨基酸具有相当高的消化率,RMT组MCP含量显著提高,与该组乳蛋白产量增加的结果相对应。Li等[35]研究发现,高纤维饲粮可以改变瘤胃发酵模式,提高瘤胃乙酸含量。纤维素降解会产生VFA[36-38],而本研究结果显示,各组瘤胃VFA含量无显著差异,分析原因可能与采样时间有关,消化率代表奶牛全天的消化状态,而瘤胃液采集是在晨饲前,可能无法准确表示奶牛瘤胃全天的生理状态。

3.5 犊牛期瘤胃微生物干预对其泌乳期瘤胃微生物的影响

奶牛作为一种反刍动物,瘤胃中栖息着种类繁多、数量巨大的微生物,主要包括瘤胃细菌、古菌、原虫和厌氧真菌,还有少数噬菌体[39],瘤胃微生物的组成和功能对宿主的生产性能起重要作用。α多样性是反映物种群落丰富度和物种多样性的综合指标,Observed species指数越大,微生物丰富度越高;Shannon和Simpson指数越大,微生物多样性越高。本研究发现,α多样性未受影响,与本课题组前期的研究结果[40-41]一致,说明微生物对动物表型的影响可能不是单纯通过微生物菌群多样性影响,可能与关键微生物有关。Wang等[19]通过长期追踪试验发现,青年羊瘤胃关键微生物可调控饲料效率,并对成年期泌乳性能产生长期影响。
纤维素和HEMID作为植物细胞壁的主要结构成分,在瘤胃内被微生物降解,产生VFA,为宿主提供能量。产琥珀酸丝状杆菌和其他的纤维降解菌如黄色瘤胃球菌和白色瘤胃球菌相比,具有更高的纤维降解效率[42]。这可能是因为该菌能够分泌外切与内切半纤维素酶,使HEMID被降解,从而使产琥珀酸丝状杆菌分泌的纤维素酶直接接触纤维素,最终能够高效降解并代谢纤维素[43]。此外,该菌还可分泌具有高活性的木聚糖酶,木聚糖作为HEMID的主要成分之一,木聚糖酶的分泌可使HEMID更好的降解[42]。本研究发现,RMT组产琥珀酸丝状杆菌相对丰度显著提高,可能是该组NDF和ADF表观消化率提高的原因。双歧杆菌是反刍动物胃肠道中的重要益生菌,能够产生多种类型的细菌素以抑制病原菌的生长,其相对丰度的提高有助于维持消化道微生物稳态[44]Pseudoscardovia radai是双歧杆菌的一种,其能够以淀粉和糖原等复杂碳水化合物为底物,通过分泌葡萄糖苷酶以促进碳水化合物的分解[45]。本研究结果发现,RMT组和RFT组双歧杆菌中Pseudoscardovia radai相对丰度提高,说明饲喂瘤胃液可能对试验牛有健康影响。埃氏巨型球菌是瘤胃中主要的乳酸利用菌,耐酸性强,在瘤胃酸中毒情况下仍然可以代谢乳酸,平衡瘤胃pH,有效缓解瘤胃酸中毒[46]。赵秀娟[47]给饲喂高精料饲粮的奶山羊灌注埃氏巨型球菌后发现瘤胃pH得以改善的同时还缓解了山羊的炎症反应,提高了抗氧化能力。本研究中,RMT组和RFT组瘤胃埃氏巨型球菌相对丰度提高,且瘤胃液pH在数值上与CON组相比也有提高,说明埃氏巨型球菌可以有效降低瘤胃酸中毒的风险。

4 结论

犊牛期通过灌服带有活菌的成年牛瘤胃液进行早期干预,能够调控成年后瘤胃微生物群落,显著提高成年期纤维消化率、产奶量和乳蛋白率,改善了乳品质,同时也有提高机体抗氧化应激能力的潜力,与犊牛期纤维消化率的提高和抗氧化能力提高的结果一致。因此,犊牛期瘤胃微生物移植进行早期干预有效实现了消化道微生物定植干预,并长期影响奶牛表型,是一种适宜的犊牛早期培育技术。
[1]
CIMMINO F, CATAPANO A, VILLANO I, et al. Invited review:human,cow,and donkey milk comparison:focus on metabolic effects[J]. Journal of Dairy Science, 2023, 106(5):3072-3085.

[2]
CHEN X D, SU X D, LI J L, et al. Real-time monitoring of ruminal microbiota reveals their roles in dairy goats during subacute ruminal acidosis[J]. NPJ Biofilms and Microbiomes, 2021, 7(1):45.

DOI PMID

[3]
GU F F, ZHU S L, TANG Y F, et al. Gut microbiome is linked to functions of peripheral immune cells in transition cows during excessive lipolysis[J]. Microbiome, 2023, 11(1):40.

DOI PMID

[4]
WANG X L, ZENG H F, XU J, et al. Characteristics of ruminal microbiota and metabolome in Holstein cows differing in milk protein concentrations[J]. Journal of Animal Science, 2022, 100(11):skac253.

[5]
XUE M Y, SUN H Z, WU X H, et al. Multi-omics reveals that the rumen microbiome and its metabolome together with the host metabolome contribute to individualized dairy cow performance[J]. Microbiome, 2020, 8(1):64.

[6]
HUANG S, ZHENG G, MEN H K, et al. The response of fecal microbiota and host metabolome in dairy cows following rumen fluid transplantation[J]. Frontiers in Microbiology, 2022,13:940158.

[7]
MU Y Y, QI W P, ZHANG T, et al. Changes in rumen fermentation and bacterial community in lactating dairy cows with subacute rumen acidosis following rumen content transplantation[J]. Journal of Dairy Science, 2021, 104(10):10780-10795.

DOI PMID

[8]
KONG F L, WANG F R, ZHANG Y J, et al. Repeated inoculation with rumen fluid accelerates the rumen bacterial transition with no benefit on production performance in postpartum Holstein dairy cows[J]. Journal of Animal Science and Biotechnology, 2024, 15(1):17.

DOI PMID

[9]
GUO C Y, JI S K, YAN H, et al. Dynamic change of the gastrointestinal bacterial ecology in cows from birth to adulthood[J]. MicrobiologyOpen, 2020, 9(11):e1119.

DOI PMID

[10]
郭延菲, 沈宜钊, 李妍, 等. 饲喂成年牛瘤胃液对哺乳犊牛生长性能、纤维消化和血清生化指标的影响[J]. 动物营养学报, 2021, 33(10):5965-5973.

DOI

GUO Y F, SHEN Y Z, LI Y, et al. Effects of feeding adult bovine rumen fluid on growth performance, fiber digestion and serum biochemical indexes of calves[J]. Chinese Journal of Animal Nutrition, 2021, 33(10):5965-5973. (in Chinese)

[11]
MAKKAR H P, SHARMA O P, DAWRA R K, et al. Simple determination of microbial protein in rumen liquor[J]. Journal of Dairy Science, 1982, 65(11):2170-2173.

PMID

[12]
BRODERICK G A, KANG J H. Automated simultaneous determination of ammonia and total amino acids in ruminal fluid and in vitro media[J]. Journal of Dairy Science, 1980, 63(1):64-75.

[13]
MOYA A, FERRER M. Functional redundancy-induced stability of gut microbiota subjected to disturbance[J]. Trends in Microbiology, 2016, 24(5):402-413.

DOI PMID

[14]
DIAO Q Y, ZHANG R, FU T. Review of strategies to promote rumen development in calves[J]. Animals, 2019, 9(8):490.

[15]
谢云怡. 不同饲料效率奶牛的瘤胃微生物功能和乳腺氨基酸代谢差异及其机制研究[D].博士学位论文. 杭州: 浙江大学, 2021.

XIE Y Y. Variations in ruminal microbial function and mammary gland amino acid metabolism in dairy cows with different feed efficiency[D].Ph.D.Thesis. Hangzhou: Zhejiang University, 2021. (in Chinese)

[16]
RAGER K D, GEORGE L W, HOUSE J K, et al. Evaluation of rumen transfaunation after surgical correction of left-sided displacement of the abomasum in cows[J]. Journal of the American Veterinary Medical Association, 2004, 225(6):915-920.

[17]
WEIMER P J, COX M S, VIEIRA DE PAULA T, et al. Transient changes in milk production efficiency and bacterial community composition resulting from near-total exchange of ruminal contents between high- and low-efficiency Holstein cows[J]. Journal of Dairy Science, 2017, 100(9):7165-7182.

DOI PMID

[18]
FURMAN O, SHENHAV L, SASSON G, et al. Stochasticity constrained by deterministic effects of diet and age drive rumen microbiome assembly dynamics[J]. Nature Communications, 2020, 11(1):1904.

DOI PMID

[19]
WANG D D, CHEN L Y, TANG G F, et al. Multi-omics revealed the long-term effect of ruminal keystone bacteria and the microbial metabolome on lactation performance in adult dairy goats[J]. Microbiome, 2023, 11(1):215.

DOI PMID

[20]
XUE M Y, SUN H Z, WU X H, et al. Assessment of rumen microbiota from a large dairy cattle cohort reveals the Pan and core bacteriomes contributing to varied phenotypes[J]. Applied and Environmental Microbiology, 2018, 84(19):e00970-18.

[21]
DOEPEL L, PACHECO D, KENNELLY J J, et al. Milk protein synthesis as a function of amino acid supply[J]. Journal of Dairy Science, 2004, 87(5):1279-1297.

PMID

[22]
SCHWAB C G, BRODERICK G A. A 100-year review:protein and amino acid nutrition in dairy cows[J]. Journal of Dairy Science, 2017, 100(12):10094-10112.

[23]
CHEN X D, YAN F, LIU T, et al. Ruminal microbiota determines the high-fiber utilization of ruminants:evidence from the ruminal microbiota transplant[J]. Microbiology Spectrum, 2022, 10(4):e0044622.

[24]
YU S B, SHI W B, YANG B, et al. Effects of repeated oral inoculation of artificially fed lambs with lyophilized rumen fluid on growth performance,rumen fermentation,microbial population and organ development[J]. Animal Feed Science and Technology, 2020,264:114465.

[25]
JIANG M C, DATSOMOR O, CHENG Z Q, et al. Partial substitution of alfalfa hay by stevia (Stevia rebaudiana) hay can improve lactation performance,rumen fermentation,and nitrogen utilization of dairy cows[J]. Frontiers in Veterinary Science, 2022,9:899148.

[26]
MACRAE A I, BURROUGH E, FORREST J, et al. Prevalence of excessive negative energy balance in commercial United Kingdom dairy herds[J]. The Veterinary Journal, 2019,248:51-57.

[27]
OVERTON T R, MCART J A A, NYDAM D V. A 100-year review: metabolic health indicators and management of dairy cattle[J]. Journal of Dairy Science, 2017, 100(12):10398-10417.

DOI PMID

[28]
RABOISSON D, MOUNIÉ M, DISEASES M E, et al. Diseases,reproductive performance,and changes in milk production associated with subclinical ketosis in dairy cows:a Meta-analysis and review[J]. Journal of Dairy Science, 2014, 97(12):7547-7563.

[29]
SAMSONOWICZ M, REGULSKA E. Spectroscopic study of molecular structure,antioxidant activity and biological effects of metal hydroxyflavonol complexes[J]. Spectrochimica Acta Part A:Molecular and Biomolecular Spectroscopy, 2017,173:757-771.

[30]
FUKAI T, USHIO-FUKAI M. Superoxide dismutases:role in redox signaling,vascular function,and diseases[J]. Antioxidants & Redox Signaling, 2011, 15(6):1583-1606.

[31]
SUN L L, GAO S T, WANG K, et al. Effects of source on bioavailability of selenium,antioxidant status,and performance in lactating dairy cows during oxidative stress-inducing conditions[J]. Journal of Dairy Science, 2019, 102(1):311-319.

[32]
SORDILLO L M, AITKEN S L. Impact of oxidative stress on the health and immune function of dairy cattle[J]. Veterinary Immunology and Immunopathology, 2009, 128(1/2/3):104-109.

[33]
LEMMER I L, WILLEMSEN N, HILAL N, et al. A guide to understanding endoplasmic reticulum stress in metabolic disorders[J]. Molecular Metabolism, 2021,47:101169.

[34]
ZHANG C G, WANG M Y, LIU H F, et al. Multi-omics reveals that the host-microbiome metabolism crosstalk of differential rumen bacterial enterotypes can regulate the milk protein synthesis of dairy cows[J]. Journal of Animal Science and Biotechnology, 2023, 14(1):63.

DOI PMID

[35]
LI Q S, WANG R, MA Z Y, et al. Dietary selection of metabolically distinct microorganisms drives hydrogen metabolism in ruminants[J]. The ISME Journal, 2022, 16(11):2535-2546.

[36]
KITTELMANN S, SEEDORF H, WALTERS W A, et al. Simultaneous amplicon sequencing to explore co-occurrence patterns of bacterial,archaeal and eukaryotic microorganisms in rumen microbial communities[J]. PLoS One, 2013, 8(2):e47879.

[37]
FLINT H J, BAYER E A, RINCON M T, et al. Polysaccharide utilization by gut bacteria:potential for new insights from genomic analysis[J]. Nature Reviews Microbiology, 2008, 6(2):121-131.

[38]
MIZRAHI I. The role of the rumen microbiota in determining the feed efficiency of dairy cows[M]//ROSENBERG E,GOPHNA U.Beneficial microorganisms in multicellular life forms. Berlin,Heidelberg:Springer, 2011:203-210.

[39]
WANG S P, GILLER K, KREUZER M, et al. Contribution of ruminal fungi,archaea,protozoa,and bacteria to the methane suppression caused by oilseed supplemented diets[J]. Frontiers in Microbiology, 2017,8:1864.

[40]
SHEN Y Z, LI Y, WU T T, et al. Early microbial intervention reshapes phenotypes of newborn Bos taurus through metabolic regulations[J]. GigaScience, 2024,13:giad118.

[41]
DONG Q B, HUA D X, WANG X C, et al. Temporal colonization and metabolic regulation of the gut microbiome in neonatal oxen at single nucleotide resolution[J]. The ISME Journal, 2024, 18(1):wrad022.

[42]
KOBAYASHI Y, SHINKAI T, KOIKE S. Ecological and physiological characterization shows that Fibrobacter succinogenes is important in rumen fiber digestion-review[J]. Folia Microbiologica, 2008, 53(3):195-200.

[43]
SUEN G, WEIMER P J, STEVENSON D M, et al. The complete genome sequence of Fibrobacter succinogenes S85 reveals a cellulolytic and metabolic specialist[J]. PLoS One, 2011, 6(4):e18814.

[44]
ZAFAR M, ALAM S, SABIR M, et al. Isolation,characterization,bacteriocin production and biological potential of Bifidobacteria of ruminants[J]. Analytical Biochemistry, 2022,658:114926.

[45]
BIAVATI B, MATTARELLI P. Chapter 3-related genera within the family bifidobacteriaceae[M]//MATTARELLI P, BIAVATI B, HOLZAPFEL W H,et al. The bifidobacteria and related organisms:biology,taxonomy,applications. London: Academic press, 2018:49-66.

[46]
HENNING P H, HORN C H, LEEUW K J, et al. Effect of ruminal administration of the lactate-utilizing strain Megasphaera elsdenii (Me) NCIMB 41125 on abrupt or gradual transition from forage to concentrate diets[J].Animal Feed Science and Technology, 2010, 157(1/2):20-29.

[47]
赵秀娟. 埃氏巨型球菌的代谢特征及其在防控山羊瘤胃酸中毒中的应用研究[D].硕士学位论文. 扬州: 扬州大学, 2024.

ZHAO X J. Characteristics of catabolism by Megasphaera eldenii and its application in the prevention of rumen acidosis in goats[D].Master’s Thesis. Yangzhou: Yangzhou University, 2024. (in Chinese)

文章导航

/