研究论文

抗脲酶纳米抗体在毕赤酵母中的诱导表达

  • 孔静 ,
  • 胡钰峰 ,
  • 郑楠 ,
  • 王加启 ,
  • 赵圣国 , *
展开
  • 中国农业科学院北京畜牧兽医研究所,畜禽营养与饲养全国重点实验室,北京 100193
*赵圣国,研究员,博士生导师,E-mail:

孔 静(1999—),女,山东曲阜人,硕士研究生,从事反刍动物营养与饲料科学研究。E-mail:

Office editor: 菅景颖

收稿日期: 2025-02-17

  网络出版日期: 2025-10-15

基金资助

国家自然科学基金项目(32272888)

Inducible Expression of an Anti-Urease Nanobody in Pichia pastoris

  • KONG Jing ,
  • HU Yufeng ,
  • ZHENG Nan ,
  • WANG Jiaqi ,
  • ZHAO Shengguo , *
Expand
  • State Key Laboratory of Animal Nutrition and Feeding, Institute of Animal Science, Chinese Academy of Agricultural Sciences, Beijing 100193, China
*professor, E-mail:

Received date: 2025-02-17

  Online published: 2025-10-15

摘要

为抑制瘤胃微生物脲酶活性,降低瘤胃氮源物质的分解浪费,本试验在毕赤酵母中诱导表达1种抗脲酶纳米抗体。以瘤胃微生物脲酶为靶标,利用毕赤酵母表达系统构建含有抗瘤胃微生物脲酶的纳米抗体重组质粒,先通过小量试表达并鉴定,随后添加甲醇对纳米抗体进行诱导表达,使用镍离子金属鳌合亲和层析柱纯化,并检测其对瘤胃微生物脲酶的抑制效果。结果显示:本试验成功构建含有抗瘤胃微生物脲酶的纳米抗体重组质粒,运用毕赤酵母表达纯化后,获得纯度高于95%的抗脲酶纳米抗体,表达量为29 mg/L培养基。体外试验表明,该纳米抗体对瘤胃微生物脲酶活性的半数抑制浓度(IC50)为35 μg/mL。综上可知,本试验在毕赤酵母中成功诱导表达了一种针对瘤胃微生物脲酶的特异性纳米抗体,该纳米抗体在体外能够显著抑制瘤胃微生物脲酶的活性。

本文引用格式

孔静 , 胡钰峰 , 郑楠 , 王加启 , 赵圣国 . 抗脲酶纳米抗体在毕赤酵母中的诱导表达[J]. 动物营养学报, 2025 , 37(10) : 7054 -7061 . DOI: 10.12418/CJAN2025.574

Abstract

To inhibit ruminal microbial urease activity, reduce the degradation and waste of nitrogenous substances in the rumen, an anti-urease nanobody was induced to express in Pichia pastoris in this experiment. Ruminal microbial urease was targeted to construct a recombinant plasmid containing a nanobody against ruminal microbial urease using the Pichia pastoris expression system. Preliminary small-scale expression and identification were subsequently performed. Subsequently, methanol was added to induce the expression of the nanobody. The nanobody was purified using a nickel ion metal chelate affinity chromatography column, and its inhibitory effects on ruminal microbial urease was evaluated. The results demonstrated that the recombinant plasmid was successfully constructed. After expression and purification using Pichia pastoris, the anti-urease nanobody with a purity higher than 95% was obtained, with an expression yield of 29 mg/L of culture medium. In vitro experiment showed that the nanobody exhibited a half maximal inhibitory concentration (IC50) of 35 μg/mL against ruminal microbial urease activity. In conclusion, a nanobody specifically targeting ruminal microbial urease is successfully induced and expressed in Pichia pastoris, and it is shown to significantly inhibit ruminal microbial urease activity in vitro.

农业农村部于2023年印发的《饲用豆粕减量替代三年行动方案》,将豆粕的减量替代提升为国家重大需求[1]。研究表明,在反刍动物饲粮中添加尿素等非蛋白氮饲料,可替代约30%蛋白质饲料,瘤胃微生物产生的脲酶可以将尿素分解生成氨,为瘤胃里微生物提供生长所必需的氮源[2-3]。然而,脲酶活性过高会导致氨被利用的速度远小于尿素被分解生成氨的速度,降低了尿素的利用率[4]。过量的氨可能被留在血液中,容易引起氨中毒,影响动物的健康[5]。此外,多余的氨还可能通过粪便排出体外,污染环境[6]。因此,亟需开发稳定、安全且高效的脲酶抑制剂。
Hamers-Casterman等[7]从骆驼血清中发现了一种天然缺失轻链,仅由重链可变区组成的抗体,即纳米抗体,是已知的最小的抗原结合单位[8]。作为一种新型的抗体分子,纳米抗体具有相对分子质量小、生产简便、免疫原性低、稳定性及亲和力高等优势,已经应用到疾病的诊断治疗、免疫成像等多个领域[9-10]。与传统抗体免疫球蛋白G(IgG)相比,纳米抗体中长的互补决定区3可以形成一个大的抗原决定簇凸环,识别不能被传统抗体识别的一些隐藏的抗原表位,具有更强的抗原结合能力及特异性[11-12]。纳米抗体具有相对简单的结构,可以通过大肠杆菌或毕赤酵母等表达系统获得[13-14]。毕赤酵母具有产量高、生产成本低等优点,是一种重要的外源蛋白表达宿主[15]。本研究基于前期获得的纳米抗体的独特优势,如相对分子质量小、稳定性高、可结合隐蔽抗原表位等,推测其能够与瘤胃微生物脲酶的活性中心结合,从而阻碍脲酶与尿素的结合,抑制脲酶活性。因此,本试验利用毕赤酵母表达系统构建含有抗瘤胃微生物脲酶的纳米抗体重组质粒,在诱导表达和纯化后检测其对瘤胃微生物脲酶的抑制效果,为后续开发新型脲酶抑制剂提供参考。

1 材料与方法

1.1 试验材料

1.1.1 菌株

大肠杆菌TOP10菌株和毕赤酵母X33菌种为中国农业科学院北京畜牧兽医研究所畜禽营养与饲养全国重点实验室保存菌种。

1.1.2 主要材料与试剂

氯化钠、磷酸氢二钾、磷酸二氢钾、甘油、葡萄糖、甲醇和咪唑均购自国药集团化学试剂有限公司;琼脂粉和山梨醇购自上海生工生物工程技术服务有限公司;生物素购自上海阿拉丁生化科技股份有限公司;胰蛋白胨和酵母提取物购自安诺伦(北京)生物科技有限公司;博莱霉素购自赛默飞世尔科技公司;酵母基础氮源(YNB)购自北京索莱宝科技有限公司;4-羟乙基哌嗪乙磺酸(HEPES)购自西格玛奥德里奇(上海)贸易有限公司;脲酶活性检测试剂盒购自北京盒子生工科技有限公司;SacⅠ内切酶购自宝日医生物技术(北京)有限公司;质粒载体pPICZα购自北京索莱宝科技有限公司;限制性内切酶XhoⅠXbaⅠEcoRⅠ、BamHⅠ以及T4 DNA连接酶和rCutSmart缓冲液均购自New England Biolabs。

1.1.3 主要培养基和溶液的配制

低盐LB液体培养基(1 L):5 g氯化钠、10 g胰蛋白胨和5 g酵母提取物,高压灭菌。
低盐LB固体培养基(1 L):15 g琼脂粉、5 g氯化钠、10 g胰蛋白胨和5 g酵母提取物,高压灭菌。
磷酸盐缓冲液(1 L):5.6 g氢氧化钾、38.14 g磷酸氢二钾和118.14 g磷酸二氢钾。
YP培养基(1 L):20 g胰蛋白胨和10 g酵母提取物,高压灭菌后,加入100 mL磷酸缓冲液。
BMGY培养基(1 L):20 g胰蛋白胨和10 g酵母提取物,高压灭菌后,加入100 mL 10%甘油、100 mL磷酸缓冲液、2 mL 0.02%生物素和100 mL 6.7%YNB。
BMMY培养基(1 L):20 g胰蛋白胨和10 g酵母提取物,高压灭菌后,加入100 mL 10%甲醇、100 mL磷酸缓冲液、2 mL 0.02%生物素和100 mL 6.7%YNB。
RDB+博莱霉素培养基(1 L):182.17 g山梨醇,10 mL 5%氨基酸溶液、100 mL 13.6%YNB、100 mL 20%葡萄糖和2 mL 0.02%生物素,加博莱霉素至终浓度为0.5 mg/mL。
10mmol/L咪唑(1 L):0.68 g咪唑、4.77 g HEPES、8.77 g氯化钠,盐酸调pH至7.5。
20mmol/L咪唑(1 L):1.36 g咪唑、4.77 g HEPES、8.77 g氯化钠,盐酸调pH至7.5。
250 mmol/L咪唑(1 L):17.02 g咪唑、4.77 g HEPES、8.77 g氯化钠,盐酸调pH至7.5。

1.2 试验方法

1.2.1 重组质粒构建及鉴定

在实验室前期研究中筛选获得了针对瘤胃微生物脲酶的纳米抗体的氨基酸序列,纳米抗体的编码基因序列长度为405 bp。根据毕赤酵母表达系统的特点,利用NovoPro(https://www.novopro.cn/tools/codon-optimization.html)对基因进行优化,从头合成基因序列,两端设XhoⅠ和XbaⅠ酶切位点碱基。用限制性内切酶XhoⅠ和XbaⅠ双酶切纳米抗体质粒载体pPICZα,质粒载体pPICZα基因组长度约为3 500 bp,酶切体系为:XhoⅠ和XbaⅠ各2 μL,rCutSmar缓冲液5 μL,pPICZα质粒10 μg,补水到50 μL,37 ℃酶切1 h。利用1%的琼脂糖凝胶电泳对酶切产物进行分析,将合成的纳米抗体基因与酶切后pPICZα质粒用T4 DNA连接酶16 ℃连接过夜。将构建好的重组质粒转化至大肠杆菌TOP10中,涂布于含博莱霉素抗性的低盐LB平板上,37 ℃培养过夜。挑取含重组质粒的单菌落接种至装有3 mL含博莱霉素抗性低盐LB液体培养基的试管中,37 ℃培养过夜。次日,取700 μL菌液保种,剩余菌液接种于300 mL含博莱霉素抗性低盐LB液体培养基中,37 ℃培养过夜。培养结束后,收集菌体利用UNlQ-200柱式质粒DNA中量抽提试剂盒对重组质粒进行中量抽提。用限制性内切酶EcoRⅠ和BamHⅠ对提取的质粒双酶切,用1%的琼脂糖凝胶电泳验证后,通过Sanger测序验证。
采用SacⅠ内切酶酶切线性化质粒后,利用1%琼脂糖凝胶电泳进行鉴定,回收酶切后的产物。向毕赤酵母X33感受态细胞中加入回收的酶切产物,转移至电击杯进行电转化,1 500 V电击5 ms。将电转化细胞涂布在含博莱霉素抗性的RDB平板上,37 ℃过夜培养,从平板上随机挑选单克隆37 ℃培养至浑浊,取菌液进行聚合酶链式反应(PCR)鉴定,反应体系为:15.8 μL双蒸水,0.5 μL菌液,2.0 μL 10×Buffer,1.6 μL dNTP,0.2 μL上游引物(5'-GACTGGTTCCAATTGACAAGC-3')和下游引物(5'-GCAATGGCATTCTGACATCC-3')以及DNA聚合酶。PCR反应程序为:94 ℃预变性5 min;94 ℃变性30 s,54 ℃退火30 s,72 ℃延伸90 s,30个循环;72 ℃延伸7 min。PCR反应程序结束后,将产物进行琼脂糖凝胶电泳检测。

1.2.2 纳米抗体的小量试表达与鉴定

将1.2.1中PCR检测为阳性的单克隆保种,随后按照1%接种量取菌液至1.5 mL的BMGY培养基中,30 ℃、200 r/min摇床培养48 h。培养结束后,将菌液静置5~6 h,使细胞沉淀,去除上清液,加入1 mL BMMY培养基,30 ℃、200 r/min摇床培养24 h;加入200 μL含有5%甲醇的YP培养基,在30 ℃、200 r/min条件下诱导24 h;诱导结束后,13 200×g离心10 min,取上清液加入150 μL三氯乙酸冰浴2 h;13 200×g离心10 min后弃上清,加入200 μL丙酮洗涤;再次离心后弃上清,60 ℃烘15~20 min,将所得产物通过十二烷基硫酸钠-聚丙烯酰胺凝胶电泳(SDS-PAGE)进行检测。

1.2.3 纳米抗体的大量表达与纯化

通过SDS-PAGE筛选出表达水平较高的阳性单菌落,将其接种至15 mL BMGY培养基中,30 ℃、200 r/min摇床培养24 h。取700 μL菌液保种,剩下菌液接种于1 L BMGY培养基中继续培养24 h。培养结束后,8 720×g离心3 min弃上清,加入1 L BMMG培养基重悬菌体,加入200 μL消泡剂,30 ℃、200 r/min摇床培养24 h;加入10 mL甲醇诱导表达24 h,每24 h加10 mL的甲醇,共诱导表达84 h,分别于15、40、68和84 h取菌液上清,进行SDS-PAGE鉴定。诱导表达结束后,8 720×g离心5 min,收集上清,用0.22 μm过滤器过滤,进一步通过透析法将过滤后的上清浓缩至200 mL。
用1 mol/L Tris缓冲液(pH 9.0)调节浓缩上清的pH至8.0,通过镍离子金属鳌合亲和层析柱(Ni2+-NTA亲和层析柱)对纳米抗体进行纯化。以1 mL/min的流速上样浓缩上清,收集流穿液;先后用5倍柱体积的10、20 mmol/L咪唑洗脱杂蛋白,收集洗脱液;用3倍柱体积的250 mmol/L咪唑进行目的蛋白的洗脱,收集洗脱液;将收集的流穿液及洗脱液通过SDS-PAGE进行分析,并利用NanoDrop One超微量分光光度计在280 nm测定洗脱液的蛋白浓度。采用Bio-Rad Quantity One 4.6.2软件对SDS-PAGE凝胶图像进行灰度积分分析,通过计算纳米抗体条带在总灰度积分中的百分比评估其纯度。

1.2.4 纳米抗体对瘤胃微生物脲酶活性的影响

动物试验操作方法经中国农业科学院北京畜牧兽医研究所伦理委员会批准(编号:IAS201914)。
挑选3头装有瘘管的荷斯坦奶牛,共采集500 mL瘤胃内容物,利用4层无菌纱布过滤得到瘤胃液。将瘤胃液4 ℃、300×g离心10 min,收集上清液至新的离心管中;4 ℃、12 000×g离心5 min,弃上清;加入预冷的HEPES缓冲液重悬沉淀,12 000×g离心5 min,重复3次;用超声波细胞破碎仪于冰上破碎瘤胃液,条件为开5 s,关5 s,150 W运行10 min;4 ℃、12 000×g离心10 min,收集上清液即为粗酶液。将纳米抗体母液(0.3 μg/mL)使用HEPES缓冲液按比例稀释至0.2、0.15、0.1、0.05、0.025、0.012 5及0 μg/mL浓度梯度,分别与粗酶液混合孵育后,使用脲酶活性检测试剂盒按照说明书测定脲酶活性。通过GraphPad Prism 9.0软件中非线性拟合计算纳米抗体的对瘤胃微生物脲酶活性的半数抑制浓度(IC50)。

2 结果与分析

2.1 重组质粒构建及鉴定

采用抗性筛选法筛选含重组质粒的单菌落,将经博莱霉素抗性筛选到的单菌落扩大培养,抽提质粒后进行酶切,通过琼脂糖凝胶电泳鉴定。将构建好的重组质粒转化至大肠杆菌TOP10培养,抽提质粒,用限制性内切酶EcoRⅠ和BamHⅠ进行双酶切验证,得到1条大于500 bp和1条大于3 000 bp的条带(图1),与预期结果相符,且测序结果表明,重组质粒序列正确,说明成功构建出重组质粒。
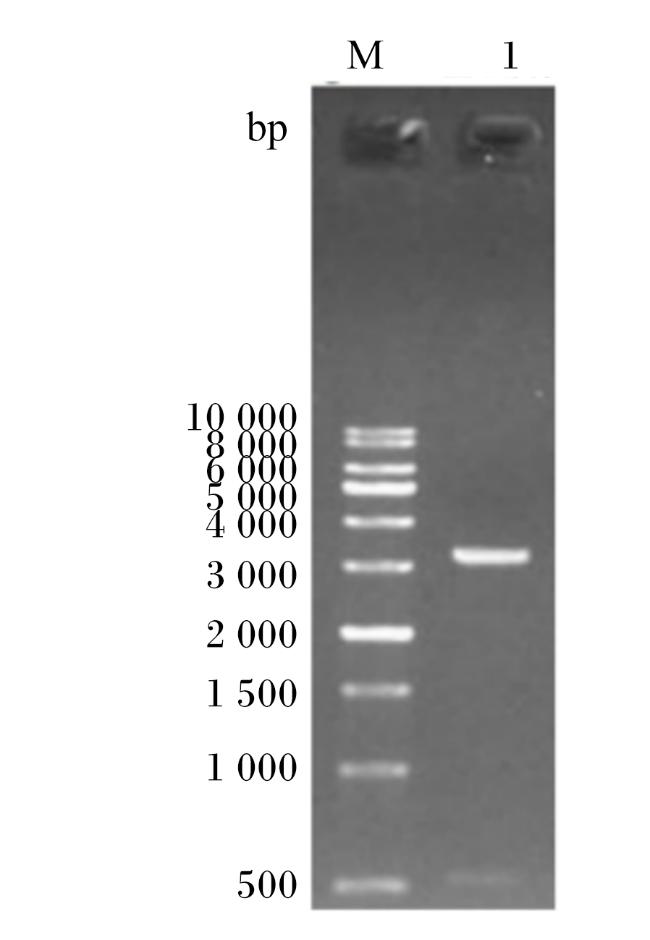
图1 重组质粒酶切产物琼脂糖凝胶电泳图

M:DNA分子质量标准 (10 000 bp);1:重组质粒酶切产物。

Fig.1 Agarose gel electrophoresis image of digested recombinant plasmid products

M: DNA molecular weight marker (10 000 bp) ; 1: digested recombinant plasmid products.

将电转化细胞涂布在含博莱霉素抗性的RDB平板上进行筛选,从平板上随机挑选10个单克隆对其进行菌落PCR检测,得到的PCR产物经琼脂糖凝胶电泳检测,结果(图2)显示所挑选的10个单克隆均呈现阳性扩增条带,条带大小均在1 000 bp左右,包含纳米抗体编码序列及部分醇氧化酶1(AOX1)启动子与终止子区域,扩增片段大小与理论预测一致。
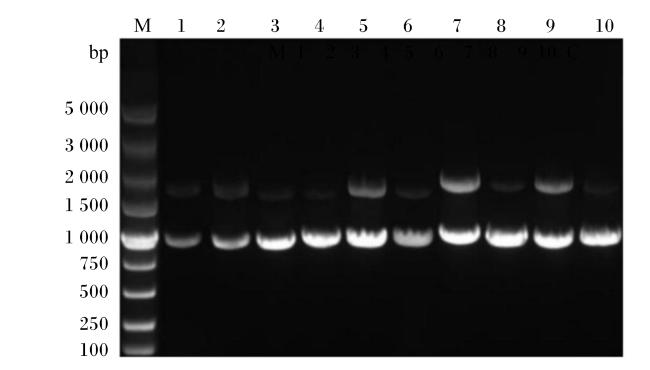
图2 单克隆菌落PCR产物琼脂糖凝胶电泳图

M:DNA分子质量标准 (5 000 bp);1~10:随机挑选的单克隆菌落。

Fig.2 Agarose gel electrophoresis image of monoclonal colony PCR products

M: DNA molecular weight marker (5 000 bp) ; 1 to 10: randomly selected monoclonal colonies.

2.2 纳米抗体的小量试表达与鉴定

为了进一步确认阳性单克隆是否能够表达纳米抗体,添加甲醇对挑选的阳性单克隆进行诱导表达后,收集表达蛋白通过SDS-PAGE进行鉴定,结果如图3所示。与诱导前相比,PCR结果为阳性的单克隆均显示出清晰的蛋白条带,且条带的位置与预期的纳米抗体分子质量相一致,在14 kDa左右,这表明它们均成功地表达了重组蛋白。
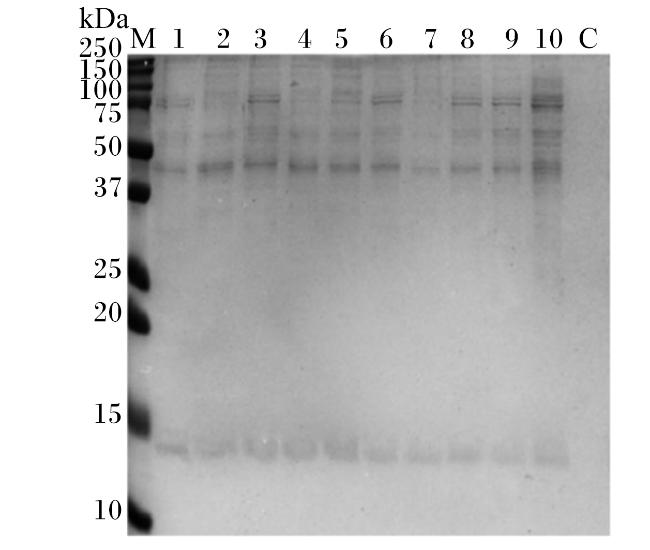
图3 阳性单克隆表达产物SDS-PAGE图

M:蛋白质分子质量标准;C:诱导前样品;1~10:阳性单克隆表达产物。

Fig.3 SDS-PAGE image of positive monoclonal expression products

M: protein molecular weight marker; C: pre-induction sample; 1 to 10: positive monoclonal expression products.

2.3 纳米抗体的大量表达与纯化

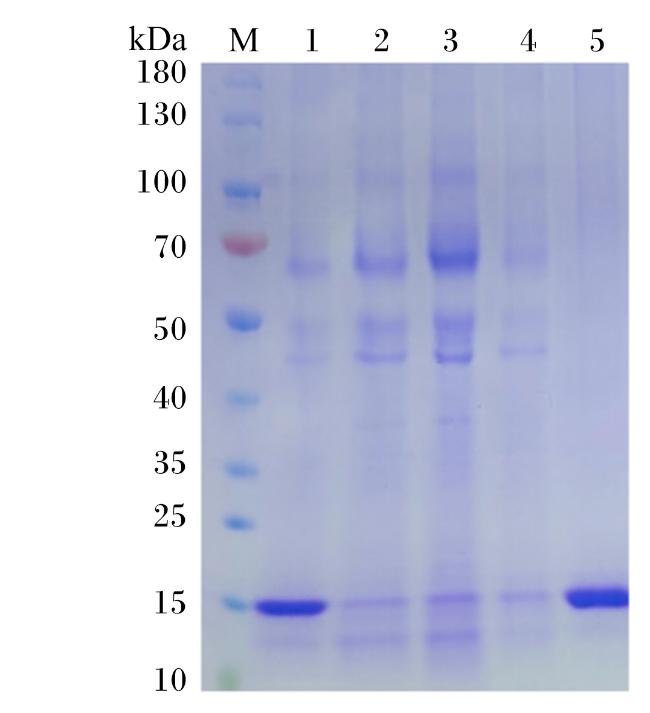
对SDS-PAGE筛选出的表达水平较高的阳性单菌落进行84 h大量诱导表达,分别于诱导表达15、40、68和84 h后取菌液上清,进行SDS-PAGE分析,结果发现,随着诱导表达时间的增加,纳米抗体表达量增加,获得了大量表达的纳米抗体(图4)。由于表达的纳米抗体含有His tag标签,通过Ni2+-NTA亲和层析柱进一步纯化纳米抗体。纯化纳米抗体的SDS-PAGE结果如图5所示,在14 kDa左右出现明显的条带,与纳米抗体的理论分子质量一致,纯度在95%以上,测得纳米抗体表达量为29 mg/L培养基;并且,10和20 mmol/L咪唑可将大多数的杂蛋白除去,250 mmol/L咪唑可使大部分的纳米抗体洗脱。
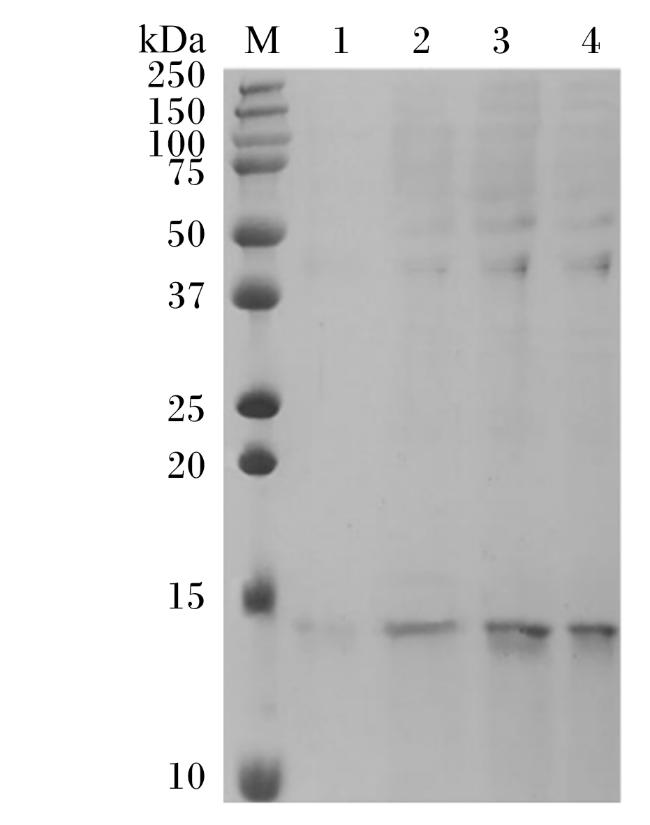
图4 纳米抗体诱导表达产物SDS-PAGE图

M:蛋白质分子质量标准;1:诱导15 h上清;2:诱导40 h上清;3:诱导68 h上清;4:诱导84 h上清。

Fig.4 SDS-PAGE image of nanobody induction expression products

M: protein molecular weight marker; 1: supernatant after 15 h induction; 2: supernatant after 40 h induction; 3: supernatant after 68 h induction; 4: supernatant after 84 h induction.

图5 纯化纳米抗体SDS-PAGE图

M:蛋白质分子质量标准;1:纯化前样品;2:流穿液;3:10 mmol/L咪唑洗脱液;4:20 mmol/L咪唑洗脱液;5:250 mmol/L咪唑洗脱液。

Fig.5 SDS-PAGE image of purified nanobody

M: protein molecular weight marker; 1: pre-purification sample; 2: flow-through; 3: 10 mmol/L imidazole eluant; 4: 20 mmol/L imidazole eluant; 5: 250 mmol/L imidazole eluant.

2.4 纳米抗体对瘤胃微生物脲酶活性抑制效果检测

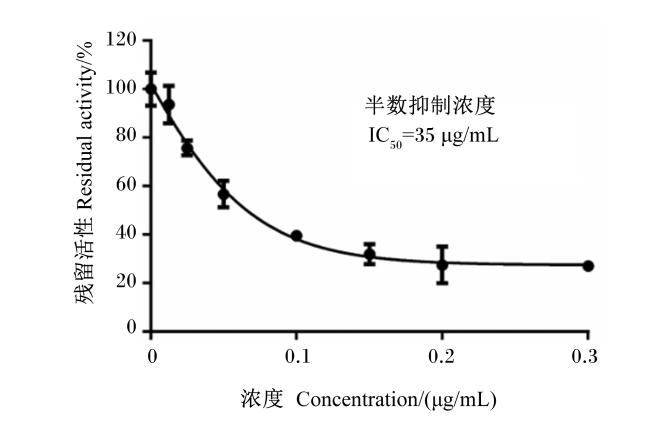
为了测定纳米抗体对瘤胃微生物脲酶活性的抑制效果,利用脲酶活性检测试剂盒测定0、0.012 5、0.025、0.05、0.1、0.15、0.2和0.3 μg/mL的纳米抗体对瘤胃微生物脲酶活性的影响。通过GraphPad Prism 9.0软件中非线性拟合计算,得出纳米抗体对瘤胃微生物脲酶活性的IC50为35 μg/mL(图6)。
图6 纳米抗体对瘤胃微生物脲酶活性的IC50

Fig.6 IC50 of nanobody against rumen microbial urease activity

3 讨论

作为一种新型的抗体分子,纳米抗体具有分子质量小、生产简便、免疫原性低、稳定性及亲和力高等优势,已有不少研究表明纳米抗体在抑制脲酶活性方面大有可为。Fouladi等[16]成功分离出了对幽门螺杆菌脲酶UreB亚基具有高亲和力和特异性的纳米抗体,对脲酶活性的抑制率高达40%。Ardekani等[17]筛选获得了针对幽门螺杆菌脲酶UreC亚基的纳米抗体,发现抑制脲酶活性所需的最小纳米抗体量为70 μg/mL,最大脲酶抑制率为35%。这些研究更加说明纳米抗体在发挥抑制脲酶活性方面有巨大的发展潜力,然而,尚未有将纳米抗体应用到瘤胃微生物脲酶中的研究。本研究基于实验室前期筛选获得了针对脲酶蛋白的纳米抗体氨基酸序列,通过毕赤酵母成功表达了一种靶向瘤胃微生物脲酶的新型纳米抗体,并发现该纳米抗体能够显著抑制瘤胃微生物脲酶的活性,其对瘤胃微生物脲酶活性的IC50为35 μg/mL。
不同于传统抗体,纳米抗体天然缺失轻链,仅由重链可变区组成,结构简单,更容易通过多种表达系统获得,其中,利用大肠杆菌或毕赤酵母表达的纳米抗体较多[18]。大肠杆菌尽管生产成本低、易于操作,但容易形成不溶的包涵体,且受限于大肠杆菌周质的空间大小,蛋白表达量较低[19-20]。相比之下,毕赤酵母具有生产成本较低和大规模培养发酵的优点,被广泛用于纳米抗体的表达[15,21]。Hmila等[22]和Ezzine等[23]分别在大肠杆菌和毕赤酵母表达系统中表达了针对蝎子神经毒素Ⅰ的纳米抗体,在大肠杆菌中纯化后产量为3 mg/L,而经毕赤酵母表达的产量达到了17 mg/L,显著提高了表达量。Ji等[24]分别使用pET28a载体在大肠杆菌和pPICZaA载体在毕赤酵母中表达了针对肿瘤坏死因子α(TNFα)的纳米抗体,发现毕赤酵母表达的产量为5 mg/L,且阻断TNFα活性的效果显著高于大肠杆菌表达的纳米抗体,推测是因为使用毕赤酵母表达系统能够高效的使纳米抗体形成二硫键,提高了中和活性。Pourasadi等[25]分别用毕赤酵母和大肠杆菌表达了靶向幽门螺杆菌脲酶UreC亚基的纳米抗体,在毕赤酵母中的表达量为5 mg/L,高于大肠杆菌中2 mg/L的表达量。Rahbarizadeh等[26]使用毕赤酵母生产抗黏蛋白1(MUC1)纳米抗体的产量为10~15 mg/L,且表达的纳米抗体对脲酶活性的抑制率达86%,而大肠杆菌表达的纳米抗体对脲酶活性的抑制率为61%,抑制能力显著增加。目的蛋白在毕赤酵母中主要有甲醇诱导型和组成型2种表达方式[27]。在组成型表达中常见的启动子有甘油醛-3-磷酸脱氢酶[28]TEF-1启动子[29],能使基因在不同生长阶段和细胞状态下持续稳定表达,不受外界环境条件的影响[30],但其在基因表达调控中缺乏时间特异性,无法灵活调节表达水平,导致目的蛋白持续表达,可能对宿主细胞的代谢平衡造成不利影响[31]。相比之下,甲醇诱导型在表达目的蛋白时具有灵活控制表达时间、提高蛋白表达水平和严格调控基因表达等众多优势,在大规模生产中得到广泛应用[32-33]AOX1启动子是常见的甲醇诱导型启动子,在甲醇存在时被激活,从而驱动目的基因的高效表达[34]。Liu等[35]在毕赤酵母中高效表达了β-葡萄糖苷酶(FBG1),通过优化甲醇的添加方式,开发了一种新的高细胞密度发酵策略,显著提高了FBG1的表达水平,产量高达403.3 mg/L。Noseda等[36]利用毕赤酵母表达系统,通过甲醇诱导的AOX1启动子优化重组牛凝乳酶B的生产,研究发现,当甲醇添加维持恒定的比生长速率,即0.01 h-1时,可以显著提高重组牛凝乳酶B的产量,高达96 IMCU/mL。在本研究中,选用毕赤酵母X33作为表达载体,添加甲醇对纳米抗体进行大量诱导表达,后使用Ni2+-NTA亲和层析柱纯化,获得了表达量为29 mg/L培养基的纳米抗体,显著提高了纳米抗体的产量。
与传统的脲酶抑制剂相比,本试验获得的抗脲酶纳米抗体具有更高的特异性和稳定性,且通过毕赤酵母表达系统生产成本较低,在提高氮的利用率和降低饲养成本方面具有巨大的发展潜力,可为后续开发新型饲料添加剂提供基础。

4 结论

本试验对实验室前期筛选获得的抗瘤胃微生物脲酶的纳米抗体,利用毕赤酵母X33表达系统,添加甲醇大量诱导表达,使用Ni2+-NTA亲和层析柱纯化,获得了纯度高于95%的抗脲酶纳米抗体,表达量为29 mg/L培养基。体外试验表明该纳米抗体能够显著抑制瘤胃微生物脲酶的活性,其对瘤胃微生物脲酶活性的IC50为35 μg/mL。
[1]
中华人民共和国农业农村部. 农业农村部办公厅关于印发《饲用豆减量替代三年行动方案》的通知[J]. 中华人民共和国农业农村部公报, 2023(6):61-64.

Ministry of Agriculture and Rural Affairs of the People’s Republic of China. Circular of the General Office of the Ministry of Agriculture and Rural Affairs on printing and distributing the three-yearaction plan for soybean meal reduction and replacement[J]. Gazette of the Ministry of Agriculture and Rural Affairs of the People’s Republic of China, 2023(6):61-64. (in Chinese)

[2]
KERTZ PAS A F. Review:urea feeding to dairy cattle:a historical perspective and review[J]. The Professional Animal Scientist, 2010, 26(3):257-272.

[3]
JOYSOWAL M, TYAGI A K, TYAGI N, et al. Use of slow release ammonia products in ruminant diet:a review[J]. Journal of Entomology and Zoology Studies, 2019, 7(2):882-888.

[4]
ZAMBELLI B, MUSIANI F, BENINI S, et al. Chemistry of Ni2+ in urease:sensing,trafficking,and catalysis[J]. Accounts of Chemical Research, 2011, 44(7):520-530.

[5]
JIN D, ZHAO S G, WANG P P, et al. Insights into abundant rumen ureolytic bacterial community using rumen simulation system[J]. Frontiers in Microbiology, 2016,7:1006.

[6]
NAGPAL R, SHRIVASTAVA B, KUMAR N, et al. Microbial feed additives[M]//PUNIYA A K, SINGH R, KAMRA D N. Rumen microbiology:from evolution to revolution. New Delhi: Springer, 2015:161-175.

[7]
HAMERS-CASTERMAN C, ATARHOUCH T, MUYLDERMANS S, et al. Naturally occurring antibodies devoid of light chains[J]. Nature, 1993, 363(6428):446-448.

[8]
MUYLDERMANS S. Nanobodies:natural single-domain antibodies[J]. Annual Review of Biochemistry, 2013,82:775-797.

[9]
JOVČEVSKA I, MUYLDERMANS S. The therapeutic potential of nanobodies[J]. BioDrugs:Clinical Immunotherapeutics,Biopharmaceuticals and Gene Therapy, 2020, 34(1):11-26.

[10]
JIN B K, ODONGO S, RADWANSKA M, et al. NANOBODIES:a review of diagnostic and therapeutic applications[J]. International Journal of Molecular Sciences, 2023, 24(6):5994.

[11]
XU Y, XIONG L, LI Y P, et al. Anti-idiotypic nanobody as citrinin mimotope from a naive alpaca heavy chain single domain antibody library[J]. Analytical and Bioanalytical Chemistry, 2015, 407(18):5333-5341.

DOI PMID

[12]
STIJLEMANS B, CALJON G, NATESAN S K A, et al. High affinity nanobodies against the Trypanosome brucei VSG are potent trypanolytic agents that block endocytosis[J]. PLOS Pathogens, 2011, 7(6):e1002072.

[13]
SANDOMENICO A, SIVACCUMAR J P, RUVO M. Evolution of Escherichia coli expression system in producing antibody recombinant fragments[J]. International Journal of Molecular Sciences, 2020, 21(17):6324.

[14]
DUMAN-ÖZDAMAR Z E, BINAY B. Production of industrial enzymes via Pichia pastoris as a cell factory in bioreactor:current status and future aspects[J]. Protein Journal, 2021, 40(3):367-376.

[15]
KARBALAEI M, REZAEE S A, FARSIANI H. Pichia pastoris:a highly successful expression system for optimal synthesis of heterologous proteins[J]. Journal of Cellular Physiology, 2020, 235(9):5867-5881.

[16]
FOULADI M, SARHADI S, TOHIDKIA M, et al. Selection of a fully human single domain antibody specific to Helicobacter pylori urease[J]. Applied Microbiology and Biotechnology, 2019, 103(8):3407-3420.

[17]
ARDEKANI L S, GARGARI S L M, RASOOLI I, et al. A novel nanobody against urease activity of Helicobacter pylori[J]. International Journal of Infectious Diseases, 2013, 17(9):e723-e728.

[18]
LIU Y K, HUANG H. Expression of single-domain antibody in different systems[J]. Applied Microbiology and Biotechnology, 2018, 102(2):539-551.

DOI PMID

[19]
MATSUZAKI Y, KAJIWARA K, AOKI W. Production of single domain antibodies in Pichia pastoris[J]. Methods in Molecular Biology, 2022,2446:181-203.

[20]
LUO D, WEN C X, ZHAO R C, et al. High level expression and purification of recombinant proteins from Escherichia coli with AK-TAG[J]. PLoS One, 2016, 11(5):e0156106.

[21]
AHMAD M, HIRZ M, PICHLER H, et al. Protein expression in Pichia pastoris:recent achievements and perspectives for heterologous protein production[J]. Applied Microbiology and Biotechnology, 2014, 98(12):5301-5317.

[22]
HMILA I, ABDALLAH R B A B, SAERENS D, et al. VHH,bivalent domains and chimeric heavy chain-only antibodies with high neutralizing efficacy for scorpion toxin AahⅠ’[J]. Molecular Immunology, 2008, 45(14):3847-3856.

[23]
EZZINE A, ADAB S M, BOUHAOUALA-ZAHAR B, et al. Efficient expression of the anti-AahⅠ’ scorpion toxin nanobody under a new functional form in a Pichia pastoris system[J]. Biotechnology and Applied Biochemistry, 2012, 59(1):15-21.

[24]
JI X M, LIU W G, ZHOU H T, et al. Covalently dimerized Camelidae antihuman TNFα single-domain antibodies expressed in yeast Pichia pastoris show superior neutralizing activity[J]. Applied Microbiology and Biotechnology, 2013,97:8547-8558.

[25]
POURASADI S, MOUSAVI GARGARI S L, RAJABIBAZL M, et al. Efficient production of nanobodies against urease activity of Helicobacter pylori in Pichia pastoris[J]. Turkish Journal of Medical Sciences, 2017, 47(2):695-701.

[26]
RAHBARIZADEH F, RASAEE M J, FOROUZANDEH M, et al. Over expression of anti-MUC1 single-domain antibody fragments in the yeast Pichia pastoris[J]. Molecular Immunology, 2006, 43(5):426-435.

[27]
ARJMAND S. Promoters in Pichia pastoris:a toolbox for fine-tuned gene expression[J]. Methods in Molecular Biology, 2024,2844:159-178.

[28]
STADLMAYR G, MECKLENBRÄUKER A, ROTHMÜLLER M, et al. Identification and characterisation of novel Pichia pastoris promoters for heterologous protein production[J]. Journal of Biotechnology, 2010, 150(4):519-529.

[29]
JI L, XU S, ZHANG Y, et al. Screening of broad-host expression promoters for shuttle expression vectors in non-conventional yeasts and bacteria[J]. Microbial Cell Factories, 2024,23:230.

[30]
CAREY L B, VAN DIJK D, SLOOT P M A, et al. Promoter sequence determines the relationship between expression level and noise[J]. PLoS Biology, 2013, 11(4):e1001528.

[31]
PERIYASAMY S, GOVINDAPPA N, SREENIVAS S, et al. Isolation,characterization and evaluation of the Pichia pastoris sorbitol dehydrogenase promoter for expression of heterologous proteins[J]. Protein Expression and Purification, 2013, 92(1):128-133.

[32]
CARRILLO RINCÓN A F, FARNY N G. Unlocking the strength of inducible promoters in gram-negative bacteria[J]. Microbial Biotechnology, 2023, 16(5):961-976.

DOI PMID

[33]
CHU D, NGUYEN A, SMITH S S, et al. Stable integration of an optimized inducible promoter system enables spatiotemporal control of gene expression throughout avian development[J]. Biology Open, 2020, 9(10):bio055343.

[34]
KIELKOPF C L, BAUER W, URBATSCH I L. Expression of cloned genes in Pichia pastoris using the methanol-inducible promoter AOX1[J]. Cold Spring Harbor Protocols, 2021, 2021(1):pdb.prot102160.

[35]
LIU W C, XIANG H B, ZHANG T, et al. Development of a new high-cell density fermentation strategy for enhanced production of a fungus β-glucosidase in Pichia pastoris[J]. Frontiers in Microbiology, 2020,11:1988.

[36]
NOSEDA D G, BLASCO M, RECÚPERO M, et al. Bioprocess and downstream optimization of recombinant bovine chymosin B in Pichia (Komagataella) pastoris under methanol-inducible AOX1 promoter[J]. Protein Expression and Purification, 2014,104:85-91.

文章导航

/