研究论文

油莎豆浸提液对大肠杆菌的抑菌效果

  • 邓梦成 ,
  • 王旭哲 , * ,
  • 马春晖 ,
  • 陈浩 ,
  • 高红梅 ,
  • 康雪
展开
  • 石河子大学动物科技学院,石河子 832000
*王旭哲,副教授,硕士生导师,E-mail:

邓梦成(2002—),男,湖南邵阳人,本科生,动物科学专业。E-mail:

Office editor: 菅景颖

收稿日期: 2024-12-27

  网络出版日期: 2025-10-15

基金资助

国家自然科学基金项目(32260856)

石河子大学高层次人才科研启动项目(RCZK201942)

兵团中青年科技创新领军人才计划(2024DB023)

石河子大学青年拔尖计划项目(BJZK202406)

Antibacterial Effect of Cyperus esculentus Extract Liquid on Escherichia coli

  • DENG Mengcheng ,
  • WANG Xuzhe , * ,
  • Chunhui ,
  • CHEN Hao ,
  • GAO Hongmei ,
  • KANG Xue
Expand
  • College of Animal Science and Technology, Shihezi University, Shihezi 832000, China
*associate professor, E-mail:

Received date: 2024-12-27

  Online published: 2025-10-15

摘要

本研究旨在探讨油莎豆浸提液对大肠杆菌的抑菌效果及其对细菌代谢的影响,验证油莎豆浸提液作为天然抗菌剂的潜力。采用不同浓度的油莎豆块茎、茎叶浸提液及二者混合浸提液,通过牛津杯法评估其对大肠杆菌的抑菌效果,并使用扫描电子显微镜观察大肠杆菌细胞结构形态;同时,结合非靶向代谢组学技术和靶向定量对油莎豆混合浸提液处理前后大肠杆菌代谢物变化进行分析,以确定其对大肠杆菌代谢途径的干扰作用。结果显示:随着油莎豆浸提液剂量的增加,大肠杆菌的抑菌圈直径显著增大(P<0.05),尤以混合浸提液在高剂量(250 μL)下的抑菌效果最为显著。扫描电镜观察发现,油莎豆混合浸提液对大肠杆菌细胞膜和细胞壁构造具有破坏作用,使细胞形态发生明显变化。代谢组学分析表明,油莎豆混合浸提液可改变大肠杆菌的代谢路径,导致关键代谢物的含量发生变化。此外,定量分析鉴定出柚皮素、香叶木素等黄酮类化合物为油莎豆中的关键抑菌成分。上述研究结果可为油莎豆浸提液作为天然抗菌剂的应用提供理论基础。

本文引用格式

邓梦成 , 王旭哲 , 马春晖 , 陈浩 , 高红梅 , 康雪 . 油莎豆浸提液对大肠杆菌的抑菌效果[J]. 动物营养学报, 2025 , 37(10) : 7229 -7240 . DOI: 10.12418/CJAN2025.588

Abstract

The purpose of this study was to investigate the antibacterial effect of Cyperus esculentus extract liquid on Escherichia coli (E. coli) and its effect on bacterial metabolism, and to verify the potential of Cyperus esculentus extract liquid as a natural antibacterial agent. Using different concentrations of tuber extract liquid and stem and leaf extract liquid of Cyperus esculentus, and their mixed extract liquid, the antibacterial effect against E. coli was evaluated by the Oxford cup method, and the cellular structure of E. coli was observed using scanning electron microscopy. Meanwhile, non-targeted metabolomics techniques and targeted quantification were combined to analyze changes in metabolites of E. coli before and after treatment with the mixed extract liquid of Cyperus esculentus, in order to determine its interfering effects on the metabolic pathways of E. coli. The results showed that with the increase of the dosage of Cyperus esculentus extract liquid, the inhibition zone diameter of E. coli increased significantly (P<0.05), especially the mixed extract liquid had the most significant inhibitory effect at high dosage (250 μL). Scanning electron microscope (SEM) observation showed that Cyperus esculentus mixed extract liquid had a destructive effect on bacterial cell membrane and cell wall structure, and bacterial morphology changed obviously. Metabolomic analysis showed that the mixed extract liquid of Cyperus esculentus could alter the metabolic pathways of E. coli, resulting in changes in the contents of key metabolites. In addition, flavonoids such as naringenin and diosmetin were identified as key antibacterial components in Cyperus esculentus by quantitative analysis. The above results can provide a theoretical basis for the application of Cyperus esculentus extract liquid as a natural antibacterial agent.

油莎豆(Cyperus esculentus)别名有虎坚果、地下核桃等,属于多年生草本植物。油莎豆块茎的含油量较多,副产物营养含量丰富[1-2],是一种新型经济作物。此外,在营养成分上,油莎豆中含有多种生物活性成分,如油莎豆茎叶及根须中含有酚类、甾类化合物、萜类单宁、萜类等[3];在功能上,油莎豆具有抗氧化[4]、抑菌[5]、改善雄性动物生殖能力[6]的功能,其中抑菌作用对开发植物抗菌剂尤为重要。研究显示,油莎豆对革兰氏阳性及阴性菌均有抑制作用,且相较于传统抗生素具有广谱抗菌、不易诱发耐药性等优势[7]。鉴于养殖业抗生素滥用引发的环境污染和耐药菌问题[8-10],本研究以大肠杆菌为对象,系统分析油莎豆不同部位浸提液的抑菌效果,为植物抗菌剂研发提供理论依据。

1 材料与方法

1.1 试验材料

本试验所用油莎豆品种为中油莎2号,由图木舒克市五十四团三连提供(纬度:39.87°N,经度:79.08°E,海拔为2 063 m,温带大陆性气候),种植行距40 cm,株距20 cm,每穴2粒,2022年4月中旬播种,9月5号完成收获。大肠杆菌(ATCC 25922)购自中国兽药药品监察所中国兽生物菌种保存管理中心。
主要试剂:LB肉汤、琼脂、牛津杯、一次性培养皿、无水乙醇(分析纯)、50 mL离心管、25%戊二醛、磷酸二氢钠、磷酸氢二钠、甲醇(分析纯)、乙腈(分析纯)、甲酸(分析纯)、香叶木素(diosmetin,20 mg)、金合欢素(acacetin,10 mg)、水飞蓟宾A(silibinin A,10 mg)、柚皮素(naringenin,20 mg)均购自石河子北生物商贸有限公司。
主要仪器:KQ-250DE型数控超声波清洗器(昆山市超声仪器有限公司)、循环水式真空泵(巩义市子华仪器有限责任公司)、电热恒温培养箱(天津市泰斯特仪器有限公司)、ZD-85型双功能气浴恒温振荡器(常州金坛良友仪器有限公司)、立式高压蒸汽灭菌器(上海申安医疗机械厂)、RE-52CS型旋转蒸发仪(上海继普电子科技有限公司)、Tu-1900型紫外可见光分光光度计(北京普析通用仪器有限责任公司)、超高效液相色谱串联傅里叶变换质谱仪(UHPLC-FT-MS-Q Exactive,美国赛默飞公司)、ACQUITY UPLC HSS T3色谱柱(100 mm×2.1 mm,i.d. 1.8 μm,美国Waters公司)、DC-20型氮气吹扫仪(上海净信实业发展有限公司)。

1.2 油莎豆不同部位浸提液的制备

对油莎豆块茎、茎叶浸提液分别进行制备,具体流程:无杂质油莎豆块茎或茎叶洗净→烘箱烘干→粉碎过60目筛(直径约0.25 mm)→加入50%乙醇溶液(200 mL,样品5 g)→超声提取30 min→过滤残渣→旋转蒸发减压浓缩(50 ℃)→4 ℃储存。将上述制备的油莎豆块茎、茎叶浸提液等比例混合制成混合浸提液。为进一步探讨抑菌效果,3种浸提液在设定的剂量梯度(50、70、150和250 μL)下进行后续试验。

1.3 大肠杆菌的接种培养

从-80 ℃甘油冻存管中将大肠杆菌接种至LB液体培养基,于3 ℃、200 r/min振荡培养6~8 h至600 nm下吸光度(OD600)值达0.6~0.8(对数生长期),随后用灭菌接种环蘸取菌液在LB固体平板上进行四区划线,倒置培养16~18 h。选择直径2~3 mm、边缘整齐、表面光滑湿润且呈均一乳白色的单菌落,用灭菌牙签挑取后接种至5 mL新鲜LB液体培养基,37 ℃振荡培养24 h,获得高密度菌悬液(OD600值≈1.5)。取1 mL菌悬液转接至40 mL LB液体培养基中,继续相同条件培养24 h,所得菌液用于后续抑菌试验。用灭菌牙签挑取目标单菌落,接种至5 mL新鲜LB液体培养基中,37 ℃、200 r/min振荡培养24 h,获得高密度菌悬液,随后用灭菌接种环蘸取菌液,在LB固体平板上进行四区划线,倒置于37 ℃恒温培养箱中培养16~18 h(过夜培养)。

1.4 牛津杯试验

精确量取15 mL LB固体培养基倒入平板,静置至其完全凝固备用。随后,利用涂布棒均匀地将浓度设定为3.75 CFU/mL的大肠杆菌悬液播撒于培养基表层。紧接着,在平板上精准放置4个牛津杯,4个杯内分别加入50、70、150、250 μL油莎豆块茎浸提液量,在37 ℃下培养24 h后用游标卡尺细致测量各抑菌圈直径,并计算平均值。油莎豆茎叶浸提液和混合浸提液的操作与上述保持一致。依据既定标准,将抑菌圈直径小于10 mm判定为耐药(R),介于10~15 mm判定为中度敏感(M),而大于15 mm则判定为高度敏感(S)。

1.5 大肠杆菌细胞形态学观察

在20 mL LB液体培养基中加入20 μL的大肠杆菌悬液与油莎豆块茎浸提液500 μL,37 ℃振荡培养18 h,取1.5 mL离心,离心后样品进行如下操作:2.5%戊二醛固定(12 h,4 ℃)→0.1% mol/L磷酸盐缓冲液(pH 7.2)冲洗(室温,3次,每次20 min)→30%乙醇洗脱(4 ℃,20 min)→50%乙醇洗脱(20 min)→70%乙醇洗脱(4 ℃,20 min)→80%乙醇洗脱(20 min,4 ℃)→90%乙醇洗脱(4 ℃,20 min)→100%乙醇洗脱(4 ℃,20 min)→干燥(临界点干燥仪)→粘样→喷金。喷金后的样品使用扫描电镜(SEM)对细胞形态结构进行观察。油莎豆茎叶浸提液与混合浸提液的操作与上述保持一致。

1.6 大肠杆菌生长曲线绘制

取12个无菌大试管,用记号笔标明时间,分别为0、1.5、3.0、4.0、6.0、8.0、10.0、12.0、14.0、16.0、20.0和24.0 h,试验组为含油莎豆浸提液的大肠杆菌悬液,对照组为未添加油莎豆浸提液的大肠杆菌悬液,同时用未接种大肠杆菌的LB液体培养基作为空白对照。用无菌吸管吸取20 μL的菌悬液和油莎豆浸提液(最优处理中的最佳剂量),转入20 mL的LB液体培养基中,混合均匀后分别取5 mL混合液放入上述标记的12个无菌大试管中。将已接种的试管置摇床37 ℃振荡(振荡频率250 r/min)培养,分别培养0、1.5、3.0、4.0、6.0、8.0、10.0、12.0、14.0、16.0、20.0和24.0 h,将标有相应时间的试管取出,立即放4 ℃冰箱中贮存,最后统一使用分光光度计测定菌悬液中的OD600值,绘制生长曲线。

1.7 大肠杆菌代谢组学分析

样本收集:选取前述试验确定的抗菌效果最好的样本,随后取2 mL放入冷冻管里面,放入液氮中速冻后,储存在-80 ℃冰箱内直至分析。
代谢物提取[11-13]:将样本从冰箱中取出,加入400 μL的1∶1预冷乙腈和甲醇混合液,使用自动化匀浆机将样本打碎匀浆,混匀30 s,匀浆后的样本在低温下超声提取3次,每次10 min,每次超声后需将样品涡旋混匀30 s,超声提取后-20 ℃下静止60 min以促进沉淀,4 ℃、13 000×g离心15 min,取200 μL上清液用于分析。
基于液相色谱-质谱联用(LC-MS)的非靶向代谢组学分析[11-13]:采用液相色谱-高分辨质谱联用系统(Thermo Q Exactive HF-X)进行非靶向代谢物分析。色谱条件:ACQUITY UPLC HSS T3色谱柱(100 mm×2.1 mm,1.8 μm);流动相A为95%水+5%乙腈+0.1%甲酸,流动相B为47.5%乙腈+47.5%异丙醇+5%水+0.1%甲酸;梯度洗脱程序为0~0.1 min 5%流动相B,0.1~2 min 5%~25%流动相B,2~5 min 25%~100%流动相B,5~9 min 100% 流动相B,13.0~13.1 min 100%~0流动相B,13.1~16 min 100%流动相A;流速0.40 mL/min,柱温40 ℃,进样量2 μL。质谱条件:电喷雾离子源(ESI),正、负离子模式;喷雾电压正离子3 500 V,负离子2 800 V;全扫描范围质荷比(m/z)70~1 050;一级分辨率70 000(用于分子离子检测);鞘气流速40 psi,辅助加热气流速10 psi,加热温度400 ℃。
基于液相色谱-串联质谱(LC-MS/MS)的靶向验证[11-13]:采用液相色谱-三重四极杆质谱联用系统(Agilent 6495)进行分析。色谱条件:Agilent Eclipse Plus C18柱(250 mm×4.6 mm,5 μm);流动相A为乙腈,流动相B为0.1%磷酸水溶液;梯度洗脱程序为0~10 min 15%流动相A,10~15 min 20%流动相A,15~20 min 40%流动相A,20~21 min 80%流动相A,21~30 min 15%流动相A;流速1.0 mL/min,柱温35 ℃,进样量20 μL。质谱条件:多反应监测(MRM)模式;优化母离子-子离子对(碰撞能量25 V);二级分辨率17 500(用于碎片离子检测)。
上机分析结束后,利用Progenesis QI (Waters Corporation)软件处理LC-MS原始数据。随后,基于获得的质谱信息,与HMDB(http://www.hmdb.ca/)及METLIN(https://metlin.scripps.edu/)数据库进行匹配检索,鉴定代谢物。

1.8 油莎豆中主要抑菌成分分析

油莎豆植株样品上机前处理:0.5 g油莎豆植株风干样本粉末(置于2 mL离心管)→加入研磨珠(1个,直径6 mm)→制备以0.02 mg/mL的L-2-氯苯丙氨酸为内标的甲醇和水浸提液(4∶1)→在装有油莎豆块茎样本的离心管中加入提取液(400 μL)→样本溶液研磨(-10 ℃,50 Hz,6 min)→低温超声提取(5 ℃,40 kHz,30 min)→冻存(-20 ℃,30 min)→13 000×g离心(15 min)→取上清液进样→机器分析。
液相色谱分析方法:将代谢物标准品(分析纯)使用相应的溶剂溶解,配制成浓度为20 mg/mL的母液。混合标准溶液:以母液为基础,将主要组分分别稀释至2、5、10、20和50 μg/mL。单一标准溶液:以母液为基础,将主要组分稀释至20 μg/mL。色谱条件:色谱柱为Agilent EcliPse Plus C18柱(250 mm×4.6 mm,5 μm);流动相A为乙腈,流动相B为0.1%磷酸水溶液;梯度洗脱程序为0~10 min,流动相A占15%,流速1.0 mL/min;10~15 min,流动相A占20%,流速1.0 mL/min;15~20 min,流动相A占40%,流速1.0 mL/min;20~21 min,流动相A占80%,流速1.0 mL/min;21~30 min,流动相A占15%,流速1.0 mL/min;柱温35 ℃,进样量20 μL。

1.9 数据处理与分析

使用Excel 2019对试验数据进行统计整理,使用SPSS 19.0软件对抑菌圈直径和吸光度值数据进行单因素方差分析和多重比较(SNK法),将代谢物信息数据上传至美吉科服网(https://cloud.majorbio.com)进行数据分析。

2 结果与分析

2.1 油莎豆不同部位浸提液对大肠杆菌的抑菌效果比较

表1可知,油莎豆茎叶、块茎浸提液及混合浸提液对大肠杆菌均具有抑菌活性,且抑菌效应呈剂量依赖性。随着油莎豆浸提液剂量由50 μL增至250 μL,抑菌圈直径显著增大(P<0.05),其中块茎浸提液抑菌圈直径由(6.95±0.13) mm(耐药)升至(23.75±1.30) mm(高度敏感),茎叶浸提液抑菌圈直径由(8.05±0.37) mm(中等敏感)增至(24.65±0.39) mm(高度敏感),而混合浸提液在250 μL时抑菌圈直径达(29.40±0.74) mm(高度敏感),为各处理的最优值;相同剂量下,块茎浸提液抑菌效果显著弱于茎叶浸提液和混合浸提液(P<0.05)。基于250 μL混合浸提液表现出最优抑菌活性,后续研究将以其为焦点展开。
表1 油莎豆不同部位浸提液对大肠杆菌的抑菌圈

Table 1 Inhibition zone of extract liquids of different parts of Cyperus esculentus on Escherichia coli

项目
Items
剂量
Dose/μL
抑菌圈直径
Diameter of inhibition zone/mm
敏感度
Sensitivity


块茎浸提液
Tuber extract liquid
50 6.95±0.13Cd R
70 9.35±0.21Bc R
150 12.50±0.26Bb M
250 23.75±1.30Ba S


茎叶浸提液
Stem and leaf extract liquid
50 8.05±0.37Bd R
70 10.15±0.21Ac M
150 21.80±0.26Ab S
250 24.65±0.39Ba S


混合浸提液
Mixed extract liquid
50 8.88±0.17Ad R
70 11.93±0.31Ac M
150 18.25±0.70Ab S
250 29.40±0.74Aa S

R表示耐药,M表示中度敏感,S表示高度敏感。同列数据肩标不同小写字母表示相同浸提液的不同剂量之间显著差异(P<0.05),不同大写字母表示同一剂量下不同浸提液之间显著差异(P<0.05)。

R mean resistant, M mean moderately sensitive, and S mean highly sensitive. Values in the same column with different lowercase letter superscripts indicated that there was a significant difference between the different doses of the same extract liquid (P<0.05), and with different uppercase letter superscripts indicated that there was a significant difference between the different extract liquid with the same dose (P<0.05).

2.2 油莎豆不同部位浸提液对大肠杆菌细胞形态结构的影响

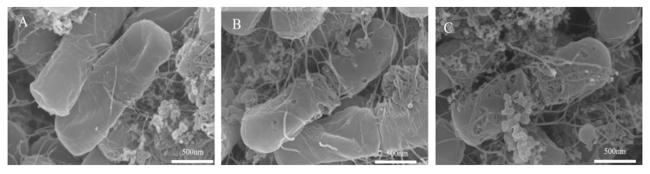
图1中SEM观测结果揭示了油莎豆各部位提取物对大肠杆菌形态结构的显著抑制与破坏作用。块茎浸提液使大肠杆菌的细胞表面发生了明显的变化,细胞膜出现明显的塌陷,细胞形态由原本的杆状变得不规则,且表面粗糙,细胞结构遭到一定程度的破坏(图1-A);与块茎提取液相比,茎叶提取液对大肠杆菌的细胞产生了更加显著的破坏效果,细胞表面呈现明显的凹陷和破裂现象,细胞壁结构受损,细胞轮廓变得不规则,部分区域甚至有溶解的迹象(图1-B);混合浸提液对大肠杆菌细胞的破坏情况最为严重,细胞大面积坍塌,细胞壁破裂,几乎看不到完整的细胞形态,表面出现明显的裂缝和塌陷现象(图1-C)。
图1 油莎豆不同部位浸提液对大肠杆菌细胞形态结构的影响(扫描电镜图片)

A:块茎浸提液 tuber extract liquid;B:茎叶浸提液 stem and leaf extract liquid;C:混合浸提液 mixed extract liquid。

Fig.1 Effects of extract liquids of different parts of Cyperus esculentus on cell morphological structure of Escherichia coli (SEM images)

2.3 油莎豆混合浸提液对大肠杆菌生长规律的影响

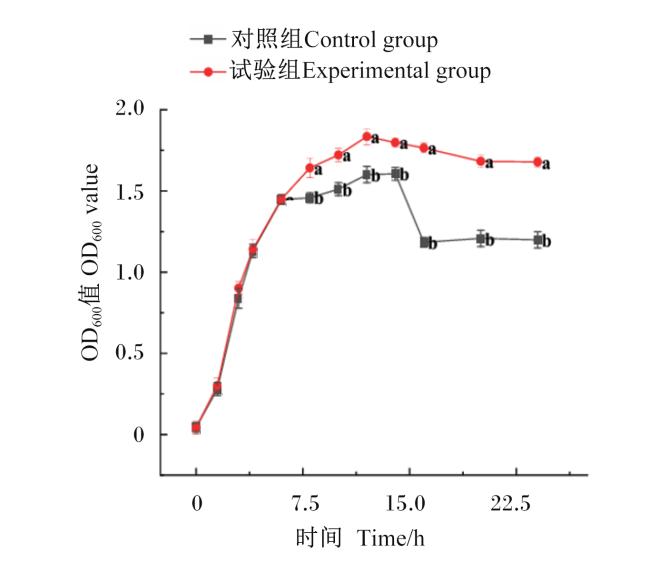
由抑菌试验结果可知油莎豆混合浸提液在250 μL剂量下呈现最优抑菌效果,因此选取250 μL油莎豆混合浸提液作为试验组进行生长曲线变化研究。
图2可知,大肠杆菌在添加油莎豆混合浸提液后的生长曲线发生了明显变化。在未添加油莎豆混合浸提液的对照组中,大肠杆菌的生长呈现典型的细菌生长曲线特征,在0~7.5 h内,细菌快速进入对数生长期,OD600值迅速增加,最高达到1.75左右,随后细菌生长趋于平稳,保持在相对较高的OD600值,直至试验结束;在添加油莎豆混合物浸提液的试验组中,大肠杆菌的生长曲线显示,细菌在0~7.5 h内的生长速率与对照组相似,OD600值也逐步增加,最高接近1.5,然而,在7.5 h后,细菌生长受到显著抑制,OD600值快速下降,显著低于对照组(P<0.05),表明油莎豆混合浸提液对大肠杆菌具有强烈的抑制作用,在15.0 h后,试验组的OD600值急剧下降,并且在接下来的时间内保持在较低水平,抑菌效果持久。
图2 添加油莎豆混合浸提液后大肠杆菌生长曲线的变化

数据点标注不同小写字母表示组间差异显著(P<0.05)。

Fig.2 Growth curve change of Escherichia coli after adding mixed extract liquid of Cyperus esculentus

Data points labeled with different lowercase letters indicated significant difference between groups (P<0.05).

2.4 油莎豆混合浸提液对大肠杆菌代谢物的影响

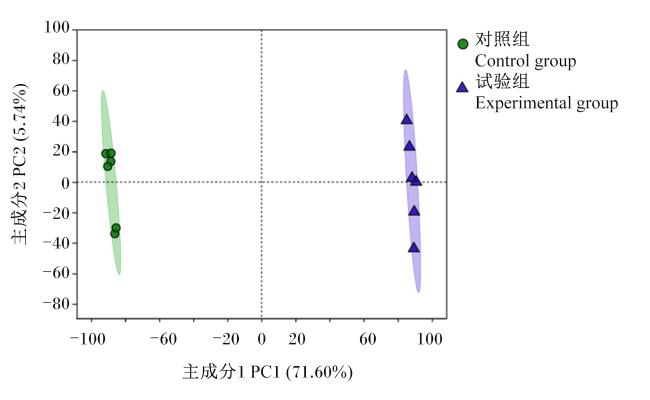
根据图3的主成分分析(PCA)结果,在添加(试验组)与未添加油莎豆混合浸提液(对照组)的样本中大肠杆菌代谢物在主成分1(PC1,71.60%)和主成分2(PC2,5.74%)2个主成分上的分布存在显著差异,即油莎豆混合浸提液对大肠杆菌的代谢特性产生了显著影响。
图3 大肠杆菌代谢物的主成分分析

Fig.3 PCA of metabolites of Escherichia coli

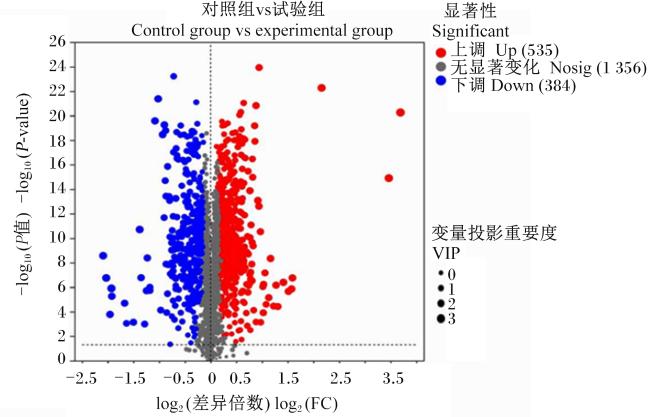
添加油莎豆混合浸提液后,大量代谢物的表达量发生了变化,火山图(图4)显示,上调的代谢物共有535个,下调的代谢物共有384个。
图4 添加油莎豆混合浸提液后大肠杆菌基因表达变化火山图

Fig.4 Volcano diagram of gene expression changes of Escherichia coli after adding mixed extract liquid of Cyperus esculentus

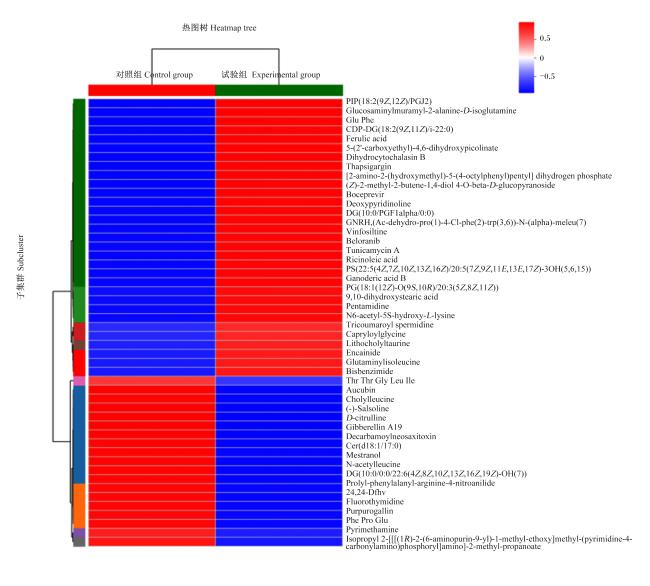
从代谢物热图(图5)可以发现,试验组和对照组在代谢物水平上表现出明显的差异。试验组中代谢物如CDP-二酰甘油、氨基葡萄糖-2-丙氨酸-D-异谷氨酰胺、二氢细胞松弛素B、癸烯酰肉碱、毒胡萝卜素、蓖麻油酸、灵芝酸B和衣霉素A等代谢物的含量较对照组增加;相反,试验组中三香豆酰亚精胺、辛酰甘氨酸、石胆牛磺酸、谷氨酰异亮氨酸、双苯酰亚胺、胆亮氨酸、D-瓜氨酸、去氨甲酰新竹红菌素、红棓酚和嘧霉胺等代谢物的含量较对照组降低。
图5 大肠杆菌代谢物热图

限于篇幅,仅对重要的代谢物给出对应中文 Due to space limitations, only the corresponding Chinese names for important metabolites are provided。PIP(18∶2(9Z,12Z)/PGJ2):磷脂酰肌醇-4,5-二磷酸(亚油酸/PGJ2);Glucosaminylmuramyl-2-alanine-D-isoglutamine:葡糖胺基胞壁酰二肽;Glu Phe:谷氨酰苯丙氨酸;CDP-DG(18∶2(9Z,11Z)/i-22∶0):CDP-二酰甘油(亚油酸/异二十二酸);Ferulic acid:阿魏酸;5-(2'-carboxyethyl)-4,6-dihydroxypicolinate:5-(2'-羧乙基)-4,6-二羟基吡啶-2-甲酸;Dihydrocytochalasin B:二氢松胞菌素B;Thapsigargin:毒胡萝卜素;(Z)-2-methyl-2-butene-1,4-diol 4-O-beta-D-glucopyranoside:(Z)-2-甲基-2-丁烯-1,4-二醇4-O-β-D-吡喃葡萄糖苷;Boceprevir:波西普韦;Deoxypyridinoline:脱氧吡啶啉;DG(10∶0/PGF1alpha/0∶0):甘油二酯(癸酸/PGF1α//0∶0);Vinfosiltine:维诺磺汀(抗肿瘤药物);Beloranib:贝洛拉尼(抗肥胖药物);Ganoderic acid B:灵芝酸B。

Fig.5 Heat map of metabolites of Escherichia coli

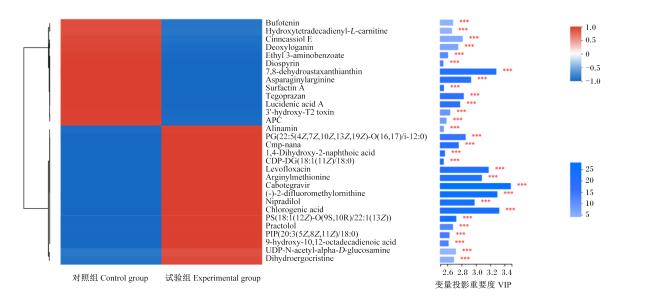
图6可知,许多代谢物在变量投影重要度(VIP)值上超过了2.6,并且P<0.05,表明这些代谢物的含量在试验组和对照组之间具有显著差异,如左氧喹诺酮、精氨基甲酰蛋氨酸、(-)-2-双氟甲基、尼普地呤、绿原酸、咖啡酸奎宁酸酯等。
图6 大肠杆菌代谢物聚类图

“* * *”代表P<0.001。“* * *” represents P<0.001.限于篇幅,仅对重要的代谢物给出对应中文 Due to space limitations, only the corresponding Chinese names for important metabolites are provided。Alinamin:阿林胺(维生素B1衍生物);PG(22∶5(4Z,7Z,10Z,13Z,19Z)-O(16,17)/i-12∶0):磷脂酰甘油(22∶5-16,17-环氧/i-12∶0);Cmp-nana:胞苷-5'-单磷酸-N-乙酰神经氨酸;1,4-dihydroxy-2-naphthoic acid:1,4-二羟基-2-萘甲酸;CDP-DG(18∶1(11Z)/18∶0):CDP-二酰甘油(油酰/硬脂酰);Levofloxacin:左氧喹诺酮;Arginylmethionine:精氨酰蛋氨酸;Cabotegravir:卡博特韦;(-)-2-difluoromethylornithine:(-)-2-二氟甲基鸟氨酸;Nipradilol:尼普地洛;Chlorogenic acid:绿原酸;PS(18∶1(12Z)-O(9S,10R)/22∶1(13Z)):磷脂酰丝氨酸(18∶1-9S,10R-环氧/芥酸);Practolol:普拉洛尔;PIP(20∶3(5Z,8Z,11Z)/18∶0):磷脂酰肌醇-4,5-二磷酸(20∶3/硬脂酸);9-hydroxy-10,12-octadecadienoic acid:9-羟基-10,12-十八碳二烯酸;UDP-N-acetyl-alpha-D-glucosamine:尿苷-5'-二磷酸-N-乙酰-α-D-葡糖胺;Dihydroergocristine:二氢麦角克碱。

Fig.6 Clustering diagram of metabolites of Escherichia coli

2.5 油莎豆中主要抑菌成分分析

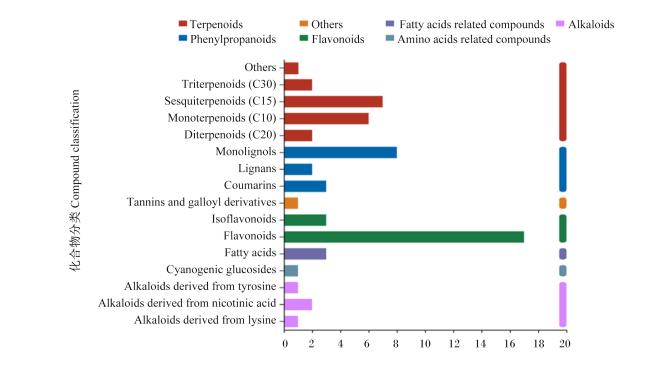
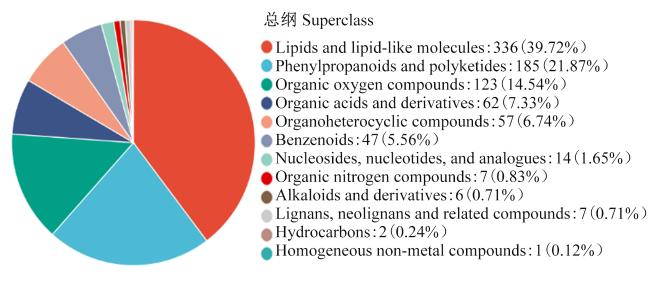
图7可知,油莎豆中化学成分主要的类别为黄酮类和苯丙素类化合物,萜类化合物如二萜(C20)、单萜(C10)和倍半萜(C15)以中等含量出现,其他化合物如由酪氨酸衍生的生物碱、赖氨酸和烟酸衍生的生物碱含量较少。由图8可知,油莎豆的化合物中脂类及类脂分子是最丰富的(约39.72%),苯丙素类和聚酮类次之(约21.87%),其他重要类别包括有机氧化合物(约14.54%)和有机酸及其衍生物(约7.33%)。综上所述,油莎豆中化学成分呈现较高的多样性,尤其在黄酮类化合物上含量较为突出。根据油莎豆中化合物的分类,结合油莎豆植株代谢的结果,确定金合欢素、柚皮素、香叶木素、水飞蓟宾A这4种黄酮类化合物为油莎豆中主要抑菌物质(表2),对这4种物质进行定量分析。
图7 KEGG化合物分类

Terpenoids:萜类;Phenylpropanoids:苯丙素类;Others:其他;Flavonoids:黄酮类;Fatty acids related compounds:脂肪酸相关化合物类;Amino acids related compounds:氨基酸相关化合物类;Alkaloids:生物碱类;Triterpenoids (C30):三萜类(C30);Sesquiterpenoids (C15):倍半萜类;(C15);Monoterpenoids (C10):单萜类(C10);Diterpenoids (C20):二萜类(C20);Monolignols:单木质素醇类;Lignans:木脂素类;Coumarins:香豆素类;Tannins and galloyl derivatives:鞣质及其没食子酰衍生物;Isoflavonoids:异黄酮类;Flavonoids:黄酮类;Fatty acids:脂肪酸类;Cyanogenic glucosides:生氰苷类;Alkaloids derived from tyrosine:酪氨酸衍生生物碱;Alkaloids derived from nicotinic acid:烟酸衍生生物碱;Alkaloids derived from lysine:赖氨酸衍生生物碱。

Fig.7 KEGG compound classification

图8 油莎豆中化合物分类总纲

Lipids and lipid-like molecules:脂质及类脂分子;Phenylpropanoids and polyketides:苯丙素类及聚酮类;Organic oxygen compounds:有机氧化合物;Organic acids and derivatives:有机酸及其衍生物;Organoheterocyclic compounds:有机杂环化合物;Benzenoids:苯系衍生物;Nucleosides, nucleotides, and analogues:核苷、核苷酸及其类似物;Organic nitrogen compounds:有机氮化合物;Alkaloids and derivatives:生物碱及其衍生物;Lignans, neolignans and related compounds:木脂素、新木脂素及相关化合物;Hydrocarbons:烃类化合物;Homogeneous non-metal compounds:均相非金属化合物。

Fig.8 Superclass of compounds taxonomy in Cyperus esculentus

表2 油沙豆中的金合欢素、柚皮素、香叶木素、水飞蓟宾A

Table 2 Acacetin, naringenin, diosmetin and silybin A in Cyperus esculentus

项目
Items
方式
Mode
分子式
Formula
总纲
Superclass
化合物类别
Compound classes
金合欢素Acacetin 正离子 C16H12O5 苯丙素类和聚酮类 黄酮类化合物
柚皮素Naringenin 正离子 C15H12O5 苯丙素类和聚酮类 黄酮类化合物
香叶木素Diosmetin 正离子 C16H12O6 苯丙素类和聚酮类 黄酮类化合物
水飞蓟宾A Silybin A 负离子 C25H22O10 苯丙素类和聚酮类 黄酮类化合物

2.6 油莎豆混合浸提液中主要抑菌物质的定量分析

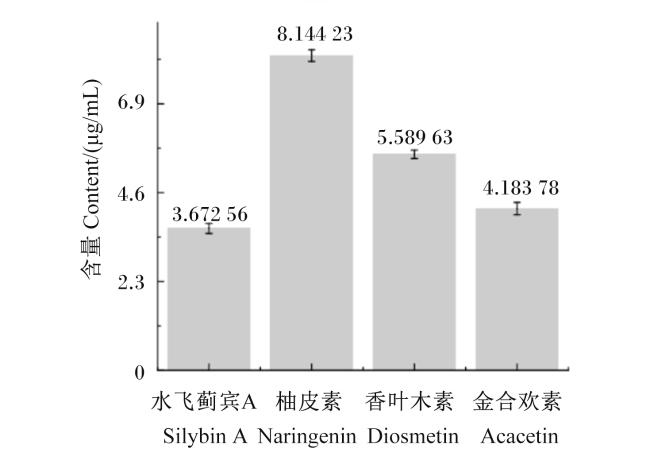
通过油莎豆混合浸提液红外光谱图和柚皮素、香叶木素、金合欢素、水飞蓟宾A混合标准液红外光谱图中的峰高,得到油莎豆混合浸提液中金合欢素含量为4.18378μg/mL,柚皮素含量为8.144 23 μg/mL,香叶木素含量为5.589 63 μg/mL,水飞蓟宾A含量为3.672 56 μg/mL(图9)。
图9 油莎豆混合物浸提液中主要抑菌物质的含量

Fig.9 Contents of major antibacterial substances in mixed extract liquid of Cyperus esculentus

3 讨论

3.1 油莎豆不同部位浸提液对大肠杆菌的抑菌效果比较

油莎豆具有很高的药用价值,《新华本草纲要》中记载其含有生物碱、皂苷和单宁[14],具有抗氧化[15]、抗菌抗炎作用[16]。本试验结果显示,油莎豆茎叶、块茎浸提液以及两者的混合浸提液均对大肠杆菌具有明显的抑菌效果,且具有剂量依赖性。油莎豆混合浸提液的抑菌圈直径最大,在在250 μL时抑菌圈直径达到(29.40±0.74) mm,远超块茎和茎叶浸提液单独处理,这表明油莎豆不同部位的浸提液可能通过协同作用增强了抑菌效果;油莎豆茎叶浸提液的抑菌效果相对较弱,其抑菌圈直径明显小于块茎浸提液和混合浸提液,可能原因为不同部位的次生代谢物含量具有特异性,由于茎叶的主要功能是光合作用,茎叶中抑菌活性成分含量相对较低,块茎中的次生代谢物含量较高[17]。在Adeniyi等[18]的研究中发现,油莎豆的乙醇提取物和水提取物均对烟曲霉、金青霉、大肠杆菌、沙门氏菌以及金黄色葡萄球菌有抑菌作用。有研究发现,油莎豆的抗菌效果与其植株所含的抗菌次级代谢物有关,如生物碱、类黄酮、酚类和单宁[19]

3.2 油莎豆不同部位浸提液对大肠杆菌细胞形态结构的影响

通过SEM观察发现,经油莎豆浸提液处理后,大肠杆菌细胞的细胞膜出现局部塌陷,细胞表面出现裂缝,作用效果最为显著的是混合浸提液。SEM图像显示,油莎豆混合浸提液处理后大肠杆菌细胞几乎完全崩塌,细胞壁和细胞膜均遭到严重破坏,内容物流出。有研究指出,油莎豆提取物中的酚类物质、黄酮类化合物及萜类化合物可以通过破坏细菌细胞膜的完整性、增加细胞膜的渗透性和通透性等来达到抑菌的目的[20]

3.3 油莎豆混合浸提液对大肠杆菌生长规律的影响

细菌的生长曲线可以直观反映其生长情况及生长速率[21]。通过比较试验组和对照组的生长曲线,可以发现油莎豆混合浸提液明显影响大肠杆菌的生长。对照组中大肠杆菌为S形生长曲线,包括短暂的迟滞期,随后快速进入对数生长期,最终在平稳期维持较高的光密度值。在添加油莎豆混合浸提液的试验组中,大肠杆菌的生长在早期阶段(7.5 h)与对照组相似,之后增殖显著减缓,这表明油莎豆混合浸提液对大肠杆菌的生长具有强烈的抑制作用,与抑菌圈直径结果一致。

3.4 油莎豆混合浸提液对大肠杆菌代谢物的影响

添加油莎豆混合浸提液后,大肠杆菌的代谢特征发生了显著变化,许多代谢物的表达水平明显上调或下调,这表明油莎豆混合浸提液通过干扰大肠杆菌的正常代谢路径,进一步抑制了其生存能力。通过LC-MS对油莎豆混合浸提液处理前后的代谢物进行非靶向代谢组学分析,发现添加油莎豆混合浸提液的试验组中灵芝酸B和左氧喹诺酮的含量均呈现显著上调,其中灵芝酸B属于灵芝三萜类化合物,存在于食用真菌当中,对革兰氏阴性菌(大肠杆菌)、革兰氏阳性菌(金黄色葡萄球菌)的生长有较明显的抑制作用,但抑制枯草芽孢杆菌的能力比较弱[22-23];左氧喹诺酮属于喹诺酮类抗生素,为广谱抗生素,抗菌作用主要是以抑制细菌DNA活性,从而致使细菌DNA无法复制及合成而死亡[24]

3.5 油莎豆中主要抑菌成分分析

黄酮类化合物是植物重要的次级代谢物,大多数植物体内含有黄酮类化合物,因其独特的化学结构而具有抗氧化、抗癌、抗肿瘤作用[25]。黄酮类化合物对大肠杆菌的抑菌原理为破坏大肠杆菌的细胞膜,扩大通透性,使细胞中的DNA和RNA泄露到外界。此外,黄酮类化合物还通过干扰其代谢通路和信息转导通路来抑制细菌生长,并且碱基转换数远远高于碱基反转数[26]。在王振伟等[27]的研究中发现,随着线叶金雀花总黄酮作用浓度的增加,大肠杆菌的细胞形态损伤程度也会加剧,包括细胞塌陷、细胞壁和细胞膜分离、细胞液外泄、细胞破碎等现象。陈国妮等[28]关于马齿苋类黄酮提取工艺及抑菌效果的研究中发现,马齿苋黄酮对大肠杆菌有一定的抑制作用,作用浓度越高,其抑菌效果越明显,最低抑菌浓度均为0.313 mg/mL。

3.6 油莎豆混合浸提液中主要抑菌物质的定量分析

本试验对油莎豆混合浸提液中金合欢素、柚皮素、香叶木素、水飞蓟宾A这4种黄酮类化合物进行了定量分析,确定它们在油莎豆混合浸提液中的含量分别为4.183 78、8.144 23、5.589 63和3.672 56 μg/mL。已有研究发现,在大肠杆菌感染的小鼠模型中,金合欢素表现出显著的保护效果,金合欢素组的小鼠与感染大肠杆菌组的小鼠相比,肠道的病理损伤较轻,肠壁结构相对较为完整,肠绒毛虽然有轻微破损,但大部分仍保持排列,而感染大肠杆菌组的小鼠则表现出严重的肠道破坏,肠绒毛紊乱、分散,黏膜层开始漂浮;此外,金合欢素组的小鼠白细胞数目接近正常范围,表明其在一定程度上减轻了炎症反应[29]。柚皮素广泛存在于水果中,可以通过改变大肠杆菌细胞膜中脂肪酸的组成来增加膜的流动性,而微生物细胞膜的流动性与正常的细胞功能如细胞分裂、扩散和泵送离子等息息相关。研究发现,在柚皮素的作用下,大肠杆菌细胞的饱和脂肪酸和环状脂肪酸的含量减少,而不饱和脂肪酸的含量显著增加,从18.5%增加到43.3%,这种变化导致了细胞膜的流动性增加,进而影响细菌的膜功能[30]。研究显示,香叶木素在浓度为0.37~1.47 mmol/L的范围内可使大肠杆菌细胞膜的通透性增加,并且与大肠杆菌的DNA结合,特别是在富含A-T的区域,导致DNA聚集,使功能紊乱[31]

4 结论

① 油莎豆块茎、茎叶浸提液及二者混合浸提液对大肠杆菌的抑菌效果呈剂量依赖性,其中混合浸提液在250 μL时表现出最强的抑菌活性。
② 油莎豆浸提液可导致大肠杆菌细胞膜塌陷、细胞壁破裂及内容物外泄,其中混合浸提液对细胞形态的破坏最为显著。
③ 代谢组学分析表明,油莎豆混合浸提液可改变大肠杆菌的代谢路径,导致关键代谢物的含量发生变化。
④ 针对油莎豆混合浸提液中主要抑菌物质的定量分析发现,柚皮素(8.144 23 μg/mL)和香叶木素(5.589 63 μg/mL)为关键抑菌成分。
[1]
陈国旺, 南景东, 张建胜, 等. 油莎豆及其副产物的应用研究进展[J]. 现代畜牧兽医, 2024(4):87-90.

CHEN G W, NAN J D, ZHANG J S, et al. Research progress on the application of Cyperus esculentus L. and its by-products[J]. Modern Journal of Animal Husbandry and Veterinary Medicine, 2024(4):87-90. (in Chinese)

[2]
孙蕊, 王锐, 高海娟, 等. 饲用油莎豆的营养成分及其在生产中的应用[J]. 现代畜牧科技, 2024, 52(10):57-60.

SUN R, WANG R, GAO H J, et al. The nutritional ingredient of Cyperus esculentus L. and its application in production[J]. Modern Animal Husbandry Science & Technology, 2024, 52(10):57-60. (in Chinese)

[3]
田瑜. 油莎豆油生产工艺及产品质量研究[D]. 硕士学位论文. 郑州: 河南工业大学, 2016.

TIAN Y. Study on the extraction of Cyperus esculentus oil and the quality of Cyperus esculentus production[D]. Master’s Thesis. Zhengzhou: Henan University of Technology, 2016. (in Chinese)

[4]
JING S Q, WANG S S, LI Q, et al. Dynamic high pressure microfluidization-assisted extraction and bioactivities of Cyperus esculentus (C. esculentus L.) leaves flavonoids[J]. Food Chemistry, 2016,192:319-327.

[5]
NWOSU L C, EDO G I, ÖZGÖR E. The phytochemical, proximate, pharmacological, GC-MS analysis of Cyperus esculentus (tiger nut):a fully validated approach in health,food and nutrition[J]. Food Bioscience, 2022,46:101551.

[6]
UDEFA A L, AMAMA E A, ARCHIBONG E A, et al. Antioxidant,anti-inflammatory and anti-apoptotic effects of hydro-ethanolic extract of Cyperus esculentus L. (tiger nut) on lead acetate-induced testicular dysfunction in Wistar rats[J]. Biomedicine & Pharmacotherapy, 2020,129:110491.

[7]
吕颖捷, 黄敏, 柴凤兰, 等. 畜禽养殖中抗生素的使用现状、问题及对策[J]. 中兽医学杂志, 2024(5):43-45.

LYU Y J, HUANG M, CHAI F L, et al. Current status,issues,and countermeasures of antibiotic use in livestock and poultry farming[J]. Chinese Journal of Traditional Veterinary Science, 2024(5):43-45. (in Chinese)

[8]
杨祎祎. 畜禽养殖业抗生素滥用危害及预防措施[J]. 北方牧业, 2023(14):6-7.

YANG Y Y. Harm of antibiotic abuse in livestock and poultry farming and preventive measures[J]. Northern Animal Husbandry, 2023(14):6-7. (in Chinese)

[9]
CHASSAGNE F, SAMARAKOON T, PORRAS G, et al. A systematic review of plants with antibacterial activities:a taxonomic and phylogenetic perspective[J]. Frontiers in Pharmacology, 2020,11:586548.

[10]
胥秋, 张黎, 高成涛, 等. 天然抗菌剂抗菌机理及在可降解包装材料中的改性应用研究进展[J]. 工程塑料应用, 2024, 52(7):179-185.

XU Q, ZHANG L, GAO C T, et al. Research progress of antibacterial mechanism of natural antibacterial agent and their modification application in degradable packaging materials[J]. Engineering Plastics Application, 2024, 52(7):179-185. (in Chinese)

[11]
WANG X Y, SUN G A, FENG T, et al. Sodium oligomannate therapeutically remodels gut microbiota and suppresses gut bacterial amino acids-shaped neuroinflammation to inhibit Alzheimer’s disease progression[J]. Cell Research, 2019, 29(10):787-803.

[12]
DING J N, HUANG Y J, LIU S J, et al. Toxicological effects of nano- and micro-polystyrene plastics on red tilapia:are larger plastic particles more harmless?[J]. Journal of Hazardous Materials, 2020,396:122693.

[13]
XIE M D, CHEN W Q, LAI X C, et al. Metabolic responses and their correlations with phytochelatins in Amaranthus hypochondriacus under cadmium stress[J]. Environmental Pollution, 2019, 252(Pt B):1791-1800.

[14]
段帅, 张德建, 姚玉军, 等. 油莎豆营养价值及加工应用研究进展[J]. 食品科技, 2022, 47(7):149-154.

DUAN S, ZHANG D J, YAO Y J, et al. Research progress on the nutritional value and processing application of Cyperus esculentus[J]. Food Science and Technology, 2022, 47(7):149-154. (in Chinese)

[15]
WILLIS S, JACKSON C, VERGHESE M. Effects of processing on antioxidant capacity and metabolizing enzyme inhibition of tiger nut tubers[J]. Food and Nutrition Sciences, 2019, 10(9):1132-1141.

[16]
杨帆, 朱文学. 油莎豆研究现状及展望[J]. 粮食与油脂, 2020, 33(7):4-6.

YANG F, ZHU W X. Research status and prospect of Cyperus esculentus[J]. Cereals & Oils, 2020, 33(7):4-6. (in Chinese)

[17]
陈宇. 檀香心材次生代谢物分布的水氮耦合机制[D].硕士学位论文. 重庆: 重庆三峡学院, 2024.

CHEN Y. Water nitrogen coupling mechanism of the distribution of secondary metabolites in sandalwood heartwood[D]. Master’s Thesis. Chongqing: Chongqing Three Gorges University, 2024. (in Chinese)

[18]
ADENIYI T A, ADEONIPEKUN P A, OMOTAYO E A. Investigating the phytochemicals and antimicrobial properties of three sedge (Cyperaceae) species[J]. Notulae Scientia Biologicae, 2014, 6(3):276-281.

[19]
PRAKASH N, RAGAVAN B. Phytochemical observation and antibacterial activity of Cyperus esculentus L[J]. Ancient Science of Life, 2009, 28(4):16-20.

[20]
陈旭, 伊蓝坤, 白玉彬, 等. 植物提取物协同抗生素抗菌作用的研究进展[J]. 中国兽医科学, 2025, 55(1):94-100.

CHEN X, YI L K, BAI Y B, et al. Research progress of the antibacterial effects between plant extracts and antibiotics[J]. Chinese Veterinary Science, 2025, 55(1):94-100. (in Chinese)

[21]
陶梦娟, 张莉, 武华军, 等. 麦芽醇提物对肠道微生物区系中大肠埃希菌和金黄色葡萄球菌的体外抑菌机制[J]. 中南药学, 2024, 22(9):2374-2379.

TAO M J, ZHANG L, WU H J, et al. In vitro antibacterial mechanism of alcoholic extract of malt against Escherichia coli and Staphylococcus aureus in intestinal microflora[J]. Central South Pharmacy, 2024, 22(9):2374-2379. (in Chinese)

[22]
王晓玲, 刘昭廷. 灵芝菌丝体中灵芝酸的体外抑菌作用[J]. 食品科技, 2008(10):184-186.

WANG X L, LIU Z T. In vitro bacteriostasis of the intracellular ganoderic acids from the mycelium of Ganoderma lucidum[J]. Food Science and Technology, 2008(10):184-186. (in Chinese)

[23]
常青. 灵芝发酵菌丝体的多糖和三萜抑菌活性研究[D].硕士学位论文. 长沙: 中南林业科技大学, 2024.

CHANG Q. Study on the antibacterial activity of polysaccharides and triterpenes from fermented Ganoderma mycelium[D]. Master’s Thesis. Changsha: Central South University of Forestry and Technology, 2024. (in Chinese)

[24]
张立荣, 江滟. 重症医学科耐甲氧西林金黄色葡萄球菌的基因型和同源性分析[J]. 海南医学院学报, 2024, 30(8):582-590.

ZHANG L R, JIANG Y. Genotype and homology analysis of methicillin-resistant Staphylococcus aureus in critical care[J]. Journal of Hainan Medical University, 2024, 30(8):582-590. (in Chinese)

[25]
莫红芳, 石宗承, 刘磊, 等. 植物类黄酮的药理作用及其在畜禽生产中的应用[J]. 动物医学进展, 2024, 45(9):119-122.

MO H F, SHI Z C, LIU L, et al. Pharmacological effects of plant flavonoids and their application in livestock and poultry production[J]. Progress in Veterinary Medicine, 2024, 45(9):119-122. (in Chinese)

[26]
LIN Z Y, LIN Y Y, ZHANG Z B, et al. Systematic analysis of bacteriostatic mechanism of flavonoids using transcriptome and its therapeutic effect on vaginitis[J]. Aging, 2020, 12(7):6292-6305.

[27]
王振伟, 郑黎静. 线叶金雀花总黄酮提取工艺优化及对大肠杆菌的抑菌作用[J]. 食品与机械, 2022, 38(9):139-145.

WANG Z W, ZHENG L J. Optimization of extraction technology of total flavonoids from rooibos and the antibacterial effect on Escherichia coli[J]. Food & Machinery, 2022, 38(9):139-145. (in Chinese)

[28]
陈国妮, 孙飞龙, 闫亚茹. 马齿苋类黄酮提取工艺及抑菌效果的研究[J]. 包装与食品机械, 2016, 34(1):6-10.

CHEN G N, SUN F L, YAN Y R. Study on the extraction process of flavonoids from purslane and its antibacterial effect[J]. Packaging and Food Machinery, 2016, 34(1):6-10. (in Chinese)

[29]
李朝一, 张慧敏, 李振坤, 等. 金合欢素对大肠杆菌感染小鼠肠道的保护作用[J]. 畜牧兽医科学(电子版), 2022(2):7-8.

LI Z Y, ZHANG H M, LI Z K, et al. Protective effect of acacia on intestinal tract of mice infected with Eschrichia coli[J]. Graziery Veterinary Sciences (Electronic Version), 2022(2):7-8. (in Chinese)

[30]
汪浪红. 柚皮素协同脉冲电场杀灭大肠杆菌和金黄色葡萄球菌机制研究[D].博士学位论文. 广州: 华南理工大学, 2019.

WANG L H. Mechanism of naringenin synergizing with pulsed electric fields to kill Escherichia coli and Staphylococcus aureus[D].Ph.D.Thesis. Guangzhou: South China University of Technology, 2019. (in Chinese)

[31]
TAKAYANAGI H, KIM S, KOGA T, et al. Induction and activation of the transcription factor NFATc1 (NFAT2) integrate RANKL signaling in terminal differentiation of osteoclasts[J]. Developmental Cell, 2002, 3(6):889-901.

DOI PMID

文章导航

/