综述

姜黄素对动物胆汁酸代谢的影响

  • 余浠望 , 1, 2 ,
  • 余婧 1, 2 ,
  • 江青艳 1 ,
  • 宋敏 , 2, *
展开
  • 1 华南农业大学动物科学学院, 广东省动物营养调控重点实验室, 广州 510642
  • 2 广东省农业科学院动物科学研究所, 猪禽种业全国重点实验室,农业农村部华南动物营养与饲料重点实验室,广东省畜禽育种与营养研究重点实验室,广东省畜禽肉品质量安全控制与评定工程技术研究中心, 广州 510640
*宋 敏,副研究员,E-mail:

余浠望(2000—),女,广东潮州人,硕士研究生,从事畜禽生态健康养殖的研究。E-mail:

收稿日期: 2025-08-21

  网络出版日期: 2026-03-16

基金资助

国家自然科学基金项目(32302835)

广州市科技计划项目(2023B03J1368)

广州市科技计划项目(2024E04J1249)

广东省动物育种与营养重点实验室开放课题项目(2022SZ04)

广东省猪跨县集群产业园区(茂名市)项目(GDSCYY2022-002)

猪禽种业全国重点实验室项目(2023QZ-NK09)

猪禽种业全国重点实验室项目(ZQQZ-03)

Effects of Curcumin on Bile Acid Metabolism in Animals

  • YU Xiwang , 1, 2 ,
  • YU Jing 1, 2 ,
  • JIANG Qingyan 1 ,
  • SONG Min , 2, *
Expand
  • 1 Guangdong Provincial Key Laboratory of Animal Nutrition Regulation, College of Animal Science, South China Agricultural University, Guangzhou 510642, China
  • 2 Guangdong Provincial Engineering Technology Research Center for Quality Safety Control and Evaluation of Livestock and Poultry Products, Guangdong Provincial Key Laboratory of Animal Breeding and Nutrition, Key Laboratory of Animal Nutrition and Feed Science in South China, Ministry of Agriculture and Rural Affairs, State Key Laboratory of Swine and Poultry Breeding Industry, Institute of Animal Science, Guangdong Academy of Agricultural Sciences, Guangzhou 510640, China
*associate professor, E-mail:

Received date: 2025-08-21

  Online published: 2026-03-16

摘要

姜黄素是一种存在于姜黄根茎中的天然多酚化合物,具有抗氧化、抗炎和缓解应激等多种生物学特性,因在动物生产领域有替代抗生素的潜力而受到高度关注。近年来的研究表明,姜黄素在调节胆汁酸代谢中发挥重要作用,而胆汁酸代谢与脂质消化、肠-肝稳态及动物健康密切相关。本文围绕姜黄素对胆汁酸合成、运输、重吸收及次级胆汁酸形成等方面的调节作用进行综述,旨在探讨其在动物胆汁酸代谢调控中的潜在机制,并为其作为绿色饲料添加剂用于动物健康提升提供参考。

本文引用格式

余浠望 , 余婧 , 江青艳 , 宋敏 . 姜黄素对动物胆汁酸代谢的影响[J]. 动物营养学报, 2026 , 38(3) : 1678 -1688 . DOI: 10.12418/CJAN2026.135

Abstract

Curcumin is a natural polyphenol extracted from the rhizome of turmeric. Due to its multiple biological functions, including anti-inflammatory, antioxidant, and anti-stress effects, it has shown great potential as an alternative to antibiotics in animal production. Recent studies have demonstrated that curcumin plays an important role in regulating bile acid metabolism, which is closely related to lipid digestion, gut-liver homeostasis, and animal health. This review summarizes the current research progress on curcumin’s effects on bile acid synthesis, transport, reabsorption, and the formation of secondary bile acids, aiming to provide a theoretical basis for further understanding the mechanism by which curcumin regulates bile acid metabolism in animals and for its development as a novel green feed additive to improve animal health.

胆汁酸是胆固醇代谢的终产物,在脂质消化吸收和维持胆固醇稳态中发挥重要作用。近年来,胆汁酸还被发现可通过激活法尼醇X受体(farnesoid X receptor,FXR)、G蛋白偶联胆汁酸受体5(G protein-coupled bile acid receptor 5,TGR5)等胆汁酸受体参与葡萄糖代谢、脂质代谢、能量代谢及免疫调控,其代谢紊乱与动物的多种代谢性疾病密切相关[1-5]。姜黄素是来源于姜黄根茎的天然多酚,具有抗氧化、抗炎和调节肠道菌群等多重生物学功能,其改善动物健康的潜力已受到广泛关注。此外,姜黄素还被证实可通过多种途径影响胆汁酸代谢,有助于维持其稳态[6-7]。本文系统综述了姜黄素对动物体内胆汁酸合成、转运、重吸收及胆汁酸的微生物转化等环节的调控作用,阐述了其通过调控FXR、TGR5及炎症等相关信号通路在维持肠肝循环、胆汁酸代谢稳态和肠道菌群平衡中的作用机制,以期为推进姜黄素在动物生产中的科学应用研究提供参考。

1 姜黄素概述

1.1 姜黄素的结构和理化性质
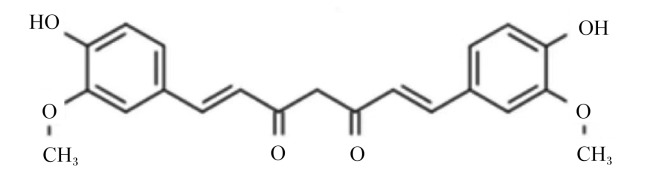
姜黄素是一种从姜科植物姜黄(Curcuma longa)根茎中提取的多酚类化合物,分子式为C21H20O6,相对分子质量为368.39,其分子结构(图1)由2分子邻位羟基苯环通过α,β-不饱和β-二酮链连接而成,具有对称性和共轭双键系统,使其具备良好的抗氧化活性。姜黄素呈黄色结晶性粉末,熔点约为183 ℃,难溶于水,易溶于乙醇、丙酮和二甲基亚砜等有机溶剂[8]。姜黄素具有光敏感性和热不稳定性,因此需在阴凉避光条件下保存,避免降解[9]
图1 姜黄素的分子结构

Fig.1 Molecular structure of curcumin

1.2 姜黄素的生物学功能

近年来,姜黄素以其多种生物学功能和药理活性而受到广泛关注。作为一种天然产物,姜黄素在抗炎、抗氧化及抗肿瘤等方面的研究已取得重要进展。研究表明,姜黄素能够通过多重机制有效降低体内炎症水平。一方面,它可抑制白细胞介素-1β(interleukin-1β, IL-1β)、白细胞介素-6(interleukin-6, IL-6)、肿瘤坏死因子-α(tumor necrosis factor-α, TNF-α)等促炎因子的合成与释放,下调环氧化酶-2(cyclooxygenase-2, COX-2)和诱导型一氧化氮合酶(inducible nitric oxide synthase, iNOS)等关键酶的表达,阻断炎性信号通路如核因子-κB(nuclear factor kappa-B, NF-κB)、丝裂原活化蛋白激酶(mitogen-activated protein kinase, MAPK)的过度激活,从而显著抑制炎症反应[10]。另一方面,姜黄素还可增强动物机体的抗氧化能力与细胞保护效应,包括清除过量活性氧(reactive oxygen species, ROS),进而显著减轻氧化应激对细胞的损伤,从而缓解由氧化应激引发的炎性反应[11]。姜黄素所发挥的抗肿瘤作用涵盖多条信号传导路径的调控过程,其中包括肿瘤细胞凋亡的诱导。基于姜黄素的上述多种生物学功能和药理活性,其在畜禽健康养殖领域展现出重要应用价值,近年来已作为绿色饲料添加剂在养殖业广泛应用。研究表明,姜黄素可通过调节肠道菌群结构、减少致病菌定植、提高肠道屏障功能,从而提升畜禽的生长性能和抗氧化能力,提升肉品质和机体健康水平[12-14]。此外,姜黄素可显著下调促炎因子(如TNF-αIL-6)表达,缓解炎症反应,特别适用于应激和感染状态下的畜禽[15]。相比传统抗生素,姜黄素安全性高、对病原菌无耐药性问题,具有作为替代抗生素添加剂的广阔前景。此外,近年来的研究发现,姜黄素通过调控肝脏中关键胆汁酸合成酶[如细胞色素P450家族7亚家族A成员1(cytochrome P450 family 7 subfamily A member 1, CYP7A1)]及转运相关蛋白[如胆盐输出泵(bile salt export pump,BSEP)]的表达,间接调节胆汁酸的合成与排出过程,从而在胆汁酸代谢平衡中起到重要调节作用。

2 胆汁酸概述

2.1 胆汁酸的结构及分类

胆汁酸是由胆固醇经肝脏代谢生成的一类类固醇化合物,也是胆固醇在肝脏代谢的最终产物,其具有C24甾体骨架结构,由四环类固醇核心与含羧基的侧链构成[16]。C3、C7和C12位的羟基数目、位置及其空间构型决定了胆汁酸的种类和亲水性[17]
根据合成途径,胆汁酸主要分为初级胆汁酸和次级胆汁酸[18],其区别见表1。初级胆汁酸,如胆酸(cholic acid, CA)、鹅脱氧胆酸(chenodeoxycholic acid, CDCA)在肝脏合成后,通常与牛磺酸或甘氨酸共轭,形成水溶性更好的共轭胆汁酸。次级胆汁酸,如石胆酸(lithocholic acid, LCA)、熊脱氧胆酸(ursodeoxycholic acid, UDCA)、脱氧胆酸(deoxycholic acid, DCA)主要由肠道菌群通过脱羟基化、7β-异构化等反应对初级胆汁酸进行转化与修饰而生成[19-20]
表1 胆汁酸的分类

Table 1 Classification of bile acids[18]

分类
Classifications
形成部位
Site of formation
核心结构
Nuclear structure
合成底物
Synthetic substrate
初级胆汁酸
Primary bile acids
肝脏 12α-三羟基-5β-胆烷酸
胆固醇
次级胆汁酸
Secondary bile acids
肠道 3α,12α-二羟-5β-胆烷酸
初级胆汁酸
不同物种的胆汁酸组成存在明显的差异(表2)。对于人,CA和CDCA是主要的初级胆汁酸,其比例受饮食结构、遗传背景及肠道微生物群等因素影响,存在个体间差异[21-22]。猪的胆汁酸以CA为主,并含有特有的HDCA,构成上与人更相似[23]。小鼠、大鼠等啮齿类动物除合成CA和CDCA外,还能合成多种特有的鼠胆酸(muricholic acids, MCAs),包括α-MCA、β-MCA和ω-MCA[24]。这些胆汁酸在羟基化形式上不同,导致其与TGR5、FXR等受体的亲和力及生物学功能相较于人类存在显著不同[25]
表2 各物种主要胆汁酸

Table 2 Major bile acids in different species[26]

物种
Species
初级胆汁酸 Primary bile acids 次级胆汁酸 Secondary bile acids
游离胆汁酸
Free bile acids
结合胆汁酸
Conjugated bile acids
游离胆汁酸
Free bile acids
结合胆汁酸
Conjugated bile acids

Human
鹅脱氧胆酸
胆酸
甘氨胆酸
甘氨鹅脱氧胆酸
石胆酸
脱氧胆酸
甘氨石胆酸
甘氨脱氧胆酸
啮齿动物(大鼠)
Rodent (rats)
α-鼠胆酸
β-鼠胆酸
胆酸
牛磺α-鼠胆酸
牛磺β-鼠胆酸
牛磺胆酸
ω-鼠胆酸
熊脱氧胆酸
石胆酸
牛磺ω-鼠胆酸
牛磺熊脱氧胆酸
牛磺石胆酸

Pig
猪胆酸 甘氨猪胆酸
牛磺猪胆酸
猪脱氧胆酸 甘氨猪脱氧胆酸
牛磺猪脱氧胆酸

2.2 胆汁酸的作用

胆汁酸是胆汁的主要成分,其在脂肪消化过程中发挥关键的乳化和吸收促进作用。胆汁酸具有的两性分子结构,能够将膳食脂肪乳化为微小脂滴,从而显著增加脂肪酶作用的表面积,提高脂溶性维生素及脂质的吸收效率,维持体内脂质稳态[27]。其次,胆汁酸是胆固醇在体内最主要的代谢产物,其合成不仅促进胆固醇的消耗,还通过负反馈调节肝脏胆固醇的合成和摄取,从而维持体内胆固醇稳态[28]。此外,研究发现,胆汁酸还可作为内源性信号分子,通过激活FXR、TGR5等胆汁酸受体,调控机体自身的胆汁酸代谢、脂质和葡萄糖代谢、能量代谢与炎症反应[29-31]。同时,胆汁酸可通过调控肠道菌群的组成及代谢活动,间接影响宿主免疫状态及整体代谢健康[32]

2.3 胆汁酸合成途径

胆汁酸的生物合成主要通过2条途径进行,即经典合成途径(CYP7A1通路)和替代合成途径[细胞色素P450家族27亚家族A成员1(cytochrome P450 family 27 subfamily A member 1, CYP27A1)通路][33]。胆汁酸合成的主要途径为经典通路,又被称为中性通路,由CYP7A1催化起始反应,在肝脏内将胆固醇7α-羟基化,继而通过一系列酶促反应最终生成CA和CDCA等初级胆汁酸[34]。该通路约占总胆汁酸合成量的75%[35]。其合成速率受肝细胞核因子4α(hepatocyte nuclear factor 4 alpha, HNF4α)、肝受体同源物-1(liver receptor homolog-1, LRH-1)、小异二聚体伴侣(small heterodimer partner, SHP)、FXR等多种核受体及转录因子的负反馈调控[36]。LRH-1是胆汁酸合成中经典途径的关键调控因子之一,主要通过激活CYP7A基因的转录,促进胆固醇向初级胆汁酸的转化[37]。HNF4α是胆汁酸合成经典通路中的核心转录因子之一,直接调控CYP7A1和细胞色素P450第8家族B亚家族1型多肽(cytochrome P450 family 8 subfamily B polypeptide 1, CYP8B1)等关键酶的表达,从而促进初级胆汁酸的合成[38]。此外,HNF4α还能与LRH-1协同作用,并受FXR诱导的SHP抑制,构成胆汁酸合成的负反馈调控网络,维持肝脏胆固醇-胆汁酸稳态[39]
替代通路(又称酸性通路)主要由CYP27A1在外周组织(如巨噬细胞)中催化起始反应,并在肝脏内经历一系列羟化与侧链修饰过程,最终生成CDCA等初级胆汁酸[40]。该通路在整体胆汁酸合成中所占比例相对较小,但在某些病理或特殊生理状态(如经典通路受损、胆固醇过量沉积)下可能得到补偿性增强[41]。研究发现,替代通路与巨噬细胞胆固醇稳态密切相关,并在主动清除多余胆固醇方面具有潜在的保护意义[42]

2.3.1 胆汁酸的肠肝循环

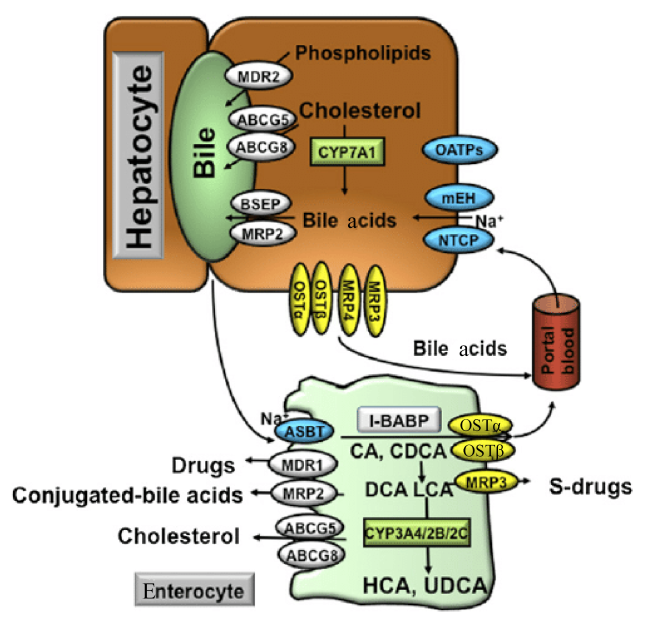
胆汁酸的肠肝循环是胆汁酸在肝脏和肠道之间反复循环和利用的过程(图2)。具体而言,肝脏合成的初级胆汁酸与牛磺酸或甘氨酸结合形成共轭胆汁酸后,胆汁酸通过BSEP以及多药耐药相关蛋白2(multidrug resistance-associated protein 2, MRP2)等转运蛋白,由肝细胞输出至胆汁管[43]。此后,它们会储存在胆囊中[44]。进食后,胆汁被释放进入十二指肠,帮助脂肪和脂溶性维生素的消化和吸收。到达回肠末端的小肠胆汁酸中,约95%依靠分布在肠上皮细胞顶膜的顶端钠依赖性胆汁酸转运蛋白(apical sodium dependent bile acid transporter, ASBT)进入细胞。进入细胞后,胆汁酸首先与回肠胆汁酸结合蛋白(ileal bile acid-binding protein, I-BABP)结合以维持细胞内稳定,防止游离胆汁酸对细胞膜产生毒性作用。随后,结合态胆汁酸经由位于基底侧膜的有机溶质转运蛋白α/β(organic solute transporter α/β, OSTα/β)及多药耐药相关蛋白3(multidrug resistance-associated protein 3,MRP3)等转运系统排出,进入门静脉循环[45]。回到肝脏的胆汁酸主要依赖于肝细胞基底膜上的钠离子-牛磺胆酸共转运蛋白(Na+-taurocholate cotransporting polypeptide, NTCP)等特异性转运体被肝细胞重新摄取,再次进入胆汁酸分泌通路,从而完成一次肠肝循环过程[43]。剩余约5%没有被回肠重吸收的胆汁酸则进入结肠随粪便排出体外。这种胆汁酸的肠肝循环过程高效地实现了胆汁酸的重复利用,避免了大量胆固醇的消耗,同时也稳定了肠道与肝脏之间的代谢平衡[46]。BSEP、MRP2、ASBT、OSTα/β和NTCP等胆汁酸转运蛋白在胆汁酸的肝肠循环过程中起到了关键的作用,任何一个环节出现障碍,都可能引起胆汁酸代谢异常,进而导致肝脏及全身代谢相关的疾病。
图2 胆汁酸的肠肝循环及胆汁酸转运蛋白的分布

Hepatocyte:肝细胞;Bile:胆汁;Phospholipids:磷脂;Cholesterol:胆固醇;Bile acids: 胆汁酸;Drugs:药物;Conjugated-bile acids:结合型胆汁酸;Enterocyte:肠上皮细胞;Portal blood:门静脉血;BSEP:胆汁盐输出泵 bile salt export pump;MRP2:多药耐药相关蛋白2 multidrug resistance-associated protein 2;MRP3:多药耐药相关蛋白3 multidrug resistance-associated protein 3;ABCG5/8:ATP结合转运蛋白G家族成员5/8 ATP-binding cassette subfamily G member 5/8;NTCP:钠离子-牛磺胆酸共转运蛋白 Na+-taurocholate cotransporting polypeptide;OSTα/OSTβ:有机溶质转运蛋白α/β organic solute transporter α/β;ASBT:顶端钠依赖性胆汁酸转运蛋白 apical sodium-dependent bile acid transporter;I-BABP:回肠胆汁酸结合蛋白ileal bile acid-binding protein;MDR:多药耐药蛋白 multidrug resistance protein;mEH:微粒体环氧化物水解酶 microsomal epoxide hydrolase;OATPs:有机阴离子转运多肽 organic anion transporting polypeptides;CYP7A1:细胞色素P450家族7亚家族A成员1 cytochrome P450 family 7 subfamily A member 1;CYP3A4/2B/2D:细胞色素P450酶系家族成员3A4/2B/2D cytochrome P450 family 3 subfamily A member 4/family 2 subfamily B/family 2 subfamily C;CA:胆酸 cholic acid;CDCA:鹅脱氧胆酸 chenodeoxycholic acid;DCA:脱氧胆酸 deoxycholic acid;LCA:石胆酸 lithocholic acid;HCA:猪胆酸 hyocholic acid;UDCA:熊脱氧胆酸 ursodeoxycholic acid;S-drugs:药物或外源性底物 substrate drugs or xenobiotic substrates。

Fig.2 Enterohepatic circulation of bile acids and distribution of bile acid transporters[28]

2.3.2 胆汁酸的微生物转化

当胆汁酸到达回肠及结肠,肠道中的细菌能够通过去共轭、7α-脱羟基化、表异构化等一系列酶促反应,将初级胆汁酸转化成多种次级胆汁酸(如DCA、LCA),从而显著改变原有的胆汁酸组成[47]。其中,某些梭菌属细菌特异性地表达7α-脱羟化酶,可将初级胆汁酸去除7α-羟基而转化为更具亲脂性甚至细胞毒性的次级胆汁酸,进而影响脂肪吸收、能量代谢以及肠黏膜稳态[48]。值得注意的是,这些微生物介导的胆汁酸修饰不仅在脂质代谢环节起到重要的调节作用,还会通过与FXR、TGR5等受体相互作用,改变炎症因子及免疫信号通路的激活程度,对宿主的肠道免疫和全身炎症反应产生深远影响[48]。一旦肠肝循环被基因突变、肠道病变等因素打断,势必导致胆汁酸种类与数量上的紊乱,从而对肠道屏障和免疫系统造成连锁冲击,增加炎症性肠病、自身免疫病以及代谢相关疾病的发生风险[49]

3 姜黄素对胆汁酸代谢的影响

3.1 姜黄素对肝脏胆汁酸合成的影响

He等[7]研究发现,对于高脂饮食引起的非酒精性脂肪性肝病(non-alcoholic fatty liver disease, NAFLD),姜黄素干预可显著降低血清胆汁酸浓度,同时减少肝脏内脂质沉积及炎症反应,表明其在调控胆汁酸合成及改善肝脏代谢异常方面具有潜在的保护作用。
FXR属于核受体超家族,在调控胆汁酸合成与脂质代谢稳态方面具有重要功能。研究表明,姜黄素可通过多条信号途径影响FXR的功能,包括直接与FXR配体结合位点或其他关键结构域相互作用,从而改变其与DNA或辅助因子的结合亲和力,也可经由上游信号分子(如SHP、HNF4α等)间接调控FXR的转录与稳定性[6]。当FXR的活化状态受到干扰时,往往会伴随着SHP转录水平的同步改变,通过抑制或促进SHP的表达,对胆汁酸合成酶(如CYP7A1)产生级联调节效应,进而影响胆汁酸池的大小并改善肝脏脂质代谢[50]。HNF4α作为驱动胆汁酸合成关键酶CYP7A1表达的主要转录因子,在调控胆汁酸合成与脂质代谢方面与FXR相互协同[51]。研究进一步揭示,HNF4α不仅可直接结合并激活CYP7A1等关键胆汁酸合成酶的启动子区域,还能通过与组蛋白修饰酶复合物或共激活因子的交互影响FXR的转录活性,从而在维持肝脏胆汁酸与脂质和糖代谢稳态中发挥关键作用[52]。此外, Pan等[53]的研究结果显示,在高脂饮食诱导的NAFLD模型中,HNF4α下调的同时伴随着FXR失活现象出现,提示这两大核受体轴的失衡在病理进程中具有协同放大的效应。以上研究结果表明,姜黄素可在不同程度上减弱或增强FXR对下游基因的调控作用,最终改变胆汁酸、脂质和糖代谢的动态平衡。
在一项针对NAFLD小鼠模型的研究中,姜黄素被证实可借由激活核因子E2相关因子2(nuclear factor erythroid 2-related factor 2, Nrf2)/FXR/肝X受体α (liver X receptor alpha,LXRα)信号通路,协同调节肝脏中胆汁酸的合成与代谢过程,LXRα拮抗剂干预试验进一步揭示,LXRα在姜黄素介导的胆汁酸代谢调节中具有关键调控作用[54]。由此可见,姜黄素在干预胆汁酸合成时,不仅能直接影响单个基因的转录或酶活性,还可通过改变FXR、LXRα、HNF4α等核受体的活化状态及SHP、HNF4α等辅助因子水平,对下游多条信号通路产生综合调控。
Yang等[6]的研究发现,在α-萘异硫氨酸诱导的胆汁淤积小鼠模型中,姜黄素通过FXR,显著下调CYP7A1和CYP8B1等关键胆汁酸合成酶的表达,从而抑制胆汁酸的过度合成,减轻肝脏内胆汁酸蓄积所致的肝脏损伤。该研究还发现,姜黄素可同步调节FXR下游SHP的基因表达,提示其主要通过FXR/SHP信号轴调控CYP7A1等胆汁酸合成酶的表达,而CYP7A1作为胆汁酸合成的限速酶,其表达水平降低会直接导致胆汁酸合成速率下降。此外,姜黄素能通过调控线粒体酶活性与氧化应激水平,间接影响另一种胆汁酸合成关键酶CYP27A1的转录和活性[55]。由此可见,姜黄素可通过调控与胆汁酸合成相关的FXRLXRαSHPHNF4αCYP7A1、CYP8B1和CYP27A1等多个关键基因的转录或活性,形成对肝脏胆汁酸合成与代谢网络的多重靶点干预[50]。这些基因共同构成了胆汁酸合成与重吸收的核心调控轴,不同程度地上调或下调均可能改变胆汁酸池的成分与大小,并影响下游的能量代谢。
姜黄素具有的抗炎特性在维持肝脏胆汁酸合成稳态方面具有重要意义。当肝细胞受到炎症刺激时,胆汁酸合成过程常会出现异常(如通过扰乱FXR/SHP通路或上调CYP7A1、CYP8B1等关键酶表达),导致胆汁酸池失衡。而姜黄素能够通过阻断促炎信号通路,减弱肝细胞及周围组织的炎症反应,从而显著降低多种炎症介质的释放[6]。在肝脏炎症水平得到控制的条件下,FXR的表达与活化更趋于稳定,这使其对CYP7A1等关键限速酶形成了更强的负向调控,进而抑制过量胆汁酸的合成和淤积[56]。因此,姜黄素的抗炎作用有助于维持肝细胞正常的转录调控与酶活性水平,从而避免或减轻炎症诱导的胆汁酸紊乱。由于胆汁酸紊乱往往会导致肝细胞损伤和代谢紊乱,姜黄素对炎症的干预不仅在分子层面上维持了胆汁酸合成与利用的动态平衡,也在整体上为肝脏功能与机体的代谢健康提供了双重保障。

3.2 姜黄素对肝脏胆汁酸转运的调节

研究表明,当BSEP、MRP2等胆汁酸转运蛋白功能正常或被姜黄素激活及上调时,肝细胞便可及时将过量胆汁酸输出至胆道或血液循环,表明姜黄素可通过调节胆汁酸转运蛋白的表达及活性,改善胆汁酸在肝细胞内外的转运效率[6,57]。研究证实,姜黄素可通过激活核受体FXR和孕烷X受体(pregnane X receptor,PXR)直接上调胆汁酸转运蛋白的表达:FXR激活可显著增强肝细胞中BSEPMRP2的转录活性,而PXR激活则通过诱导MRP2等蛋白促进胆汁酸跨膜转运,从而将胆汁酸排出肝细胞[58]。通过上述途径,姜黄素能够有效地增强BSEPMRP2的表达和活性,从而有利于胆汁酸的转运与分泌,改善整体胆汁酸代谢失衡。
NTCP是肝细胞基底膜上主要的胆汁酸摄取转运蛋白,负责将循环中的胆汁酸转运入肝细胞,维持胆汁酸的肝肠循环平衡[59]。在FXR活化状态下,SHP的基因表达被上调,随后抑制NTCP基因转录以降低胆汁酸[60]。因此,姜黄素可直接或间接通过调节FXR/SHP通路,降低NTCP的蛋白表达水平,从而减少胆汁酸的肝脏内积累,保护肝细胞免受胆汁酸过度积累的损伤。
姜黄素具有较强的抗氧化和抗炎特性,能够有效改善炎症微环境对胆汁酸转运蛋白的干扰,促进胆汁酸转运蛋白在肝细胞膜上的稳定表达和功能保持,从而维持胆汁酸代谢的动态平衡[6,57,61-63]。在高炎症状态下,促炎因子(如TNF-α、IL-1β)通过激活NF-κB和MAPK等信号通路,抑制BSEPMRP2以及钠离子依赖性胆汁酸转运蛋白NTCP的基因转录与膜定位,导致胆汁酸的外排和摄取受阻,最终引发胆汁酸在肝细胞外或血液中的异常蓄积[64-65]。而姜黄素可能通过抑制NF-κB和MAPK通路的活化,阻断炎症因子对NTCP、BSEP及MRP2的负向调控,恢复NTCP在肝细胞膜上的稳定表达以促进胆汁酸摄取,同时缓解BSEPMRP2的表达抑制以增强外排效率[66]。尽管姜黄素对NTCP/BSEP/MRP2的MAPK/NF-κB依赖性调控机制在动物模型中仍需系统验证,但现有研究已从基因表达、蛋白定位及功能恢复层面提供了理论依据。另外,姜黄素的抗氧化特性通过清除ROS、保护肝细胞膜完整性及线粒体功能,为转运蛋白的合成、修饰与功能维持提供结构性支持,从而促进胆汁酸转运蛋白的稳定表达,维持肝脏正常的胆汁酸排泄及摄取功能[6,67]

3.3 姜黄素对肠道菌群调控次级胆汁酸生成的影响

研究表明,姜黄素能够通过调控肠道菌群组成及多样性,使得次级胆汁酸的形成更趋于平衡,避免过量次级胆汁酸所带来的潜在毒性,进而间接调控肝肠循环中的胆汁酸水平[68]。次级胆汁酸(如DCA、LCA)具有“双刃剑”特性:当次级胆汁酸过量生成时,其细胞毒性可引发肠道黏膜损伤、代谢紊乱甚至肿瘤风险[69]。而适度水平的次级胆汁酸可通过激活TGR5,启动cAMP/PKA信号通路,通过诱导解偶联蛋白1(uncoupling protein 1, UCP1)表达促进棕色脂肪组织产热,同时在肠道巨噬细胞和树突状细胞中的TGR5激活后可抑制肠道免疫细胞(如巨噬细胞、树突状细胞)中NF-κB活性,减少TNF-α、IL-1β等促炎因子的释放,维持肠道屏障与免疫稳态[2,30]。因此,次级胆汁酸通过TGR5介导的代谢与免疫信号转导在肠肝轴稳态中发挥关键作用。还有研究表明,姜黄素能通过促进乳酸杆菌、双歧杆菌等有益菌增殖,抑制过度增殖的某些特定梭菌或其他可能导致胆汁酸异常代谢的菌群来重塑肠道菌群结构,减少毒性次级胆汁酸的过度生成,同时维持UDCA等具有抗炎作用的胆汁酸水平[70-71]。临床研究进一步证实,姜黄素干预可显著改善NAFLD患者的肠道菌群结构,尤其改变了与次级胆汁酸生成密切相关的菌属(如乳杆菌属、拟杆菌属、梭状芽孢杆菌属、瘤胃球菌属和阿克曼菌属等)丰度,从而调控机体的胆汁酸稳态[7]。以上研究结果表明,姜黄素通过调控肠道菌群结构与功能,平衡次级胆汁酸的生成,继而通过调控TGR5介导的代谢和免疫信号通路维持机体胆汁酸代谢的稳态。

3.4 姜黄素对胆汁酸重吸收的调节

研究表明,姜黄素可通过激活肠道中的FXR受体调控肠道胆汁酸重吸收过程中肠上皮细胞关键转运蛋白的表达,维持体内胆汁酸代谢的稳态[6]。ASBT是位于回肠顶端膜上的关键胆汁酸转运蛋白,主要负责将胆汁酸从肠道腔侧主动转运回血液循环,一旦其表达被抑制,胆汁酸自肠道腔的重吸收便会显著减少[72]。2018年,Nassan等[73]的研究表明,姜黄素干预可显著下调小肠上皮细胞中胆汁酸重吸收关键转运蛋白ASBT的mRNA表达水平,并同时伴随着小肠FXR mRNA表达水平的上调,提示姜黄素可能通过激活FXR信号通路,间接参与对ASBT基因表达的负向调控。尽管该研究未直接验证FXR与ASBT间的调控链条,但已有大量研究表明,FXR激活后可通过诱导其下游如小肠成纤维细胞生长因子15(fibroblast growth factor 15,FGF15)等因子或其他共调机制,抑制ASBT的基因表达,从而限制胆汁酸的过度重吸收,维持肠肝循环中胆汁酸的动态稳态[74]。这些结果表明,姜黄素能够干预与胆汁酸转运相关的基因转录或蛋白合成,从而调控肠腔胆汁酸的主动吸收过程。
此外,在炎症状态下,局部促炎因子(如TNF-α、IL-1β)可下调ASBT基因转录,导致胆汁酸重吸收受损[75]。姜黄素通过降低肠道炎症反应、保护肠屏障功能,有助于恢复ASBT的正常蛋白表达,从而促进胆汁酸的有效回收,维持肠肝循环的稳态[67,75]
综上所述,姜黄素能够通过多重机制调节胆汁酸代谢:一是通过激活包括FXR、LXRα等在内的胆汁酸核受体,诱导其下游相关转录因子或相关通路,继而影响胆汁酸的合成、转运和重吸收过程;二是姜黄素通过调控肠道菌群影响次级胆汁酸生成,减轻因过量次级胆汁酸生成带来的毒性,从而降低炎症反应及其对机体的损伤;三是姜黄素通过与TGR5等胆汁酸膜受体协同调节细胞内氧化应激水平与炎症因子的释放,发挥抗氧化和抗炎作用,促进胆汁酸转运蛋白的稳定表达和功能保持,在维持正常的胆汁酸代谢稳态方面发挥重要作用。

4 小结

姜黄素作为姜黄中提取的天然多酚化合物,可通过多靶点协同调控动物胆汁酸代谢。研究表明,姜黄素不仅可通过激活FXR、PXR、LXRα等胆汁酸受体调控CYP7A1、CYP8B1等胆汁酸合成关键酶以及NTCP、BSEP、MRP2、MRP3、ASBT和OSTα/OSTβ等胆汁酸转运蛋白的表达,还能通过抗炎与抗氧化途径减轻肝细胞损伤,并通过调节肠道菌群结构抑制次级胆汁酸的过量生成,从而在胆汁酸的合成、转运、微生物转化及肠肝循环等多个层面维持胆汁酸的代谢稳态,最终改善动物的肝脏与肠道功能,显示出其作为绿色饲料添加剂的巨大潜力。然而,目前对于姜黄素的研究仍存在一些局限。首先,姜黄素在动物体内生物利用度较低,其吸收与代谢途径尚不完全明确,限制了其实际应用;其次,姜黄素-菌群-胆汁酸轴之间的因果机制仍缺乏多组学整合分析与体内功能验证。未来研究应聚焦于利用仿生消化、纳米包埋等技术提高姜黄素稳定性和生物利用度,并结合转录组、代谢组与宏基因组等组学手段,深入解析姜黄素调控胆汁酸代谢的网络通路,为姜黄素在畜禽养殖中的精准应用提供理论依据与实践指导。
[1]
THOMAS C, GIOIELLO A, NORIEGA L, et al. TGR5-mediated bile acid sensing controls glucose homeostasis[J]. Cell Metabolism, 2009, 10(3):167-177.

DOI PMID

[2]
POLS T W H, NORIEGA L G, NOMURA M, et al. The bile acid membrane receptor TGR5 as an emerging target in metabolism and inflammation[J]. Journal of Hepatology, 2011, 54(6):1263-1272.

DOI PMID

[3]
STAYROOK K R, BRAMLETT K S, SAVKUR R S, et al. Regulation of carbohydrate metabolism by the farnesoid X receptor[J]. Endocrinology, 2005, 146(3):984-991.

DOI PMID

[4]
SCHOENFIELD L J, LACHIN J M, BAUM R A, et al. Chenodiol (chenodeoxycholic acid) for dissolution of gallstones:the national cooperative gallstone study:a controlled trial of efficacy and safety[J]. Annals of Internal Medicine, 1981, 95(3):257-282.

DOI

[5]
FANG S, SUH J M, REILLY S M, et al. Intestinal FXR agonism promotes adipose tissue browning and reduces obesity and insulin resistance[J]. Nature Medicine, 2015, 21(2):159-165.

DOI PMID

[6]
YANG F, TANG X W, DING L L, et al. Curcumin protects ANIT-induced cholestasis through signaling pathway of FXR-regulated bile acid and inflammation[J]. Scientific Reports, 2016, 6(1):33052.

DOI

[7]
HE Y M, CHEN X B, LI Y C, et al. Curcumin supplementation alleviates hepatic fat content associated with modulation of gut microbiota-dependent bile acid metabolism in patients with nonalcoholic simple fatty liver disease:a randomized controlled trial[J]. The American Journal of Clinical Nutrition, 2024, 120(1):66-79.

DOI

[8]
KARTHIKEYAN A, SENTHIL N, MIN T. Nanocurcumin:a promising candidate for therapeutic applications[J]. Frontiers in Pharmacology, 2020, 11:487.

DOI

[9]
PERAM M R, JALALPURE S S, PALKAR M B, et al. Stability studies of pure and mixture form of curcuminoids by reverse phase-HPLC method under various experimental stress conditions[J]. Food Science and Biotechnology, 2017, 26(3):591-602.

DOI PMID

[10]
ZAMANIAN M Y, ALSAAB H O, GOLMOHAMMADI M, et al. NF-κB pathway as a molecular target for curcumin in diabetes mellitus treatment:focusing on oxidative stress and inflammation[J]. Cell Biochemistry and Function, 2024, 42(4):e4030.

DOI

[11]
AK T, GÜLÇIN I. Antioxidant and radical scavenging properties of curcumin[J]. Chemico-Biological Interactions, 2008, 174(1):27-37.

DOI PMID

[12]
HERNÁNDEZ-GARCÍA P A, GRANADOS-RIVERA L D, ORZUNA-ORZUNA J F, et al. Meta-analysis of dietary curcumin supplementation in broiler chickens:growth performance,antioxidant status,intestinal morphology,and meat quality[J]. Antioxidants, 2025, 14(4):460.

DOI

[13]
MONIRUZZAMAN M, KIM D, KIM H, et al. Evaluation of dietary curcumin nanospheres as phytobiotics on growth performance,serum biochemistry,nutritional composition,meat quality,gastrointestinal health,and fecal condition of finishing pigs[J]. Frontiers in Veterinary Science, 2023, 10:1127309.

DOI

[14]
ZHANG L G, ZHANG J Q, YAN E F, et al. Dietary supplemented curcumin improves meat quality and antioxidant status of intrauterine growth retardation growing pigs via Nrf2 signal pathway[J]. Animals, 2020, 10(3):539.

DOI

[15]
NAWAB A, LI G H, AN L L, et al. Effect of curcumin supplementation on TLR4 mediated non-specific immune responses in liver of laying hens under high-temperature conditions[J]. Journal of Thermal Biology, 2019, 84:384-397.

DOI PMID

[16]
RUSSELL D W. The enzymes,regulation,and genetics of bile acid synthesis[J]. Annual Review of Biochemistry, 2003, 72:137-174.

DOI

[17]
CHIANG J Y L. Bile acids:regulation of synthesis[J]. Journal of Lipid Research, 2009, 50(10):1955-1966.

DOI

[18]
王馨怡, 姚军虎, 张霞, 等. 胆汁酸调控动物肠道健康的作用及机制研究进展[J]. 畜牧兽医学报, 2025, 56(3):1006-1018.

DOI

WANG X Y, YAO J H, ZHANG X, et al. Advances in effect and mechanism of bile acids regulating animal intestinal health[J]. Acta Veterinaria et Zootechnica Sinica, 2025, 56(3):1006-1018. (in Chinese)

DOI

[19]
WAHLSTRÖM A, BRUMBAUGH A, SJÖLAND W, et al. Production of deoxycholic acid by low-abundant microbial species is associated with impaired glucose metabolism[J]. Nature Communications, 2024, 15(1):4276.

DOI PMID

[20]
PI Y, WU Y J, ZHANG X Y, et al. Gut microbiota-derived ursodeoxycholic acid alleviates low birth weight-induced colonic inflammation by enhancing M2 macrophage polarization[J]. Microbiome, 2023, 11(1):19.

DOI PMID

[21]
SAITO Y, SAGAE T. Defecation status,intestinal microbiota,and habitual diet are associated with the fecal bile acid composition:a cross-sectional study in community-dwelling young participants[J]. European Journal of Nutrition, 2023, 62(5):2015-2026.

DOI

[22]
CHEN L M, VAN DEN MUNCKHOF I C L, SCHRAA K, et al. Genetic and microbial associations to plasma and fecal bile acids in obesity relate to plasma lipids and liver fat content[J]. Cell Reports, 2020, 33(1):108212.

DOI

[23]
SUN J, LI M Y, ZHOU H, et al. Importance of gut microbiota for bile acid composition and concentration in pigs[J]. Frontiers in Animal Science, 2022, 3:951840.

DOI

[24]
MIYAZAKI T, UEDA H, IKEGAMI T, et al. Upregulation of taurine biosynthesis and bile acid conjugation with taurine through FXR in a mouse model with human-like bile acid composition[J]. Metabolites, 2023, 13(7):824.

DOI

[25]
STRANIERO S, LASKAR A, SAVVA C, et al. Of mice and men:murine bile acids explain species differences in the regulation of bile acid and cholesterol metabolism[J]. Journal of Lipid Research, 2020, 61(4):480-491.

DOI

[26]
熊淑琪. 胆汁酸生理功能及其与肠道微生物互作研究进展[J]. 生物技术通报, 2023, 39(4):187-200.

DOI

XIONG S Q. Towards the understanding on the physiological functions of bile acids and interactions with gut microbiota[J]. Biotechnology Bulletin, 2023, 39(4):187-200. (in Chinese)

[27]
RASHIDINEJAD A, MARZE S, SINGH H. Lipid digestion and bioaccessibility of lipid-soluble compounds[M]//GRUNDY M M L,WILDE P J.Bioaccessibility and digestibility of lipids from food. Cham: Springer, 2021:171-203.

[28]
LI T G, CHIANG J Y L. Bile acid signaling in metabolic disease and drug therapy[J]. Pharmacological Reviews, 2014, 66(4):948-983.

DOI PMID

[29]
钟浩, 王俭, 冯凤琴, 等. 高脂膳食、肠道菌群和胆汁酸代谢与胰岛素抵抗之间关系的研究进展[J]. 中国食品学报, 2023, 23(3):347-364.

ZHONG H, WANG J, FENG F Q, et al. Research progress on the relationship between high-fat diet,intestinal flora,bile acid metabolism and insulin resistance[J]. Journal of Chinese Institute of Food Science and Technology, 2023, 23(3):347-364. (in Chinese)

[30]
WATANABE M, HOUTEN S M, MATAKI C, et al. Bile acids induce energy expenditure by promoting intracellular thyroid hormone activation[J]. Nature, 2006, 439(7075):484-489.

DOI

[31]
PRAWITT J, ABDELKARIM M, STROEVE J H M, et al. Farnesoid X receptor deficiency improves glucose homeostasis in mouse models of obesity[J]. Diabetes, 2011, 60(7):1861-1871.

DOI PMID

[32]
SU X M, GAO Y H, YANG R C. Gut microbiota derived bile acid metabolites maintain the homeostasis of gut and systemic immunity[J]. Frontiers in Immunology, 2023, 14:1127743.

DOI

[33]
CHIANG J Y L. Regulation of bile acid synthesis:pathways,nuclear receptors,and mechanisms[J]. Journal of Hepatology, 2004, 40(3):539-551.

DOI

[34]
CHIANG J Y L, FERRELL J M. Up to date on cholesterol 7 alpha-hydroxylase (CYP7A1) in bile acid synthesis[J]. Liver Research, 2020, 4(2):47-63.

DOI PMID

[35]
JIA W, WEI M L, RAJANI C, et al. Targeting the alternative bile acid synthetic pathway for metabolic diseases[J]. Protein & Cell, 2021, 12(5):411-425.

[36]
GOODWIN B, JONES S A, PRICE R R, et al. A regulatory cascade of the nuclear receptors FXR,SHP-1,and LRH-1 represses bile acid biosynthesis[J]. Molecular Cell, 2000, 6(3):517-526.

DOI

[37]
LEE Y K, SCHMIDT D R, CUMMINS C L, et al. Liver receptor homolog-1 regulates bile acid homeostasis but is not essential for feedback regulation of bile acid synthesis[J]. Molecular Endocrinology, 2008, 22(6):1345-1356.

DOI

[38]
INOUE Y, YU A M, YIM S H, et al. Regulation of bile acid biosynthesis by hepatocyte nuclear factor 4α[J]. Journal of Lipid Research, 2006, 47(1):215-227.

DOI

[39]
KIR S, ZHANG Y, GERARD R D, et al. Nuclear receptors HNF4α and LRH-1 cooperate in regulating cyp7a1 in vivo[J]. Journal of Biological Chemistry, 2012, 287(49):41334-41341.

DOI

[40]
PANDAK W M, KAKIYAMA G. The acidic pathway of bile acid synthesis:not just an alternative pathway[J]. Liver Research, 2019, 3(2):88-98.

DOI

[41]
ESPINOSA-ESCUDERO R, HERRAEZ E, SANCHEZ-MARTIN A, et al. Cholestasis associated to inborn errors in bile acid synthesis[J]. Exploration of Digestive Diseases, 2022, 1(3):137-153.

[42]
CHU E M, TAI D C, BEER J L, et al. Macrophage heterogeneity and cholesterol homeostasis:classically-activated macrophages are associated with reduced cholesterol accumulation following treatment with oxidized LDL[J]. Biochimica et Biophysica Acta(BBA):Molecular and Cell Biology of Lipids, 2013, 1831(2):378-386.

[43]
HALILBASIC E, CLAUDEL T, TRAUNER M. Bile acid transporters and regulatory nuclear receptors in the liver and beyond[J]. Journal of Hepatology, 2013, 58(1):155-168.

DOI PMID

[44]
MERTENS K L, KALSBEEK A, SOETERS M R, et al. Bile acid signaling pathways from the enterohepatic circulation to the central nervous system[J]. Frontiers in Neuroscience, 2017, 11:617.

DOI PMID

[45]
SOROKA C J, BALLATORI N, BOYER J L. Organic solute transporter,OSTα-OSTβ:its role in bile acid transport and cholestasis[J]. Seminars in Liver Disease, 2010, 30(2):178-185.

DOI

[46]
DAWSON P A, HAYWOOD J, CRADDOCK A L, et al. Targeted deletion of the ileal bile acid transporter eliminates enterohepatic cycling of bile acids in mice[J]. Journal of Biological Chemistry, 2003, 278(36):33920-33927.

DOI PMID

[47]
夏西茜, 丁珂珂, 张慧恒, 等. 肠道菌群介导胆汁酸影响炎症性肠病的研究进展[J]. 上海交通大学学报(医学版), 2024, 44(7):839-846.

XIA X X, DING K K, ZHANG H H, et al. Research progress of the role of intestinal microbiota-mediated bile acids in inflammatory bowel disease[J]. Journal of Shanghai Jiaotong University (Medical Science), 2024, 44(7):839-846. (in Chinese)

[48]
WISE J L, CUMMINGS B P. The 7-α-dehydroxylation pathway:an integral component of gut bacterial bile acid metabolism and potential therapeutic target[J]. Frontiers in Microbiology, 2022, 13:1093420.

DOI

[49]
FIORUCCI S, CARINO A, BALDONI M, et al. Bile acid signaling in inflammatory bowel diseases[J]. Digestive Diseases and Sciences, 2021, 66(3):674-693.

DOI PMID

[50]
LI Y, WANG L L, YI Q, et al. Regulation of bile acids and their receptor FXR in metabolic diseases[J]. Frontiers in Nutrition, 2024, 11:1447878.

DOI

[51]
XIANG D, YANG J Y, LIU L, et al. The regulation of tissue-specific farnesoid X receptor on genes and diseases involved in bile acid homeostasis[J]. Biomedicine & Pharmacotherapy, 2023, 168:115606.

DOI

[52]
CHIANG J Y L. Hepatocyte nuclear factor 4α regulation of bile acid and drug metabolism[J]. Expert Opinion on Drug Metabolism & Toxicology, 2009, 5(2):137-147.

[53]
PAN X L, ZHANG Y Q. Hepatocyte nuclear factor 4α in the pathogenesis of non-alcoholic fatty liver disease[J]. Chinese Medical Journal, 2022, 135(10):1172-1181.

DOI PMID

[54]
YAN C X, ZHANG Y R, ZHANG X X, et al. Curcumin regulates endogenous and exogenous metabolism via Nrf2-FXR-LXR pathway in NAFLD mice[J]. Biomedicine & Pharmacotherapy, 2018, 105:274-281.

DOI

[55]
SHEWEITA S A, ALMASMARI A A, EL-BANNA S G. Tramadol-induced hepato- and nephrotoxicity in rats:role of curcumin and gallic acid as antioxidants[J]. PLoS One, 2018, 13(8):e0202110.

DOI

[56]
FLEISHMAN J S, KUMAR S. Bile acid metabolism and signaling in health and disease:molecular mechanisms and therapeutic targets[J]. Signal Transduction and Targeted Therapy, 2024, 9(1):97.

DOI

[57]
王晓霞, 占海兵, 高青, 等. 姜黄素联合黄芩苷对乙醇诱导的大鼠胆汁淤积性肝损伤的保护作用研究[J]. 毒理学杂志, 2021, 35(2):140-145.

WANG X X, ZHAN H B, GAO Q, et al. Protective effect of curcumin combined with baicalin on ethanol-induced cholestatic liver injury in rats[J]. Journal of toxicology, 2021, 35(2):140-145. (in Chinese)

[58]
JONKER J W, LIDDLE C, DOWNES M. FXR and PXR:potential therapeutic targets in cholestasis[J]. The Journal of Steroid Biochemistry and Molecular Biology, 2012, 130(3/4/5):147-158.

DOI

[59]
APPELMAN M D, WETTENGEL J M, PROTZER U, et al. Molecular regulation of the hepatic bile acid uptake transporter and HBV entry receptor NTCP[J]. Biochimica et Biophysica Acta:Molecular and Cell Biology of Lipids, 2021, 1866(8):158960.

[60]
DENSON L A, STURM E, ECHEVARRIA W, et al. The orphan nuclear receptor,shp,mediates bile acid-induced inhibition of the rat bile acid transporter,ntcp[J]. Gastroenterology, 2001, 121(1):140-147.

DOI

[61]
CHEN D, WU C, QIU Y B, et al. Curcumin ameliorates hepatic chronic inflammation induced by bile duct obstruction in mice through the activation of heme oxygenase-1[J]. International Immunopharmacology, 2020, 78:106054.

DOI

[62]
BISWAS S, SHUKLA P K. A DFT study on the scavenging activity of curcumin toward methyl and ethyl radicals[J]. Molecular Simulation, 2023, 49(6):589-598.

DOI

[63]
SINGH P, IBRAHIM RIZVI S. Role of curcumin in modulating plasma PON1 arylesterase activity and susceptibility to LDL oxidation in oxidatively challenged wistar rats[J]. Letters in Drug Design & Discovery, 2015, 12(4):319-323.

[64]
CHENG X G, BUCKLEY D, KLAASSEN C D. Regulation of hepatic bile acid transporters Ntcp and Bsep expression[J]. Biochemical Pharmacology, 2007, 74(11):1665-1676.

DOI

[65]
BAGHDASARYAN A, CHIBA P, TRAUNER M. Clinical application of transcriptional activators of bile salt transporters[J]. Molecular Aspects of Medicine, 2014, 37(100):57-76.

DOI

[66]
KAHKHAIE K R, MIRHOSSEINI A, ALIABADI A, et al. Curcumin:a modulator of inflammatory signaling pathways in the immune system[J]. Inflammopharmacology, 2019, 27(5):885-900.

DOI

[67]
CAO S T, WANG C C, YAN J T, et al. Curcumin ameliorates oxidative stress-induced intestinal barrier injury and mitochondrial damage by promoting parkin dependent mitophagy through AMPK-TFEB signal pathway[J]. Free Radical Biology & Medicine, 2020, 147:8-22.

DOI

[68]
SERVIDA S, PIONTINI A, GORI F, et al. Curcumin and gut microbiota:a narrative overview with focus on glycemic control[J]. International Journal of Molecular Sciences, 2024, 25(14):7710.

DOI

[69]
AJOUZ H, MUKHERJI D, SHAMSEDDINE A. Secondary bile acids:an underrecognized cause of colon cancer[J]. World Journal of Surgical Oncology, 2014, 12(1):164.

DOI

[70]
HAN Z Q, YAO L, ZHONG Y, et al. Gut microbiota mediates the effects of curcumin on enhancing Ucp1-dependent thermogenesis and improving high-fat diet-induced obesity[J]. Food & Function, 2021, 12(14):6558-6575.

[71]
ZHU J W, HE L. The modulatory effects of curcumin on the gut microbiota:a potential strategy for disease treatment and health promotion[J]. Microorganisms, 2024, 12(4):642.

DOI

[72]
LIU S, LIU M, ZHANG M L, et al. Transcription factor Klf9 controls bile acid reabsorption and enterohepatic circulation in mice via promoting intestinal Asbt expression[J]. Acta Pharmacologica Sinica, 2022, 43(9):2362-2372.

DOI

[73]
NASSAN M, ISMAIL T, SOLIMAN M, et al. Ameliorative effect of curcumin and vitamin B6 against lithocholic acid-induced cholestasis and liver injury in mice[J]. Brazilian Journal of Veterinary Pathology, 2018, 11(2):50-63.

DOI

[74]
KATAFUCHI T, MAKISHIMA M. Molecular basis of bile Acid-FXR-FGF15/19 signaling axis[J]. International Journal of Molecular Sciences, 2022, 23(11):6046.

DOI

[75]
CHEN F, MA L, SARTOR R B, et al. Inflammatory-mediated repression of the rat ileal sodium-dependent bile acid transporter by c-fos nuclear translocation[J]. Gastroenterology, 2002, 123(6):2005-2016.

PMID

文章导航

/