综述

瘤胃微生物降解秸秆纤维素和木质素的机制及调控策略

  • 苏日嘎拉吐 ,
  • 高源 ,
  • 云伏雨 ,
  • 薛树媛 , *
展开
  • 内蒙古自治区农牧业科学院, 呼和浩特 010031
*薛树媛,研究员,硕士生导师,E-mail:

苏日嘎拉吐(1998—),男,蒙古族,内蒙古扎鲁特旗人,硕士研究生,动物营养与饲料科学专业。E-mail:

收稿日期: 2025-09-05

  网络出版日期: 2026-03-16

基金资助

国家玉米产业技术体系兴安盟综合试验站(CARS-02-55)

内蒙古自治区科技计划 —— 秸秆膨化发酵蛋白饲料加工及其调控羊肉品质关键技术研究与应用(2023YFHH0101)

玉米秸秆生物发酵饲料研发及其提高羊肉品质关键技术研究与示范(2023YFDZ0069)

Mechanism and Regulation Strategy of Rumen Microorganisms Degrading Straw Cellulose and Lignin

  • Surigalatu ,
  • GAO Yuan ,
  • YUN Fuyu ,
  • XUE Shuyuan , *
Expand
  • Inner Mongolia Academy of Agricultural & Animal Husbandry Sciences, Hohhot 010031, China
*professor, E-mail:

Received date: 2025-09-05

  Online published: 2026-03-16

摘要

秸秆作为我国丰富的农业副产物,是反刍动物维持基础营养需求的关键营养来源之一。然而,秸秆细胞壁中纤维素和木质素通过半纤维素介导形成致密结构,严重阻碍了瘤胃微生物的有效接触与降解,导致动物消化利用率低下,成为制约秸秆资源高值化利用的关键瓶颈。当前,生物降解法因其低能耗、低污染及绿色可持续的特性展现出巨大应用潜力。反刍动物瘤胃内由细菌、真菌、原生动物等构成的复杂微生物群落,通过多种协同作用,能够有效解构顽固的纤维素结构、破坏木质素的包裹屏障,将其转化为可溶性糖为宿主提供主要能量。已有研究证实,通过益生菌、酶制剂和植物提取物等外源调控措施靶向优化瘤胃微生物群落的结构与功能,是强化其纤维素降解能力、缓解木质素抗降解抑制的有效途径。本文系统综述了秸秆中纤维素和木质素的结构特性及抗降解屏障,重点分析了瘤胃细菌、真菌及原生动物对纤维素的降解分子机制及其对木质素屏障的破坏作用,以及各类微生物间的协同互作关系,并总结了相关调控策略在提升秸秆纤维素降解效率、削弱木质素抗降解的作用机理,旨在为深入理解瘤胃微生物降解相关过程提供理论依据,同时为开发高效秸秆生物转化技术、推动秸秆资源高值化利用与畜牧业可持续发展提供参考。

本文引用格式

苏日嘎拉吐 , 高源 , 云伏雨 , 薛树媛 . 瘤胃微生物降解秸秆纤维素和木质素的机制及调控策略[J]. 动物营养学报, 2026 , 38(3) : 1704 -1717 . DOI: 10.12418/CJAN2026.138

Abstract

As a rich agricultural by-product in China, straw is one of the key nutritional sources for ruminants to maintain basic nutritional needs. However, cellulose and lignin in the cell wall of straw form a dense structure mediated by hemicellulose, seriously hinder the effective contact between rumen microorganisms and cellulose and degradation, resulting in low digestion and utilization rate of animals, which has become a key bottleneck restricting the high-value utilization of straw resources. At present, the biodegradation method shows great application potential due to its low energy consumption, low pollution and green sustainability. The rumen of ruminants is composed of complex microbial communities such as bacteria, fungi and protozoa, through a variety of synergistic effects, it can effectively deconstruct stubborn lignocellulose and convert it into soluble sugar to provide main energy for the host. Previous studies have confirmed that targeted optimization of the structure and function of rumen microbial communities through exogenous regulatory measures such as probiotics, enzymes and plant extracts is an effective way to enhance their lignocellulose degradation ability. In this paper, the structural characteristics of cellulose and lignin in straw and the anti-degradation barrier formed by lignin were systematically reviewed. The molecular mechanism and synergistic interaction of rumen bacteria, fungi and protozoa were analyzed, and the mechanism of related regulation strategies in improving the degradation efficiency of straw cellulose was summarized. The aim is to provide a theoretical basis for further understanding the specific molecular mechanism of rumen microbial degradation of lignocellulose, and to provide a reference for the development of efficient straw bioconversion technology, the promotion of high-value utilization of straw resources and the sustainable development of animal husbandry.

内蒙古自治区作为我国重要的农畜产品生产基地,反刍动物养殖规模持续扩大,对饲草资源的需求量与日俱增。据统计,2022年全区消耗秸秆类粗饲料达2 755.9万t[1],在反刍动物饲粮中占据重要地位,是其维持基础营养需求的关键营养来源之一。与苜蓿、羊草等优质粗饲料相比,秸秆的独特性在于纤维素和木质素含量较高,阿魏酸(ferulic acid,FA)介导的木质素-碳水化合物复合体(lignin-carbohydrate complex,LCCs)交联更紧密[2],并且秸秆细胞壁中紧密交联的纤维素(30%~45%)、半纤维素(20%~40%)和木质素(10%~25%)形成致密网状结构[3],秸秆中纤维素和木质素通过半纤维素交联形成抗降解复合体,瘤胃微生物通过差异化分工与协同作用,分别实现对纤维素的高效降解与木质素的屏障破除,共同推动秸秆资源的转化利用。其中,纤维素是由β-1,4-糖苷键连接葡萄糖长链形成的碳链聚合物,是反刍动物可利用的能量来源;木质素是由芥子醇、松柏醇、对香豆醇单体经自由基聚合形成的三维疏水芳香网络[4],这种结构不仅显著降低了饲料的适口性,更严重阻碍了瘤胃微生物与木质素、纤维素的有效接触,导致其消化利用率低下。加之秸秆本身粗蛋白质(CP)含量(2.4%~8.4%)及代谢能水平低[4],最终造成反刍动物普遍存在的营养缺陷问题。因此,通过采取合理的调控手段,加工农作物秸秆并将其转化为反刍动物的高品质饲料,不仅可以在一定程度上缓解反刍动物优质饲料不足的问题,还能实现秸秆资源的高附加值利用[5],从而减少开支并提高经济回报。
当前,关于提升秸秆纤维素和木质素利用效率的主要方法有物理法、化学法和生物法[6]。其中,生物降解法因其低能耗、低污染、操作便捷以及绿色可持续的特性,展现出巨大的应用前景。反刍动物瘤胃本身就是一个极其高效的天然生物降解系统。在瘤胃这个“厌氧发酵罐”中(pH 5.5~6.9,温度38~41 ℃),由细菌、真菌、原生动物和古细菌组成的复杂瘤胃微生物群落协同作用[7],能够有效解构顽固的纤维素结构,破坏木质素的包裹屏障,并进一步转化为挥发性脂肪酸(volatile fatty acids,VFA),为宿主提供高达70%的每日能量需求[8]。多种微生物通过物理附着、酶系协作及代谢互养等方式,在协同降解纤维素和木质素并产生VFA的过程中维持着精准的动态平衡[9]。此微生物协同降解的核心逻辑与调控思路,不仅适用于秸秆,对苜蓿、羊草等其他粗饲料纤维素和木质素的降解同样具有科学适用性。
尽管瘤胃微生物降解纤维素的潜力巨大,但当前对其机制的系统性研究相对较少,特别是不同类群微生物(细菌、真菌、原生动物)的具体作用机制、协同关系及关键影响因素研究较为分散;同时,关于如何有效利用益生菌、酶制剂和植物提取物等策略调控微生物活性以提升纤维素降解能力和缓解木质素抗降解有效途径的系统总结亦相对缺乏。因此,本研究通过系统梳理国内外相关研究进展,重点探讨瘤胃中细菌、真菌及原生动物降解纤维素的分子机制及其对木质素屏障的破坏作用,以及各类微生物间的协同互作关系,并总结益生菌、酶制剂及植物提取物等调控策略在增强秸秆纤维素降解效率、削弱木质素抗降解的作用机理与应用效果,以期为深入理解瘤胃微生物降解过程、开发高效秸秆生物转化技术提供坚实的理论基础,进而推动秸秆资源的高值化利用与畜牧业的可持续发展。

1 秸秆纤维素和木质素的结构特性及影响因素

1.1 秸秆纤维素和木质素的结构特性及抗降解屏障

纤维素和木质素是植物细胞壁的核心组分[10],二者为独立有机化合物,共同存在于秸秆中并通过半纤维素形成关联结构。其含量因植物种类、组织部位及成熟度而异,典型占比范围为纤维素30%~45%,木质素10%~25%,辅以20%~40%的半纤维素及少量果胶与矿物质[11]。纤维素作为结构骨架,由β-1,4-糖苷键连接的葡萄糖长链构成[12],通过密集的分子内/间氢键形成高结晶微纤丝,赋予细胞壁刚性;半纤维素则是由木聚糖等杂聚糖组成的支链多糖[13],包裹纤维素微纤丝并通过共价键桥接木质素,形成致密的纤维素-半纤维素-木质素复合体(cellulose-hemicellulose-lignin complex,CHLC),其无定形特性虽利于部分水解,但整体增强了基质的机械强度;木质素作为疏水性“分子装甲”,由芥子醇(S)、松柏醇(G)、对香豆醇(H)单体经自由基聚合形成三维疏水芳香网络,最终沉积于纤维素-半纤维素基质的内、外表面及孔隙中,形成包覆性屏障[14]
秸秆的抗降解特性主要源于纤维素和木质素形成的双重屏障。其一是木质素通过物理包埋作用形成空间位阻,其疏水性芳香网络紧密包覆纤维素微纤丝,直接阻碍微生物及酶系的物理接近;更为关键的是FA介导的化学交联强化了抗性,其以酯键锚定于半纤维素(木聚糖的阿拉伯糖单元)[15],通过二聚化形成刚性二阿魏酸(diferulic acid,DFA)交联阿拉伯聚糖链[16],同时单体或二聚体嵌入木质素网络,显著提升LCCs的共价键密度[16]。木质素因非碳链结构,经化学或生物处理后无法被反刍动物利用,且仅有真菌和少量细菌能对其进行降解,原生动物无木质素降解功能,这种协同作用能降低细胞壁孔隙率,抑制瘤胃微生物对酚酸的降解率,并阻碍微生物酶与碳水化合物底物的有效接触,成为制约秸秆饲料化应用的本质瓶颈[17]

1.2 瘤胃微生物降解秸秆纤维素和木质素的影响因素

瘤胃微生物降解秸秆纤维素和木质素的效率受到多种因素的共同影响,这些因素可归纳为物理、化学和生物三大类(表1)[18]。物理因素主要包括温度、湿度、孵育时间和底物粒径,其中温度直接影响微生物的生长和酶的活性,不同微生物类群有其适宜温度范围;湿度对微生物生长至关重要,适宜相对湿度通常为40%~70%[19];孵育时间需合理控制,过短会导致预处理不充分,过长则可能引起多糖损失;底物粒径的减小有助于增加比表面积,促进微生物和酶的接触,但过小会影响通气性。化学因素中,pH显著影响微生物的生长和酶的活性,多数白腐真菌偏好弱酸性环境;纤维素的结晶度、木质素的包裹作用是影响酶解效率的关键原因,木质素会非生产性吸附纤维素酶,形成物理屏障[20]。生物因素主要涉及多糖损失和培养条件,微生物在预处理过程中可能消耗部分纤维素和半纤维素作为碳源,导致总糖含量减少,因此筛选选择性突破纤维素、木质素屏障的微生物尤为重要;此外,单一菌株难以全面降解复杂底物,共培养策略通过微生物间的协同作用可显著提高酶的活性和预处理效率,微生物对环境的适应性也是成功建立稳定降解体系的关键。综上所述,这些因素共同调控瘤胃微生物对秸秆纤维素的降解及破坏木质素包裹的协同降解过程,理解其作用机制有助于优化降解条件并提高秸秆资源的利用效率。
表1 瘤胃微生物降解秸秆纤维素和木质素的影响因素

Table 1 Influencing factors of rumen microorganisms degrading straw cellulose and lignin

影响因素
Influencing
factors
具体因素
Specific
factors
关键细节/影响描述
Key details/impact description
参考文献
References
物理
Physics
温度 不同微生物有其适宜生长温度(嗜冷菌-15~10 ℃,
嗜温菌20~45 ℃,嗜热菌41~122 ℃)。温度影响微生物的
生长和酶的活性。多数研究集中在25~40 ℃的嗜温菌。白腐
真菌的子囊菌和担子菌最适温度也不同(39 ℃ vs. 25~30 ℃)
[21]
湿度 对微生物生长至关重要,适宜相对湿度通常在40%~
70%,但因底物和微生物种类而异。湿度过高导致厌氧,
过低则延缓微生物生长
[22-23]
孵育时间 生物预处理通常比其他物理化学方法需要更长
孵育时间(数周至数月)。孵育时间过短处理不充分,过长
会导致纤维素和木质素被微生物消耗而损失。需要
优化孵育时间以实现高效突破纤维素、木质素、半纤维素
复合体屏障并使糖损失最小化
[24]
底物粒径 减小底物粒径可以增加比表面积,有利于酶的作用和
真菌菌丝穿透。但粒径过小会减少颗粒间空隙,影响通气
[25]
化学
Chemistry
pH 培养基的pH显著影响微生物的生长和酶的活性。
pH通常在孵育几天后下降。大多数白腐真菌偏好弱酸性
环境(pH 4~5)。pH偏离最适范围会降低酶活性
(低pH抑制纤维素酶,高pH使酶失活)
[26]
结构复杂性 纤维素本身的结构复杂性(纤维素的结晶度、半纤维素和
木质素的包裹、木质素的复杂结构)是影响其酶
解效率的根本原因(生物质抗降解性)。木质素会非
生产性地吸附纤维素酶,形成物理屏障
[20,27]
生物
Biology
多糖损失 微生物在预处理过程中会消耗部分纤维素和半纤维素
作为碳源用于自身生长,导致可用于后续糖化的
总糖含量减少。这是生物预处理的一个主要缺点。选择性地
突破木质素屏障而非消耗纤维素的微生物是研究重点
[22,28]
培养条件 单一菌株难以产生所有必要的酶。共培养(细菌-细菌、
真菌-真菌、细菌-真菌)可以利用不同微生物的协同作用,
提高酶活性和预处理效率。微生物的适应性(对pH、温度、
氧气、底物等的适应范围)对于共培养体系的
成功建立和稳定运行至关重要
[29-31]

2 瘤胃微生物对秸秆纤维素和木质素的降解机制

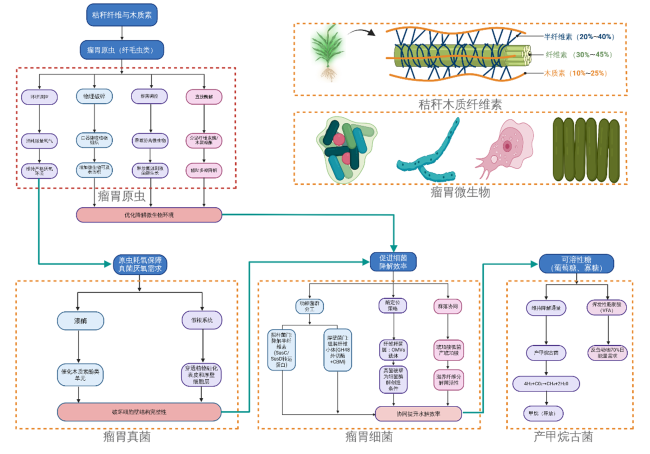
瘤胃作为反刍动物特有的高效生物反应器,其核心功能在于通过复杂微生物群落的协同作用,实现对秸秆等纤维素类生物质的高效降解[32]。这一过程高度依赖于瘤胃内特定的细菌、真菌和原生动物三大类群微生物的协同配合[33]。其中,仅真菌和少量细菌具备木质素降解能力。更重要的是,这些微生物通过构建复杂的协同代谢网络,不仅有效解构顽固的纤维素结构和木质素的包裹,更将降解产物(主要为可溶性糖)高效转化为VFA,为反刍动物提供了高达70%的每日能量需求(图1)[34]。因此,深入解析细菌、真菌及原生动物的具体降解机制及其内在协同关系,是阐明瘤胃高效转化纤维素-木质素复合体过程的关键基础。
图1 瘤胃微生物对秸秆纤维素和木质素的降解机制流程图

CBM:纤维素结合模块 cellulose-binding module;OMVs:外膜囊泡 outer membrane vesicles。

Fig.1 Flow chart of degradation mechanism of straw cellulose and lignin by rumen microorganisms

2.1 瘤胃细菌对秸秆纤维素和木质素的降解机制

在反刍动物瘤胃这个高效的生物反应器中,细菌群落以其绝对的数量优势(占比超过95%)和强大的酶解能力[35],主导着秸秆纤维素和木质素的降解过程。然而,细菌对木质素的直接降解能力有限,其主要作用在于高效解构与之交联的多糖骨架。这种高效的降解能力源于多种互补机制的协同作用来系统性地解构复杂的植物细胞壁结构。这一过程主要依赖于3个相互关联的降解策略[36]。其中,功能菌群的精准作用是高效降解的基础。如拟杆菌门成员普雷沃氏菌属凭借其基因组中丰富的多糖利用位点基因簇,编码SusC/SusD转运蛋白和一系列糖苷水解酶(glycoside hydrolases,GHs),专门负责识别和切割半纤维素的复杂支链结构,间接削弱木质素-半纤维素的交联作用[37]。而厚壁菌门(如瘤胃球菌属)则主要通过组装复杂的“纤维小体”多酶复合物来降解结晶纤维素。纤维小体由支架蛋白整合内切葡聚糖酶(如GH5、GH9)、外切葡聚糖酶(如GH48)以及纤维素结合模块(cellulose-binding module,CBM),形成强大的分子机器,协同攻击并水解纤维素微纤丝的顽固结晶区[38]。而特定酶定位策略则体现在克服木质素物理屏障的独特方式上。如纤维杆菌属分泌的纤维素酶缺乏传统的CBM,转而利用外膜囊泡(outer membrane vesicles,OMVs)作为载体,将酶蛋白精准运输并富集于纤维表面。这些囊泡通过表面蛋白在纤维素上形成局部的酶复合物聚集区,直接嵌入微纤丝间隙,实现高效的接触式水解[39-40]。这种“囊泡运输-表面定位”机制,有效规避了木质素物理包埋造成的空间位阻问题,显著提升了酶与底物的接触效率。
除此之外,细菌间群落协同则确保降解过程的整体高效与稳定。例如,琥珀酸弧菌属发酵产生的琥珀酸等有机酸,为邻近的纤维分解菌(如瘤胃球菌、纤维杆菌)提供了关键的碳源和能量[41],滋养其生长与活性。这种群落内部的代谢互养关系,优化了资源利用,共同推动纤维素的持续降解。综上所述,瘤胃细菌通过功能菌作用、酶定位策略以及群落协同,形成了一套多层次、高度协同的降解体系。这不仅突破了秸秆中CHLC固有的抗降解屏障,将顽固的纤维素高效转化为可溶性糖,并最终生成反刍动物主要的能量来源——VFA,更是整个瘤胃消化生理功能得以实现的核心基础。

2.2 瘤胃真菌对秸秆纤维素和木质素的降解机制

瘤胃厌氧真菌(如新囊菌门)是反刍动物瘤胃微生物区系的核心功能组分,在植物细胞壁降解过程中发挥着不可替代的生态功能[42]。其降解优势源于物理穿透与生物酶解的协同效应,其中木质素降解高度依赖漆酶等氧化还原酶系统,这一特性使其在突破木质素-纤维素的降解效率上显著优于其他瘤胃微生物[43]
厌氧真菌通过发育高度分化的假根系统实现对植物组织结构的高效突破[44]。游动孢子借助趋化性识别并附着于植物纤维表面后,会迅速分化形成具有强侵袭性的假根网络[45],且部分假根还能发育出类似附着胞的结构,通过穿刺钉穿透细胞壁并向相邻细胞延伸。这一独特形态学特征让真菌能够穿透高度木质化的厚壁组织,有效克服硅化表皮等物理屏障,为漆酶等分泌酶搭建直接作用界面,显著提升底物生物可及性[46]。研究显示,真菌孢子在发酵48 h内达到附着高峰,此时假根系统可深入植物组织,漆酶基因表达量也同步达到峰值,形成形态发育与酶系表达的协同[47]
尽管严格厌氧环境限制了木质素的完全矿化,但厌氧真菌通过分泌多种氧化还原酶,实现了对LCCs的精准解构[48]。其中,漆酶作为核心功能酶,通过催化木质素酚类单元的氧化反应打破聚合物网络[49];木质素过氧化物酶(LiP)和锰过氧化物酶(MnP)则协同作用于非酚型结构,形成全方位降解体系[50]
物理穿透与酶解作用的有机结合,形成了“物理穿透-氧化解构-酶解降解”的三级降解策略[46]。第1步,假根系统先破坏木质素物理包裹屏障,暴露内部碳水化合物基质[51];第2步,漆酶主导的氧化系统特异性解构木质素网络,削弱LCCs的化学稳定性[52];第3步,水解酶系统精准降解暴露的纤维素,完成能量转化。研究证实,新美鞭菌(Neocallimastix patriciarum)和根囊鞭菌(Orpinomyces sp.)等代表性菌株在秸秆降解中表现出卓越的漆酶活性,其漆酶活性与纤维素降解率呈显著正相关[53]。通过这一协同机制,厌氧真菌可将纤维素生物利用率提升,且漆酶介导的木质素改性能使后续微生物降解效率有所提升。综上所述,瘤胃厌氧真菌以“物理穿透-多酶协同”为核心的降解机制,既通过假根系统突破植物细胞壁的物理屏障,又借助漆酶主导的氧化还原酶系解构LCCs的化学抗性,成为瘤胃真菌破解纤维素的致密结构与木质素的包覆屏障的关键功能单元。

2.3 瘤胃原虫对秸秆纤维素和木质素的降解机制

瘤胃原虫(主要为纤毛虫类)是瘤胃微生物群落不可或缺的组成部分,其生物量可占瘤胃微生物总量的近50%,在纤维素和木质素降解过程中扮演着复杂而重要的多重角色[54]。但瘤胃原虫无木质素降解功能,对木质素的降解作用有限。木质素是一种高度复杂的芳香族聚合物,其降解依赖于特异性酶(如木质素过氧化物酶、锰过氧化物酶等),主要由丝状真菌(如白腐菌)和部分细菌(如放线菌)完成。瘤胃原虫的功能集中于吞噬植物颗粒、细菌及真菌,通过机械性破碎和发酵辅助作用,间接促进木质纤维基质的暴露,从而提升后续微生物(如纤维降解细菌和真菌)对木质素的酶解效率[55]。优势类群如内毛虫属(Entodinium)和前毛虫属(Epidinium)在反刍动物中普遍存在且相对丰度较高[36]。其核心降解机制体现在2个方面:一方面,部分纤毛虫[如多泡虫属(Polyplastron)、Entodinium]能够通过口器物理撕咬植物组织(包括秸秆颗粒),破坏木质素的物理包裹结构,增加纤维素的暴露面积和微生物可及性;另一方面,这些原虫能够分泌特定的GHs,如纤维素酶和木聚糖酶,直接参与纤维素和半纤维素的酶解过程,将大分子多糖初步降解为寡糖或可溶性糖类供自身或其他微生物利用[56]。穆兰等[57]研究报道,瘤胃原虫可以吞噬纤维素颗粒物,并将其转化为多糖,代谢蛋白质为其他瘤胃微生物提供氮源,也能直接以其他瘤胃微生物为食。在降解的早期阶段,原虫还具有独特的间接促进作用:它们通过消耗饲料颗粒表面或瘤胃液中微量的氧气,有效维持瘤胃核心区域的严格厌氧环境,这对于依赖厌氧条件的纤维分解细菌和真菌至关重要。
除此之外,原虫的摄食行为显著影响微生物群落结构与代谢,其大量吞噬瘤胃细菌和真菌(尤其是游离态或附着不紧密的个体),虽然看似减少了分解者数量,但该过程不仅为原虫自身提供氨基酸,还为瘤胃细菌合成菌体蛋白提供重要氮源,间接刺激了特定细菌群落的生长与活性[58]。这种“捕食-释放”机制被认为有助于调控细菌种群动态,并可能促进对某些难以降解纤维组分的转化。综上所述,瘤胃原虫虽无木质素直接降解能力,但通过机械破碎暴露底物、酶解多糖提供营养、调控厌氧环境稳定、优化微生物群落结构等环环相扣的作用,与细菌、真菌形成功能互补的降解网络,协同促进瘤胃内秸秆LCCs的降解效率和整体发酵过程的稳定性,是瘤胃复杂降解系统中不可或缺的关键功能单元。

2.4 其他瘤胃微生物对秸秆纤维素和木质素的协同降解作用

除瘤胃细菌、真菌及原虫以外,产甲烷古菌是瘤胃微生物群落不可或缺的成员[59]。虽然它们不直接分泌纤维素降解酶,但通过调控关键代谢产物,在纤维素降解过程中扮演着至关重要的间接角色[60],保障了整个降解网络的效率和稳定性。其核心作用机制在于高效移除瘤胃中的氢气(H2)。高效的纤维分解菌(如纤维杆菌属和瘤胃球菌属)在厌氧降解纤维素和半纤维素时,会产生大量H2作为代谢终产物。H2的积累会对其自身的氢化酶活性产生强烈的反馈抑制效应,形成关键的代谢瓶颈,阻碍纤维分解过程的持续进行。此时,甲烷短杆菌属(Methanobrevibacter)、甲烷球菌属(Methanococcus)等Methanogens作为主要的H2消耗者,利用H2、二氧化碳(CO2)或甲酸通过产甲烷(CH4)途径(4H2+CO2→CH4+2H2O)将其转化为CH4[61]。这一过程的核心价值在于显著降低了瘤胃液中的氢分压,从而解除了对纤维分解菌的代谢抑制,维持了纤维素和木质素降解途径的高效通量[8]。此外,部分产甲烷古菌与产氢菌共同附着于原生动物表面或与细菌形成聚集体,形成了紧密的物理共生关系,建立了高效的种间氢转移(interspecies hydrogen transfer,IHT)微生态位点,极大地加速了H2的消耗速率[62]。同时,瘤胃中还存在着相对丰度相对较低但功能特化的其他共生微生物(如某些互营细菌),它们通过与主要降解菌的协同互养作用,协助代谢纤维素和木质素降解过程中产生的特定中间产物(如短链有机酸、酚类片段等),进一步优化了碳源流向和能量分配效率。综上所述,以产甲烷古菌为代表的其他瘤胃微生物成员,通过精准调控瘤胃内H2水平、维持严格的厌氧环境稳态以及参与复杂的协同代谢网络,在系统层面为破坏木质素包裹的高效、连续降解提供了关键保障,是维系瘤胃复杂生物转化过程整体效能的重要组成部分。

3 瘤胃微生物降解秸秆纤维素和木质素的调控策略

深入探究瘤胃微生物降解秸秆纤维素分子机制与对木质素屏障的破坏作用及其协同互作关系[63],不仅能深化对瘤胃复杂生物转化系统的理解,更能为靶向调控策略的制定提供坚实的理论基础与实践指导。鉴于优化微生物降解效率是提升反刍动物秸秆利用率和实现资源高值化的核心环节,靶向调控瘤胃微生物群落的结构与功能以强化其纤维素和木质素分解能力已成为关键研究方向。目前,以绿色可持续为核心理念的调控措施备受关注,其研究热点主要集中在直接补充活性功能微生物(益生菌)、增强酶解效率(酶制剂)以及调节微生物活性与菌群平衡(植物提取物)等核心策略上。这些策略通过不同途径直接或间接参与并优化纤维素和木质素的降解进程。下文将系统评述这3类调控策略的作用机理与应用效果(图2)。
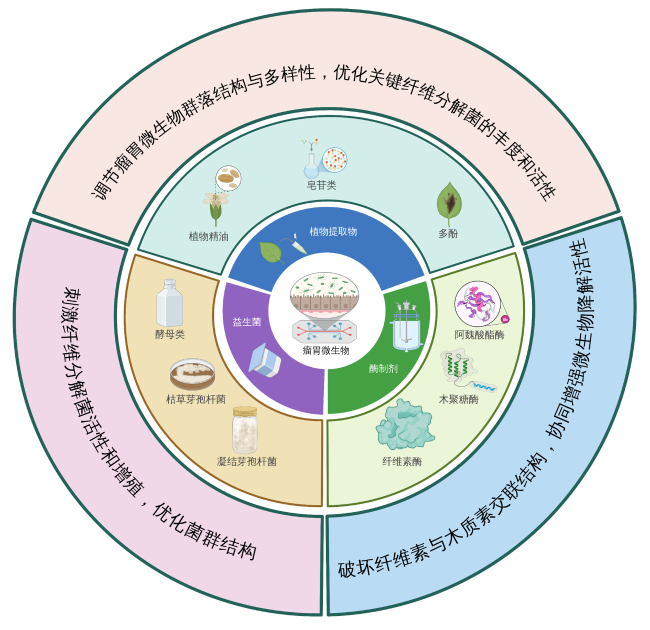
图2 瘤胃微生物降解秸秆纤维素和木质素的调控策略

Fig.2 Regulation strategy of rumen microorganisms degrading straw cellulose and lignin

3.1 益生菌

益生菌被定义为“当摄入足够数量时,能对宿主健康产生有益影响的活性微生物”[64]。在反刍动物营养领域,作为微生物饲料添加剂的益生菌,其核心功能在于通过调节瘤胃微生物区系的结构与活性,改善营养物质的消化效率,其中对秸秆纤维素和木质素降解具有明确靶向促进作用的益生菌[65],主要集中于酵母属(如酿酒酵母)、芽孢杆菌属(如枯草芽孢杆菌、凝结芽孢杆菌)以及酵母代谢衍生物(如酵母细胞壁提取的β-葡聚糖、甘露寡糖)[66-67]
在酵母属益生菌中,酿酒酵母的研究最为充分且降解效果明确。Soren等[68]研究发现,向羔羊饲粮中添加酿酒酵母或其与芽孢杆菌属的组合,虽未显著改变干物质(DM)摄入量及DM、有机物质(OM)和中性洗涤纤维(NDF)表观消化率,但可通过激活瘤胃内纤维分解菌的氮代谢通路,为纤维素降解菌提供充足氮源,使CP表观消化率分别提高18%和14%,间接为纤维素降解创造有利的营养条件;而Dehghan-Banadaky等[69]在精粗比为6∶4的羔羊高秸秆饲粮中添加酿酒酵母,观察到DM、CP、NDF和酸性洗涤纤维(ADF)表观消化率的显著提升,推测其机制是酿酒酵母可打破木质素对纤维素的物理包裹屏障,增加瘤胃微生物与纤维素的接触效率;López-Aguirre等[70]研究进一步证实,补充特定酿酒酵母菌株制剂,能有效改善多种营养物质表观消化率及饲料整体营养价值,体外试验显示其可使秸秆48 h NDF降解率提升15%~20%,同时上调瘤胃内瘤胃球菌属、纤维杆菌属等关键纤维分解菌的相对丰度。另有研究通过转录组学分析明确,酿酒酵母可通过调控纤维分解菌中碳水化合物活性酶的表达,增强对纤维素的降解能力,进而解构LCCs[65]
芽孢杆菌属及酵母代谢衍生物展现出促进秸秆纤维素降解的潜力[71]。其中,枯草芽孢杆菌、凝结芽孢杆菌可通过分泌类纤维素酶活性物质(如内切葡聚糖酶、木聚糖酶),协同瘤胃内源微生物酶系统增强对半纤维素的降解,间接削弱木质素-半纤维素的交联作用。芽孢杆菌的降解特性已在纤维素降解机制研究中得到验证,其分泌的复合酶系可有效切割纤维素的复杂结构,为后续降解过程扫清障碍[65]。常帅飞等[72]研究发现,在发酵液中添加1.0%的甘露寡糖时,会显著提高厚壁菌门和瘤胃球菌属相对丰度(厚壁菌门相对丰度提高20%~25%,瘤胃球菌属相对丰度提高18%~22%),而瘤胃球菌属是降解纤维素的关键菌群,其相对丰度增加可直接促进秸秆纤维降解率(提高8%~10%)。综上所述,益生菌主要通过3方面核心机制促进秸秆纤维素和木质素的降解:一是直接激活瘤胃球菌属、纤维杆菌属等纤维分解菌的活性与增殖,上调内切葡聚糖酶、木聚糖酶表达以强化多糖骨架降解;二是竞争性抑制产氨菌等非功能性微生物,减少氮源损耗,为纤维分解菌提供充足营养;三是通过消耗微量氧气、稳定瘤胃pH营造适宜厌氧环境,间接缓解木质素对酶解的抑制,最终协同提升降解效率。

3.2 酶制剂

酶制剂通过直接靶向解构木质素-半纤维素的交联屏障,有效提升纤维素的可降解性,是优化秸秆利用的关键外源调控策略。其核心机制在于提供高活性的外源酶系(主要为纤维素酶、木聚糖酶),协同瘤胃内源微生物酶系统,加速纤维素和木质素的水解。纤维素抗降解的关键结构之一是由FA介导的交联网络。FA通过酯键桥接半纤维素(如阿拉伯木聚糖)与木质素[65],并通过醚键或酯键锚定于木质素大分子上,形成坚固的LCCs屏障,严重阻碍纤维素酶和木聚糖酶接触其底物。而纤维素酶、木聚糖酶与阿魏酸酯酶(ferulic acid esterase,FAE)的组合能特异性水解FA酯键,破坏木质素与半纤维素间的化学交联,松动关联结构,显著提高纤维素和木质素对水解酶的可及性。
除此之外,大量研究证实在反刍动物饲粮中直接添加外源纤维分解酶制剂可部分降解纤维结构,增加瘤胃微生物的附着位点和纤维素可及性,加速瘤胃发酵进程,显著提升纤维类消化率[73]。例如,在肉牛高浓缩饲粮中添加酶制剂,可使ADF表观消化率提高达28%[74];使用外源纤维素酶处理肉牛饲粮(含30%黑麦草青贮和70%大麦),平均日增重(average daily gain,ADG)显著提高了10%[75]。提高的纤维消化率直接转化为更多可发酵底物,增加VFA产量和可消化能摄入量,进而驱动动物生产性能的实质性改善。在奶牛研究中,对20项研究41个处理的荟萃分析显示,添加纤维分解酶使日均干物质采食量(dry matter intake,DMI)平均增加(1.0±1.3) kg/d,产奶量平均提升(1.1±1.5) kg/d[76-77]。Lewis等[78]的研究进一步佐证了这一效应,使用纤维素酶和木聚糖酶混合物(1 mL/kg全混合日粮,DM基础)处理泌乳早期奶牛饲粮,产奶量增加了6.3 kg/d。此外,酶制剂降解产生的寡糖和可溶性糖还可能选择性刺激特定有益菌群的增殖,优化瘤胃微生物群落结构,间接促进纤维降解与缓解木质素抗降解抑制的持续性[79]。Zhou等[80]研究表明,在波尔山羊饲粮中添加含纤维素酶、木聚糖酶等的复合酶制剂(0.5 g/kg),显著提高了ADG,降低了氧化应激指标;还通过16S rDNA测序发现,该复合酶制剂显著提升了瘤胃内关键纤维降解菌群如瘤胃球菌科(Ruminococcaceae)、颤螺旋菌目(Oscillospirales)和发酵杆菌属(Acidophermentans)相对丰度,揭示了酶制剂调控微生物生态以强化降解纤维素和木质素能力的潜在途径。综上所述,酶制剂通过精准破坏纤维素和木质素的关键抗降解屏障(如FA交联),协同增强瘤胃微生物的降解活性,显著提高反刍动物对秸秆纤维消化率,改善饲料转化效率和动物生产性能,具有重要理论价值与广阔应用前景。

3.3 植物提取物

植物提取物来源广泛,是一种安全、绿色的天然产物,其生物活性物质主要包括多糖类、黄酮类、生物碱类、皂苷类、多酚类等[81]。这些成分具有抗炎、抑菌、抗氧化等多种生物学功能,能够显著影响反刍动物的营养物质采食量、消化率、瘤胃发酵模式以及微生物群落结构,进而调控瘤胃对秸秆纤维素和木质素的降解效率[82]。其中,酚类化合物作为植物次生代谢产物(plant secondary metabolites,PSM)的重要组成部分,在瘤胃环境中扮演着复杂而关键的角色[83]。部分瘤胃细菌能够代谢酚类物质,而特定的酚类化合物(如某些低分子质量酚酸)被发现可通过增加纤维分解菌相对丰度,间接充当纤维降解的“催化剂”。因此,植物提取物通过调节瘤胃发酵微环境和微生物活性,对提升蛋白质及植物细胞壁成分的降解能力具有积极意义。
评价植物提取物调控效果的关键指标之一是瘤胃DM和纤维类消化率,因为反刍动物饲粮中的大部分DM和纤维在此消化。研究表明,牛至精油的添加浓度与瘤胃内关键纤维降解菌群(如拟杆菌门中的普雷沃氏菌属和小类杆菌属)的相对丰度呈正相关[84]。这主要归因于牛至精油中含有的香芹酚、百里香酚等活性成分,其选择性抑菌作用优化了瘤胃菌群结构,使拟杆菌门成为更具优势的功能菌群。类似地,Yang等[85]研究发现,在奶牛饲粮中添加大蒜精油和杜松子精油,可提高瘤胃中DM、OM、CP消化率,同时增强纤维素和木质素的降解效率。宏基因组分析进一步揭示了植物提取物的菌群调节作用,如Mutiu等[86]报道,添加黄芪植物提取物导致瘤胃微生物组发生显著变化:变形菌门和纤维杆菌门缺失,拟杆菌门相对丰度下降12.0%~17.0%,而厚壁菌门和糖杆菌门相对丰度增加。曹琪娜等[87]研究也指出,植物提取物在反刍动物中应用具有调控瘤胃VFA组成、提高过瘤胃蛋白数量、优化瘤胃菌群结构等多重功能,间接促进纤维素和木质素的降解。皂苷类植物提取物对瘤胃微生物群落结构和多样性亦具有显著影响。Goel等[88]研究表明,特定植物来源的皂苷能够显著增加关键纤维分解菌纤维杆菌属的相对丰度,且不会对瘤胃整体菌群结构产生不利扰动。茅慧玲[89]在湖羊断奶羔羊饲粮中添加茶皂素的试验发现,其对瘤胃细菌多样性产生了有益影响。康劲翮等[90]研究则指出,向山羊瘤胃液中添加苦瓜皂苷能显著改变细菌群落的丰富度指数,并调控丁酸弧菌属与纤维降解相关菌属的相对丰度,最终促进了瘤胃中纤维素和木质素降解效率的提升。综上所述,植物提取物(如精油、皂苷、多酚等)主要通过调节瘤胃微生物群落结构与多样性,优化关键纤维分解菌的相对丰度和活性,改善瘤胃发酵环境,从而有效提高秸秆等饲料中纤维素和木质素的降解率。

4 小结与展望

反刍动物瘤胃作为一个精密的厌氧生物反应器,其高效降解纤维素的核心驱动力在于细菌、真菌与原生动物三大类群微生物的协同分工与互作网络。瘤胃细菌凭借其数量优势和强大的酶解系统,主导纤维素的降解,通过功能分化、独特的酶定位策略及群落代谢互养高效解构多糖骨架;瘤胃厌氧真菌则利用其物理穿透能力深入顽固结构区域,破坏木质素包裹完整性并分泌酶系松动木质素-半纤维素交联,显著提升纤维素可及性;瘤胃原虫通过物理破碎纤维、维持厌氧环境及调控细菌群落动态(如氮循环)间接促进降解效率与系统稳定。这种多层次的协同作用(物理破坏、靶向酶解、代谢互养、环境调控)共同构成了瘤胃提升纤维素降解效率、削弱木质素抗降解作用、实现高效生物转化的核心机制。因此,通过益生菌、酶制剂及植物提取物等外源调控策略靶向优化上述微生物群落的结构与功能活性,是强化其降解能力、提升秸秆利用效率的有效途径。
未来研究应重点关注以下方向:1)对细菌、真菌、原虫及古菌间具体的分子互作机制(如信号交流、代谢物交换、物理共生结构)及其在降解不同秸秆组分(如硅化组织、G/S/H型木质素)中的动态变化仍缺乏系统认识,未来需结合多组学(宏基因组、宏转录组、宏蛋白组、代谢组)、单细胞测序及高分辨率成像技术,在时间和空间尺度上绘制更精细的“纤维素降解微生物互作图谱”。2)现有调控措施(尤其益生菌和植物提取物)效果存在变异性。其核心制约因素在于调控机制的系统性解析不足,且关键功能性成分的分子鉴定与作用靶点尚未明确,导致难以实现纤维素和木质素降解的精准稳定调控。未来可用高效液相色谱(HPLC)和质谱(MS)等技术筛选和分析植物提取物、益生菌中的活性成分,研究其对瘤胃微生物的作用机制,包括它们如何影响微生物代谢、增强纤维素降解酶及漆酶等木质素降解酶的活性、调节瘤胃pH、抑制不利微生物的生长等。
[1]
赵靖丹, 冯志国, 包菡, 等. 内蒙古主要农作物秸秆饲料化节粮能力分析[J]. 粮油与饲料科技, 2024(7):122-125.

ZHAO J D, FENG Z G, BAO H, et al. Analysis of grain saving ability of main crop straw feed in inner Mongolia[J]. Grain Oil and Feed Technology, 2024(7):122-125. (in Chinese)

[2]
HATFIELD R, FUKUSHIMA S R. Can lignin be accurately measured?[J]. Crop Science, 2005, 45(3):832-839.

DOI

[3]
PEREIRA G N, CESCA K, VIEIRA CUBAS A L, et al. Use of non-thermal plasma in lignocellulosic materials:a smart alternative[J]. Trends in Food Science & Technology, 2021, 109:365-373.

[4]
WANG B, SUN H Z, WANG D M, et al. Constraints on the utilization of cereal straw in lactating dairy cows:a review from the perspective of systems biology[J]. Animal Nutrition, 2022, 9:240-248.

DOI

[5]
周明月, 吴庆宇, 曹阳. 纤维素降解菌及纤维素酶的研究进展及其在畜牧业中的应用[J]. 动物营养学报, 2025, 37(1):133-145.

DOI

ZHOU M Y, WU Q Y, CAO Y. Research progress on cellulose-degrading bacteria and cellulases and their application in animal husbandry[J]. Chinese Journal of Animal Nutrition, 2025, 37(1):133-145. (in Chinese)

DOI

[6]
韩俊伟, 张璐璐, 刘建新. 玉米秸秆饲料化预处理研究进展[J]. 饲料工业, 2025, 46(11):155-160.

HAN J W, ZHANG L L, LIU J X. Research progress on feed pretreatment of corn straw[J]. Feed Industry, 2025, 46(11):155-160. (in Chinese)

[7]
BASAK B, AHN Y, KUMAR R, et al. Lignocellulolytic microbiomes for augmenting lignocellulose degradation in anaerobic digestion[J]. Trends in Microbiology, 2022, 30(1):6-9.

DOI

[8]
BHUJBAL S K, GHOSH P, VIJAY V K, et al. Biotechnological potential of rumen microbiota for sustainable bioconversion of lignocellulosic waste to biofuels and value-added products[J]. Science of the Total Environment, 2022, 814:152773.

DOI

[9]
LI H, DAI M W, DAI S L, et al. Current status and environment impact of direct straw return in China’s cropland-a review[J]. Ecotoxicology and Environmental Safety, 2018, 159:293-300.

DOI

[10]
FLINT H J, BAYER E A. Plant cell wall breakdown by anaerobic microorganisms from the mammalian digestive tract[J]. Annals of the New York Academy of Sciences, 2008, 1125(1):280-288.

DOI

[11]
STECH M, HUST M, SCHULZE C, et al. Cell-free eukaryotic systems for the production,engineering,and modification of scFv antibody fragments[J]. Engineering in Life Sciences, 2014, 14(4):387-398.

DOI

[12]
DORA S, BHASKAR T, SINGH R, et al. Effective catalytic conversion of cellulose into high yields of methyl glucosides over sulfonated carbon based catalyst[J]. Bioresource Technology, 2012, 120:318-321.

DOI PMID

[13]
PALUMBO F, TREVISI P, CORREA F, et al. Increasing the level of hemicelluloses in the lactation diet affects the faecal microbiota of sows and their piglets without affecting their performances[J]. Animal Microbiome, 2024, 6(1):68.

DOI PMID

[14]
ZHANG C F, WANG F. Catalytic lignin depolymerization to aromatic chemicals[J]. Accounts of Chemical Research, 2020, 53(2):470-484.

DOI PMID

[15]
DU L Q, YU P Q, ROSSNAGEL B G, et al. Physicochemical characteristics,hydroxycinnamic acids (ferulic acid,p-coumaric acid) and their ratio,and in situ biodegradability:comparison of genotypic differences among six barley varieties[J]. Journal of Agricultural and Food Chemistry, 2009, 57(11):4777-4783.

DOI

[16]
RAFFRENATO E, FIEVISOHN R, COTANCH K W, et al. Effect of lignin linkages with other plant cell wall components on in vitro and in vivo neutral detergent fiber digestibility and rate of digestion of grass forages[J]. Journal of Dairy Science, 2017, 100(10):8119-8131.

DOI

[17]
CAO B B, WANG R, BO Y K, et al. In situ rumen digestibility of ester-linked ferulic and p-coumaric acids in crop stover or straws in comparison with alfalfa and Chinese wild ryegrass hays[J]. Animal Feed Science and Technology, 2016, 212:27-34.

DOI

[18]
SHARMA H K, XU C B, QIN W S. Biological pretreatment of lignocellulosic biomass for biofuels and bioproducts:an overview[J]. Waste and Biomass Valorization, 2019, 10(2):235-251.

DOI

[19]
AKRAM F, AQEEL A, SHOAIB M, et al. Multifarious revolutionary aspects of microbial keratinases:an efficient green technology for future generation with prospective applications[J]. Environmental Science and Pollution Research, 2022, 29(58):86913-86932.

DOI

[20]
HIMMEL M E, DING S Y, JOHNSON D K, et al. Biomass recalcitrance:engineering plants and enzymes for biofuels production[J]. Science, 2007, 315(5813):804-807.

DOI

[21]
SINDHU R, BINOD P, PANDEY A. Biological pretreatment of lignocellulosic biomass-an overview[J]. Bioresource Technology, 2015, 199:76-82.

DOI

[22]
MEEHNIAN H, JANA A K, JANA M M. Effect of particle size,moisture content,and supplements on selective pretreatment of cotton stalks by Daedalea flavida and enzymatic saccharification[J]. 3 Biotech, 2016, 6(2):235.

DOI

[23]
SAHA B C, KENNEDY G J, QURESHI N, et al. Biological pretreatment of corn stover with Phlebia brevispora NRRL-13108 for enhanced enzymatic hydrolysis and efficient ethanol production[J]. Biotechnology Progress, 2017, 33(2):365-374.

DOI

[24]
LIONG Y Y, HALIS R, LAI O M, et al. Conversion of lignocellulosic biomass from grass to bioethanol using materials pretreated with alkali and the white rot fungus,Phanerochaete chrysosporium[J]. BioResources, 2012, 7(4):5500-5513.

[25]
MAURYA D P, SINGLA A, NEGI S. An overview of key pretreatment processes for biological conversion of lignocellulosic biomass to bioethanol[J]. 3 Biotech, 2015, 5(5):597-609.

DOI PMID

[26]
MARRA L M, DE OLIVEIRA-LONGATTI S M, SOARES C R F S, et al. Initial pH of medium affects organic acids production but do not affect phosphate solubilization[J]. Brazilian Journal of Microbiology, 2015, 46(2):367-375.

DOI PMID

[27]
PU Y Q, HU F, HUANG F, et al. Assessing the molecular structure basis for biomass recalcitrance during dilute acid and hydrothermal pretreatments[J]. Biotechnology for Biofuels, 2013, 6(1):15.

DOI PMID

[28]
ISROI, MILLATI R, SYAMSIAH S, et al. Biological pretreatment of lignocelluloses with white-rot fungi and its applications:a review[J]. BioResources, 2011, 6(4):5224-5259.

DOI

[29]
BRENNER K, YOU L C, ARNOLD F H. Engineering microbial consortia:a new frontier in synthetic biology[J]. Trends in Biotechnology, 2008, 26(9):483-489.

DOI

[30]
MIKESKOVÁ H, NOVOTNÝ C, SVOBODOVÁ K. Interspecific interactions in mixed microbial cultures in a biodegradation perspective[J]. Applied Microbiology and Biotechnology, 2012, 95(4):861-870.

DOI PMID

[31]
MAKI M, LEUNG K T, QIN W S. The prospects of cellulase-producing bacteria for the bioconversion of lignocellulosic biomass[J]. International Journal of Biological Sciences, 2009, 5(5):500-516.

DOI PMID

[32]
DAI X, ZHU Y X, LUO Y F, et al. Metagenomic insights into the fibrolytic microbiome in yak rumen[J]. PLoS One, 2017, 7(7):e40430.

DOI

[33]
MORAÏS S, MIZRAHI I. The road not taken:the rumen microbiome,functional groups,and community states[J]. Trends in Microbiology, 2019, 27(6):538-549.

DOI

[34]
PU S S, WANG M, WANG J L, et al. Metagenomic analysis reveals a dynamic microbiome with diversified adaptive functions that respond to ovulation regulation in the mouse endometrium[J]. BMC Genomics, 2023, 24(1):615.

DOI PMID

[35]
KIM Y H, KIMURA A, SUGINO T, et al. Parturition and postpartum dietary change altered ruminal pH and the predicted functions of rumen bacterial communities but did not alter the bacterial composition in Holstein cows[J]. Frontiers in Veterinary Science, 2022, 9:948545.

DOI

[36]
HENDERSON G, COX F, GANESH S, et al. Rumen microbial community composition varies with diet and host,but a core microbiome is found across a wide geographical range[J]. Scientific Reports, 2015, 5(1):14567.

DOI

[37]
LAPÉBIE P, LOMBARD V, DRULA E, et al. Bacteroidetes use thousands of enzyme combinations to break down glycans[J]. Nature Communications, 2019, 10(1):2043.

DOI PMID

[38]
GHARECHAHI J, VAHIDI M F, SHARIFI G, et al. Lignocellulose degradation by rumen bacterial communities:new insights from metagenome analyses[J]. Environmental Research, 2023, 229:115925.

DOI

[39]
RAUT M P, COUTO N, KARUNAKARAN E, et al. Deciphering the unique cellulose degradation mechanism of the ruminal bacterium Fibrobacter succinogenes S85[J]. Scientific Reports, 2019, 9(1):16542.

DOI

[40]
ALAEI S R, KING A J, BANANI K, et al. Lipid a remodeling modulates outer membrane vesicle biogenesis by Porphyromonas gingivalis[J]. Journal of Bacteriology, 2025, 207(1):e0033624.

DOI

[41]
MIZRAHI I, JAMI E. A method to the madness:disentangling the individual forces that shape the rumen microbiome[J]. EMBO Reports, 2021, 22(2):e52269.

DOI

[42]
HAITJEMA C H, GILMORE S P, HENSKE J K, et al. A parts list for fungal cellulosomes revealed by comparative genomics[J]. Nature Microbiology, 2017, 2(8):17087.

DOI PMID

[43]
GRUNINGER R J, PUNIYA A K, CALLAGHAN T M, et al. Anaerobic fungi (phylum Neocallimastigomycota):advances in understanding their taxonomy,life cycle,ecology,role and biotechnological potential[J]. FEMS Microbiology Ecology, 2014, 90(1):1-17.

DOI

[44]
SOLOMON K V, HAITJEMA C H, HENSKE J K, et al. Early-branching gut fungi possess a large,comprehensive array of biomass-degrading enzymes[J]. Science, 2016, 351(6278):1192-1195.

DOI

[45]
XIE H D, ZENG F Q, GUO Y X, et al. Effect of tea seed oil on in vitro rumen fermentation,nutrient degradability,and microbial profile in water buffalo[J]. Microorganisms, 2023, 11(8):1981.

DOI

[46]
GUO Z P, DUQUESNE S, BOZONNET S, et al. Conferring cellulose-degrading ability to Yarrowia lipolytica to facilitate a consolidated bioprocessing approach[J]. Biotechnology for Biofuels, 2017, 10(1):132.

DOI

[47]
HARTINGER T, ZEBELI Q. The present role and new potentials of anaerobic fungi in ruminant nutrition[J]. Journal of Fungi, 2021, 7(3):200.

DOI

[48]
COUGER M B, YOUSSEF N H, STRUCHTEMEYER C G, et al. Transcriptomic analysis of lignocellulosic biomass degradation by the anaerobic fungal isolate Orpinomyces sp. strain C1A[J]. Biotechnology for Biofuels, 2015, 8(1):208.

DOI

[49]
ZHAO S T, DENG D T, WAN T Z, et al. Lignin bioconversion based on genome mining for ligninolytic genes in Erwinia billingiae QL-Z3[J]. Biotechnology for Biofuels and Bioproducts, 2024, 17(1):25.

DOI

[50]
HENSKE J K, GILMORE S P, KNOP D, et al. Transcriptomic characterization of Caecomyces churrovis:a novel,non-rhizoid-forming lignocellulolytic anaerobic fungus[J]. Biotechnology for Biofuels, 2017, 10(1):305.

DOI

[51]
MA J, ZHONG P, LI Y Q, et al. Hydrogenosome,pairing anaerobic fungi and H2-utilizing microorganisms based on metabolic ties to facilitate biomass utilization[J]. Journal of Fungi, 2022, 8(4):338.

DOI

[52]
NARISETTY V, COX R, BOMMAREDDY R, et al. Valorisation of xylose to renewable fuels and chemicals,an essential step in augmenting the commercial viability of lignocellulosic biorefineries[J]. Sustainable Energy & Fuels, 2021, 6(1):29-65.

[53]
LIAO B Y, FENG T Y, HOU S H, et al. Simulated microgravity confines and fragments the straw-based lignocellulose degrading microbial community[J]. Microbiology Spectrum, 2025, 13(6):e0246624.

DOI

[54]
NEWBOLD C J, DE LA FUENTE G, BELANCHE A, et al. The role of ciliate protozoa in the rumen[J]. Frontiers in Microbiology, 2015, 6:1313.

DOI PMID

[55]
WEI T, CHEN H F, WU D Y, et al. Response surface methodology for the mixed fungal fermentation of Codonopsis pilosula straw using Trichoderma reesei and Coprinus comatus[J]. PeerJ, 2023, 11:e15757.

DOI

[56]
GRUNINGER R J, RIBEIRO G O, CAMERON A, et al. Invited review:application of Meta-omics to understand the dynamic nature of the rumen microbiome and how it responds to diet in ruminants[J]. Animal, 2019, 13(9):1843-1854.

DOI

[57]
穆兰, 徐凤莲, 程占军, 等. 瘤胃微生物厌氧消化降解木质纤维素废弃物技术研究进展[J]. 能源环境保护, 2024, 38(5):78-91.

MU L, XU F L, CHENG Z J, et al. Research progress on anaerobic digestion and degradation of lignocellulosic waste by rumen microorganisms[J]. Energy Environmental Protection, 2024, 38(5):78-91. (in Chinese)

[58]
HUWS S A, CREEVEY C J, OYAMA L B, et al. Addressing global ruminant agricultural challenges through understanding the rumen microbiome:past,present,and future[J]. Frontiers in Microbiology, 2018, 9:2161.

DOI

[59]
THOMAS C M, DESMOND-LE QUÉMÉNER E, GRIBALDO S, et al. Factors shaping the abundance and diversity of the gut archaeome across the animal kingdom[J]. Nature Communications, 2022, 13(1):3358.

DOI PMID

[60]
高凤芹. 柳枝稷发酵产甲烷过程中纤维素降解机制及微生物多样性变化[D].博士学位论文. 北京: 中国农业大学, 2015.

GAO F Q. Cellulose hydrolysis mechanism and microbial diversity change during anaerobic digestion of switchgrass for methane[D].Ph.D.Thesis. Beijing: China Agricultural University, 2015. (in Chinese)

[61]
SOLOMON R, WEIN T, LEVY B, et al. Protozoa populations are ecosystem engineers that shape prokaryotic community structure and function of the rumen microbial ecosystem[J]. The ISME Journal, 2022, 16(4):1187-1197.

DOI

[62]
HENDERSON G, COX F, GANESH S, et al. Erratum:rumen microbial community composition varies with diet and host,but a core microbiome is found across a wide geographical range[J]. Scientific Reports, 2016, 6(1):19175.

DOI

[63]
郑娟善, 丁考仁青, 李新圃, 等. 瘤胃微生物在木质纤维素价值化利用的研究进展[J]. 草业学报, 2021, 30(9):182-192.

DOI

ZHENG J S, DING KAO R Q, LI X P, et al. Research progress on rumen microorganisms in the utilization of lignocellulose as an energy resource[J]. Acta Prataculturae Sinica, 2021, 30(9):182-192. (in Chinese)

[64]
李俊峰, 廖凯威, 李彪, 等. 益生菌在反刍动物中的应用[J]. 中国饲料, 2024(17):197-202.

LI J F, LIAO K W, LI B, et al. Application of probiotics in ruminants[J]. China Feed, 2024(17):197-202. (in Chinese)

[65]
YU P, MCKINNON J J, CHRISTENSEN D A. Hydroxycinnamic acids and ferulic acid esterase in relation to biodegradation of complex plant cell walls[J]. Canadian Journal of Animal Science, 2005, 85(3):255-267.

DOI

[66]
MEI J F, SHEN X B, GANG L P, et al. A novel lignin degradation bacteria-Bacillus amyloliquefaciens SL-7 used to degrade straw lignin efficiently[J]. Bioresource Technology, 2020, 310:123445.

DOI

[67]
QIN L, DONG S X, YU J, et al. Stress-driven dynamic regulation of multiple tolerance genes improves robustness and productive capacity of Saccharomyces cerevisiae in industrial lignocellulose fermentation[J]. Metabolic Engineering, 2020, 61:160-170.

DOI

[68]
SOREN N M, TRIPATHI M K, BHATT R S, et al. Effect of yeast supplementation on the growth performance of Malpura lambs[J]. Tropical Animal Health and Production, 2013, 45(2):547-554.

DOI PMID

[69]
DEHGHAN-BANADAKY M, EBRAHIMI M, MOTAMENY R, et al. Effects of live yeast supplementation on mid-lactation dairy cows performances,milk composition,rumen digestion and plasma metabolites during hot season[J]. Journal of Applied Animal Research, 2013, 41(2):137-142.

DOI

[70]
LÓPEZ-AGUIRRE D, HERNÁNDEZ-MELÉNDEZ J, VÁZQUEZ-ARMIJO J F, et al. Effect of guanidinoacetic acid and zilpaterol hydrochloride feed additions on lambs’ productive performance,carcass characteristics,and blood chemistry[J]. Animals, 2025, 15(12):1692.

DOI

[71]
SOLANKI M K, VERMA K K, DASTOGEER K M G, et al. Editorial:microbial resilience in plant nutrient management towards sustainable farming[J]. Frontiers in Microbiology, 2023, 14:1280811.

DOI

[72]
常帅飞, 郭芸芳, 程雨辰, 等. 甘露寡糖调控体外瘤胃发酵和菌群结构的作用研究[J]. 动物营养学报, 2024, 36(10):6588-6598.

DOI

CHANG S F, GUO Y F, CHENG Y C, et al. Study on roles of mannan oligosaccharides in regulating rumen fermentation and microbiota structure in vitro[J]. Chinese Journal of Animal Nutrition, 2024, 36(10):6588-6598. (in Chinese)

[73]
IANNACCONE F, ALBORINO V, DINI I, et al. In vitro application of exogenous fibrolytic enzymes from Trichoderma spp. to improve feed utilization by ruminants[J]. Agriculture, 2022, 12(5):573.

DOI

[74]
KRAUSE M, BEAUCHEMIN K A, RODE L M, et al. Fibrolytic enzyme treatment of barley grain and source of forage in high-grain diets fed to growing cattle[J]. Journal of Animal Science, 1998, 76(11):2912-2920.

PMID

[75]
MCALLISTER T A, OOSTING S J, POPP J D, et al. Effect of exogenous enzymes on digestibility of barley silage and growth performance of feedlot cattle[J]. Canadian Journal of Animal Science, 1999, 79(3):353-360.

DOI

[76]
KUNG L Jr, TREACHER R J, NAUMAN G A, et al. The effect of treating forages with fibrolytic enzymes on its nutritive value and lactation performance of dairy cows[J]. Journal of Dairy Science, 2000, 83(1):115-122.

PMID

[77]
BOWMAN G R. Digestion,ruminal pH,salivation,and feeding behavior of lactating dairy cows fed a diet supplemented with fibrolytic enzymes[D].Master’s Thesis. Lethbridge: The University of Lethbridge, 2001.

[78]
LEWIS G E, SANCHEZ W K, HUNT C W, et al. Effect of direct-fed fibrolytic enzymes on the lactational performance of dairy cows[J]. Journal of Dairy Science, 1999, 82(3):611-617.

PMID

[79]
SAKITA G Z, BOMPADRE T F V, DINESHKUMAR D, et al. Fibrolytic enzymes improving in vitro rumen degradability of tropical forages[J]. Journal of Animal Physiology and Animal Nutrition, 2020, 104(5):1267-1276.

DOI

[80]
ZHOU G C, LIANG X H, HE X M, et al. Compound enzyme preparation supplementation improves the production performance of goats by regulating rumen microbiota[J]. Applied Microbiology and Biotechnology, 2023, 107(23):7287-7299.

DOI

[81]
王雪杨, 林展, 李嘉琛, 等. 植物提取物与质粒携带的抗生素耐药基因水平转移关系的研究进展[J]. 中国畜牧兽医, 2025, 52(7):3479-3488.

DOI

WANG X Y, LIN Z, LI J C, et al. Progress on relationship between plant extracts and horizontal transfer of antibiotic resistance genes carried by plasmids[J]. China Animal Husbandry & Veterinary Medicine, 2025, 52(7):3479-3488. (in Chinese)

[82]
SALEM A Z M, RONQUILLO M, CAMACHO L M, et al. Beneficial effects of plant extracts in ruminant nutrition:a review[J]. Indian Journal of Animal Sciences, 2012, 82(10):1117-1121.

DOI

[83]
SALEM A Z M, ROBINSON P H, LÓPEZ S, et al. Sensitivity of sheep intestinal lactic acid bacteria to secondary compounds extracted from Acacia saligna leaves[J]. Animal Feed Science and Technology, 2010, 161(3/4):85-93.

DOI

[84]
LIN B, TAN Z L, XIAO G Y, et al. Evaluation of compositional and nutritional equivalence of genetically modified rice to conventional rice using in situ and in vitro techniques[J]. Journal of the Science of Food and Agriculture, 2009, 89(9):1490-1497.

DOI

[85]
YANG W Z, BENCHAAR C, AMETAJ B N, et al. Effects of garlic and juniper berry essential oils on ruminal fermentation and on the site and extent of digestion in lactating cows[J]. Journal of Dairy Science, 2007, 90(12):5671-5681.

PMID

[86]
MUTIU I N, AGNIHOTRAM B, MAZEWSKI C. Characterization of phenolic-rich plant extracts and their signaling effects in glioblastoma cells[J]. Current Developments in Nutrition, 2025, 9(S2):106387.

DOI

[87]
曹琪娜, 王晓渊, 哈斯额尔敦, 等. 植物提取物对反刍动物瘤胃发酵的影响研究进展[J]. 饲料研究, 2022, 45(11):120-123.

CAO Q N, WANG X Y, KHAS-ERDENE, et al. Research advances on effect of plant extracts on rumen fermentation in ruminants[J]. Feed Research, 2022, 45(11):120-123. (in Chinese)

[88]
GOEL G, MAKKAR H P S, BECKER K. Changes in microbial community structure,methanogenesis and rumen fermentation in response to saponin-rich fractions from different plant materials[J]. Journal of Applied Microbiology, 2008, 105(3):770-777.

DOI

[89]
茅慧玲. 植物源性物质对生长湖羊瘤胃发酵和肉品质的影响及其作用机理的研究[D].博士学位论文. 杭州: 浙江大学, 2010.

MAO H L. Effects of plants-based materials on growth performance,rumen fermentation and meat quality of growing Hu lambs[D].Ph.D.Thesis. Hangzhou: Zhejiang University, 2010. (in Chinese)

[90]
康劲翮, 曾波, 谭支良, 等. 苦瓜皂苷和硝酸钠对山羊瘤胃细菌多样性的影响[J]. 基因组学与应用生物学, 2017, 36(9):3819-3825.

KANG J H, ZENG B, TAN Z L, et al. Effects of Momordica charantia saponin and sodium nitrate on rumen bacterial diversity of goats[J]. Genomics and Applied Biology, 2017, 36(9):3819-3825. (in Chinese)

文章导航

/