研究论文

酶解豆粕对保育猪生长性能、养分表观消化率、免疫功能和肠道健康的影响

  • 金锦 ,
  • 周强 ,
  • 宋化淇 ,
  • 刘阳 ,
  • 井金钟 ,
  • 姚任杰 ,
  • 吴德 ,
  • 卓勇 ,
  • 车炼强 , * ,
  • 汤加勇 , *
展开
  • 四川农业大学动物营养研究所, 动物抗病营养教育部重点实验室, 成都 611130
*车炼强,教授,博士生导师,E-mail: ;
汤加勇,副教授,硕士生导师,E-mail:

金 锦(2001—),女,安徽亳州人,硕士研究生,从事猪营养研究。E-mail:

收稿日期: 2025-09-05

  网络出版日期: 2026-03-16

基金资助

国家生猪产业技术体系(CARS-35)

四川省“十四五”川猪重大科技专项(2021ZDZX009)

四川省科技计划(25NSFTD0069)

Effects of Enzyme-Hydrolyzed Soybean Meal on Growth Performance, Nutrient Apparent Digestibility, Immune Function and Intestinal Health of Nursery Pigs

  • JIN Jin ,
  • ZHOU Qiang ,
  • SONG Huaqi ,
  • LIU Yang ,
  • JING Jinzhong ,
  • YAO Renjie ,
  • WU De ,
  • ZHUO Yong ,
  • CHE Lianqiang , * ,
  • TANG Jiayong , *
Expand
  • Key Laboratory of Animal Disease-Resistant Nutrition of the Ministry of Education, Animal Nutrition Institute, Sichuan Agricultural University, Chengdu 611130, China
*CHE Lianqiang, professor, E-mail: ;
TANG Jiayong, associate professor, E-mail:

Received date: 2025-09-05

  Online published: 2026-03-16

摘要

本试验旨在探究酶解豆粕替代饲粮中豆粕对保育猪生长性能、养分表观消化率、免疫功能和肠道健康的影响。选取64头“杜×长×大”保育猪[体重(11.75±0.22) kg,(41±1)日龄],随机分为2组,分别饲喂由普通豆粕(SBM组)和酶解豆粕(ESBM组)配制的饲粮,每组8个重复,每个重复4头猪。试验期28 d。结果表明:1)与SBM组相比,ESBM组试验第15~28天和全期料重比显著降低(P<0.05),粗蛋白质、粗脂肪、总能、总氨基酸和17种氨基酸表观消化率显著提高(P<0.05)。2)与SBM组相比,ESBM组血浆免疫球蛋白G含量显著提高(P<0.05),血浆猪急性期蛋白含量显著降低(P<0.05)。3)与SBM组相比,ESBM组回肠肿瘤坏死因子受体相关因子6(TRAF6)和白细胞介素-1β(IL-1β)mRNA相对表达量显著降低(P<0.05)。4)与SBM组相比,在门水平上,ESBM组结肠厚壁菌门(Firmicutes)相对丰度显著提高(P<0.05),结肠髌骨菌门(Patescibacteria)和螺旋体门(Spirochaetota)相对丰度显著降低(P<0.05);在属水平上,ESBM组结肠乳杆菌属(Lactobacillus)和链球菌属(Streptococcus)相对丰度显著提高(P<0.05)。此外,ESBM组结肠还显著富集普雷沃氏菌属(Prevotella)、拟普雷沃氏菌属(Alloprevotella)和瘤胃球菌属(Ruminococcus)等调节肠道能量供应及产生短链脂肪酸的菌群(P<0.05)。同时,与SBM组相比,ESBM组结肠丁酸和异丁酸含量显著提高(P<0.05)。综上所述,酶解豆粕可促进保育猪生长发育,提高养分表观消化率,增强机体免疫功能,并能够富集肠道有益菌群,提高短链脂肪酸产量,促进肠道健康。

本文引用格式

金锦 , 周强 , 宋化淇 , 刘阳 , 井金钟 , 姚任杰 , 吴德 , 卓勇 , 车炼强 , 汤加勇 . 酶解豆粕对保育猪生长性能、养分表观消化率、免疫功能和肠道健康的影响[J]. 动物营养学报, 2026 , 38(3) : 1740 -1752 . DOI: 10.12418/CJAN2026.141

Abstract

This experiment was conducted to investigate the effects of enzyme-hydrolyzed soybean meal replacing soybean meal in diet on growth performance, nutrient apparent digestibility, immune function and intestinal health of nursery pigs. Sixty-four “Duroc×Landrace×Yorkshire” nursery pigs with a body weight of (11.75±0.22) kg and age of (41±1) days were selected and randomly divided into two groups with 8 replicates in each group and 4 pigs in each replicate. They were fed diets formulated with common soybean meal (SBM group) and enzyme-hydrolyzed soybean meal (ESBM group), respectively. The experiment lasted for 28 days. The results showed as follows: 1) compared with SBM group, the feed to gain ratio from days 15 to 28 and the whole phase of the experiment in ESBM group was significantly decreased (P<0.05), while the apparent digestibilities of crude protein, ether extract, gross energy, total amino acids and 17 kinds of amino acids were significantly increased (P<0.05). 2) Compared with SBM group, the plasma immunoglobulin G content in ESBM group was significantly increased (P<0.05), and the plasma pig acute phase protein content was significantly decreased (P<0.05). 3) Compared with SBM group, the mRNA relative expression levels of tumor necrosis factor receptor-associated factor 6 (TRAF6) and interleukin-1β (IL-1β) in ileum in ESBM group were significantly decreased (P<0.05). 4) Compared with SBM group, at phylum level, the Firmicutes relative abundance in colon in ESBM group was significantly increased (P<0.05), while the relative abundances of Patescibacteria and Spirochaetota in colon were significantly decreased (P<0.05); at genus level, the relative abundances of Lactobacillus and Streptococcus in colon in ESBM group were significantly increased (P<0.05). In addition, ESBM group was significantly enriched with bacteria such as Prevotella, Alloprevotella and Ruminococcus in colon (P<0.05), which regulated intestinal energy supply and produced short-chain fatty acids. Meanwhile, compared with SBM group, the contents of butyrate and isobutyrate in colon in ESBM group were significantly increased (P<0.05). In conclusion, the enzyme-hydrolyzed soybean meal can promote the growth and development of nursery pigs, increase the nutrient apparent digestibility, enhance the immune function, enrich the beneficial bacteria in intestine, increase the production of short-chain fatty acids, and promote intestinal health.

在现代养猪生产中,保育阶段是仔猪由乳汁营养向固体饲粮完全过渡的时期,也是其免疫系统承受多重压力的高风险阶段。此阶段仔猪肠道屏障功能尚未完全建立,免疫器官尚未发育成熟,易受到病原微生物和饲粮抗原的双重刺激,导致采食量下降、腹泻率升高,这将持续损害仔猪的正常生长发育[1]。为此,开发高效、低抗原性的蛋白质原料来提升饲料利用率、促进仔猪肠道发育及改善生长性能具有重要意义。豆粕(soybean meal,SBM)是大豆油加工的副产品,因其蛋白质含量高、氨基酸组成较为全面而被广泛应用于仔猪饲粮中[2]。然而,豆粕中含有多种抗营养因子,如大豆抗原蛋白、胰蛋白酶抑制剂及凝集素等,会破坏仔猪肠屏障完整性,导致出现消化不良、腹泻等现象,从而限制了其在仔猪上的应用[3]。已有研究发现,特异性酶类(如碱性蛋白酶、胰蛋白酶等)可靶向切断蛋白质分子内特定的肽键或二硫键,打破空间构象和结构表位,改变大豆抗原蛋白的三维结构,降低致敏性,从而减轻对断奶仔猪肠道的应激反应[4]。因此,本试验旨在探究酶解豆粕(enzyme-hydrolyzed soybean meal,ESBM)替代饲粮中普通豆粕对保育猪生长性能、养分表观消化率、免疫功能和肠道健康的影响,为酶解豆粕在保育猪中的应用提供参考。

1 材料与方法

1.1 试验材料

酶解豆粕为市购产品,采用组合蛋白酶和植物乳杆菌等酶解发酵而成,其粗蛋白质含量≥46%、粗脂肪含量≥2.0%、粗灰分含量≤8.0%、水分含量≤8.0%、大豆球蛋白含量≤20.0 mg/g、β-伴大豆球蛋白含量≤2.0 mg/g、胰蛋白酶抑制剂含量≤2.0 mg/g。

1.2 试验设计

本动物试验经四川农业大学动物伦理与福利委员会审核批准(批准号:20240116),符合动物保护和动物福利原理及国家动物福利伦理的相关规定。
试验选取64头“杜洛克×长白×约克夏”(Duroc×Landrace×Yorkshire,DLY)保育猪[体重(11.75±0.22) kg,(41±1)日龄],采用随机区组设计(体重作为区组)分为2组,分别饲喂由普通豆粕(SBM组)和酶解豆粕(ESBM组)配制的饲粮,每组8个重复,每个重复4头猪。饲粮营养水平满足或超过NRC(2012)11~25 kg猪营养推荐需要量,饲粮形态为粉料,其组成及营养水平见表1。试验期28 d。
表1 饲粮组成及营养水平(风干基础)

Table 1 Composition and nutrient levels of diets (air-dry basis)

项目
Items
含量 Content
SBM组 SBM group ESBM组 ESBM group
原料 Ingredients
膨化玉米 Extruded corn 66.42 66.92
豆粕 Soybean meal 18.00
酶解豆粕 Enzyme-hydrolyzed soybean meal 17.50
膨化大豆 Extruded soybean 3.20 3.20
酶解大豆 Enzyme-hydrolyzed soybean 4.00 4.00
大豆浓缩蛋白 Soy protein concentrate 1.00 1.00
椰子油粉 Coconut oil powder 1.00 1.00
蔗糖 Sucrose 2.00 2.00
L-赖氨酸盐酸盐 L-Lys·HCl 0.59 0.59
DL-蛋氨酸 DL-Met 0.18 0.18
L-苏氨酸 L-Thr 0.21 0.21
L-色氨酸 L-Trp 0.06 0.06
氯化胆碱 Choline chloride 0.10 0.10
石粉 Limestone 0.94 0.94
磷酸氢钙 CaHPO4 1.10 1.10
氯化钠 NaCl 0.40 0.40
苯甲酸 Benzoic acid 0.50 0.50
氯二甲苯酚 Chloroxylenol 0.05 0.05
预混料 Premix1) 0.25 0.25
合计 Total 100.00 100.00
营养水平(计算值) Nutrient levels (calculated values)2)
消化能 DE/(MJ/kg) 14.60 14.60
钙 Ca 0.70 0.70
有效磷 AP 0.33 0.33
赖氨酸 Lys 1.23 1.23
蛋氨酸 Met 0.43 0.43
蛋氨酸+胱氨酸 Met+Cys 0.68 0.68
苏氨酸 Thr 0.73 0.73
色氨酸 Trp 0.22 0.22
营养水平(测定值) Nutrient levels (measured values)
总能 GE/(MJ/kg) 18.11 18.22
粗蛋白质 CP 17.87 17.92
粗脂肪 EE 3.16 3.20

1)预混料为每千克饲粮提供 The premix provided the following per kg of diets:VA 3 000 IU,VD3 1 000 IU,VE 8 mg,VK3 1 mg,VB1 1 mg,VB2 2.5 mg,VB6 1.2 mg,VB12 0.12 mg,烟酰胺 nicotinamide 10 mg;泛酸 pantothenic acid 5 mg,叶酸 folic acid 0.5 mg,生物素 biotin 0.5 mg,Fe (as ferrous sulfate) 100 mg,Cu (as copper sulfate) 5 mg,Zn (as zinc sulfate) 80 mg,Mn (as manganese sulfate) 3 mg,I (as potassium iodide) 0.14 mg,Se (as sodium selenite) 0.25 mg。

2)营养水平计算值参照《中国饲料成分及营养价值表(2023年第34版)》计算。Calculated values in nutrient levels were calculated in accordance with the Tables of Feed Composition and Nutritive Values in China (34th edition, 2023).

1.3 饲养管理

饲养试验在四川农业大学教学科研基地进行,圈舍消毒、试验猪免疫及饲养管理均按照基地要求进行。试验期间试验猪自由采食和饮水,每天饲喂4次(08:00、12:00、16:00和20:00各1次)。试验第22天采用0.3%三氧化二铬(Cr2O3)作为外源指示剂进行消化试验,4 d适应期后于试验第26~28天每天收集新鲜粪便,按重复将3 d粪便混合,采用冷冻干燥仪(FDU2110,东京理化,日本)干燥后,粉碎并过40目筛,用于营养成分含量的测定。

1.4 屠宰和采样

1.4.1 血液样品

试验第28天,从每个重复中选取1头接近该重复平均体重的猪(n=8),前腔静脉采血5 mL至含肝素钠的真空采血管中,室温静置30 min后,3 500×g离心15 min,收集上层血浆至1.5 mL EP管中,-20 ℃保存待测。

1.4.2 组织样品

仔猪采血后,按200 mg/kg BW剂量肌肉注射咪达唑仑,颈动脉放血处死,迅速剖开腹腔,截取回肠和结肠段。回肠剖开后用生理盐水冲洗,再用载玻片刮取其黏膜层于冻存管中;采集结肠内容物于冻存管中,冻存管液氮速冻后于-80 ℃保存待测。

1.5 检测指标及方法

1.5.1 生长性能和腹泻指数

试验期间,每天记录各重复加料、余料和损料量,并分别于试验第1、7、14、21和28天早晨对试验猪以重复为单位进行空腹称重,计算每周和全期平均日采食量(ADFI)、平均日增重(ADG)和料重比(F/G)。每天观察3次试验猪粪便情况,记录粪便评分[5],计算腹泻指数,计算公式如下:
腹泻指数=粪便评分总和/(试验猪头数×试验天数×每日评分次数)。

1.5.2 饲粮营养成分含量和养分表观消化率

粗蛋白质含量参照GB/T 6432—2018中方法测定,粗脂肪含量参照GB/T 6433—2006中方法测定,氨基酸含量参照GB/T 18246—2019中方法测定,铬含量参照GB/T 13088—2006中方法测定,干物质含量参照GB/T 6435—2014中方法测定,总能采用Parr 6400型绝热氧弹量热计(美国)测定。养分表观消化率计算公式如下:
某养分表观消化率(%)=100×[1-(饲粮铬含量×粪便该养分含量)/(粪便铬含量×饲粮该养分含量)]。

1.5.3 血浆生化指标

采用全自动生化分析仪(3100,Hitachi,日本)测定血浆甘油三酯(TG)、游离脂肪酸(NEFA)、肌酐(CREA)、尿素(UREA)、C反应蛋白(CRP)、免疫球蛋白G(IgG)和免疫球蛋白M(IgM)含量以及谷草转氨酶(AST)、谷丙转氨酶(ALT)和谷氨酰基转移酶(GGT)活性,试剂盒购自迈克生物股份有限公司。采用酶联免疫吸附测定(ELISA)试剂盒(南京建成生物工程研究所)测定血浆肿瘤坏死因子-α(TNF-α)、白细胞介素-1β(IL-1β)和猪急性期蛋白(Pig-MAP)含量,具体检测步骤参照试剂盒说明书进行。

1.5.4 回肠免疫相关基因表达

采用TRIzol法提取回肠黏膜总RNA,并采用光谱法检测RNA浓度,cDNA合成参考试剂盒(R323,南京诺唯赞生物科技股份有限公司)说明书执行。采用实时荧光定量PCR(RT-qPCR)测定回肠黏膜免疫相关基因[Toll样受体4(TLR4)、肿瘤坏死因子受体相关因子6(TRAF6)、核因子-κB(NF-κB)、TNF-αIL-1β、白细胞介素-10(IL-10)]mRNA相对表达量,以β-肌动蛋白(β-actin)为内参基因,RT-qPCR引物序列参考陈邱虹[6]

1.5.5 结肠微生物群落

采用16S rRNA扩增子测序技术,根据保守区设计引物进行扩增,纯化产物后对高变区进行测序分析及菌种鉴定;拼接、过滤原始数据得到有效数据,再通过DADA2降噪及丰度过滤等步骤处理获得扩增子序列变异(ASV);对ASV进行物种注释和相对丰度计算;采用线性判别分析(LDA)效应大小(LEfSe)分析方法判定差异物种。

1.5.6 结肠内容物短链脂肪酸含量

结肠内容物中短链脂肪酸(乙酸、丙酸、丁酸、戊酸、异丁酸和异戊酸)含量采用气相色谱仪(8890,安捷伦)测定,样品处理具体操作步骤及上机条件参照张睿楠等[7]

1.6 数据统计分析

试验数据采用SPSS 27.0软件进行独立样本t检验,结果数据采用平均值和均值标准误(SEM)表示,P<0.01为差异极显著,0.01≤P<0.05为差异显著,0.05≤P<0.10为差异有显著趋势。

2 结果与分析

2.1 酶解豆粕对保育猪生长性能和腹泻指数的影响

表2可知,与SBM组相比,ESBM组保育猪试验第15~28天和全期料重比均显著降低(P<0.05),试验第1~14天料重比有降低趋势(P=0.068);同时,ESBM组末重提高了4.64%(P>0.05),全期平均日增重提高了5.24%(P>0.05)。此外,2组间试验各阶段平均日增重、平均日采食量和腹泻指数均无显著差异(P>0.05)。
表2 酶解豆粕对保育猪生长性能和腹泻指数的影响

Table 2 Effects of ESBM on growth performance and diarrhea index of nursery pigs

项目
Items
SBM组
SBM group
ESBM组
ESBM group
均值标准误
SEM
P
P-value
体重 BW/kg
第1天 Day 1 11.78 11.91 0.592 0.911
第14天 Day 14 17.51 17.82 0.728 0.704
第28天 Day 28 24.80 25.95 1.047 0.598
平均日增重 ADG/(g/d)
第1~14天 Days 1 to 14 419 423 11.5 0.882
第15~28天 Days 15 to 28 534 581 27.8 0.429
全期 Whole phase 477 502 18.2 0.518
平均日采食量 ADFI/(g/d)
第1~14天 Days 1 to 14 827 785 24.3 0.414
第15~28天 Days 15 to 28 1 098 1 076 51.7 0.841
全期 Whole phase 963 931 36.5 0.676
料重比 F/G
第1~14天 Days 1 to 14 1.98 1.85 0.034 0.068
第15~28天 Days 15 to 28 2.06 1.86 0.039 0.031
全期 Whole phase 2.02 1.85 0.031 0.012
腹泻指数 Diarrhea index
第1~14天 Days 1 to 14 0.20 0.22 0.048 0.323
第15~28天 Days 15 to 28 0.44 0.38 0.066 0.330
全期 Whole phase 0.32 0.30 0.063 0.304

2.2 酶解豆粕对保育猪养分表观消化率的影响

表3可知,与SBM组相比,ESBM组保育猪粗蛋白质、总氨基酸、天冬氨酸、苏氨酸、丝氨酸、谷氨酸、甘氨酸、丙氨酸、半胱氨酸、缬氨酸、蛋氨酸、异亮氨酸、亮氨酸、酪氨酸、苯丙氨酸、赖氨酸、组氨酸、精氨酸和脯氨酸表观消化率均极显著提高(P<0.01),粗脂肪和总能表观消化率显著提高(P<0.05),干物质表观消化率有提高趋势(P=0.052)。
表3 酶解豆粕对保育猪养分表观消化率的影响

Table 3 Effects of ESBM on nutrient apparent digestibility of nursery pigs

项目
Items
SBM组
SBM group
ESBM组
ESBM group
均值标准误
SEM
P
P-value
干物质 DM 89.05 89.98 0.209 0.052
总能 GE 89.02 89.82 0.221 0.042
粗蛋白质 CP 80.13 83.98 0.545 <0.001
粗脂肪 EE 84.38 86.27 0.477 0.045
总氨基酸 Total AA 81.12 85.89 0.689 <0.001
天冬氨酸 Asp 78.23 83.85 0.813 <0.001
苏氨酸 Thr 79.71 83.27 0.572 <0.001
丝氨酸 Ser 82.35 85.61 0.518 <0.001
谷氨酸 Glu 86.35 89.51 0.471 <0.001
甘氨酸 Gly 74.26 80.09 0.853 <0.001
丙氨酸 Ala 76.45 80.61 0.665 <0.001
半胱氨酸 Cys 87.63 91.26 0.587 <0.001
缬氨酸 Val 74.42 80.49 0.899 <0.001
蛋氨酸 Met 77.29 81.97 0.774 <0.001
异亮氨酸 Ile 75.29 81.01 0.856 <0.001
亮氨酸 Leu 81.65 85.09 0.554 <0.001
酪氨酸 Tyr 78.25 83.01 0.935 <0.001
苯丙氨酸 Phe 79.67 84.33 0.702 <0.001
赖氨酸 Lys 82.18 86.20 0.610 <0.001
组氨酸 His 85.23 88.54 0.503 <0.001
精氨酸 Arg 86.16 89.53 0.497 <0.001
脯氨酸 Pro 87.52 89.74 0.357 <0.001

2.3 酶解豆粕对保育猪血浆生化指标的影响

表4可知,与SBM组相比,ESBM组保育猪血浆IgG含量显著提高(P<0.05),血浆IgM有提高趋势(P=0.088);同时,ESBM组血浆Pig-MAP含量显著降低(P<0.05),血浆肌酐含量有降低趋势(P=0.088)。
表4 酶解豆粕对保育猪血浆生化指标的影响

Table 4 Effects of ESBM on plasma biochemical indices of nursery pigs

项目
Items
SBM组
SBM group
ESBM组
ESBM group
均值标准误
SEM
P
P-value
谷草转氨酶 AST/(U/L) 50.47 47.30 2.151 0.882
谷丙转氨酶 ALT/(U/L) 50.19 47.90 2.684 0.794
谷氨酰基转移酶 GGT/(U/L) 33.68 36.20 2.806 0.673
肌酐 CREA/(μmol/L) 86.05 77.64 2.502 0.088
尿素 UREA/(mmol/L) 3.64 3.49 0.136 0.610
甘油三酯 TG/(mmol/L) 0.70 0.71 0.054 0.877
游离脂肪酸 NEFA/(μmol/L) 372.74 429.85 59.797 0.671
C反应蛋白 CRP/(mg/L) 2.00 2.16 0.073 0.283
免疫球蛋白G IgG/(g/L) 2.37 2.60 0.058 0.033
免疫球蛋白M IgM/(g/L) 0.46 0.54 0.032 0.088
猪急性期蛋白 Pig-MAP/(μg/mL) 7.20 5.47 0.404 0.026
白细胞介素-1β IL-1β/(ng/L) 1.29 1.27 0.016 0.747
肿瘤坏死因子-α TNF-α/(ng/L) 141.41 139.65 6.285 0.904

2.4 酶解豆粕对保育猪回肠免疫相关基因表达的影响

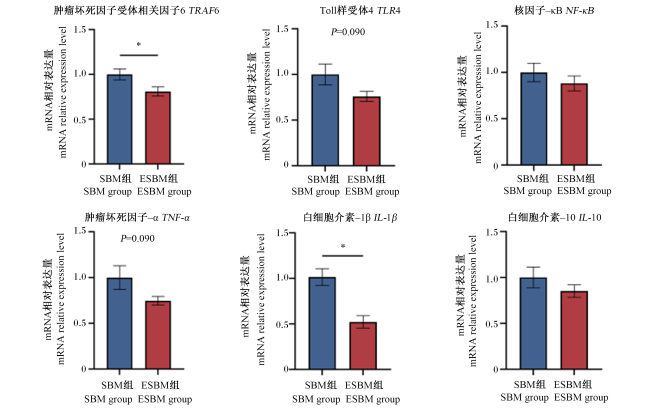
图1所示,与SBM组相比,ESBM组保育猪回肠黏膜中TRAF6和IL-1β mRNA相对表达量显著降低(P<0.05),回肠黏膜中TLR4和TNF-α mRNA相对表达量有降低趋势(P=0.090)。
图1 酶解豆粕对保育猪回肠免疫相关基因表达的影响

*表示P<0.05。

Fig.1 Effects of ESBM on expression of immune-related genes in ileum of nursery pigs

* mean P<0.05.

2.5 酶解豆粕对保育猪结肠微生物群落的影响

2.5.1 结肠微生物群落组成

在门水平上,2组保育猪结肠微生物群落相对丰度排前10的菌门见表5,其中ESBM组相对丰度排前5的分别是厚壁菌门(Firmicutes)、拟杆菌门(Bacteroidota)、甲烷杆菌门(Methanobacteriota)、放线菌门(Actinobacteriota)和螺旋体门(Spirochaetota)。与SBM组相比,ESBM组保育猪结肠内容物中厚壁菌门相对丰度显著提高(P<0.05),结肠内容物中髌骨菌门(Patescibacteria)和螺旋体门相对丰度显著降低(P<0.05)。
表5 酶解豆粕对保育猪结肠微生物群落在门水平上相对丰度的影响

Table 5 Effects of ESBM on relative abundance of colonic microbiota at phylum level of nursery pigs

项目
Items
SBM组
SBM group
ESBM组
ESBM group
均值标准误
SEM
P
P-value
厚壁菌门 Firmicutes 69.59 82.03 3.247 0.021
拟杆菌门 Bacteroidota 7.70 7.94 0.968 0.948
甲烷杆菌门 Methanobacteriota 4.24 3.64 0.703 0.757
放线菌门 Actinobacteriota 1.07 1.17 0.125 0.791
螺旋体门 Spirochaetota 8.29 1.13 2.855 0.041
变形菌门 Proteobacteria 1.41 1.08 0.201 0.277
蓝藻门 Cyanobacteria 0.89 0.96 0.216 0.718
髌骨菌门 Patescibacteria 2.00 0.89 0.320 0.038
脱硫杆菌门 Desulfobacterota 0.19 0.37 0.149 0.443
衣原体门 Chlamydiota 1.68 0.37 0.637 0.875
在属水平上,2组保育猪结肠微生物群落相对丰度排前10的菌属见表6,其中ESBM组相对丰度排前5的分别是乳杆菌属(Lactobacillus)、黏液乳杆菌属(Limosilactobacillus)、梭菌属(Clostridium)、链球菌属(Streptococcus)和布劳特氏菌属(Blautia)。与SBM组相比,ESBM组保育猪结肠内容物中乳杆菌属和链球菌属相对丰度显著提高(P<0.05),结肠内容物中密螺旋体属(Treponema)相对丰度有降低趋势(P=0.091)。
表6 酶解豆粕对保育猪结肠微生物群落在属水平上相对丰度的影响

Table 6 Effects of ESBM on relative abundance of colonic microbiota at genus level of nursery pigs

项目
Items
SBM组
SBM group
ESBM组
ESBM group
均值标准误
SEM
P
P-value
乳杆菌属 Lactobacillus 8.54 17.67 2.417 0.012
黏液乳杆菌属 Limosilactobacillus 10.16 13.35 1.439 0.326
梭菌属 Clostridium 7.70 5.22 1.697 0.723
链球菌属 Streptococcus 1.17 4.75 0.852 0.023
布劳特氏菌属 Blautia 3.32 4.32 0.556 0.505
隐杆菌属 Cryptobacteroides 2.85 3.53 0.473 0.789
特里斯孢菌属 Terrisporobacter 4.32 3.26 1.002 0.871
甲烷球形菌属 Methanosphaera 3.42 3.23 0.638 0.866
芽殖菌属 Gemmiger 2.72 3.21 0.305 0.794
密螺旋体属 Treponema 9.45 1.72 3.014 0.091

2.5.2 结肠微生物群落差异物种分析

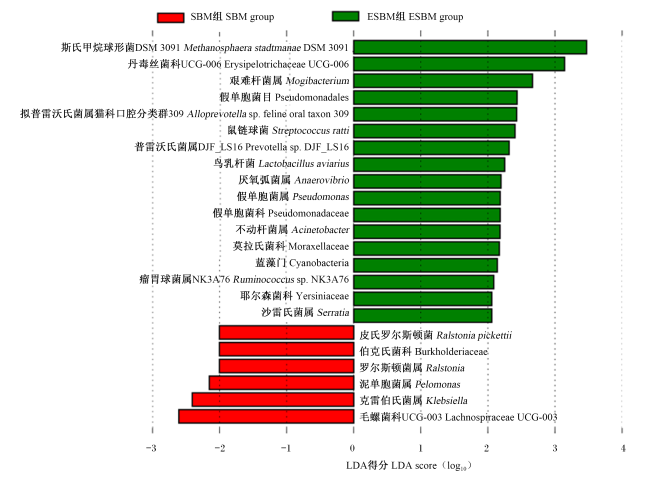
图2所示,LEfSe分析发现,分别有6和17类微生物显著富集于SBM和ESBM组保育猪结肠内容物中(∣LDA得分∣>2.0,P<0.05)。与SBM组相比,ESBM组保育猪结肠内容物中普雷沃氏菌属(Prevotella)、拟普雷沃氏菌属(Alloprevotella)、瘤胃球菌属(Ruminococcus)、鼠链球菌(Streptococcus ratti)和鸟乳杆菌(Lactobacillus aviarius)等显著富集(P<0.05)。
图2 酶解豆粕对保育猪结肠微生物群落差异物种的影响

Fig.2 Effects of ESBM on differential species in colonic microbiota of nursery pigs

2.6 酶解豆粕对保育猪结肠内容物短链脂肪酸含量的影响

表7可知,与SBM组相比,ESBM组保育猪结肠内容物中丁酸和异丁酸含量显著提高(P<0.05)。
表7 酶解豆粕对保育猪结肠内容物短链脂肪酸含量的影响

Table 7 Effects of ESBM on short-chain fatty acid contents in colonic digesta of nursery pigs

项目
Items
SBM组
SBM group
ESBM组
ESBM group
均值标准误
SEM
P
P-value
乙酸 Acetate 2.13 2.02 0.036 0.131
丙酸 Propionate 0.56 0.64 0.028 0.176
丁酸 Butyrate 0.27 0.35 0.021 0.034
戊酸 Valerate 0.10 0.13 0.010 0.195
异丁酸 Isobutyrate 0.07 0.10 0.009 0.011
异戊酸 Isovalerate 0.20 0.24 0.009 0.116
总短链脂肪酸 Total SCFAs 3.30 3.49 0.062 0.103

2.7 保育猪结肠微生物与短链脂肪酸相关性分析

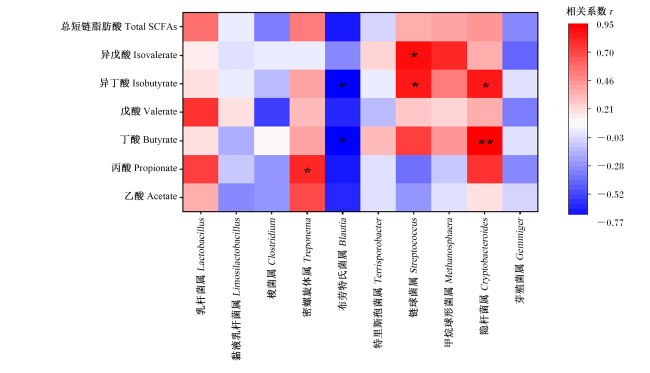
图3所示,通过Spearman相关性分析发现,保育猪结肠微生物在属水平上相对丰度排前10的菌属与短链脂肪酸含量存在一定相关性。其中,隐杆菌属(Cryptobacteroides)相对丰度与丁酸含量呈极显著正相关(P<0.01),与异丁酸含量呈显著正相关(P<0.05);链球菌属相对丰度与异丁酸和异戊酸含量呈显著正相关(P<0.05);密螺旋体属相对丰度与丙酸含量呈显著正相关(P<0.05);而布劳特氏菌属相对丰度与丁酸和异丁酸含量呈显著负相关(P<0.05)。
图3 保育猪结肠微生物(属水平)与短链脂肪酸相关性分析热图

*表示显著相关(P<0.05),**表示极显著相关(P<0.01)。

Fig.3 Heatmap of correlation analysis between colonic microbiota (at genus level) and short-chain fatty acids of nursery pigs

* mean significant correlation (P<0.05), and ** mean extremely significant correlation (P<0.01).

3 讨论

豆粕中含有抗原蛋白如大豆球蛋白、β-伴大豆球蛋白、胰蛋白酶抑制剂及凝集素等,酶解处理不仅能消除抗营养成分,还能将大分子蛋白质分解成小分子肽[8],从而改善猪对养分的消化吸收,进而促进其生长发育[9]。本研究所用酶解豆粕经蛋白酶水解再经植物乳杆菌等菌种发酵后,其所含大豆球蛋白含量≤20.0 mg/g、β-伴大豆球蛋白含量≤2.0 mg/g、胰蛋白酶抑制剂含量≤ 2.0 mg/g,均远低于未酶解豆粕中的含量,表明酶解可有效降低豆粕中抗营养组分。
饲粮中较高的抗原蛋白会使保育猪胃肠道过敏和绒毛萎缩,导致腹泻、养分消化率降低及生长发育受阻[10]。Ma等[3]研究发现,用酶解豆粕替代断奶仔猪饲粮中豆粕后,料重比显著降低,在试验第14~28天平均日增重显著升高。张煜等[11]研究发现,饲粮中添加10%菌酶协同处理豆粕后有利于提高断奶仔猪平均日增重和平均日采食量。本研究发现,酶解豆粕在保育前期有降低料重比的趋势,而在保育后期及整个保育期显著降低料重比,并使保育猪末重提高了4.64%,全期平均日增重提高了5.24%。料重比的降低与养分表观消化率密切相关,酶解豆粕提高养分表观消化率的机制不仅在于抗营养因子的降解,还归因于蛋白质的“预消化”效应,即酶解能够将大分子蛋白质降解为易被吸收的小肽和游离氨基酸,减轻仔猪胃肠道消化负担[12]。本研究中,酶解豆粕显著提高了保育猪对粗蛋白质、粗脂肪和总能的表观消化率,这与Tan等[13]的研究结果一致,可能源于蛋白酶能够高效水解大豆抗原蛋白,破坏致敏结构域,使得豆粕中抗营养因子含量显著降低,减少其对保育猪消化系统所产生的负面影响,进而提高养分表观消化率[10]。以上研究表明,酶解豆粕可提高保育猪生长性能,可能与其中的抗原蛋白、胰蛋白酶抑制剂等抗营养因子酶解为易被猪吸收的小肽[14],从而促进了养分的有效利用有关。
保育猪免疫系统尚未发育成熟,免疫防御能力较弱,易受到营养不均衡、病原微生物侵染及抗营养因子增高等多种因素影响,进而导致其生长受阻,严重时甚至死亡[15]。免疫球蛋白(IgG、IgM等)是动物免疫系统的核心组分,可通过介导抗炎反应来增强机体免疫防御功能[16]。酶解豆粕中所产生的小肽不仅更易被机体吸收利用,部分小肽还具备免疫调节、刺激消化液分泌、抗炎及修复肠道上皮屏障等功能,从而促进免疫器官发育来维持机体稳态[17-18]。本研究中,酶解豆粕较豆粕显著提高保育猪血浆IgG含量,这与唐玲等[19]的研究结果一致,表明酶解豆粕能够促进仔猪免疫系统发育并增强免疫功能,这可能与酶解豆粕中抗原蛋白被高效降解以及小肽生成有关[14]。Pig-MAP是猪主要的急性期蛋白指标,已被列为检测猪急性感染、炎症及应激的生物标志物[20]。本研究中,酶解豆粕显著降低保育猪血浆Pig-MAP含量,表明其有助于缓解保育猪炎症和应激反应。此外,机体促炎因子含量持续升高可直接破坏肠道上皮屏障完整性,引发炎症反应。TLR4及其下游信号分子是炎症信号通路的关键成员,能够通过激活NF-κB诱导炎症发生,从而促进多种炎症因子的转录表达,如TNF-αIL-1β[21]。本研究发现,酶解豆粕降低了保育猪回肠TLR4、TRAF6、TNF-αIL-1β mRNA相对表达量,这与前人研究结果[22]相似。以上结果表明,酶解豆粕可提高保育猪免疫功能,降低机体炎症水平和应激反应,可能是通过降低TLR4、TRAF6等基因表达,从而减少细胞内炎症因子分泌来实现的。
肠道微生物群落在宿主免疫系统的建立和调控中发挥着关键作用,同时对维持肠道功能和机体健康来说具有重要意义。本研究中,酶解豆粕较豆粕可显著提高保育猪结肠厚壁菌门相对丰度,这与何敏等[23]的研究结果一致。可能是由于厚壁菌门与多糖分解和肠道能量利用有关,豆粕在酶解过程中所产生的小肽和易发酵低聚糖会为厚壁菌门细菌的生长提供特异性碳源[24]。酶解豆粕还显著降低保育猪结肠髌骨菌门和螺旋体门相对丰度,这可能是因为酶解处理降解了豆粕中的抗营养因子,从而减少这些菌群可利用的底物,并通过降低未发酵蛋白质残留、缓解局部炎症反应及增强黏膜屏障功能来改善肠道环境,使这些依赖特定底物的菌群在竞争中被抑制[25]。乳杆菌属可通过发酵糖类产生乳酸,并能够抑制病原菌生长、维护肠道屏障完整性、调节机体免疫反应以及促进养分吸收和利用,从而在肠道稳态中发挥重要作用[26]。链球菌属不仅能分泌蛋白酶和碱性肽酶,促进蛋白质和肽链的水解,增加小肠内可利用氨基酸的释放,还能够利用各种底物合成新的氨基酸,如亮氨酸、赖氨酸和丝氨酸[27-28],这在哺乳动物对蛋白质消化和氨基酸吸收中起着重要的作用[29]。此外,密螺旋体属的过度增殖往往与肠道中未消化蛋白质的异常发酵有关,其相对丰度过高时会产生大量硫化氢等有害代谢产物,激活促炎信号通路,导致氧化应激和黏膜通透性增加[13]。本研究中,酶解豆粕显著提高保育猪结肠乳杆菌属和链球菌属相对丰度,同时有降低结肠密螺旋体属相对丰度的趋势。这可能与酶解豆粕改善肠道营养底物结构和微生态环境有关,酶解豆粕所产生的小肽和游离氨基酸为有益菌群提供了优质氮源,促进其增殖,且酶解处理会破坏大豆球蛋白和β-伴大豆球蛋白等抗原蛋白质结构,减少后肠段未被消化的蛋白质残留并抑制有害菌群的生长,从而促进肠道健康[5]。LEfSe分析发现,ESBM组结肠显著富集了普雷沃氏菌属、拟普雷沃氏菌属和瘤胃球菌属等能够调节肠道能量供应的菌群,可能是因为酶解豆粕能够提高蛋白质消化率,减少肠道内未消化蛋白质的积累,抑制蛋白质发酵菌的竞争,从而有利于这些产酸菌的生长;且酶解过程使得大分子非淀粉多糖被降解为易发酵吸收的低聚糖,为这些菌群提供了丰富碳源,进而使得它们能够产生更多的短链脂肪酸供肠道上皮细胞所利用[25],这与本研究结果中酶解豆粕显著提高保育猪结肠丁酸和异丁酸含量的结果相一致。丁酸是结肠细胞的重要能量来源,可促进肠上皮生长和分化,抑制促炎因子释放,降低肠道炎症反应;而异丁酸可通过竞争性抑制病原菌代谢底物来维持肠道菌群平衡,并能够与丁酸协同作用促进乳酸菌等有益菌增殖,进一步优化微生物群落结构,改善肠道健康[30]
此外,结肠微生物菌属与短链脂肪酸存在相关性,肠道微生物直接决定短链脂肪酸的合成谱系,而短链脂肪酸作为核心代谢产物,通过能量供应和免疫稳态调节反向塑造菌群生态平衡[31]。本研究通过Spearman相关性分析发现,厚壁菌门中的隐杆菌属主要参与丁酸合成,丁酸作为结肠上皮细胞的核心能量来源,可增强肠道屏障功能,并降低促炎因子含量[30]。链球菌属可通过增强蛋白质消化与特定氨基酸(如丝氨酸)释放,为肠道发酵微生物提供底物,从而间接促进丁酸盐生成,改善肠道能量供应[29,32]。布劳特氏菌属相对丰度与丁酸和异丁酸含量呈显著负相关,反映了其代谢竞争与菌群失衡的双重机制,其竞争性剥夺产丁酸菌的底物,同时在低纤维环境中的增殖常伴随产丁酸菌丰度下降,形成短链脂肪酸减少的紊乱状态;而酶解豆粕中的小肽作为隐杆菌属和链球菌属的专属底物,促进在保育猪肠道中的定植,从而提升丁酸和异丁酸含量,且抗营养因子的降低也会改善菌群环境[33]。以上结果表明,酶解豆粕可通过重塑肠道菌群结构和促进短链脂肪酸生成,进而改善保育猪肠道健康及免疫功能,为其生长性能和养分利用率的提升奠定基础。

4 结论

酶解豆粕可促进保育猪生长发育,提高养分表观消化率,增强机体免疫功能,并能够富集肠道有益菌群,提高短链脂肪酸如丁酸和异丁酸产量,促进肠道健康。
[1]
HOTZ C, GIBSON R S. Traditional food-processing and preparation practices to enhance the bioavailability of micronutrients in plant-based diets[J]. The Journal of Nutrition, 2007, 137(4):1097-1100.

DOI

[2]
CSÁKY I, FEKETE S. Soybean:feed quality and safety.Part 2:pathology of soybean feeding in animals.A review[J]. Acta Veterinaria Hungarica, 2004, 52(3):315-326.

DOI

[3]
MA X K, SHANG Q H, WANG Q Q, et al. Comparative effects of enzymolytic soybean meal and antibiotics in diets on growth performance,antioxidant capacity,immunity,and intestinal barrier function in weaned pigs[J]. Animal Feed Science and Technology, 2019, 248:47-58.

DOI

[4]
YANG H, QU Y Z, LI J T, et al. Improvement of the protein quality and degradation of allergens in soybean meal by combination fermentation and enzymatic hydrolysis[J]. LWT, 2020, 128:109442.

DOI

[5]
TANG J Y, LI W T, ZHOU Q, et al. Effect of heating,microbial fermentation,and enzymatic hydrolysis of soybean meal on growth performance,nutrient digestibility,and intestinal microbiota of weaned piglets[J]. Journal of Animal Science, 2023,101:skad384.

[6]
陈邱虹. 多酶协同处理膨化大豆或豆粕对断奶仔猪生长性能、养分消化率及肠道健康的影响[D].硕士学位论文. 雅安: 四川农业大学, 2023.

CHEN Q H. Effects of multi-enzyme treatment of extruded soybean or soybean meal on growth performance,nutrient digestibility and intestinal health of weaned piglets[D].Master’s Thesis. Ya’an: Sichuan Agriculture University, 2023. (in Chinese)

[7]
张睿楠, 李华, 汤加勇, 等. 猪肠道食糜和血清中短链脂肪酸浓度的测定[J/OL]. 微生物组实验手册, 2021(2021-06-11)[2025-08-05].https://doi.org/10.21769/BioProtoc.2003671.

ZHANG R N, LI H, TANG J Y, et al. The determination of the concentration of short chain fatty acids in the intestinal digesta and serum of pigs[J/OL]. Microbiome Protocols eBook, 2021(2021-06-11)[2025-08-05].https://doi.org/10.21769/BioProtoc.2003671. (in Chinese)

[8]
WANG X Q, FENG Y, SHU G, et al. Effect of dietary supplementation with hydrolyzed wheat gluten on growth performance,cell immunity and serum biochemical indices of weaned piglets (Sus scrofa)[J]. Agricultural Sciences in China, 2011, 10(6):938-945.

DOI

[9]
YANG H, LI X, GAO J Y, et al. Germination-assisted enzymatic hydrolysis can improve the quality of soybean protein[J]. Journal of Food Science, 2017, 82(8):1814-1819.

DOI PMID

[10]
刘显琦. 菌酶协同发酵制备低抗原性豆粕工艺的研究[D].硕士学位论文. 沈阳: 沈阳农业大学, 2019.

LIU X Q. Study on preparation of soybean meal with low antigenicity by fermentation assisted enzymatic hydrolysis[D].Master’s Thesis. Shenyang: Shenyang Agriculture University, 2019. (in Chinese)

[11]
张煜, 石常友, 王成, 等. 菌酶协同发酵改善玉米-豆粕型饲料营养价值的研究[J]. 中国粮油学报, 2018, 33(3):70-77.

ZHANG Y, SHI C Y, WANG C, et al. Improving nutrition value of maize-soybean meal based diet by microbial fermentation combined with multiple-enzymes[J]. Journal of the Chinese Cereals and Oils Association, 2018, 33(3):70-77. (in Chinese)

[12]
赵荣, 张英雪, 单春乔, 等. 酶解对豆粕营养成分及体外消化率的影响[J]. 粮食与饲料工业, 2019(1):41-43.

ZHAO R, ZHANG Y X, SHAN C Q, et al. Effects of enzymatic hydrolysis on nutritional components and digestibility of soybean meal[J]. Cereal & Feed Industry, 2019(1):41-43. (in Chinese)

[13]
TAN K, BIAN Z Y, LIANG H Q, et al. Enzymolytic soybean meal-impact on growth performance,nutrient digestibility,antioxidative capacity,and intestinal health of weaned piglets[J]. Frontiers in Veterinary Science, 2024, 11:1381823.

DOI

[14]
周宇朦, 孙洪浩, 吕福军. 不同蛋白酶对豆粕中抗原蛋白的降解效果[J]. 养猪, 2022(5):7-10.

ZHOU Y M, SUN H H, LV F J. A preliminary study on the degradation effect of different proteases on antigenic proteins in soybean meal[J]. Swine Production, 2022(5):7-10. (in Chinese)

[15]
CAMPBELL J M, CRENSHAW J D, POLO J. The biological stress of early weaned piglets[J]. Journal of Animal Science and Biotechnology, 2013, 4(1):19.

DOI PMID

[16]
VASCHETTO R, CLEMENTE N, PAGNI A, et al. A double blind randomized experimental study on the use of IgM-enriched polyclonal immunoglobulins in an animal model of pneumonia developing shock[J]. Immunobiology, 2017, 222(12):1074-1080.

DOI PMID

[17]
ZHANG Y, CHEN S, ZONG X, et al. Peptides derived from fermented soybean meal suppresses intestinal inflammation and enhances epithelial barrier function in piglets[J]. Food and Agricultural Immunology, 2020, 31(1):120-135.

DOI

[18]
SANJUKTA S, RAI A K. Production of bioactive peptides during soybean fermentation and their potential health benefits[J]. Trends in Food Science & Technology, 2016, 50:1-10.

[19]
唐玲, 肖伟伟. 大豆酶解蛋白对仔猪免疫力和抗氧化力的影响[J]. 饲料研究, 2015(18):48-53.

TANG L, XIAO W W. Effects of soybean enzymatic hydrolysate protein on immunity and antioxidant capacity of piglets[J]. Feed Research, 2015(18):48-53. (in Chinese)

[20]
LÓPEZ-COLOM P, YU K, BARBA-VIDAL E, et al. I-FABP,pig-MAP and TNF-α as biomarkers for monitoring gut-wall integrity in front of Salmonella typhimurium and ETEC K88 infection in a weaned piglet model[J]. Research in Veterinary Science, 2019, 124:426-432.

DOI

[21]
WANG X Y, WANG W J, WANG L M, et al. Lentinan modulates intestinal microbiota and enhances barrier integrity in a piglet model challenged with lipopolysaccharide[J]. Food & Function, 2019, 10(1):479-489.

[22]
李英洁. 酶解大豆蛋白对断奶仔猪生长性能和肠道健康的影响及可能机制研究[D].硕士学位论文. 雅安: 四川农业大学, 2022.

LI Y J. Effects of enzymatic soybean protein on growth performance and intestinal health of weaned piglets and the underlying mechanism[D].Master’s Thesis. Ya’an: Sichuan Agriculture University, 2022. (in Chinese)

[23]
何敏, 党文庆, 梁兴龙, 等. 饲粮中添加发酵豆粕对断奶仔猪粪便菌群多样性的影响[J]. 动物营养学报, 2019, 31(6):2560-2571.

HE M, DANG W Q, LIANG X L, et al. Effects of dietary fermented soybean meal on diversity of faecal microbiota of weaned pigs[J]. Chinese Journal of Animal Nutrition, 2019, 31(6):2560-2571. (in Chinese)

[24]
LI Y, GUO B Z, WU Z K, et al. Effects of fermented soybean meal supplementation on the growth performance and cecal microbiota community of broiler chickens[J]. Animals, 2020, 10(6):1098.

DOI

[25]
LI H, YIN J, HE X, et al. Enzyme-treated soybean meal replacing extruded full-fat soybean affects nitrogen digestibility,cecal fermentation characteristics and bacterial community of newly weaned piglets[J]. Frontiers in Veterinary Science, 2021, 8:639039.

DOI

[26]
VALERIANO V D V, BALOLONG M P, KANG D K. Probiotic roles of Lactobacillus sp. in swine:insights from gut microbiota[J]. Journal of Applied Microbiology, 2017, 122(3):554-567.

DOI

[27]
HOOPER L V, MIDTVEDT T, GORDON J I. How host-microbial interactions shape the nutrient environment of the mammalian intestine[J]. Annual Review of Nutrition, 2002, 22:283-307.

PMID

[28]
DAI Z L, WU G Y, ZHU W Y. Amino acid metabolism in intestinal bacteria:links between gut ecology and host health[J]. Frontiers in Bioscience, 2011, 16(5):1768-1786.

DOI

[29]
HE F, JIN X Y, WANG C F, et al. Lactobacillus rhamnosus GG ATCC53103 and Lactobacillus plantarum JL01 improved nitrogen metabolism in weaned piglets by regulating the intestinal flora structure and portal vein metabolites[J]. Frontiers in Microbiology, 2023, 14:1200594.

DOI

[30]
CONNOLLY K R, SWEENEY T, RYAN M T, et al. Effects of butyric acid supplementation on the gut microbiome and growth performance of weanling pigs fed a low-crude protein,propionic acid-preserved grain diet[J]. Microorganisms, 2025, 13(3):689.

DOI

[31]
HAYS K E, PFAFFINGER J M, RYZNAR R. The interplay between gut microbiota,short-chain fatty acids,and implications for host health and disease[J]. Gut Microbes, 2024, 16(1):2393270.

DOI

[32]
FUSCO W, LORENZO M B, CINTONI M, et al. Short-chain fatty-acid-producing bacteria:key components of the human gut microbiota[J]. Nutrients, 2023, 15(9):2211.

DOI

[33]
CLARK R L, CONNORS B M, STEVENSON D M, et al. Design of synthetic human gut microbiome assembly and butyrate production[J]. Nature Communications, 2021, 12(1):3254.

DOI PMID

文章导航

/