研究论文

山银花和黄芩提取物复配对母猪繁殖性能、血清指标、初乳品质和胎盘功能的影响

  • 钟鸣 , 1 ,
  • 李军辉 1, * ,
  • 姚伟杰 1 ,
  • 吕慧源 2 ,
  • 江雪梅 1 ,
  • 晋超 1 ,
  • 车炼强 1 ,
  • 方正锋 1 ,
  • 冯斌 1 ,
  • 林燕 1 ,
  • 徐盛玉 1 ,
  • 李健 1 ,
  • 花伦 1 ,
  • 卓勇 1 ,
  • 吴德 , 1, **
展开
  • 1 四川农业大学动物营养研究所, 教育部动物抗病营养重点实验室,四川省动物抗病营养重点实验室, 成都 611130
  • 2 北京生泰尔科技股份有限公司, 北京 100193
**吴 德,教授,博士生导师,E-mail:

*同等贡献作者

钟 鸣(2000—),男,四川巴中人,硕士研究生,从事猪营养研究。E-mail:

收稿日期: 2025-07-29

  网络出版日期: 2026-03-16

基金资助

国家重点研发计划(2023YFD1300804/5)

国家自然科学基金(32230102)

四川省自然科学基金(2023NSFSC0010)

四川省重大科技专项(2021ZDZX0009)

Effects of Mixed Extracts of Lonicera flos and Scutellaria baicalensis on Reproductive Performance, Serum Indices, Colostrum Quality and Placental Function of Sows

  • ZHONG Ming , 1 ,
  • LI Junhui 1, * ,
  • YAO Weijie 1 ,
  • LYU Huiyuan 2 ,
  • JIANG Xuemei 1 ,
  • JIN Chao 1 ,
  • CHE Lianqiang 1 ,
  • FANG Zhengfeng 1 ,
  • FENG Bin 1 ,
  • LIN Yan 1 ,
  • XU Shengyu 1 ,
  • LI Jian 1 ,
  • HUA Lun 1 ,
  • ZHUO Yong 1 ,
  • WU De , 1, **
Expand
  • 1 Key Laboratory of Animal Disease-Resistant Nutrition of Sichuan Province, Key Laboratory of Animal Disease-Resistant Nutrition of the Ministry of Education, Animal Nutrition Institute, Sichuan Agricultural University, Chengdu 611130, China
  • 2 Beijing Centre Biology Co., Ltd., Beijing 100193, China
**professor, E-mail:

*Contributed equally

Received date: 2025-07-29

  Online published: 2026-03-16

摘要

本试验旨在研究饲粮添加山银花和黄芩提取物(LSE)对母猪繁殖性能、血清指标、初乳品质和胎盘功能的影响。选取1 255头胎次(2~4胎)、遗传背景和体况接近的母猪,随机分为2组,对照组(CON组)饲喂基础饲粮,试验组(LSE组)在妊娠期和哺乳期饲粮中分别添加150和500 mg/kg LSE。试验从配种开始至断奶结束。结果表明,与CON组相比:1)饲粮添加LSE显著降低死胎数和木乃伊胎数(P<0.05),显著提高哺乳母猪平均日采食量(ADFI)以及仔猪平均日增重(ADG)和平均断奶重(P<0.05);2)饲粮添加LSE显著降低母猪妊娠110 d血清丙二醛含量(P<0.05),显著提高哺乳14 d血清过氧化氢酶活性(P<0.05),显著降低妊娠70 d血清白细胞介素-2以及哺乳14 d血清白细胞介素-6含量(P<0.05),显著提高妊娠110 d血清免疫球蛋白G含量(P<0.05);3)饲粮添加LSE显著提高初乳中脂肪、蛋白质和真蛋白质含量(P<0.05),并显著提高初乳中游离氨基酸组氨酸、异亮氨酸、蛋氨酸、苯丙氨酸和丝氨酸含量(P<0.05);4)饲粮添加LSE显著提高胎盘功能相关基因超氧化物歧化酶2(SOD2)、血管内皮生长因子-A(VEGF-A)、溶质载体家族1成员4(SLC1A4)、溶质载体家族7成员1(SLC7A1)和4F2重链蛋白(4F2HC)mRNA相对表达量(P<0.05)。综上所述,在规模化养猪生产模式下,饲粮添加LSE可改善母猪血清抗氧化和免疫状态,上调胎盘功能相关基因表达,降低死胎数和木乃伊胎数,提高母猪哺乳期ADFI及初乳品质,并提高仔猪ADG和平均断奶重。

本文引用格式

钟鸣 , 李军辉 , 姚伟杰 , 吕慧源 , 江雪梅 , 晋超 , 车炼强 , 方正锋 , 冯斌 , 林燕 , 徐盛玉 , 李健 , 花伦 , 卓勇 , 吴德 . 山银花和黄芩提取物复配对母猪繁殖性能、血清指标、初乳品质和胎盘功能的影响[J]. 动物营养学报, 2026 , 38(3) : 1753 -1766 . DOI: 10.12418/CJAN2026.142

Abstract

The experiment was conducted to evaluate the effects of dietary supplementation with mixed extracts of Lonicera flos and Scutellaria baicalensis (LSE) on reproductive performance, serum indices, colostrum quality and placental function of sows. A total of 1 255 sows with similar parity (2 to 4 parities), genetic background and body condition were randomly allocated into 2 groups, in which the control group (CON group) received a basal diet, and the experimental group (LSE group) received the basal diet supplemented with 150 mg/kg LSE during gestation and 500 mg/kg LSE during lactation. Supplementation began at breeding and continued until weaning. The results showed as follows, compared with CON group: 1) dietary LSE supplementation significantly reduced the numbers of stillbirths and mummy fetuses (P<0.05), and significantly increased the average daily feed intake (ADFI) of sows as well as the average daily gain (ADG) and average weaning weight of piglets (P<0.05); 2) dietary LSE supplementation significantly decreased the serum malondialdehyde content on day 110 of gestation (P<0.05), significantly increased the serum catalase activity on day 14 of lactation (P<0.05), significantly reduced the serum interleukin-2 content on day 70 of gestation and serum interleukin-6 content on day 14 of lactation, and significantly elevated the serum immunoglobulin G content on day 110 of gestation (P<0.05); 3) dietary LSE supplementation significantly increased the contents of fat, protein and true protein in colostrum, and significantly increased the contents of free amino acids such as histidine, isoleucine, methionine, phenylalanine and serine in colostrum (P<0.05); 4) dietary LSE supplementation significantly increased the mRNA relative expression levels of placental function-related genes such as superoxide dismutase 2 (SOD2), vascular endothelial growth factor-A (VEGF-A), solute carrier family 1 member 4 (SLC1A4), solute carrier family 7 member 1 (SLC7A1), and 4F2 heavy chain protein (4F2HC) (P<0.05). In conclusion, under the large-scale pig farming production model, dietary LSE supplementation can improve the serum antioxidant and immune status of sows, upregulate the expression of genes related to placental function, reduce the numbers of stillbirths and mummy fetuses, increase the ADFI and colostrum quality of sows during lactation, and enhance the ADG and average weaning weight of piglets.

母猪繁殖性能是生猪生产的核心经济驱动力,维持其最佳繁殖性能是实现经济效益最大化的关键[1]。尽管遗传选育与管理水平提升增加了窝产仔数,但也加重了母猪生理负担,导致母猪免疫能力下降、仔猪出生重降低和泌乳性能受损等问题[2]。在整个繁殖过程中,母体代谢增强,活性氧(ROS)在胎盘和乳腺等关键组织中蓄积,诱发氧化应激。胎盘是母胎间物质交换的核心器官,氧化应激可能损伤胎盘功能,抑制胎儿发育[3];同时,初乳合成和分泌对母体生理状态敏感,其品质直接影响仔猪被动免疫的建立与生长发育。因此,探索安全有效的营养干预措施,以改善母猪健康状态并保障繁殖性能,具有重要的生产实践意义。中草药及其植物提取物在缓解氧化应激、提高动物免疫力和生产性能方面展现出广阔的潜力[4-5]。山银花和黄芩是《中国药典》收录的传统中草药材,具有显著的生物活性。山银花富含绿原酸,具有抗炎、抗氧化和提高免疫力的作用[6],在饲粮中添加可促进育肥猪生长,提高肌肉氨基酸转运能力,并增强肌肉蛋白质生物合成[7];黄芩则具有预防疾病、提高免疫力和调节肠道微生物等功能[8],在饲粮中添加可改善断奶仔猪肠道健康,提高饲料转化率[9]。此外,山银花和黄芩复配可提高相互生物利用度,提升综合效益[10]
然而,山银花和黄芩二者复配在母猪饲粮中的研究较为匮乏,现有研究存在样本量小、周期较短以及对作用机制探讨不足等问题,这使得现有研究难以有效指导实际生产。基于此,本研究在规模化养殖条件下,系统研究妊娠期和哺乳期全程添加山银花和黄芩提取物(Lonicera flos and Scutellaria baicalensis extracts,LSE)复配对母猪繁殖性能、血清指标、初乳品质和胎盘功能相关基因表达的影响,旨在为中草药提取物在母猪生产中的科学应用提供更全面的理论依据和实践参考。

1 材料与方法

1.1 试验材料

LSE以山银花与黄芩提取物按1∶10比例配伍,加入适量葡萄糖混合制成,其中山银花提取物含量为2.40 g/kg,黄芩提取物含量为24.0 g/kg;其主要活性成分含量为绿原酸0.22 mg/g,黄芩苷2.20 mg/g。

1.2 试验设计

动物试验经四川农业大学动物管理与福利委员会批准,伦理审批编号:SICAU 20240191。试验选取1 255头胎次相近(2~4胎)的健康母猪,其杂交组合包括:大白×大白(YY)、大白×长白(LY)和长白×大白×长白(LLY)。采用随机区组设计,按照遗传背景、胎次和体况进行划分区组,将各区组内的母猪随机分配至对照组(CON组)和试验组(LSE组)。CON组饲喂商业化基础饲粮,其营养水平见表1。前期研究表明,在啮齿类动物、肉鸡及母猪模型中,150~1 000 mg/kg LSE可改善动物健康,提高生产性能[11-13]。LSE组在妊娠期和哺乳期基础饲粮的基础上分别添加150和500 mg/kg LSE。试验从配种开始至断奶结束。
表1 基础饲粮营养水平(饲喂基础)

Table 1 Nutrient levels of basal diets (as-fed basis)

项目
Items
妊娠期
Pregnancy
period
哺乳期
Lactation
period
总能 GE/(MJ/kg) 16.16 16.33
干物质 DM 87.81 87.59
粗蛋白质 CP 13.43 16.96
粗脂肪 EE 3.82 4.80
中性洗涤纤维 NDF 16.05 13.77
酸性洗涤纤维 ADF 9.43 7.90
粗纤维 CF 4.82 3.35
钙 Ca 0.85 0.91
总磷 TP 0.68 0.66

上述结果均为实测值。

The above results were measured values.

1.3 饲养管理

本试验于重庆市的2个饲养管理条件接近的规模化种猪场进行。2个猪场的猪舍设施标准、饲喂程序、环境控制、健康监测及免疫保健程序等操作规程均严格统一执行,以最大限度减少场间系统性差异。同批次试验母猪在同一猪舍饲养,且样本量在各批次间均衡分配。妊娠期饲喂量按阶段调整:妊娠0~28 d为2.4 kg/d,妊娠29~84 d为2.0 kg/d,妊娠85 d至分娩为3.0 kg/d;妊娠110 d时转入产房并改喂哺乳料。母猪分娩后,新生仔猪均进行组内交叉寄养;分娩当日停料,产后第1天饲喂1.0 kg饲粮,随后7 d每日递增1.0 kg,至自由采食后维持至断奶。试验期间母猪淘汰统计见表2,淘汰母猪不纳入后续指标统计。
表2 母猪淘汰情况

Table 2 Situation of sow culling

项目 Items CON组 CON group LSE组 LSE group
受试母猪总数 Number of sows tested 622 633
妊娠期淘汰统计 Pregnancy elimination statistics
生产过程损失 Production process loss1) 10 19
疾病和难产 Diseases and dystocia 3 2
分娩数 Parturition 609 612
哺乳期淘汰统计 Lactation elimination statistics
猪场管理因素 Pig farm management factors2) 42 49
跛脚和蹄肢问题 Limb and hoof problems 2 0
炎症和厌食 Inflammation and anorexia 6 4
肛门脱垂 Prolapse of anus 1 0
死亡 Death 1 1
断奶数 Number of weaning 557 558

1)生产过程损失:因饲养管理操作不当导致母猪数据无法记录,如空怀母猪未查出,母猪信息卡丢失或损坏等因素。Production process loss: inability to record sow data due to improper feeding and management, such as failure to detect non-pregnant sows, loss or damage of sow information cards, etc..

2)猪场管理因素:受猪场的实际管理规定(如疫病防控要求等)影响,部分母猪的样品和数据无法正常收集。Pig farm management factors: due to actual management regulations of pig farms (such as disease prevention and control requirements), samples and data from some sows cannot be collected normally.

1.4 样品采集及指标测定

1.4.1 饲粮样品营养成分分析

本试验的饲粮样品经粉碎并过40目筛。饲粮样品总能采用Parr 6400全自动氧弹量热仪测定;干物质含量参照GB/T 6435—2014方法测定;粗蛋白质含量参照GB/T 6432—2018方法测定;粗脂肪含量参照GB/T 6433—2006方法测定;中性洗涤纤维、酸性洗涤纤维和粗纤维含量分别参照GB/T 20806—2022、NY/T 1459—2022和GB/T 6434—2022方法,采用ANKOM A2000i全自动纤维分析仪测定;钙含量参照GB/T 6436—2018方法测定;总磷含量参照GB/T 6437—2018方法测定。

1.4.2 母猪繁殖性能测定

记录每头母猪的总产仔数、活产仔数、健仔数(出生重≥0.8 kg)、死胎数、木乃伊胎数及畸形仔数。新生仔猪在摄入初乳前称重,交叉寄养当天及断奶当天再次称重,记录这2个时间点的每窝仔猪数,据此结合时间间隔计算仔猪平均日增重(ADG)。记录母猪哺乳期采食量,计算平均日采食量(ADFI)。分别于妊娠110 d和断奶当天,采用B型超声扫描仪(HD-9300L,辽宁汉德科技有限公司)测量母猪P2点背膘厚度,并计算哺乳期背膘损失。

1.4.3 血清和初乳免疫球蛋白以及血清细胞因子含量测定

从各批次每组随机选取20头杂交组合、胎次及体况相近的母猪,分别于妊娠70、110 d和哺乳14 d通过耳静脉采血10 mL,室温静置1 h后1 500×g离心15 min获得血清样品;母猪娩出第1头仔猪后1 h内,从乳房的前、中、后乳头共采集30 mL初乳样品并混匀,样品均于-20 ℃保存。
将血清和初乳样品于4 ℃解冻,采用酶联免疫吸附测定(ELISA)试剂盒(泉州市睿信生物科技有限公司)测定血清和初乳中免疫球蛋白A(IgA)、免疫球蛋白G(IgG)、免疫球蛋白M(IgM)以及血清中白细胞介素-2(IL-2)、白细胞介素-6(IL-6)和肿瘤坏死因子-α(TNF-α)含量。

1.4.4 血清抗氧化指标测定

取上述血清样品于4 ℃解冻,采用试剂盒(南京建成生物工程研究所)测定母猪血清中过氧化氢酶(CAT)、总超氧化物歧化酶(T-SOD)、谷胱甘肽过氧化物酶(GSH-Px)活性和总抗氧化能力(T-AOC)以及丙二醛(MDA)含量。

1.4.5 初乳成分和游离氨基酸含量测定

取上述初乳于4 ℃解冻后分为2份:一份于4 ℃下8 000×g离心30 min分离乳清,按推荐比例与10%磺基水杨酸溶液混合,4 ℃静置30 min后再次8 000×g离心10 min,上清液经注射器滤膜过滤至玻璃样品瓶,采用日立L-8900全自动氨基酸分析仪测定乳清游离氨基酸含量;另一份采用全自动乳成分分析仪(Funke Gerber,Lacto Star,德国)测定初乳脂肪、蛋白质、真蛋白质、乳糖、干物质和非脂乳固形物含量。

1.4.6 胎盘功能相关基因表达测定

采集初乳后,待对应母猪娩出胎盘,取与同窝仔猪平均体重接近的仔猪所对应的脐带附着处胎盘区域,在距脐带基部4~5 cm处取3 cm×3 cm组织块,置于冻存管中,经液氮速冻后转移至-80 ℃保存。
胎盘样品在液氮中磨碎后取50 mg,采用TRIzol试剂(Thermo Fisher)提取样品的总RNA。采用Nano Drop 2000分光光度计测定总RNA浓度与质量。取1 μg RNA合成cDNA,以β-肌动蛋白(β-actin)为内参基因,采用SYBR Green(TaKaRa)进行10 μL体系实时荧光定量PCR(RT-qPCR),采用2-ΔΔCt法分析数据,引物序列见表3
表3 引物序列

Table 3 Primer sequences

基因 Genes 引物序列 Primer sequence (5'—3')
β-肌动蛋白 β-actin F:GGCGCCCAGCACGAT
R:CCGATCCACACGGAGTACTTG
过氧化氢酶 CAT F:CGAAGGCGAAGGTGTTTG
R:AGTGTGCGATCCATATCC
谷胱甘肽过氧化物酶 GSH-Px F:GCTCGGTGTATGCCTTCTCT
R:AGCGACGCTACGTTCTCAAT
超氧化物歧化酶1 SOD1 F:AGGGCACCATCTACTTCGAG
R:GCACTGGTACAGCCTTGTGT
超氧化物歧化酶2 SOD2 F:TGCAAGGAACAACAGGTCTGG
R:TGATGTACTCGGTGTGAGGC
血管内皮生长因子-A VEGF-A F:CGAGACCCTGGTGGACATCT
R:CTCCAGACCTTCGTCGTTGC
可溶性fms样酪氨酸激酶1 sFLT1 F:ACAGCATCCGCAAGCAGAAGAC
R:TGGCTCGGCAGGCATAGGTG
溶质载体家族1成员1 SLC1A1 F:TCCACTCCATTGTTATTCTGCC
R:TTGTCCACCTGGTTCTTCTCTTC
溶质载体家族1成员4 SLC1A4 F:AGACCTCTCTTTGATCCTGGC
R:TGTTTCCTCCTCTGATTTGCA
溶质载体家族7成员1 SLC7A1 F:GCCTGAGAGCAAGACCAAAC
R:GCCGTAGCCGAAGTAGATGA
中性及碱性氨基酸转运蛋白 rBAT F:TTTCCGCAATCCTGATGTTC
R:GGGTCTTATTCACTTGGGTC
L型氨基酸转运蛋白1 LAT1 F:GCCCATTGTCACCATCATC
R:GAGCCCACAAAGAAAAGC
L型氨基酸转运蛋白2 LAT2 F:TCGCTGTGACTTTTGGAGAGA
R:CGGGAGGAGGTGAAGAGG
4F2重链蛋白 4F2HC F:CTCGAACCCACCAAGGAC
R:GAGGTGAGACGGCACAGAG
钠依赖性中性氨基酸转运蛋白1 SNAT1 F:AAGAACCTGGGCTATCTCGG
R:TGTTGCGTTAGGACTCGTTG
葡萄糖转运蛋白1 GLUT1 F:GATGAAGGAGGAGTGCCG
R:CAGCACCACGGCGATGAGGAT
脂肪酸转运蛋白1 FATP1 F:GGCAACAGACGTGATCTATGAC
R:AGCGGCTGGCTGAAAACT
脂肪酸转位酶 CD36 F:GGACTCATTGCTGGTGCTGT
R:GTCTGTAAACTTCCGTGCCTGT
脂肪酸结合蛋白1 FABP1 F:AGAAGGGGAAGGACATCA
R:CAGTCAGGGTCTCCATCTCACA

1.5 数据统计分析

试验数据经整理后采用SAS 9.4软件进行分析。在分析繁殖性能指标时,以每头母猪为试验单位,将组别设为固定效应,配种批次设为随机效应:产仔数等离散型计数数据用GLIMMIX程序分析,体重和背膘厚度等连续型数据用MIXED程序分析。对交叉寄养后的起始指标等变量,若存在显著性则进行协方差校正分析。在使用MIXED程序分析生化指标前,先用UNIVARIATE程序检查数据的正态性和方差齐性:若不符合,则先将数据进行log10转换,转换后符合正态分布则采用MIXED程序分析,仍不符合则采用Wilcoxon秩和检验。结果数据均以平均值和均值标准误(SEM)表示。P<0.05视为差异显著,0.05≤P<0.10视为差异有显著趋势。

2 结果

2.1 LSE对母猪繁殖性能的影响

表4表5可知,与CON组相比,LSE组窝均死胎数和木乃伊胎数均显著降低(P<0.05),母猪ADFI以及仔猪平均断奶重和ADG显著提高(P<0.05);此外,LSE组新生窝重(P=0.053)以及交叉寄养后窝带仔数(P=0.076)和窝重(P=0.060)有提高趋势,背膘损失有降低趋势(P=0.075)。
表4 LSE对母猪产仔性能的影响

Table 4 Effects of LSE on litter performance of sows

项目
Items
CON组
CON group
LSE组
LSE group
均值标准误
SEM
P
P-value
母猪数 Number of sows/头 609 612
总产仔数 Total litter size/头 14.33 14.35 0.214 0.990
活产仔数 Number of alive born/头 13.12 13.46 0.191 0.107
健仔数 Number of healthy litter size/头 12.54 12.86 0.183 0.123
死胎数 Number of stillbirths/头 0.95a 0.71b 0.072 <0.001
木乃伊胎数 Number of mummy fetuses/头 0.26a 0.17b 0.031 0.001
畸形仔数 Number of malformed piglets/头 0.21 0.18 0.032 0.422
平均初生重 Average birth weight/kg 1.45 1.45 0.014 0.890
新生窝重 Birth litter weight/kg 18.71 19.22 0.263 0.053

同行数据肩标无字母表示差异不显著(P>0.05),不同小写字母表示差异显著(P<0.05)。下表同。

In the same row, values with no letter superscripts mean no significant difference (P>0.05), while with different small letter superscripts mean significant difference (P<0.05). The same as below.

表5 LSE对母猪哺乳性能的影响

Table 5 Effects of LSE on lactation performance of sows

项目
Items
CON组
CON group
LSE组
LSE group
均值标准误
SEM
P
P-value
断奶窝数 Weaned litters/窝 557 558
断奶天数 Weaning days/d 18.43 18.26 0.169 0.594
母猪平均采食量 ADFI of sows/kg 5.97b 6.12a 0.027 <0.001
仔猪平均日增重 ADG of piglets/g 217.98b 226.77a 2.996 0.005
背膘厚度 Backfat thickness/mm
产前背膘厚度 Pre-farrowing backfat thickness 17.28 17.08 0.182 0.381
断奶背膘厚度 Weaning backfat thickness 12.96 13.03 0.133 0.489
背膘损失 Backfat losses 4.37 4.14 0.152 0.075
交叉寄养后 After cross-fostering
窝带仔数 Litter size/头 12.27 12.55 0.158 0.076
窝重 Litter weight/kg 18.53 19.06 0.282 0.060
平均体重 Mean weight/kg 1.52 1.53 0.017 0.525
断奶 Weaned
平均窝断奶数 Piglets weaned per litter/头 11.90 11.84 0.077 0.791
窝重 Litter weight/kg 64.44 65.08 0.883 0.320
平均断奶重 Average weaning weight/kg 5.36b 5.51a 0.066 0.002

2.2 LSE对母猪血清指标的影响

表6可知,与CON组相比,LSE组母猪妊娠110 d血清MDA含量显著降低(P<0.05),哺乳14 d血清CAT活性显著提高(P<0.05);2组间妊娠70 d血清抗氧化指标无显著差异(P>0.05)。
表6 LSE对母猪血清抗氧化指标的影响

Table 6 Effects of LSE on serum antioxidant indices of sows (n=20)

项目
Items
CON组
CON group
LSE组
LSE group
均值标准误
SEM
P
P-value
妊娠70 d Gestation at 70 days
总抗氧化能力 T-AOC/(U/mL) 0.65 0.68 0.031 0.216
过氧化氢酶 CAT/(U/mL) 3.69 3.81 0.709 0.751
谷胱甘肽过氧化物酶 GSH-Px/(U/mL) 2 577.04 2 769.35 123.577 0.119
总超氧化物歧化酶 T-SOD/(U/mL) 16.16 16.37 0.715 0.758
丙二醛 MDA/(nmol/mL) 4.57 4.69 0.542 0.835
妊娠110 d Gestation at 110 days
总抗氧化能力 T-AOC/(U/mL) 0.62 0.64 0.034 0.448
过氧化氢酶 CAT/(U/mL) 4.31 5.02 1.005 0.597
谷胱甘肽过氧化物酶 GSH-Px/(U/mL) 1 832.20 1 859.27 75.584 0.722
总超氧化物歧化酶 T-SOD/(U/mL) 17.32 18.07 0.729 0.308
丙二醛 MDA/(nmol/mL) 3.57a 2.82b 0.402 0.023
哺乳14 d Lactation for 14 days
总抗氧化能力 T-AOC/(U/mL) 0.65 0.68 0.046 0.775
过氧化氢酶 CAT/(U/mL) 3.71b 5.09a 0.670 0.047
谷胱甘肽过氧化物酶 GSH-Px/(U/mL) 1 963.66 2 132.38 115.442 0.126
总超氧化物歧化酶 T-SOD/(U/mL) 17.12 17.92 0.781 0.334
丙二醛 MDA/(nmol/mL) 2.90 3.41 0.337 0.135
表7表8可知,与CON组相比,LSE组母猪妊娠70 d血清IL-2含量以及哺乳14 d血清IL-6含量显著降低(P<0.05),妊娠110 d血清IgG含量显著提高(P<0.05)。
表7 LSE对母猪血清细胞因子含量的影响

Table 7 Effects of LSE on serum cytokine contents of sows (n=20)

项目
Items
CON组
CON group
LSE组
LSE group
均值标准误
SEM
P
P-value
妊娠70 d Gestation at 70 days
白细胞介素-2 IL-2 34.13a 14.16b 7.169 0.030
白细胞介素-6 IL-6 89.14 77.67 29.019 0.772
肿瘤坏死因子-α TNF-α 23.45 17.33 6.433 0.369
妊娠110 d Gestation at 110 days
白细胞介素-2 IL-2 18.75 16.67 2.479 0.447
白细胞介素-6 IL-6 49.22 44.94 7.243 0.560
肿瘤坏死因子-α TNF-α 10.24 12.99 2.108 0.217
哺乳14 d Lactation for 14 days
白细胞介素-2 IL-2 21.17 22.09 3.419 0.855
白细胞介素-6 IL-6 60.47a 45.63b 6.457 0.044
肿瘤坏死因子-α TNF-α 10.40 11.53 1.524 0.376
表8 LSE对母猪血清免疫球蛋白含量的影响

Table 8 Effects of LSE on serum immunoglobulin contents of sows (n=20)

项目
Items
CON组
CON group
LSE组
LSE group
均值标准误
SEM
P
P-value
妊娠70 d Gestation at 70 days
免疫球蛋白A IgA 41.37 34.23 7.330 0.355
免疫球蛋白G IgG 3.62 2.70 1.281 0.507
免疫球蛋白M IgM 1.48 1.45 0.234 0.957
妊娠110 d Gestation at 110 days
免疫球蛋白A IgA 35.57 41.87 4.405 0.165
免疫球蛋白G IgG 1.20b 1.81a 0.197 0.011
免疫球蛋白M IgM 1.42 1.18 0.197 0.240
哺乳14 d Lactation for 14 days
免疫球蛋白A IgA 34.10 36.43 2.931 0.521
免疫球蛋白G IgG 1.33 1.32 0.169 0.964
免疫球蛋白M IgM 1.86 2.01 0.452 0.516

2.3 LSE对母猪初乳品质的影响

表9表10可知,与CON组相比,LSE组母猪初乳中脂肪、蛋白质和真蛋白质含量显著提高(P<0.05),初乳中干物质含量有提高趋势(P=0.064);2组间初乳中免疫球蛋白含量无显著差异(P>0.05)。此外,与CON组相比,LSE组初乳中组氨酸(His)、异亮氨酸(Ile)、蛋氨酸(Met)、苯丙氨酸(Phe)和丝氨酸(Ser)含量显著提高(P<0.05),初乳中甘氨酸(Gly)含量有提高趋势(P=0.075)。
表9 LSE对母猪初乳成分和免疫球蛋白含量的影响

Table 9 Effects of LSE on colostrum component and immunoglobulin contents of sows (n=20)

项目
Items
CON组
CON group
LSE组
LSE group
均值标准误
SEM
P
P-value
乳成分 Milk components/%
脂肪 Fat 4.50b 5.46a 0.266 <0.001
蛋白质 Protein 16.24b 17.78a 0.678 0.032
真蛋白质 True protein 14.90b 16.36a 0.643 0.030
乳糖 Lactose 3.33 3.16 0.119 0.158
干物质 Dry matter 30.20 31.91 1.083 0.064
非脂乳固形物 Non-fat milk solids 25.85 26.75 0.826 0.129
免疫球蛋白 Immunoglobulins/(mg/L)
免疫球蛋白A IgA 140.35 148.81 6.712 0.196
免疫球蛋白G IgG 4.77 4.58 0.154 0.163
免疫球蛋白M IgM 3.62 3.74 0.140 0.275
表10 LSE对母猪初乳游离氨基酸含量的影响

Table 10 Effects of LSE on colostrum free amino acid contents of sows (n=20)

项目
Items
CON组
CON group
LSE组
LSE group
均值标准误
SEM
P
P-value
必需氨基酸 Essential amino acids
色氨酸 Trp 6.01 5.11 0.853 0.310
异亮氨酸 Ile 0.79b 1.13a 0.114 0.001
亮氨酸 Leu 1.89 2.38 0.532 0.443
赖氨酸 Lys 1.48 1.42 0.171 0.939
蛋氨酸 Met 0.19b 0.32a 0.060 0.035
苯丙氨酸 Phe 6.45b 7.97a 1.169 0.035
苏氨酸 Thr 0.84 0.72 0.173 0.481
缬氨酸 Val 1.81 1.48 0.195 0.183
精氨酸 Arg 2.98 2.80 0.336 0.633
组氨酸 His 0.20b 0.67a 0.153 0.002
非必需氨基酸 Non-essential amino acids
丙氨酸 Ala 2.26 2.41 0.252 0.370
天冬氨酸 Asp 1.58 1.73 0.147 0.295
半胱氨酸 Cys 0.27 0.35 0.057 0.575
谷氨酸 Glu 5.78 6.12 0.629 0.273
甘氨酸 Gly 1.56 1.87 0.218 0.075
脯氨酸 Pro 3.85 3.79 0.661 0.794
丝氨酸 Ser 2.52b 3.49a 0.440 0.047
酪氨酸 Tyr 1.18 1.11 0.269 0.499

2.4 LSE对母猪胎盘功能相关基因表达的影响

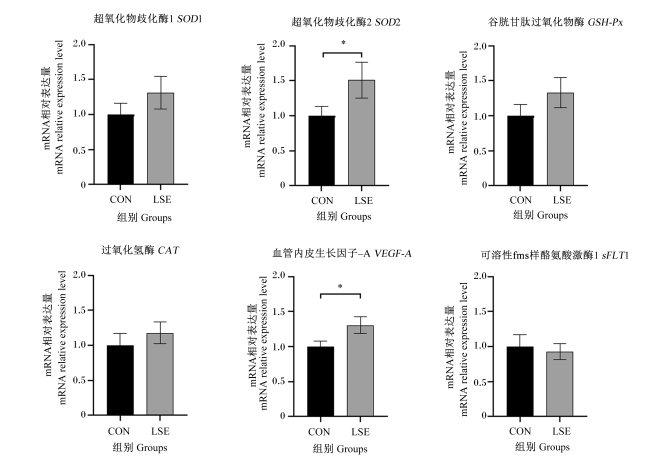
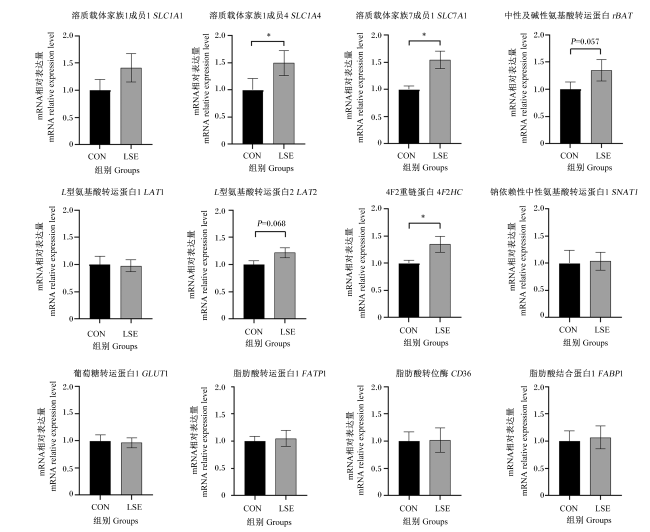
图1所示,与CON组相比,LSE组母猪胎盘超氧化物歧化酶2(SOD2)和血管内皮生长因子-A(VEGF-A)mRNA相对表达量显著提高(P<0.05)。如图2所示,与CON组相比,LSE组母猪胎盘溶质载体家族1成员4(SLC1A4)、溶质载体家族7成员1(SLC7A1)和4F2重链蛋白(4F2HC)mRNA相对表达量显著提高(P<0.05),胎盘中性及碱性氨基酸转运蛋白(rBAT,P=0.057)和L型氨基酸转运蛋白2(LAT2,P=0.068)mRNA相对表达量有提高趋势。
图1 LSE对母猪胎盘抗氧化及血管生成基因表达的影响

“*”表示2组间显著差异(P<0.05)。图2同。

Fig.1 Effects of LSE on placental antioxidant and angiogenesis gene expression of sows (n=20)

“*” mean significant difference between 2 groups (P<0.05). The same as Fig.2.

图2 LSE对母猪胎盘营养物质转运基因表达的影响

Fig.2 Effects of LSE on placental nutrient transporter gene expression of sows (n=20)

3 讨论

3.1 LSE对母猪繁殖性能的影响

母猪繁殖性能直接决定猪场的经济效益和产业可持续性。刘燕等[13]在母猪妊娠90 d至断奶的饲粮中添加750 mg/kg LSE提高了活产仔数、健仔数、断奶窝重及断奶存活率,并降低了仔猪腹泻率和母猪背膘损失。He等[14]在母猪妊娠80 d至断奶的饲粮中添加1 000 mg/kg LSE显著提高了仔猪生长性能及断奶存活率。Wang等[15]研究显示,在配种至断奶期间饲粮中添加500 mg/kg LSE显著提高了总产仔数、ADFI、平均断奶重及仔猪存活率;然而,死胎数也随之提高,提示LSE干预时机和剂量可能影响分娩结局。
本研究结果进一步支持了LSE在改善母猪采食量和仔猪生长性能方面的积极作用。同时,在妊娠期补充低剂量的LSE(150 mg/kg)能减少死胎数和木乃伊胎数,说明妊娠期补充较低剂量的LSE可能更有利于优化分娩结果。因此,后续研究需系统评估LSE的剂量和干预时机,以明确其最佳应用策略。

3.2 LSE对母猪血清指标的影响

母猪健康状态是胎儿正常发育及维持泌乳功能的基础。在妊娠及哺乳期,氧化应激和免疫失衡会对母猪及胎儿的健康造成负面影响[16]。T-AOC、CAT、T-SOD、GSH-Px及MDA是反映机体抗氧化能力的重要指标。T-AOC反映机体抗氧化物质和抗氧化酶的总体作用,是评价抗氧化能力的综合指标;CAT、T-SOD、GSH-Px是机体主要的抗氧化酶,能有效消除机体的ROS;MDA是脂质过氧化的终产物,可反映机体的氧化损伤程度。IL-2、IL-6和TNF-α是机体主要的促炎细胞因子,参与炎症反应的启动和免疫应答的调节,并与免疫球蛋白(IgA、IgG和IgM)共同参与机体免疫防御和稳态维持。Wan等[11]研究表明,500 mg/kg LSE可显著降低肠炎小鼠血清IL-6、TNF-α、白细胞介素-1β(IL-1β)、白细胞介素-12、MDA和ROS含量,并提高血清白细胞介素-10含量以及超氧化物歧化酶(SOD)和CAT活性。He等[14]发现,1 000 mg/kg LSE可提高母猪分娩当天及哺乳14 d血清T-AOC及CAT活性,并降低血清IL-6和TNF-α含量。
本试验结果显示,LSE能够改善母猪血清抗氧化指标以及炎症因子和免疫球蛋白含量,这可能与其主要活性成分(绿原酸和黄芩苷)的作用有关。Chen等[17]发现,绿原酸能抑制Toll样受体4(TLR4)/核因子-κB(NF-κB)炎症通路和激活核因子E2相关因子2(Nrf2)/血红素氧合酶-1(HO-1)抗氧化通路,降低肠道细胞因子IL-1βIL-6和TNF-α的表达。Liang等[18]的研究结果表明,黄芩苷能减轻过氧化氢(H2O2)对IPEC-J2细胞造成的氧化损伤,并调控单磷酸腺苷活化蛋白激酶(AMPK)/Nrf2信号通路提高SOD、CAT和GSH-Px活性。综上可知,饲粮添加LSE可缓解母猪氧化应激,促进免疫稳态,为优化繁殖性能提供生理基础。

3.3 LSE对母猪初乳品质的影响

初乳是新生仔猪获取营养和免疫物质的主要来源,对仔猪的存活与发育至关重要。Wang等[19]研究发现,妊娠后期补充1 000 mg/kg金银花和黄芩混合提取物可提高初乳中脂肪、蛋白质以及IgA和IgG含量;Fang等[20]在母猪妊娠后期饲粮中添加500 mg/kg LSE显著提高了初乳IgA和IgM含量。本研究结果显示,LSE显著提高了母猪初乳脂肪、蛋白质及其必需氨基酸(His、Ile、Met、Phe)含量。脂肪为仔猪提供能量并维持体温,蛋白质为组织生长与免疫构建提供原料;His是仔猪早期血红蛋白合成的关键前体物质;Ile和Met为肌肉蛋白合成原料并调控蛋白质合成;Phe为神经系统发育及酪氨酸等非必需氨基酸合成提供前体。这表明在本试验条件下,LSE的作用主要体现在提升初乳营养密度而非免疫成分,这可能与试验动物的遗传背景[21]、LSE剂量及干预时间有关。未来需开展系统研究,以明确LSE对初乳免疫指标的调控规律。
其他研究也支持了LSE对乳品质的积极作用。Ma等[22]在饲粮中添加山银花提取物提高了牛奶的蛋白质、乳糖和脂肪含量。Dai等[23]发现,黄芩提取物可改善奶牛健康,提高产奶量及乳品质。这些效果可能与LSE活性成分对乳腺功能的调节相关:绿原酸可通过抑制NF-κB磷酸化及促炎细胞因子的表达,减轻乳腺炎症反应[24];黄芩类黄酮具有类雌激素的作用,可促进乳腺发育[25];同时,黄芩苷可通过调控脂质代谢过程以及上调乳脂合成相关基因[磷脂酶A2 ⅫA组(PLA2G12A)、甘油磷酸胆碱磷酸二酯酶1(GPCPD1)]及乳糖生物合成相关基因[脑膜瘤表达抗原5(MGEA5)、Ras同源家族成员Q(RHOQ)]表达,增强乳腺上皮细胞的增殖以及乳脂、乳糖的合成能力[26]。因此,LSE可能通过维持乳腺健康、促进乳腺发育及增强乳汁合成能力等途径,改善初乳品质,为仔猪早期生长提供物质保障。

3.4 LSE对母猪胎盘功能相关基因表达的影响

胎盘是母胎物质交换的关键器官,其血管网络与转运蛋白共同构成了营养物质转运的主要通道[27]。胎盘线粒体丰富,氧化代谢活跃,因此易受氧化应激影响。已有研究表明,氧化应激能抑制胎盘血管发育,干扰营养物质转运,导致不良的妊娠结局[28]。补充具抗氧化功能的膳食成分可改善胎盘功能,为胎儿发育提供有利条件[29]。Cao等[30]在妊娠后期饲粮中补充紫檀芪可减轻母猪氧化应激和炎症反应,上调胎盘脂肪酸转运蛋白1(FATP1)和葡萄糖转运蛋白3(GLUT3)的表达,促进脂肪酸和葡萄糖转运。Zhou等[31]研究发现,妊娠中期至晚期补充叶酸和维生素B12能降低胎盘MDA含量,增加胎盘血管密度,上调钠依赖性中性氨基酸转运蛋白2(SNAT2)的表达,增强胎盘氨基酸转运能力。
本研究结果显示,LSE显著上调了母猪胎盘SOD2、VEGF-ASLC1A4、SLC7A1和4F2HC的表达,提示LSE可能对胎盘功能具有积极作用。SOD2是线粒体关键抗氧化酶,其表达上调有助于减少ROS泄漏,缓解氧化损伤;VEGF-A是胎盘血管生成的核心调控因子[32],其表达上调表明胎盘血管生成可能得到改善;SLC1A4和SLC7A1分别负责中性和阳离子氨基酸的转运,4F2HC与L型氨基酸转运蛋白1(LAT1)/LAT2形成异源二聚体,负责必需中性氨基酸的转运。这些基因的共同表达上调提示LSE可能增强胎盘的氨基酸转运能力。综上可知,LSE可能通过增强胎盘抗氧化能力,促进血管生成以及提高氨基酸转运能力,从而优化胎盘功能,为胎儿正常发育提供支持。
综上所述,本研究强调了LSE在改善母猪分娩结局和胎盘功能方面的作用,未来研究可以进一步探索不同剂量和干预阶段对母猪繁殖性能的最佳应用策略,以实现更好的经济效益和产业可持续性。

4 结论

在规模化养猪生产模式下,饲粮添加LSE可改善母猪血清抗氧化和免疫状态,上调胎盘功能相关基因表达,降低死胎数和木乃伊胎数,提高母猪哺乳期ADFI及初乳品质,并提高仔猪ADG和平均断奶重。
[1]
KOKETSU Y, TANI S, IIDA R. Factors for improving reproductive performance of sows and herd productivity in commercial breeding herds[J]. Porcine Health Management, 2017, 3(1):1-10.

DOI

[2]
KIM S W, WEAVER A C, SHEN Y B, et al. Improving efficiency of sow productivity:nutrition and health[J]. Journal of Animal Science and Biotechnology, 2013, 4(1):26.

DOI

[3]
JOÓ J G, SULYOK E, BÓDIS J, et al. Disrupted balance of the oxidant-antioxidant system in the pathophysiology of female reproduction:oxidative stress and adverse pregnancy outcomes[J]. Current Issues in Molecular Biology, 2023, 45(10):8091-8111.

DOI

[4]
WANG M W, HUANG H J, HU Y P, et al. Effects of dietary supplementation with herbal extract mixture on growth performance,organ weight and intestinal morphology in weaning piglets[J]. Journal of Animal Physiology and Animal Nutrition, 2020, 104(5):1462-1470.

DOI

[5]
LIU M J, CHEN R, WANG T Z, et al. Dietary Chinese herbal mixture supplementation improves production performance by regulating reproductive hormones,antioxidant capacity,immunity,and intestinal health of broiler breeders[J]. Poultry Science, 2024, 103(1):103201.

DOI

[6]
LI Y K, LI W, FU C M, et al. Lonicerae japonicae flos and Lonicerae flos:a systematic review of ethnopharmacology,phytochemistry and pharmacology[J]. Phytochemistry Reviews, 2020, 19(1):1-61.

DOI

[7]
WANG W L, LI F N, DUAN Y H, et al. Effects of dietary chlorogenic acid supplementation derived from Lonicera macranthoides Hand-Mazz on growth performance,free amino acid profile,and muscle protein synthesis in a finishing pig model[J]. Oxidative Medicine and Cellular Longevity, 2022,2022(1):6316611.

[8]
WU J, QIU Y Q, TIAN M, et al. Flavonoids from Scutellaria baicalensis:promising alternatives for enhancing swine production and health[J]. International Journal of Molecular Sciences, 2025, 26(8):3703.

DOI

[9]
HUANG C Y, WANG Y B, HE X, et al. The involvement of NF-κB/P38 pathways in Scutellaria baicalensis extracts attenuating of Escherichia coli K88-induced acute intestinal injury in weaned piglets[J]. British Journal of Nutrition, 2019, 122(2):152-161.

DOI

[10]
GAO R, LIN Y N, LIANG G, et al. Comparative pharmacokinetic study of chlorogenic acid after oral administration of Lonicerae japonicae flos and Shuang-huang-lian in normal and febrile rats[J]. Phytotherapy Research, 2014, 28(1):144-147.

DOI

[11]
WAN F, WANG M Y, ZHONG R Q, et al. Supplementation with Chinese medicinal plant extracts from Lonicera hypoglauca and Scutellaria baicalensis mitigates colonic inflammation by regulating oxidative stress and gut microbiota in a colitis mouse model[J]. Frontiers in Cellular and Infection Microbiology, 2021, 11:798052.

DOI

[12]
LI S, ZHANG K Y, BAI S P, et al. Extract of Scutellaria baicalensis and Lonicerae flos improves growth performance,antioxidant capacity,and intestinal barrier of yellow-feather broiler chickens against Clostridium perfringens[J]. Poultry Science, 2024, 103(7):103718.

DOI

[13]
刘燕, 朱金凤. 山银花和黄芩提取物对母猪生产性能、繁殖性能及免疫机能的影响[J]. 饲料研究, 2021, 44(8):22-25.

LIU Y, ZHU J F. Effect of Lonicera flos extract and Scutellariae radix extract on production performance,reproductive performance and immune function of sows[J]. Feed Research, 2021, 44(8):22-25. (in Chinese)

[14]
HE Z Z, LI C Y, XIAO X, et al. Effects of extracts of Scutellaria baicalensis and Lonicerae flos on reproductive performance,milk quality and serum indexes in sows and growth performance in suckling piglets[J]. Livestock Science, 2023, 275:105295.

DOI

[15]
WANG M, YIN S N, CHENG J H, et al. Maternal supplementation of Lonicera flos and Scutellaria baicalensis mixed extracts improve reproduction performance and metabolic health through modulating gut microbiota during pregnancy[J]. BMC Veterinary Research, 2025, 21(1):305.

DOI

[16]
VELEZ C, WILLIAMSON D, CÁNOVAS M L, et al. Changes in immune response during pig gestation with a focus on cytokines[J]. Veterinary Sciences, 2024, 11(1):50.

DOI

[17]
CHEN J L, YU B, CHEN D W, et al. Chlorogenic acid improves intestinal barrier functions by suppressing mucosa inflammation and improving antioxidant capacity in weaned pigs[J]. The Journal of Nutritional Biochemistry, 2018, 59:84-92.

DOI

[18]
LIANG J H, ZHOU Y, CHENG X Y, et al. Baicalin attenuates H2O2-induced oxidative stress by regulating the AMPK/Nrf2 signaling pathway in IPEC-J2 cells[J]. International Journal of Molecular Sciences, 2023, 24(11):9435.

DOI

[19]
WANG L, HUO B, HUANG L J, et al. Dietary supplementation with a mixture of herbal extracts during late gestation and lactation improves performance of sows and nursing piglets through regulation of maternal metabolism and transmission of antibodies[J]. Frontiers in Veterinary Science, 2022, 9:1026088.

DOI

[20]
FANG C K, TANG X P, ZHANG Q T, et al. Effects of dietary Lonicera flos and Sucutellaria baicalensis mixed extracts supplementation on reproductive performance,umbilical cord blood parameters,colostrum ingredients and immunoglobulin contents of late-pregnant sows[J]. Animals, 2024, 14(14):2054.

DOI

[21]
AMATUCCI L, LUISE D, CORREA F, et al. Importance of breed,parity and sow colostrum components on litter performance and health[J]. Animals, 2022, 12(10):1230.

DOI

[22]
MA F T, LIU J H, LI S L, et al. Effects of Lonicera japonica extract with different contents of chlorogenic acid on lactation performance,serum parameters,and rumen fermentation in heat-stressed Holstein high-yielding dairy cows[J]. Animals, 2024, 14(8):1252.

DOI

[23]
DAI D W, DONG C X, KONG F L, et al. Dietary supplementation of Scutellariae radix flavonoid extract improves lactation performance in dairy cows by regulating gastrointestinal microbes,antioxidant capacity and immune function[J]. Animal Nutrition, 2025, 20:499-508.

DOI

[24]
GAO R F, YANG H D, JING S F, et al. Protective effect of chlorogenic acid on lipopolysaccharide-induced inflammatory response in dairy mammary epithelial cells[J]. Microbial Pathogenesis, 2018, 124:178-182.

DOI PMID

[25]
CHEN W Z, WEI W, YU L Y, et al. Baicalin promotes mammary gland development via steroid-like activities[J]. Frontiers in Cell and Developmental Biology, 2021, 9:682469.

DOI

[26]
WANG C W, CHEN L Q, MA S J, et al. Biological effects of baicalin on the ovine mammary cells and regulatory mechanism study by transcriptomic analysis[J]. Genomics, 2025, 117(2):111012.

DOI

[27]
LAGER S, POWELL T L. Regulation of nutrient transport across the placenta[J]. Journal of Pregnancy, 2012, 2012(1):179827.

[28]
YANG X Z, HU R Z, SHI M K, et al. Placental malfunction,fetal survival and development caused by sow metabolic disorder:the impact of maternal oxidative stress[J]. Antioxidants, 2023, 12(2):360.

DOI

[29]
BAI G D, JIANG X, QIN J W, et al. Perinatal exposure to glyphosate-based herbicides impairs progeny health and placental angiogenesis by disturbing mitochondrial function[J]. Environment International, 2022, 170:107579.

DOI

[30]
CAO M M, BAI L Y, WEI H Y, et al. Dietary supplementation with pterostilbene activates the PI3K-AKT-mTOR signalling pathway to alleviate progressive oxidative stress and promote placental nutrient transport[J]. Journal of Animal Science and Biotechnology, 2024, 15(1):133.

DOI PMID

[31]
ZHOU R, ZHE L, CHEN F Y, et al. Maternal folic acid and vitamin B12 supplementation during medium to late gestation promotes fetal development via improving placental antioxidant capacity,angiogenesis and amino acid transport[J]. Journal of the Science of Food and Agriculture, 2024, 104(5):2832-2841.

DOI

[32]
WISZNIAK S, SCHWARZ Q. Exploring the intracrine functions of VEGF-A[J]. Biomolecules, 2021, 11(1):128.

DOI

文章导航

/