研究论文

快大型肉鸭剩余采食量差异影响腹脂沉积的转录组解析

  • 刘宏祥 , 1 ,
  • 褚新星 2 ,
  • 贾立英 2 ,
  • 邹可欣 2 ,
  • 王逸飞 1 ,
  • 宋卫涛 1 ,
  • 陶志云 1 ,
  • 王志成 1 ,
  • 徐文娟 1 ,
  • 顾昊天 1 ,
  • 李慧芳 1 ,
  • 朱春红 1 ,
  • 章双杰 , 1, *
展开
  • 1 江苏省家禽科学研究所, 扬州 225125
  • 2 山东和康源生物育种股份有限公司, 济南 250101
*章双杰,研究员,E-mail:

刘宏祥(1985—),男,江苏仪征人,副研究员,硕士,从事家禽育种及养殖技术研究。E-mail:

收稿日期: 2025-07-14

  网络出版日期: 2026-03-16

基金资助

山东省重点研发计划(2024LZGCQY002)

江苏省揭榜挂帅项目(JBGS[2021]030)

江苏省揭榜挂帅项目(JGBS[2021]111)

云南省重大科技专项计划(202502AE090004)

济南市揭榜挂帅项目(202428069)

江苏省前沿技术研发计划(现代农业)(BF2025306)

Transcriptomic Analysis of Impact of Residual Feed Intake Variation on Abdominal Fat Deposition in Fast-Growing Meat Ducks

  • LIU Hongxiang , 1 ,
  • CHU Xinxing 2 ,
  • JIA Liying 2 ,
  • ZOU Kexin 2 ,
  • WANG Yifei 1 ,
  • SONG Weitao 1 ,
  • TAO Zhiyun 1 ,
  • WANG Zhicheng 1 ,
  • XU Wenjuan 1 ,
  • GU Haotian 1 ,
  • LI Huifang 1 ,
  • ZHU Chunhong 1 ,
  • ZHANG Shuangjie , 1, *
Expand
  • 1 Jiangsu Institute of Poultry Sciences, Yangzhou 225125, China
  • 2 Shandong Hekangyuan Group Co., Ltd., Ji’nan 250101, China
*professor, E-mail:

Received date: 2025-07-14

  Online published: 2026-03-16

摘要

本研究旨在比较低剩余采食量(LRFI)与高剩余采食量(HRFI)快大型肉鸭肝脏、腹脂表型以及转录表达谱的差异,探究剩余采食量(RFI)负向调控对肉鸭腹脂沉积的影响机制。选用200只快大型肉鸭公鸭作为候选群体,于15~35日龄期间在个体笼中饲养并测定个体的RFI。按照RFI从高到低排列后,筛选10只RFI最高的个体组成高RFI组(H-RFI组),10只RFI最低的个体组成低RFI组(L-RFI组)。对筛选出的个体禁食12 h,测定35日龄体重后屠宰,称取肝脏重、腹脂重并计算肝脏指数和腹脂指数;每组采集4只公鸭的肝脏和腹脂组织提取总RNA,构建文库后进行转录组测序。采用DESeq2软件鉴定2组间肝脏和腹脂组织的差异表达基因(DEGs),并利用clusterProfiler软件包对DEGs进行KEGG通路富集分析以及对所有基因进行基因集富集分析(GSEA)-KEGG通路富集分析,筛选与腹脂沉积相关的通路及候选基因。结果显示:1)L-RFI组与H-RFI组间35日龄体重、肝脏重、肝脏指数均无显著差异(P>0.05),但L-RFI组的腹脂重和腹脂指数均极显著低于H-RFI组(P<0.01)。2)以H-RFI组为对照,在肝脏中鉴定出24个上调的DEGs和22个下调的DEGs,在腹脂中鉴定出49个上调的DEGs和39个下调的DEGs,肝脏和腹脂间无共同的DEGs。3)KEGG通路富集分析显示,肝脏组织中的DEGs显著富集于癌症转录失调、内质网中的蛋白质加工和细胞外基质(ECM)-受体互作3条通路,腹脂组织中的DEGs显著富集于过氧化物酶体增殖物激活受体(PPAR)信号通路和ECM-受体互作2条通路,涉及的关键候选基因包括高迁移率组蛋白家族基因2(HMGA2)、核因子-κB抑制因子ζ(NFKBIZ)、锌指和BTB结构域蛋白16(ZBTB16)、生长抑制和DNA损伤修复基因家族45γ(GADD45G)、视黄酸X受体γ(RXRG)、脂蛋白脂肪酶(LPL)、脂肪酸去饱和酶(SCD)、葡萄糖激酶(GK)、载脂蛋白3(APOC3)、热休克蛋白家族A成员5(HSPA5)、血小板反应蛋白1(THBS1)、血小板反应蛋白2(THBS2)。上述结果表明,脂肪沉积差异可能是导致快大型肉鸭个体间RFI变异的关键因素;基因功能富集分析提示,癌症转录失调、内质网中的蛋白质加工、PPAR信号通路和ECM-受体互作这4个通路可能在肉鸭腹脂沉积调控中发挥重要作用。本研究结果可为通过RFI负向选择调控肉鸭腹脂率、提高饲料利用率的育种措施提供理论依据。

本文引用格式

刘宏祥 , 褚新星 , 贾立英 , 邹可欣 , 王逸飞 , 宋卫涛 , 陶志云 , 王志成 , 徐文娟 , 顾昊天 , 李慧芳 , 朱春红 , 章双杰 . 快大型肉鸭剩余采食量差异影响腹脂沉积的转录组解析[J]. 动物营养学报, 2026 , 38(3) : 1951 -1961 . DOI: 10.12418/CJAN2026.157

Abstract

This study aimed to compare differences in liver and abdominal fat phenotypes, as well as transcriptomic expression profiles, between low and high residual feed intake (RFI) fast-growing meat ducks, to investigate the mechanism underlying the negative regulation of RFI on abdominal fat deposition. A candidate population of 200 male fast-growing meat ducks was used. Ducks were housed in individual cages from 15 to 35 days of age, and individual RFI values were calculated. After ranking by RFI from high to low, the 10 individuals with the highest RFI were selected to form the high-RFI group (H-RFI group), and the 10 individuals with the lowest RFI were selected to form the low-RFI group (L-RFI group). The selected individuals were fasted for 12 h. After measuring the 35-day-old body weight, they were slaughtered. Liver weight and abdominal fat weight were measured, and the liver index and abdominal fat index were calculated. From each group, liver and abdominal fat tissues were collected from four ducks, total RNA was extracted, libraries were constructed, and transcriptome sequencing was performed. DESeq2 software was used to identify differentially expressed genes (DEGs) in liver and abdominal fat tissues between the two groups. The clusterProfiler package was employed for KEGG pathway enrichment analysis of DEGs and GSEA-KEGG pathway enrichment analysis of all genes to screen for pathways and candidate genes related to abdominal fat deposition. The results showed as follows: 1) no significant differences were observed in body weight at 35 days of age, liver weight, and liver index between the L-RFI and H-RFI groups (P>0.05). However, abdominal fat weight and abdominal fat index were extremely significantly lower in the L-RFI group compared with the H-RFI group (P<0.01). 2) Using the H-RFI group as the control, 24 up-regulated and 22 down-regulated DEGs were identified in the liver, while 49 up-regulated and 39 down-regulated DEGs were identified in the abdominal fat. No common DEGs were shared between the liver and abdominal fat. 3) KEGG pathway enrichment analysis revealed three significantly enriched pathways in the liver: transcriptional misregulation in cancer, protein processing in endoplasmic reticulum, and extracellular matrix (ECM)-receptor interaction, and two significantly enriched pathways in the abdominal fat: peroxisome proliferator-activated receptor (PPAR) signaling pathway and ECM-receptor interaction. Key candidate genes involved included high mobility group AT-hook 2 (HMGA2), nuclear factor-κB inhibitor zeta (NFKBIZ), zinc finger and BTB domain containing 16 (ZBTB16), growth arrest and DNA damage inducible gene 45 gamma (GADD45G), retinoid X receptor gamma (RXRG), lipoprotein lipase (LPL), stearoyl-CoA desaturase (SCD), glucokinase (GK), apolipoprotein C3 (APOC3), heat shock protein family A member 5 (HSPA5), thrombospondin 1 (THBS1), and thrombospondin 2 (THBS2). In conclusion, these results indicate that differences in fat deposition may be a key factor contributing to variation in RFI among individuals of fast-growing meat ducks. Gene functional enrichment analysis suggests that the transcriptional misregulation in cancer, protein processing in endoplasmic reticulum, PPAR signaling, and ECM-receptor interaction pathways may play important roles in regulating abdominal fat deposition in meat ducks. This study provides a theoretical foundation for breeding strategies aimed at reducing abdominal fat rate and improving feed utilization efficiency in meat ducks through negative selection for RFI.

脂肪沉积已成为当前肉鸭育种领域的核心关切问题。过度的脂肪沉积不仅损害种鸭繁殖性能、影响肉质,还会增加死亡率,给养鸭业造成巨大的经济损失。剩余采食量(RFI)是衡量动物饲料利用效率的常用指标,在牛[1]、羊[2]、猪[3-5]、兔[6]、鸡[7-8]等物种中的研究表明,对RFI进行负向选择(选育低RFI个体)不会影响个体的生长性能以及屠宰性能。研究发现,RFI对肉鸭的生长性能和产肉性能无显著影响,但显著影响腹脂率,即低RFI肉鸭的腹脂率显著低于高RFI肉鸭[9]。这一结果与小体型肉鸭[10]以及肉鸡[11]中的研究结果相似。这些研究结果部分揭示,对RFI的负向选择能够有效降低腹脂率,从而减少饲料浪费,提高饲料效率。
腹脂是鸭体内脂肪沉积的主要部位[12]。对于肌肉发育和生长而言,过量的脂肪常被视为加工废物[13]。脂肪沉积越多,意味着饲料与能量的浪费越严重,最终降低饲料效率[14]。脂肪沉积是一个涉及脂肪的合成、分解与转运的动态过程[15]。有研究指出,动物脂肪沉积的差异可解释5%~10%的RFI变异[16],这提示脂肪的沉积差异可能是导致RFI差异的关键因素。然而,通过RFI的选择降低腹脂率的具体遗传机制尚不清楚。本试验以快大型肉鸭为研究对象,通过估计RFI将试验群体分成不同RFI组,比较不同RFI组别间体重、肝脏和腹脂的表型差异,同时利用转录组测序技术比较分析肝脏、腹脂在不同RFI组别间的基因表达差异,以深入研究RFI影响腹脂沉积的遗传调控机制。

1 材料与方法

1.1 伦理声明

本试验中涉及到的动物饲养管理、屠宰方法均已获得江苏省家禽科学研究所实验动物福利与动物实验伦理审查委员会的批准(批准编号:JIPSAEC2023-012),并在其指导下进行。

1.2 试验动物群体构建

本试验所用快大型肉鸭为康源鸭的1个父系(H2系)。选择800枚H2系种蛋进行孵化,出雏后随机选择健康公雏200只进行饲养。1~14日龄为育雏期,采用大群饲养,14日龄末转入个体测定笼舍;15~35日龄为育成期,采用单笼饲养。1~3日龄饲喂破碎料,4~14日龄饲喂粒径为3.0 mm的颗粒料,15~35日龄饲喂粒径为4.5 mm的颗粒料,不同阶段基础饲粮组成及营养水平见表1。根据文献[9]的方法测定200只公鸭15~35日龄期间的RFI。RFI计算公式如下:
RFI=ADFI-[a+b1×$\frac{(\mathrm{B}{\mathrm{W}}_{15}+\mathrm{B}{\mathrm{W}}_{35}}{2}$)0.75+b2×ADG]。
式中:ADFI为平均日采食量;BW15为15日龄体重;BW35为35日龄体重;ADG为平均日增重;a为截距;b1和b2为偏回归系数。
表1 不同阶段基础饲粮组成及营养水平(风干基础)

Table 1 Composition and nutrient levels of basal diets at different stages (air-dry basis)

项目
Items
1~14日龄
1 to 14
days of age
15~35日龄
15 to 35
days of age
原料 Ingredients
玉米 Corn 59.50 61.00
豆粕 Soybean meal 29.60 29.00
Ⅰ级鱼粉 Grade Ⅰ fish meal 4.00 2.00
大豆油 Soybean oil 1.90 3.00
预混料 Premix1) 5.00 5.00
合计 Total 100.00 100.00
营养水平 Nutrient levels2)
代谢能 ME/(MJ/kg) 12.13 13.18
粗蛋白质 CP 20.01 18.77
钙 Ca 0.83 0.77
总磷 TP 0.69 0.65
有效磷 AP 0.42 0.39
赖氨酸 Lys 1.14 1.05
蛋氨酸 Met 0.49 0.46
蛋氨酸+胱氨酸 Met+Cys 0.81 0.76
苏氨酸 Thr 0.79 0.74
色氨酸 Trp 0.23 0.22

1)预混料为每千克饲粮提供The premix provided the following per kg of diets:VA 12 500 IU,VD3 4 125 IU,VE 15 IU,VK 2 mg,硫胺素 thiamine 1 mg,核黄素 riboflavin 8.5 mg,泛酸钙 calcium pantothenate 50 mg,烟酸 nicotinic acid 32.5 mg,叶酸 folic acid 2 mg,吡哆醇 pyridoxine 8 mg,VB12 5 μg,生物素 biotin 0.2 mg,Fe 60 mg,Cu 8 mg,Zn 66 mg,Mn 65 mg,Se 0.3 mg,I 1 mg,NaCl 3.5 g,CaHPO4 14 g,氯化胆碱 choline chloride 1 g,蛋氨酸 Met 1.4 g,石粉 limestone 6.9 g。

2)营养水平中代谢能、有效磷和氨基酸为计算值,参照《中国饲料成分及营养价值表(2019年第30版)》计算;粗蛋白质、钙和总磷为实测值,分别参照GB/T 6432—2018、GB/T 6436—2018和GB/T 6437—2018测定。ME, AP and amino acids in nutrient levels were calculated referred to Tables of Feed Composition and Nutritive Values in China (30th edition, 2019), while CP, Ca and TP were measured by reference to GB/T 6432—2018, GB/T 6436—2018 and GB/T 6437—2018, respectively.

1.3 样品采集

将公鸭按照RFI从高到低排列后,筛选10只RFI最高的个体组成高RFI组(H-RFI组),10只RFI最低的个体组成低RFI组(L-RFI组)。对筛选出的个体禁食12 h后进行屠宰解剖,采集每只个体的肝脏左叶以及腹脂,所有样品在液氮中快速冷冻后保存于-80 ℃超低温冰箱。

1.4 肝脏指数和腹脂指数测定

称量每只个体的肝脏重和腹脂重,并计算肝脏指数和腹脂指数,计算公式如下:
肝脏指数(%)=(肝脏重/体重)×100;
腹脂指数(%)=(腹脂重/体重)×100。

1.5 RNA提取、文库构建和转录组测序

在H-RFI组和L-RFI组分别随机选取4只公鸭的肝脏和腹脂组织,采用TRIzol法提取肝脏和腹脂总RNA后,使用NanoDrop 2000(Thermo,美国)和Agilent 2100 Bioanalyzer(Agilent Technologies,美国)评估RNA样品的浓度和质量,并使用1%无RNA酶琼脂糖凝胶电泳检测RNA的完整性。质检合格后使用Oligo(dT)法分离mRNA,将其碎片化处理后构建cDNA文库。库检合格后送交深圳华大基因股份有限公司基于T7测序平台进行双末端(paired-end,PE)测序。

1.6 测序数据质控比对

为了保证数据分析的质量及可靠性,对测序获得的原始数据(raw reads)进行过滤、测序错误率检查、GC含量分布检查,获得后续分析使用的clean reads,利用HISAT2比对软件将有效数据(clean reads)比对到参考基因组上。比对完成后,采用subread软件中的featureCounts工具对基因进行表达水平的定量,分别过滤掉比对质量值低于10的reads、非成对比对上的reads以及比对到基因组多个区域的reads。

1.7 基因表达差异分析

使用HTSeq统计比对到每个基因上的原始计数(read count)值,作为基因的原始表达量。结果以TPM标准化处理的值表示,使不同样本间的不同基因的表达水平具有可比性。采用DESeq2软件对基因表达进行差异分析,筛选差异表达基因(DEGs)条件:q值<0.05和|log2[差异倍数(FC)]|>1[17]

1.8 基因功能富集分析

采用clusterProfiler软件包[18]中的enrichPathway函数对DEGs进行KEGG通路富集分析,使用gseKEGG函数对所有检测到的基因进行基因集富集分析(GSEA),富集分析结果以q值<0.05作为显著性富集的阈值。

1.9 数据统计与分析

所有数据均利用R语言中的rstatix包进行统计分析,利用t_test函数分别对L-RFI组和H-RFI组之间的指标进行比较。以P>0.05表示差异不显著,P<0.05表示差异显著,P<0.01表示差异极显著。结果以“平均值±标准差”表示。

2 结果与分析

2.1 高、低RFI组描述性统计分析

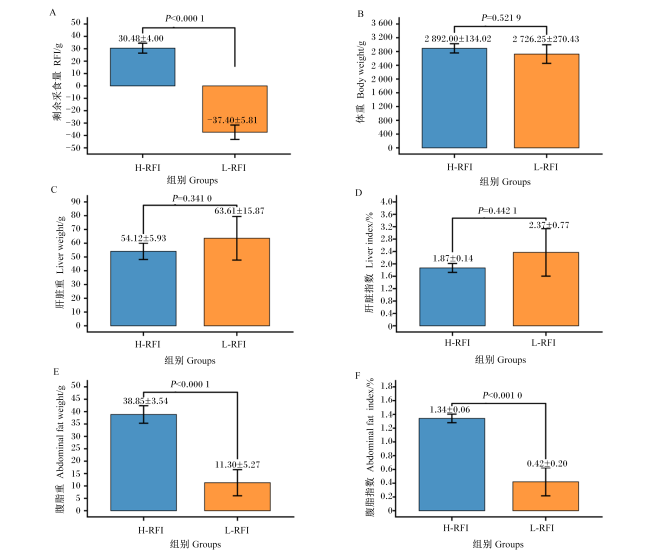
按照RFI将公鸭分成高、低RFI组(H-RFI组和L-RFI组),对2组的体重、RFI、肝脏重、肝脏指数、腹脂重、腹脂指数等指标分别进行差异比较,结果显示:H-RFI组的RFI平均值为30.45 g,L-RFI组则为-37.40 g,组间差异极显著(图1-A,P<0.000 1),表明本试验根据RFI进行分组的个体选择准确;体重(图1-B,P=0.521 9)、肝脏重(图1-C,P=0.341 0)、肝脏指数(图1-D,P=0.442 1)这3个指标在L-RFI组和H-RFI组之间均没有显著差异;L-RFI组的腹脂重(图1-E,P<0.000 1)、腹脂指数(图1-F,P<0.001 0)均极显著低于H-RFI组,表明低RFI公鸭的脂肪沉积较高RFI公鸭极显著降低。
图1 高、低RFI组间不同指标的差异比较

Fig.1 Comparison of differences in various indexes between high and low RFI groups

2.2 测序数据质量评估

将质控后的clean reads比对到参考基因组上。由表2可知,每个样品均获得45.44 Mb以上的raw reads,Q30值均大于93%,质控后每个样品均获得44.01 Mb以上的clean reads,clean reads占比达到95%以上。所有样品clean reads比对基因组的总体比对率均在94%左右,表明数据质量可靠,可用于后续分析。同时,样品间均匀的比对率表明,样品间的数据具有可比性。
表2 测序数据质量评估

Table 2 Sequencing data quality assessment

样品名称
Sample names
原始数据
Raw reads/Mb
有效数据
Clean reads/Mb
有效数据占比
Clean reads ratio/%
Q30值
Q30 value/%
比对率
Mapped ratio/%
LVH1 47.19 45.42 96.25 94.24 94.02
LVH2 45.44 44.03 96.83 94.42 94.89
LVH3 47.19 45.17 95.72 94.02 94.65
LVH4 45.44 44.01 96.83 93.77 95.20
LVL1 45.44 44.08 97.01 93.75 92.72
LVL2 45.44 44.07 96.99 94.12 94.93
LVL3 45.44 44.16 97.18 94.03 94.71
LVL4 45.44 44.01 96.85 93.90 94.86
AFH1 45.44 44.22 97.32 93.56 94.26
AFH2 45.44 44.15 97.16 93.41 94.02
AFH3 45.44 44.24 97.36 93.25 94.47
AFH4 45.44 44.07 96.99 93.53 94.05
AFL1 45.44 44.03 96.90 93.52 94.56
AFL2 45.44 44.31 97.51 93.37 93.86
AFL3 45.44 44.24 97.36 93.40 94.17
AFL4 45.44 44.42 97.76 93.41 94.30

2.3 DEGs分析

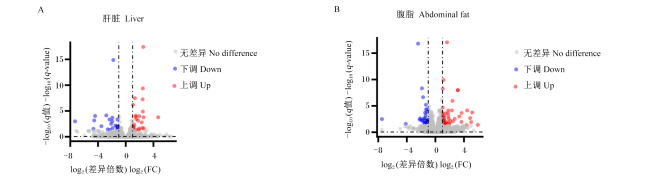
使用DESeq2软件分别对高、低RFI组之间的肝脏和腹脂的转录组测序数据进行DEGs分析。以H-RFI组为对照,在肝脏中筛选到46个DEGs(图2-A),其中包含24个上调的DEGs和22个下调的DEGs;在腹脂中筛选到88个DEGs(图2-B),其中包含49个上调的DEGs和39个下调的DEGs。在肝脏和腹脂中没有共同的DEGs。
图2 高、低RFI组间肝脏、腹脂中差异表达基因火山图

Fig.2 Volcano plots of DEGs in liver and abdominal fat between high and low RFI groups

2.4 基于DEGs的KEGG通路富集分析

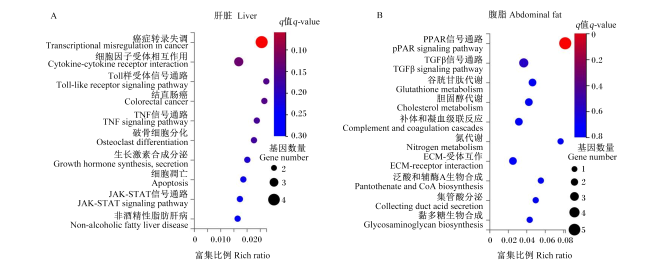
对筛选出的肝脏和腹脂DEGs进行KEGG通路富集分析,图3显示了肝脏和腹脂中DEGs富集到的前10个KEGG通路,其中肝脏中的DEGs显著富集到癌症转录失调信号通路,腹脂中的DEGs显著富集到过氧化物酶体增殖物激活受体(PPAR)信号通路。由表3可知,癌症转录失调信号通路上富集的DEGs有高迁移率组蛋白家族基因2(HMGA2)、核因子-κB抑制因子ζ(NFKBIZ)、锌指和BTB结构域蛋白16(ZBTB16)、生长抑制和DNA损伤修复基因家族45γ(GADD45G),其中HMGA2和ZBTB16显著下调,而NFKBIZGADD45G显著上调;PPAR信号通路上富集的DEGs有视黄酸X受体γ(RXRG)、脂蛋白脂肪酶(LPL)、脂肪酸去饱和酶(SCD)、葡萄糖激酶(GK)、载脂蛋白3(APOC3),且所有富集到的基因均显著下调。
图3 肝脏和腹脂差异表达基因的KEGG富集通路气泡图

Fig.3 Bubble plots of KEGG enrichment pathways of DEGs in liver and abdominal fat

表3 KEGG富集通路和差异表达基因

Table 3 KEGG enrichment pathways and DEGs

组织
Tissues
KEGG通路条目
KEGG pathway term
q
q-value
差异表达基因符号
DEGs symbols
肝脏
Liver
癌症转录失调
Transcriptional misregulation in cancer
0.018 6 高迁移率组蛋白家族2(HMGA2)、核因子κB抑制
因子ζ(NFKBIZ)、锌指蛋白16(ZBTB16)、生长
抑制和DNA损伤修复基因家族45γ(GADD45G)
腹脂
Abdominal fat
PPAR信号通路
PPAR signaling pathway
0.009 2 视黄酸X受体γ(RXRG)、脂蛋白脂肪酶(LPL)、
脂肪酸去饱和酶(SCD)、葡萄糖激酶(GK)、
载脂蛋白3(APOC3)

2.5 基于全部基因的GSEA

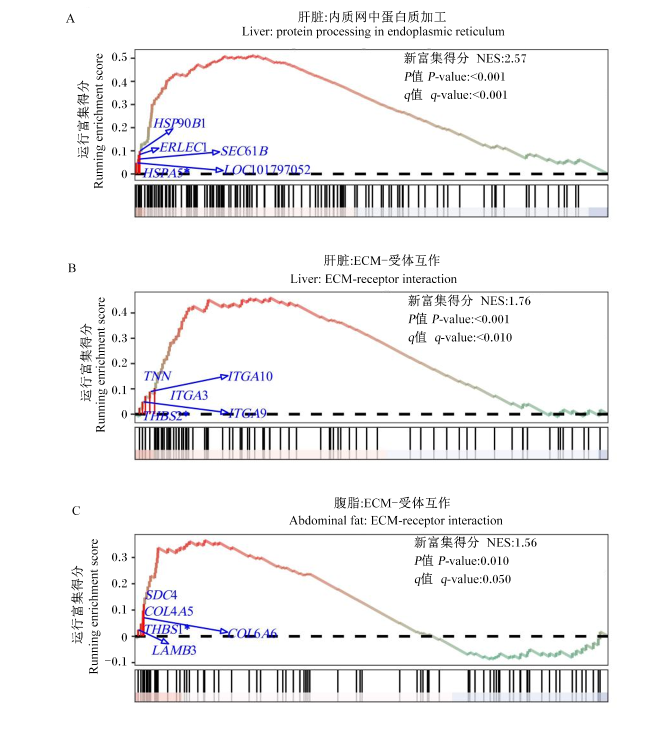
对肝脏、腹脂中所有能检测到的全部基因进行GSEA。肝脏中表达的基因富集到内质网中蛋白质加工和细胞外基质(ECM)-受体互作共2条通路(图4-A图4-B);根据新富集得分(NES)可知,这2条通路均为上调通路,这些通路的核心基因中,仅热休克蛋白家族A成员5(HSPA5)、血小板反应蛋白2(THBS2)显著上调。腹脂中表达的基因显著富集到ECM-受体互作通路(图4-C),根据NES可知,该通路为上调通路,在得到的前5个核心基因中,血小板反应蛋白1(THBS1)显著上调。
图4 肝脏、腹脂表达基因的GSEA富集通路图

HSP90B1:热休克蛋白90 β家族成员1 heat shock protein 90 beta family member 1;ERLEC1:内质网凝集素1 endoplasmic reticulum lectin 1;SEC61B:易位子β亚基 SEC61 translocon subunit beta;HSPA5:热休克蛋白家族A成员5 heat shock protein family A member 5;LOC101797052:蛋白质转运蛋白Sec24D protein transport protein Sec24D;TNN:肌腱蛋白N tenascin N;ITGA3:整合素亚基α3 integrin subunit alpha 3;ITGA9:整合素亚基α9 integrin subunit alpha 9;ITGA10:整合素亚基α10 integrin subunit alpha 10;SDC4:多配体蛋白聚糖4 syndecan 4;COL4A5:Ⅳ型胶原蛋白α5链 collagen type Ⅳ alpha 5 chain;THBS1:血小板反应蛋白1 thrombospondin 1;COL6A6:Ⅵ型胶原蛋白α6链 collagen type Ⅵ alpha 6 chain;LAMB3:层粘连蛋白亚基β3 laminin subunit beta 3。标注*的基因为显著上调基因 The genes marked with * are significantly up-regulated genes。

Fig.4 Plots of GSEA enrichment pathways of expressed genes in liver and abdominal fat

3 讨论

3.1 高、低RFI肉鸭体重、肝脏和腹脂表型的差异

本研究发现,肉鸭试验末期(35日龄)的体重在高、低RFI组间没有显著差异,这与前人研究结果[19-20]一致;同时,肝脏重及肝脏指数在高、低RFI组间亦未呈现显著差异;然而,L-RFI组的腹脂重和腹脂率显著低于H-RFI组,这一结果与其他品种肉鸭[12]以及鸡[21]、猪[22]、绵羊[23]上的报道相符。这些研究结果提示,低RFI个体能够在维持相同生长性能(体重)和基础代谢器官(肝脏)发育水平的前提下,显著减少不必要的腹脂沉积。
肝脏作为核心代谢器官,其大小通常与基础代谢率相关。根据本研究结果可推测,低RFI个体实现饲料效率的提升并非通过降低基础代谢器官的发育或功能来实现。这进一步支持了RFI的核心定义,即实际采食量与维持生长所需理论采食量的偏差[24]。大量研究证实,低RFI个体表现出更高的饲料转化率[2,10,20,23],这种“高效”特性可能源于其更精准的能量分配机制,即优先满足肌肉等基础组织生长需求,而非脂肪沉积[25]。因此,脂肪沉积的差异可能是导致个体间RFI产生差异的关键因素。

3.2 高、低RFI肉鸭肝脏和腹脂的转录组差异

在家禽中,肝脏是脂质合成代谢的主要器官[26-27],而腹脂组织是脂质沉积的主要场所[28]。本研究对肝脏和腹脂组织在高、低RFI组别之间的转录组进行比较分析,发现了一系列与脂肪合成代谢与沉积相关的通路及候选基因。综合DEGs-KEGG以及GSEA-KEGG通路富集分析结果,在肝脏中共富集到3条与脂肪合成代谢相关的通路,即癌症转录失调、内质网中的蛋白质加工和ECM-受体互作,在腹脂中共富集到2条与脂肪合成代谢相关的通路,即PPAR信号通路、和ECM-受体互作。所涉及的4条通路中,ECM-受体互作在肝脏和腹脂中均处于富集状态。
在肝脏癌症转录失调通路中,HMGA2在脂肪发生和肿瘤发生中具有重要作用[29]。有研究表明,该基因通过刺激前脂肪细胞增殖并通过调控过氧化物酶体增殖物激活受体γ(PPARγ)表达促进脂肪细胞分化,在脂肪生成过程中起关键作用[30]NFKBIZ参与调控炎症反应和细胞增殖等过程[31],在小鼠的研究中发现,NFKBIZ可通过抑制肝脏中脂肪酸和甘油三酯合成相关基因的表达,从而在分子水平上调节脂肪沉积[32]ZBTB16的编码产物是一个重要的转录激活物或抑制因子[33],在牛上对ZBTB16过表达后发现,脂肪合成关键基因PPARγ表达量上调3.8倍,脂滴积累增加47%[34],表明ZBTB16对脂肪沉积具有明显的促进作用。在牛上有研究发现GADD45G的表达水平与RFI显著相关[35],推测饲料效率高的个体可能通过GADD45G介导的免疫调节减少慢性炎症消耗导致的能量损耗,从而提高饲料利用率。本试验中,L-RFI组肉鸭肝脏中脂肪生成相关基因HMGA2和ZBTB16的表达水平显著低于H-RFI组,而应激/炎症响应相关基因NFKBIZGADD45G的表达水平显著高于H-RFI组。这种基因表达谱的差异模式与观察到的L-RFI组腹脂沉积量显著降低的表型高度吻合,有力证明这些基因在肉鸭肝脏的脂肪合成与沉积调控网络中扮演着关键角色。
本试验在肉鸭腹脂转录表达谱中富集到了PPAR信号通路。该通路中的RXRG能够增加猪脂肪酸摄取与甘油三酯合成[36]。对阉割公鸡的研究发现,睾酮水平下降影响了RXRG的mRNA表达,从而通过PPAR信号通路促进脂肪积累[37],表明RXRG具有正向调控脂肪沉积的作用。在脂肪组织中,LPL活性的增加会促进游离脂肪酸的摄取和甘油三酯的合成,从而导致脂肪沉积的增加[38-39]。本试验发现,H-RFI组的腹脂重和腹脂率显著高于L-RFI组,这可能与H-RFI组中LPL基因的高表达有关。SCD是不饱和脂肪酸合成的限速酶[40],其基因的表达水平在背膘较厚的北京黑猪脂肪组织中显著高于杜洛克猪[41]GK基因编码葡萄糖激酶,该基因的激活可以促进甘油三酯生成,同时抑制脂肪分解,从而促进脂肪沉积[42]。APOC3是富含甘油三酯蛋白代谢的关键因子,有研究表明,APOC3的过表达会导致高甘油三酯血症,进而促进脂肪在肝脏和脂肪组织中的沉积[43-44]。本试验中,上述基因在L-RFI组腹脂中的表达水平均显著低于H-RFI组,表明L-RFI组PPAR信号通路处于下调状态。该通路活性的减弱进一步解释了L-RFI组腹脂沉积量较低的表型结果。
利用GSEA-KEGG通路富集分析方法在肝脏中富集到了内质网中蛋白质加工通路,该通路在L-RFI组中处于上调状态,其中HSPA5在L-RFI组中显著高表达。HSPA5在脂肪沉积中具有重要作用,其可抑制甾醇调节元件结合蛋白-1c(SREBP-1c)的活性,从而限制甘油三酯的生物合成[45],减缓脂肪沉积。
陈家辉等[46]利用普通饲粮和高脂饲粮饲喂杏花鸡后发现,高脂组个体腹脂重和腹脂率显著增加,腹脂中的DEGs富集到了PPAR信号通路和ECM-受体互作通路。ECM-受体互作通路是细胞微环境的重要组成部分[47],为脂肪细胞的增殖、分化和迁移提供了支持。研究显示,农华麻鸭限饲后脂肪沉积减少,同时肝脏和脂肪组织中ECM-受体互作通路中的基因表达水平显著降低[48]。本试验中,在肝脏和脂肪组织的GSEA-KEGG通路富集分析中也均富集到了ECM-受体互作通路,其中THBS1和THBS2在L-RFI组显著高表达。THBS1可通过结合细胞表面受体抑制转录因子SREBP-1c的活化,从而减少脂肪生成[49],表明其对脂肪沉积有负向调控作用。THBS2是内源性细胞抑制剂,可通过下调环磷酸腺苷(cAMP)-蛋白激酶(PKA)信号通路影响脂肪细胞的形成[50]。与本试验结果相似,在多个世代腹脂双向选择的2个鸡群转录组比较分析发现,低腹脂群体的THBS2显著高表达[51]

4 结论

本研究通过比较高、低RFI肉鸭肝脏、腹脂表型指标,证实了脂肪的沉积差异可能是导致个体间RFI产生差异的关键因素。对高、低RFI肉鸭肝脏、腹脂的转录组测序结果表明,癌症转录失调、PPAR信号通路、内质网中蛋白质加工、ECM-受体互作等通路以及通路上与脂肪合成代谢相关的基因如HMGA2、NFKBIZZBTB16、GADD45GRXRGLPLSCDGKAPOC3、HSPA5、THBS1、THBS2等,在腹脂沉积中发挥重要作用。
[1]
LANCASTER P A, CARSTENS G E, RIBEIRO F R B, et al. Characterization of feed efficiency traits and relationships with feeding behavior and ultrasound carcass traits in growing bulls[J]. Journal of Animal Science, 2009, 87(4):1528-1539.

DOI PMID

[2]
ZHANG X X, LI G Z, LI F D, et al. Effect of feed efficiency on growth performance,body composition,and fat deposition in growing Hu lambs[J]. Animal Biotechnology, 2023, 34(2):183-198.

DOI

[3]
YOUNG J M, CAI W, DEKKERS J C M. Effect of selection for residual feed intake on feeding behavior and daily feed intake patterns in Yorkshire swine[J]. Journal of Animal Science, 2011, 89(3):639-647.

DOI PMID

[4]
FAURE J, LEFAUCHEUR L, BONHOMME N, et al. Consequences of divergent selection for residual feed intake in pigs on muscle energy metabolism and meat quality[J]. Meat Science, 2013, 93(1):37-45.

DOI PMID

[5]
GILBERT H, BILLON Y, BROSSARD L, et al. Review:divergent selection for residual feed intake in the growing pig[J]. Animal, 2017, 11(9):1427-1439.

DOI

[6]
DROUILHET L, ACHARD C S, ZEMB O, et al. Direct and correlated responses to selection in two lines of rabbits selected for feed efficiency under ad libitum and restricted feeding:Ⅰ.Production traits and gut microbiota characteristics[J]. Journal of Animal Science, 2016, 94(1):38-48.

[7]
XU Z Q, JI C L, ZHANG Y, et al. Combination analysis of genome-wide association and transcriptome sequencing of residual feed intake in quality chickens[J]. BMC Genomics, 2016, 17(1):594.

DOI

[8]
LIU R R, LIU J, ZHAO G P, et al. Relevance of the intestinal health-related pathways to broiler residual feed intake revealed by duodenal transcriptome profiling[J]. Poultry Science, 2019, 98(3):1102-1110.

DOI PMID

[9]
刘宏祥, 张雪萍, 王震, 等. 不同剩余采食量快大型肉鸭生长性能、屠宰性能和内脏器官的比较研究[J]. 动物营养学报, 2024, 36(11):7040-7050.

DOI

LIU H X, ZHANG X P, WANG Z, et al. Comparative study on growth performance,slaughter performance and internal organs of fast-growing meat ducks with different residual feed intake[J]. Chinese Journal of Animal Nutrition, 2024, 36(11):7040-7050. (in Chinese)

[10]
郑艺婧, 吴双, 杨宝龙, 等. 小体型肉鸭剩余采食量与屠宰性能的相关性分析[J]. 中国畜牧杂志, 2023, 59(1):111-116.

ZHENG Y J, WU S, YANG B L, et al. Correlation analysis between residual feed intake and slaughter performance of small-sized meat ducks[J]. Chinese Journal of Animal Science, 2023, 59(1):111-116. (in Chinese)

[11]
ZHUO Z, LAMONT S J, LEE W R, et al. RNA-seq analysis of abdominal fat reveals differences between modern commercial broiler chickens with high and low feed efficiencies[J]. PLoS One, 2015, 10(8):e0135810.

DOI

[12]
ZHANG Y S, XU Y X, FAN W L, et al. Relationship between residual feed intake and production traits in a population of F2 ducks[J]. The Journal of Poultry Science, 2019, 56(1):27-31.

DOI

[13]
ZHANG T, ZHANG X Q, HAN K P, et al. Genome-wide analysis of lncRNA and mRNA expression during differentiation of abdominal preadipocytes in the chicken[J]. G3-Genes Genomes Genetics, 2017, 7(3):953-966.

DOI PMID

[14]
ZEREHDARAN S, VEREIJKEN A L J, VAN ARENDONK J A M, et al. Estimation of genetic parameters for fat deposition and carcass traits in broilers[J]. Poultry Science, 2004, 83(4):521-525.

PMID

[15]
BERNLOHR D A, JENKINS A E, BENNAARS A A. Adipose tissue and lipid metabolism[J]. New Comprehensive Biochemistry, 2002, 36:263-289.

[16]
NKRUMAH J D, BASARAB J A, PRICE M A, et al. Different measures of energetic efficiency and their phenotypic relationships with growth,feed intake,and ultrasound and carcass merit in hybrid cattle[J]. Journal of Animal Science, 2004, 82(8):2451-2459.

DOI

[17]
LOVE M I, HUBER W, ANDERS S. Moderated estimation of fold change and dispersion for RNA-seq data with DESeq2[J]. Genome Biology, 2014, 15(12):550.

DOI

[18]
WU T Z, HU E Q, XU S B, et al. clusterProfiler 4.0:a universal enrichment tool for interpreting omics data[J]. The Innovation, 2021, 2(3):100141.

DOI

[19]
ZHANG Y S, GUO Z B, XIE M, et al. Genetic parameters for residual feed intake in a random population of Pekin duck[J]. Asian-Australasian Journal of Animal Sciences, 2017, 30(2):167-170.

DOI PMID

[20]
BAI H, GUO Q, YANG B, et al. Effects of residual feed intake divergence on growth performance,carcass traits,meat quality,and blood biochemical parameters in small-sized meat ducks[J]. Poultry Science, 2022, 101(9):101990.

DOI

[21]
WEN C L, YAN W, ZHENG J X, et al. Feed efficiency measures and their relationships with production and meat quality traits in slower growing broilers[J]. Poultry Science, 2018, 97(7):2356-2364.

DOI PMID

[22]
GILBERT H, BIDANEL J P, GRUAND J, et al. Genetic parameters for residual feed intake in growing pigs,with emphasis on genetic relationships with carcass and meat quality traits[J]. Journal of Animal Science, 2007, 85(12):3182-3188.

DOI

[23]
ZHANG X X, WANG W M, MO F T, et al. Association of residual feed intake with growth and slaughtering performance,blood metabolism,and body composition in growing lambs[J]. Scientific Reports, 2017, 7(1):12681.

DOI

[24]
KENNEDY B W, VAN DER WERF J H, MEUWISSEN T H. Genetic and statistical properties of residual feed intake[J]. Journal of Animal Science, 1993, 71(12):3239-3250.

DOI PMID

[25]
LE NAOU T, LOUVEAU I, et al. Metabolic changes and tissue responses to selection on residual feed intake in growing pigs[J]. Journal of Animal Science, 2012, 90(13):4771-4780.

DOI PMID

[26]
HE J, ZHENG H Y, PAN D D, et al. Effects of aging on fat deposition and meat quality in Sheldrake duck[J]. Poultry Science, 2018, 97(6):2005-2010.

DOI PMID

[27]
WANG G S, JIN L, LI Y, et al. Transcriptomic analysis between normal and high-intake feeding geese provides insight into adipose deposition and susceptibility to fatty liver in migratory birds[J]. BMC Genomics, 2019, 20(1):372.

DOI PMID

[28]
顾志良, 赵万里, 周勤宜, 等. 肉鸡脂肪沉积规律的研究[J]. 中国家禽, 1993(1):24-27.

GU Z L, ZHAO W L, ZHOU Q Y, et al. Study on the pattern of fat deposition in broilers[J]. China Poultry, 1993(1):24-27. (in Chinese)

[29]
XI Y, SHEN W J, MA L L, et al. HMGA2 promotes adipogenesis by activating C/EBPβ-mediated expression of PPARγ[J]. Biochemical and Biophysical Research Communications, 2016, 472(4):617-623.

DOI

[30]
SU L J, DENG Z F, LENG F F. The mammalian high mobility group protein AT-Hook 2 (HMGA2):biochemical and biophysical properties,and its association with adipogenesis[J]. International Journal of Molecular Sciences, 2020, 21(10):3710.

DOI

[31]
YAMAZAKI S, MUTA T, TAKESHIGE K. A novel IκB protein,IκB-ζ,induced by proinflammatory stimuli,negatively regulates nuclear factor-κB in the nuclei[J]. Journal of Biological Chemistry, 2001, 276(29):27657-27662.

DOI

[32]
ISHIKAWA H, HAYAKAWA M, BAATARTSOGT N, et al. IκBζ regulates the development of nonalcoholic fatty liver disease through the attenuation of hepatic steatosis in mice[J]. Scientific Reports, 2022, 12(1):11634.

DOI PMID

[33]
KOLESNICHENKO M, VOGT P K. Understanding PLZF:two transcriptional targets,REDD1 and smooth muscle α-actin,define new questions in growth control,senescence,self-renewal and tumor suppression[J]. Cell Cycle, 2011, 10(5):771-775.

DOI

[34]
WEI S J, ZHANG M M, ZHENG Y Y, et al. ZBTB16 overexpression enhances white adipogenesis and induces brown-like adipocyte formation of bovine white intramuscular preadipocytes[J]. Cellular Physiology and Biochemistry, 2018, 48(6):2528-2538.

DOI PMID

[35]
HIGGINS M G, KENNY D A, FITZSIMONS C, et al. The effect of breed and diet type on the global transcriptome of hepatic tissue in beef cattle divergent for feed efficiency[J]. BMC Genomics, 2019, 20(1):525.

DOI PMID

[36]
YAO C G, PANG D X, LU C, et al. Investigation on the effect of two fat metabolism related pathways on intramuscular fat content in pigs[J]. Pakistan Journal of Zoology, 2021, 53(4):1353-1366.

[37]
CUI X Y, CUI H X, LIU L, et al. Decreased testosterone levels after caponization leads to abdominal fat deposition in chickens[J]. BMC Genomics, 2018, 19(1):344.

DOI PMID

[38]
HEERWAGEN M J R, GUMINA D L, HERNANDEZ T L, et al. Placental lipoprotein lipase activity is positively associated with newborn adiposity[J]. Placenta, 2018, 64:53-60.

DOI PMID

[39]
SHANG R, RODRIGUES B. Lipoprotein lipase as a target for obesity/diabetes related cardiovascular disease[J]. Journal of Pharmacy & Pharmaceutical Sciences, 2024, 27:13199.

[40]
ESTANY J, ROS-FREIXEDES R, TOR M, et al. A functional variant in the stearoyl-CoA desaturase gene promoter enhances fatty acid desaturation in pork[J]. PLoS One, 2014, 9(1):e86177.

DOI

[41]
白云华, 王立贤, 陈华林, 等. 北京黑猪与杜洛克猪肌内脂肪沉积相关基因的筛选[J]. 中国畜牧杂志, 2024, 60(9):118-124.

BAI Y H, WANG L X, CHEN H L, et al. Screening of genes related to intramuscular fat deposition in Beijing black pigs and Duroc pigs[J]. Chinese Journal of Animal Science, 2024, 60(9):118-124. (in Chinese)

[42]
SCHINNER S, ULGEN F, PAPEWALIS C, et al. Regulation of insulin secretion,glucokinase gene transcription and beta cell proliferation by adipocyte-derived Wnt signalling molecules[J]. Diabetologia, 2008, 51(1):147-154.

DOI

[43]
CHENG X Y, YAMAUCHI J, LEE S J, et al. APOC3 protein is not a predisposing factor for fat-induced nonalcoholic fatty liver disease in mice[J]. The Journal of Biological Chemistry, 2017, 292(9):3692-3705.

DOI

[44]
BUTLER A A, PRICE C A, GRAHAM J L, et al. Fructose-induced hypertriglyceridemia in rhesus macaques is attenuated with fish oil or ApoC3 RNA interference[J]. Journal of Lipid Research, 2019, 60(4):805-818.

DOI PMID

[45]
XIANG R, FAN L L, HUANG H, et al. Increased reticulon 3 (RTN3) leads to obesity and hypertriglyceridemia by interacting with heat shock protein family A (Hsp70) member 5 (HSPA5)[J]. Circulation, 2018, 138(17):1828-1838.

DOI PMID

[46]
陈家辉, 任学义, 李丽敏, 等. 转录组测序揭示细胞周期通路参与鸡腹脂沉积[J]. 遗传, 2019, 41(10):962-973.

CHEN J H, REN X Y, LI L M, et al. The cell cycle pathway regulates chicken abdominal fat deposition as revealed by transcriptome sequencing[J]. Hereditas, 2019, 41(10):962-973. (in Chinese)

[47]
ROWE R G, WEISS S J. Breaching the basement membrane:who,when and how?[J]. Trends in Cell Biology, 2008, 18(11):560-574.

DOI

[48]
ZHANG X, TANG B C, LI J M, et al. Comparative transcriptome analysis reveals mechanisms of restriction feeding on lipid metabolism in ducks[J]. Poultry Science, 2023, 102(10):102963.

DOI

[49]
BAI J Y, XIA M F, XUE Y Q, et al. Thrombospondin 1 improves hepatic steatosis in diet-induced insulin-resistant mice and is associated with hepatic fat content in humans[J]. EBioMedicine, 2020, 57:102849.

DOI

[50]
SHITAYE H S, TERKHORN S P, COMBS J A, et al. Thrombospondin-2 is an endogenous adipocyte inhibitor[J]. Matrix Biology, 2010, 29(6):549-556.

DOI PMID

[51]
RESNYK C W, CARRÉ W, WANG X F, et al. Transcriptional analysis of abdominal fat in genetically fat and lean chickens reveals adipokines,lipogenic genes and a link between hemostasis and leanness[J]. BMC Genomics, 2013, 14(1):557.

DOI

文章导航

/