研究论文

牛磺酸通过维持线粒体功能稳态缓解呕吐毒素对断奶仔猪回肠的损伤作用

  • 计徐 , 1 ,
  • 丁红研 1 ,
  • 周芬 1 ,
  • 张峰 2 ,
  • 吴东 , 1, *
展开
  • 1 安徽省农业科学院畜牧兽医研究所, 安徽省畜禽产品安全重点实验室, 合肥 230001
  • 2 安徽科技学院动物科学学院, 安徽省动物营养调控与健康重点实验室, 凤阳 233100
*吴 东,研究员,硕士生导师,E-mail:

计 徐(1991—),男,安徽怀远人,副研究员,博士,主要从事单胃动物营养与饲料安全研究。E-mail:

收稿日期: 2025-08-20

  网络出版日期: 2026-03-16

基金资助

国家自然科学基金项目(32202728)

安徽省重点研究和开发计划项目(201904a06020012)

安徽省农业科学院青年英才计划(QNYC-202205)

Taurine Alleviates Deoxynivalenol-Induced Ileal Injury in Weaned Piglets by Maintaining Mitochondrial Functional Homeostasis

  • JI Xu , 1 ,
  • DING Hongyan 1 ,
  • ZHOU Fen 1 ,
  • ZHANG Feng 2 ,
  • WU Dong , 1, *
Expand
  • 1 Anhui Provincial Key Laboratory of Livestock and Poultry Product Safety, Institute of Animal Science and Veterinary Medicine, Anhui Academy of Agricultural Sciences, Hefei 230001, China
  • 2 Anhui Province Key Laboratory of Animal Nutrition Regulation and Health, College of Animal Science, Anhui Science and Technology University, Fengyang 233100, China
*professor, E-mail:

Received date: 2025-08-20

  Online published: 2026-03-16

摘要

本试验旨在探究牛磺酸(TAU)对呕吐毒素(DON)诱导断奶仔猪回肠损伤的缓解作用及其潜在机制。选取18头体重相近的21日龄健康断奶仔猪,随机分为BD组(饲喂基础饲粮)、DON组(饲喂3 mg/kg DON污染饲粮)和DON+TAU组(饲喂3 mg/kg DON污染饲粮+3 000 mg/kg TAU),每组6个重复,每个重复1头猪。试验期24 d。结果表明:1)与BD组相比,DON暴露显著降低回肠绒毛高度和绒毛高度/隐窝深度值(P<0.05),显著提高隐窝深度(P<0.05),显著减少杯状细胞数量(P<0.05),显著降低黏蛋白2(MUC2)mRNA相对表达量和相对荧光强度以及紧密连接蛋白[闭锁小带蛋白2(ZO2)、闭合蛋白(OCLN)和密封蛋白1(CLDN1)]mRNA和蛋白相对表达量(P<0.05);显著提高8-羟基脱氧鸟苷(8-OHdG)和丙二醛(MDA)含量(P<0.05),显著降低总超氧化物歧化酶(T-SOD)和谷胱甘肽过氧化物酶(GSH-Px)活性及谷胱甘肽(GSH)含量(P<0.05),显著降低抗氧化相关基因核因子E2相关因子2(Nrf2)、血红素加氧酶1(HO1)、超氧化物歧化酶1(SOD1)和超氧化物歧化酶2(SOD2)mRNA相对表达量(P<0.05);显著提高炎症因子[白细胞介素-1β(IL-1β)、白细胞介素-6(IL-6)和白细胞介素-8(IL-8)]含量和细胞凋亡率(P<0.05),显著下调抗凋亡基因B细胞淋巴瘤2(BCL2)表达并显著上调促凋亡基因B细胞淋巴瘤2相关X蛋白(BAX)、细胞色素C(CYCS)、半胱天冬酶9(CASP9)、半胱天冬酶3(CASP3)和线粒体相关诱导凋亡因子1(AIFM1)表达(P<0.05),显著提高BAX、裂解(cleaved)CASP3和AIFM1蛋白相对表达量(P<0.05);造成线粒体结构破坏,显著降低线粒体呼吸链复合物Ⅰ、Ⅱ、Ⅳ活性以及ATP含量和线粒体DNA(mtDNA)相对拷贝数(P<0.05),引起线粒体质量控制失衡[过氧化物酶体增殖物激活受体γ辅激活因子1α(PGC1α)、核呼吸因子1(NRF1)、线粒体转录因子A(TFAM)、线粒体融合蛋白2(MFN2)表达显著下调(P<0.05),动力蛋白相关蛋白1(DRP1)、线粒体裂变蛋白1(FIS1)、PTEN诱导激酶1(PINK1)、帕金蛋白RBR E3泛素蛋白连接酶(PRKN)、微管相关蛋白1轻链3β(LC3B)表达显著上调(P<0.05)]。2)与DON组相比,TAU处理显著改善回肠组织形态结构受损和屏障功能相关指标下调(P<0.05);显著降低MDA含量(P<0.05),显著提高T-SOD活性(P<0.05),显著上调抗氧化相关基因表达(P<0.05);显著降低IL-1β和IL-8含量及细胞凋亡率(P<0.05),并显著逆转凋亡基因和蛋白的异常表达(P<0.05);改善线粒体结构,显著提高线粒体呼吸链复合物Ⅰ、Ⅱ、Ⅲ和Ⅳ活性以及ATP含量和mtDNA相对拷贝数(P<0.05);显著改善线粒体质量控制过程(P<0.05),维持其功能稳态。综上所述,饲粮中添加TAU可通过调控线粒体质量控制维持其功能稳态,减轻氧化应激、炎症反应和细胞凋亡,并改善屏障功能,最终缓解DON对断奶仔猪回肠造成的损伤。

本文引用格式

计徐 , 丁红研 , 周芬 , 张峰 , 吴东 . 牛磺酸通过维持线粒体功能稳态缓解呕吐毒素对断奶仔猪回肠的损伤作用[J]. 动物营养学报, 2026 , 38(3) : 2138 -2153 . DOI: 10.12418/CJAN2026.171

Abstract

This study aimed to investigate the alleviating effects of taurine (TAU) on deoxynivalenol (DON)-induced ileal injury in weaned piglets and to elucidate its potential underlying mechanisms. A total of 18 healthy weaned piglets at 21 days of age with similar body weight were randomly assigned into three groups as BD group (fed basal diet), DON group (fed 3 mg/kg DON-contaminated diet), and DON+TAU group (fed 3 mg/kg DON-contaminated diet+3 000 mg/kg TAU) with 6 replicates in each group and 1 pig in each replicate, and fed for 24 days. The results showed as follows: 1) compared with BD group, DON exposure significantly decreased the ileal villus height and villus height to crypt depth ratio (P<0.05), significantly increased the crypt depth (P<0.05), significantly decreased the goblet cell number (P<0.05), and significantly reduced the mucin 2 (MUC2) mRNA relative expression level and relative fluorescence intensity, as well as downregulating both the mRNA and protein relative expression levels of tight junction proteins [zonula occludens 2 (ZO2), occludin (OCLN) and claudin 1 (CLDN1)] (P<0.05). DON significantly elevated the 8-hydroxydeoxyguanosine (8-OHdG) and malonaldehyde (MDA) contents, while significantly reduced the activities of total superoxide dismutase (T-SOD) and glutathione peroxidase (GSH-Px) as well as glutathione (GSH) content, and significantly decreased the mRNA relative expression levels of antioxidant-related genes such as nuclear factor E2-related factor 2 (Nrf2), heme oxygenase 1 (HO1), superoxide dismutase 1 (SOD1) and superoxide dismutase 2 (SOD2) (P<0.05). Moreover, DON significantly increased the contents of pro-inflammatory cytokines [interleukin-1β (IL-1β), interleukin-6 (IL-6) and interleukin-8 (IL-8)] and cell apoptosis rate (P<0.05), significantly suppressed B-cell lymphoma 2 (BCL2) expression and upregulated B-cell lymphoma 2-associated X protein (BAX), cytochrome C (CYCS), Caspase 9 (CASP9), Caspase 3 (CASP3) and apoptosis inducing factor mitochondria associated 1 (AIFM1) expression (P<0.05), and significantly increased the protein relative expression levels of BAX, cleaved CASP3 and AIFM1 (P<0.05). In addition, DON disrupted mitochondrial structure, significantly reduced the activities of mitochondrial respiratory chain complexes Ⅰ, Ⅱ and Ⅳ, as well as ATP content and mitochondrial DNA (mtDNA) relative copy number (P<0.05), and induced the mitochondrial quality control imbalance [significant downregulation of expression of peroxisome proliferator-activated receptor γ coactivator 1α (PGC1α), nuclear respiratory factor 1 (NRF1), transcription factor A, mitochondrial (TFAM), and mitofusin 2 (MFN2) (P<0.05), and significant upregulation of expression of dynamin-related protein 1 (DRP1), fission, mitochondrial 1 (FIS1), PTEN induced kinase 1 (PINK1), Parkin RBR E3 ubiquitin protein ligase (PRKN) and microtubule associated protein 1 light chain 3β (LC3B) (P<0.05)]. 2) Compared with DON group, TAU treatment significantly alleviated the injury of morphological structure of ileal tissues and the down-regulation of barrier function-related indices (P<0.05), significantly reduced the MDA content (P<0.05), significantly increased the T-SOD activity (P<0.05), and significantly upregulated antioxidant-related gene expression (P<0.05). TAU also significantly reduced the contents of IL-1β and IL-8 as well as cell apoptosis rate (P<0.05), significantly reversed the abnormal expression of apoptosis-related genes and proteins (P<0.05), restored mitochondrial structure, significantly enhanced the activities of mitochondrial respiratory chain complexes Ⅰ, Ⅱ, Ⅲ and Ⅳ, as well as ATP content and mtDNA relative copy number (P<0.05), and significantly improved the mitochondrial quality control process (P<0.05) and maintained its functional homeostasis. In conclusion, dietary supplementation of TAU can alleviate DON-induced ileal injury in weaned piglets, potentially by regulating mitochondrial quality control to maintain mitochondrial functional homeostasis, reducing oxidative stress, inflammation and apoptosis, as well as improving barrier function.

呕吐毒素(DON),又称脱氧雪腐镰刀菌烯醇,是由禾谷镰刀菌和黄色镰刀菌在谷物生长、收获及贮藏过程中产生的次级代谢产物,具有较强毒性和高度稳定性。DON广泛污染小麦、玉米及其加工副产物等饲料原料,在饲料体系中普遍存在,严重威胁动物健康与养殖效益,已成为当前饲料安全面临的主要风险之一[1]。猪,尤其是断奶仔猪,对DON最为敏感[2]。DON经口摄入后主要在小肠通过诱导氧化应激、炎症反应和细胞凋亡发挥其毒性作用,破坏肠道黏膜结构,增加通透性,导致仔猪腹泻、生长迟缓和饲料转化率下降等[3-4]。目前,关于DON肠毒性的研究多聚焦于空肠,而回肠作为营养吸收的末端区域,富含肠道相关淋巴组织,在维持肠道结构完整性和屏障功能方面同样重要[5-6]。因此,明确DON对仔猪回肠的损伤机制,并探索有效的营养干预措施,对保障仔猪健康具有重要意义。
线粒体是细胞代谢的核心场所,广泛参与能量合成、活性氧(ROS)生成与调节、细胞凋亡及免疫应答等生理过程[7]。由于肠道上皮细胞对能量供应高度依赖,线粒体功能紊乱可直接影响其更新与屏障功能维持[7]。研究表明,线粒体是DON诱导肠毒性的主要靶点。DON可通过抑制线粒体呼吸链复合物活性、减少ATP合成并诱导ROS积累,进而导致上皮细胞凋亡和炎症反应[8-9]。线粒体功能的维持不仅依赖于其自身的代谢活动,更需通过精准的质量控制机制进行调节,包括线粒体生物发生、融合与分裂的动态平衡以及自噬过程。这些过程共同构成线粒体质量控制系统,对维持其功能稳态及细胞健康至关重要[10]。Cai等[11]报道,DON暴露可扰乱线粒体质量控制过程,表现为介导线粒体外膜和内膜融合的关键因子[线粒体融合蛋白1(MFN1)、线粒体融合蛋白2(MFN2)、OPA1线粒体动力蛋白样GTP酶(OPA1)]表达下调,而分裂因子[线粒体裂变因子(MFF)、线粒体裂变蛋白1(FIS1)]及PTEN诱导激酶1(PINK1)/帕金蛋白RBR E3泛素蛋白连接酶(PRKN)介导的自噬相关因子表达上调,从而加剧猪肠上皮细胞线粒体功能受损。因此,鉴于线粒体在DON介导肠毒性中的核心作用,探寻营养干预手段以维持其功能稳态,对于缓解仔猪回肠损伤具有重要的理论和实践意义。
牛磺酸(TAU)是一种广泛存在于动物组织中的含硫β-氨基酸,虽不参与蛋白质合成,但在维持细胞稳态方面具有抗氧化、抗炎和免疫调节等多种功能[12]。研究表明,饲粮中添加TAU可缓解断奶仔猪空肠氧化应激与炎症反应,改善组织结构,增强屏障功能[13]。尽管TAU直接清除ROS的能力有限,但它可通过调控线粒体功能发挥抗氧化作用,如提高呼吸链复合物活性、稳定膜电位、维持ATP生成以及减少ROS积累。这些作用可保护线粒体DNA(mtDNA),并抑制线粒体介导的细胞凋亡和炎症反应[14]。更为重要的是,研究发现TAU能够多途径调控线粒体质量控制,如上调过氧化物酶体增殖物激活受体γ辅激活因子1α(PGC1α)、核呼吸因子1(NRF1)和线粒体转录因子A(TFAM)表达以促进生物发生,增强MFN1、MFN2和OPA1表达以促进融合,同时抑制过度分裂及异常自噬[15]。然而,目前尚不清楚TAU是否能够通过维持线粒体功能稳态来缓解DON诱导的断奶仔猪回肠损伤。因此,本文主要聚焦于TAU对DON诱导仔猪回肠损伤的缓解作用,重点探讨其是否通过维持线粒体功能稳态发挥保护效应,旨在为DON毒性防治与营养干预策略提供新思路和方法。

1 材料与方法

1.1 试验设计

选取18头体重[(5.60±0.12) kg]相近的21日龄健康断奶“杜×长×大”三元杂交阉公猪,随机分为3组,分别为BD组、DON组和DON+TAU组,每组6个重复,每个重复1头。各组饲喂方案如下:BD组饲喂基础饲粮;DON组饲喂3 mg/kg DON污染饲粮,该饲粮通过在基础饲粮中加入含DON的霉变大米玉米混合物制备(添加比例见表1),具体制备步骤与添加比例参照课题组前期研究[16];DON+TAU组饲喂在DON污染饲粮中添加3 000 mg/kg TAU(纯度为99.5%)的饲粮,添加量参考课题组前期研究[16]。试验期24 d。各组饲粮中DON的实际含量经液相色谱-串联质谱法检测分别为0.06、3.01和3.04mg/kg。基础饲粮参照NRC(2012)断奶仔猪营养标准配制,其组成及营养水平见表1。饲粮粗蛋白质(CP)、粗脂肪(EE)、粗纤维(CF)、钙(Ca)和总磷(TP)含量分别参照GB/T 6432—2018、GB/T 6433—2006、GB/T 6434—2022、GB/T 6436—2018和GB/T 6437—2018中方法进行测定。
表1 饲粮组成及营养水平(饲喂基础)

Table 1 Composition and nutrient levels of diets (as-fed basis)

项目
Items
组别 Groups
BD DON DON+TAU
原料 Ingredients
玉米 Corn 37.00 37.00 37.00
膨化玉米 Extruded corn 14.40 14.40 14.40
豆粕 Soybean meal 15.00 15.00 15.00
膨化全脂大豆 Extruded full-fat soybean 10.00 10.00 10.00
正常大米玉米混合物 Normal rice and corn mixture 2.50
霉变大米玉米混合物 Moldy rice and corn mixture1) 2.50 2.50
鱼粉 Fish meal 2.50 2.50 2.50
乳清粉 Whey powder 10.00 10.00 10.00
蔗糖 Sucrose 2.00 2.00 2.00
大豆油 Soybean oil 2.00 2.00 2.00
麸皮 Wheat bran2) 0.24 0.24 0.12
甘氨酸 Glycine2) 0.36 0.36 0.18
牛磺酸 Taurine 0.30
预混料 Premix3) 4.00 4.00 4.00
合计 Total 100.00 100.00 100.00
营养水平 Nutrient levels4)
消化能 DE/(MJ/kg) 14.64 14.64 14.64
粗蛋白质 CP 18.90 18.86 18.98
粗脂肪 EE 6.10 6.00 6.00
粗纤维 CF 3.20 3.10 3.00
钙 Ca 0.61 0.60 0.60
总磷 TP 0.50 0.51 0.52

1)霉变大米玉米混合物用于制备含3 mg/kg DON的污染饲粮。Moldy rice and corn mixture was used to prepare contaminated diets containing 3 mg/kg of DON.

2)为实现各组饲粮的等能等氮,在配制过程中通过添加麸皮和甘氨酸对饲粮配方进行平衡调整。Wheat bran and glycine were used to adjust the diet formulation and maintain isoenergetic and isonitrogenous levels across all diets.

3)预混料为每千克饲粮提供 The premix provided the following per kg of diets:VA 10 000 IU,VD3 2 500 IU,VE 35 IU,VK3 3.0 IU,VB1 3.0 mg,VB2 4.5 mg,VB6 4.0 mg,VB12 0.05 mg,泛酸 pantothenic acid 30 mg,烟酸 nicotinic acid 60 mg,叶酸 folic acid 1 mg,生物素 biotin 0.2 mg,Zn (ZnSO4·H2O) 100 mg,Cu (CuSO4·5H2O) 125 mg,Mn (MnSO4·H2O) 60 mg,Fe (FeSO4·H2O) 120 mg,I [Ca(IO3)2] 0.6 mg,Se (Na2SeO3) 0.30 mg。

4)粗蛋白质、粗脂肪、粗纤维、钙和总磷为实测值,消化能根据NRC(2012)计算得到。CP, EE, CF, Ca and TP were measured values, while DE was a calculated value according to NRC (2012).

1.2 饲养管理

本研究试验动物的使用已获得安徽省农业科学院动物伦理委员会批准(批准号:A11-CS16)。试验于安徽省农业科学院畜牧兽医研究所动物试验基地完成。试验期间,仔猪采用单栏饲养,按照常规饲养管理标准进行管理,保证其自由饮水和采食。

1.3 样品采集

试验第23天,所有试验猪空腹12 h后经前腔静脉采血,使用促凝真空采血管采集血液约9 mL。采血后室温静置促凝,随后以1 438×g离心15 min分离血清,分装并储存于-80 ℃,待后续检测。试验第24天,所有试验猪经禁食过夜后,注射戊巴比妥钠(40 mg/kg BW)麻醉处死。迅速剖腹,分离回肠,从中段切取约1.5 cm组织段,置于4%多聚甲醛中固定,用于肠道组织形态学和免疫荧光分析;另取约1 mm3大小的组织块置于2.5%戊二醛中固定,用于线粒体结构观察。从相邻部位刮取肠黏膜,液氮速冻并储存于-80 ℃备用,用于后续相关指标检测。

1.4 测定指标及方法

1.4.1 回肠组织形态结构和线粒体超微结构分析

回肠组织(约1.5 cm)经4%多聚甲醛固定24 h后,按常规方法分别进行苏木精-伊红(HE)和阿利新蓝-过碘酸雪夫(AB-PAS)染色,包括脱水、石蜡包埋、切片和染色等步骤。组织切片经Motic VM1全自动数字切片扫描系统(Motic,厦门麦克奥迪医学检验实验室有限公司)扫描成像。采用ImageJ2 Fiji图像分析软件(version 2.9.0/1.53t,NIH,美国)对每张切片随机选取不少于15个排列整齐、结构完整的绒毛进行分析,测定绒毛高度和隐窝深度,并计算绒毛高度/隐窝深度值。同时,统计每张切片中不少于15个绒毛和隐窝区域的杯状细胞数量。
另取一部分回肠组织(约1 mm3),经2.5%戊二醛固定24 h后,用1%四氧化锇后固定,随后依次进行脱水、包埋和超薄切片。切片经醋酸铀和柠檬酸铅双染后,采用透射电子显微镜(HT7800,Hitachi,日本)观察线粒体超微结构。

1.4.2 回肠组织黏蛋白2(MUC2)分布测定

采用免疫荧光法检测回肠组织中MUC2的分布。回肠石蜡切片经脱蜡、水化、抗原修复和封闭后,分别加入一抗(MUC2,1∶200,Servicebio,武汉赛维尔生物科技有限公司)于4 ℃孵育过夜;次日加入荧光标记二抗(Servicebio,武汉赛维尔生物科技有限公司)并避光孵育,随后用4',6-二脒基-2-苯基吲哚(DAPI)对细胞核染色;染色完成后,采用荧光显微镜(Eclipse C1,Nikon,日本)采集图像,并通过Image-Pro Plus 6.0图像分析软件(Media Cybernetics,美国)进行图像分析。

1.4.3 细胞凋亡检测

采用原位末端标记技术(TUNEL)检测回肠组织细胞凋亡情况。试验操作参照一步法TUNEL细胞凋亡检测试剂盒(G1501,Servicebio,武汉赛维尔生物科技有限公司)说明书进行。每份组织切片随机选取10个典型视野,采用激光扫描共聚焦显微镜(Eclipse C1,Nikon,日本)及图像采集系统(DS-U3,Nikon,日本)进行图像采集。采用Image-Pro Plus 6.0图像分析软件(Media Cybernetics,美国)统计TUNEL阳性细胞数。细胞凋亡率计算公式如下:
细胞凋亡率(%)=100×TUNEL阳性细胞数/总细胞数。

1.4.4 回肠黏膜氧化应激和炎症指标测定

采用酶联免疫吸附测定(ELISA)法测定回肠黏膜中8-羟基脱氧鸟苷(8-OHdG)、白细胞介素-1β(IL-1β)、白细胞介素-6(IL-6)、白细胞介素-8(IL-8)和肿瘤坏死因子-α(TNF-α)含量,所用试剂盒购自武汉华美生物工程有限公司。回肠黏膜中总超氧化物歧化酶(T-SOD)、谷胱甘肽过氧化物酶(GSH-Px)、过氧化氢酶(CAT)活性以及谷胱甘肽(GSH)和丙二醛(MDA)含量采用南京建成生物工程研究所提供的商业试剂盒进行检测,具体操作均按照试剂盒说明书执行。

1.4.5 线粒体功能相关指标检测

采用南京建成生物工程研究所提供的试剂盒测定回肠黏膜中ATP含量。回肠黏膜组织样品采用线粒体分离试剂盒(上海碧云天生物技术有限公司)进行线粒体分离;之后采用北京索莱宝科技有限公司提供的商业试剂盒测定线粒体呼吸链复合物(Ⅰ、Ⅱ、Ⅲ、Ⅳ)活性,上述具体操作均按照试剂盒说明书进行。mtDNA拷贝数通过实时荧光定量PCR扩增线粒体D环区域(正向引物序列为5'-GCCTTGCCAAACCCCAAAAA-3',反向引物序列为5'-TAGGTGCCTGCTTTCGTAGC-3')以及β-肌动蛋白(β-actin)(正向引物序列为5'-TTCTTGGGTATGGAGTCCTG-3',反向引物序列为5'-TAGAAGCATTTGCGGTGG-3');扩增后,通过2-ΔΔCt法计算mtDNA相对拷贝数。

1.4.6 回肠黏膜中相关基因mRNA相对表达量测定

采用TRIzol试剂盒(TaKaRa,日本)从回肠黏膜组织样品中提取总RNA;采用反转录试剂盒(TaKaRa,日本)将RNA逆转录为cDNA,并通过TB Green Premix Ex Taq试剂盒(TaKaRa,日本)进行实时荧光定量PCR检测。所有目的基因以及内参基因[β-肌动蛋白和甘油醛-3-磷酸脱氢酶(GAPDH)]的扩增引物序列见表2。目的基因的mRNA相对表达量采用2-ΔΔCt法进行计算。
表2 引物序列

Table 2 Primer sequences

基因 Genes 引物序列 Primer sequences (5'—3')
闭锁小带蛋白1
ZO1
F:CGAGGCGTGTTTAACAGCAA
R:AAGGACTCAGCAGGGTTTCA
闭锁小带蛋白2
ZO2
F:GCAGAGACAACCCCCACTTT
R:CGTTAACCATGACCACCCGA
闭合蛋白
OCLN
F:CAGGTGCACCCTCCAGATTG
R:TGTCGTTGCTGGGTGCATA
密封蛋白1
CLDN1
F:TTCTGGGAGGTGCCCTACTT
R:TGGATAGGGCCTTGGTGTTG
黏蛋白2
MUC2
F:AGGACGACACCATCTACCTCAC
R:CGTGTGGTTCTGGAACTTACTG
核因子E2相关因子2
Nrf2
F:CCCATTCACAAAAGACAAACATTC
R:GCTTTTGCCCTTAGCTCATCTC
血红素加氧酶1
HO1
F:TCAAGCAGAGGGTCCTCGAA
R:CCTCTTGCGGATGTCGGATG
超氧化物歧化酶1
SOD1
F:AAGGCCGTGTGTGTGCTGAA
R:GATCACCTTCAGCCAGTCCTTT
超氧化物歧化酶2
SOD2
F:GGCCTACGTGAACAACCTGA
R:TGATTGATGTGGCCTCCACC
谷胱甘肽过氧化物酶1
GSH-Px1
F:TGAATGGCGCAAATGCTCAC
R:ATTGCGACACACTGGAGACC
过氧化氢酶
CAT
F:TCCAGCCAGTGACCAGATGA
R:CTCTCCCGGTCAAAGTGAGC
B细胞淋巴瘤2
BCL2
F:ACCCAGGTCTCTGATGAACTCTTCC
R:CACGAGTGGCTCCATCTCCTTATTG
B细胞淋巴瘤2相关X蛋白
BAX
F:GCTGACGGCAACTTCAACTG
R:GAAGGAAGTCCAGCGTCCAG
细胞色素C
CYCS
F:TGGTTAAACTTGAATGCGGAGTG
R:ACACAGGTGAATCTTGCTCTG
半胱天冬酶9
CASP9
F:ACTGCCAAGCAAATGGTCCAG
R:CCATCTGTGCCATAAACAGCC
半胱天冬酶3
CASP3
F:TGGGATTGAGACGGACAGTG
R:CGCTGCACAAAGTGACTGGA
线粒体相关诱导凋亡因子1
AIFM1
F:ACAAATGGCTAGCTCTGGTGC
R:TCTCTTCTGGTGTCAGCCCTA
过氧化物酶体增殖物激活受体γ辅激活因子1α
PGC1α
F:ATCAAGGTCCCCAGGCAGTA
R:CACAGGGGAGAATTTCGGTG
核呼吸因子1
NRF1
F:CAGCTTCGGGCATTTATTCC
R:GACATCGCTCCGAACATTTG
线粒体转录因子A
TFAM
F:AGCTCAGAACCCAGATGCAA
R:ACCTGCCAGTCTGCCCTATA
线粒体融合蛋白1
MFN1
F:AGAAAGCACAAAGCACAGGGGATG
R:CACTGCTGACTGCGAGATACACTC
线粒体融合蛋白2
MFN2
F:GGCAGTTCGCCTCATCA
R:TGTAGTCCTGCGCCAAAA
OPA1线粒体动力蛋白样GTP酶
OPA1
F:ACAGAGGATGGTGCTTGTTGACTTAC
R:ACACAGTATGATGGCGTTGGGATTC
动力蛋白相关蛋白1
DRP1
F:AAGAGGAGTCGCATGTGTCG
R:CATTTCACAAACCCAGGCGG
线粒体裂变蛋白1
FIS1
F:AGGAGCAGCGGGATTATGTC
R:CATGCCCACTAGTCCATCTTTC
帕金蛋白RBR E3泛素蛋白连接酶
PRKN
F:GTGGTTCTGCGGTGGATTCTGAG
R:TTACTGCCTGTGGTTCTTTGGGAAG
PTEN诱导激酶1
PINK1
F:GGCGGTGATTGACTACAGCAAGG
R:TGGTAACTGCGGCTTTCAAGGTG
微管相关蛋白1轻链3α
LC3A
F:GCCTTCTTCCTGCTGGTGAACC
R:GGGAGGCGTAGACCATGTAGAGG
微管相关蛋白1轻链3β
LC3B
F:TTCTTCCTGTTAGTGAACGGACATAGC
R:ATCCATCTTCATCCTTCTCGCTTTCG
β-肌动蛋白
β-actin
F:GGACTTCGAGCAGGAGATGG
R:GCACCGTGTTGGCGTAGAGG
甘油醛-3-磷酸脱氢酶
GAPDH
F:TCGGAGTGAACGGATTTGGC
R:CACCCCATTTGATGTTGGCG

1.4.7 回肠黏膜中相关蛋白相对表达量测定

采用Western Blot方法测定回肠黏膜中紧密连接蛋白[闭锁小带蛋白2(ZO2)、闭合蛋白(OCLN)、密封蛋白1(CLDN1)]及凋亡相关蛋白[B细胞淋巴瘤2相关X蛋白(BAX)、半胱天冬酶3(CASP3)、线粒体相关诱导凋亡因子1(AIFM1)]的蛋白相对表达量。蛋白提取和表达量测定及Western Blot试验按照本课题组前期研究的方法[17]进行。通过TanonTM High-sig ECL Western Blotting Substrate(Tanon,上海天能生命科学有限公司)进行膜的可视化,接着使用ImageJ2 Fiji软件(version 2.9.0/1.53t,NIH,美国)对膜上的蛋白条带进行灰度分析。

1.5 数据统计分析

试验数据经Excel 2024整理后,采用SPSS 23.0软件进行单因素方差分析(one-way ANOVA),采用Tukey-Kramer检验进行多重比较;结果数据以“平均值±标准误(SE)”形式表示,P<0.05为差异显著;结果图片采用Adobe Photoshop软件进行制作。

2 结果与分析

2.1 TAU对采食DON污染饲粮断奶仔猪回肠组织形态结构的影响
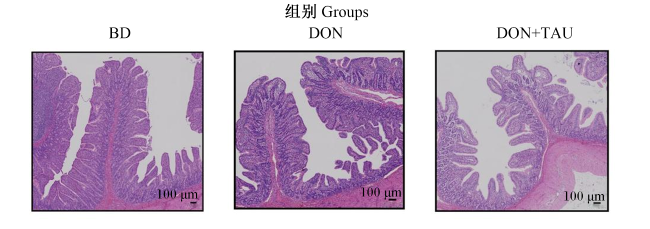
本研究首先评估了饲粮中添加TAU对采食DON污染饲粮断奶仔猪回肠组织形态结构的影响。如图1所示,与BD组相比,DON组断奶仔猪回肠绒毛明显萎缩,排列不整齐,部分绒毛顶端断裂脱落,隐窝加深;与DON组相比,TAU干预可明显缓解上述形态结构的损伤。同时,由表3可知,与BD组相比,DON组回肠绒毛高度和绒毛高度/隐窝深度值显著降低(P<0.05),隐窝深度显著升高(P<0.05);与DON组相比,DON+TAU组回肠绒毛高度和绒毛高度/隐窝深度值显著升高(P<0.05)。
图1 TAU对采食DON污染饲粮断奶仔猪回肠组织形态结构的影响

Fig.1 Effects of TAU on morphological structure of ileum tissues of weaned piglets fed DON-contaminated diets

表3 TAU对采食DON污染饲粮断奶仔猪回肠组织形态结构的影响

Table 3 Effects of TAU on morphological structure of ileum tissues of weaned piglets fed DON-contaminated diets

项目
Items
组别 Groups P
P-value
BD DON DON+TAU
绒毛高度 Villus height/μm 394.33±6.91a 339.38±13.00b 381.42±8.79a 0.004
隐窝深度 Crypt depth/μm 185.94±4.80b 209.96±2.96a 193.07±6.50ab 0.011
绒毛高度/隐窝深度 Villus height/crypt depth 2.13±0.75a 1.61±0.05b 1.99±0.09a <0.001

同行数据肩标不同字母表示差异显著(P<0.05),相同字母或无字母表示差异不显著(P>0.05)。下表同。

In the same row, values with different letter superscripts mean significant difference (P<0.05), while with the same letter or no letter superscripts mean no significant difference (P>0.05). The same as below.

2.2 TAU对采食DON污染饲粮断奶仔猪回肠屏障功能的影响

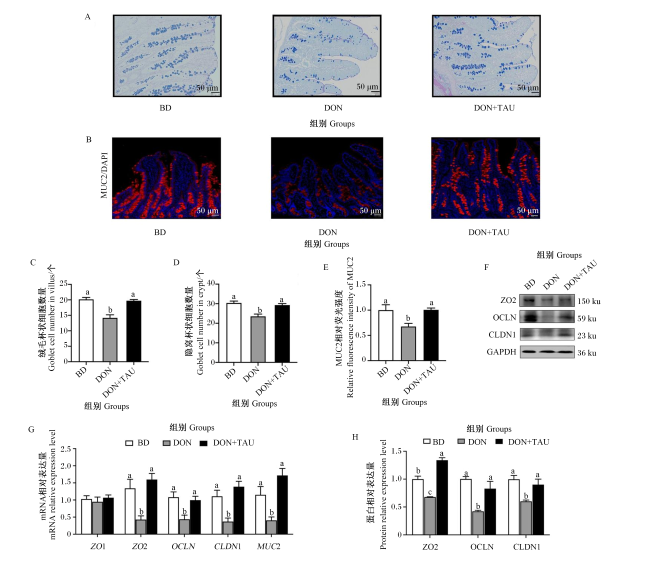
本研究进一步评估了TAU对采食DON污染饲粮断奶仔猪回肠屏障功能的影响。如图2-A图2-C图2-D所示,与BD组相比,DON组断奶仔猪回肠绒毛和隐窝区域的杯状细胞数量显著减少(P<0.05);与DON组相比,DON+TAU组回肠绒毛和隐窝区域的杯状细胞数量显著升高(P<0.05)。如图2-B图2-E图2-G所示,与BD组相比,DON组回肠MUC2相对荧光强度和mRNA相对表达量显著降低(P<0.05);与DON组相比,DON+TAU组回肠MUC2相对荧光强度和mRNA相对表达量显著提高(P<0.05)。此外,如图2-F图2-G图2-H所示,与BD组相比,DON组回肠紧密连接蛋白ZO2、OCLNCLDN1 mRNA和蛋白相对表达量显著降低(P<0.05);与DON组相比,DON+TAU组回肠上述基因mRNA和蛋白相对表达量显著提高(P<0.05)。
图2 TAU对采食DON污染饲粮断奶仔猪回肠屏障功能的影响

A:回肠组织AB-PAS染色 AB-PAS staining of ileal tissues;B:回肠组织免疫荧光染色(红色荧光为黏蛋白2) immunofluorescence staining of ileal tissues (red fluorescence indicated MUC2)。

MUC2:黏蛋白2 mucin 2;DAPI:4',6-二脒基-2-苯基吲哚 4',6-diamidino-2-phenylindole;ZO1:闭锁小带蛋白1 zonula occludens 1;ZO2:闭锁小带蛋白2 zonula occludens 2;OCLN:闭合蛋白 occludin;CLDN1:密封蛋白1 claudin 1;GAPDH:甘油醛-3-磷酸脱氢酶 glyceraldehyde-3-phosphate dehydrogenase。

数据柱标记不同字母表示差异显著(P<0.05)。下图同。Value columns marked with different letters mean significant difference (P<0.05). The same as below.

Fig.2 Effects of TAU on ileal barrier function of weaned piglets fed DON-contaminated diets

2.3 TAU对采食DON污染饲粮断奶仔猪回肠黏膜氧化应激指标和抗氧化相关基因表达的影响

为探究TAU对DON诱导的回肠氧化应激损伤的缓解作用,本研究检测了回肠黏膜中多项氧化应激相关指标。由表4可知,与BD组相比,DON组断奶仔猪回肠黏膜8-OHdG和MDA含量显著提高(P<0.05),回肠黏膜T-SOD和GSH-Px活性及GSH含量显著降低(P<0.05);与DON组相比,DON+TAU组回肠黏膜MDA含量显著降低(P<0.05),回肠黏膜T-SOD活性显著提高(P<0.05)。在抗氧化相关基因表达方面,与BD组相比,DON组回肠黏膜核因子E2相关因子2(Nrf2)、血红素加氧酶1(HO1)、超氧化物歧化酶1(SOD1)和超氧化物歧化酶2(SOD2)mRNA相对表达量显著降低(P<0.05);与DON组相比,DON+TAU组回肠黏膜上述基因mRNA相对表达量显著提高(P<0.05)。
表4 TAU对采食DON污染饲粮断奶仔猪回肠黏膜氧化应激指标和抗氧化相关基因表达的影响

Table 4 Effects of TAU on oxidative stress indices and expression of antioxidant-related genes in ileal mucosa of weaned piglets fed DON-contaminated diets

项目
Items
组别 Groups P
P-value
BD DON DON+TAU
氧化应激指标 Oxidative stress indices
8-羟基脱氧鸟苷 8-OHdG/(ng/mg prot) 0.64±0.06b 0.92±0.18a 0.81±0.14ab 0.009
丙二醛 MDA/(nmol/mg prot) 0.57±0.09b 1.08±0.09a 0.67±0.26b <0.001
总超氧化物歧化酶 T-SOD/(U/mg prot) 181.26±10.52a 118.49±11.72b 196.46±13.30a <0.001
谷胱甘肽过氧化物酶 GSH-Px/(U/mg prot) 20.65±3.14a 17.14±0.67b 18.60±1.60ab 0.032
过氧化氢酶 CAT/(U/mg prot) 3.28±0.31 2.93±0.19 3.03±0.45 0.210
谷胱甘肽 GSH/(nmol/mg prot) 46.60±7.98a 32.95±8.48b 39.56±6.61ab 0.026
抗氧化相关基因表达 Expression of antioxidant-related genes
核因子E2相关因子2 Nrf2 1.04±0.29a 0.42±0.12b 0.91±0.20a <0.001
血红素加氧酶1 HO1 1.12±0.52a 0.43±0.17b 1.20±0.12a 0.002
超氧化物歧化酶1 SOD1 1.01±0.11a 0.72±0.27b 2.52±0.63a <0.001
超氧化物歧化酶2 SOD2 1.02±0.20a 0.56±0.48b 1.82±0.79a 0.001
谷胱甘肽过氧化物酶1 GSH-Px1 1.20±0.59 0.80±0.15 1.22±0.63 0.296
过氧化氢酶 CAT 1.08±0.40 0.67±0.14 0.92±0.46 0.176

2.4 TAU对采食DON污染饲粮断奶仔猪回肠黏膜炎症指标的影响

为评估TAU对采食DON污染饲粮断奶仔猪回肠炎症反应的影响,本研究检测了回肠黏膜中多种促炎因子含量。由表5可知,与BD组相比,DON组断奶仔猪回肠黏膜IL-1β、IL-6和IL-8含量显著提高(P<0.05);与DON组相比,DON+TAU组回肠黏膜IL-1β和IL-8含量显著降低(P<0.05)。
表5 TAU对采食DON污染饲粮断奶仔猪回肠黏膜炎症指标的影响

Table 5 Effects of TAU on inflammatory indices in ileal mucosa of weaned piglets fed DON-contaminated diets

项目
Items
组别 Groups P
P-value
BD DON DON+TAU
白细胞介素-1β IL-1β/(pg/mg prot) 54.02±10.69b 76.45±10.72a 60.48±9.44b 0.005
白细胞介素-6 IL-6/(pg/mg prot) 23.11±4.13b 33.28±6.42a 27.56±2.83ab 0.007
白细胞介素-8 IL-8/(ng/mg prot) 2.96±0.56b 4.31±0.48a 3.29±0.15b <0.001
肿瘤坏死因子-α TNF-α/(ng/mg prot) 1.40±0.28 1.74±0.22 1.47±0.24 0.060

2.5 TAU对采食DON污染饲粮断奶仔猪回肠细胞凋亡的影响

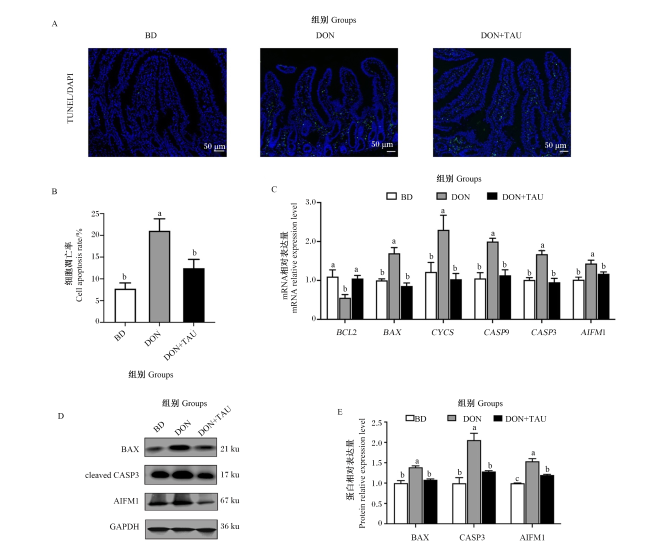
图3-A图3-B所示,TUNEL染色结果表明,与BD组相比,DON组断奶仔猪回肠细胞凋亡率显著提高(P<0.05);与DON组相比,DON+TAU组回肠细胞凋亡率显著降低(P<0.05)。如图3-C所示,进一步检测回肠黏膜中凋亡相关基因的表达发现,与BD组相比,DON组回肠抗凋亡基因B细胞淋巴瘤2(BCL2)mRNA相对表达量显著降低(P<0.05),回肠促凋亡基因BAX、细胞色素C(CYCS)、半胱天冬酶9(CASP9)、CASP3和AIFM1 mRNA相对表达量显著提高(P<0.05);与DON组相比,DON+TAU组回肠上述基因mRNA相对表达量均显著回调(P<0.05)。此外,Western Blot结果(图3-D图3-E)显示,与BD组相比,DON组回肠BAX、裂解(cleaved)CASP3和AIFM1蛋白相对表达量显著提高(P<0.05);与DON组相比,DON+TAU组回肠上述蛋白相对表达量显著降低(P<0.05)。
图3 TAU对采食DON污染饲粮断奶仔猪回肠细胞凋亡的影响

A:回肠组织TUNEL染色(绿色荧光为TUNEL阳性细胞) TUNEL staining of ileal tissues (green fluorescence indicated TUNEL-positive cells)。

TUNEL:原位末端标记技术 TdT-mediated dUTP nick-end labeling;DAPI:4',6-二脒基-2-苯基吲哚 4',6-diamidino-2-phenylindole;BCL2:B细胞淋巴瘤2 B-cell lymphoma 2;BAX:B细胞淋巴瘤2相关X蛋白 B-cell lymphoma 2-associated X protein;CYCS:细胞色素C cytochrome C;CASP9:半胱天冬酶9 Caspase 9;CASP3:半胱天冬酶3 Caspase 3;AIFM1:线粒体相关诱导凋亡因子1 apoptosis inducing factor mitochondria associated 1;cleaved:裂解;GAPDH:甘油醛-3-磷酸脱氢酶 glyceraldehyde-3-phosphate dehydrogenase。

Fig.3 Effects of TAU on ileal cell apoptosis of weaned piglets fed DON-contaminated diets

2.6 TAU对采食DON污染饲粮断奶仔猪回肠线粒体功能及质量控制相关基因表达的影响
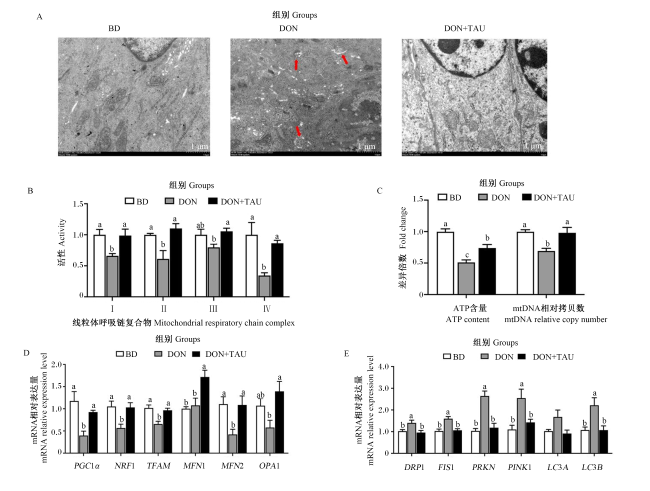
为明确TAU是否能够改善DON诱导的回肠上皮细胞线粒体结构损伤及功能障碍,本研究检测了回肠上皮细胞中线粒体的形态特征及相关功能指标。透射电镜结果(图4-A)显示,DON组断奶仔猪回肠上皮细胞线粒体结构严重受损,表现为膜破裂、嵴断裂及基质空泡化;而饲粮中添加TAU后,线粒体结构明显改善,形态趋于完整,接近正常状态。在线粒体功能方面(图4-B图4-C),与BD组相比,DON组回肠线粒体呼吸链复合物Ⅰ、Ⅱ、Ⅳ活性以及ATP含量和mtDNA相对拷贝数均显著降低(P<0.05);与DON组相比,DON+TAU组回肠线粒体呼吸链复合物Ⅰ、Ⅱ、Ⅲ和Ⅳ活性以及ATP含量和mtDNA相对拷贝数均显著提高(P<0.05)。
图4 TAU对采食DON污染饲粮断奶仔猪回肠线粒体功能及质量控制相关基因表达的影响

A:回肠线粒体超微结构(红色箭头为损伤的线粒体) mitochondrial ultrastructure in ileal tissues (red arrows indicated damaged mitochondria)。

PGC1α:过氧化物酶体增殖物激活受体γ辅激活因子1α peroxisome proliferator-activated receptor γ coactivator 1α;NRF1:核呼吸因子1 nuclear respiratory factor 1;TFAM:线粒体转录因子A transcription factor A, mitochondrial;MFN1:线粒体融合蛋白1 mitofusin 1;MFN2:线粒体融合蛋白2 mitofusin 2;OPA1:OPA1线粒体动力蛋白样GTP酶 OPA1 mitochondrial dynamin like GTPase;DRP1:动力蛋白相关蛋白1 dynamin-related protein 1;FIS1:线粒体裂变蛋白1 fission, mitochondrial 1;PRKN:帕金蛋白RBR E3泛素蛋白连接酶 Parkin RBR E3 ubiquitin protein ligase;PINK1:PTEN诱导激酶1 PTEN induced kinase 1;LC3A:微管相关蛋白1轻链3α microtubule associated protein 1 light chain 3α;LC3B:微管相关蛋白1轻链3β microtubule associated protein 1 light chain 3β。

Fig.4 Effects of TAU on ileal mitochondrial function and quality control-related gene expression of weaned piglets fed DON-contaminated diets

为进一步探究TAU对线粒体质量控制的调节作用,本研究检测了与线粒体生物发生、融合与分裂以及自噬相关的基因表达情况。如图4-D图4-E所示,与BD组相比,DON组断奶仔猪回肠PGC1αNRF1、TFAMMFN2 mRNA相对表达量显著降低(P<0.05),回肠动力蛋白相关蛋白1(DRP1)、FIS1、PRKNPINK1和微管相关蛋白1轻链3β(LC3B)mRNA相对表达量显著提高(P<0.05);与DON组相比,DON+TAU组回肠PGC1αNRF1、TFAMMFN1、MFN2和OPA1 mRNA相对表达量显著提高(P<0.05),回肠DRP1、FIS1、PRKNPINK1和LC3B mRNA相对表达量显著降低(P<0.05)。

3 讨论

DON是一种广泛污染饲料原料及其制品的霉菌毒素,危害断奶仔猪的肠道健康。研究表明,DON暴露可诱导肠上皮细胞发生氧化应激、炎症反应及细胞凋亡,导致黏膜屏障结构和功能受损[3-4]。线粒体被认为是DON介导肠道损伤的关键靶点。有研究指出,DON可通过干扰线粒体质量控制过程,诱发线粒体功能障碍,进而导致肠道结构破坏和功能紊乱[8-9]。TAU是一种具有抗氧化、抗炎等多种生物学功能的含硫β-氨基酸,现有研究表明其可通过调控线粒体质量控制机制来维持线粒体功能稳态,从而发挥细胞保护作用[14]。本课题组前期研究已证实,饲粮中添加3 000 mg/kg TAU可显著缓解DON诱导的断奶仔猪生长性能下降[16],在此基础上,本试验进一步探讨TAU对DON诱导的仔猪回肠损伤的缓解作用及其潜在机制。
回肠组织形态结构与功能的完整性可以反映肠道的健康状态,其中肠道绒毛高度、隐窝深度及绒毛高度/隐窝深度值是反映回肠形态和结构完整性的重要指标[18]。Qiu等[19]研究表明,饲粮中添加3.8 mg/kg DON会显著降低仔猪回肠绒毛高度和绒毛高度/隐窝深度值。与上述报道相似,本研究结果证实DON暴露后断奶仔猪回肠绒毛受损、隐窝加深,进一步表明其对回肠结构完整性具有不良影响。研究发现,饲粮中添加3 000~4 000 mg/kg TAU可提高断奶仔猪空肠和回肠绒毛高度和绒毛高度/隐窝深度值[20]。本试验同样证实,饲粮中添加3 000 mg/kg TAU可显著提高断奶仔猪回肠绒毛高度和绒毛高度/隐窝深度值,降低隐窝深度,从而有效缓解DON诱导的回肠组织形态结构损伤。
肠上皮在维持屏障功能中发挥关键作用,可有效阻止病原体、病毒及毒素等从肠腔进入体循环[21]。杯状细胞分泌的黏蛋白覆盖于上皮细胞表面,形成黏液屏障,构成抵御外源有害因子入侵的首道防线[22]。此外,肠上皮细胞间通过紧密连接形成机械性屏障,对维持肠道结构和功能完整性也至关重要,闭锁小带蛋白1(ZO1)、OCLN和密封蛋白(Claudin)等是构建黏膜屏障的重要紧密连接蛋白[23]。研究表明,DON暴露显著减少仔猪回肠杯状细胞数量,抑制MUC2表达,同时下调ZO1、OCLN和密封蛋白4(CLDN4)等紧密连接蛋白的表达[24]。本试验结果与之一致,进一步确认DON可破坏仔猪回肠屏障功能;而饲粮中添加TAU显著缓解上述损伤。此前研究表明,TAU可改善脂多糖诱导的肉鸡十二指肠中杯状细胞减少和MUC2表达下调[25]。Zhou等[13]也发现,饲粮中添加TAU可提高仔猪空肠ZO1、OCLNCLDN1的表达,从而改善肠道屏障功能。因此,TAU能够通过改善黏液屏障和紧密连接结构,有效缓解DON诱导的仔猪回肠上皮屏障功能破坏。此外,腹泻是肠道屏障功能受损的重要表型指标[26]。本试验观察到DON组断奶仔猪腹泻率升高,而TAU干预降低腹泻率,这与回肠杯状细胞数量以及MUC2和紧密连接蛋白表达的变化趋势一致,这也从表型层面进一步支持TAU对DON诱导的回肠屏障功能损伤具有保护作用。
氧化应激是指机体氧化与抗氧化系统失衡,导致ROS和自由基过度积累,从而引发细胞与组织的氧化损伤;在此过程中,过量ROS还会大量消耗内源性抗氧化物质,削弱抗氧化防御系统,进一步加剧细胞功能紊乱[9]。已有研究证实,DON暴露可显著提高猪空肠中8-OHdG和MDA含量,并抑制T-SOD和GSH-Px等抗氧化酶活性[17]。本研究结果与之相符,表明DON可通过诱导氧化应激损伤仔猪回肠组织。Nrf2是细胞内重要的抗氧化转录因子,能通过激活下游抗氧化基因(如HO1、SOD1、SOD2)表达,增强机体的抗氧化应答能力[27]。本研究发现,DON暴露显著抑制断奶仔猪回肠Nrf2及其下游抗氧化基因的表达,进一步验证了其破坏内源性抗氧化防御系统的作用。TAU可通过清除ROS、增强抗氧化酶活性以及维持非酶类抗氧化物质水平等机制缓解氧化应激[28]。此外,TAU可显著降低回肠MDA含量,提高T-SOD活性,同时上调Nrf2及其下游抗氧化基因表达。这些结果表明TAU可通过激活Nrf2信号通路,增强肠道抗氧化防御能力。综上可知,TAU在缓解DON诱导的氧化应激方面发挥重要作用,凸显其作为营养性抗氧化剂在肠道健康保护中的潜在应用价值。
炎症因子的分泌水平反映肠道的炎症程度与免疫应答状态,因而是评估肠道健康的重要生理指标[29]。Kang等[30]研究表明,DON诱导的氧化应激可激活猪小肠上皮细胞的炎症反应,表现为IL-1βIL-6和TNF-α等促炎因子的表达上调。本研究结果同样证实,DON暴露显著提高断奶仔猪回肠促炎因子IL-1β、IL-6和IL-8含量,表明DON可诱导仔猪回肠发生炎症反应。Zheng等[31]研究表明,TAU可通过降低IL-6和TNF-α等促炎因子含量,缓解小鼠结肠炎所致的肠道炎症反应。本试验结果证实,TAU显著降低断奶仔猪回肠IL-1β和IL-8含量,进一步验证其抗炎潜力。
细胞凋亡是细胞死亡的重要方式之一,受促凋亡与抗凋亡基因共同调控[32]。研究表明,DON诱导的氧化应激可促进肠上皮细胞过度凋亡,加重肠道结构和功能损伤[30]。本试验同样证实,DON暴露会加剧断奶仔猪回肠上皮细胞凋亡。线粒体是介导细胞凋亡的关键调控中心,多种关键因子通过线粒体途径发挥作用。BAX和BCL2同属BCL2蛋白家族,其中BAX为促凋亡蛋白,在氧化应激等刺激下可转位至线粒体外膜,增强膜通透性,促进凋亡因子释放;BCL2则作为抗凋亡蛋白,可抑制BAX活性,维持线粒体膜完整性,阻止细胞凋亡的发生。线粒体释放的CYCS可激活CASP9,进而激活下游执行蛋白CASP3,启动半胱天冬酶(Caspase)依赖性凋亡级联反应。此外,AIFM1在氧化应激等条件下从线粒体释放并转位至细胞核,诱导染色质浓缩与DNA大片段断裂,介导Caspase非依赖性凋亡过程[17]。本研究发现,DON显著上调断奶仔猪回肠BAXCYCSCASP9、CASP3和AIFM1的表达,同时显著下调BCL2表达,表明DON可能通过同时激活Caspase依赖和AIF介导的线粒体凋亡通路,诱导回肠上皮细胞凋亡;而TAU能够通过逆转上述凋亡相关基因和蛋白的表达,抑制DON诱导的回肠上皮细胞凋亡。研究指出,TAU可通过改善线粒体功能状态,缓解有害刺激所致的线粒体依赖性凋亡过程[14]。因此,TAU通过缓解氧化应激、抑制炎症反应及细胞凋亡,从而在维持回肠功能稳态中发挥重要保护作用。
线粒体是细胞能量代谢和信号调控的核心细胞器,在维持肠道上皮稳态中至关重要,被证实为DON介导肠道损伤的重要靶点[7,9]。本研究发现,DON暴露显著破坏断奶仔猪回肠上皮细胞线粒体的超微结构,表现为嵴断裂、基质稀疏等典型病理改变;同时伴随着线粒体呼吸链复合物Ⅰ、Ⅱ、Ⅳ活性以及ATP含量和mtDNA相对拷贝数降低。其中,线粒体呼吸链复合物位于线粒体内膜,是维持氧化磷酸化及ATP合成的关键结构,其功能障碍不仅影响细胞能量代谢,还可导致ROS生成增加和膜电位失衡;ATP作为细胞的主要能量来源,是维持肠上皮屏障功能、离子转运及组织修复的基础;mtDNA则编码多个呼吸链复合物亚基,其拷贝数常用于反映线粒体数量及功能状态,是评估线粒体功能完整性的关键指标[7]。本研究结果与课题组前期有关DON致仔猪空肠线粒体损伤的结果[17]基本一致,进一步证实DON可通过破坏线粒体结构并抑制其功能活性,导致肠道能量代谢障碍,进而加剧肠道损伤。同时,TAU处理可显著缓解肠道损伤,改善线粒体形态,恢复呼吸链复合物活性,提高ATP含量及mtDNA相对拷贝数,这表明TAU可通过维持线粒体功能稳态发挥保护作用。已有研究证实,TAU可通过增强呼吸链功能、抑制ROS过量生成、稳定细胞能量状态,进而减轻线粒体功能障碍所致的组织损伤[33-34],本研究结果进一步确认了该作用。
线粒体质量控制在维持线粒体功能稳态中发挥关键作用,主要包括线粒体生物发生、动态调控(融合与分裂)以及自噬清除等过程[10]。其中,PGC1α、NRF1和TFAM是调控线粒体生物发生的核心因子,通过调节mtDNA复制和线粒体相关蛋白合成,促进新线粒体生成,从而维持其结构完整性和功能稳态。在线粒体动态调控过程中,MFN1、MFN2和OPA1分别介导线粒体外膜和内膜的融合,DRP1与FIS1协同介导线粒体分裂,融合与分裂的动态平衡有助于线粒体群体功能的重建和稳态维持。此外,PINK1/PRKN信号通路在识别损伤线粒体并介导其自噬清除中发挥核心作用,该通路激活后可招募p62蛋白,并与微管相关蛋白1轻链3(LC3)结合,从而启动受损线粒体的清除过程。本研究结果表明,DON暴露显著下调断奶仔猪回肠PGC1αNRF1、TFAMMFN2表达并上调DRP1、FIS1、PINK1、PRKNLC3B表达,证实DON会抑制断奶仔猪回肠中线粒体生物发生,扰乱线粒体动态平衡并诱导线粒体自噬。此前研究显示,DON可通过干扰上述线粒体质量控制过程诱发线粒体功能障碍,进而造成猪肠上皮细胞损伤[11]。San等[15]研究表明,TAU可通过促进线粒体生物发生、融合与抑制分裂以及线粒体自噬,从而缓解蛋鸡脂肪肝出血综合征引起的线粒体损伤。本研究证实,在DON暴露条件下,TAU干预不仅恢复线粒体生物发生相关因子的表达,还显著上调MFN1和OPA1表达,促进线粒体融合,减少线粒体分裂和异常自噬。这一结果提示,TAU可能主要通过增强融合来引导线粒体动态平衡回归,从而抑制分裂及异常线粒体自噬,维持细胞能量代谢和功能稳态。未来将结合体外模型进一步解析其具体分子机制。

4 结论

综上所述,DON暴露会扰乱线粒体质量控制过程,导致线粒体功能障碍,并引发肠上皮氧化应激、炎症反应和细胞凋亡,破坏回肠组织形态结构完整性和屏障功能,最终造成断奶仔猪回肠损伤。饲粮中添加TAU能够有效缓解DON诱导的上述不良效应,其保护作用主要与促进线粒体生物发生、调节融合与分裂的动态平衡并抑制过度自噬,从而维持线粒体功能稳态相关。特别是,本研究发现TAU显著上调融合相关因子MFN1和OPA1的表达,提示其在增强线粒体融合、维持动态平衡方面发挥关键作用。
[1]
DEY D K, KANG J I, BAJPAI V K, et al. Mycotoxins in food and feed:toxicity,preventive challenges,and advanced detection techniques for associated diseases[J]. Critical Reviews in Food Science and Nutrition, 2023, 63(27):8489-8510.

DOI

[2]
JIA B X, LIN H K, YU S, et al. Mycotoxin deoxynivalenol-induced intestinal flora disorders,dysfunction and organ damage in broilers and pigs[J]. Journal of Hazardous Materials, 2023, 451:131172.

DOI

[3]
JI X, ZHANG Q, ZHENG W J, et al. Morphological and molecular response of small intestine to lactulose and hydrogen-rich water in female piglets fed Fusarium mycotoxins contaminated diet[J]. Journal of Animal Science and Biotechnology, 2019, 10(1):9.

DOI

[4]
FAN J P, ZHANG Y H, ZUO M Y, et al. Novel mechanism by which extracellular vesicles derived from Lactobacillus murinus alleviates deoxynivalenol-induced intestinal barrier disruption[J]. Environment International, 2024, 185:108525.

DOI

[5]
LI X, GOU F Y, ZHU J, et al. Deoxynivalenol induced intestinal barrier injury,mitochondrial dysfunction and calcium overload by inositol 1,4,5-triphosphate receptors (IP3Rs)-mitochondrial calcium uniporter (MCU) calcium axis[J]. Science of the Total Environment, 2024, 913:169729.

DOI

[6]
TANG W J, ZHONG Y F, WEI Y S, et al. Ileum tissue single-cell mRNA sequencing elucidates the cellular architecture of pathophysiological changes associated with weaning in piglets[J]. BMC Biology, 2022, 20(1):123.

DOI PMID

[7]
HAQUE P S, KAPUR N, BARRETT T A, et al. Mitochondrial function and gastrointestinal diseases[J]. Nature Reviews Gastroenterology & Hepatology, 2024, 21(8):537-555.

[8]
XUE D F, CHENG Y T, PANG T T, et al. Sodium butyrate alleviates deoxynivalenol-induced porcine intestinal barrier disruption by promoting mitochondrial homeostasis via PCK2 signaling[J]. Journal of Hazardous Materials, 2023, 459:132013.

DOI

[9]
WANG S, WU K T, XUE D F, et al. Mechanism of deoxynivalenol mediated gastrointestinal toxicity:insights from mitochondrial dysfunction[J]. Food and Chemical Toxicology, 2021, 153:112214.

DOI

[10]
杨硕, 霍敏, 苏子轩, 等. 线粒体质量控制对畜禽氧化应激影响的研究进展[J]. 畜牧兽医学报, 2024, 55(9):3769-3776.

DOI

YANG S, HUO M, SU Z X, et al. Research progress on the impact of mitochondrial quality control on oxidative stress in livestock and poultry[J]. Acta Veterinaria et Zootechnica Sinica, 2024, 55(9):3769-3776. (in Chinese)

DOI

[11]
CAI Z H, CHEN F J, WANG Y S, et al. Lycopene maintains mitochondrial homeostasis to counteract the enterotoxicity of deoxynivalenol[J]. Antioxidants, 2023, 12(11):1958.

DOI

[12]
JANGRA A, GOLA P, SINGH J, et al. Emergence of taurine as a therapeutic agent for neurological disorders[J]. Neural Regeneration Research, 2024, 19(1):62-68.

DOI

[13]
ZHOU M, WU Z C, DENG D H, et al. Effects of taurine on the growth performance,diarrhea,oxidative stress and intestinal barrier function of weanling piglets[J]. Frontiers in Veterinary Science, 2024, 11:1436282.

DOI

[14]
JONG C J, SANDAL P, SCHAFFER S W. The role of taurine in mitochondria health:more than just an antioxidant[J]. Molecules, 2021, 26(16):4913.

DOI

[15]
SAN J S, HU J M, PANG H P, et al. Taurine protects against the fatty liver hemorrhagic syndrome in laying hens through the regulation of mitochondrial homeostasis[J]. International Journal of Molecular Sciences, 2023, 24(12):10360.

DOI

[16]
JI X, TANG Z Q, ZHANG F, et al. Dietary taurine supplementation counteracts deoxynivalenol-induced liver injury via alleviating oxidative stress,mitochondrial dysfunction,apoptosis,and inflammation in piglets[J]. Ecotoxicology and Environmental Safety, 2023, 253:114705.

DOI

[17]
JI X, DING H Y, ZHOU F, et al. Taurine ameliorates deoxynivalenol-induced intestinal injury in piglets:restoration of mitochondrial function linked to the PGC1α-NRF1/2 axis[J]. Ecotoxicology and Environmental Safety, 2025, 292:117938.

DOI

[18]
CHENG Y T, DING S J, AZAD M A K, et al. Comparison of the pig breeds in the small intestinal morphology and digestive functions at different ages[J]. Metabolites, 2023, 13(1):132.

DOI

[19]
QIU Y Q, YANG J, WANG L, et al. Dietary resveratrol attenuation of intestinal inflammation and oxidative damage is linked to the alteration of gut microbiota and butyrate in piglets challenged with deoxynivalenol[J]. Journal of Animal Science and Biotechnology, 2021, 12(1):71.

DOI PMID

[20]
WANG L G, JIANG L W, CHU Y Y, et al. Dietary taurine improves growth performance and intestine health via the GSH/GSSG antioxidant system and Nrf2/ARE signaling pathway in weaned piglets[J]. Antioxidants, 2023, 12(10):1852.

DOI

[21]
ODENWALD M A, TURNER J R. The intestinal epithelial barrier:a therapeutic target?[J]. Nature Reviews Gastroenterology & Hepatology, 2017, 14(1):9-21.

[22]
GUSTAFSSON J K, JOHANSSON M E V. The role of goblet cells and mucus in intestinal homeostasis[J]. Nature Reviews Gastroenterology & Hepatology, 2022, 19(12):785-803.

[23]
OTANI T, FURUSE M. Tight junction structure and function revisited[J]. Trends in Cell Biology, 2020, 30(10):805-817.

DOI PMID

[24]
BAI Y S, MA K D, LI J B, et al. Lactobacillus rhamnosus GG ameliorates DON-induced intestinal damage depending on the enrichment of beneficial bacteria in weaned piglets[J]. Journal of Animal Science and Biotechnology, 2022, 13(1):90.

DOI

[25]
XIAO M, MI Y L, LIU L J, et al. Taurine regulates mucosal barrier function to alleviate lipopolysaccharide-induced duodenal inflammation in chicken[J]. Amino Acids, 2018, 50(11):1637-1646.

DOI PMID

[26]
TANG X P, XIONG K N, ZENG Y, et al. The mechanism of zinc oxide in alleviating diarrhea in piglets after weaning:a review from the perspective of intestinal barrier function[J]. International Journal of Molecular Sciences, 2024, 25(18):10040.

DOI

[27]
BAIRD L, YAMAMOTO M. The molecular mechanisms regulating the KEAP1-NRF2 pathway[J]. Molecular and Cellular Biology, 2020, 40(13):e00099-20.

[28]
SURAI P F, EARLE-PAYNE K, KIDD M T. Taurine as a natural antioxidant:from direct antioxidant effects to protective action in various toxicological models[J]. Antioxidants, 2021, 10(12):1876.

DOI

[29]
WANG W Q, CAO W F, ZHANG S Y, et al. The role of calprotectin in the diagnosis and treatment of inflammatory bowel disease[J]. International Journal of Molecular Sciences, 2025, 26(5):1996.

DOI

[30]
KANG R F, LI R N, DAI P Y, et al. Deoxynivalenol induced apoptosis and inflammation of IPEC-J2 cells by promoting ROS production[J]. Environmental Pollution, 2019, 251:689-698.

DOI PMID

[31]
ZHENG J M, ZHANG J L, ZHOU Y W, et al. Taurine alleviates experimental colitis by enhancing intestinal barrier function and inhibiting inflammatory response through TLR4/NF-κB signaling[J]. Journal of Agricultural and Food Chemistry, 2024, 72(21):12119-12129.

DOI PMID

[32]
YANG X P, ZHENG H, NIU J L, et al. Curcumin alleviates zearalenone-induced liver injury in mice by scavenging reactive oxygen species and inhibiting mitochondrial apoptosis pathway[J]. Ecotoxicology and Environmental Safety, 2024, 277:116343.

DOI

[33]
AN W T, HUANG Z Q, MAO Z Y, et al. Dietary taurine supplementation improves the meat quality,muscle fiber type,and mitochondrial function of finishing pigs[J]. Journal of Agricultural and Food Chemistry, 2023, 71(41):15331-15340.

DOI

[34]
SEIDEL U, HUEBBE P, RIMBACH G. Taurine:a regulator of cellular redox homeostasis and skeletal muscle function[J]. Molecular Nutrition & Food Research, 2019, 63(16):1800569.

文章导航

/