研究论文

功能益生菌对奶牛体外瘤胃挥发性脂肪酸合成及其上皮吸收的影响

  • 陈思宇 , 1, 2 ,
  • 高炳南 1, 2 ,
  • 王秋菊 , 1, 2, * ,
  • 崔一喆 1, 2 ,
  • 王莹 1, 2 ,
  • 李远 1, 2
展开
  • 1 黑龙江八一农垦大学动物科技学院, 大庆 163319
  • 2 黑龙江省寒区白鹅种质资源发掘与创新利用重点试验室, 大庆 163319
*王秋菊,教授,博士生导师,E-mail:

陈思宇(2001—),女,黑龙江海伦人,硕士研究生,研究方向为动物营养与饲料科学。E-mail:

收稿日期: 2025-07-17

  网络出版日期: 2026-03-16

基金资助

黑龙江省双一流特色学科平台项目(HLJ2022TSXK)

黑龙江省“百千万”工程科技重大专项(2021ZX12B03)

黑龙江省省院科技合作项目(2019B01)

Effects of Functional Probiotics on Rumen Volatile Fatty Acids Synthesis and Epithelial Absorption of Dairy Cows in Vitro

  • CHEN Siyu , 1, 2 ,
  • GAO Bingnan 1, 2 ,
  • WANG Qiuju , 1, 2, * ,
  • CUI Yizhe 1, 2 ,
  • WANG Ying 1, 2 ,
  • LI Yuan 1, 2
Expand
  • 1 College of Animal Science and Veterinary, Heilongjiang Bayi Agricultural University, Daqing 163319, China
  • 2 Key Laboratory of Genetic Resource Discovery and Innovative Utilization of Cold-Region White Geese in Heilongjiang Province, Daqing 163319, China
*professor, E-mail:

Received date: 2025-07-17

  Online published: 2026-03-16

摘要

本试验旨在探究4种从奶牛瘤胃中分离得到的功能益生菌[乳酸片球菌(Pediococcus acidilactici)、枯草芽孢杆菌(Bacillus subtilis)、解淀粉芽孢杆菌(Bacillus amyloliquefaciens)及粪肠球菌(Enterococcus faecalis)]对奶牛体外瘤胃挥发性脂肪酸(VFAs)合成及其上皮吸收的影响。试验首先建立并验证了瘤胃上皮组织体外双层培养模型,在此基础上,采集3头健康荷斯坦奶牛的瘤胃液与瘤胃上皮组织,随机分为5组(对照组及4个益生菌试验组),每组设置3个重复。对照组在培养体系上层添加5 mL蒸馏水,各试验组分别添加5 mL浓度为1×10⁹ CFU/mL的乳酸片球菌、枯草芽孢杆菌、解淀粉芽孢杆菌及粪肠球菌菌液。39 ℃厌氧培养24 h后测定VFAs浓度,并检测瘤胃上皮组织中VFAs吸收相关蛋白和基因的表达。结果表明:1)在本试验所建立的体外双层培养模型中瘤胃上皮组织可维持长达36 h的活性与结构完整性。2)与对照组相比,接种4种益生菌极显著提高了发酵液中乙酸和总挥发性脂肪酸浓度(P<0.01)。3)与对照组相比,解淀粉芽孢杆菌组瘤胃上皮质子偶联氨基酸转运蛋白1(PAT1)和阴离子交换蛋白2(AE2)蛋白相对表达量极显著提高(P<0.01),单羧酸转运蛋白1(MCT1)蛋白相对表达量显著提高(P<0.05),钠-氢交换蛋白3(NHE3)、钠-氢交换蛋白4(NHE4)基因相对表达量显著提高(P<0.05);乳酸片球菌组瘤胃上皮MCT1和PAT1蛋白相对表达量极显著提高(P<0.01),腺瘤下调蛋白(DRA)和AE2蛋白相对表达量显著提高(P<0.05),钠-氢交换蛋白1(NHE1)基因相对表达量极显著提高(P<0.01),NHE3和NHE4基因相对表达量显著提高(P<0.05);枯草芽孢杆菌组瘤胃上皮PAT1和AE2蛋白相对表达量极显著提高(P<0.01);粪肠球菌组瘤胃上皮PAT1蛋白相对表达量显著提高(P<0.05)。综上所述,本研究证实了离体瘤胃组织培养模型适用于益生菌功能的研究,且瘤胃源乳酸片球菌、枯草芽孢杆菌、解淀粉芽孢杆菌与粪肠球菌可促进瘤胃VFAs合成,并增强瘤胃上皮对VFAs的吸收功能。

本文引用格式

陈思宇 , 高炳南 , 王秋菊 , 崔一喆 , 王莹 , 李远 . 功能益生菌对奶牛体外瘤胃挥发性脂肪酸合成及其上皮吸收的影响[J]. 动物营养学报, 2026 , 38(3) : 2266 -2276 . DOI: 10.12418/CJAN2026.181

Abstract

This experiment was conducted to investigate the effects of four functional probiotics isolated from the rumen of dairy cows (Pediococcus acidilactici, Bacillus subtilis, Bacillus amyloliquefaciens and Enterococcus faecalis) on rumen volatile fatty acids (VFAs) synthesis and epithelial absorption of dairy cows in vitro. Firstly, a dual-layer in vitro culture model of rumen epithelial tissue was established and validated. On this basis, rumen fluid and rumen epithelial tissue were collected from three healthy Holstein cows and randomly divided into five groups (a control group and four probiotic test groups) with three replicates per group. The control group was supplemented with 5 mL of distilled water in the upper layer of the culture system, and each test group was supplemented with 5 mL of corresponding probiotic bacterial suspension at a concentration of 1×10⁹ CFU/mL, including Pediococcus acidilactici, Bacillus subtilis, Bacillus amyloliquefaciens and Enterococcus faecalis respectively. After anaerobic culture at 39 ℃ for 24 h, the concentration of VFAs was determined, and the expression of proteins and genes related to VFAs absorption in rumen epithelial tissue was detected. The results showed as follows: 1) the rumen epithelial tissue could maintain viability and structural integrity for up to 36 h in the dual-layer in vitro culture model established in this experiment. 2) Compared with the control group, inoculation with the four probiotics extremely significantly increased the concentrations of acetate and total volatile fatty acids in the fermentation broth (P<0.01). 3) Compared with the control group, the protein relative expression levels of proton-coupled amino acid transporter 1 (PAT1) and anion exchanger 2 (AE2) in rumen epithelium were extremely significantly increased (P<0.01), the protein relative expression level of monocarboxylate transporter 1 (MCT1) was significantly increased (P<0.05), and the gene relative expression levels of sodium-hydrogen exchanger 3 (NHE3) and sodium-hydrogen exchanger 4 (NHE4) were significantly increased (P<0.05) in the Bacillus amyloliquefaciens group; in the Pediococcus acidilactici group, the protein relative expression levels of MCT1 and PAT1 in rumen epithelium were extremely significantly increased (P<0.01), the protein relative expression levels of down-regulated in adenoma (DRA) and AE2 were significantly increased (P<0.05), the gene relative expression level of sodium-hydrogen exchanger 1 (NHE1) was extremely significantly increased (P<0.01), and the gene relative expression levels of NHE3 and NHE4 were significantly increased (P<0.05); in the Bacillus subtilis group, the protein relative expression levels of PAT1 and AE2 in rumen epithelium were extremely significantly increased (P<0.01); in the Enterococcus faecalis group, the protein relative expression level of PAT1 in rumen epithelium was significantly increased (P<0.05). In conclusion, this study confirmed that the in vitro culture model of rumen epithelial tissue is suitable for the study of probiotic functions, and the rumen-derived Pediococcus acidilactici, Bacillus subtilis, Bacillus amyloliquefaciens and Enterococcus faecalis can promote rumen VFAs synthesis and enhance the VFAs absorption function of rumen epithelium.

瘤胃作为反刍动物体内进行饲粮发酵的主要场所,在将复杂植物纤维分解为可吸收营养物质的过程中发挥着关键作用[1]。瘤胃微生物群落(包括细菌、古菌、真菌及原生动物)对乙酸、丙酸和丁酸等挥发性脂肪酸(VFAs)的生成具有重要影响[2]。这些VFAs不仅是反刍动物能量代谢的核心底物,也有助于维持肠道菌群生态系统的稳定。肠道菌群与宿主之间的共生关系对反刍动物的健康和生产性能至关重要,菌群可通过降解纤维素、半纤维素等难以消化的物质,有效促进营养物质的消化与吸收。在奶牛生产中,瘤胃代谢物(如氨基酸、羧酸和脂肪酸等)的相对丰度及VFAs的绝对浓度是决定乳品质的主要因素[3]。为提升VFAs浓度,可在饲粮中添加益生菌制剂(如丁酸梭菌、酿酒酵母等),以优化瘤胃发酵过程,提高VFAs的合成效率[4-5]
当前提高瘤胃VFAs浓度的技术手段主要分为2类:外源性添加调控法与饲粮结构优化法。前者通过调控瘤胃菌群结构提升纤维降解速率;后者则通过提高饲粮中精饲料配比实现VFAs产量的提升[6-7]。然而,这2种传统方法均存在显著局限性。外源性添加调控法可能破坏瘤胃微生物系统稳态,导致宿主对代谢性疾病的易感性升高;饲粮结构优化法虽能在短期内提高VFAs产量,但精饲料比例的增加可能会诱发亚急性瘤胃酸中毒,并加剧养殖成本负担[8-10]。因此,在维持瘤胃微生物系统稳态的前提下,定向富集具有特定功能的益生菌菌群被认为是突破VFAs合成效率瓶颈的最佳路径。研究证实,纤维素降解菌与VFAs合成菌等特定功能性菌株可以显著增强瘤胃发酵效率,进而提高反刍动物的营养代谢效率[11-12]
VFAs通过蛋白依赖性转运途径被瘤胃上皮高效吸收,并转运至血液循环系统[13-14]。研究证实,瘤胃上皮对VFAs的吸收机制具有多途径协同特性,主要包括:1)通过膜转运蛋白[如阴离子交换蛋白2(AE2)、质子偶联氨基酸转运蛋白1(PAT1)]实现VFAs与胞内氢离子(H+)的交换;2)借助单羧酸转运蛋白(MCT,如MCT1、MCT4)介导VFAs与胞内H+的协同转运;3)通过钠-氢交换蛋白(NHE,如NHE1、NHE3)调控胞内pH稳态[15-17]。有研究发现,短期饲喂高谷物饲粮后,奶牛瘤胃内酸杆菌属(Acidobacterium)、乙酸弧菌属(Acetivibrio)、碱杆菌属(Alkalibaculum)、厌氧杆状菌属(Anaerorhabdus)、粪球菌属(Coprococcus)及脱硫杆菌属(Desulfobacter)的相对丰度发生了变化,且这些菌群相对丰度与瘤胃上皮NHE2、NHE3、MCT1及腺瘤下调蛋白(DRA)基因的表达水平呈显著相关,表明VFAs生成相关功能菌株与瘤胃上皮VFAs吸收相关基因之间可能存在复杂的分子互作网络[18]。但目前在奶牛生产中,关于通过添加瘤胃原生功能益生菌菌株以增强VFAs吸收的相关研究仍需进一步深入。
尽管研究学者们已针对瘤胃微生物开展了大量研究,但对其特异性代谢机制及菌群间互作网络的了解仍较为有限。现有研究多集中于菌群整体功能表征,对介导VFAs合成的关键功能性菌株及其分子机制缺乏深度解析,这一认知缺口阻碍了反刍动物营养利用效能的提升。基于此,本研究旨在通过构建奶牛体外发酵模型,系统探究4株瘤胃原生益生菌菌株对VFAs合成及瘤胃上皮吸收通路关键蛋白及基因表达的影响,以期在维持瘤胃原有微生物系统稳态的前提下,通过增加瘤胃原生功能益生菌的相对丰度,提高瘤胃发酵效率和反刍动物的生产性能。

1 材料与方法

1.1 伦理声明

本研究经黑龙江八一农垦大学动物福利与伦理委员会批准,批准号为DWKJXY2025028。

1.2 试验设计与方法

1.2.1 瘤胃上皮组织体外培养

选取3头来自黑龙江省大庆市某屠宰场的体重为(612.34±24.92) kg的3岁龄健康荷斯坦奶牛,经颈动脉放血处死后,立即进行内脏器官及消化道解剖,采集瘤胃内容物。使用预温至39 ℃的磷酸盐缓冲液(PBS)冲洗瘤胃内容物后,利用钝头手术剪分离获取瘤胃上皮组织样本。将所得组织样本置于预温至39 ℃的保存液(含1%青霉素-链霉素、6 μg/mL庆大霉素及两性霉素B,以500 mL PBS配制)中备用,用于后续的试验建模。
采用定制双层结构培养瓶(250 mL锥形瓶配15 mL套管)进行体外培养。上层通过持续氮气冲洗构建厌氧环境,模拟瘤胃低氧状态;下层维持含5%二氧化碳与95%空气的混合气体环境,模拟瘤胃细胞微需氧状态。下层培养基体系为150 mL DMEM/F-12基础培养基,添加5%胎牛血清、1%胰岛素-转铁蛋白-硒复合物、5 ng/mL表皮生长因子以及2%青霉素-链霉素与0.1 mg/mL硫酸庆大霉素;上层用于添加瘤胃上皮组织与瘤胃环境模拟物(1 g饲粮、5 mL瘤胃液及5 mL人工唾液)的混合物。
人工唾液制备:465 mL蒸馏水;0.12 mL微量元素液(13.2 g CaCl2·2H2O,10.0 g MnCl2·4H2O,1.0 g CoCl2·6H2O,8.0 g FeCl3·6H2O,用蒸馏水溶解并定容至100 mL);232.5 mL缓冲液(35.0 g NaHCO3,41.0 g NH4HCO3,用蒸馏水溶解并定容至1 000 mL);232.5 mL常量元素液(5.7 g Na2HPO4,6.2 g KH2PO4,0.06 g MgSO4·7H2O,用蒸馏水溶解并定容至1 000 mL);1.2 mL刃天青溶液;0.699 mL还原液(410 mL 1 mol/L NaOH溶液,625 mg Na2S·9H2O,蒸馏水95 mL),将上述组分混匀,在39 ℃水浴锅中缓慢充入二氧化碳15~20 min,直至溶液变为无色。体外培养体系所用饲粮组成见表1
表1 体外培养体系所用饲粮组成(风干基础)

Table 1 Composition of the diet used in the in vitro culture system ((air-dry basis)

项目 Items 含量 Content
原料 Ingredients
玉米青贮 Corn silage 66.75
玉米粉 Corn flour 10.27
羊草 Leymus chinensis 1.80
豆粕 Soybean meal 6.42
玉米胚芽粕 Corn germ meal 3.85
菜籽粕 Rapeseed meal 1.28
棉籽粕 Cottonseed meal 3.85
预混料 Premix 5.78
合计 Total 100.00

预混料为每千克饲粮提供 The premix provided the following per kg of the diet:Fe 38.77 mg,Zn 30.91 mg,Cu 5.17 mg,Mn 20.78 mg,Se 0.15 mg,Co 0.28 mg,I 0.27 mg,VA 2 000 IU,VD 530 IU,VE 14.18 IU。

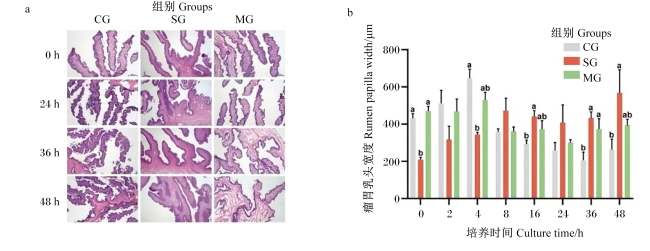
基于上述双层培养体系,将采集的瘤胃上皮组织分为3组,以明确不同干预条件对组织存活及功能的影响:空白对照组(CG组),上层仅放置瘤胃上皮组织,不添加瘤胃环境模拟物,下层不添加培养液,用于评估离体瘤胃上皮组织在无干预下的基础衰变水平;标准组(MG组),上层仅放置瘤胃上皮组织,不添加瘤胃环境模拟物,下层添加培养液,用于验证基础营养液对瘤胃上皮组织存活的支持作用;试验组(SG组),上层添加瘤胃上皮组织与瘤胃环境模拟物的混合物,下层添加培养液,模拟最接近体内的微环境,用于特异性探究模拟物对瘤胃上皮功能的调控作用。每组设21个培养瓶(每个时间点3个重复),置于39 ℃二氧化碳培养箱(型号BPN-150CH,上海一恒科学仪器有限公司)中持续培养48 h,分别于培养2、4、8、16、24、36和48 h后采集瘤胃上皮组织样品,用于测定形态结构。

1.2.2 瘤胃微生物分离

选取10头来自黑龙江省黑河市某牧场的体重为(603.57±23.65) kg、年产奶量>10 t的3岁龄健康荷斯坦奶牛,晨饲前通过胃管采集每头牛瘤胃液样本各50 mL,于4 ℃保存备用,用于后续的微生物分离。
采集的瘤胃液经纱布过滤后,以698.75×g的离心力离心10 min,制备高浓度菌悬液。菌悬液经梯度稀释后接种于羧甲基纤维素钠琼脂(CMC)平板,将平板置于LAI-3D型厌氧培养箱(上海龙跃仪器设备有限公司)中39 ℃厌氧培养24 h;采用平板划线法重复纯化操作4~5次,获得单菌落;选取生长状态最佳的4株菌株,用于后续试验。
采用DP302-02试剂盒[天根生化科技(北京)有限公司],严格按照试剂盒说明书操作,提取上述4株分离菌株的基因组DNA。以细菌基因组DNA为模板,使用引物338F(5'-ACTCCTACGGGAGGCAGCAG-3')和806R(5'-GGACTACHVGGGTWTCTAAT-3')对细菌16S rRNA基因的V3~V4可变区进行PCR扩增。PCR反应条件如下:94 ℃预变性5 min;94 ℃变性30 s,55 ℃退火30 s,72 ℃延伸30 s(35个循环);72 ℃终延伸10 min。扩增产物送至生工生物工程(上海)股份有限公司完成测序,所得序列数据已提交至美国国立生物技术信息中心(NCBI)的GenBank基因数据库,登录号依次为ON384911、ON377330、ON384910、ON377264。经序列比对鉴定,4株菌株分别为解淀粉芽孢杆菌(Bacillus amyloliquefaciens)、乳酸片球菌(Pediococcus acidilactici)、枯草芽孢杆菌(Bacillus subtilis)及粪肠球菌(Enterococcus faecalis)。

1.2.3 基于瘤胃上皮组织体外双层培养模型的功能益生菌处理试验

选取3头来自黑龙江省大庆市某屠宰场的体重为(592.14±23.68) kg的3岁龄健康荷斯坦奶牛,采用1.2.1中的方法采集瘤胃液及瘤胃上皮组织。试验采用1.2.1建立的瘤胃上皮组织体外双层培养模型,并引入4种从奶牛瘤胃里分离出的益生菌菌株(解淀粉芽孢杆菌、乳酸片球菌、枯草芽孢杆菌和粪肠球菌)。将采集的瘤胃上皮组织随机分为5组,每组设置3个重复瓶。其中,对照组在培养体系上层添加5 mL蒸馏水,4个试验组分别添加5 mL浓度为1×10⁹ CFU/mL的解淀粉芽孢杆菌、乳酸片球菌、枯草芽孢杆菌和粪肠球菌菌液。所有培养瓶置于39 ℃厌氧条件下培养24 h后取样,分离发酵后的上清液及内容物用于测定VFAs浓度,瘤胃上皮组织经PBS冲洗后于-80 ℃保存,用于测定相关蛋白及基因的表达。

1.3 指标测定

1.3.1 瘤胃上皮组织形态结构

1.2.1中各时间点采集的瘤胃上皮组织样品经4%多聚甲醛固定、脱水、透明及石蜡包埋后,制备3~4 μm厚切片。切片经二甲苯、乙醇脱蜡复水后,进行苏木精-伊红(HE)染色,最后脱水透明并用中性树胶封片,采用光学显微镜观察瘤胃乳头形态,并测定瘤胃乳头宽度。

1.3.2 VFAs浓度

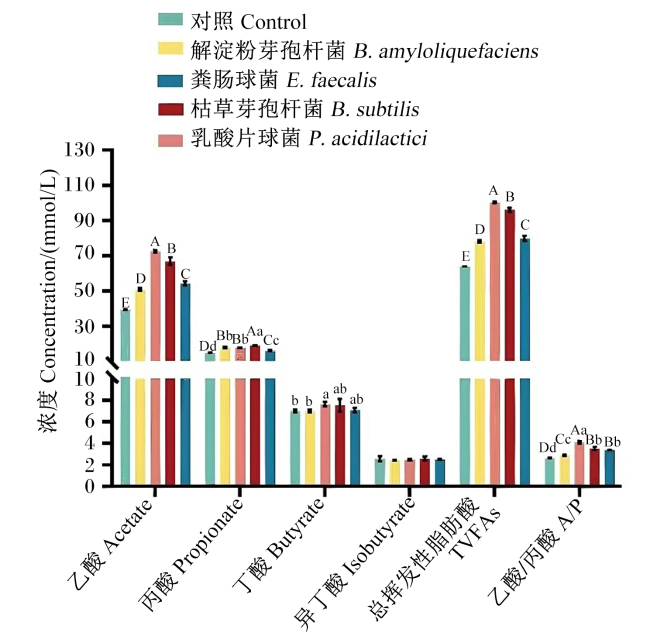
将收集的上清液及内容物样本以3 260×g离心10 min,取1 mL上清液与2 mL超纯水混合,涡旋振荡10 min;将混合液置于4 ℃低温环境下超声处理15 min,随后以1 789×g离心10 min。取1 mL离心后的上清液,经0.45 μm滤膜过滤后,使用Agilent 7890N气相色谱仪(Agilent公司,美国)进行VFAs浓度检测。色谱条件如下:以氮气为载气,选用Agilent DB-23色谱柱(60 m×0.25 mm×0.25 μm);进样口温度270 ℃,检测器温度280 ℃;氢气流速50 mL/min,氮气流速30 mL/min,空气流速500 mL/min,分流比50∶1;柱温箱初始温度为80 ℃(保持4 min),以10 ℃/min的速率升至180 ℃(保持1 min),载气流速2 mL/min,进样量2 μL。

1.3.3 蛋白质免疫印迹(Western blot)分析

取瘤胃上皮组织样本,使用蛋白质提取试剂盒[生工生物工程(上海)股份有限公司]提取总蛋白,采用二喹啉甲酸(BCA)蛋白定量试剂盒(上海碧云天生物技术有限公司)测定蛋白浓度,具体操作步骤参照试剂盒说明书。取25 μg蛋白样品经十二烷基硫酸钠-聚丙烯酰胺凝胶电泳(SDS-PAGE)分离后,转印至聚偏二氟乙烯(PVDF)膜(Millipore公司,美国)。将PVDF膜置于含3%牛血清白蛋白的Tris缓冲盐溶液-吐温20(TBST)中室温封闭2 h;随后分别与MCT1、DRA、PAT1、AE2及甘油醛-3-磷酸脱氢酶(GAPDH)一抗(Abcam公司,英国)在4 ℃条件下孵育过夜。孵育结束后,用TBST洗膜3次,每次5 min;再将膜与辣根过氧化物酶(HRP)标记的二抗室温孵育45 min。采用增强化学发光液(Millipore公司,美国)进行蛋白条带显影检测,以GAPDH为内参蛋白,测定MCT1、DRA、PAT1和AE2蛋白相对表达量。试验设置3次重复。

1.3.4 RNA提取及实时荧光定量PCR(qRT-PCR)检测

使用TRIzol试剂[宝生物工程(大连)有限公司]从瘤胃上皮组织中提取总RNA,具体操作步骤参照说明书。提取后通过Qubit 4荧光计(Thermo Fisher Scientific公司,美国)测定RNA浓度与纯度,合格后用于后续qRT-PCR试验。取约2 μg总RNA,使用PrimeScript逆转录酶[宝生物工程(大连)有限公司]在20 μL反应体系中合成cDNA,具体操作步骤参照说明书。基因引物序列见表2。采用SYBR Green Plus试剂盒[宝生物工程(大连)有限公司]进行qRT-PCR检测,反应条件如下:95 ℃初始变性30 s;95 ℃变性10 s,60 ℃退火30 s,72 ℃延伸30 s,共40个循环。所有反应设置3次重复,以GAPDH为内参基因,采用2-△△Ct法计算NHE1、NHE3和NHE4基因相对表达量。
表2 引物序列

Table 2 Primer sequences

基因
Genes
正向引物序列
Forward primer sequences (5'—3')
反向引物序列
Reverse primer sequences (5'—3')
钠-氢交换蛋白1 NHE1 CCATTCCTTCGCTGAACACA CAGCAACCCCACCACAATG
钠-氢交换蛋白3 NHE3 GCTGGGAGAACGGATGAAAG AGAAGGTCAGCTCAGAAGTCTCG
钠-氢交换蛋白4 NHE4 GGACATTTTGGCTGGATGTG CTGGGTGAAACGGGTGATAAA
甘油醛-3-磷酸脱氢酶 GAPDH CCAGAACATCACCCTGCTTC GGTCAGATCCACAACGGACA

1.4 数据统计分析

利用SPSS 19.0软件对试验数据进行统计分析,通过单因素方差分析(one-way ANOVA)检验组间差异,差异显著者进一步采用最小显著差异(LSD)法进行多重比较;2个特定组间的差异比较采用独立样本t检验。结果用平均值±标准差(mean±SD)表示,P<0.05为差异显著,P<0.01为差异极显著。

2 结果与分析

2.1 瘤胃上皮组织的体外存活能力与吸收特性

为探究瘤胃上皮组织的体外存活能力,本研究通过体外双层培养模型对瘤胃上皮组织进行了48 h连续培养,并结合形态学观察分析其生理结构变化。显微镜观察结果如图1-a所示,CG组的瘤胃乳头在24 h后逐渐萎缩,至36 h时瘤胃乳头整体结构解体;相比之下,SG组和MG组瘤胃上皮组织分别在36和48 h内保持了完整的乳头形态。以上结果表明,瘤胃上皮组织在SG组和MG组体外培养条件下可存活36~48 h。为进一步验证瘤胃上皮组织在存活状态下是否保持其吸收特性,本研究通过模拟瘤胃液刺激,动态监测瘤胃乳头宽度的响应变化。由图1-b可知,在模型运行的初始0~4 h内,CG组、MG组和SG组的瘤胃乳头宽度均呈上升趋势;随着培养时间延长,SG组和MG组的瘤胃乳头宽度均高于CG组,8 h后SG组的瘤胃乳头宽度超过MG组。上述结果提示瘤胃上皮组织在体外培养模型中仍能保持吸收特性。
图1 不同体外培养条件对瘤胃上皮组织乳头形态及宽度的影响

数据柱形标注无字母或相同字母表示差异不显著(P>0.05),不同小写字母表示差异显著(P<0.05),不同大写字母表示差异极显著(P<0.01)。图2同。

Fig.1 Effects of different in vitro culture conditions on papilla morphology and width of rumen epithelial tissue

Value columns with no letter or the same letter superscripts mean no significant difference (P>0.05), while with different small letters mean significant difference (P<0.05), and different uppercase letters mean extremely significant difference (P<0.01). The same as Fig.2.

2.2 不同功能益生菌对体外瘤胃发酵液中VFAs浓度的影响

在确认瘤胃上皮组织具备良好的体外存活与吸收能力的基础上,本研究进一步利用体外双层培养模型探究不同功能益生菌菌株(解淀粉芽孢杆菌、乳酸片球菌、枯草芽孢杆菌及粪肠球菌)对发酵液中VFAs浓度的影响。由图2可知,与对照组相比,各功能益生菌组发酵液中乙酸及总挥发性脂肪酸浓度均极显著提高(P<0.01),其中乳酸片球菌组的提升幅度最大;各功能益生菌组发酵液中丙酸浓度均极显著提高(P<0.05),解淀粉芽孢杆菌组与乳酸片球菌组之间丙酸浓度无显著差异(P>0.05)。乳酸片球菌组发酵液中丁酸浓度显著高于对照组及解淀粉芽孢杆菌组(P<0.05);乳酸片球菌组发酵液中乙酸/丙酸比值极显著高于其他4组(P<0.01),枯草芽孢杆菌组与粪肠球菌组之间乙酸/丙酸比值无显著差异(P>0.05)。以上结果表明,添加不同功能益生菌可促进发酵液中乙酸、丙酸等VFAs的生成。
图2 不同功能益生菌对体外瘤胃发酵液中VFAs浓度的影响

乙酸/丙酸数据为无单位比值。

Fig.2 Effects of different functional probiotics on VFAs concentrations of in vitro rumen fermentation broth

The A/P values are ratios with no units.

2.3 不同功能益生菌对瘤胃上皮MCT1、DRA、PAT1和AE2蛋白表达的影响
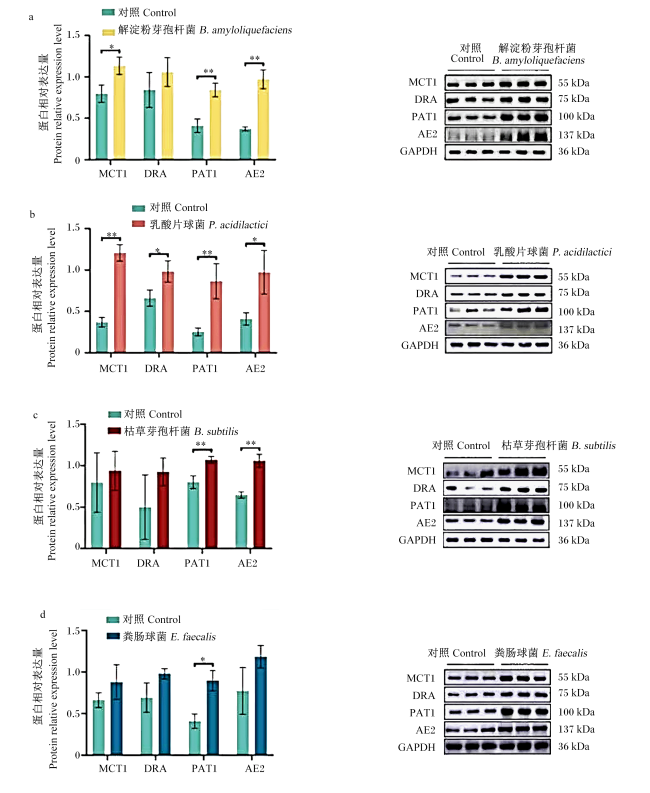
图3-a可知,与对照组相比,解淀粉芽孢杆菌组瘤胃上皮PAT1和AE2蛋白相对表达量极显著提高(P<0.01),MCT1蛋白相对表达量显著提高(P<0.05);由图3-b可知,与对照组相比,乳酸片球菌组瘤胃上皮MCT1和PAT1蛋白相对表达量极显著提高(P<0.01),DRA和AE2蛋白相对表达量显著提高(P<0.05);由图3-c可知,与对照组相比,枯草芽孢杆菌组瘤胃上皮PAT1和AE2蛋白相对表达量极显著提高(P<0.01);由图3-d可知,与对照组相比,粪肠球菌组瘤胃上皮PAT1蛋白相对表达量显著提高(P<0.05),其余3种蛋白的相对表达量无显著变化(P>0.05)。上述结果表明,添加不同功能益生菌可增强瘤胃上皮组织中VFAs吸收相关蛋白的表达。
图3 不同功能益生菌对瘤胃上皮MCT1、DRA、PAT1和AE2蛋白表达的影响

MCT1:单羧酸转运蛋白1 monocarboxylate transporter 1;DRA:腺瘤下调蛋白 down-regulated in Adenoma;PAT1:质子偶联氨基酸转运蛋白1 proton-coupled amino acid transporter 1;AE2:阴离子交换蛋白2 anion exchanger 2;GAPDH:甘油醛-3-磷酸脱氢酶 glyceraldehyde-3-phosphate dehydrogenase。

*表示差异显著(P<0.05),**表示差异极显著(P<0.01)。图4同。* mean significant difference (P<0.05), and ** mean extremely significant difference (P<0.01). The same as Fig.4.

Fig.3 Effects of different functional probiotics on MCT1, DRA, PAT1 and AE2 protein expression in rumen epithelium

2.4 不同功能益生菌对瘤胃上皮NHE1、NHE3和NHE4基因表达的影响

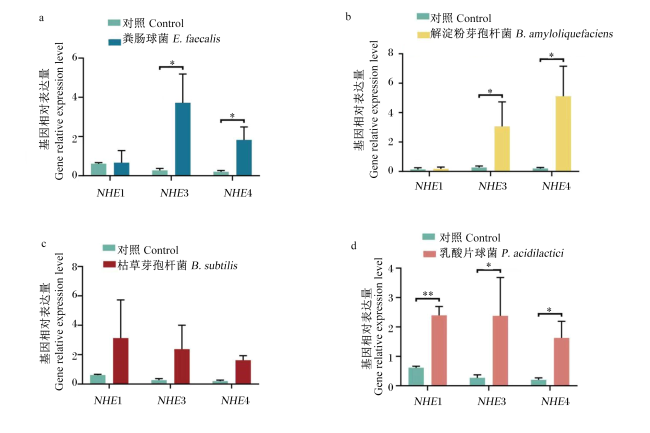
图4-a可知,与对照组相比,粪肠球菌组瘤胃上皮NHE3和NHE4基因相对表达量显著提高(P<0.05);由图4-b可知,与对照组相比,解淀粉芽孢杆菌组瘤胃上皮NHE3和NHE4基因相对表达量显著提高(P<0.05);由图4-c可知,枯草芽孢杆菌组瘤胃上皮NHE1、NHE3和NHE4基因相对表达量与对照组均无显著差异(P>0.05);由图4-d可知,与对照组相比,乳酸片球菌组瘤胃上皮NHE1基因相对表达量极显著提高(P<0.01),NHE3和NHE4基因相对表达量显著提高(P<0.05)。
图4 不同功能益生菌对瘤胃上皮NHE1、NHE3和NHE4基因表达的影响

NHE1:钠-氢交换蛋白1 sodium-hydrogen exchanger 1;NHE3:钠-氢交换蛋白3 sodium-hydrogen exchanger 3;NHE4:钠-氢交换蛋白4 sodium-hydrogen exchanger 4。

Fig.4 Effects of different functional probiotics on NHE1, NHE3 and NHE4 gene expression in rumen epithelium

3 讨论

本试验从奶牛瘤胃液中成功分离出4株具有纤维降解功能的益生菌——解淀粉芽孢杆菌、乳酸片球菌、枯草芽孢杆菌及粪肠球菌。试验结果表明,这些菌株可通过差异化调控发酵过程,提升发酵液中乙酸、丙酸及丁酸浓度。纤维素发酵是反刍动物瘤胃能量供应的核心途径[19]。本研究结果与Miguel等[20]的研究结论高度吻合,其研究表明在饲料中添加枯草芽孢杆菌与乳酸片球菌可显著提高饲料中乙酸、丙酸、乳酸及氨态氮(NH3-N)浓度。乳酸片球菌可通过产生乳酸降低瘤胃pH,加速饲粮酸化进程,从而提升饲料利用率并促进瘤胃中VFAs合成[21],枯草芽孢杆菌则可通过提高饲料降解效率显著提高瘤胃中VFAs浓度[22]。解淀粉芽孢杆菌虽无法在瘤胃内直接定植,但其可以通过降解饲粮中的碳水化合物间接促进VFAs生成[23],这也解释了本试验中该菌株组VFAs浓度高于对照组,但低于其他菌株组的原因。粪肠球菌作为典型的富马酸盐还原菌,可有效抑制瘤胃甲烷生成[24],其纤维降解能力已在反刍动物营养研究中得到了广泛关注。Zhao等[25]通过青贮发酵模型进一步证实,粪肠球菌可调控发酵产物组成,显著提高乳酸/乙酸比值及丁酸浓度。
瘤胃中VFAs的吸收是一个复杂的跨上皮细胞膜过程,不仅是奶牛机体获取能量的重要来源,更在维持奶牛健康稳态中发挥着关键作用[26]。VFAs以离子态形式穿越上皮细胞膜的转运过程涉及多层面调控,由于VFAs的脂溶性较低,穿过吸收屏障的简单扩散效率有限,因此跨膜转运被认为是VFAs吸收的主要方式[27]。本研究发现,添加不同的功能益生菌对瘤胃上皮VFAs吸收相关转运蛋白的表达具有不同影响。本研究中,添加不同的功能益生菌上调了瘤胃上皮MCT1蛋白的表达。Nakamura等[28]通过向奶牛瘤胃中添加VFAs,观察到瘤胃上皮MCT1蛋白相对表达量随VFAs浓度的升高呈同步增加趋势。Izuddin等[29]的研究证实,饲粮中添加植物乳杆菌(Lactobacillus plantarum)可显著提高瘤胃内VFAs浓度,同时上调MCT1蛋白的表达,进而改善奶牛的生长性能及营养物质消化率。DRA在VFAs跨瘤胃上皮细胞膜吸收中发挥着关键作用[30]。本研究发现,4种功能益生菌中仅乳酸片球菌可显著上调瘤胃上皮DRA蛋白相对表达量。已有研究表明,在饲粮中添加自溶酵母与植物源物质,能够有效预防亚急性瘤胃酸中毒,且该过程伴随DRA表达水平的升高,这一变化对维持瘤胃上皮微生物区系平衡具有积极意义[18]。据此推测DRA表达的上调可能是瘤胃内环境的剧烈变化所驱动的。PAT1和AE2蛋白的核心功能是介导细胞内外短链脂肪酸阴离子(SCFAs-)和碳酸氢根离子(HCO3-)的交换过程,且二者均在瘤胃上皮细胞中稳定表达[31]。本研究结果表明,添加功能益生菌(解淀粉芽孢杆菌、乳酸片球菌、枯草芽孢杆菌)后,瘤胃上皮PAT1和AE2蛋白相对表达量均显著升高,这与Ahmad等[32]通过调整饲粮能量水平提高牦牛瘤胃上皮PAT1和AE2表达的研究结果相符。
NHE1、NHE3和NHE4具有调控钠离子(Na+)转运与维持细胞内pH稳态的功能,主要位于瘤胃上皮的外膜和基底膜。在上述区域,DRA蛋白可与NHE3形成功能耦联复合体,介导电中性氯化钠的跨膜吸收过程。NHE家族蛋白的主要功能并非直接参与VFAs的吸收,而是维持瘤胃内环境pH稳态,从而避免瘤胃上皮损伤。因此,当大量VFAs生成导致瘤胃pH迅速下降时,NHE相关基因表达会上调以缓解瘤胃过度酸化的趋势[33]。本研究中,添加功能益生菌后,发酵液中VFAs的生成量相应增加,且瘤胃上皮NHE1、NHE3和NHE4基因的表达量也呈不同程度上调,与上述研究结果相符。瘤胃上皮吸收VFAs的机制主要分为2类载体介导途径:一类为挥发性脂肪酸阴离子(VFAs-)/H+交换载体,主要包括阴离子转运蛋白、阴离子交换蛋白及DRA蛋白;另一类为VFAs-/H+协同转运载体,以MCT1和MCT4为典型代表[34]。本研究发现,添加不同功能益生菌后,瘤胃上皮均能通过上调VFAs-/H+交换载体蛋白的表达促进VFAs吸收;其中,乳酸片球菌与解淀粉芽孢杆菌的添加还可进一步激活VFAs-/H+协同转运载体途径,从而实现VFAs的高效吸收。
本试验仍存在一定的局限性与待探讨之处。本研究采用体外瘤胃模型开展相关试验,该模型虽具备诸多优势与可行性:试验可控性强,可有效排除体内复杂的干扰因素;便于动态监测试验过程,精准获取实时数据;还能克服体内研究中瘤胃上皮细胞分离难度大、传代次数有限、细胞活性易丧失等问题。但该模型仍存在与体内实际生理环境存在一定差异、试验周期受限等不足。不过本试验结果显示,瘤胃组织在该体外培养体系中可存活长达36 h,这与前期相关研究数据[35]相符。此外,本研究仅从4株功能益生菌的角度探究了其对瘤胃上皮VFAs吸收的影响,也使得试验结果存在一定的局限性。

4 结论

从奶牛瘤胃液中分离的解淀粉芽孢杆菌、乳酸片球菌、枯草芽孢杆菌及粪肠球菌,均能显著提升体外瘤胃中乙酸、丙酸等VFAs的生成;同时可差异化调控瘤胃上皮VFAs吸收相关载体蛋白(MCT1、DRA、PAT1、AE2)及离子稳态基因(NHE1、NHE3、NHE4)的表达,进而促进VFAs吸收。
[1]
LI F Y, LI C X, CHEN Y H, et al. Host genetics influence the rumen microbiota and heritable rumen microbial features associate with feed efficiency in cattle[J]. Microbiome, 2019, 7(1):92.

DOI PMID

[2]
XUE M Y, WU J J, XIE Y Y, et al. Investigation of fiber utilization in the rumen of dairy cows based on metagenome-assembled genomes and single-cell RNA sequencing[J]. Microbiome, 2022, 10(1):11.

DOI

[3]
XUE M Y, SUN H Z, WU X H, et al. Multi-omics reveals that the rumen microbiome and its metabolome together with the host metabolome contribute to individualized dairy cow performance[J]. Microbiome, 2020, 8(1):64.

DOI

[4]
CAI L Y, HARTANTO R, ZHANG J, et al. Clostridium butyricum improves rumen fermentation and growth performance of heat-stressed goats in vitro and in vivo[J]. Animals, 2021, 11(11):3261.

DOI

[5]
XUE L G, ZHOU S Y, WANG D, et al. The low dose of Saccharomyces cerevisiae is beneficial for rumen fermentation (both in vivo and in vitro) and the growth performance of heat-stressed goats[J]. Microorganisms, 2022, 10(10):1877.

DOI

[6]
CHEN H, GUO B B, YANG M R, et al. Response of growth performance,blood biochemistry indices,and rumen bacterial diversity in lambs to diets containing supplemental probiotics and Chinese medicine polysaccharides[J]. Frontiers in Veterinary Science, 2021, 8:681389.

DOI

[7]
LI S Y, LI X X, SHA Y Z, et al. Effects of isochlorogenic acid on ewes rumen fermentation,microbial diversity and ewes immunity of different physiological stages[J]. Animals, 2024, 14(5):715.

DOI

[8]
WANG Q Y, ZENG Y T, ZENG X L, et al. Effects of dietary energy levels on rumen fermentation,gastrointestinal tract histology,and bacterial community diversity in fattening male Hu lambs[J]. Frontiers in Microbiology, 2021, 12:695445.

DOI

[9]
AN Y W, WANG H R, ZONG Z C, et al. Effects of adding Sophora alopecuroides to high concentrate diet on rumen fermentation parameters and microbial diversity of sheep[J]. Frontiers in Veterinary Science, 2023, 10:1200272.

DOI

[10]
ZHANG T, MU Y Y, ZHANG R Y, et al. Responsive changes of rumen microbiome and metabolome in dairy cows with different susceptibility to subacute ruminal acidosis[J]. Animal Nutrition, 2022, 8:331-340.

DOI PMID

[11]
LI Y, SHEN Y Z, NIU J K, et al. Effect of active dry yeast on lactation performance,methane production,and ruminal fermentation patterns in early-lactating Holstein cows[J]. Journal of Dairy Science, 2021, 104(1):381-390.

DOI

[12]
PERDOMO M C, MARSOLA R S, FAVORETO M G, et al. Effects of feeding live yeast at 2 dosages on performance and feeding behavior of dairy cows under heat stress[J]. Journal of Dairy Science, 2020, 103(1):325-339.

DOI PMID

[13]
LEONHARD-MAREK S, STUMPFF F, MARTENS H. Transport of cations and anions across forestomach epithelia:conclusions from in vitro studies[J]. Animal, 2010, 4(7):1037-1056.

DOI

[14]
TITUS E, AHEARN G A. Vertebrate gastrointestinal fermentation:transport mechanisms for volatile fatty acids[J]. American Journal of Physiology:Regulatory,Integrativeand Comparative Physiology, 1992, 262(4):R547-R560.

[15]
BILK S, HUHN K, HONSCHA K U, et al. Bicarbonate exporting transporters in the ovine ruminal epithelium[J]. Journal of Comparative Physiology B, 2005, 175(5):365-374.

PMID

[16]
METZLER-ZEBELI B U, HOLLMANN M, SABITZER S, et al. Epithelial response to high-grain diets involves alteration in nutrient transporters and Na+/K+-ATPase mRNA expression in rumen and colon of goats[J]. Journal of Animal Science, 2013, 91(9):4256-4266.

DOI

[17]
GAO X, OBA M. Characteristics of dairy cows with a greater or lower risk of subacute ruminal acidosis:volatile fatty acid absorption,rumen digestion,and expression of genes in rumen epithelial cells[J]. Journal of Dairy Science, 2016, 99(11):8733-8745.

DOI

[18]
PETRI R M, WETZELS S U, QUMAR M, et al. Adaptive responses in short-chain fatty acid absorption,gene expression,and bacterial community of the bovine rumen epithelium recovered from a continuous or transient high-grain feeding[J]. Journal of Dairy Science, 2019, 102(6):5361-5378.

DOI

[19]
RUSSELL J B, MUCK R E, WEIMER P J. Quantitative analysis of cellulose degradation and growth of cellulolytic bacteria in the rumen[J]. FEMS Microbiology Ecology, 2009, 67(2):183-197.

DOI PMID

[20]
MIGUEL M, MAMUAD L, RAMOS S, et al. Effects of using different roughages in the total mixed ration inoculated with or without coculture of Lactobacillus acidophilus and Bacillus subtilis on in vitro rumen fermentation and microbial population[J]. Animal Bioscience, 2021, 34(4):642-651.

DOI

[21]
SORIANO A P, MAMUAD L L, KIM S H, et al. Effect of Lactobacillus mucosae on in vitro rumen fermentation characteristics of dried brewers grain,methane production and bacterial diversity[J]. Asian-Australasian Journal of Animal Sciences, 2014, 27(11):1562-1570.

DOI

[22]
SUN P, LI J N, BU D P, et al. Effects of Bacillus subtilis natto and different components in culture on rumen fermentation and rumen functional bacteria in vitro[J]. Current Microbiology, 2016, 72(5):589-595.

DOI

[23]
SCHOFIELD B J, LACHNER N, LE O T, et al. Beneficial changes in rumen bacterial community profile in sheep and dairy calves as a result of feeding the probiotic Bacillus amyloliquefaciens H57[J]. Journal of Applied Microbiology, 2018, 124(3):855-866.

DOI

[24]
KIM S H, MAMUAD L L, KIM D W, et al. Fumarate reductase-producing enterococci reduce methane production in rumen fermentation in vitro[J]. Journal of Microbiology and Biotechnology, 2016, 26(3):558-566.

DOI

[25]
ZHAO J, SHAO T, CHEN S, et al. Characterization and identification of cellulase-producing enterococcus species isolated from Tibetan yak (Bos grunniens) rumen and their application in various forage silages[J]. Journal of Applied Microbiology, 2021, 131(3):1102-1112.

DOI PMID

[26]
WANG Y, NAN X M, ZHAO Y G, et al. Rumen microbiome structure and metabolites activity in dairy cows with clinical and subclinical mastitis[J]. Journal of Animal Science and Biotechnology, 2021, 12(1):36.

DOI PMID

[27]
GEORGI M I, ROSENDAHL J, ERNST F, et al. Epithelia of the ovine and bovine forestomach express basolateral maxi-anion channels permeable to the anions of short-chain fatty acids[J]. Pflügers Archiv:European Journal of Physiology, 2014, 466(9):1689-1712.

DOI

[28]
NAKAMURA S, HAGA S, KIMURA K, et al. Propionate and butyrate induce gene expression of monocarboxylate transporter 4 and cluster of differentiation 147 in cultured rumen epithelial cells derived from preweaning dairy calves[J]. Journal of Animal Science, 2018, 96(11):4902-4911.

DOI PMID

[29]
IZUDDIN W I, LOH T C, SAMSUDIN A A, et al. Effects of postbiotic supplementation on growth performance,ruminal fermentation and microbial profile,blood metabolite and GHR,IGF-1 and MCT-1 gene expression in post-weaning lambs[J]. BMC Veterinary Research, 2019, 15(1):315.

DOI

[30]
ASCHENBACH J R, PENNER G B, STUMPFF F, et al. Ruminant nutrition symposium:role of fermentation acid absorption in the regulation of ruminal pH[J]. Journal of Animal Science, 2011, 89(4):1092-1107.

DOI

[31]
YAN L, ZHANG B, SHEN Z M. Dietary modulation of the expression of genes involved in short-chain fatty acid absorption in the rumen epithelium is related to short-chain fatty acid concentration and pH in the rumen of goats[J]. Journal of Dairy Science, 2014, 97(9):5668-5675.

DOI PMID

[32]
AHMAD A A, YANG C, ZHANG J B, et al. Effects of dietary energy levels on rumen fermentation,microbial diversity,and feed efficiency of yaks (Bos grunniens)[J]. Frontiers in Microbiology, 2020, 11:625.

DOI

[33]
BAASKE L, MASUR F, DENGLER F, et al. Possible influence of free fatty acid receptors on pH regulation in the ruminal epithelium of sheep[J]. Journal of Animal Physiology and Animal Nutrition, 2020, 104(3):776-789.

DOI PMID

[34]
ALREFAI W A, WEN X M, JIANG W, et al. Molecular cloning and promoter analysis of downregulated in adenoma (DRA)[J]. American Journal of Physiology-Gastrointestinal and Liver Physiology, 2007, 293(5):G923-G934.

[35]
DIEHO K, VAN BAAL J, KRUIJT L, et al. Effect of supplemental concentrate during the dry period or early lactation on rumen epithelium gene and protein expression in dairy cattle during the transition period[J]. Journal of Dairy Science, 2017, 100(9):7227-7245.

DOI PMID

文章导航

/