研究论文

菌酶协同在石榴皮改善青贮玉米中的作用:对发酵品质、抗氧化能力及微生物群落和代谢物的影响

  • 张惠贤 , 1, 2 ,
  • 杨博 1, 2 ,
  • 张霞 , 1, 2, * ,
  • 张元庆 1, 2
展开
  • 1 山西农业大学动物科学学院, 太谷 030801
  • 2 畜禽营养与饲料开发山西省重点实验室, 太谷 030801
*张 霞,副教授,硕士生导师,E-mail:

张惠贤(2000—),女,河北邯郸人,硕士研究生,从事饲草加工与利用研究。E-mail:

收稿日期: 2025-08-18

  网络出版日期: 2026-03-16

基金资助

山西省基础研究计划项目(202403021212070)

Role of Bacterium-Enzyme Synergy in Pomegranate Peel for Improving Corn Silage: Effects on Fermentation Quality, Antioxidant Capacity, Microbiota and Metabolites

  • ZHANG Huixian , 1, 2 ,
  • YANG Bo 1, 2 ,
  • ZHANG Xia , 1, 2, * ,
  • ZHANG Yuanqing 1, 2
Expand
  • 1 College of Animal Science, Shanxi Agricultural University, Taigu 030801, China
  • 2 Shanxi Key Laboratory of Animal Nutrition and Feed Developmen, Taigu 030801, China
*associate professor, E-mail:

Received date: 2025-08-18

  Online published: 2026-03-16

摘要

本试验旨在探究菌酶协同在石榴皮(PP)改善青贮玉米中的作用。试验共设置5个组,分别为:1)青贮玉米组(对照组,C组);2)青贮玉米+6% PP组(P组);3)青贮玉米+6% PP+1×10⁵ CFU/kg布氏乳杆菌40788组(PL组);4)青贮玉米+6% PP+40 mg/kg 葡萄糖氧化酶(GOD)组(PM组);5)青贮玉米+6% PP+1×10⁵ CFU/kg布氏乳杆菌40788+40 mg/kg GOD组(PML组)。青贮60 d后,测定发酵品质、抗氧化能力及微生物群落和代谢物。结果表明:1)与C组相比,PP处理通过富集植物乳杆菌属等有益菌和促进黄酮类等抗氧化代谢物积累,显著降低青贮玉米中性洗涤纤维(NDF)、氨态氮(NH3-N)和非蛋白氮(NPN)含量,同时显著提高总抗氧化能力(T-AOC)、谷胱甘肽过氧化物酶活性、总酚和总黄酮含量以及1,1-二苯基-2-三硝基苯肼(DPPH)自由基清除活性(P<0.05)。2)与PP处理相比,PP+GOD处理进一步提高总酚和总黄酮含量(P<0.05);PP+布氏乳杆菌处理主要显著提高乙酸含量(P<0.05);PP+GOD+布氏乳杆菌处理不仅显著降低NDF、NH3-N和NPN含量(P<0.05),还显著提高乙酸含量、T-AOC及DPPH自由基清除活性(P<0.05)。综上所述,PP与菌酶协同处理通过“微生物-代谢物-发酵品质”调控,提升青贮玉米营养和功能特性。

本文引用格式

张惠贤 , 杨博 , 张霞 , 张元庆 . 菌酶协同在石榴皮改善青贮玉米中的作用:对发酵品质、抗氧化能力及微生物群落和代谢物的影响[J]. 动物营养学报, 2026 , 38(3) : 2318 -2330 . DOI: 10.12418/CJAN2026.185

Abstract

This experiment aimed to explore the role of bacterium-enzyme synergy in pomegranate peel (PP) for improving corn silage. A total of 5 groups were set up in the experiment, namely: 1) corn silage group (control group, group C); 2) corn silage+6% PP group (group P); 3) corn silage+6% PP+1×10⁵ CFU/kg Lactobacillus buchneri 40788 group (group PL); 4) corn silage+6% PP+40 mg/kg glucose oxidase (GOD) group (group PM); 5) corn silage+6% PP+1×10⁵ CFU/kg Lactobacillus buchneri 40788+40 mg/kg GOD group (group PML). After 60 days of ensiling, the fermentation quality, antioxidant capacity, microbiota and metabolites were analyzed. The results showed as follows: 1) compared with group C, the PP treatment significantly reduced the contents of neutral detergent fiber (NDF), ammonia nitrogen (NH3-N) and non-protein nitrogen (NPN) in corn silage by enriching beneficial bacteria such as Lactiplantibacillus and promoting the accumulation of antioxidant metabolites such as flavonoids. Meanwhile, the total antioxidant capacity (T-AOC), glutathione peroxidase activity, total phenol and total flavonoid contents, as well as the free radical scavenging activity of 1,1-diphenyl-2-trinitrophenylhydrazine (DPPH) were significantly increased (P<0.05). 2) Compared with the PP treatment, the PP+GOD treatment further increased the contents of total phenols and total flavonoids (P<0.05); the treatment with PP+Lactobacillus buchneri mainly significantly increased the acetic acid content (P<0.05); the treatment with PP+GOD+Lactobacillus buchneri not only significantly reduced the contents of NDF, NH3-N and NPN (P<0.05), but also increased the acetic acid content, T-AOC and DPPH free radical scavenging activity (P<0.05). In conclusion, the synergistic treatment of PP and bacterium-enzyme enhances the nutritional and functional characteristics of corn silage through the regulation of “microorganisms-metabolites-fermentation quality”.

饲料资源的高效利用与环境保护是畜牧业面临的重大挑战。随着对高品质畜产品需求的不断增长,饲料资源供应压力日益加大。因此,寻找新的饲料来源、提高饲料质量、降低饲料成本,对畜牧业的可持续发展至关重要[1]。此外,农业生产过程中会产生大量废弃物,若管理不当,这些废弃物会造成环境污染,威胁生态安全。青贮玉米是反刍动物的主要优质粗饲料来源[2]。安全、优质的青贮玉米对草食畜牧业的发展至关重要,尤其在乳业发展中[3]。然而,青贮过程中的营养损失限制了其高效利用。因此,寻找有效的添加剂改善发酵品质具有重要意义。近年来,已有研究将植物副产物用作饲料添加剂,以改善青贮饲料的发酵品质[4]。石榴皮(pomegranate peel,PP)作为果汁加工的主要废弃物,富含多酚、黄酮类等生物活性物质,具有抗氧化、抑菌及调节微生物群落的功能[5]。前期研究表明,添加6% PP可显著改善青贮玉米的发酵品质,提高水溶性碳水化合物(WSC)含量,抑制氨态氮(NH3-N)和非蛋白氮(NPN)积累,并通过调控黄酮类生物合成途径增强抗氧化活性;但是降低了干物质(DM)消化率[6]
乳酸菌作为青贮发酵的核心微生物,其种类与丰度直接影响乳酸生成效率和青贮稳定性。布氏乳杆菌(Lactobacillus buchneri)作为异型发酵乳酸菌,能通过产生乙酸等代谢产物抑制腐败菌繁殖,延长青贮有氧稳定性[7]。此外,葡萄糖氧化酶(glucose oxidase,GOD)可通过催化葡萄糖生成葡萄糖酸和过氧化氢,降低青贮pH,抑制有害微生物活性,减少营养损失[8]。已有研究证实,功能性微生物与酶制剂的联合应用可通过互补作用优化青贮微生态环境[9-10]。笔者设想PP与布氏乳杆菌、GOD的联合应用可能可以更有效地改善青贮玉米发酵品质。因此,本研究基于前期PP改善玉米青贮品质的基础,旨在探究PP与布氏乳杆菌、GOD单独及联合应用对青贮玉米发酵品质、抗氧化能力及微生物群落和代谢物的影响,为开发高效功能性青贮添加剂、推动农业副产物资源化利用以及降低畜牧业环境负荷提供理论依据与技术支撑。

1 材料与方法

1.1 试验设计和青贮制作

在山西省晋中市的4个地块中,随机收获生长至1/2乳线期的全株玉米(品种为Ringpu 909)。采用专门机械将玉米切碎成1~2 cm长,随后立即运至实验室。新鲜玉米的DM含量为378 g/kg鲜重(FW)。本试验共设置5个组,分别为:1)青贮玉米组(对照组,C组);2)青贮玉米+6% PP组(P组);3)青贮玉米+6% PP+1×10⁵ CFU/kg布氏乳杆菌40788组(PL组);4)青贮玉米+6% PP+40 mg/kg GOD组(PM组);5)青贮玉米+6% PP+1×10⁵ CFU/kg布氏乳杆菌40788+40 mg/kg GOD组(PML组)。每组设4个重复(4个地块作为4个重复),每个重复约1.5 kg。PP的营养成分含量参照本课题组前期研究,6%的风干PP添加量根据前期试验确定[6]。各组玉米均喷施10 mL/kg蒸馏水。青贮过程在实验室桶(10 L)中进行,于室温[(20±3) ℃]、黑暗环境下厌氧密封(用真空泵密封)处理60 d。

1.2 青贮玉米发酵品质测定

全株玉米青贮60 d后开封取样。称取20 g青贮玉米样品,加入180 mL纯净水,用榨汁机中速匀浆40 s。匀浆液经4层医用纱布过滤后,立即用便携式pH计[BPH-600/610CK,贝尔分析仪器(大连)有限公司]测定滤液pH。将滤液分为3份:第1份于-20 ℃保存,用于测定抗氧化能力和WSC含量,其中WSC含量参照Thomas[11]的方法测定。第2份用50%硫酸酸化,经0.22 μm滤膜过滤后用于有机酸(乳酸、乙酸和丙酸)含量测定。采用安捷伦毛细管电泳系统,搭配熔融石英毛细管(总长度112.5 cm)进行检测,操作条件为:电压30 kV,毛细管温度18 ℃;采用二极管阵列检测器间接紫外检测,信号波长为350 nm,参比波长为225 nm[12]。第3份按4∶1(滤液∶三氯乙酸)的比例加入25%(质量体积分数)三氯乙酸,室温放置1 h以沉淀真蛋白质,随后于4 ℃、10 000×g条件下离心15 min。上清液用于测定NH3-N和NPN含量,测定方法分别参照Broderick等[13]和Abeysekara等[14]的方法。

1.3 青贮玉米营养成分含量和抗氧化指标测定

称取80 g青贮玉米样品,置于鼓风烘箱中65 ℃烘干72 h,测定DM含量。将烘干的青贮样品用旋转粉碎机(BB-400,Retsch GmbH,德国)研磨,过1 mm筛,将处理后的样品保存备用。DM和粗蛋白质(CP)含量参照AOAC(1995)[15]中方法测定。中性洗涤纤维(NDF)和酸性洗涤纤维(ADF)含量采用纤维提取法测定,具体操作参照Van Soest等[16]的方法;其中NDF含量测定使用亚硫酸钠和α-淀粉酶(A109181,上海阿拉丁生化科技股份有限公司)。淀粉含量参照代立刚等[17]的方法测定。总酚和单宁含量采用Folin-Ciocalteu法[18]测定,以单宁酸作为标准参照物。
黄酮含量、总抗氧化能力(T-AOC)以及超氧化物歧化酶(SOD)、谷胱甘肽过氧化物酶(GSH-Px)和过氧化氢酶(CAT)活性采用南京建成生物工程研究所的试剂盒测定;1,1-二苯基-2-三硝基苯肼(DPPH)自由基清除活性参照More等[19]的方法测定。

1.4 青贮玉米微生物群落16S rDNA全长测序

采用E.Z.N.A.®土壤DNA提取试剂盒(Omega Bio-Tek,美国)提取青贮样品的总DNA。通过电泳(1%琼脂糖凝胶、1×TAE缓冲液、100 V电压、20 min)评估DNA浓度和质量,之后于-20 ℃保存以备后续分析。PCR扩增以16S rDNA V1~V9区域为目标,所用引物为27F(5'-AGAGTTTGATCCTGGCTCAG-3')和1514R(5'-GNTACCTTGTTACGACTT-3')。扩增产物经2%琼脂糖凝胶电泳纯化,采用Qubit® 3.0定量后,根据测序量要求按比例混合。混合后的DNA用于构建PacBio测序文库。最终纯化产物通过1.2%琼脂糖凝胶检测,获得16S SMRT bell文库(约1.5 kb),并在PacBio Sequel Ⅱe平台上进行测序。原始序列采用SMRT Link(V9)进行质量检测。采用UPARSE(v7.1)以98.7%的相似度阈值对操作分类单元(OTU)进行聚类,同时通过UCHIME识别并去除嵌合体序列。借助Mothur软件参照Silva数据库进行分类学注释。随后,基于Bray-Curtis距离,通过主坐标分析(PCoA)对β多样性进行分析。

1.5 青贮玉米微生物代谢物非靶向代谢组学分析

1.5.1 代谢物提取

为提取代谢物,取100 mg青贮样品在液氮中研磨后转移至EP管中;加入500 μL 80%甲醇水溶液,涡旋混合后在冰浴中超声处理5 min,随后在冰浴中振荡研磨5 min;将混合物在4 ℃、15 000×g条件下离心20 min(n=3);上清液用质谱级水稀释,使甲醇最终含量达到53%,然后在4 ℃、12 000×g条件下再次离心20 min。收集最终的上清液用于液相色谱-质谱(LC-MS)分析。

1.5.2 代谢物识别

采用Vanquish超高效液相色谱系统(Thermo Fisher,美国)联用Orbitrap Q ExactiveTM HF质谱仪(Thermo Fisher,美国)进行超高效液相色谱-串联质谱(UHPLC-MS/MS)分析。将0.3 μL样品注入HSS T3色谱柱(2.1 mm×100 mm,1.8 μm)。UHPLC-MS/MS的操作流程参照Song等[20]的方法。采用Compound Discoverer 3.1软件对原始数据文件进行峰检测、提取和代谢物定量;采用总光谱强度对峰强度进行归一化处理;根据加合离子、分子离子峰和由归一化数据预测的碎片离子来推测分子式;利用mzCloud、mzVault和MassList数据库对代谢物进行注释,注释阈值设为0.3。

1.6 数据统计分析

采用SPSS 23.0中的广义线性模型(GLM)进行方差分析(ANOVA),以评估样品间的差异显著性,P<0.05被认为具有统计学显著性。采用单向方差分析评估不同处理对营养成分含量、发酵品质以及抗氧化能力指标的影响,平均值多重比较采用Tukey检验。所有微生物数据分析及可视化均在R语言中完成。采用KEGG、HMDB和LIPID Maps数据库进行代谢物注释。在metaX软件中进行偏最小二乘判别分析(PLS-DA)。采用单变量t检验确定代谢物的差异显著性,差异代谢物的判定标准为变量投影重要性(VIP)>1、P<0.05以及|log2差异倍数(FC)|≥1。基于差异代谢物的强度面积,通过z分数对数据进行标准化后生成聚类热图,并使用R语言中的heatmap包进行可视化。

2 结果与分析

2.1 青贮玉米营养成分含量和发酵品质

表1可知,与对照组(C组)相比,P组青贮玉米NDF、NH3-N和NPN含量显著降低(P<0.05),DM、WSC、可水解单宁和乙酸含量显著提高(P<0.05)。与P组相比,PM组青贮玉米DM、WSC和NPN含量显著降低(P<0.05);PL组可水解单宁、NH3-N、NPN和乳酸含量显著降低(P<0.05),乙酸含量显著提高(P<0.05);PML组DM、NDF、WSC、可水解单宁、NH3-N、NPN和乳酸含量显著降低(P<0.05),乙酸含量显著提高(P<0.05)。
表1 青贮玉米营养成分含量和发酵品质

Table 1 Nutrient contents and fermentation quality of corn silage

项目
Items
组别 Groups 均值标准误
SEM
P
P-value
C P PL PM PML
干物质 DM/(g/kg FW) 359c 371a 372a 364b 367b 4.1 0.002
粗蛋白质 CP/(g/kg DM) 53.9 57.3 57.2 56.8 56.9 2.67 0.183
中性洗涤纤维 NDF/(g/kg DM) 449a 435bc 433c 438b 389d 3.3 0.031
酸性洗涤纤维 ADF/(g/kg DM) 218 212 216 214 213 2.1 0.412
可溶性碳水化合物 WSC/(g/kg DM) 105c 123a 120a 95d 117b 2.2 0.022
淀粉 Starch/(g/kg DM) 246 245 250 248 248 3.1 0.116
总单宁 Total tannins/(g/kg DM) 1.71 9.26 9.14 9.19 9.23 0.982 0.050
可水解单宁
Hydrolysable tannins/(g/kg DM)
0.05c 1.10a 0.93b 0.99ab 0.95b 0.008 0.036
氨态氮 NH3-N/(g/kg DM) 64.8a 45.7b 38.9c 40.4bc 35.6d 1.08 <0.001
非蛋白氮 NPN/(g/kg DM) 189a 146b 132d 139c 133d 2.9 <0.001
pH 3.81 3.83 3.81 3.84 3.83 0.052 0.241
乳酸 Lactate/(g/kg DM) 72.8a 71.5a 65.2b 72.8a 56.5c 1.19 <0.001
乙酸 Acetate/(g/kg DM) 11.2d 16.9c 28.9b 16.6c 34.4a 1.02 <0.001
丙酸 Propionate/(g/kg DM) 2.23 2.05 2.01 2.04 2.03 0.292 0.114

同行数据肩标无字母或相同字母表示差异不显著(P>0.05),不同字母表示差异显著(P<0.05)。表2同。

In the same row, values with no letter or the same letter superscripts mean no significant difference (P>0.05), while with different letter superscripts mean significant difference (P<0.05). The same as Table 2.

2.2 青贮玉米抗氧化指标

表2可知,青贮60 d后,与C组相比,P组青贮玉米T-AOC、GSH-Px活性及总酚和总黄酮含量显著提高(P<0.05),同时DPPH自由基清除活性显著提高(P<0.05)。与P组相比,PL组青贮玉米T-AOC和GSH-Px活性显著降低(P<0.05),DPPH自由基清除活性显著提高(P<0.05);PM组总酚和总黄酮含量显著提高(P<0.05);PML组T-AOC、总黄酮含量以及DPPH自由基清除活性显著提高(P<0.05)。
表2 青贮玉米抗氧化指标

Table 2 Antioxidant indices of corn silage

项目
Items
组别 Groups 均值标准误
SEM
P
P-value
C P PL PM PML
总抗氧化能力 T-AOC/(U/g) 433d 556b 478c 550b 567a 11.6 0.001
超氧化物歧化酶 SOD/(U/g) 240 240 236 235 239 6.2 0.455
谷胱甘肽过氧化物酶 GSH-Px/(U/g) 279c 459a 323b 453a 461a 12.3 <0.001
过氧化氢酶 CAT/(U/g) 12 12.4 12.1 11.8 11.5 1.36 0.243
总酚 Total phenols/(g/kg DM) 7.89d 9.47b 9.34bc 10.30a 9.44b 0.564 0.022
总黄酮 Total flavones/(g/kg DM) 2.55c 9.26b 9.22b 11.5a 11.6a 0.24 <0.001
DPPH自由基清除活性
DPPH free radical scavenging activity/%
39.9e 47.8d 49.3bc 48.6cd 56.2a 2.48 0.017

2.3 青贮玉米微生物群落

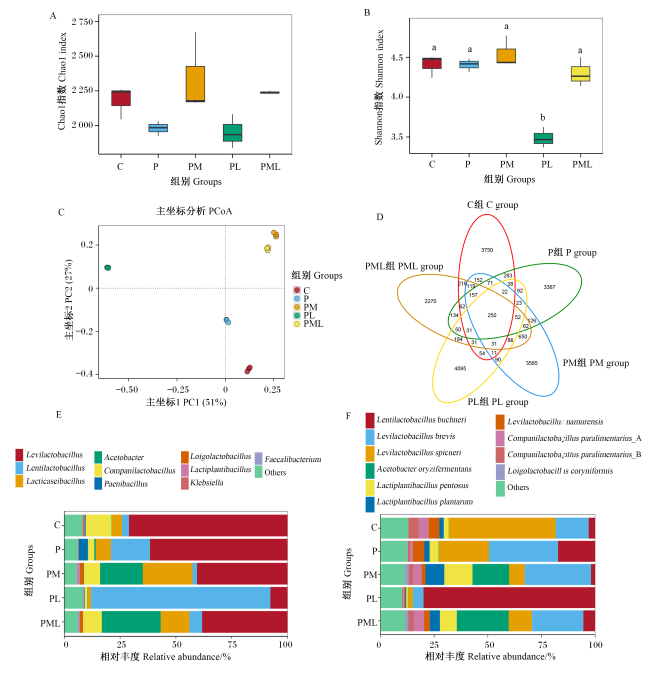
基于98.7%的序列相似性,本试验青贮玉米微生物群落共鉴定出17 317个OTU。如图1所示,青贮60 d后,各组间青贮玉米微生物群落Chao1指数无显著差异(P>0.05)(图1-A)。与P组相比,PL组Shannon指数显著降低(P<0.05)(图1-B)。基于Bray-Curtis距离的PCoA显示,各组青贮玉米微生物群落出现明显不同的聚类(图1-C)。OTU维恩图显示,C组、P组、PM组、PL组和PML组共有250个OTU;C组特有3 750个OTU,P组、PM组、PL组和PML组分别特有3 367、3 585、4 095和2 270个OTU(图1-D)。
图1 青贮玉米微生物群落分析

A和B:α多样性分析,数据柱标记不同字母表示差异显著(P<0.05);C:基于Bray-Curtis距离的主坐标分析;D:操作分类单元维恩图;E:桑基图展示属水平上微生物群落;F:桑基图展示种水平上微生物群落。A and B: α-diversity analysis, and value columns with different letters mean significant difference (P<0.05); C: PCoA based on Bray-Curtis distance; D: Venn diagram of OTU; E: Sankey diagram displayed microbiota at genus level; F: Sankey diagram displayed microbiota at species levels.

Levilactobacillus:促生乳杆菌属;Lentilactobacillus:迟缓乳杆菌属;Lacticaseibacillus:乳酪杆菌属;Acetobacter:醋酸杆菌属;Companilactobacillus:伴生乳杆菌属;Paenibacillus:类芽孢杆菌属;Loigolactobacillus:腐败乳杆菌属;Lactiplantibacillus:植物乳杆菌属;Klebsiella:克雷伯菌属;Faecalibacterium:粪杆菌属;Lentilactobacillus buchneri:布氏迟缓乳杆菌;Levilactobacillus brevis:短促生乳杆菌;Levilactobacillus spicheri:斯比氏促生乳杆菌;Acetobacter oryzifermentans:稻米发酵醋酸杆菌;Lactiplantibacillus pentosus:戊糖植物乳杆菌;Lactiplantibacillus plantarum:植物乳杆菌;Levilactobacillus namurensis:那慕尔促生乳杆菌;Companilactobacillus paralimentarius:类消化伴生乳杆菌;Loigolactobacillus coryniformis:棒状腐败乳杆菌;Others:其他。

Fig.1 Microbiota analysis of corn silage

图1-E所示,在属水平上,与C组相比,P组类芽孢杆菌属(Paenibacillus)(0.43% vs. 4.15%)、迟缓乳杆菌属(Lentilactobacillus)(3.11% vs. 17.38%)和植物乳杆菌属(Lactiplantibacillus)(4.48% vs. 6.75%)相对丰度显著提高(P<0.05),而促生乳杆菌属(Levilactobacillus)(70.84% vs. 61.66%)、伴生乳杆菌属(Companilactobacillus)(11.53% vs. 2.84%)和克雷伯菌属(Klebsiella)(0.89% vs. 0.01%)相对丰度显著降低(P<0.05)。与P组相比,PL组促生乳杆菌属(61.66% vs. 7.72%)和植物乳杆菌属(6.75% vs. 1.31%)相对丰度显著降低(P<0.05),而迟缓乳杆菌属(17.38% vs. 80.42%)相对丰度显著提高(P<0.05);PM组和PML组促生乳杆菌属(61.66% vs. 40.70%,61.66% vs. 38.28%)、迟缓乳杆菌属(17.38% vs. 2.03%,17.38% vs. 5.70%)和芽孢杆菌属(4.15% vs. 0.12%,4.15% vs. 0.08%)相对丰度显著降低(P<0.05),而植物乳杆菌属(6.75% vs. 22.20%,6.75% vs. 12.84%)、醋酸杆菌属(Acetobacter)(0.69% vs. 19.09%,0.69% vs. 26.28%)和伴生乳杆菌属(2.84% vs. 7.21%,2.84% vs. 8.40%)相对丰度显著提高(P<0.05)。此外,与PM组相比,PML组醋酸杆菌属(19.09% vs. 26.28%)相对丰度显著提高(P<0.05)。
图1-F所示,在种水平上,与C组相比,P组短促生乳杆菌(Levilactobacillus brevis)(15.43% vs. 32.17%)和布氏迟缓乳杆菌(Lentilactobacillus buchneri)(3.02% vs. 17.20%)相对丰度显著提高(P<0.05),而斯比氏促生乳杆菌(Levilactobacillus spicheri)(49.48% vs. 23.37%)和类消化伴生乳杆菌A(Companilactobacillus paralimentarius_A)(5.11% vs. 1.42%)相对丰度显著降低(P<0.05)。与P组相比,PM和PML组斯比氏促生乳杆菌(23.37% vs. 7.22%,23.37% vs. 10.73%)和那慕尔促生乳杆菌(Levilactobacillus namurensis)(5.37% vs. 1.80%,5.37% vs. 2.65%)相对丰度显著降低(P<0.05),而植物乳杆菌(Lactiplantibacillus plantarum)(2.53% vs. 8.74%,2.53% vs. 4.80%)、戊糖植物乳杆菌(Lactiplantibacillus pentosus)(4.09% vs. 13.05%,4.09% vs. 7.84%)、稻米发酵醋酸杆菌(Acetobacter oryzifermentans)(0.18% vs. 17.08%,0.18% vs. 24.06%)相对丰度显著提高(P<0.05);PL组植物乳杆菌(2.53% vs. 0.55%)、戊糖植物乳杆菌(4.09% vs. 0.73%)和稻米发酵醋酸杆菌(0.18% vs. 0.14%)相对丰度显著降低(P<0.05),而布氏迟缓乳杆菌(17.20% vs. 80.04%)相对丰度显著提高(P<0.05)。

2.4 青贮玉米微生物代谢物

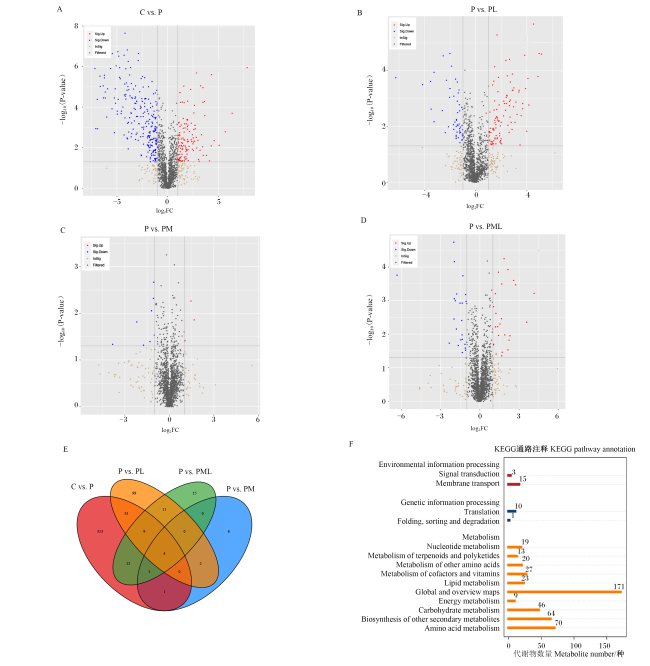
图2所示,与C组相比,P组青贮玉米微生物代谢物有118种显著上调(P<0.05),226种显著下调(P<0.05)(图2-A)。与P组相比,PL组有100种代谢物显著上调(P<0.05),52种代谢物显著下调(P<0.05)(图2-B);PM组有4种代谢物显著上调(P<0.05),8种代谢物显著下调(P<0.05)(图2-C);PML组有25种代谢物显著上调(P<0.05),26种代谢物显著下调(P<0.05)(图2-D)。所有代谢物均被映射到14条KEGG 3级通路,其中全局和概览图通路包含的注释代谢物数量最多(171种代谢物),其次是氨基酸代谢通路(70种代谢物)(图2-E)。
图2 青贮玉米微生物代谢物分析

A~D:火山图展示上调和下调代谢物;E:维恩图展示组间差异代谢物;F:参与代谢物的KEGG通路注释。A to D: volcano maps showing up-regulated and down-regulated metabolites; E: Venn diagram showing differential metabolites among groups; F: KEGG pathway annotation of participating metabolites.

Sig.Up:显著上调 insignificantly up-regulated;Sig.Down:显著下调 significantly down-regulated;InSig:不显著 insignificantly;Filtered:滤过;-log10(P-value):-log10(P值);log2FC:log2差异倍数 log2fold change。

Environmental information processing:环境信息处理;Signal transduction:信号转导;Membrane transport:膜转运;Genetic information processing:遗传信息处理;Translation:翻译;Folding, sorting and degradation:折叠、分选与降解;Metabolism:代谢;Nucleotide metabolism:核苷酸代谢;Metabolism of terpenoids and polyketides:萜类和聚酮类代谢;Metabolism of other amino acids:其他氨基酸代谢;Metabolism of cofactors and vitamins:辅因子和维生素代谢;Lipid metabolism:脂质代谢;Global and overview maps:全局和概览图;Energy metabolism:能量代谢;Carbohydrate metabolism:碳水化合物代谢;Biosynthesis of other secondary metabolites:其他次生代谢物生物合成;Amino acid metabolism:氨基酸代谢。

Fig.2 Microbiota metabolite analysis of corn silage

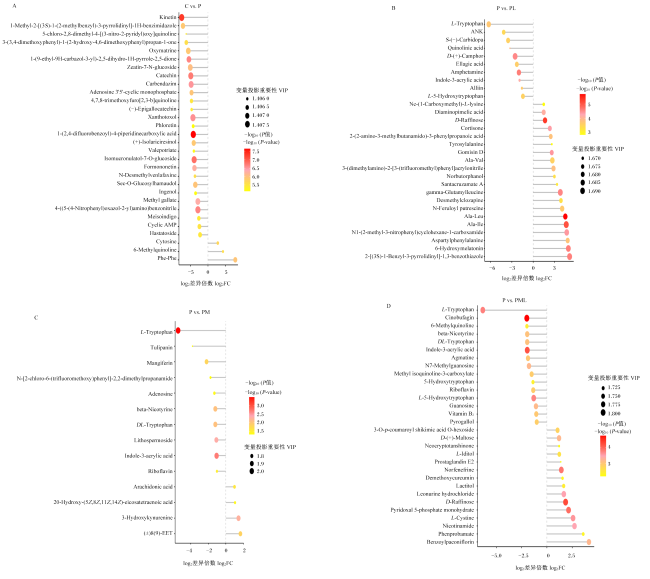
基于上调和下调总变化筛选出的前30种差异代谢物如图3所示。与C组相比,P组黄酮类(儿茶素、表没食子儿茶素)、芳基四氢萘木脂素类(异落叶松脂醇)、异戊烯醇脂质(缬草三酯、巨大戟醇、戟叶马鞭草苷)、异黄酮类(异黏霉醇-7-O-葡萄糖苷、芒柄花黄素)、吲哚类及其衍生物(甲异靛)和羽扇豆生物碱类(氧化苦参碱)等含量显著提高(P<0.05)(图3-A)。与P组相比,PL组L-色氨酸、喹啉酸、鞣酸、苯丙胺和L-5-羟色氨酸等含量显著提高(P<0.05)(图3-B);PM组色氨酸、郁金香苷、芒果苷、腺苷、β-二烯烟碱等含量显著提高(P<0.05),而花生四烯酸、3-羟基犬尿氨酸等含量显著降低(P<0.05)(图3-C);PML组L-色氨酸、华蟾蜍精、6-甲基喹啉、β-二烯烟碱、胍基丁胺、5-羟色氨酸、核黄素和鸟苷等含量显著提高(P<0.05),而新隐丹参酮、L-艾杜糖醇、去甲苯福林、去甲氧基姜黄素、乳糖醇、L-胱氨酸、烟酰胺、苯丙氨酯和苯甲酰芍药苷等含量显著降低(P<0.05)(图3-D)。
图3 青贮玉米微生物差异代谢物(前30)

Kinetin:激动素;1-Methyl-2-[(3S)-1-(2-methylbenzyl)-3-pyrrolidinyl]-1H-benzimidazole:1-甲基-2-[(3S)-1-(2-甲基苄基)-3-吡咯烷基]-1H-苯并咪唑;5-chloro-2,8-dimethyl-4-[(3-nitro-2-pyridyl)oxy]quinoline:5-氯-2,8-二甲基-4-[(3-硝基-2-吡啶基)氧基]喹啉;3-(3,4-dimethoxyphenyl)-1-(2-hydroxy-4,6-dimethoxyphenyl)propan-1-one:3-(3,4-二甲氧基苯基)-1-(2-羟基-4,6-二甲氧基苯基)丙-1-酮;Oxymatrine:氧化苦参碱;1-(9-ethyl-9H-carbazol-3-yl)-2,5-dihydro-1H-pyrrole-2,5-dione:1-(9-乙基-9H-咔唑-3-基)-2,5-二氢-1H-吡咯-2,5-二酮;Zeatin-7-N-glucoside:玉米素-7-N-葡萄糖苷;Catechin:儿茶素;Carbendazim:多菌灵;Adenosine 3'5'-cyclic monophosphate:腺甘3',5'-环磷酸腺苷;4,7,8-trimethoxyfuro[2,3-b]quinoline:4,7,8-三甲氧基呋喃并[2,3-b]喹啉;(-)-Epigallocatechin:(-)-表没食子儿茶素;Xanthotoxol:花椒毒素醇;Phloretin:根皮素;1-(2,4-difluorobenzoyl)-4-piperidinecarboxylic acid:1-(2,4-二氟苯甲酰基)-4-哌啶羧酸;(+)-Isolariciresinol:(+)-异落叶松脂醇;Valepotriate:缬草三酯;Isomucronulatol-7-O-glucoside:异黏霉醇-7-O-葡萄糖苷;Formononetin:芒柄花黄素;N-Desmethylvenlafaxine:N-去甲文拉法辛;Sec-O-Glucosylhamaudol:亥茅酚苷;Ingenol:巨大戟醇;Methyl gallate:没食子酸甲酯;4-((5-(4-Nitrophenyl)oxazol-2-yl)amino)benzonitrile:4-((5-(4-硝基苯基)恶唑-2-基)氨基)苄腈;Meisoindigo:甲异靛;Cyclic AMP:环腺苷酸;Hastatoside:戟叶马鞭草苷;Cytosine:胞嘧啶;6-Methylquinoline:6-甲基喹啉;Phe-Phe:苯丙氨酰-苯丙氨酸;L-Tryptophan:L-色氨酸;ANK:锚蛋白 ankyrin;S-(-)-Carbidopa:S-(-)-卡比多巴;Quinolinic acid:喹啉酸;D-(+)-Camphor:D-(+)-樟脑;Ellagic acid:鞣酸;Amphetamine:苯丙胺;Indole-3-acrylic acid:吲哚-3-丙烯酸;Alliin:蒜氨酸;L-5-Hydroxytryptophan:L-5-羟色氨酸;Ne-(1-Carboxymethyl)-L-lysine:Ne-(1-羧甲基)-L-赖氨酸;Diaminopimelic acid:二氨基庚二酸;D-Raffinose:D-棉子糖;Cortisone:可的松;2-(2-amino-3-methylbutanamido)-3-phenylpropanoic acid:2-(2-氨基-3-甲基丁酰胺基)-3-苯基丙酸;Tyrosylalanine:酪氨酰丙氨酸;Gomisin D:戈米辛D;Ala-Val:丙氨酰-缬氨酸;3-(dimethylamino)-2-[3-(trifluoromethyl)phenyl]acrylonitrile:3-(二甲基氨基)-2-[3-(三氟甲基)苯基]丙烯腈;Norbutorphanol:去甲丁啡诺;Santacruzamate A:圣克鲁斯氨酯A;gamma-Glutamylleucine:γ-谷氨酰亮氨酸;Desmethylclozapine:去甲氯氮平;N-Feruloyl putrescine:N-阿魏酰腐胺;Ala-Leu:丙氨酰-亮氨酸;Ala-Ile:丙氨酰-异亮氨酸;N1-(2-methyl-3-nitrophenyl)cyclohexane-1-carboxamide:N1-(2-甲基-3-硝基苯基)环己烷-1-甲酰胺;Aspartylphenylalanine:天冬氨酰苯丙氨酸;6-Hydroxymelatonin:6-羟基褪黑素;2-[(3S)-1-Benzyl-3-pyrrolidinyl]-1,3-benzothiazole:2-[(3S)-1-苄基-3-吡咯烷基]-1,3-苯并噻唑;Tulipanin:郁金香苷;Mangiferin:芒果苷;N-[2-chloro-6-(trifluoromethoxy)phenyl]-2,2-dimethylpropanamide:N-[2-氯-6-(三氟甲氧基)苯基]-2,2-二甲基丙酰胺;Adenosine:腺苷;beta-Nicotyrine:β-二烯烟碱;DL-Tryptophan:DL-色氨酸;Lithospermoside:紫草素苷;Riboflavin:核黄素;Arachidonic acid:花生四烯酸;20-Hydroxy-(5Z,8Z,11Z,14Z)-eicosatetraenoic acid:20-羟基-(5Z,8Z,11Z,14Z)-二十碳四烯酸;3-Hydroxykynurenine:3-羟基犬尿氨酸;(±)8(9)-EET:(±)8(9)-环氧二十碳三烯酸 (±)8(9)-epoxyeicosatrienoic acid;Cinobufagin:华蟾蜍精;Agmatine:胍基丁胺;N7-Methylguanosine:N7-甲基鸟苷;Methyl isoquinoline-3-carboxylate:甲基异喹啉-3-羧酸;5-Hydroxytryptophan:5-羟色氨酸;Guanosine:鸟苷;Vitamin B2:维生素B2;Pyrogallol:焦性没食子酸;3-O-p-coumaroyl shikimic acid O-hexoside:3-O-p-香豆酰莽草酸O-己糖苷;D-(+)-Maltose:D-(+)-麦芽糖;Neocryptotanshinone:新隐丹参酮;L-Iditol:L-艾杜糖醇;Prostaglandin E2:前列腺素E2;Norfenefrine:去甲苯福林;Demethoxycurcumin:去甲氧基姜黄素;Lactitol:乳糖醇;Leonurine hydrochloride:盐酸益母草碱;Pyridoxal 5-phosphate monohydrate:吡哆醛5-磷酸一水合物;L-Cystine:L-胱氨酸;Nicotinamide:烟酰胺;Phenprobamate:苯丙氨酯;Benzoylpaeoniflorin:苯甲酰芍药苷。

Fig.3 Differential microbiota metabolites of corn silage (top 30)

2.5 青贮玉米微生物标志属与代谢物之间相关性

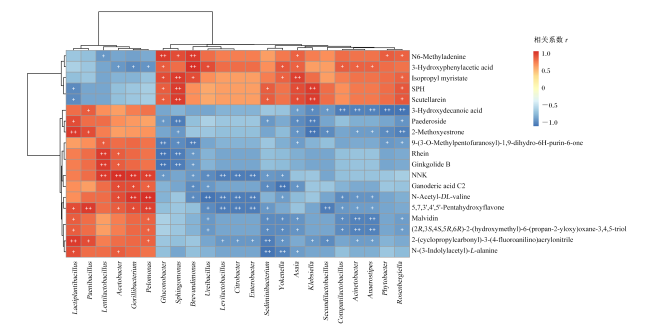
图4所示,青贮玉米微生物群落中植物乳杆菌属、类芽孢杆菌属、迟缓乳杆菌属、醋酸杆菌属和泥单胞菌属(Pelomonas)相对丰度与大多数代谢物含量呈显著正相关(P<0.05),而葡糖杆菌属(Gluconobacter)、鞘氨醇单胞菌属(Sphingomonas)、短波单胞菌属(Brevundimonas)、脲芽孢杆菌属(Ureibacillus)、不动杆菌属(Acinetobacter)、厌氧棍状菌属(Anaerostipes)、沉积杆菌属(Sediminibacterium)和约克纳菌属(Yokenella)等相对丰度则与大多数代谢物含量呈显著负相关(P<0.05)。
图4 青贮玉米微生物标志属与代谢物之间相关性分析

Lactiplantibacillus:植物乳杆菌属;Paenibacillus:类芽孢杆菌属;Lentilactobacillus:迟缓乳杆菌属;Acetobacter:醋酸杆菌属;Pelomonas:泥单胞菌属;Gluconobacter:葡糖杆菌属;Sphingomonas:鞘氨醇单胞菌属;Brevundimonas:短波单胞菌属;Ureibacillus:脲芽孢杆菌属;Levilactobacillus:促生乳杆菌属;Citrobacter:柠檬酸杆菌属;Enterobacter:肠杆菌属;Sediminibacterium:沉积杆菌属;Yokenella:约克纳菌属;Asaia:亚细亚菌属;Klebsiella:克雷伯菌属;Secundilactobacillus:次乳杆菌属;Companilactobacillus:伴生乳杆菌属;Acinetobacter:不动杆菌属;Anaerostipes:厌氧棍状菌属;Phytobacter:植物杆菌属;Rosenbergiella:罗森伯格菌属;N6-Methyladenine:N6-甲基腺嘌呤;3-Hydroxyphenylacetic acid:3-羟基苯乙酸;Isopropyl myristate:异丙酰肉豆蔻酸酯;SPH:鞘氨醇 sphingosine;Scutellarein:野黄芩素;3-Hydroxydecanoic acid:3-羟基癸酸;Paederoside:鸡屎藤苷;2-Methoxyestrone:2-甲氧基雌甾酮;9-(3-O-Methylpentofuranosyl)-1,9-dihydro-6H-purin-6-one:9-(3-O-甲基戊呋喃糖基)-1,9-二氢-6H-嘌呤-6-酮;Rhein:大黄酸;Ginkgolide B:银杏内酯B;NNK:尼古丁衍生亚硝胺酮 nicotine-derived nitrosamine ketone;Ganoderic acid C2:灵芝酸C2;N-Acetyl-DL-valine:N-乙酰-DL-缬氨酸;5,7,3',4',5'-Pentahydroxyflavone:5,7,3',4',5'-五羟基黄酮;Malvidin:锦葵色素;(2R,3S,4S,5R,6R)-2-(hydroxymethyl)-6-(propan-2-yloxy)oxane-3,4,5-triol:(2R,3S,4S,5R,6R)-2-(羟甲基)-6-(异丙氧基)氧杂环己烷-3,4,5-三醇;2-(cyclopropylcarbonyl)-3-(4-fluoroanilino)acrylonitrile:2-(环丙基羰基)-3-(4-氟苯胺基)丙烯腈;N-(3-Indolylacetyl)-L-alanine:N-(3-吲哚乙酰基)-L-丙氨酸。

+表示显著相关(P<0.05),++表示极显著相关(P<0.01)。+ indicated significant correlation (P<0.05), and ++ indicated extremely significant correlation (P<0.01).

Fig.4 Correlation analysis between microbial marker genera and metabolites of corn silage

3 讨论

3.1 不同处理对青贮玉米营养成分含量和发酵品质的影响

优质的青贮饲料通常含有较高的DM和CP含量,且纤维含量较低[21]。本研究结果发现,与C组相比,P组青贮玉米NDF、NH3-N和NPN含量显著降低,同时DM、WSC、可水解单宁和乙酸含量显著提高。这一结果与单宁在青贮中的作用机制一致,单宁作为多酚类物质,可通过抑制梭菌等蛋白质分解菌的活性减少蛋白质降解,从而降低NH3-N和NPN的积累[6];同时,单宁对纤维分解菌的抑制作用可能减少了NDF的降解,而WSC的保留可能与PP中的单宁抑制不良微生物(如产酸能力弱的菌属)有关[22]。总之,本试验结果进一步证明了PP能够通过活性成分单宁改善青贮玉米发酵品质。此外,PM组DM和WSC含量降低,可能是由于GOD促进了部分微生物对碳水化合物的消耗。与P组相比,PL组和PML组NH3-N和NPN含量进一步降低,乙酸含量进一步提高。布氏乳杆菌40788作为典型的异型发酵乳酸菌,其核心作用在于将乳酸转化为乙酸,增强对蛋白质分解菌或蛋白质降解酶的抑制,同时促进产乙酸菌(如醋酸杆菌属)的增殖,这与微生物群落分析中PML组醋酸杆菌属相对丰度提高的结果一致。乙酸作为青贮中重要的挥发性脂肪酸,其积累可降低青贮pH,抑制霉菌等腐败菌生长,延长青贮保存期[23],这表明布氏乳杆菌及其与GOD联合应用可能在提升青贮玉米稳定性方面具有优势。

3.2 不同处理对青贮玉米抗氧化能力的影响

抗氧化能力是衡量青贮品质的重要指标,其强弱直接影响青贮饲料的氧化稳定性及饲喂后动物的氧化应激状态。本研究中,与C组相比,P组青贮玉米T-AOC、GSH-Px活性、总酚和总黄酮含量以及DPPH自由基清除活性均显著提高,这与总酚和黄酮类物质的抗氧化活性密切相关。已有研究证实,酚类物质可通过清除自由基、螯合金属离子等方式增强抗氧化能力[24]。此外,P组总单宁(尤其是可水解单宁)的积累可能为酚类物质的合成提供了前体物质,进而提升抗氧化水平[6]。与P组相比,PM组总酚和总黄酮含量进一步提高,表明GOD可能通过促进植物次生代谢途径增强多酚类物质的合成;PML组T-AOC、总黄酮含量以及DPPH自由基清除活性显著提高,进一步表明PP、GOD与布氏乳杆菌的协同作用可能最大化提升了青贮玉米的抗氧化潜力。值得注意的是,PL组T-AOC和GSH-Px活性显著降低,可能是由于布氏乳杆菌对某些抗氧化相关酶合成的抑制,或与微生物群落结构改变导致的代谢物差异有关,其具体机制需进一步探究。

3.3 不同处理对青贮玉米微生物群落的影响

微生物群落的演替是决定青贮品质的核心因素。本研究发现,PP处理显著改变了青贮玉米的微生物群落组成,表现为类芽孢杆菌属、迟缓乳杆菌属和植物乳杆菌属相对丰度升高,而促生乳杆菌属和伴生乳杆菌属相对丰度降低。迟缓乳杆菌属和植物乳杆菌属作为青贮中的优势有益菌,可高效利用WSC产生乳酸和乙酸,降低青贮pH[25]。促生乳杆菌属和伴生乳杆菌属相对丰度的降低可能与单宁对其生长的抑制有关。夏光浩等[26]报道,单宁对微生物生长具有显著调控作用,可能抑制促生乳杆菌属和伴生乳杆菌属等乳酸菌的繁殖。与P组相比,PM组和PML组植物乳杆菌属和醋酸杆菌属相对丰度升高,表明GOD可能更有利于植物乳杆菌属的增殖,而醋酸杆菌属的富集直接促进了乙酸的积累;PL组迟缓乳杆菌相对丰度提高,可能与布氏乳杆菌对该菌属的特异性促进有关,其产乙酸能力的增强也解释了PL组乙酸含量的升高。

3.4 不同处理对青贮玉米微生物代谢物的影响

代谢物是微生物活动与植物生理代谢的直接产物,其组成变化可反映青贮品质的调控机制。本研究鉴定出青贮玉米中黄酮类为主要微生物代谢物,且PP处理显著提高了儿茶素、表没食子儿茶素等黄酮类物质的含量。这些物质不仅是抗氧化能力提升的重要贡献者,还可能通过抑制病原微生物(如肺炎克雷伯菌)的生长参与青贮品质调控[27],这与微生物分析中PP处理降低克雷伯菌属相对丰度的结果一致。差异代谢物分析结果显示,与P组相比,PM组色氨酸、腺苷等含量提高,这可能与一些氨基酸分解菌相对丰度的提高有关,微生物分析结果显示PM组埃希氏菌属(Escherichia)相对丰度提高。埃希氏菌属能够通过色氨酸合成途径合成色氨酸[28]。PML组L-色氨酸、5-羟色氨酸等代谢物含量升高,提示该组处理可能通过促进色氨酸代谢途径增强青贮的生理活性。KEGG通路分析表明,全局和概览图及氨基酸代谢通路富集显著,进一步证实不同处理通过调控微生物对碳水化合物和氮源的代谢,影响青贮的营养和功能成分积累。
此外,相关性分析显示,植物乳杆菌属、醋酸杆菌属等有益菌与多数代谢物呈正相关,而葡糖杆菌属、不动杆菌属等潜在有害菌与多数代谢物呈负相关,表明微生物群落结构的优化是代谢物组成改善的关键驱动因素,而代谢物的变化又进一步反馈调控了微生物的生长与青贮品质,形成“微生物-代谢物-发酵品质”的协同调控。

4 结论

本研究表明,不同处理通过调控微生物群落结构和代谢物组成,显著影响青贮玉米品质。其中,PP处理可通过富集植物乳杆菌属等有益菌和促进黄酮类等抗氧化代谢物积累,降低纤维含量及蛋白质分解,提升抗氧化能力,有效改善发酵品质;PP+GOD处理进一步提高总酚和总黄酮含量;PP+布氏乳杆菌处理主要促进乙酸生成;PP+GOD+布氏乳杆菌处理效果最优,不仅进一步降低NDF、NH3-N和NPN含量,还提高乙酸含量、T-AOC及DPPH自由基清除活性。综上所述,PP+GOD+布氏乳杆菌处理通过“微生物-代谢物-发酵品质”协同调控,提升青贮玉米营养和功能特性。
[1]
SAFA S, KARGAR S, MOGHADDAM G A, et al. Heat stress abatement during the postpartum period:effects on whole lactation milk yield,indicators of metabolic status,inflammatory cytokines,and biomarkers of the oxidative stress[J]. Journal of Animal Science, 2019, 97(1):122-132.

[2]
KHAN N A, YU P Q, ALI M, et al. Nutritive value of maize silage in relation to dairy cow performance and milk quality[J]. Journal of the Science of Food and Agriculture, 2015, 95(2):238-252.

DOI PMID

[3]
PIADEH A, GHASEMI E, ALIKHANI M, et al. Effect of different dietary ratios of corn silage to barley silage on fiber digestibility,feeding behavior,and milk yield performance of dairy cows[J]. Journal of Livestock Science and Technologies, 2020, 8(1):47-58.

[4]
ZHANG X, KE W C, DING Z T, et al. Microbial mechanisms of using feruloyl esterase-producing Lactobacillus plantarum A1 and grape pomace to improve fermentation quality and mitigate ruminal methane emission of ensiled alfalfa for cleaner animal production[J]. Journal of Environment Management, 2022, 308:114637.

[5]
RAZZAGHI A, NASERIAN A A, VALIZADEH R, et al. Pomegranate seed pulp,pistachio hulls,and tomato pomace as replacement of wheat bran increased milk conjugated linoleic acid concentrations without adverse effects on ruminal fermentation and performance of Saanen dairy goats[J]. Animal Feed Science and Technology, 2015, 210:46-55.

DOI

[6]
ZHANG X, ZHANG H X, WANG D C, et al. From waste to value:multi-omics reveal pomegranate peel addition improves corn silage antioxidant activity and reduces methane and nitrogen losses[J]. Bioresource Technology, 2025, 429:132544.

DOI

[7]
HAN F R, ZHANG M Z, SUN W T, et al. Effects of Lactobacillus buchneri and Lactobacillus rhamnosus on ryegrass silage fermentation and aerobic stability[J]. Fermentation, 2025, 11(1):8.

DOI

[8]
赵和平, 孙见, 刘云祥, 等. 葡萄糖氧化酶对全株玉米青贮品质的影响[J]. 中国饲料, 2023(1):78-81,88.

ZHAO H P, SUN J, LIU Y X, et al. Effect of glucose oxidase on the quality of whole-plant corn silage[J]. China Feed, 2023(1):78-81,88. (in Chinese)

[9]
SONG J J, ZHANG X, WEN X F, et al. The effects of microorganisms and cellulases on the quality and microbial diversity of Caragana korshinskii silage[J]. Fermentation, 2025, 11(3):115.

DOI

[10]
LIU J J, LIU M J, SHENG P J, et al. Biotechnological effects of Lactobacillus plantarum,cellulase,and xylanase on nutritional quality and microbial community structure of corn stover silage[J]. Fermentation, 2025, 11(1):14.

DOI

[11]
THOMAS T A. An automated procedure for the determination of soluble carbohydrates in herbage[J]. Journal of the Science of Food and Agriculture, 1977, 28(7):639-642.

DOI

[12]
HIRAOKA H, ISHIKURO E, GOTO T. Simultaneous analysis of organic acids and inorganic anions in silage by capillary electrophoresis[J]. Animal Feed Science and Technology, 2010, 161(1/2):58-66.

DOI

[13]
BRODERICK G A, KANG J H. Automated simultaneous determination of ammonia and total amino acids in ruminal fluid and in vitro media[J]. Journal of Dairy Science, 1980, 63(1):64-75.

DOI

[14]
ABEYSEKARA S, CHRISTENSEN D A, NIU Z Y, et al. Molecular structure,chemical and nutrient profiles,and metabolic characteristics of the proteins and energy in new cool-season corn varieties harvested as fresh forage for dairy cattle[J]. Journal of Dairy Science, 2013, 96(10):6631-6643.

DOI

[15]
AOAC. Official methods of analysis of AOAC international[S]. 16th ed.Washington,D. C.:Association of Official Analytical Chemists, 1995.

[16]
VAN SOEST P J, ROBERTSON J B, LEWIS B A. Methods for dietary fiber,neutral detergent fiber,and nonstarch polysaccharides in relation to animal nutrition[J]. Journal of Dairy Science, 1991, 74(10):3583-3597.

DOI

[17]
代立刚, 何煜, 王浩, 等. 谷物中总淀粉含量的测定方法[J]. 中国食物与营养, 2013, 19(6):38-42.

DAI L G, HE Y, WANG H, et al. Determination methods of total starch content in grain[J]. Food and Nutrition in China, 2013, 19(6):38-42. (in Chinese)

[18]
MAKKAR H P S. Quantification of tannins in tree and shrub foliage:a laboratory manual[M]. Dordrecht: Springer, 2003:53-54.

[19]
MORE G K, MAKOLA R T. In-vitro analysis of free radical scavenging activities and suppression of LPS-induced ROS production in macrophage cells by Solanum sisymbriifolium extracts[J]. Scientific Reports, 2020, 10(1):6493.

DOI

[20]
SONG Y, WANG Z C, JI H, et al. Fatty acid modification of casein bioactive peptides nano-assemblies,synthesis,characterization and anticarcinogenic effect[J]. International Journal of Biological Macromolecules, 2024, 254(Pt 1):127718.

DOI

[21]
AGARUSSI M C N, PEREIRA O G, PIMENTEL F E, et al. Microbiome of rehydrated corn and sorghum grain silages treated with microbial inoculants in different fermentation periods[J]. Scientific Reports, 2022, 12(1):16864.

DOI PMID

[22]
PENG K, JIN L, NIU Y D, et al. Condensed tannins affect bacterial and fungal microbiomes and mycotoxin production during ensiling and upon aerobic exposure[J]. Applied and Environmental Microbiology, 2018, 84(5):e02274-17.

[23]
MUCK R E. Silage microbiology and its control through additives[J]. Revista Brasileira de Zootecnia, 2010, 39(Suppl.):183-191.

[24]
ISMAIL T, SESTILI P, AKHTAR S. Pomegranate peel and fruit extracts:a review of potential anti-inflammatory and anti-infective effects[J]. Journal of Ethnopharmacology, 2012, 143(2):397-405.

DOI

[25]
SU J Q, XUE Y, ZHANG K L, et al. The effects of Lactobacillus plantarum,Bacillus subtilis,a lignocellulolytic enzyme system,and their combination on the fermentation profiles,chemical composition,bacterial community,and in situ rumen digestion of fresh waxy corn stalk silage[J]. Animals, 2024, 14(23):3442.

DOI

[26]
夏光浩, 孙文涛, 吴长荣, 等. 植物单宁对青贮饲料品质及瘤胃发酵影响的研究进展[J]. 饲料工业, 2023, 44(17):63-69.

XIA G H, SUN W T, WU C R, et al. Research progress on the effect of plant tannins on silage quality and rumen fermentation[J]. Feed Industry, 2023, 44(17):63-69. (in Chinese)

[27]
GRZESIK M, NAPARŁO K, BARTOSZ G, et al. Antioxidant properties of catechins:comparison with other antioxidants[J]. Food Chemistry, 2018, 241:480-492.

DOI

[28]
KHANDELWAL R, JAIN D, JAISHANKAR J, et al. Characterization of Zymomonas mobilis promoters that are functional in Escherichia coli[J]. Journal of Bioscience and Bioengineering, 2022, 133(4):301-308.

DOI

文章导航

/