研究论文

过瘤胃淀粉对山羊肠道中炎症因子及营养物质转运载体基因表达的影响

  • 李园园 , 1, 2 ,
  • 苏晓东 1 ,
  • 张俊 1, 2 ,
  • 姚军虎 , 1, 2, * ,
  • 王砀砀 , 1, 2, *
展开
  • 1 西北农林科技大学动物科技学院, 杨凌 712100
  • 2 国家乳业技术创新中心, 呼和浩特 010100
*姚军虎,教授,博士生导师,E-mail: ;
王砀砀,助理研究员,E-mail:

李园园(1994—),女,新疆石河子人,博士研究生,从事反刍动物营养研究。E-mail:

Office editor: 陈燕

收稿日期: 2025-09-02

  网络出版日期: 2026-04-14

基金资助

国家乳业技术创新中心项目(2024-KFKT-011)

Effects of Rumen Bypass Starch on Gene Expression of Intestinal Inflammatory Factors and Nutrient Transporters of Goats

  • LI Yuanyuan , 1, 2 ,
  • SU Xiaodong 1 ,
  • ZHANG Jun 1, 2 ,
  • YAO Junhu , 1, 2, * ,
  • WANG Dangdang , 1, 2, *
Expand
  • 1 College of Animal Science and Technology, Northwest A & F University, Yangling 712100, China
  • 2 National Center of Technology Innovation for Dairy, Hohhot 010100, China
*YAO Junhu, professor, E-mail: ;
WANG Dangdang, assistant professor, E-mail:

Received date: 2025-09-02

  Online published: 2026-04-14

摘要

本研究旨在探讨过瘤胃淀粉对山羊肠道中炎症因子及营养物质转运载体基因表达的影响。选取体况良好、体重[(50.84±5.42) kg]相近的去势关中奶山羊18只,随机分为3个组,每个组6只。3个组分别饲喂由整粒玉米(WC组)、破碎玉米(RC组)及粉碎玉米(GC组)配制的过瘤胃淀粉量不同、但饲粮组成及饲料原料来源完全相同的饲粮。试验期50 d。结果表明:1)WC组过瘤胃淀粉量和空肠食糜中丙酸含量显著低于其他2组(P<0.05),WC组空肠和回肠食糜中淀粉含量及回肠食糜中异丁酸和异戊酸含量显著低于RC组(P<0.05),RC组淀粉全消化道消化率显著低于其他2组(P<0.05)。2)各组间空肠和回肠的绒毛高度、隐窝深度、绒毛高度/隐窝深度均差异不显著(P>0.05)。3)在山羊小肠营养物质吸收相关基因中,与GC组相比,WC组空肠味觉受体1家族成员3(TAS1R3)基因相对表达水平显著降低(P<0.05),空肠溶质载体家族6成员19(SLC6A19)基因相对表达水平显著提高(P<0.05);在山羊小肠免疫相关基因中,与RC组相比,WC组空肠C-C趋化因子受体7(CCR7)、C-X-C趋化因子配体13(CXCL13)、C-C趋化因子配体1(CCL1)、C-C趋化因子配体19(CCL19)及C-C趋化因子配体22(CCL22)基因相对表达水平均极其显著、极显著或者显著降低(P<0.001、P<0.01或者P<0.05)。4)与RC组相比,WC组空肠核因子-κB信号通路及回肠花生四烯酸代谢等通路差异表达基因(DEGs)表达显著下调(P<0.05);与GC组相比,WC组空肠细胞黏附分子和回肠鞘脂代谢通路的DEGs表达显著下调(P<0.05)。综上所述,相比于破碎玉米,饲喂整粒玉米降低山羊过瘤胃淀粉量,下调小肠中炎性因子基因的表达;相比于整粒玉米,饲喂破碎玉米提高山羊过瘤胃淀粉量,但小肠中关键淀粉水解酶及葡萄糖转运载体基因的表达未发生适应性上调,可能限制了淀粉的高效利用。

本文引用格式

李园园 , 苏晓东 , 张俊 , 姚军虎 , 王砀砀 . 过瘤胃淀粉对山羊肠道中炎症因子及营养物质转运载体基因表达的影响[J]. 动物营养学报, 2026 , 38(4) : 2768 -2781 . DOI: 10.12418/CJAN2026.223

Abstract

This study was conducted to investigate the effects of rumen bypass starch on the gene expression of intestinal inflammatory factors and nutrient transporters of goats. Eighteen castrated Guanzhong dairy goats with similar body condition and body weight [(50.84±5.42) kg] were selected and randomly divided into 3 groups, with 6 goats per group. Goats in the 3 groups were fed diets with different amounts of rumen bypass starch regulated using whole corn (WC group), rolled corn (RC group), and ground corn (GC group), respectively, while the dietary composition and ingredient sources were identical. The experiment lasted for 50 days. The results showed as follows: 1) the rumen bypass starch amount and propionate content in jejunal digesta of the WC group were significantly lower than those of the other two groups (P<0.05). The starch content in jejunal and ileal digesta, as well as the isobutyrate and isovalerate contents in ileal digesta of the WC group, were significantly lower than those of the RC group (P<0.05). The total tract digestibility of starch of the RC group was significantly lower than that of the other two groups (P<0.05). 2) No significant differences were observed in villus height, crypt depth, and villus height/crypt depth in the jejunum and ileum among all groups (P>0.05). 3) Regarding nutrient absorption-related genes in the small intestine, compared with the GC group, the WC group exhibited a significantly lower relative expression level of taste 1 receptor member 3 (TAS1R3) (P<0.05) and a significantly higher relative expression level of solute carrier family 6 member 19 (SLC6A19) in the jejunum (P<0.05). For immune-related genes in the small intestine, compared with the RC group, the WC group showed extremely significant, highly significant, or significant decreases in the relative expression levels of C-C chemokine receptor type 7 (CCR7), C-X-C chemokine ligand 13 (CXCL13), C-C chemokine ligand 1 (CCL1), C-C chemokine ligand 19 (CCL19), and C-C chemokine ligand 22 (CCL22) in the jejunum (P<0.001, P<0.01 or P<0.05). 4) Compared with the RC group, the WC group significantly downregulated the expression of differentially expressed genes (DEGs) enriched in pathways such as the nuclear factor kappa B (NF-κB) signaling pathway in the jejunum and arachidonic acid metabolism in the ileum (P<0.05). Compared with the GC group, the WC group significantly downregulated the expression of DEGs enriched in the cell adhesion molecules pathway in the jejunum and the sphingolipid metabolism pathway in the ileum (P<0.05). In summary, compared to feeding rolled corn, feeding whole corn reduces the amount of rumen bypass starch and downregulates the expression of inflammatory factor genes in the small intestine of goats. Conversely, compared to feeding whole corn, feeding rolled corn increases the amount of rumen bypass starch, but the expression of key genes encoding starch hydrolases and glucose transporters in the small intestine does not undergo adaptive upregulation, which may limit the efficient utilization of starch.

玉米是反刍动物常用能量饲料,通过不同加工方式可以改变玉米的物理结构,从而调控其在瘤胃中的降解速率[1],改变进入小肠的淀粉量,最终影响小肠的营养物质代谢与生理功能。研究表明,小反刍动物饲喂含整粒玉米(whole corn,WC)饲粮可增加瘤胃液丙酸含量并降低乙丙比,稳定瘤胃液pH,从而提高生产性能[2]。奶山羊饲粮中过细的谷物加工虽然提高了淀粉的全消化道消化率和消化能,但由于发酵产生的热能和气体能量增加,最终降低了饲粮的能量效率[3]。Jin等[4]研究表明,相较于整粒玉米,破碎玉米(rolled corn,RC)到达后肠的淀粉量更多,进而引起后肠炎症。小肠是过瘤胃淀粉消化和吸收的重要场所,淀粉在通过瘤胃进入小肠后,会在α-淀粉酶和α-葡萄糖苷酶的作用下水解为麦芽糖和葡萄糖[5],这些糖类物质通过转运载体被小肠上皮细胞吸收,进入血液并参与全身的代谢[6]。过多的淀粉进入小肠,可能会引起肠道免疫系统反应,激活炎症途径,进而影响肠道屏障功能,导致炎症因子的分泌增加,并降低小肠的吸收能力,最终影响动物健康和生产性能。目前关于玉米加工方式对小反刍动物瘤胃代谢、饲料效率和生产性能影响的研究较多,但是关于过瘤胃淀粉对小肠营养物质消化吸收、免疫等功能的影响及机制尚不明晰。基于此,本研究通过转录组学解析过瘤胃淀粉对山羊肠道炎症因子及营养物质转运载体基因表达的影响,为优化山羊饲料加工工艺、淀粉高效利用与肠道功能调控提供理论依据。

1 材料与方法

1.1 试验设计

本研究所涉及动物试验符合西北农林科技大学动物实验伦理委员会的动物伦理要求并获得批准,批准编号:NWAFAC1008。
选取体况良好、体重[(50.84±5.42) kg]相近的去势关中奶山羊18只,随机分为3个组,每个组6只。3个组分别饲喂由整粒玉米(WC组)、破碎玉米(RC组)及粉碎玉米(ground corn,GC组)配制的过瘤胃淀粉量不同、但饲粮组成及饲料原料来源完全相同的试验饲粮。试验期50 d。试验饲粮是参照我国《肉羊营养需要量》(NY/T 816—2021)配制的全混合日粮(total mixed ration,TMR),其组成及营养水平见表1。每天08:00和16:00饲喂,自由饮水。破碎玉米及粉碎玉米均采用锤片式粉碎机制备,出料口分别装配10和2 mm筛网,其几何平均粒径分别为2.58和0.56 mm。
表1 试验饲粮组成及营养水平(干物质基础)

Table 1 Composition and nutrient levels of the experimental diet (DM basis) %

项目Items 含量Content
原料Ingredients
玉米青贮Corn silage 33.00
苜蓿干草Alfalfa hay 17.00
玉米Corn 25.00
麸皮Wheat bran 9.90
豆粕Soybean meal 8.26
米糠粕Rice bran meal 4.48
碳酸钙CaCO3 1.07
食盐NaCl 0.40
碳酸氢钠NaHCO3 0.40
磷酸氢钙CaHPO4 0.19
预混料Premix1) 0.30
合计Total 100.00
营养水平Nutrient levels2)
干物质DM 62.77
粗蛋白质CP 13.76
淀粉Starch 22.57
中性洗涤纤维NDF 31.60
酸性洗涤纤维ADF 17.89

1)每千克预混料含有 One kilogram of premix contained the following:VA 200 000 IU,VD3 45 000 IU,VE 650 mg,VK 45 mg,Cu 370 mg,Fe 2 200 mg,Zn 1 800 mg,Mn 800 mg,I 30 mg,Se 30 mg。
2)营养水平均为实测值。Nutrient levels were all measured values.

1.2 样品采集

试验第36~45天,以盐酸不溶灰分(AIA)为指示剂进行消化试验,经过5 d适应后,每只奶山羊通过代谢笼进行连续5 d的全收粪,并记录采食量。第50~52天,晨饲后3 h,分批屠宰所有试验羊,采集瘤胃、空肠和回肠食糜以及空肠和回肠组织样品。瘤胃、空肠和回肠食糜样品的一部分烘干用于营养物质含量测定;另外一部分保存于-80 ℃冰箱,用于测定挥发性脂肪酸(volatile fatty acid,VFA)含量。空肠和回肠组织样品,先取约1 cm×1 cm的小块,用10%甲醛固定,用于肠道组织结构测定;其他空肠和回肠组织样品经液氮速冻后置于-80 ℃冰箱保存,用于后续基因表达分析。试验饲粮每周采集1次,风干保存,试验结束混合取样,待测。

1.3 测定指标与方法

1.3.1 营养物质含量和消化率的测定

将采集的试验饲粮、食糜和粪便样品置于65 ℃烘箱烘干,粉碎过1 mm筛。饲粮中的粗蛋白质(CP)、中性洗涤纤维(NDF)、酸性洗涤纤维(ADF)含量分别参照GB/T 6432—2018、GB/T 20806—2022及NY/T 1459—2022的方法测定;饲粮、食糜和粪便中的干物质(DM)、AIA含量分别参照GB/T 6435—2014、GB/T 23742—2009的方法测定,淀粉含量通过试剂盒(Megazyme International Ireland Ltd,爱尔兰)测定。
饲粮干物质和淀粉的全消化道消化率采用全收粪法计算:
营养物质全消化道消化率(%)=[(营养物质摄入量-营养物质排泄量)/营养物质摄入量]×100。
饲粮干物质和淀粉的瘤胃、空肠、回肠消化率采用AIA法计算:
瘤胃消化率(%)=[1-(饲粮中AIA含量×瘤胃食糜中营养物质含量)/(瘤胃食糜中AIA含量×饲粮中营养物质含量)]×100;
空肠消化率(%)=[1-(饲粮中AIA含量×空肠食糜中营养物质含量)/(空肠食糜中AIA含量×饲粮中营养物质含量)]×100;
回肠消化率(%)=[1-(饲粮中AIA含量×回肠食糜中营养物质含量)/(回肠食糜中AIA含量×饲粮中营养物质含量)]×100;
过瘤胃淀粉量(g/d)=淀粉摄入量×(1-淀粉瘤胃消化率)。

1.3.2 小肠食糜VFA含量的测定

采用气相色谱法测定空肠和回肠食糜VFA含量。每份样品准确称取0.3 g,与1.7 mL蒸馏水混合,摇匀后于4 ℃条件下放置24 h,随后进行VFA提取及分析。VFA测定时,将混合样品以10 000×g离心力离心10 min,取1 mL上清液,加入200 μL偏磷酸混匀,于4 ℃条件下放置4 h。之后将样品以13 500×g离心力离心15 min,取1 mL上清液与200 μL巴豆酸混合,静置0.5 h,随后经0.45 μm滤膜过滤。其中,气相色谱仪(7890 A,Agilent Technologies,美国)配备氢火焰离子化检测器(FID)和DB-FFAP毛细色谱柱(30 m×0.25 mm×0.25 μm fused silica column,Agilent Technologies,美国)参数配置详见Li等[7]

1.3.3 小肠组织结构测定

取固定的空肠和回肠肠段,经脱水、透明、浸蜡、石蜡包埋等步骤制成切片,并进行苏木精-伊红(HE)染色,用于组织结构测定。使用ImagePro Plus软件测量绒毛高度和隐窝深度,每个切片读取6次数值,并计算绒毛高度/隐窝深度。

1.3.4 小肠组织转录组测定和分析

取冻存的空肠和回肠组织样品解冻后,采用MJZol总RNA提取试剂盒(上海美吉生物医药科技有限公司),按说明书操作步骤提取总RNA。使用超微量分光光度计(NanoDrop 2000,Thermo Fisher Scientific,美国)测定RNA纯度 [以260和280 nm的吸光度(A260/A280)比值表示],并通过琼脂糖凝胶电泳检测RNA完整性。为进一步评估RNA质量,使用全自动核酸分析系统(5300 Bioanalyzer,Agilent,美国)进行分析,仅保留RNA完整性数值(RNA integrity number,RIN)>6.5的高质量样本用于后续建库测序。经荧光定量仪(Qubit 4.0,Thermo Fisher Scientific,美国)精确定量RNA后,进行文库构建和测序。获得的原始双端测序reads使用fastp软件进行修剪和质量控制,参数设置为默认[8]。每个样本中比对上的reads通过StringTie软件,采用基于参考基因组的方法进行组装。使用HISAT2/Bowtie2将高质量序列(clean reads)比对至山羊参考基因组[capra hircus v1,ARS1(gcf_001704415.1)],并剔除宿主来源序列。采用基于期望最大化算法的RNA测序定量分析方法(RNA-Seq by expectation-maximization,RSEM)计算基因及转录本表达量,结果以转录本每百万(transcripts per million,TPM)进行标准化。

1.4 数据统计与分析

试验数据经Excel 2016汇总,使用SPSS 24统计软件中的单因素方差分析(one-way ANOVA),并结合方差齐性检验及Duncan氏法多重比较进行统计分析,采用GraphPad Prism 9.1.0软件制作图表展示。试验结果以平均值及均值标准误(SEM)表示,P<0.05为差异显著,P<0.01为差异极显著,P<0.001为差异极其显著,P>0.05为差异不显著,0.05≤P<0.10为有差异趋势。
转录组学分析中,采用DESeq2软件包进行差异表达基因(differentially expressed genes,DEGs)筛选。采用|log2(差异倍数)|[|log2(FC)|]>1且校正后P值(Padjust-value)<0.05作为显著性标准。为解析DEGs的潜在生物学功能,对其开展京都基因与基因组百科全书数据库(KEGG)通路富集分析。分析结果通过美吉生物云平台(www.majorbio.com)完成可视化呈现。

2 结果

2.1 过瘤胃淀粉对山羊营养物质消化率的影响

表2可知,WC组过瘤胃淀粉量显著低于其他2组(P<0.05),淀粉回肠消化率显著高于其他2组(P<0.05);WC组空肠和回肠食糜中淀粉含量显著低于RC组(P<0.05);RC组淀粉全消化道消化率显著低于其他2组(P<0.05);与RC组相比,WC和GC组淀粉排泄量和粪便中淀粉含量有降低趋势(0.05≤P<0.10);与WC组相比,RC和GC组干物质全消化道消化率有降低趋势(0.05≤P<0.10)。
表2 过瘤胃淀粉对山羊营养物质消化率的影响

Table 2 Effects of rumen bypass starch on nutrient digestibility of goats

项目
Items
WC组
WC group
RC组
RC group
GC组
GC group
均值标准误
SEM
P
P-value
干物质DM
摄入量Intake/(g/d) 1 272.17 1 278.00 1 315.33 43.134 0.916
排泄量Excretion/(g/d) 352.83 362.08 388.45 13.752 0.577
空肠绝对量Jejunal absolute amount/g 17.54 19.29 16.22 1.800 0.804
回肠绝对量Ileal absolute amount/g 23.78 32.06 24.58 3.196 0.534
瘤胃消化率Rumen digestibility/% 37.33 36.49 36.27 1.378 0.860
空肠消化率Jejunal digestibility/% 43.74 42.89 42.05 1.610 0.697
回肠消化率Ileal digestibility/% 51.83 49.44 49.24 0.647 0.198
全消化道消化率Total tract digestibility/% 73.01 71.62 70.41 0.473 0.091
淀粉Starch
摄入量Intake/(g/d) 287.13 288.44 296.87 9.735 0.916
过瘤胃量Rumen bypass amount/(g/d) 114.92b 134.53a 132.30a 3.358 0.022
排泄量Excretion/(g/d) 14.51 22.45 14.97 0.865 0.098
粪便含量Feces content/% 4.03 6.05 3.90 0.422 0.055
空肠绝对量Jejunal absolute amount/g 1.12 1.52 1.12 0.124 0.327
回肠绝对量Ileal absolute amount/g 1.36 2.37 1.68 0.260 0.313
空肠含量Jejunal content/% 6.38b 8.04a 7.16ab 0.259 0.021
回肠含量Ileal content/% 6.27b 7.09a 6.80ab 0.132 0.034
瘤胃消化率Rumen digestibility/% 56.53 56.66 56.90 1.011 0.978
空肠消化率Jejunal digestibility/% 63.15 60.59 60.54 1.085 0.562
回肠消化率Ileal digestibility/% 65.85a 62.37b 62.53b 0.894 0.020
全消化道消化率Total tract digestibility/% 96.29a 92.65b 95.83a 0.485 0.001

同行数据肩标无字母或相同字母表示差异不显著(P>0.05),不同小写字母表示差异显著(P<0.05)。下表同。

In the same row, values with no letter or the same letter superscripts mean no significant difference (P>0.05), while with different small letter superscripts mean significant difference (P<0.05). The same as below.

2.2 过瘤胃淀粉对山羊小肠食糜VFA含量的影响

表3可知,WC组空肠食糜中丙酸含量显著低于RC和GC组(P<0.05),WC组回肠食糜中异丁酸和异戊酸含量显著低于RC组(P<0.05)。
表3 过瘤胃淀粉对山羊小肠食糜VFA含量的影响

Table 3 Effects of rumen bypass starch on VFA contents in small intestine digesta of goats mmol/L

项目
Items
WC组
WC group
RC组
RC group
GC组
GC group
均值标准误
SEM
P
P-value
空肠Jejunum
总挥发性脂肪酸Total VFA 6.21 6.44 7.59 0.287 0.103
乙酸Acetate 4.69 4.30 4.78 0.187 0.562
丙酸Propionate 0.51b 0.81a 0.97a 0.063 <0.001
异丁酸Isobutyrate 0.19 0.27 0.42 0.060 0.326
丁酸Butyrate 0.13 0.27 0.26 0.037 0.228
异戊酸Isovalerate 0.47 0.56 0.79 0.066 0.135
戊酸Valerate 0.22 0.23 0.37 0.041 0.252
回肠Ileum
总挥发性脂肪酸Total VFA 11.84 12.57 10.31 0.596 0.305
乙酸Acetate 10.19 9.10 8.10 0.576 0.351
丙酸Propionate 0.60 0.88 0.74 0.078 0.375
异丁酸Isobutyrate 0.42b 0.77a 0.54ab 0.054 0.014
丁酸Butyrate 0.21 0.53 0.31 0.083 0.284
异戊酸Isovalerate 0.23b 0.78a 0.43ab 0.095 0.041
戊酸Valerate 0.18 0.51 0.20 0.094 0.298

2.3 过瘤胃淀粉对山羊小肠组织结构的影响

表4可知,各组间空肠和回肠的绒毛高度、隐窝深度、绒毛高度/隐窝深度均差异不显著(P>0.05)。
表4 过瘤胃淀粉对山羊小肠组织结构的影响

Table 4 Effects of rumen bypass starch on intestinal tissue structure of goats

项目
Items
WC组
WC group
RC组
RC group
GC组
GC group
均值标准误
SEM
P
P-value
空肠Jejunum
绒毛高度Villus height/μm 568.38 571.15 579.29 21.572 0.981
隐窝深度Crypt depth/μm 288.00 298.96 246.35 13.041 0.236
绒毛高度/隐窝深度Villus height/crypt depth 1.99 1.97 2.36 0.100 0.214
回肠Ileum
绒毛高度Villus height/μm 482.55 496.98 495.52 12.735 0.891
隐窝深度Crypt depth/μm 272.61 275.24 262.13 8.164 0.806
绒毛高度/隐窝深度Villus height/crypt depth 1.77 1.83 1.90 0.050 0.588

2.4 过瘤胃淀粉对山羊小肠营养物质吸收及免疫相关基因相对表达水平的影响

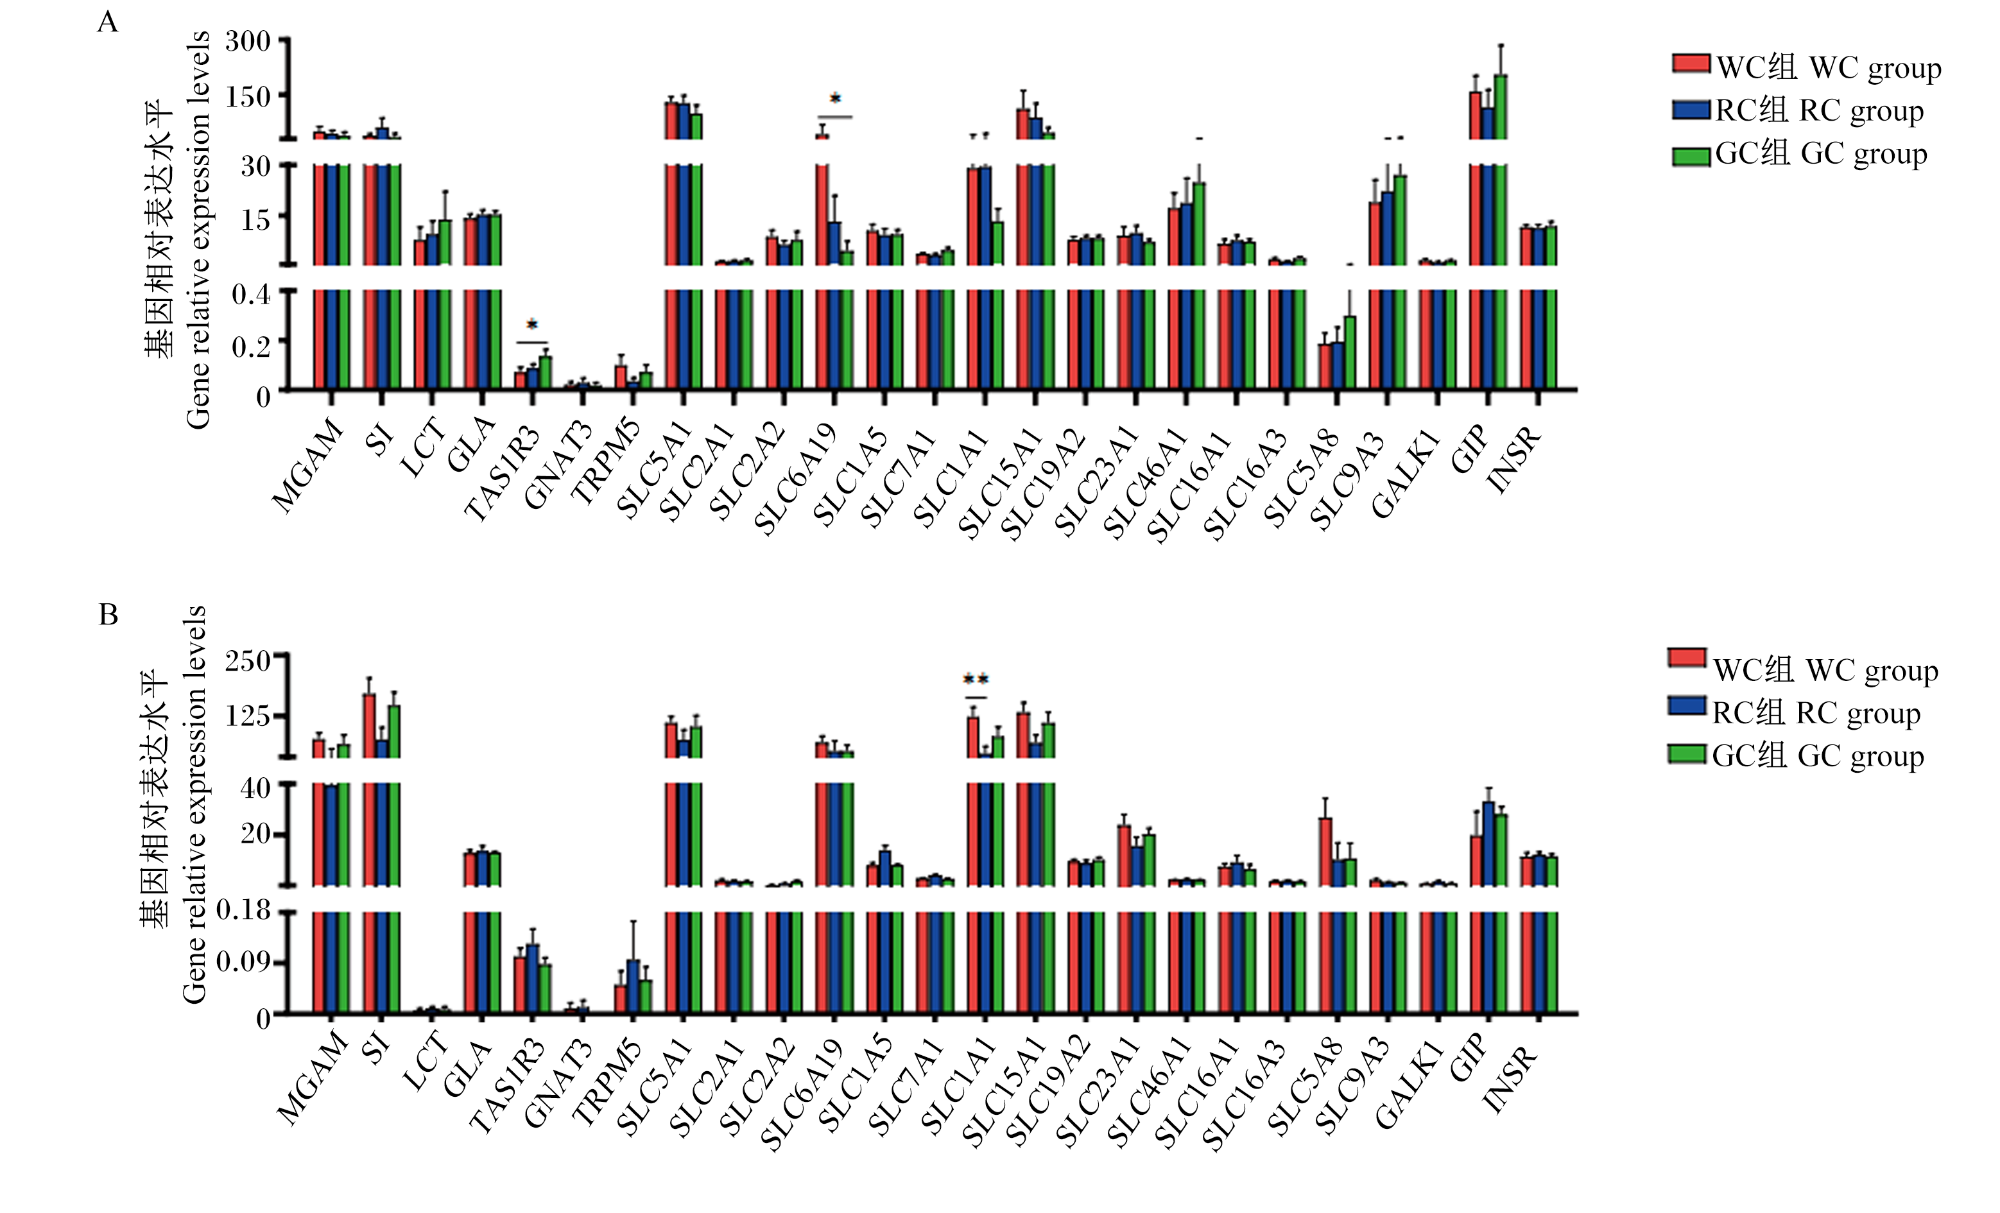
在山羊小肠营养物质吸收相关基因中,由图1-A可知,与GC组相比,WC组空肠味觉受体1家族成员3(taste 1 receptor member 3,TAS1R3)基因相对表达水平显著降低(P<0.05),空肠溶质载体家族6成员19(solute carrier family 6 member 19,SLC6A19)基因相对表达水平显著提高(P<0.05);由图1-B可知,与RC组相比,WC组回肠溶质载体家族1成员1(solute carrier family 1 member 1,SLC1A1)基因相对表达水平显著提高(P<0.05)。
图1 过瘤胃淀粉对山羊空肠和回肠营养物质吸收相关基因表达水平的影响

A:空肠 Jejunum;B:回肠 Ileum。

“*”表示差异显著(P<0.05),“**”表示差异极显著(P<0.01),“***”表示差异极其显著(P<0.001)。下图同。“*” indicated a significant difference (P<0.05), “**” indicated an highly significant difference (P<0.01), and “***” indicated a extremely significant difference. The same as below.

MGAM:麦芽糖酶-葡萄糖淀粉酶 maltase-glucoamylase;SI:蔗糖酶-异麦芽糖酶 sucrase-isomaltase;LCT:乳糖酶 lactase;GLA:α-半乳糖苷酶 galactosidase alpha;TAS1R3:味觉受体1家族成员3 taste 1 receptor member 3;GNAT3:鸟嘌呤核苷酸结合蛋白α转导蛋白3 guanine nucleotide binding protein alpha transducin 3;TRPM5:瞬时受体电位阳离子通道M亚家族成员5 transient receptor potential cation channel subfamily M member 5;SLC5A1:钠-葡萄糖协同转运蛋白1 solute carrier family 5 member 1;SLC2A1:葡萄糖转运蛋白1 solute carrier family 2 member 1;SLC2A2:葡萄糖转运蛋白2 solute carrier family 2 member 2;SLC6A19:溶质载体家族6成员19 solute carrier family 6 member 19;SLC1A5:溶质载体家族1成员5 solute carrier family 1 member 5;SLC7A1:溶质载体家族7成员1 solute carrier family 7 member 1;SLC1A1:溶质载体家族1成员1 solute carrier family 1 member 1;SLC15A1:溶质载体家族15成员1 solute carrier family 15 member 1;SLC19A2:溶质载体家族19成员2 solute carrier family 19 member 2;SLC23A1:溶质载体家族23成员1 solute carrier family 23 member 1;SLC46A1:溶质载体家族46成员1 solute carrier family 46 member 1;SLC16A1:溶质载体家族16成员1 solute carrier family 16 member 1;SLC16A3:溶质载体家族16成员3 solute carrier family 16 member 3;SLC5A8:溶质载体家族5成员8 solute carrier family 5 member 8;SLC9A3:溶质载体家族9成员3 solute carrier family 9 member 3;GALK1:半乳糖激酶1 galactokinase 1;GIP:葡萄糖依赖性促胰岛素多肽 glucose-dependent insulinotropic polypeptide;INSR:胰岛素受体 insulin receptor。

Fig.1 Effects of rumen bypass starch on nutrient absorption gene expression levels in jejunum and ileum of goats

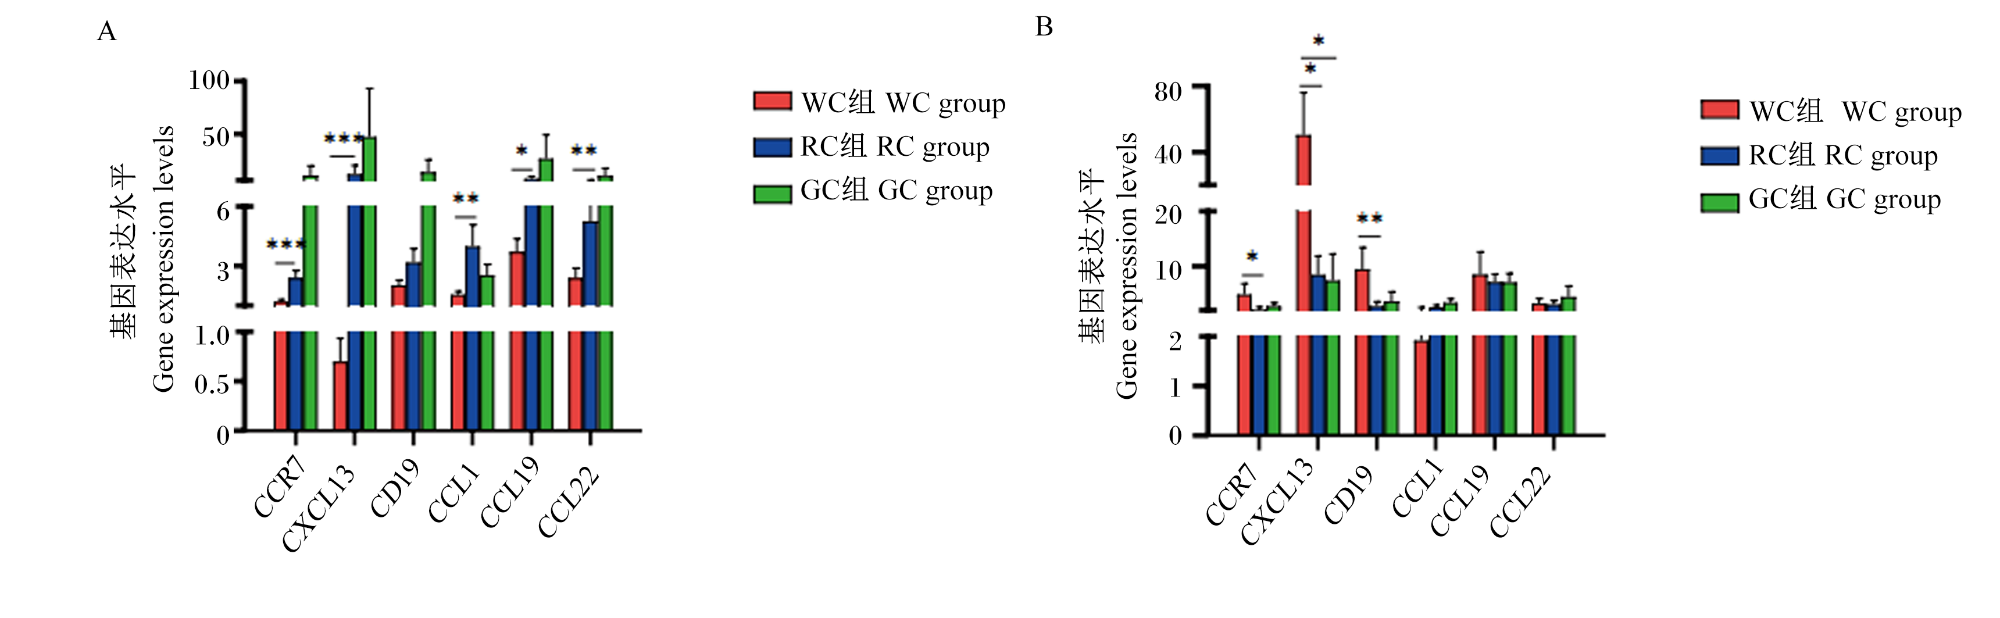
在山羊小肠免疫相关基因中,由图2-A可知,与RC组相比,WC组空肠C-C趋化因子受体7(C-C chemokine receptor type 7,CCR7)、C-X-C趋化因子配体13(C-X-C chemokine ligand 13,CXCL13)、C-C趋化因子配体1(C-C chemokine ligand 1,CCL1)、C-C趋化因子配体19(C-C chemokine ligand 19,CCL19)及C-C趋化因子配体22(C-C chemokine ligand 22,CCL22)基因相对表达水平均极其显著、极显著或者显著降低(P<0.001、P<0.01或者P<0.05);由图2-B可知,WC组回肠CCR7和分化簇19(cluster of differentiation 19,CD19)基因相对表达水平显著或者极显著高于RC组(P<0.05或者P<0.01),WC组回肠CXCL13基因相对表达水平显著高于RC和GC组(P<0.05)。
图2 过瘤胃淀粉对山羊空肠和回肠免疫相关基因表达水平的影响

A:空肠 Jejunum;B:回肠 Ileum。

CCR7:C-C趋化因子受体7 C-C chemokine receptor type 7;CXCL13:C-X-C趋化因子配体13 C-X-C chemokine ligand 13;CD19:分化簇19 cluster of differentiation 19;CCL1:C-C趋化因子配体1 C-C chemokine ligand 1;CCL19:C-C趋化因子配体19 C-C chemokine ligand 19;CCL22:C-C趋化因子配体22 C-C chemokine ligand 22。

Fig.2 Effects of rumen bypass starch on immune-related gene expression levels in jejunum and ileum of goats

2.5 过瘤胃淀粉对山羊小肠DEGs的KEGG通路富集分析

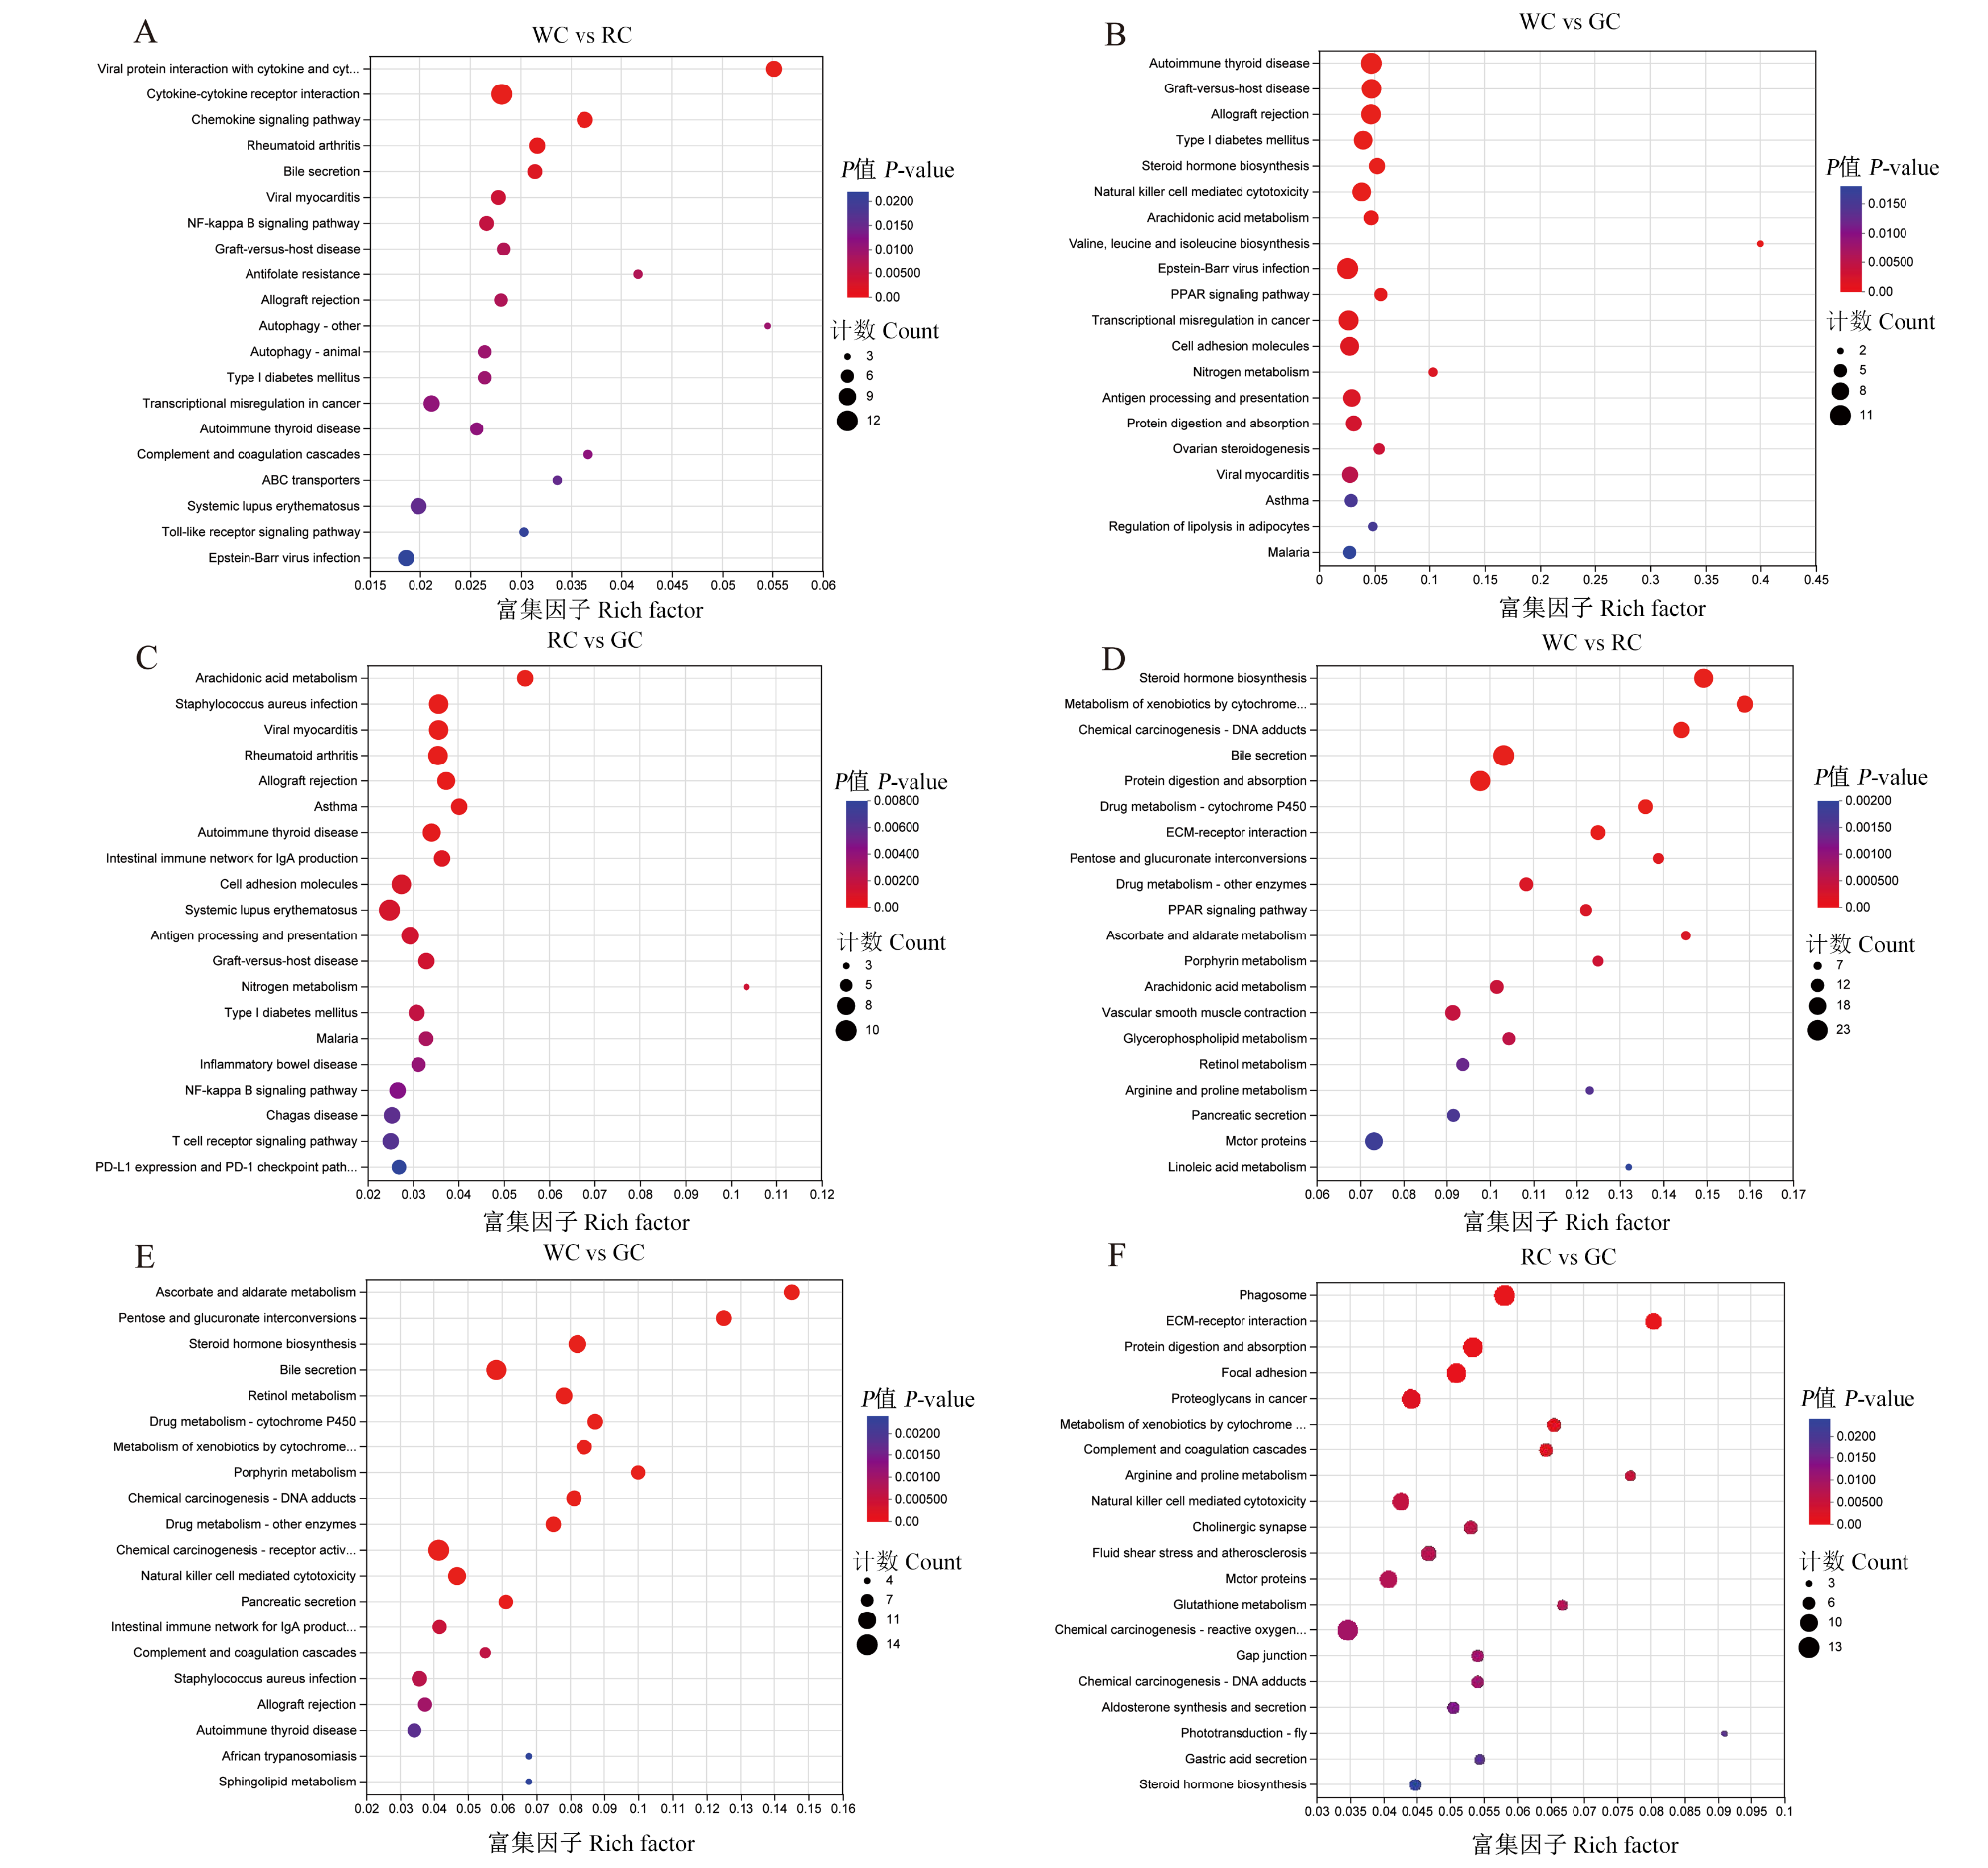
图3表5所示,KEGG通路富集分析表明,在空肠中,与RC组相比,WC组富集于核因子-κB信号通路、细胞因子-细胞因子受体相互作用、Toll样受体信号通路、趋化因子信号通路及补体和凝血级联反应的DEGs表达显著下调(P<0.05,图3-A);与GC组相比,WC组富集于过氧化物酶体增殖物激活受体(PPAR)信号通路的DEGs表达显著上调(P<0.05),而WC组富集于细胞黏附分子、花生四烯酸代谢的DEGs表达显著下调(P<0.05,图3-B);与GC组相比,RC组富集于花生四烯酸代谢、IgA产生的肠道免疫网络、细胞黏附分子、核因子-κB信号通路及T细胞受体信号通路的DEGs表达显著下调(P<0.05,图3-C)。
图3 山羊空肠和回肠差异表达基因KEGG通路富集分析

A~C分别为空肠WC组 vs RC组、WC组 vs GC组及RC组 vs GC组;D~F分别为回肠WC组 vs RC组、WC组 vs GC组及RC组 vs GC组。A to C represented WC group vs RC group,WC group vs GC group and RC group vs GC group in jejunum, respectively; D to F represented WC group vs RC group,WC group vs GC group and RC group vs GC group in ileum, respectively.

Viral protein interaction with cytokine and cytokine receptor:病毒蛋白与细胞因子及其受体的相互作用;Cytokine-cytokine receptor interaction:细胞因子-细胞因子受体相互作用;Chemokine signaling pathway:趋化因子信号通路;Rheumatoid arthritis:类风湿性关节炎;Bile secretion:胆汁分泌;Viral myocarditis:病毒性心肌炎;NF-kappa B signaling pathway:核因子-κB信号通路;Graft-versus-host disease:移植物抗宿主病;Antifolate resistance:抗叶酸制剂耐药性;Allograft rejection:同种异体移植排斥;Autophagy-other:自噬-其他;Autophagy-animal:自噬-动物;Type Ⅰ diabetes mellitus:Ⅰ型糖尿病;Transcriptional misregulation in cancer:癌症的转录失调;Autoimmune thyroid disease:自身免疫性甲状腺疾病;Complement and coagulation cascades:补体和凝血级联反应;ABC transporters:ABC转运器;Systemic lupus erythematosus:系统性红斑狼疮;Toll-like receptor signaling pathway:Toll样受体信号通路;Epstein-Barr virus infection:爱泼斯坦-巴尔病毒感染;Steroid hormone biosynthesis:类固醇激素生物合成;Natural killer cell mediated cytotoxicity:自然杀伤细胞介导的细胞毒性;Arachidonic acid metabolism:花生四烯酸代谢;Valine, leucine and isoleucine biosynthesis:缬氨酸、亮氨酸和异亮氨酸生物合成;PPAR signaling pathway:过氧化物酶体增殖物激活受体信号通路 peroxisome proliferator activated receptor signaling pathway;Cell adhesion molecules:细胞黏附分子;Nitrogen metabolism:氮代谢;Antigen processing and presentation:抗原处理和提呈;Protein digestion and absorption:蛋白质消化与吸收;Ovarian steroidogenesis:卵巢类固醇生成;Asthma:哮喘;Regulation of lipolysis in adipocytes:脂肪细胞脂解的调控;Malaria:疟疾;Staphylococcus aureus infection:金黄色葡萄球菌感染;Intestinal immune network for IgA production:免疫球蛋白A产生的肠道免疫网络;Inflammatory bowel disease:炎症性肠病;Chagas disease:恰加斯病;T cell receptor signaling pathway:T细胞受体信号通路;PD-L1 expression and PD-1 checkpoint pathway in cancer:癌症中PD-L1的表达和PD-1检查点通路;Metabolism of xenobiotics by cytochrome P450:细胞色素P450异生素代谢;Chemical carcinogenesis-DNA adducts:化学致癌作用-DNA加合物;Drug metabolism-cytochrome P450:药物代谢-细胞色素P450;ECM-receptor interaction:细胞外基质-受体相互作用 extracellular matrix-receptor interaction;Pentose and glucuronate interconversions:戊糖和葡萄糖醛酸相互转化;Drug metabolism-other enzymes:药物代谢-其他酶;Ascorbate and aldarate metabolism:抗坏血酸和醛酸代谢;Porphyrin metabolism:卟啉代谢;Vascular smooth muscle contraction:血管平滑肌收缩;Glycerophospholipid metabolism:甘油磷脂代谢;Retinol metabolism:视黄醇代谢;Arginine and proline metabolism:精氨酸和脯氨酸代谢;Pancreatic secretion:胰腺分泌;Motor proteins:马达蛋白;Linoleic acid metabolism:亚油酸代谢;Chemical carcinogenesis-receptor activation:化学致癌作用-受体激活;African trypanosomiasis:非洲锥虫病;Sphingolipid metabolism:鞘脂代谢;Phagosome:吞噬体;Focal adhesion:黏着斑;Proteoglycans in cancer:癌症中的蛋白聚糖;Cholinergic synapse:胆碱能突触;Fluid shear stress and atherosclerosis:流体剪切应力与动脉粥样硬化;Glutathione metabolism:谷胱甘肽代谢;Chemical carcinogenesis-reactive oxygen species:化学致癌作用-活性氧;Gap junction:间隙连接;Aldosterone synthesis and secretion:醛固酮的合成和分泌;Phototransduction-fly:光转导-果蝇;Gastric acid secretion:胃酸分泌。

Fig.3 KEGG pathway enrichment analysis of DEGs in jejunum and ileum of goats

表5 山羊空肠与回肠KEGG富集通路上下调分析

Table 5 Analysis of up-and down-regulated in KEGG enrichment pathways in jejunum and ileum of goats

KEGG通路
KEGG pathways
上调/下调差异
表达基因数
Number of up or down
regulated DEGs
log2(差异倍数)
log2(FC)
P
P-value
类型
Type
空肠Jejunum
WC组vs RC组WC group vs RC group
核因子-κB信号通路NF-kappa B signaling pathway 0/3 -1.024 0.005 下调
细胞因子-细胞因子受体相互作用
Cytokine-cytokine receptor interaction
1/8 -1.165 <0.001 下调
Toll样受体信号通路Toll-like receptor signaling pathway 1/2 -1.898 0.021 下调
趋化因子信号通路Chemokine signaling pathway 0/5 -4.194 <0.001 下调
补体和凝血级联反应Complement and coagulation cascades 2/2 -1.820 0.011 下调
WC组vs GC组WC group vs GC group
过氧化物酶体增殖物激活受体信号通路
PPAR signaling pathway
4/1 1.889 <0.001 上调
细胞黏附分子Cell adhesion molecules 0/3 -3.819 0.001 下调
花生四烯酸代谢Arachidonic acid metabolism 1/5 -1.282 0.001 下调
RC组vs GC组RC group vs GC group
花生四烯酸代谢Arachidonic acid metabolism 1/6 -1.519 <0.001 下调
免疫球蛋白A产生的肠道免疫网络
Intestinal immune network for IgA production
0/7 -1.205 0.001 下调
细胞黏附分子Cell adhesion molecules 0/2 -1.392 0.001 下调
核因子-κB信号通路NF-kappa B signaling pathway 0/1 -1.650 0.004 下调
T细胞受体信号通路T cell receptor signaling pathway 0/1 -2.889 0.006 下调
回肠Ileum
WC组vs RC组WC group vs RC group
花生四烯酸代谢Arachidonic acid metabolism 0/3 -1.141 <0.001 下调
细胞外基质-受体相互作用ECM-receptor interaction 1/8 -1.595 <0.001 下调
过氧化物酶体增殖物激活受体信号通路
PPAR signaling pathway
3/4 -2.897 <0.001 下调
甘油磷脂代谢Glycerophospholipid metabolism 2/6 -1.858 <0.001 下调
WC组vs GC组WC group vs GC group
鞘脂代谢Sphingolipid metabolism 0/1 -8.759 0.002 下调
自然杀伤细胞介导的细胞毒性
Natural killer cell mediated cytotoxicity
2/0 1.196 0.047 上调
免疫球蛋白A产生的肠道免疫网络
Intestinal immune network for IgA production
2/0 1.298 <0.001 上调
RC组vs GC组RC group vs GC group
细胞外基质-受体相互作用ECM-receptor interaction 5/0 1.439 <0.001 上调
补体和凝血级联反应Complement and coagulation cascades 1/6 -1.431 0.002 下调
图3表5所示,KEGG通路富集分析表明,在回肠中,与RC组相比,WC组大部分富集于花生四烯酸代谢、细胞外基质-受体相互作用、PPAR信号通路及甘油磷脂代谢的DEGs表达显著下调(P<0.05,图3-D);与GC组相比,WC组富集于鞘脂代谢通路的DEGs表达显著下调(P<0.05),WC组富集于自然杀伤细胞相关细胞毒性及免疫球蛋白A产生的肠道免疫网络通路的DEGs表达显著上调(P<0.05,图3-E);与GC组相比,RC组富集于细胞外基质-受体相互作用的DEGs表达显著上调(P<0.05),RC组富集于补体和凝血级联反应的DEGs表达显著下调(P<0.05,图3-F)。

3 讨论

谷物加工方式影响反刍动物淀粉降解速率、降解量和降解位点[1]。通过研究过瘤胃淀粉对山羊小肠食糜营养物质吸收和免疫基因表达的影响,可阐明过瘤胃淀粉量调控肠道功能的机制。本研究发现,相较于RC组,WC组显著降低了过瘤胃淀粉量、空肠和回肠食糜中淀粉含量,并显著提高淀粉回肠消化率和全消化道消化率。这与前人研究结果一致,即相较于破碎玉米饲粮,整粒玉米饲粮可提高山羊瘤胃降解度,降低过瘤胃淀粉量[4]。大量研究表明,当大量快速发酵的淀粉进入小肠时,将超出胰腺α-淀粉酶的分泌能力,导致淀粉无法被充分水解为可吸收的葡萄糖[9-10]。而未被消化的淀粉进入后肠,会引发微生物菌群失调和异常发酵,造成能量损失[4]。WC组通过延长整粒玉米在瘤胃中的滞留时间,使淀粉在瘤胃内实现缓慢、持续降解,避免因淀粉在瘤胃短时间快速降解可能导致瘤胃液pH降低,进而抑制粗饲料的降解。本研究通过晨饲后3 h屠宰取样结合AIA法测定的即时回肠消化率,结果显示WC组淀粉回肠消化率显著高于其他2组,表明粉碎玉米组在大肠消化的淀粉相对较多;与饲喂破碎玉米相比,饲喂整粒玉米可降低山羊空肠食糜丙酸及回肠食糜异丁酸、异戊酸含量。由于小肠VFA主要来源于瘤胃未吸收部分,该结果提示山羊饲喂整粒玉米饲粮可能增强了瘤胃VFA吸收能力。这与已有研究一致,整粒玉米可上调绵羊瘤胃上皮溶质载体家族26成员6(SLC26A6)[11]和山羊瘤胃上皮溶质载体家族4成员2(SLC4A2)、溶质载体家族4成员4(SLC4A4)及溶质载体家族26成员3(SLC26A3)基因表达[12],增强VFA吸收能力。
本团队前期研究发现,提高过瘤胃淀粉量可能增加肠道代谢负担,引起炎症反应[4]。为解析该过程的分子机制,本研究进一步分析小肠转录组KEGG通路富集和免疫相关基因表达差异。KEGG通路富集分析显示,这些DEGs富集于核因子-κB信号通路、细胞因子-细胞因子受体相互作用、Toll样受体信号通路、细胞黏附分子、花生四烯酸代谢及细胞外基质-受体相互作用等通路。这些通路是与免疫炎症激活、促炎信号传递、免疫细胞募集及炎症介质生成相关[13-16]。研究表明,核因子-κB信号通路可通过B细胞或T细胞参与适应性免疫应答,进而加剧炎症的严重程度并扩大炎症范围[17]。而细胞表面Toll样受体主要识别微生物膜成分以诱导炎症反应[18]。花生四烯酸是炎症反应的“介质生产者”,可经代谢生成前列腺素、白三烯等炎症介质[19]
饲喂整粒玉米山羊上述炎症通路中关键基因表达量普遍降低,结果表明饲喂整粒玉米可通过抑制肠道过度免疫炎症反应,减少促炎因子分泌、免疫细胞异常浸润及炎症介质生成,从而维持小肠正常吸收功能与黏膜屏障防御能力,保障肠道免疫稳态。趋化因子是一类具有趋化作用的细胞因子,可调控体内细胞(包括免疫细胞)的协同定位[20]。从免疫细胞发育、稳态维持,到固有免疫与适应性免疫应答启动,再到感染及疾病状态下免疫细胞的病理性募集,趋化因子均发挥关键作用[20]CCL1作为趋化因子,可特异性吸引免疫细胞(如辅助性T细胞、单核细胞、树突状细胞)向炎症或免疫刺激部位迁移,参与肠道黏膜免疫防御和炎症反应调控[21]CCL22与CCL1类似,可招募已活化的效应T细胞[22-23]CXCL13是一种B细胞特异性趋化因子,在次级淋巴组织和生发中心组织中发挥关键作用[24]CCR7是G蛋白偶联趋化因子受体,表达于抗原呈递树突状细胞以及B淋巴细胞、T淋巴细胞表面[25]CCR7对淋巴结发育、滤泡功能结构形成及细胞向淋巴器官的定向迁移具有关键作用[26-27]CCL19与CCL21是CCR7特异性配体,二者结合可通过激活细胞内趋化信号,调控免疫细胞向淋巴结和脾脏的T细胞区募集[28-29]。这些基因在WC组显著下调,表明WC组可能通过抑制过度适应性免疫细胞募集与活化,避免不必要的免疫炎症对吸收功能的干扰,从而优先保障营养物质吸收。值得注意的是,与空肠不同,远端回肠更侧重于免疫防御。回肠富含派尔集合淋巴结等淋巴组织,是启动黏膜适应性免疫应答的关键部位[30-32]。在回肠中,WC组CCR7和CXCL13等免疫基因显著上调,表明其可能强化了回肠启动适应性免疫应答的能力。通过高效激活B细胞介导的体液免疫与T细胞介导的细胞免疫,增强肠道抗感染能力。
反刍动物小肠内的淀粉首先经胰腺α-淀粉酶水解为麦芽糖、麦芽三糖及糊精,继而在麦芽糖酶、异麦芽糖酶等作用下分解为葡萄糖,最终通过转运载体进入门静脉循环[33-34]TAS1R3主要表达于肠上皮细胞顶端,可特异性感知肠腔内葡萄糖、麦芽糖等甜味物质,是肠道识别碳水化合物的重要分子感应器[35-36]。本研究中发现,相比于饲喂粉碎玉米,山羊饲喂整粒玉米可下调空肠TAS1R3表达,这可能是源于饲喂整粒玉米山羊空肠淀粉含量减少,导致葡萄糖生成底物不足,降低了对甜味受体的刺激,从而引发TAS1R3的适应性下调。但除TAS1R3表现出组间差异外,其余与寡糖酶、葡萄糖转运载体相关的基因在空肠和回肠的表达均未表现出差异。这一发现提示反刍动物小肠对淀粉的消化能力存在局限,其分子调控机制与单胃动物存在本质差异。单胃动物淀粉消化起始于唾液α-淀粉酶,随后由胰腺α-淀粉酶继续作用,最终步骤是小肠刷状缘酶消化二糖,生成可供吸收的单糖(葡萄糖)[37]。反刍动物的淀粉消化主要依赖于瘤胃微生物发酵,其次才是小肠酶解作用[5]。大量研究表明,反刍动物小肠的淀粉消化率显著低于单胃动物[9]。Harmon等[10]报道,在奶牛等反刍动物中,仅有35%~60%的过瘤胃淀粉在小肠中被消化。本研究发现,小肠淀粉利用相关基因表达组间无显著差异,说明山羊小肠可能缺乏对淀粉的直接识别能力。与单胃动物相比,反刍动物小肠淀粉消化能力相对较低,可能是由于小肠对淀粉缺乏响应和胰腺α-淀粉酶分泌不足。SLC6A19是肠上皮细胞中性氨基酸的主要转运蛋白[38-39],在空肠的高表达可提高氨基酸吸收效率。Javed等[40]通过敲除SLC6A19小鼠模型证实,该转运蛋白缺失会导致中性氨基酸在血浆中的含量显著下降,同时因小肠吸收障碍使大量未被吸收的中性氨基酸进入后肠,不仅改变肠道微环境,还会影响整体葡萄糖稳态。本研究发现,与GC组相比,WC组空肠SLC6A19的表达上调,这表明饲喂整粒玉米可能改善瘤胃能量供应,提高微生物蛋白合成,进而空肠需要更多的氨基酸转运蛋白。苏晓东[2]的研究证实整粒玉米改善山羊瘤胃氨基酸代谢,实现能氮高效利用。这表明饲喂整粒玉米可能增强了山羊空肠对中性氨基酸的吸收能力,为机体蛋白质合成提供更充足的底物。在回肠中,相比于饲喂破碎玉米,整粒玉米上调SLC1A1表达。SLC1A1是一种主要的钠依赖性谷氨酸转运体[41-42],其表达增强提示回肠氨基酸的转运和吸收能力提高。此外,MGAM作为小肠主要的碳水化合物水解酶[43],其活性与淀粉降解效率密切相关。本研究发现,小肠中MGAM等基因的相对表达量在各组间无显著差异,表明山羊小肠的淀粉消化能力并未随小肠食糜淀粉含量增加而相应增强。

4 结论

综上所述,玉米加工方式影响山羊过瘤胃淀粉量,相比于破碎玉米,饲喂整粒玉米可降低过瘤胃淀粉量并下调小肠中炎症因子基因的表达;相比于整粒玉米,饲喂破碎玉米可提高过瘤胃淀粉量,但小肠淀粉水解酶(如MGAM)及葡萄糖转运相关基因(如SLC2A2、SLC5A1等)表达并未同步上调,可能限制了小肠对淀粉的高效利用。
[1]
OFFNER A, BACH A, SAUVANT D. Quantitative review of in situ starch degradation in the rumen[J]. Animal Feed Science and Technology, 2003, 106(1/2/3/4):81-93.

DOI

[2]
苏晓东. 玉米加工方式对去势关中奶山羊能量代谢的影响及机制[D]. 博士学位论文. 杨凌: 西北农林科技大学, 2025:34-46.

SU X D. Effect and mechanism of corn processing methods on energy metabolism of castrated Guangzhong dairy goats[D]. Ph.D.Thesis. Yangling: Northwest A & F University, 2025:34-46. (in Chinese)

[3]
SU X D, ZHANG L, SUN Y Y, et al. Net energy of grains for dairy goats differed with processing methods and grain types[J]. Journal of Animal Science and Biotechnology, 2025, 16(1):3.

DOI PMID

[4]
JIN C J, WU S R, LIANG Z Q, et al. Multi-omics reveal mechanisms of high enteral starch diet mediated colonic dysbiosis via microbiome-host interactions in young ruminant[J]. Microbiome, 2024, 12(1):38.

DOI PMID

[5]
GUO L, YAO J H, CAO Y C. Regulation of pancreatic exocrine in ruminants and the related mechanism:the signal transduction and more[J]. Animal Nutrition, 2021, 7(4):1145-1151.

DOI

[6]
YANG C Y, YEN Y Y, HUNG K C, et al. Inhibitory effects of pu-erh tea on alpha glucosidase and alpha amylase:a systemic review[J]. Nutrition & Diabetes, 2019, 9(1):23.

[7]
LI F, CAO Y C, LIU N N, et al. Subacute ruminal acidosis challenge changed in situ degradability of feedstuffs in dairy goats[J]. Journal of Dairy Science, 2014, 97(8):5101-5109.

DOI PMID

[8]
CHEN S F, ZHOU Y Q, CHEN Y R, et al. Fastp:an ultra-fast all-in-one FASTQ preprocessor[J]. Bioinformatics, 2018, 34(17):i884-i890.

[9]
CHENG Y, ZHANG T X, YANG C, et al. Low expression of CCKBR in the acinar cells is associated with insufficient starch hydrolysis in ruminants[J]. Communications Biology, 2024, 7(1):1686.

DOI PMID

[10]
HARMON D L, YAMKA R M, ELAM N A. Factors affecting intestinal starch digestion in ruminants:a review[J]. Canadian Journal of Animal Science, 2004, 84(3):309-318.

DOI

[11]
WANG L, QI W B, MAO S Y, et al. Effects of whole corn high-grain diet feeding on ruminal bacterial community and epithelial gene expression related to VFA absorption and metabolism in fattening lambs[J]. Journal of Animal Science, 2022, 100(3):skac056.

[12]
JIN C J, SU X D, WANG P Y, et al. Effects of rumen degradable starch on growth performance,carcass,rumen fermentation,and ruminal VFA absorption in growing goats[J]. Animal Feed Science and Technology, 2023, 299:115618.

DOI

[13]
ZUSSO M, LUNARDI V, FRANCESCHINI D, et al. Ciprofloxacin and levofloxacin attenuate microglia inflammatory response via TLR4/NF-κB pathway[J]. Journal of Neuroinflammation, 2019, 16(1):148.

DOI

[14]
QIN L J, XU H, LI L P, et al. CD20highCD138low tumor-infiltrating lymphocytes predominantly related to cytokine-cytokine receptor interactions are associated with favorable outcomes in neuroblastoma patients[J]. Heliyon, 2024, 10(9):e30901.

DOI

[15]
DUAN T H, DU Y, XING C S, et al. Toll-like receptor signaling and its role in cell-mediated immunity[J]. Frontiers in Immunology, 2022, 13:812774.

DOI

[16]
WANG J, ZENG Y Y, SONG J, et al. Perturbation of arachidonic acid and glycerolipid metabolism promoted particulate matter-induced inflammatory responses in human bronchial epithelial cells[J]. Ecotoxicology and Environmental Safety, 2023, 256:114839.

DOI

[17]
ZHANG Q, LENARDO M J, BALTIMORE D. 30 years of NF-κB:a blossoming of relevance to human pathobiology[J]. Cell, 2017, 168(1/2):37-57.

DOI

[18]
KAWAI T, AKIRA S. The role of pattern-recognition receptors in innate immunity:update on toll-like receptors[J]. Nature Immunology, 2010, 11(5):373-384.

DOI

[19]
WANG T Q, FU X J, CHEN Q F, et al. Arachidonic acid metabolism and kidney inflammation[J]. International Journal of Molecular Sciences, 2019, 20(15):3683.

DOI

[20]
HAUSER M A, LEGLER D F. Common and biased signaling pathways of the chemokine receptor CCR7 elicited by its ligands CCL19 and CCL21 in leukocytes[J]. Journal of Leukocyte Biology, 2016, 99(6):869-882.

DOI PMID

[21]
LIU S S, LIU C, LV X X, et al. The chemokine CCL1 triggers an AMFR-SPRY1 pathway that promotes differentiation of lung fibroblasts into myofibroblasts and drives pulmonary fibrosis[J]. Immunity, 2021, 54(10):2433-2435.

DOI

[22]
WIEDEMANN G M, RÖHRLE N, MAKESCHIN M C, et al. Peritumoural CCL1 and CCL22 expressing cells in hepatocellular carcinomas shape the tumour immune infiltrate[J]. Pathology, 2019, 51(6):586-592.

DOI

[23]
OHUE Y, NISHIKAWA H. Regulatory T (Treg) cells in cancer:can Treg cells be a new therapeutic target?[J]. Cancer Science, 2019, 110(7):2080-2089.

DOI

[24]
ALOISI F, PUJOL-BORRELL R. Lymphoid neogenesis in chronic inflammatory diseases[J]. Nature Reviews Immunology, 2006, 6(3):205-217.

DOI PMID

[25]
FUSS C T, OTHER K, HEINZE B, et al. Expression of the chemokine receptor CCR7 in the normal adrenal gland and adrenal tumors and its correlation with clinical outcome in adrenocortical carcinoma[J]. Cancers, 2021, 13(22):5693.

DOI

[26]
FAN L, REILLY C R, LUO Y, et al. Cutting edge:ectopic expression of the chemokine TCA4/SLC is sufficient to trigger lymphoid neogenesis[J]. The Journal of Immunology, 2000, 164(8):3955-3959.

DOI

[27]
MÜLLER G, HÖPKEN U E, LIPP M. The impact of CCR7 and CXCR5 on lymphoid organ development and systemic immunity[J]. Immunological Reviews, 2003, 195(1):117-135.

DOI

[28]
FÖRSTER R. DAVALOS-MISSLITZ A C, ROT A. CCR7 and its ligands:balancing immunity and tolerance[J]. Nature Reviews Immunology, 2008, 8(5):362-371.

DOI

[29]
COMERFORD I, HARATA-LEE Y, BUNTING M D, et al. A myriad of functions and complex regulation of the CCR7/CCL19/CCL21 chemokine axis in the adaptive immune system[J]. Cytokine & Growth Factor Reviews, 2013, 24(3):269-283.

[30]
KUNISAWA J, KIYONO H. Alcaligenes is commensal bacteria habituating in the gut-associated lymphoid tissue for the regulation of intestinal IgA responses[J]. Frontiers in Immunology, 2012, 3:65.

[31]
REBOLDI A, CYSTER J G. Peyer’s patches:organizing B-cell responses at the intestinal frontier[J]. Immunological Reviews, 2016, 271(1):230-245.

DOI

[32]
BOGAERT S, LAUKENS D, PEETERS H, et al. Differential mucosal expression of Th17-related genes between the inflamed colon and ileum of patients with inflammatory bowel disease[J]. BMC Immunology, 2010, 11(1):61.

DOI

[33]
HUNTINGTON G B. Starch utilization by ruminants:from basics to the bunk[J]. Journal of Animal Science, 1997, 75(3):852-867.

DOI

[34]
SHIRAZI-BEECHEY S P. Molecular biology of intestinal glucose transport[J]. Nutrition Research Reviews, 1995, 8(1):27-41.

DOI

[35]
MORAN A W, AL-RAMMAHI M, ZHANG C, et al. Sweet taste receptor expression in ruminant intestine and its activation by artificial sweeteners to regulate glucose absorption[J]. Journal of Dairy Science, 2014, 97(8):4955-4972.

DOI PMID

[36]
KOCHEM M C, HANSELMAN E C, BRESLIN P A S. Activation and inhibition of the sweet taste receptor TAS1R2-TAS1R3 differentially affect glucose tolerance in humans[J]. PLoS One, 2024, 19(5):e0298239.

DOI

[37]
TAN F P Y, BELTRANENA E, ZIJLSTRA R T. Resistant starch:implications of dietary inclusion on gut health and growth in pigs:a review[J]. Journal of Animal Science and Biotechnology, 2021, 12(1):124.

DOI

[38]
JAVED K, BRÖER S. Mice lacking the intestinal and renal neutral amino acid transporter SLC6A19 demonstrate the relationship between dietary protein intake and amino acid malabsorption[J]. Nutrients, 2019, 11(9):2024.

DOI

[39]
XU J Y, HU Z W, DAI L, et al. Molecular basis of inhibition of the amino acid transporter B0AT1 (SLC6A19)[J]. Nature Communications, 2024, 15(1):7224.

DOI

[40]
JAVED K, CHENG Q, CARROLL A J, et al. Development of biomarkers for inhibition of SLC6A19 (B0AT1)—a potential target to treat metabolic disorders[J]. International Journal of Molecular Sciences, 2018, 19(11):3597.

DOI

[41]
CHEN C C, YIN Y L, TU Q, et al. Glucose and amino acid in enterocyte:absorption,metabolism and maturation[J]. Frontiers in Bioscience-Landmark, 2018, 23(9):1721-1739.

[42]
FAN M Z, MATTHEWS J C, ETIENNE N M P, et al. Expression of apical membrane L-glutamate transporters in neonatal porcine epithelial cells along the small intestinal crypt-villus axis[J]. American Journal of Physiology:Gastrointestinal and Liver Physiology, 2004, 287(2):G385-G398.

[43]
LIN A H M, LEE B H, NICHOLS B L, et al. Starch source influences dietary glucose generation at the mucosal α-glucosidase level[J]. Journal of Biological Chemistry, 2012, 287(44):36917-36921.

DOI

文章导航

/