研究论文

饲料中添加氯化胆碱对高脂胁迫细鳞鲑生长性能、肝脏抗氧化指标和脂代谢相关基因表达的影响

  • 徐心雨 ,
  • 李嘉俊 ,
  • 李俊彤 ,
  • 赵焜 ,
  • 常杰 , **
展开
  • 内蒙古民族大学生命科学与食品学院, 通辽 028000
**常 杰,教授,硕士生导师,E-mail:

*同等贡献作者

徐心雨(1999—),男,内蒙古通辽人,硕士研究生,从事鱼类营养研究。E-mail:

Office editor: 菅景颖

收稿日期: 2025-09-09

  网络出版日期: 2026-04-14

基金资助

国家自然科学基金项目(31860730)

Effects of Dietary Choline Chloride Supplementation on Growth Performance, Hepatic Antioxidant Indices and Expression of Lipid Metabolism-Related Genes of Lenok (Brachymystax lenok) under High-Fat Stress

  • XU Xinyu ,
  • LI Jiajun ,
  • LI Juntong ,
  • ZHAO Kun ,
  • CHANG Jie , **
Expand
  • College of Life Sciences and Food Engineering, Inner Mongolia Minzu University, Tongliao 028000, China
**professor, E-mail:

*Contributed equally

Received date: 2025-09-09

  Online published: 2026-04-14

摘要

本试验旨在研究饲料中添加氯化胆碱对高脂胁迫细鳞鲑生长性能、肝脏抗氧化指标和脂代谢相关基因表达的影响。选取初重为(8.63±0.10) g的细鳞鲑幼鱼540尾,随机分成6组,每组3个重复,每个重复30尾鱼。采用2×3双因素设计,设2个饲料脂肪水平[200(记为C)和230 g/kg(记为H)]和3个氯化胆碱添加水平(0、1 500、2 500 mg/kg),共配制6种试验饲料(C-0、C-1500、C-2500、H-0、H-1500、H-2500),对应饲喂6组试验鱼。试验期70 d。结果表明:1)饲料脂肪水平和氯化胆碱添加水平对细鳞鲑的终末体重(FBW)、增重率(WGR)和特定生长率(SGR)存在显著的交互作用(P<0.05),且三者均在H-2500组达到最大值,依次为22.90 g、166.76%和1.39%/d。2)脂肪水平和氯化胆碱添加水平对肝脏超氧化物歧化酶(SOD)、过氧化氢酶(CAT)、谷胱甘肽过氧化物酶(GSH-Px)活性与丙二醛(MDA)含量存在显著的交互作用(P<0.05)。在C组和H组内,肝脏SOD、CAT、GSH-Px活性均随着氯化胆碱添加水平的增加而升高;肝脏MDA含量则呈现不同的变化趋势,在H组内H-0组显著高H-2500组(P<0.05)。在相同的氯化胆碱添加水平下,C组肝脏SOD、CAT、GSH-Px活性不同程度地高于H组,肝脏MDA含量则不同程度地低于H组。3)对C-2500组和H-2500组进行肝脏转录组测序,得到4 578个差异表达基因(2 380个上调基因,2 198个下调基因),主要富集在胆固醇代谢、视黄醇代谢、氧化磷酸化等通路;相较于C-2500组,H-2500组肝脏中肉碱棕榈酰转移酶1A(CPT1A)、脂蛋白脂肪酶(LPL)、脂肪酸去饱和酶2(FADS2)、溶质转运27家族成员2(SLC27A2)、过氧化物酶体增殖激活受体α(PPARα)的表达均显著上调(P<0.05),而长链酰基辅酶A合成酶(ACSL)的表达显著下调(P<0.05)。由此可见,在高脂饲料中添加适宜水平的氯化胆碱可改善高脂胁迫下细鳞鲑的生长性能,增强肝脏抗氧化酶活性,调节肝脏中脂代谢关键基因的表达,从而减少肝脏脂质蓄积。本试验条件下,在脂肪水平为230 g/kg的饲料中添加2 500 mg/kg氯化胆碱的效果最好。

本文引用格式

徐心雨 , 李嘉俊 , 李俊彤 , 赵焜 , 常杰 . 饲料中添加氯化胆碱对高脂胁迫细鳞鲑生长性能、肝脏抗氧化指标和脂代谢相关基因表达的影响[J]. 动物营养学报, 2026 , 38(4) : 2917 -2930 . DOI: 10.12418/CJAN2026.234

Abstract

This experiment was conducted to investigate the effects of dietary choline chloride supplementation on the growth performance, hepatic antioxidant indices and expression of lipid metabolism-related genes of lenok (Brachymystax lenok) under high-fat stress. A total of 540 juvenile lenok with an initial body weight of (8.63±0.10) g were randomly divided into 6 groups with 3 replicates per group and 30 fish per replicate. A 2×3 two-factor design was employed, consisting of two dietary lipid levels [200 (designated as C) and 230 g/kg (designated as H)] and three choline chloride supplemental levels (0, 1 500 and 2 500 mg/kg). A total of six experimental diets were formulated (C-0, C-1500, C-2500, H-0, H-1500 and H-2500) and fed to the six groups of fish, respectively. The feeding trial lasted for 70 days. The results showed that: 1) there were significant interactions between dietary lipid level and choline chloride supplemental level on final body weight (FBW), weight gain rate (WGR) and specific growth rate (SGR) of lenok (P<0.05). All three indices reached their maximum values in the H-2500 group, at 22.90 g, 166.76% and 1.39%/d, respectively. 2) Significant interactions were also observed between lipid level and choline chloride supplemental level on hepatic superoxide dismutase (SOD), catalase (CAT) and glutathione peroxidase (GSH-Px) activities, as well as malondialdehyde (MDA) content (P<0.05). Within both the C and H groups, hepatic SOD, CAT and GSH-Px activities increased with increasing dietary choline chloride supplemental level. In contrast, hepatic MDA content showed different trends, within the H group, it was significantly higher in the H-0 group than in the H-2500 group (P<0.05). At the same choline chloride supplemental level, hepatic SOD, CAT and GSH-Px activities in the C group were higher to varying degrees than those in the H group, while hepatic MDA content was lower to varying degrees than that in the H group. 3) Liver transcriptome sequencing was performed on the C-2500 and H-2500 groups, yielding 4 578 differentially expressed genes (2 380 up-regulated and 2 198 down-regulated). These genes were mainly enriched in pathways such as cholesterol metabolism, retinol metabolism, and oxidative phosphorylation. Compared with the C-2500 group, the expression of carnitine palmitoyltransferase 1A (CPT1A), lipoprotein lipase (LPL), fatty acid desaturase 2 (FADS2), solute carrier family 27 member 2 (SLC27A2) and peroxisome proliferator-activated receptor alpha (PPARα) in the liver of the H-2500 group was significantly up-regulated (P<0.05), while the expression of long-chain acyl-CoA synthetase (ACSL) was significantly down-regulated (P<0.05). In conclusion, dietary supplementation with an appropriate level of choline chloride in a high-fat diet can improve the growth performance of lenok under high-fat stress, enhance hepatic antioxidant enzyme activities, and regulate the expression of key genes involved in lipid metabolism, thereby reducing hepatic lipid accumulation. Under the conditions of this experiment, the optimal effect is achieved with the supplementation of 2 500 mg/kg choline chloride to a diet containing 230 g/kg lipid.

胆碱是一种水溶性季胺盐,广泛以复合磷脂及衍生物形式存在于动植物体内。作为磷脂酰胆碱(PC)、鞘磷脂(SM)、甜菜碱及神经递质乙酰胆碱等多种生物分子的共同前体[1-3],胆碱深度参与甲基化供体、脂质转运、细胞信号传导及大脑发育等关键生理过程[4-5],是动物生长发育的必需维生素。在脂肪代谢中,胆碱通过促进肝脏极低密度脂蛋白(VLDL)的合成与分泌,加速脂肪转运,有效防止脂质过度沉积[6]。鉴于其对机体脂肪代谢的重要调控作用,饲料中添加胆碱已成为当前鱼类养殖业中广泛应用的营养策略。
以团头鲂(Megalobrama amblycephala)和黑鲷(Acanthopagrus schlegelii)为试验对象的研究表明,胆碱可上调脂肪分解相关基因激素敏感性脂肪酶(HSL)、过氧化物酶体增殖物激活受体α(PPARα)和肉碱棕榈酰转移酶1A(CPT1A)的表达,同时可提高脂蛋白脂肪酶(LPL)和肝脂酶(HL)的活性,并促进跨膜载体增加[7-8];此外,胆碱还能上调微粒体甘油三酯转运蛋白(MTTP)和载脂蛋白B-100(APOB-100)的表达,并下调脂肪合成相关基因固醇调节元件结合蛋白-1(SREBP-1)、乙酰辅酶A羧化酶α(ACCα)和脂肪酸合酶(FAS)的表达[9]。上述结果表明,胆碱在调控鱼类脂肪代谢方面具有良好的应用前景。
细鳞鲑(Brachymystax lenok)隶属鲑形目(Salmoniformes),鲑科(Salmonidae),细鳞鲑属(Brachymystax),是我国东北地区黑龙江、图们江及鸭绿江流域特有的珍稀冷水性淡水鱼,因肉质鲜美、营养丰富而备受市场青睐[10-11]。在细鳞鲑集约化养殖过程中,为追求最大化的“蛋白质节约效应”,高脂饲料得以普遍应用[12]。然而,长期摄入高脂饲料常导致鱼体代谢紊乱,诱发肝脏脂质异位沉积、氧化应激损伤加剧及营养品质下降等问题[13]。胆碱作为鱼类必需营养素,在调节脂肪代谢、抑制脂质过度沉积及改善肉质方面发挥着关键作用[14-15]。目前,关于胆碱对陆封型冷水性鱼类(尤其是高脂胁迫下)生长及生理影响的研究仍十分有限。因此,本试验拟在饲料中添加氯化胆碱,研究其对高脂胁迫下细鳞鲑生长性能、肝脏抗氧化指标及脂代谢相关基因表达的影响,旨在为解决高脂饲料造成的细鳞鲑脂肪异常沉积问题提供理论依据与实践参考。

1 材料与方法

1.1 试验材料

试验用氯化胆碱购于浙江恒兴饲料有限公司,纯度为60%;试验用细鳞鲑幼鱼购自辽宁丹东汇鑫冷水鱼养殖基地,并在该基地开展养殖试验。

1.2 试验设计

本研究获得内蒙古民族大学医学院伦理委员会批准(批准号:IMUN-2021-0909)。选取初重为(8.63±0.10) g的细鳞鲑幼鱼540尾,随机分成6组,每组3个重复,每个重复30尾鱼,以重复为单位分配到长60.0 cm、宽50.0 cm、高45.0 cm的网箱中饲养。采用2×3双因素设计,设2个饲料脂肪水平(200和230 g/kg)和3个氯化胆碱添加水平(0、1 500、2 500 mg/kg,折算后对应的胆碱添加水平分别为0、671和1 118 mg/kg),共配制6种试验饲料,对应饲喂6组试验鱼。
试验正式开始前,采用商业饲料对试验鱼进行为期14 d的暂养,以适应试验环境和试验饲料。正式试验为期70 d,采用表观饱食投喂法,每日定时投喂3次(08:00、12:00、17:00)。投喂前清理网箱粪便以保持水质。养殖用水为地下泉水,试验期间水温控制在(16.0±1.0) ℃,pH为(7.0±0.5),溶氧量保持在(8.0±0.4) mg/L。

1.3 试验饲料配制

首先配制脂肪水平分别为200(记为C)和230 g/kg(记为H)的基础饲料,然后在这2种基础饲料中分别额外添加0、1 500、2 500 mg/kg的氯化胆碱,制得6种试验饲料(C-0、C-1500、C-2500、H-0、H-1500、H-2500)。试验饲料组成及营养水平见表1。试验饲料制备时,将各原料粉碎过80目筛,采用逐级放大混合法确保混匀均匀。随后使用DS32-Ⅱ型双螺杆制粒机(济南赛信膨化机械有限公司)挤压成颗粒饲料(直径2.5~4.0 mm、长3.0 mm),于60 ℃烘24 h,自然冷却后密封,置于-20 ℃冰箱中保存备用。试验饲料粗蛋白质、粗脂肪、粗灰分、胆碱含量分别参照GB/T 6432—2018、GB/T 6433—2006、GB/T 6438—2007、GB 5413.20—2022测定。
表1 试验饲料组成及营养水平(干物质基础)

Table 1 Composition and nutrient levels of experimental diets (DM basis) %

项目
Items
组别Groups
C-0 C-1500 C-2500 H-0 H-1500 H-2500
原料Ingredients
鱼粉Fish meal 36.0 36.0 36.0 36.0 36.0 36.0
豆粕Soybean meal 18.0 18.0 18.0 18.0 18.0 18.0
玉米蛋白粉Corn gluten meal 6.0 6.0 6.0 6.0 6.0 6.0
明胶Gelatin 6.0 6.0 6.0 6.0 6.0 6.0
面粉Wheat flour 6.0 6.0 6.0 6.0 6.0 6.0
鱼油Fish oil 6.0 6.0 6.0 8.0 8.0 8.0
亚麻油Linseed oil 5.0 5.0 5.0 6.0 6.0 6.0
豆油Soybean oil 5.0 5.0 5.0 6.0 6.0 6.0
维生素预混料Vitamin premix1) 1.5 1.5 1.5 1.5 1.5 1.5
矿物质预混料Mineral premix2) 1.5 1.5 1.5 1.5 1.5 1.5
磷酸二氢钙Ca(H2PO4)2 1.0 1.0 1.0 1.0 1.0 1.0
微晶纤维Microcrystalline cellulose 8.0 8.0 8.0 4.0 4.0 4.0
合计Total 100.0 100.0 100.0 100.0 100.0 100.0
外源氯化胆碱
Exogenous choline chloride/(mg/kg)
1 500 2 500 1 500 2 500
营养水平Nutrient levels3)
粗蛋白质CP 50.11 49.64 49.85 48.14 48.87 47.21
粗脂肪EE 20.14 19.45 21.02 23.14 22.88 22.65
粗灰分Ash 10.24 11.24 10.33 12.01 11.98 11.75
胆碱Choline 0.13 0.26 0.37 0.14 0.25 0.36

1)每千克维生素预混料含有 One kilogram of vitamin premix contained the following:维生素A乙酸酯 VA acetate 500 000 IU,VD3 150 000 IU,DL-α-生育酚乙酸酯 DL-α-tocopheryl acetate 4 g,亚硫酸氢烟酰胺甲萘醌 menadione nicotinamide bisulfite 0.5 g,硝酸硫胺 thiamine nitrate 0.5 g,核黄素 riboflavin 0.8 g,盐酸吡哆醇 pyridoxine hydrochloride 0.6 g,氰钴胺 cyanocobalamin 0.002 g,D-泛酸钙 D-calcium pantothenate 2 g,烟酰胺 nicotinamide 3 g,叶酸 folic acid 0.17 g,D-生物素 D-biotin 0.005 g,L-抗坏血酸-2-磷酸酯 L-ascorbyl-2-phosphate 10 g,肌醇 inositol 10 g。
3)营养水平为实测值。Nutrient levels were measured values。

2)每千克矿物质预混料含有 One kilogram of mineral premix contained the following:MgSO4 15 g,FeSO4 12 g,ZnSO4 6 g,MnSO4 3 g,CuSO4 0.4 g,CoCl2 0.05 g,Na2SeO3 0.01 g,Ca(IO3)2 0.1 g。

1.4 样品采集与指标测定

1.4.1 样品采集

饲养试验结束停喂24 h后,对试验鱼计数、量体长和测体重;每组随机选取5尾鱼,用MS-222进行麻醉,将鱼体表面水分吸干后迅速解剖,分离肝脏,经液氮速冻后,置于-80 ℃冰箱中保存备用。

1.4.2 生长性能计算

生长性能相关指标计算公式如下:
特定生长率(SGR,%/d)=[(lnWf-lnW0)/T]×100;
增重率(WGR,%)=[(Wf-W0)/W0]×100;
存活率(SR,%)=(Ni/Nf)×100;
肥满度(CF,%)=(Wf/L3)×100。
式中:W0代表初始体重(g);Wf代表终末体重(g);Ni代表初始鱼尾数;Nf代表终末鱼尾数;T代表试验天数(d)。

1.4.3 肝脏抗氧化指标

肝脏超氧化物歧化酶(SOD)、谷胱甘肽过氧化物酶(GSH-Px)、过氧化氢酶(CAT)活性和丙二醛(MDA)含量均采用南京建成生物工程研究所生产的试剂盒测定,严格遵循说明书进行操作。

1.4.4 肝脏转录组文库构建及测序

使用RNA提取试剂盒(货号为100013,美国普洛麦格公司)提取肝脏组织总RNA。随后,利用Agilent 2100 Bioanalyzer(美国安捷伦公司)对RNA样品的浓度、纯度及完整性进行质量检测。合格样品用于后续文库构建。寻找具有polyA尾的mRNA,片段化后作为模板,以寡核苷酸为引物,利用M-MuLV合成cDNA第1条链,随后降解RNA模板,并以dNTPs为原料合成cDNA第2条链。将双链cDNA纯化,采用AMPure XP beads筛选250~300 bp的cDNA进行PCR扩增以构建文库。文库构建完成后,采用Agilent 2100检测文库插入片段大小,对文库进行初步定量,随后通过实时荧光定量PCR(qRT-PCR)对文库有效浓度进行准确定量。文库质检合格后,基于Illumina测序平台进行高通量测序。

1.4.5 转录本预测与基因表达定量

为保证数据分析的可靠性,首先对原始读段(raw reads)进行质控过滤,获得有效读段(clean reads)。采用Trinity软件对clean reads进行拼接,利用Busco软件评估转录组组装的完整度,随后,使用Corset软件对转录本进行层次聚类。基于聚类后的基因集,进行编码序列(CDS)预测及基因表达定量分析。

1.4.6 基因差异表达与功能富集

采用DESeq2软件对基因表达量进行标准化及差异显著性分析,计算统计检验的P值和log2差异倍数(FC)。以矫正后P值(Padj)<0.05和|log2FC|>1为标准筛选差异表达基因。对差异表达基因进行GO功能注释和KEGG通路富集分析。

1.4.7 实时荧光定量PCR验证

为验证转录组测序结果的可靠性,采用RT-qPCR技术对脂代谢相关通路中的6个差异表达基因进行验证。使用High-Capacity cDNA Reverse Transcription Kit(货号为4368814,Thermo Fisher)将RNA样品逆转录为cDNA,以cDNA为模板,选取β-肌动蛋白(β-actin)作为内参基因,使用TB Green® Premix Ex TaqTM (Tli RNaseH Plus)定量PCR试剂盒(货号为RR420A,TaKaRa)进行RT-qPCR。反应体系(20 μL)按试剂盒说明书在冰上配制,具体组分及用量详见表2,引物序列信息见表3
表2 RT-qPCR反应体系

Table 2 RT-qPCR reaction systems μL

反应液成分
Reaction mixture components
体积
Volume
上游引物Forward primer (10 μmol/L) 2.30
下游引物Reverse primer (10 μmol/L) 2.30
ROX参比染料ROX reference dye (50×) 0.40
TB Green Premix Ex Taq Ⅱ 10.00
DNA模板DNA template 5.00
合计Total 20.00
表3 RT-qPCR引物序列

Table 3 Primer sequences for RT-qPCR

基因
Genes
上游引物序列
Forward primer sequence (5'—3')
下游引物序列
Reverse primer sequence (5'—3')
β-肌动蛋白
β-actin
ATCCTGACGGAGCGCGGTTACAGC TGCCCATCTCCTGCTCAAAGTCCA
肉碱棕榈酰基转移酶1A
CPT1A
TCACCGCCCTGCTGCTCTAC TCCTGGTGTGCGTGTTGTGTTG
脂蛋白脂肪酶
LPL
TACGCTGAGCACCTAAACCG TCCTGGTGTGCGTGTTGTGTTG
脂肪酸去饱和酶2
FADS2
CGCTGTTAATCGGGGAGCTT CATGTCTATGGTGTGCCGGA
溶质转运27家族成员2
SLC27A2
GGACAGGTACAGAAGTACCGC CTCCAGATGCTCACGAAGGG
过氧化物酶体增殖激活受体α PPARα CGATCAGGTGACCCTGTTAA GCCGATAATGCCCACAATGG
长链酰基辅酶A合成酶
ACSL
GCTTGGTTGGCATCTTTGCT TGGAACTTGGGCTCCATC

1.5 数据统计分析

试验数据采用SPSS 23.0软件进行统计分析,以平均值±标准差的形式表示。采用双因素方差分析(two-way ANOVA)检验脂肪水平与氯化胆碱添加水平对生长性能和肝脏抗氧化指标的主效应及二者的交互作用;采用Duncan氏多重比较法对不同脂肪水平、不同氯化胆碱添加水平间的差异进行比较,以P<0.05为差异显著标准。采用GraphPad Prism 6和Adobe Illustrator 软件进行数据可视化及绘图处理。

2 结果与分析

2.1 不同脂肪水平饲料中添加氯化胆碱对细鳞鲑生长性能的影响

不同脂肪水平饲料中添加氯化胆碱对细鳞鲑生长性能的影响如表4所示。双因素方差分析显示,脂肪水平和氯化胆碱添加水平对终末体重(FBW)、SGR和WGR均有显著影响(P<0.05),二者对上述指标的影响存在显著的交互作用(P<0.05)。3个氯化胆碱添加水平下,脂肪水平为230 g/kg时的FBW、SGR和WGR均显著高于脂肪水平为200 g/kg时(P<0.05)。在脂肪水平为200 g/kg时,不同氯化胆碱添加水平间FBW无显著差异(P>0.05),但添加2 500 mg/kg氯化胆碱时SGR和WGR显著高于不添加氯化胆碱时(P<0.05)。
表4 不同脂肪水平饲料中添加氯化胆碱对细鳞鲑生长性能的影响

Table 4 Effects of choline chloride supplementation in diets with different lipid levels on growth performance of lenok

项目
Items
脂肪水平
Lipid levels/
(g/kg)
氯化胆碱添加水平
Choline chloride supplemental levels/(mg/kg)
PP-value
0 1 500 2 500 L C L×C

初始体重
IBW/g
200 8.56±0.08 8.63±0.12 8.53±0.20
0.483

0.232

0.544
230 8.61±0.09 8.91±0.12 8.54±0.11

终末体重
FBW/g
200 19.04±0.26B 19.83±0.30B 19.68±0.28B
<0.001

0.001

0.021
230 20.15±0.30Ab 21.32±0.56Ab 22.90±0.22Aa

特定生长率
SGR/(%/d)
200 1.12±0.01Bb 1.16±0.02Bab 1.22±0.02Ba
<0.001

<0.001

0.047
230 1.20±0.02Ab 1.26±0.01Ab 1.39±0.03Aa

增重率
WGR/%
200 119.09±0.84Bb 128.94±4.16Bab 135.54±2.95Ba
<0.001

<0.001

0.038
230 133.87±2.64Ab 143.60±1.32Ab 166.76±5.20Aa

存活率
SR/%
200 73.00±6.80 82.00±3.33 77.00±1.73
0.780

0.144

0.483
230 76.00±2.03 81.00±4.93 70.00±5.77

肥满度
CF/%
200 1.02±0.01 1.07±0.02 1.13±0.06
0.569

0.573

0.872
230 1.09±0.03 1.15±0.05 1.18±0.03

L代表脂肪水平,C代表氯化胆碱添加水平,L×C代表脂肪水平与氯化胆碱添加水平的交互作用。同一指标,同行数据肩标不同小写字母代表氯化胆碱添加水平之间差异显著(P<0.05),同列数据肩标不同大写字母代表不同脂肪水平之间差异显著(P<0.05)。表5同。

L represented lipid level, C represented choline chloride supplementation level, and L×C represented the interaction between lipid level and choline chloride supplementation level. For the same index, values in the same row with different lowercase superscript letters indicated significant difference (P<0.05) among choline chloride supplementation levels; values in the same column with different uppercase superscript letters indicated significant difference (P<0.05) between different lipid levels. The same as Table 5.

2.2 不同脂肪水平饲料中添加氯化胆碱对细鳞鲑肝脏抗氧化指标的影响

不同脂肪水平饲料中添加氯化胆碱对细鳞鲑肝脏抗氧化指标的影响如表5所示。双因素方差分析显示,脂肪水平和氯化胆碱添加水平对肝脏SOD、CAT和GSH-Px活性与MDA含量均有显著影响(P<0.05),且二者对上述指标的影响存在显著的交互作用(P<0.05)。相同氯化胆碱添加水平不同脂肪水平饲料之间,C-0组肝脏CAT和GSH-Px活性显著高于H-0组(P<0.05),C-1500组肝脏SOD和CAT活性显著高于H-1500组(P<0.05),C-2500组肝脏SOD活性显著高于H-2500组(P<0.05),并且H-0组相较于C-0组、H-1500组相较于C-1500组肝脏MDA含量显著升高(P<0.05)。无论是脂肪水平为200 g/kg时还是为230 g/kg时,随着氯化胆碱添加水平的增加,肝脏SOD、CAT、GSH-Px活性均呈上升趋势,且均表现为C-2500组显著高于C-0组(P<0.05)、H-2500组显著高于H-0组(P<0.05)。在脂肪水平为230 g/kg时,肝脏MDA含量随着氯化胆碱添加水平的增加显著降低(P<0.05)。
表5 不同脂肪水平饲料中添加氯化胆碱对细鳞鲑肝脏抗氧化指标的影响

Table 5 Effects of choline chloride supplementation in diets with different lipid levels on hepatic antioxidant indices of lenok

项目
Items
脂肪水平
Lipid levels/
(g/kg)
氯化胆碱添加水平
Choline chloride supplemental levels/(mg/kg)
PP-value
0 1 500 2 500 L C L×C

超氧化物歧化酶
SOD/(U/mg prot)
200 507.13±1.20c 584.80±0.29Ab 629.26±1.58Aa
<0.001

<0.001

<0.001
230 503.60±0.81b 532.26±0.54Ba 550.93±0.68Ba

丙二醛
MDA/(nmol/mg prot)
200 0.44±0.01B 0.47±0.01B 0.45±0.03
<0.001

0.002

<0.001
230 0.67±0.01Aa 0.57±0.01Ab 0.53±0.01c

过氧化氢酶
CAT/(U/mg prot)
200 49.95±0.63Ab 69.91±0.09Aa 77.90±0.16a
<0.001

<0.001

<0.001
230 28.46±0.05Bc 40.06±0.75Bb 61.95±0.89a

谷胱甘肽过氧化物酶
GSH-Px/(U/mg prot)
200 5.01±0.03Ab 6.08±0.02ab 6.45±0.04a
<0.001

<0.001

0.047
230 4.05±0.06Bb 5.28±0.24a 5.77±0.03a

2.3 饲料中添加氯化胆碱对摄入不同脂肪水平饲料细鳞鲑脂肪代谢的影响

2.3.1 测序原始数据

由生长性能结果可知,在氯化胆碱添加水平为2 500 mg/kg时细鳞鲑的生长效率最好,故选取C-2500组和H-2500组的6个肝脏样本进行转录组测序,测序数据质量和序列比对情况见表6。6个样本平均产生2 104万个raw reads,质控后获得2 056万个clean reads,测序错误率低,Q20和Q30平均值分别为97.12%和92.51%,GC含量平均值为46.16%,符合后续分析要求。
表6 测序数据质量和序列比对情况

Table 6 Sequencing data quality and sequence alignment

样本名称
Sample names
原始读段
Raw reads/个
有效读段
Clean reads/个
有效碱基数
Clean bases/Gb
Q20/% Q30/% GC含量
GC content/%
C-2500-1 19 631 902 19 249 752 5.80 97.49 93.16 47.87
C-2500-2 19 641 366 19 281 469 5.80 96.91 92.18 47.75
C-2500-3 20 811 254 20 411 943 6.10 97.19 92.65 47.15
H-2500-1 22 041 877 21 492 825 6.40 96.81 91.84 46.08
H-2500-2 23 342 777 22 812 316 6.80 97.50 93.55 44.68
H-2500-3 20 780 782 20 136 057 6.00 96.79 91.69 43.47

2.3.2 差异表达基因分析

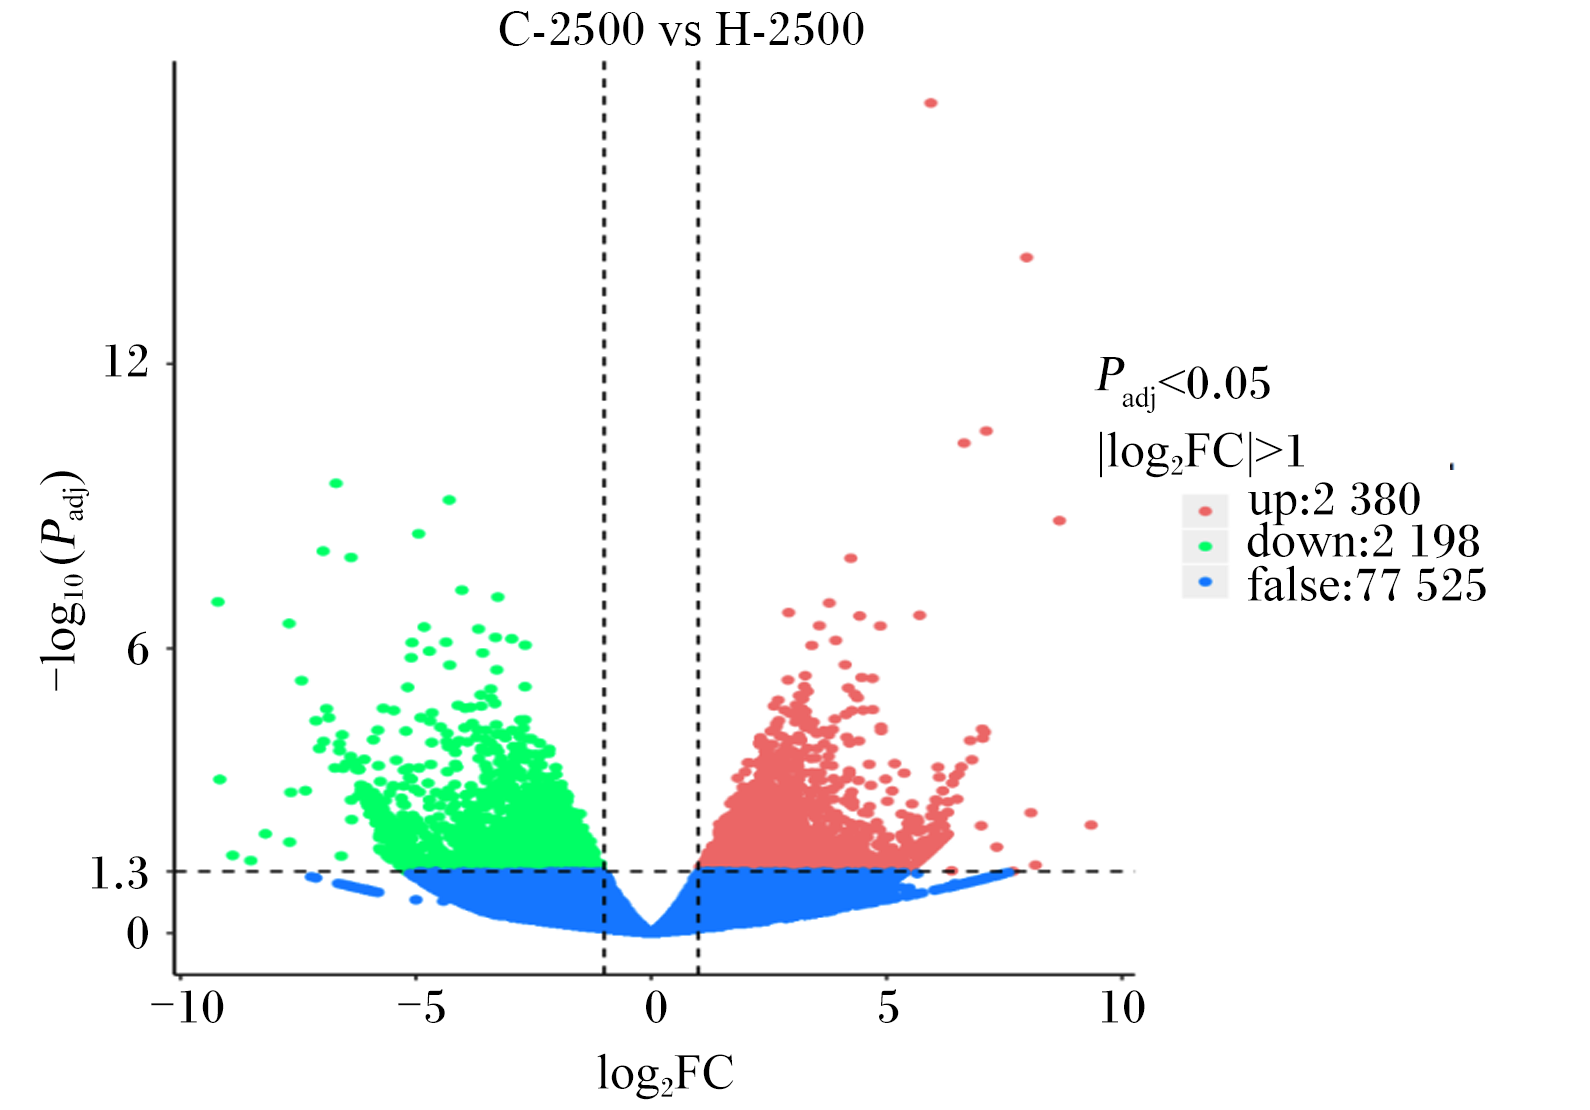
获得基因表达量后,利用DESeq2标准化方法筛选C-2500组和H-2500组之间表达量存在显著差异的基因。差异表达基因火山图(图1)显示,C-2500组和H-2500组之间共有4 578个差异表达基因,其中有2 380个上调基因,2 198个下调基因。
图1 差异表达基因火山图

C-2500:C-2500组 C-2500 group;H-2500:H-2500组 H-2500 group;Padj:矫正后P值 adjusted P-value;FC:差异倍数 fold change;up:上调基因 up-regulated genes;down:下调基因 down-regulated genes;false:非差异表达基因 non-differentially expressed genes。

Fig.1 Differentially expressed gene volcano plot

2.3.3 差异表达基因GO功能富集分析

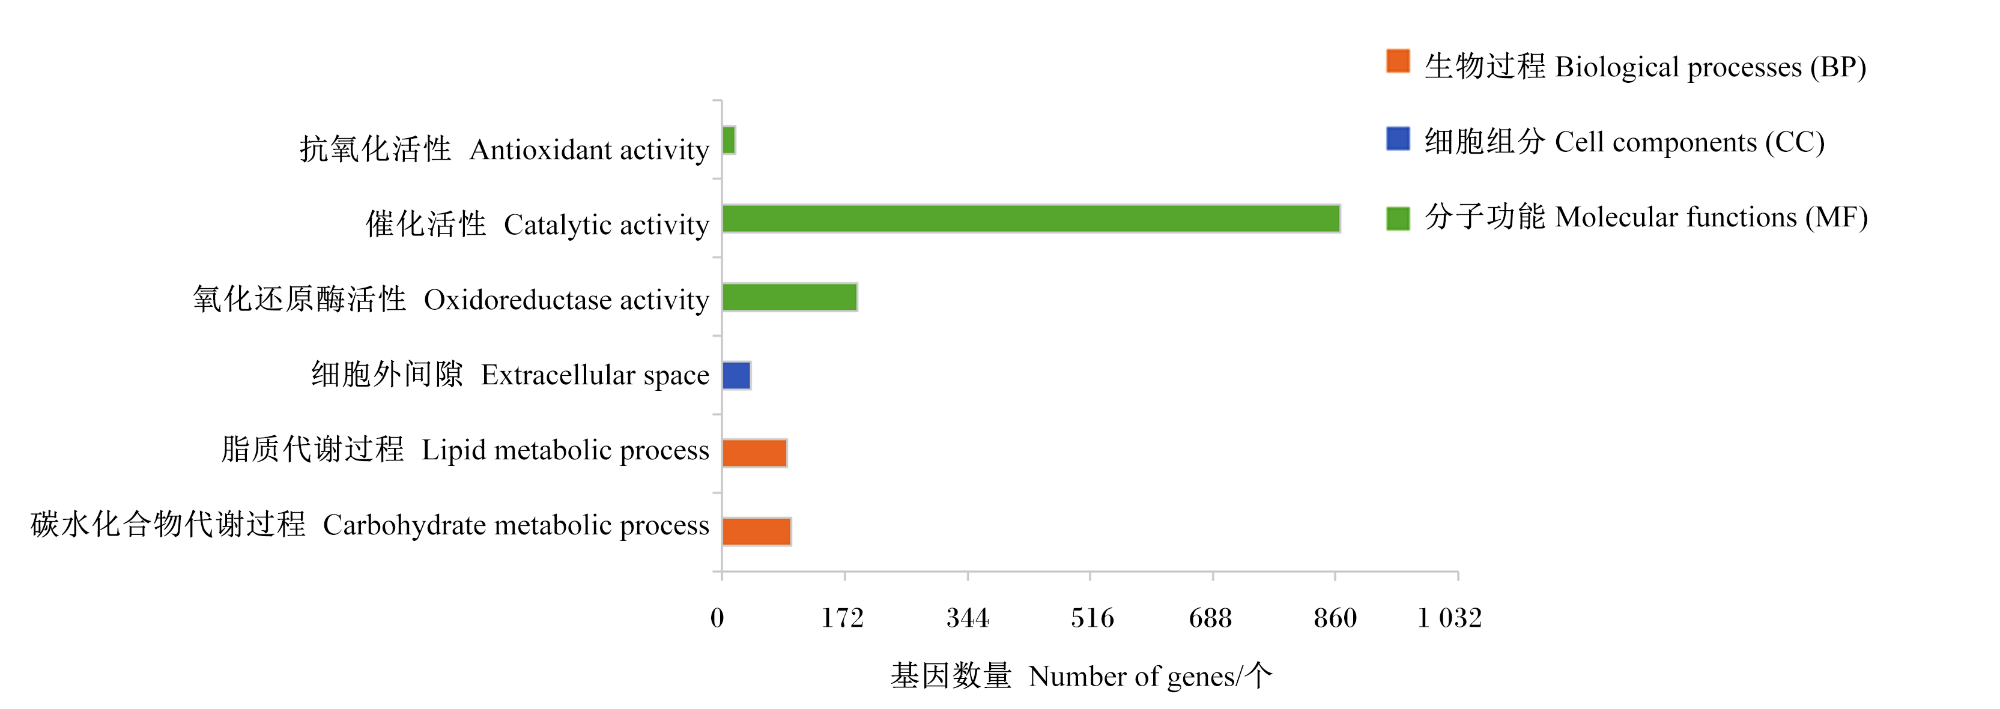
对C-2500组与H-2500组间筛选出的4 578个差异表达基因进行GO功能富集分析。结果(图2)表明,差异表达基因显著富集于多个生物学功能。在生物学过程(BP)方面,主要富集于碳水化合物代谢过程和脂质代谢过程;在细胞组分(CC)方面,主要富集于细胞外空间;在分子功能(MF)方面,主要富集于氧化还原酶活性、催化活性及抗氧化活性。
图2 差异表达基因GO功能富集分析

Fig.2 GO functional enrichment analysis of differentially expressed genes

2.3.4 差异表达基因KEGG通路分析

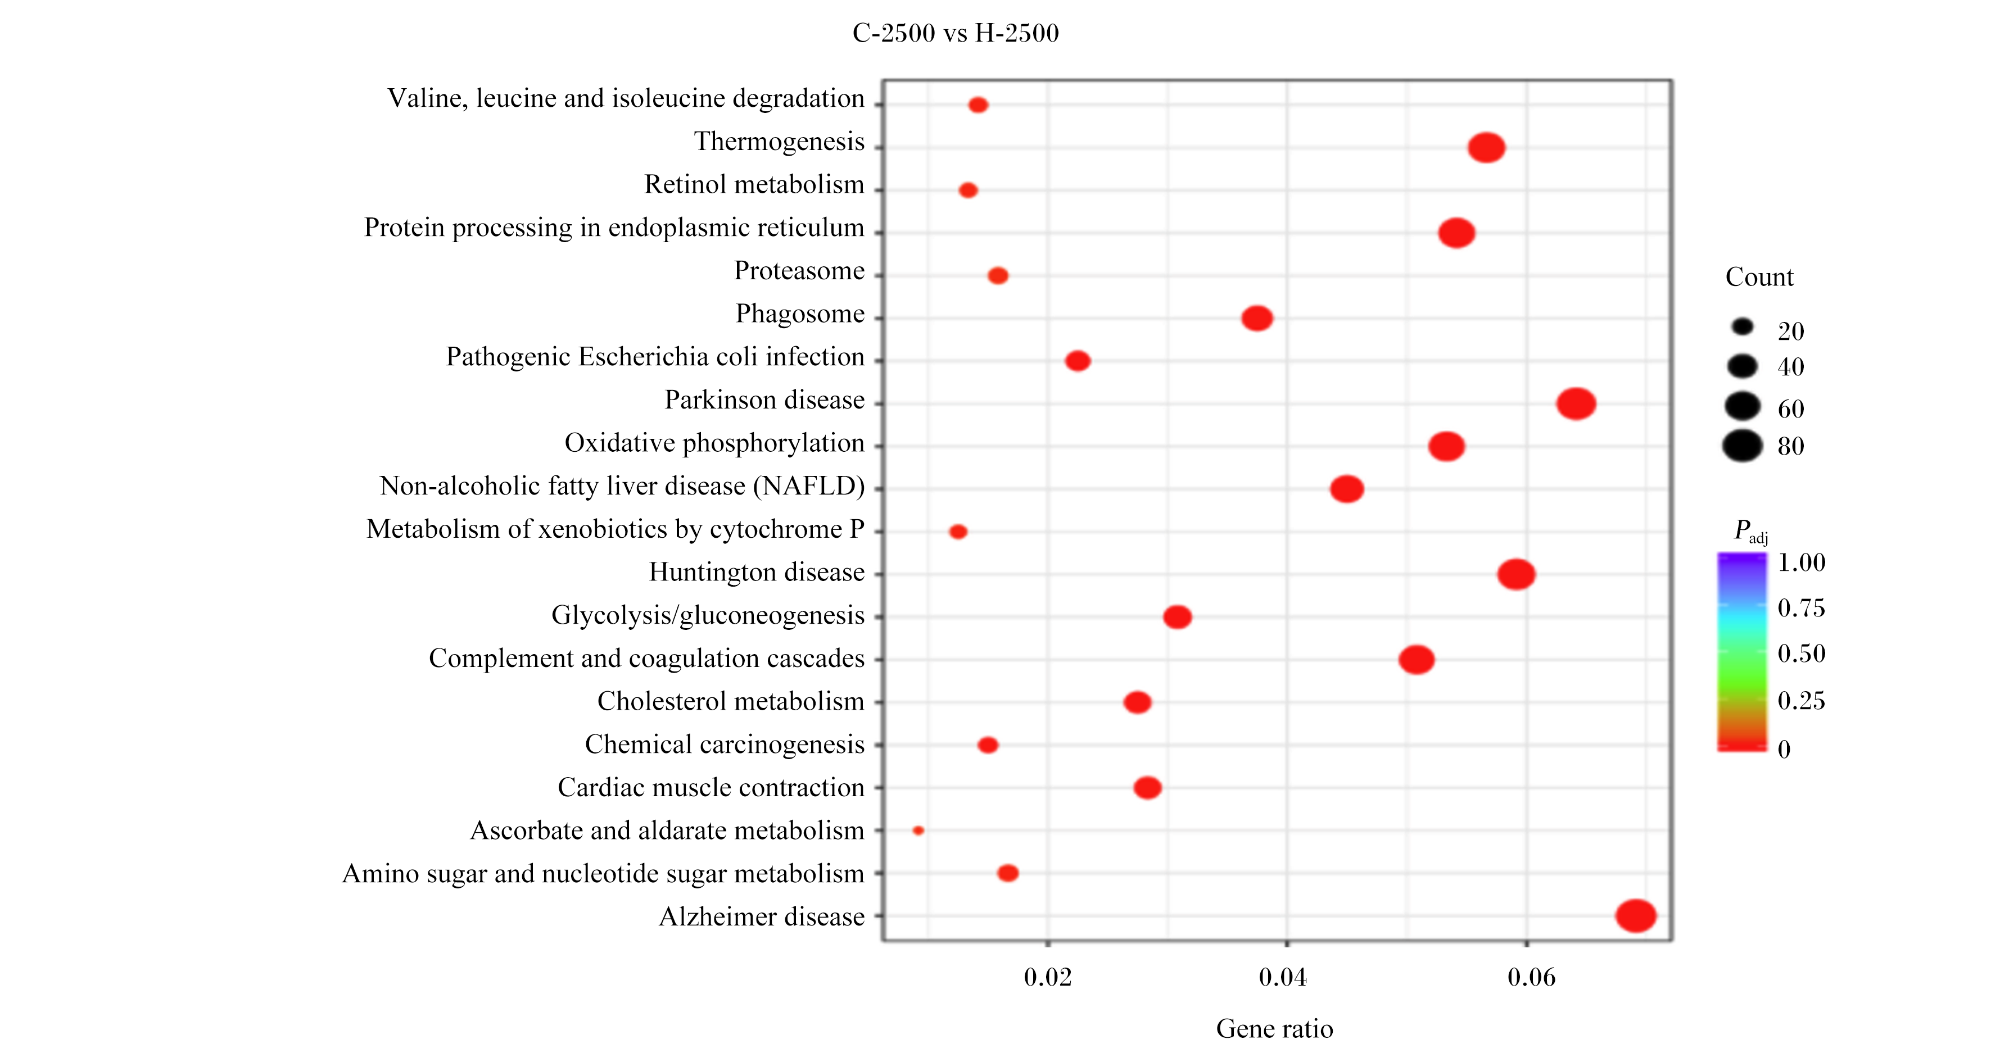
为探究差异表达基因涉及的生物学通路,本研究对筛选出的C-2500组与H-2500组的差异表达基因进行KEGG通路富集分析。以Padj<0.05为阈值,筛选差异基因显著富集的信号通路,并选取显著富集的前20条通路进行展示。如图3所示,差异表达基因显著富集于胆固醇代谢、视黄醇代谢、氧化磷酸化及非酒精性脂肪肝(NAFLD)等通路,其中,与脂质代谢相关的通路有胆固醇代谢和视黄醇代谢。
图3 差异表达基因KEGG通路富集分析图

Valine, leucine and isoleucine degradation:缬氨酸、亮氨酸和异亮氨酸降解;Thermogenesis:产热作用;Retinol metabolism:视黄醇代谢;Protein processing in endoplasmic reticulum:内质网中的蛋白质加工;Proteasome:蛋白酶体;Phagosome:吞噬体;Pathogenic Escherichia coli infection:致病性大肠杆菌感染;Parkinson disease:帕金森病;Oxidative phosphorylation:氧化磷酸化;Non-alcoholic fatty liver disease (NAFLD):非酒精性脂肪肝病(NAFLD);Metabolism of xenobiotics by cytochrome P:细胞色素P介导的外源性物质代谢;Huntington disease:亨廷顿病;Glycolysis/gluconeogenesis:糖酵解/糖异生;Complement and coagulation cascades:补体与凝血级联反应;Cholesterol metabolism:胆固醇代谢;Chemical carcinogenesis:化学致癌作用;Cardiac muscle contraction:心脏肌肉收缩;Ascorbate and aldarate metabolism:抗坏血酸和醛酸代谢;Amino sugar and nucleotide sugar metabolism:氨基糖和核苷糖代谢;Alzheimer disease:阿尔茨海默病;C-2500:C-2500组 C-2500 group;H-2500:H-2500组 H-2500 group;Gene ratio:基因比率;Count:数量;Padj:矫正后P值 adjusted P-value。

Fig.3 KEGG pathway enrichment analysis of differentially expressed genes

2.3.5 不同脂肪水平饲料中添加氯化胆碱对细鳞鲑肝脏中脂代谢相关基因表达的影响
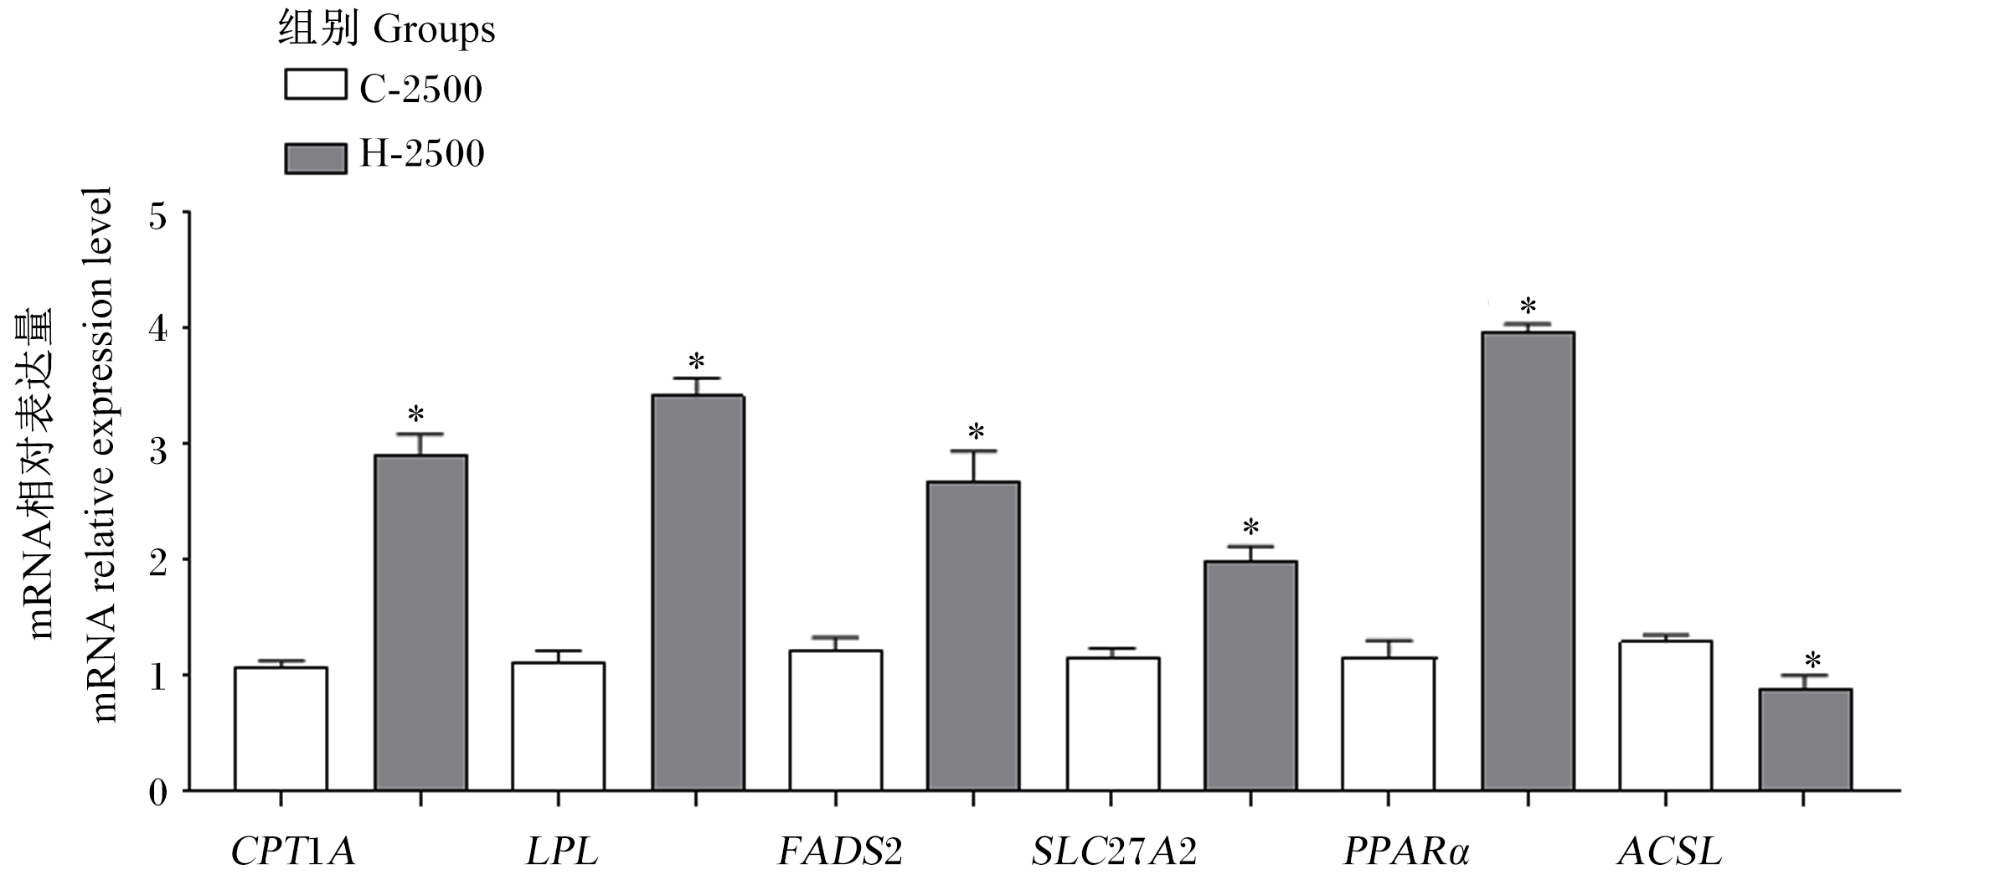
基于转录组测序结果,选取C-2500组与H-2500组间6个与脂代谢相关的差异表达基因,采用RT-qPCR进行验证。结果(图4)显示,相较于C-2500组,H-2500组CPT1A、LPL、脂肪酸去饱和酶2(FADS2)、溶质转运27家族成员2(SLC27A2)、过氧化物酶体增殖激活受体α(PPARα)的mRNA相对表达量均显著上调(P<0.05),而长链酰基辅酶A合成酶(ACSL)的mRNA相对表达量显著下调(P<0.05),与转录组测序结果趋势一致。
图4 细鳞鲑肝脏中脂代谢相关基因的表达

CPT1A:肉碱棕榈酰基转移酶1A carnitine palmitoyltransferase 1A;LPL:脂蛋白脂肪酶lipoprotein lipase;FADS2:脂肪酸去饱和酶2 fatty acid desaturase 2;SLC27A2:溶质转运27家族成员2 solute carrier family 27 member 2;PPARα:过氧化物酶体增殖激活受体α peroxisome proliferator-activated receptor α;ACSL:长链酰基辅酶A合成酶 long-chain acyl-CoA synthetase。*:差异显著 significant difference (P<0.05)。

Fig.4 Expression of lipid metabolism-related genes in liver of lenok

3 讨论

3.1 不同脂肪水平饲料中添加氯化胆碱对细鳞鲑生长性能的影响

适宜的饲料脂肪水平可以促进鱼类的生长、提高饲料利用率,而脂肪水平过高则易诱发脂肪肝、降低抗病力,并给饲料储存带来挑战[16]。前人在多种鱼类上的研究也证实了脂肪水平的促生长效应。例如,赵杰等[17]研究发现,梭鲈(Sander lucioperca)幼鱼的SGR和FBW随饲料脂肪水平的升高而显著上升;邬国强等[18]研究表明,在血鹦鹉鱼(♀ Vieja synspila×♂ Amphilophus citrinellus)饲料中添加脂肪可显著提高其WGR和SGR。
本试验中,在不同氯化胆碱添加水平下,H组的WGR、SGR及FBW均显著高于C组,与上述研究结果一致,表明适当提高脂肪水平能够促进细鳞鲑的生长。其机理在于,适宜的脂肪水平可为鱼体提供充足能量和必需脂肪酸,从而节约蛋白质,促进生长。Li等[19]以东北鲟(Acipenser schrenckii)为研究对象,发现其WGR、SGR和FBW随脂肪水平(5.11%~24.88%)的升高呈先升后降趋势,且在21.84%脂肪组达到峰值,出现拐点的主要原因可能在于饲料组成的差异。值得注意的是,本试验中H组的生长性能未出现下降拐点,可能与饲料中添加的氯化胆碱有关。C组与H组均添加了不同水平的氯化胆碱,作为一种必需营养素,胆碱不仅作为甲基供体直接参与促生长过程,还可能通过调节脂肪代谢,缓解高脂饲料引起的脂肪异常沉积与代谢紊乱,从而增强鱼体对高脂饲料的适应性,延缓或避免了生长性能的下降。本研究发现,在相同脂肪水平下,细鳞鲑的SGR和WGR随氯化胆碱添加水平的升高而增加,证实了胆碱的促生长作用。这一结果与周良星等[20]在大口黑鲈(Micropterus salmoides)上的研究结果一致,并在吉富罗非鱼(Oreochromis niloticus)[21]、大西洋鲑(Salmo salar L.)[22]、日本鳗鲡(Anguilla japonica)[23]和草鱼(Ctenopharyngodon idella)[24]等多种鱼类上得到验证,表明胆碱的促生长效应在鱼类中具有普遍性。胆碱促进生长的机制是多方面的。从代谢角度看,胆碱作为甲基供体,经胆碱脱氢酶催化分解生成蛋氨酸和二甲基甘氨酸,释放甲基参与体内的甲基化反应和合成代谢[25]。更重要的是,外源性胆碱的补充可节约蛋氨酸,使其更多地用于蛋白质合成,从而提高蛋白质利用率和肌肉蛋白质沉积能力。从脂肪代谢调控角度看,胆碱通过上调MTTPAPOB-100等脂代谢相关基因的表达,促进极低密度脂蛋白(VLDL)的组装与分泌,加速肝脏脂肪向外周组织的转运,有效缓解肝脂沉积,进而提高饲料利用率[8]。双因素方差分析表明,脂肪水平与氯化胆碱添加水平对细鳞鲑的FBW、SGR、WGR存在显著的交互作用。以生长性能为评价指标,本试验条件下,在脂肪水平为230 g/kg的饲料中,氯化胆碱添加水平为2 500 mg/kg时细鳞鲑的生长效果最好。

3.2 不同脂肪水平饲料中添加氯化胆碱对细鳞鲑肝脏抗氧化指标的影响

鱼类的抗氧化指标是反映机体抗氧化能力和氧化应激水平的重要参数[26]。SOD、CAT、GSH-Px是鱼体内抗氧化系统的关键酶组分,可协同清除自由基,维持鱼体内的氧化平衡,减轻氧化应激带来的损伤[27]。MDA作为脂质过氧化物的主要分解产物,其含量的高低可间接反映活性氧(ROS)自由基含量以及组织细胞脂质过氧化程度。本试验中,在C组和H组内,随着氯化胆碱添加水平的升高,肝脏SOD、CAT和GSH-Px活性均上升,且C组内肝脏MDA含量显著下降。这与张定东等[28]在团头鲂上的研究结果一致。分析其机理,一方面可能在于胆碱直接或间接抑制了ROS的生成。ROS及其引发的脂质过氧化物会消耗胞内的抗氧化酶(SOD、CAT等)及非酶抗氧化物(谷胱甘肽、维生素E等),从而削弱机体的抗氧化能力;胆碱通过减轻氧化压力,缓解了这一消耗过程。另一方面,胆碱在促进脂肪分解代谢的过程中为机体提供更多能量[29],可能间接减轻了肝脏的代谢负担和氧化应激水平。与胆碱的积极作用相反,高脂饲料在本试验中诱导了肝脏氧化损伤。具体表现为,H组较C组肝脏MDA含量升高,而肝脏SOD、CAT和GSH-Px活性降低。这与何志刚等[30]在芙蓉鲤鲫(Carassius auratus)和Zhou等[31]在大口黑鲈上的研究结果一致。其原因可能在于:第一,鱼油中富含高不饱和脂肪酸(HUFA),作为脂质过氧化的前体物质,高脂饲料的大量摄入加剧了细鳞鲑肝脏的脂质过氧化反应,并伴随过量ROS生成,破坏细胞膜结构与功能,导致抗氧化酶活性下降;第二,过高的脂肪水平导致肝脏脂质过度沉积,进而削弱机体整体抗氧化防御能力[32]。值得注意的是,Liu等[33]在虹鳟(Oncorhynchus mykiss)上的研究发现,鱼体抗氧化能力随饲料脂肪水平(10.03%~26.06%)的升高呈增强趋势。这看似与本研究结果矛盾,实则可能与物种耐受性差异有关。本课题组前期研究已表明,细鳞鲑的最适饲料脂肪水平为1 738~1 950 mg/kg[34],当脂肪水平超过其耐受阈值时,便会诱发氧化应激。而Liu等[33]的研究中设定的脂肪水平可能未超出虹鳟的脂质耐受范围,甚至触发了鱼体的适应性反应以抵御高脂诱导的氧化应激。综上所述,饲料中添加氯化胆碱可通过与脂肪水平的协同交互作用,有效提升细鳞鲑肝脏中抗氧化酶的活性,降低脂质过氧化产物的生成,从而增强鱼体对高脂饲料的耐受性。

3.3 不同脂肪水平饲料中添加氯化胆碱对细鳞鲑脂肪代谢的影响

鱼类的肝脏是脂肪代谢的核心器官,其代谢平衡易受饲料组成等外界因素影响。高脂饲料会加剧肝脏脂肪的沉积,而饲料中被消化吸收的营养素可通过调控相应信号分子影响脂质代谢。在代谢机制的研究过程中,转录组试验可揭示组内样本相关基因的重复性,与组间样本相关基因的变异程度等,为探究代谢机制提供了重要视角[35]。本试验对C-2500组和H-2500组细鳞鲑肝脏进行转录组测序和RT-qPCR验证,发现多个脂代谢关键基因(CPT1APPARαLPLACSLSLC27A2、FADS2)的表达量发生显著改变,说明肝脏中与脂代谢功能有关的基因发生了改变。本研究中,脂肪酸氧化相关基因CPT1A(长链脂肪酸进行线粒体β-氧化的一种必需限速酶)和PPARα(调节脂肪酸氧化和脂蛋白合成等方面的关键因子)在H-2500组中的mRNA相对表达量均显著高于C-2500组,说明胆碱可通过促进CPT1A基因的表达来减轻高脂饲料带来的不利影响,类似的结果在鳙鱼(Aristichthys nobilis)[36]和杂交石斑鱼(♀ Epinephelus fuscoguttatus×♂ E. lanceolatus)[37]的研究中均有报道。本试验研究发现,基因LPL(可将运载着脂类的脂蛋白水解成游离的脂肪酸,供细胞摄取)在H-2500组的相对表达量显著上调,表明胆碱干预可能增强了高脂胁迫下脂质分解和细胞对脂肪酸的摄取效率。这与在真鲷(Pagrus major)[38]上的研究结果一致。综合前人研究结果[39-41],其机制可能在于:胆碱通过激活PPARα信号通路,进而诱导CPT1ALPL及脂肪酸转运相关酶基因的表达,提高脂肪酸进入线粒体的效率和氧化速率,从而缓解高脂负荷。ACSL家族是一种能够催化长链脂肪酸的一种同工酶,长链脂肪酸被ACSL酯化后可参与磷脂和甘油三酯的合成,在脂肪合成过程中起重要作用。在哺乳动物中已鉴定出ACSL1、ACSL3、ACSL4、ACSL5和ACSL6共5种亚型,而由于硬骨鱼纲(Osteichthyes)进化过程中存在多次全基因组复制(WGD),产生了大量基因副本[42-44],目前有关硬骨鱼纲ACSL家族亚型分类尚未有明确定论。本试验发现,ACSL的相对表达量在H-2500组显著低于C-2500组,提示胆碱可能通过下调ACSL表达,抑制了肝脏中依赖ACSL的脂肪合成途径。在鱼类中,目前针对ACSL家族的研究集中于对生理功能的影响,如ACSL1参与激活脂肪酸进入β-氧化途径为草鱼供能[45],ACSL6在金鱼(Carassius auratus)DHA富集中起关键作用[46],而关于营养调控对鱼类ACSL基因表达影响的研究较少,调控机制尚不明确,有待深入探明。此外,本试验结果显示,参与脂肪代谢和脂肪酸跨膜转运的基因SLC27A2,以及在长链多不饱和脂肪酸合成中起限速作用的基因FADS2,其表达量都受到了胆碱的调控而发生改变,表明胆碱对脂肪代谢的调控是多靶点、多通路的。综上所述,胆碱可能通过上调肝脏中CPT1ALPLFADS2、SLC27A2、PPARα的表达,同时下调ACSL的表达,激活PPARα等脂代谢相关信号通路,从促进脂肪酸氧化、增强脂质分解转运、抑制脂肪合成等多个层面协同调控脂肪代谢,从而有效缓解高脂饲料诱导的肝脏脂肪蓄积。

4 结论

① 在高脂饲料中添加适宜水平的外源胆碱可显著改善高脂胁迫下细鳞鲑的生长性能,在230 g/kg的脂肪水平下以添加2 500 mg/kg氯化胆碱效果最好。
② 饲料中添加氯化胆碱可提高细鳞鲑肝脏抗氧化能力,且能通过调控肝脏中脂代谢相关基因的表达,缓解高脂胁迫下肝脏脂肪蓄积等问题。
[1]
KANSAKER U, TRIMARCO V, MONE P, et al. Choline supplements:an update[J]. Frontiers in Endocrinology, 2023, 14:1148166.

DOI

[2]
OBEID R, KARLSSON T. Choline-a scoping review for Nordic Nutrition Recommendations 2023[J]. Food & Nutrition Research, 2023, 67:10359.

[3]
KENNY T C, SCHARENBERG S, ABU-REMAILEH M, et al. Cellular and organismal function of choline metabolism[J]. Nature Metabolism, 2025, 7(1):35-52.

DOI PMID

[4]
徐心雨, 武之绚, 鲍梦圆, 等. 胆碱的生理功能及其对鱼脂肪代谢的调控机制[J]. 饲料研究, 2023, 46(6):137-141.

XU X Y, WU Z X, BAO M Y, et al. Physiological functions of choline and its regulatory mechanism on fat metabolism in fish[J]. Feed Research, 2023, 46(6):137-141. (in Chinese)

[5]
SAGARO G G, TRAINI E, AMENTA F. Activity of choline alphoscerate on adult-onset cognitive dysfunctions:a systematic review and Meta-analysis[J]. Journal of Alzheimer’s Disease, 2023, 92(1):59-70.

DOI

[6]
KULINSKI A, VANCE D E, VANCE J E. A choline-deficient diet in mice inhibits neither the CDP-choline pathway for phosphatidylcholine synthesis in hepatocytes nor apolipoprotein B secretion[J]. Journal of Biological Chemistry, 2004, 279(23):23916-23924.

DOI PMID

[7]
JIN M, PAN T T, TOCHER D R, et al. Dietary choline supplementation attenuated high-fat diet-induced inflammation through regulation of lipid metabolism and suppression of NFκB activation in juvenile black seabream (Acanthopagrus schlegelii)[J]. Journal of Nutritional Science, 2019, 8:e38.

DOI

[8]
李俊怡. 胆碱对团头鲂脂肪代谢的调控机制研究[D]. 博士学位论文. 南京: 南京农业大学, 2016.

LI J Y. Regulative mechanism of choline on lipid metabolism in blunt snout bream Megalobrama amblycephala[D]. Ph.D.Thesis. Nanjing: Nanjing Agricultural University, 2016. (in Chinese)

[9]
陈强, 张润哲, 任田丽, 等. 饲喂富含DHA海洋磷脂酰胆碱对大口黑鲈脂肪沉积的抑制效应与磷脂代谢调控[J]. 水产学报, 2025, 49(10):132-150.

CHEN Q, ZHANG R Z, REN T L, et al. DHA-rich marine phosphatidylcholine alleviates lipid deposition and mediates phospholipid remodeling in largemouth bass (Micropterus salmoides)[J]. Journal of Fisheries of China, 2025, 49(10):132-150. (in Chinese)

[10]
张鑫淼, 赵春龙, 谢鹏, 等. 基于全基因组InDel分析我国细鳞鲑遗传分化及本地适应性[J]. 水生生物学报, 2024, 48(10):1724-1735.

ZHANG X M, ZHAO C L, XIE P, et al. Genetic differentiation and local adaptation of Chinese lenok (Brachymystax) populations based on whole genome indels[J]. Acta Hydrobiologica Sinica, 2024, 48(10):1724-1735. (in Chinese)

[11]
蒋湘辉, 王兴兵, 李赫, 等. 流水养殖条件下细鳞鲑、哲罗鲑及其杂交种生长、肌肉质构特性和营养的比较研究[J]. 淡水渔业, 2025, 55(1):69-75.

JIANG X H, WANG X B, LI H, et al. Comparison in growth,muscle textural characteristics and nutrition of lenok Brachymystax lenok,taimen Hucho taimen and hybrid under flowing water farming[J]. Freshwater Fisheries, 2025, 55(1):69-75. (in Chinese)

[12]
龙文豪, 胡毅, 杨程皓, 等. 低蛋白质高脂饲料中添加胆汁酸对丝尾鳠生长、抗氧化能力及脂代谢的影响[J]. 动物营养学报, 2025, 37(5):3258-3270.

DOI

LONG W H, HU Y, YANG C H, et al. Effects of bile acids added to low-protein and high-fat diets on growth,antioxidant capacity and lipid metabolism of Hemibagrus wyckioides[J]. Chinese Journal of Animal Nutrition, 2025, 37(5):3258-3270. (in Chinese)

[13]
XU G F, WANG Y Y, HAN Y, et al. Growth,feed utilization and body composition of juvenile Manchurian trout,Brachymystax lenok (Pallas) fed different dietary protein and lipid levels[J]. Aquaculture Nutrition, 2015, 21(3):332-340.

DOI

[14]
SICILIANI D, KORTNER T M, BERGE G M, et al. Effects of dietary lipid level and environmental temperature on lipid metabolism in the intestine and liver, and choline requirement in Atlantic salmon (Salmo salar L) parr[J]. Journal of Nutritional Science, 2023, 12:e61.

DOI

[15]
LIU A, PIROZZI I, CODABACCUS B, et al. Digestible choline requirement of juvenile yellowtail kingfish (Seriola lalandi)[J]. Aquaculture, 2019, 509:209-220.

DOI

[16]
NAIEL M A E, NEGM S S, GHAZANFAR S, et al. The risk assessment of high-fat diet in farmed fish and its mitigation approaches:a review[J]. Journal of Animal Physiology and Animal Nutrition, 2023, 107(3):948-969.

DOI

[17]
赵杰, 郑先虎, 孙志鹏, 等. 不同饲料蛋白质和脂肪水平对梭鲈幼鱼生长及肝脏健康的影响[J]. 中国水产科学, 2025, 32(2):168-180.

ZHAO J, ZHENG X H, SUN Z P, et al. Effects of dietary protein and lipid levels on growth and hepatic health of juvenile Sander lucioperca[J]. Journal of Fishery Sciences of China, 2025, 32(2):168-180. (in Chinese)

[18]
邬国强, 汪学杰, 牟希东, 等. 饲料脂肪水平对血鹦鹉鱼吸收虾青素效果、 生长性能和血清生化指标的影响[J]. 海洋渔业, 2022, 44(1):67-77.

WU G Q, WANG X J, MU X D, et al. Effects of dietary lipid level on astaxanthin absorbtion,growth performance and serum biochemical indices of Vieja synspila ♀ ×Amphilophus citrinellus ♂[J]. Marine Fisheries, 2022, 44(1):67-77. (in Chinese)

[19]
LI Y, LI W T, LUO L, et al. Dietary lipid levels affect growth performance,lipid metabolism,antioxidant and immune status of amur sturgeon,Acipenser schrenckii[J]. Aquaculture Reports, 2023, 33:101796.

DOI

[20]
周良星, 钟雷, 袁俊光, 等. 饲料中添加氯化胆碱对大口黑鲈生长、饲料利用及形体指标的影响[J]. 水产科技情报, 2023, 50(6):357-361.

ZHOU L X, ZHONG L, YUAN J G, et al. Effect of dietary choline supplementation on growth performance,feed utilization,morphometric parameters of largemouth bass (Micropterus salmoides)[J]. Fisheries Science & Technology Information, 2023, 50(6):357-361. (in Chinese)

[21]
邵辉, 文华, 刘伟, 等. 吉富罗非鱼成鱼胆碱的最适需要量[J]. 中国水产科学, 2013, 20(5):1007-1014.

SHAO H, WEN H, LIU W, et al. Dietary choline requirements of adult GIFT tilapia (Oreochromis niloticus)[J]. Journal of Fishery Sciences of China, 2013, 20(5):1007-1014. (in Chinese)

DOI

[22]
HANSEN A K G, KORTNER T M, KRASNOV A, et al. Choline supplementation prevents diet induced gut mucosa lipid accumulation in post-smolt Atlantic salmon (Salmo salar L.)[J]. BMC Veterinary Research, 2020, 16(1):32.

DOI

[23]
ARAI T. How have spawning ground investigations of the Japanese eel Anguilla japonica contributed to the stock enhancement?[J]. Reviews in Fish Biology and Fisheries, 2014, 24(1):75-88.

DOI

[24]
朱瑞俊, 李小勤, 谢骏, 等. 饲料中添加氯化胆碱对草鱼成鱼生长、脂肪沉积和脂肪代谢酶活性的影响[J]. 中国水产科学, 2010, 17(3):527-535.

ZHU R J, LI X Q, XIE J, et al. Effects of dietary supplemental choline chloride on growth performance and lipid deposition and activities of lipid metabolism enzymes of grass carp,Ctenopharyngodon idella[J]. Journal of Fishery Sciences of China, 2010, 17(3):527-535. (in Chinese)

[25]
王永利. 胆碱在水产动物中的应用研究进展[J]. 饲料研究, 2019, 42(9):115-117.

WANG Y L. Research progress on application of choline in aquatic animals[J]. Feed Research, 2019, 42(9):115-117. (in Chinese)

[26]
许治冲, 刘晖, 徐奇友, 等. 温度和饲料脂肪水平对松浦镜鲤免疫及抗氧化能力的影响[J]. 大连海洋大学学报, 2012, 27(5):429-435.

XU Z C, LIU H, XU Q Y, et al. Effects of dietary lipid levels on immunity and antioxidant function in Songpu mirror carp at different temperatures[J]. Journal of Dalian Ocean University, 2012, 27(5):429-435. (in Chinese)

[27]
杨兰, 吴莉芳, 瞿子惠, 等. 饲料蛋白质水平对洛氏鱥蛋白质代谢酶及抗氧化能力的影响[J]. 吉林农业大学学报, 2020, 42(2):212-218.

YANG L, WU L F, QU Z H, et al. Effects of different dietary protein levels on protein metabolizing enzyme and antioxidant capacity of Rhynchocypris lagowskii dybowski[J]. Journal of Jilin Agricultural University, 2020, 42(2):212-218. (in Chinese)

[28]
张定东, 李俊怡, 王冰柯, 等. 胆碱对高脂胁迫的团头鲂肝脏抗氧化、组织结构和免疫力的影响[J]. 水产学报, 2017, 41(3):438-447.

ZHANG D D, LI J Y, WANG B K, et al. Effects of choline on hepatic antioxidant status,ultrastructure and innate immunity in blunt snout bream (Megalobrama amblycephala) fed high-fat diet[J]. Journal of Fisheries of China, 2017, 41(3):438-447. (in Chinese)

[29]
LI J Y, ZHANG D D, XU W N, et al. Effects of dietary choline supplementation on growth performance and hepatic lipid transport in blunt snout bream (Megalobrama amblycephala) fed high-fat diets[J]. Aquaculture, 2014, 434:340-347.

DOI

[30]
何志刚, 王金龙, 伍远安, 等. 饲料脂肪水平对芙蓉鲤鲫幼鱼血清生化指标、免疫反应及抗氧化能力的影响[J]. 水生生物学报, 2016, 40(4):655-662.

HE Z G, WANG J L, WU Y A, et al. Effect of dietary lipid levels on serum biochemical indices,immune responses and antioxidant capability of juvenile Furong crucian carp (Furong carp ♀×red crucian carp ♂)[J]. Acta Hydrobiologica Sinica, 2016, 40(4):655-662. (in Chinese)

[31]
ZHOU Y L, GUO J L, TANG R J, et al. High dietary lipid level alters the growth,hepatic metabolism enzyme,and anti-oxidative capacity in juvenile largemouth bass Micropterus salmoides[J]. Fish Physiology and Biochemistry, 2020, 46(1):125-134.

DOI

[32]
HAN Z H, GONG Y, ZHANG N H, et al. Effects of dietary carbohydrate and lipid levels on growth performance,hepatic histology and antioxidant capacity and flesh texture of mandarin fish (Siniperca chuatsi)[J]. British Journal of Nutrition, 2025, 133(3):299-309.

DOI

[33]
LIU Z L, ZHAO W, HU W S, et al. Lipid metabolism,growth performance,antioxidant ability and intestinal morphology of rainbow trout (Oncorhynchus mykiss) under cage culture with flowing water were affected by dietary lipid levels[J]. Aquaculture Reports, 2021, 19:100593.

DOI

[34]
CHANG J, NIU H X, JIA Y D, et al. Effects of dietary lipid levels on growth,feed utilization,digestive tract enzyme activity and lipid deposition of juvenile Manchurian trout,Brachymystax lenok (Pallas)[J]. Aquaculture Nutrition, 2018, 24(2):694-701.

DOI

[35]
DENG H J, ZHANG J C, LIANG W X, et al. Multi-omics interpretation of how lysophospholipids regulate hepatic lipid metabolism and immunity in hybrid grouper (♀ Epinephelus fuscoguttatus×♂ Epinephelus Lanceolatu) fed high-lipid diets[J]. Animal Nutrition, 2025, 21:140-154.

DOI

[36]
陈珺. 氯化胆碱对鳙脂肪代谢的影响机制研究[D]. 硕士学位论文. 武汉: 武汉轻工大学, 2024.

CHEN J. Mechanism of the effect of choline chloride on fat metabolism in bighead carp (Aristichthys nobilis)[D]. Master’s Thesis. Wuhan: Wuhan Polytechnic University, 2024. (in Chinese)

[37]
LI T, YAN X B, DONG X H, et al. Choline alleviates disorders of lipid metabolism in hybrid grouper (♀ Epinephelus fuscoguttatus×♂ E.lanceolatus) caused by high-lipid diet[J]. Aquaculture Nutrition, 2022, 2022(1):8998849.

[38]
梁旭方, 白俊杰, 劳海华, 等. 真鲷(Pagrus major)脂蛋白脂肪酶基因表达与内脏脂肪蓄积营养调控定量研究[J]. 海洋与湖沼, 2003, 34(6):625-631.

LIANG X F, BAI J J, LAO H H, et al. Nutritional regulation of lipoprotein lipase gene expression and visceral fat deposition in red sea bream (Pagrus major)[J]. Oceanologia et Limnologia Sinica, 2003, 34(6):625-631. (in Chinese)

[39]
MANDRUP S, LANE M D. Regulating adipogenesis[J]. Journal of Biological Chemistry, 1997, 272(9):5367-5370.

DOI PMID

[40]
CHA B S, CIARALDI T P, CARTER L, et al. Peroxisome proliferator-activated receptor (PPAR) γ and retinoid X receptor (RXR) agonists have complementary effects on glucose and lipid metabolism in human skeletal muscle[J]. Diabetologia, 2001, 44(4):444-452.

DOI

[41]
LIANG X F, OGATA H Y, OKU H. Effect of dietary fatty acids on lipoprotein lipase gene expression in the liver and visceral adipose tissue of fed and starved red sea bream Pagrus major[J]. Comparative Biochemistry and Physiology Part A:Molecular & Integrative Physiology, 2002, 132(4):913-919.

[42]
LOPES-MARQUES M, CUNHA I, REIS-HENRIQUES M A, et al. Diversity and history of the long-chain acyl-CoA synthetase (Acsl) gene family in vertebrates[J]. BMC Evolutionary Biology, 2013, 13(1):271.

DOI

[43]
YANG Z G, ZHU H B, HUANG X P, et al. Molecular characterization,tissue distribution profile,and nutritional regulation of acsl gene family in golden pompano (Trachinotus ovatus)[J]. International Journal of Molecular Sciences, 2022, 23(12):6437.

DOI

[44]
MA F, ZOU Y L, MA L F, et al. Evolution,characterization,and immune response function of long-chain acyl-CoA synthetase genes in rainbow trout (Oncorhynchus mykiss) under hypoxic stress[J]. Comparative Biochemistry and Physiology Part B:Biochemistry and Molecular Biology, 2022, 260:110737.

DOI

[45]
CHENG H L, CHEN S, XU J H, et al. Molecular cloning and nutrient regulation analysis of long chain acyl-CoA synthetase 1 gene in grass carp,Ctenopharyngodon idella L[J]. Comparative Biochemistry and Physiology Part B:Biochemistry and Molecular Biology, 2017, 204:61-68.

DOI

[46]
XIE D Z, HE Z J, DONG Y W, et al. Molecular cloning,characterization,and expression regulation of acyl-CoA synthetase 6 gene and promoter in common carp Cyprinus carpio[J]. International Journal of Molecular Sciences, 2020, 21(13):4736.

DOI

文章导航

/