研究论文

基于非靶标代谢组学探究小檗碱对产肠毒性大肠杆菌感染仔猪血浆差异代谢物的影响

  • 黄文灵 , 1 ,
  • 聂小燕 1 ,
  • 尹宇呈 1 ,
  • 潘姝含 1 ,
  • 陈昕怡 1 ,
  • 王丽 2 ,
  • 蒋宗勇 , 2, * ,
  • 朱翠 , 1, *
展开
  • 1 佛山大学动物科技学院, 佛山 528225
  • 2 广东省农业科学院动物科学研究所, 猪禽种业全国重点实验室,农业农村部华南动物营养与饲料重点实验室,广东省畜禽育种与营养研究重点实验室, 广州 510640
*蒋宗勇,研究员,博士生导师,E-mail: ;
朱 翠,副研究员,硕士生导师,E-mail:

黄文灵(2001—),女,湖北荆州人,硕士研究生,研究方向为畜禽肠道健康与营养调控。E-mail:

Office editor: 武海龙

收稿日期: 2025-09-10

  网络出版日期: 2026-04-14

基金资助

广东省农业科学院现代种业创新能力提升工程(2026ZYTS)

国家生猪产业技术体系(CARS-35)

广东省基础与应用基础基金项目(2022A1515011185)

Effects of Berberine on Plasma Differential Metabolites of Piglets Infected with Enterotoxigenic Escherichia coli Based on Nontargeted Metabolomics

  • HUANG Wenling , 1 ,
  • NIE Xiaoyan 1 ,
  • YIN Yucheng 1 ,
  • PAN Shuhan 1 ,
  • CHEN Xinyi 1 ,
  • WANG Li 2 ,
  • JIANG Zongyong , 2, * ,
  • ZHU Cui , 1, *
Expand
  • 1 School of Animal Science and Technology, Foshan University, Foshan 528225, China
  • 2 Guangdong Provincial Key Laboratory of Animal Breeding and Nutrition, Key Laboratory of Animal Nutrition and Feed Science in South China, Ministry of Agriculture and Rural Affairs, State Key Laboratory of Swine and Poultry Breeding Industry, Institute of Animal Science, Guangdong Academy of Agricultural Sciences, Guangzhou 510640, China
*JIANG Zongyong, professor, E-mail: ;
ZHU Cui, associate professor, E-mail:

Received date: 2025-09-10

  Online published: 2026-04-14

摘要

本试验旨在采用非靶标代谢组学技术研究小檗碱(BBR)对产肠毒性大肠杆菌(ETET)攻毒导致的仔猪血浆差异代谢物的影响。选取21日龄的杜×长×大三元杂断奶仔猪64头,随机分为4组,每组8个重复,每个重复2头。对照组和ETEC组饲喂基础饲粮,BBR组和BBR+ETEC组饲喂基础饲粮+250 mg/kg小檗碱。试验期18 d。在第15天和第17天,ETEC组和BBR+ETEC组仔猪每头口服10 mL ETEC菌悬液(浓度为1×10⁹ CFU/mL),对照组和BBR组仔猪口服等量无菌磷酸盐缓冲液(PBS)。结果表明:1)与对照组相比,ETEC组血浆中共筛选到52个差异代谢物,其中9个上调,43个下调;与ETEC组相比,BBR+ETEC组血浆中共筛选到20个差异代谢物,其中8个上调,12个下调。2)ETEC组的差异代谢物显著富集到维生素B6代谢及苯丙氨酸、酪氨酸和色氨酸的生物合成等代谢通路(P<0.05),BBR+ETEC组则显著富集到精氨酸代谢及苯丙氨酸、酪氨酸和色氨酸的生物合成等代谢通路(P<0.05)。3)与对照组相比,ETEC组血浆中D(+)-色氨酸、赖氨酸、4-吡哆酸和牛磺鹅去氧胆酸含量显著下降(P<0.05);与ETEC组相比,BBR+ETEC组血浆中N-苯甲酰基-L-酪氨酸乙酯、赖氨酸和牛磺鹅去氧胆酸含量显著增加(P<0.05),而血浆精氨酸、苯丙氨酸含量则显著下降(P<0.05)。4)Spearman相关性分析显示,血浆L-酪氨酸、赖氨酸、牛磺鹅去氧胆酸、4-吡哆酸和D(+)-色氨酸含量与第15~18天平均日增重和第15~18天平均日采食量呈显著或极显著正相关(P<0.05或P<0.01),血浆L-酪氨酸、牛磺鹅去氧胆酸、赖氨酸和4-吡哆酸含量与第15~18天料重比呈显著负相关(P<0.05)。由此可见,ETEC感染会导致仔猪氨基酸代谢、维生素B6代谢和初级胆汁酸代谢紊乱,饲粮中添加小檗碱能有效缓解ETEC攻毒导致的仔猪机体代谢紊乱,该缓解作用与其调节ETEC感染仔猪血浆中苯丙氨酸-酪氨酸代谢、精氨酸代谢、维生素B6代谢和胆汁酸代谢密切相关,且牛磺鹅去氧胆酸可能是ETEC感染仔猪的关键损伤标志物和小檗碱的核心修复靶点。

本文引用格式

黄文灵 , 聂小燕 , 尹宇呈 , 潘姝含 , 陈昕怡 , 王丽 , 蒋宗勇 , 朱翠 . 基于非靶标代谢组学探究小檗碱对产肠毒性大肠杆菌感染仔猪血浆差异代谢物的影响[J]. 动物营养学报, 2026 , 38(4) : 2963 -2978 . DOI: 10.12418/CJAN2026.238

Abstract

This study aimed to investigate the effects of berberine (BBR) on plasma differential metabolites of piglets challenged with enterotoxigenic Escherichia coli (ETEC) using untargeted metabolomics. Sixty-four 21-day-old Duroc×Landrace×Yorkshire crossbred weaned piglets were randomly allocated to 4 groups with 8 replicates per group and 2 pigs per replicate. The control group and ETEC group were fed basal diets, and the BBR group and BBR+ETEC group were fed basal diets+250 mg/kg berberine. The trial lasted for 18 days. On day 15 and day 17, each piglet in the ETEC group and BBR+ETEC group were orally administer 10 mL ETEC bacterial suspension (concentration was 1×10⁹ CFU/mL), and each piglet in control group and BBR group were orally administer equivalent volume of sterile phosphate buffer solution. The results showed as follows: 1) compared with the control group, 52 plasma differential metabolites in the ETEC group were screened, with 9 were up-regulated and 43 were down-regulated; compared with the ETEC group, 20 plasma differential metabolites in the BBR+ETEC group were screened, with 8 were up-regulated and 12 were down-regulated. 2) Differential metabolites in the ETEC group were significantly enriched in metabolic pathways such as vitamin B6 metabolism and biosynthesis of phenylalanine, tyrosine and tryptophan (P<0.05), and in the BBR+ETEC group were significantly enriched in metabolic pathways such as arginine metabolism and biosynthesis of phenylalanine, tyrosine and tryptophan (P<0.05). 3) Compared with the control group, the contents of D(+)-tryptophan, lysine, 4-pyridoxic acid and taurochenodeoxycholic acid in plasma were significantly decreased (P<0.05); compared with the ETEC group, the contents of N-benzoyl-L-tyrosine ethyl ester, lysine and taurochenodeoxycholic acid in plasma were significantly increased (P<0.05), whereas plasma arginine and phenylalanine contents were significantly decreased in BBR+ETEC group (P<0.05). 4) The Spearman correlation analysis showed that the contents of L-tyrosine, lysine, taurochenodeoxycholic acid, 4-pyridoxic acid,and D(+)-tryptophan in plasma were significant or extremely significant positive correlated with average daily gain during days 15 to 18 and average daily feed intake during days 15 to 18 (P<0.05 or P<0.01), and the contents of L-tyrosine, taurochenodeoxycholic acid, lysine and 4-pyridoxic acid in plasma were significant negative correlated with feed to gain ratio during days 15 to 18 (P<0.05). In conclusion, the ETEC infection disrupts amino acid metabolism, vitamin B6 metabolism and primary bile acid metabolism in piglets, dietary berberine effectively alleviates ETEC-challenged systemic metabolic disturbances in piglets, this protective effect may be closely associated with the henylalanine-tyrosine metabolism, arginine metabolism, vitamin B6 metabolism and bile acid metabolism in the plasma of ETEC-infected piglets, and the taurochenodeoxycholic acid may serve as a key injury biomarker of ETEC-infected piglets and core repair target of berberine.

产肠毒性大肠杆菌(enterotoxigenic Escherichia coli,ETEC)是引起断奶仔猪产生腹泻的重要原因之一,其导致的仔猪黄痢、白痢和水肿病给养猪业带来严重的经济损失[1]。ETEC的毒力因子主要为黏附素和肠毒素[2]。其中,黏附素是ETEC菌体表面特有的宿主特异性菌毛,包括F4(K88)、F5(K99)、F6(987P)、F18和F41等,以K88造成的仔猪腹泻对养猪生产影响最大[3-4]。研究表明,ETEC K88是引起新生仔猪和断奶仔猪腹泻的主要病原之一,K88上存在的黏附素蛋白能与仔猪肠上皮细胞的特异糖蛋白受体结合,介导ETEC定植并诱导腹泻,同时ETEC的毒力因子通过调节核因子-κB(NF-κB)信号通路来诱导宿主炎症反应和细胞自噬[5]
研究表明,中草药及其制剂具有安全、有效、经济、无残留、药效温和、不易产生耐药性、提高仔猪免疫力等优点,在防治仔猪ETEC腹泻中具有良好的效果[6]。小檗碱(berberine,BBR)是一种从黄连、黄柏、小檗科等植物中提取的生物碱,已被证实具有抗菌、抗炎、调血脂、降血糖、降血压、抗肿瘤等生物学功能,广泛用于治疗胃肠炎和痢疾等疾病[7]。近年研究发现,小檗碱还具有调节肠道菌群平衡、修复肠道屏障、提高机体免疫力和抗氧化能力等作用,作为抗生素替代品在动物生产中具有广阔的应用前景[8-9]。本课题组前期研究也发现,饲粮中添加小檗碱可以通过调节肠道微生物区系及其代谢产物来改善ETEC感染仔猪的生长性能和肠道健康,并降低仔猪腹泻率[10-11]
代谢组学(metabolomics)能够针对某一生物处于特定生理时期的状态,对其体内全部小分子代谢产物进行同时定性与定量分析,因最接近生物表型的特性,常被用于疾病诊断及药物筛选工作[12]。非靶标代谢组学(untargeted metabolomics)是对机体、组织、器官甚至一个细胞的全部内源性代谢物的全面、系统的分析,是无偏向性的,有助于发现新的差异代谢物或者生物标志物[13]。近年来,关于非靶标代谢组学已经在仔猪生产过程中的生理变化及疾病感染后的代谢变化等方面进行研究应用,如研究不同冷暴露时间、不同断奶体重、产后缺氧和传染性胃肠炎病毒感染等对仔猪代谢组的影响[13-16]。本课题组前期研究发现,ETEC感染可显著降低仔猪第18天末重、第15~18天和第1~18天平均日增重以及第15~18天平均日采食量,并显著提高第15~18天和1~18天料重比以及第15~18天腹泻率,而在饲粮中添加小檗碱对ETEC感染后仔猪的生长抑制和腹泻率具有显著缓解作用[10]。然而,关于饲粮中添加小檗碱如何影响ETEC感染仔猪的代谢物调控机制目前仍不清楚。因此,本试验旨在应用非靶标代谢组学方法,研究小檗碱对ETEC感染仔猪的血浆代谢物的影响,为进一步揭示饲粮中添加小檗碱调节ETEC攻毒仔猪肠道健康的代谢物作用机制提供理论基础。

1 材料与方法

1.1 试验设计

本研究中所采用的实验方案和操作流程已获得佛山大学动物护理与使用委员会的批准(FOSU2022005)。选取21日龄、健康状态一致的杜×长×大三元杂断奶去势公猪64头,随机分为4组,每组8个重复,每个重复2头。对照组和ETEC组饲喂基础饲粮,BBR组和BBR+ETEC组饲喂基础饲粮+250 mg/kg小檗碱。试验期18 d,试验期间所有猪只自由采食和饮水。在试验第15天和第17天对仔猪进行攻毒处理,其中,ETEC组和BBR+ETEC组仔猪每头口服10 mL ETEC菌悬液(血清型为O140:K91:K88ac,浓度为1×10⁹ CFU/mL),对照组和BBR组仔猪则同步口服等量无菌磷酸盐缓冲液(PBS),以排除溶剂可能引起的干扰。ETEC攻毒后导致仔猪出现典型的水样腹泻、精神沉郁、生长性能下降、肠道形态结构损伤,表明仔猪ETEC腹泻模型构建成功[10]。基础饲粮参考NRC(2012)[17]推荐的猪营养需要进行配制,其组成及营养水平见表1
表1 基础饲粮组成及营养水平(风干基础)

Table 1 Composition and nutrient levels of the basal diet (air-dry basis) %

项目Items 含量Content
原料Ingredients
玉米Corn 34.00
膨化玉米Extruded corn 15.51
膨化全脂大豆Extruded full-fat soybean 8.40
发酵豆粕Fermented soybean meal 9.00
大豆皮Soybean hull 5.00
鱼粉Fish meal 4.00
乳清粉Whey powder 11.00
喷雾干燥猪血浆蛋白粉
Spray dried pig plasma protein powder
4.00
豆油Soybean oil 1.35
蔗糖Sugar 2.00
磷酸氢钙CaHPO4 1.20
石粉Limestone 0.76
L-赖氨酸盐酸盐L-Lys·HCl 0.82
DL-蛋氨酸DL-Met 0.25
L-苏氨酸L-Thr 0.30
L-色氨酸L-Trp 0.06
食盐NaCl 0.45
氯化胆碱Choline chloride 0.20
维生素和矿物质预混料
Vitamin and mineral premix1)
1.70
合计Total 100.00
营养水平Nutrient levels2)
代谢能ME/(MJ/kg) 14.82
粗蛋白质CP 19.19
钙Ca 0.85
总磷TP 0.68
有效磷AP 0.50
赖氨酸Lys 1.76
蛋氨酸+半胱氨酸Met+Cys 0.92
苏氨酸Thr 1.07
酪氨酸Try 0.28

1)维生素和矿物质预混料为每千克饲粮提供 Vitamin and mineral premix provided the following per kilogram of the diet:VA 2 400 IU,VD3 2 800 IU,VE 200 IU,VK3 5 mg,VB1 3 mg,VB2 10 mg,烟酸 niacin 40 mg,VB6 8 mg,VB12 40 μg,泛酸 pantothenic acid 15 mg,叶酸 folic acid 1 mg,生物素 biotin 0.08 mg,VC 200 mg,Fe (FeSO4) 120 mg,Cu (CuSO4) 16 mg,Mn (MnSO4) 70 mg,Zn (ZnSO4) 120 mg,I (CaI2O6) 0.7 mg,Co (CoCO4) 0.14 mg,Se (Na2SeO3) 0.48 mg。

2)粗蛋白质为实测值[18],其他营养水平为计算值[19]。CP was a measured value[18], while the other nutrient levels were calculated values[19].

1.2 样品采集

试验结束当天清晨,每栏进行称重,随机选择1头接近平均体重的仔猪,进行前腔静脉采血,使用肝素钠抗凝管采集全血10 mL,室温条件下静置30 min,随后4 ℃、1 000×g离心10 min制备血浆,并分装于1.5 mL离心管中,-80 ℃冰箱保存,用于后续代谢组学分析。

1.3 液相色谱串联质谱(LC-MS/MS)分析

为获取血浆样本中的目标代谢物,采用有机试剂沉淀蛋白的方法,同时去除蛋白杂质对后续代谢物检测的干扰。提取的代谢物通过LC-MS/MS系统Thermo Scientific Q ExactiveTM HF-X组合型四极杆OrbitrapTM质谱仪(上海百趣生物医学科技有限公司)进行非靶标代谢组检测。色谱柱型号为Waters ACQUITY UPLC BEH Amide,其具体尺寸参数为1.7 μm(粒径)×2.1 mm(内径)×100 mm(柱长),柱温为35 ℃,流速为0.4 mL/min,上机目标样品盘的温度为4 ℃,进样量为2 μL。流动相选择2种组分:A相(水相,添加1%甲酸)和B相(乙腈,添加1%甲酸)。样品的离子化检测依托电喷雾电离(ESI)实现,其中正离子模式的电压参数设为5 000 V,负离子模式的电压参数设为-4 500 V。Thermo Q Exactive HF-X型质谱仪可以在主控制软件下基于信息依赖性采集(information dependent acquisition,IDA)模式进行一级和二级质谱原始数据的采集。
数据预处理及建模分析借助SIMCA多变量统计软件(V14.1)完成,对原始数据进行对数转换与中心化格式化处理,待数据标准化后,进一步开展主成分分析(principal component analysis,PCA)建模工作;随后,所有数据在经过对数转换及单位方差标准化预处理后,分别采用偏最小二乘判别分析(partial least squares-discriminant analysis,PLS-DA)和正交偏最小二乘判别分析(orthogonal partial least squares-discriminant analysis,OPLS-DA)进行模式识别与变量筛选,并基于模型结果计算各代谢物的变量重要性投影(variable importance in projection,VIP)。差异代谢物的筛选条件为二级质谱(MS2)分值>0.3、VIP>1.0、P<0.05。将差异代谢物导入KEGG数据库进行注释,再使用在线网站MetaboAnalyst 6.0(https://www.metaboanalyst.ca/home.xhtml),选择Pathway Analysis,将注释获得的KEGG号导入网站,选择相应路径库进行分析,关键代谢通路的筛选标准参照文献[20-22]方法进行,即Impact>0.05。

1.4 Spearman相关性分析

将本试验获得的血浆差异代谢物与前期已发表的同批动物试验的生长性能[10]使用R软件(version 3.6.3)进行Spearman相关性分析,并绘制相关性聚类标记热图。

2 结果与分析

2.1 血浆代谢物的PCA

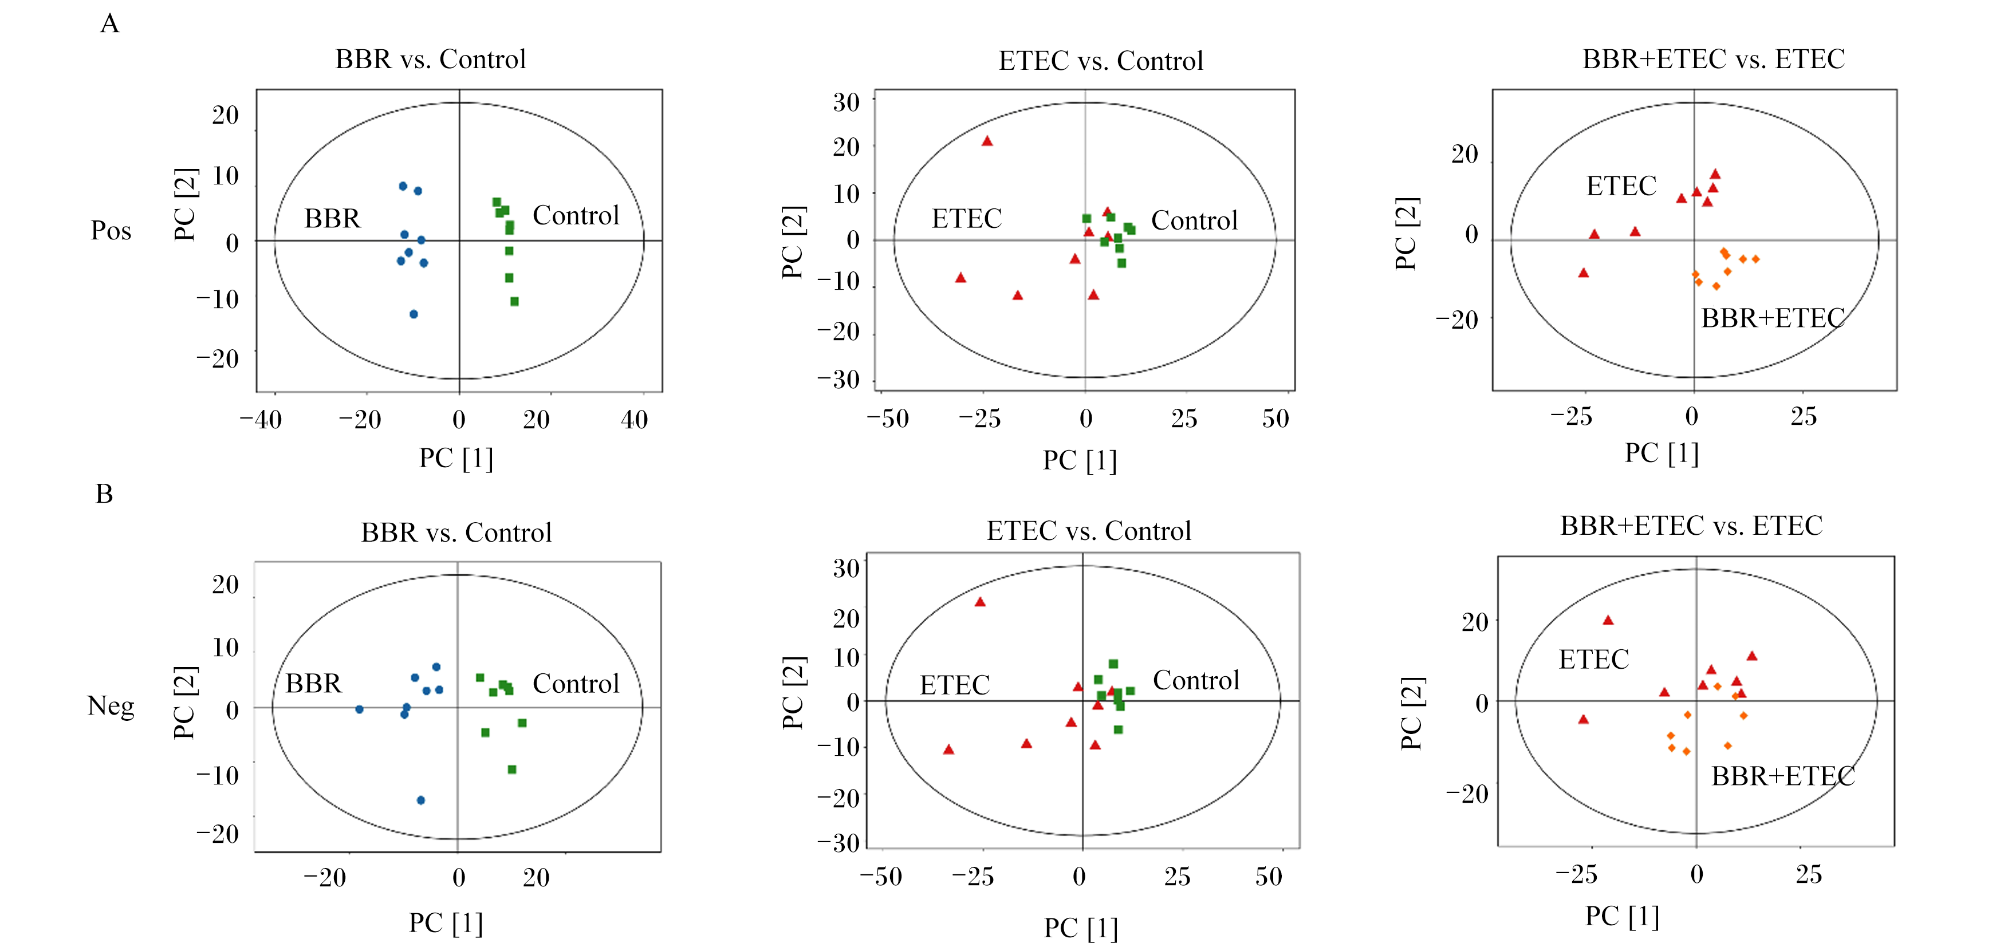
图1所示,在正、负离子条件下分析BBR组与对照组、ETEC组与对照组、BBR+ETEC组与ETEC组的代谢组学数据,结果显示,样本基本处于95%置信区间内,正离子模式下的分析结果呈现清晰分组特征:BBR组与对照组、ETEC组与对照组、BBR+ETEC组与ETEC组的样品均能实现有效区分(图1-A),且数据离散性优异,反映出各组内样本具有良好的相似性。此外,负离子模式下的分析结果与正离子模式类似(图1-B),进一步说明不同组之间的代谢物存在明显差异。
图1 血浆代谢物PCA

PC[1]:主成分1 principal component 1;PC[2]:主成分2 principal component 2。

Pos:正离子模式 positive ion mode;Neg:负离子模式 negative ion mode;BBR:BBR组 BBR group;Control:对照组 control group;ETEC:ETEC组 ETEC group;BBR+ETEC:BBR+ETEC组 BBR+ETEC group。下图同 the same as below。

Fig.1 PCA of plasma metabolites

2.2 血浆代谢物的OPLS-DA

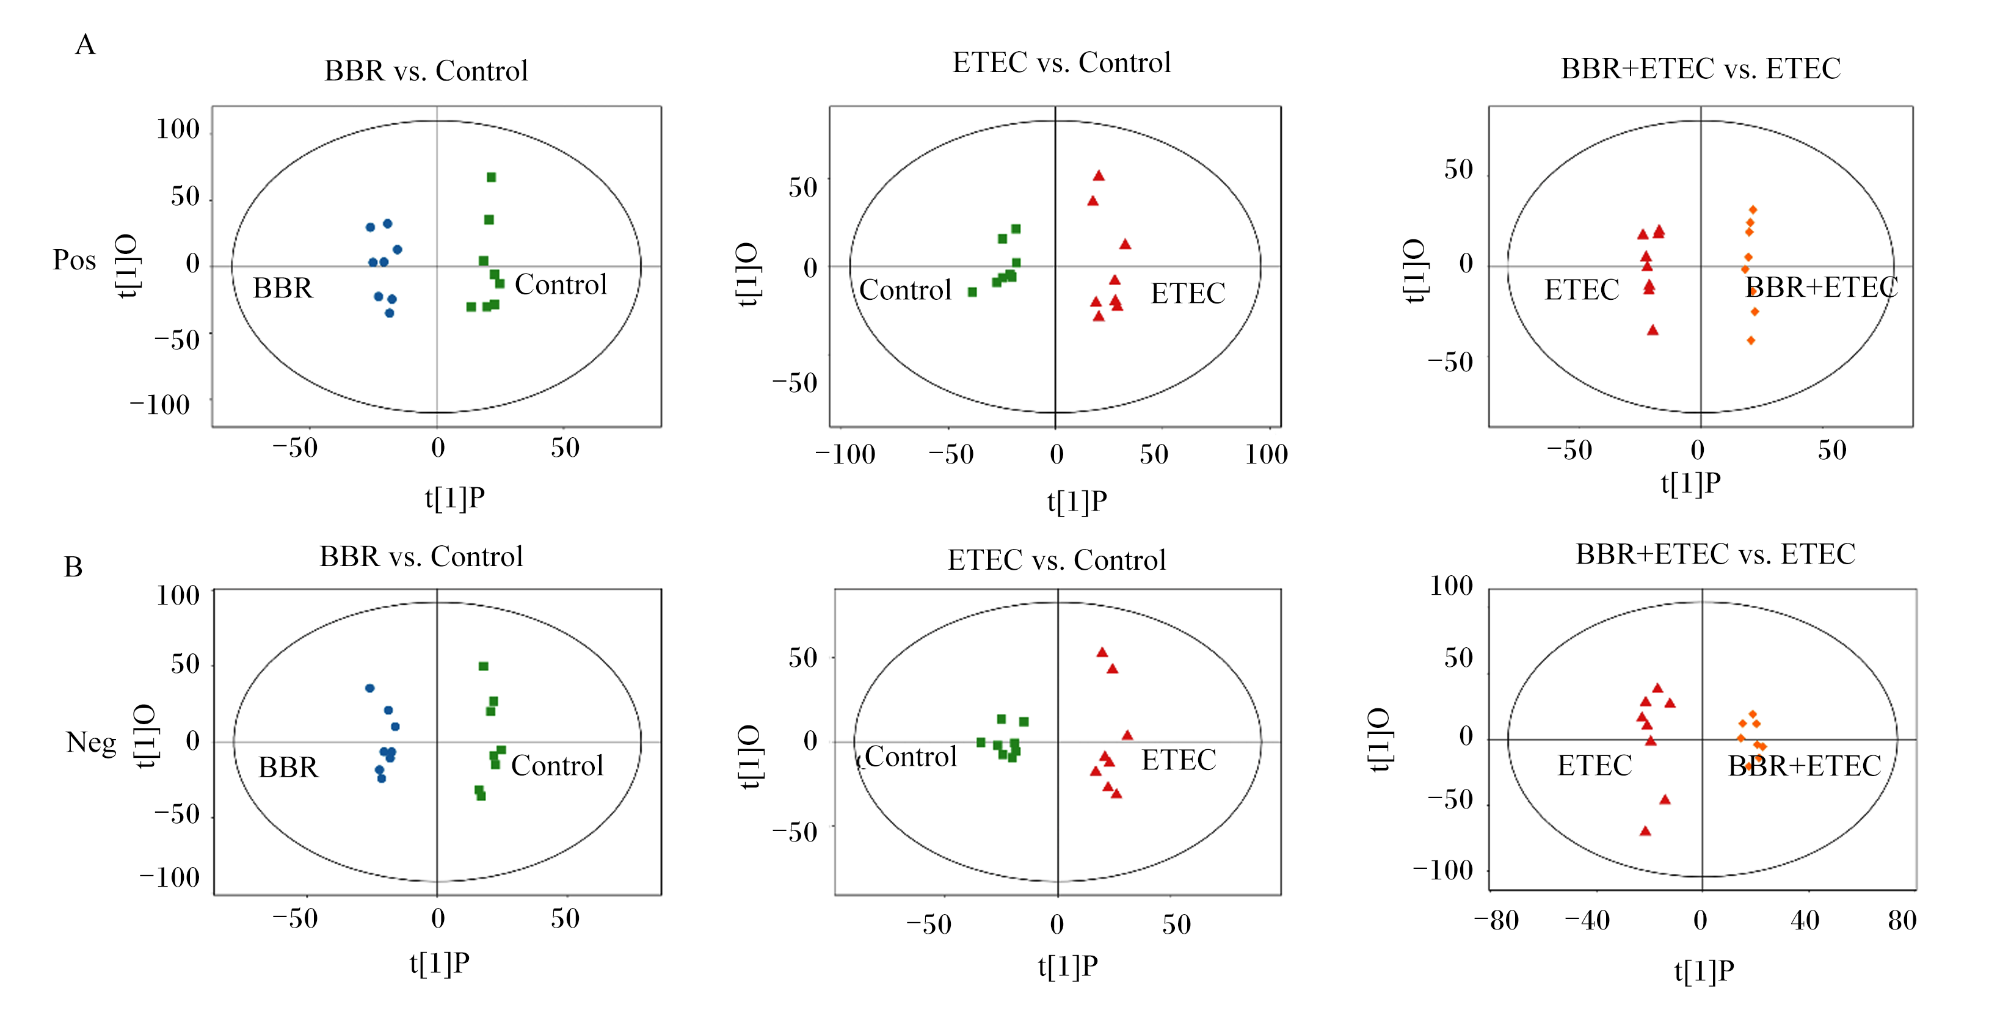
图2所示,进一步采用OPLS-DA明确组间的差异性,无论在正离子模式(图2-A)还是负离子模式(图2-B)下,BBR组与对照组、ETEC组与对照组、BBR+ETEC与ETEC组的组间主成分模式均明显分离,无任何重叠现象,表明饲粮中添加小檗碱和ETEC攻毒导致仔猪血浆形成特异性的代谢组。
图2 血浆代谢物的OPLS-DA

Fig.2 OPLS-DA of plasma metabolites

t[1]P:预测主成分 principal component prediction;t[1]O:正交主成分 principal component orthogonality。

2.3 血浆代谢物OPLS-DA模型的置换检验

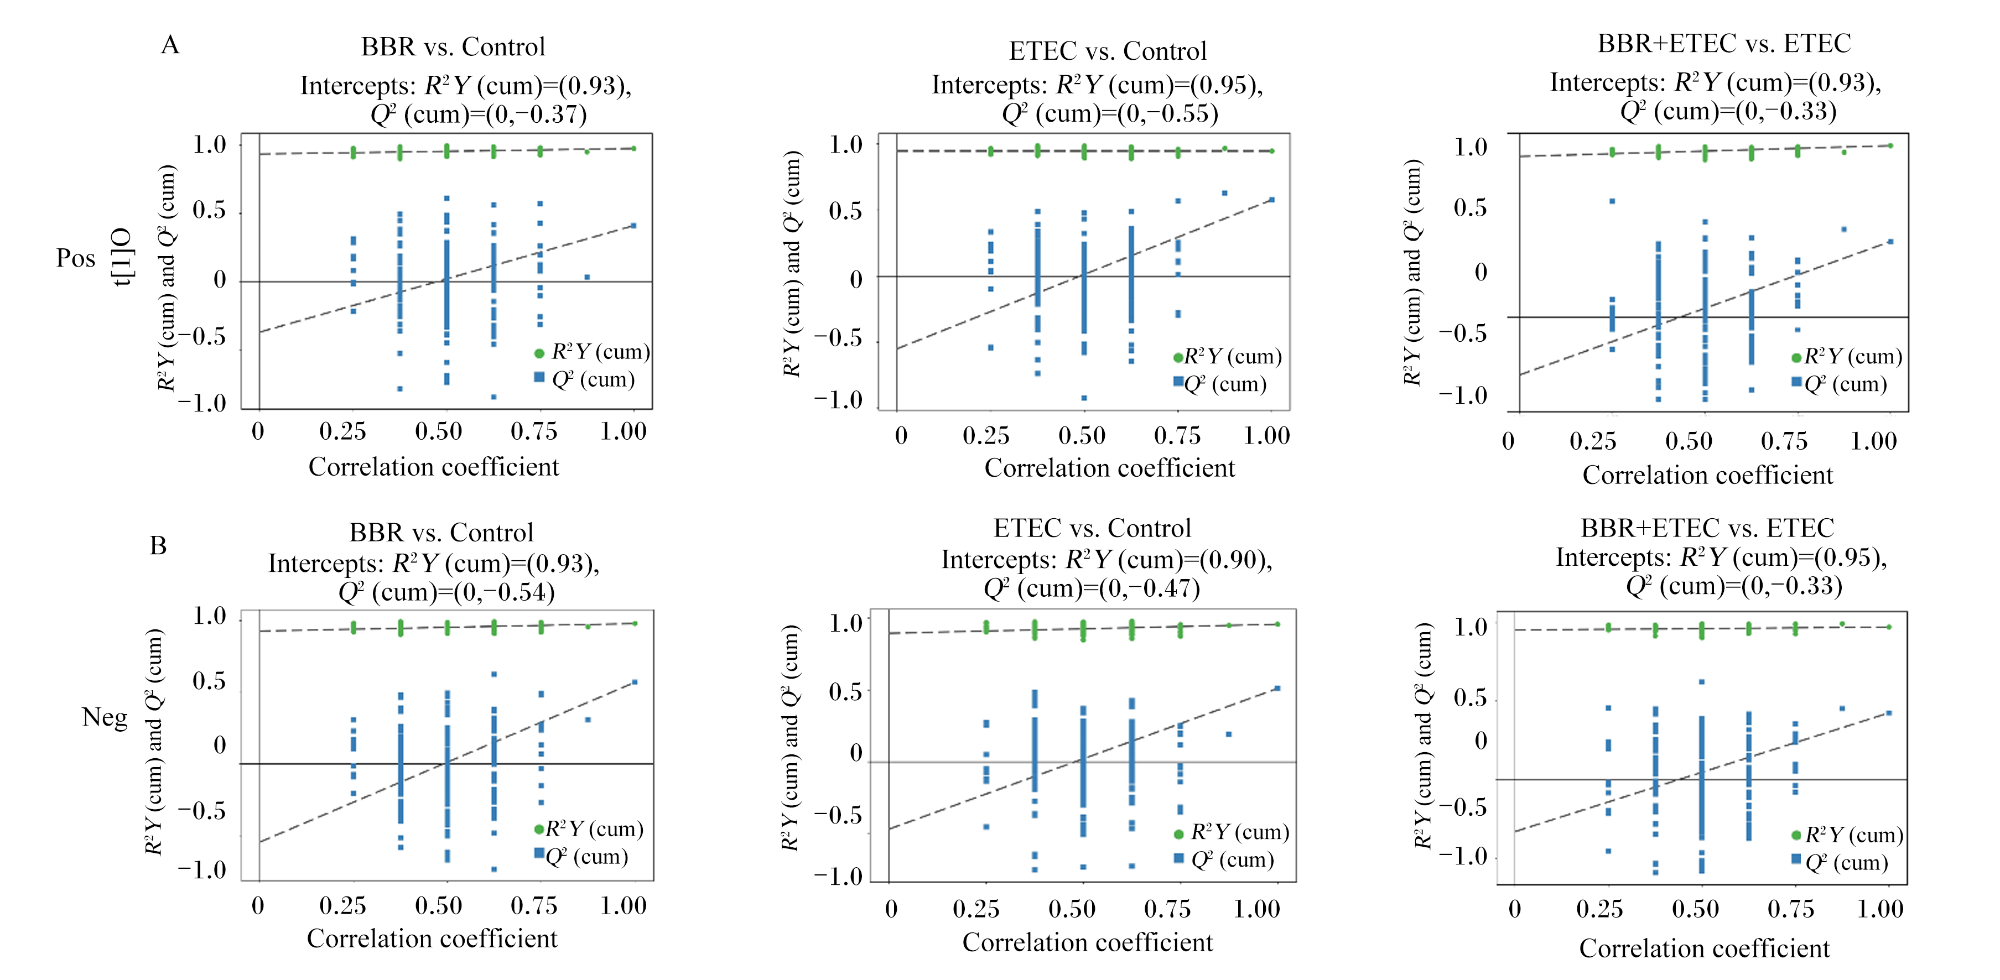
图3所示,通过分析血浆代谢物,发现在正离子模式和负离子模式下,BBR组与对照组相比,R2Y分别为0.93和0.93,表明该模型能够反映BBR组与对照组93%的差异;此外,在正离子模式和负离子模式下,ETEC组与对照组相比,R2Y分别为0.95和0.90;而在正离子模式和负离子模式下,BBR+ETEC组与ETEC组相比,R2Y分别为0.93和0.95。OPLS-DA模型的置换检验结果点状图显示,在正离子模式和负离子模式下,模型中两两比较均有良好的分离趋势。
图3 OPLS-DA模型的置换检验结果点状图

Intercepts:截距;Correlation coefficient:相关系数。

R2Y代表模型解释率,Q2代表模型预测能力。R2Y represented the model explanation rate; Q2 represented the model predictive ability.

Fig.3 Plots of permutation test results of OPLS-DA models

经模型参数的置换检验分析可知,所有血浆代谢物的R2Y均高于Q2,同时Q2Y轴的截距小于0,其中,在正离子模式下,BBR组与对照组、ETEC组与对照组、BBR+ETEC与ETEC组的Q2分别为-0.37、-0.55和-0.33;在负离子模式下,BBR组与对照组、ETEC组与对照组、BBR+ETEC与ETEC组的Q2分别为-0.54、-0.47和-0.33。根据分析结果,在3组对比中,所有样本数据均符合质量要求,未检测到过拟合问题。此外,任意2组间的测定值均呈现统计学上的显著区别,表明相应组别的血浆代谢物组成已发生显著变化。

2.4 差异代谢物分析

为筛选显著性差异代谢物,采用单变量分析中的差异倍数(fold change,FC)与t检验,联合多变量统计分析PLS-DA得到的VIP,以MS2分值>0.3、VIP>1.0,且t检验的P值<0.05为筛选条件,分别得到BBR+ETEC与ETEC组和ETEC与对照组的正离子模式和负离子模式差异代谢物分布,同时结合KEGG代谢通路分析得到各差异代谢物主要参与的代谢通路(表2表3)。
表2 BBR+ETEC组与ETEC组的差异代谢物及其主要参与的代谢通路

Table 2 Differential metabolites and their main involved metabolic pathways of BBR+ETEC group vs. ETEC group

差异代谢物
Differential
metabolites
存留时间
RT
变量投影
重要度
VIP
P
P-value
差异倍数
FC
主要参与的代谢通路
Main involved
metabolic pathways
N-苯甲酰基-L-酪氨酸乙酯
N-benzoyl-L-tyrosinate
270.382 3.222 <0.001 181.345↑
牛磺鹅去氧胆酸
Taurochenodesoxycholic acid
293.689 1.827 0.025 2.549↑ 初级胆汁酸生物合成
3-甲基尿苷
3-methyluridine
55.917 1.927 0.027 2.106↑
7-酮胆固醇
7-ketocholesterol
578.426 2.414 0.003 1.781↑
赖氨酸Lysine 31.804 1.921 0.057 1.482↑ 生物素代谢、赖氨酸降解
4-吡哆酸4-pyridoxic acid 137.187 1.522 0.063 1.360↑ 维生素B6代谢
氧化吲哚Oxindole 226.925 1.713 0.043 0.818↓
N,N-二甲基甲酰胺
N,N-dimethylformamide
639.390 1.666 0.038 0.745↓
L-精氨酸L-arginine 38.228 1.656 0.063 0.692↓ 精氨酸和脯氨酸代谢、
精氨酸生物合成
L-(-)-苯丙氨酸
L-(-)-phenylalanine
141.842 2.218 0.009 0.677↓ 苯丙氨酸代谢、苯丙氨酸、
酪氨酸和色氨酸的生物合成
乌洛托品Methenamine 453.544 1.673 0.020 0.649↓
7-(2-羟乙基)茶碱
7-(2-hydroxyethyl) theophyline
35.948 2.138 0.012 0.637↓
N-苯乙酰甘氨酸
N-phenylacetylglycine
214.161 1.244 0.066 0.626↓ 苯丙氨酸代谢
肌酸Creatine 35.108 1.656 0.051 0.521↓ 精氨酸和脯氨酸代谢
哌啶Piperidine 46.723 1.656 0.032 0.445↓

“↑”表示代谢物含量上调,“↓”表示代谢物含量下调。表3同。

“↑” indicated an upregulation of metabolite content, while “↓” indicated a downregulation of metabolite content. The same as Table 3.

表3 ETEC组与对照组的差异代谢物及其主要参与的代谢通路

Table 3 Differential metabolites and their main involved metabolic pathways of ETEC group vs. control group

差异代谢物
Differential
metabolites
存留时间
RT
变量投影
重要度
VIP
P
P-value
差异倍数
FC
主要参与的代谢通路
Main involved
metabolic pathways
L-丙氨酰-L-亮氨酸
L-alanyl-L-leucine
57.818 1.588 0.045 1.580↑
对甲苯胺O-toluidine 207.833 1.228 0.015 1.477↑
正辛胺N-octylamine 190.752 1.943 0.016 1.133↑
D-吡咯烷-2-羧酸
D-pyrrolidine-2-carboxylic acid
35.308 1.232 0.047 0.777↓
衣康酸Itaconic acid 28.199 1.267 0.040 0.773↓
1-甲基腺苷1-methyladenosine 147.539 1.287 0.031 0.771↓
胞嘧啶Cytosine 57.9996 1.268 0.037 0.745↓
D(+)-色氨酸
D(+)-tryptophan
164.352 1.417 0.047 0.717↓ 色氨酸代谢
3-吲哚丙酸
3-indolepropionic acid
183.489 1.798 0.012 0.705↓
胞苷Cytidine 57.358 1.334 0.046 0.702↓ 嘧啶代谢
D-吲哚-3-乳酸
D-indole-3-lactic acid
175.486 1.365 0.040 0.698↓
丙烯酸Acrylic acid 175.335 1.384 0.039 0.674↓
4-吡哆酸4-pyridoxic acid 137.187 1.375 0.009 0.669↓ 维生素B6代谢
DL-P-羟苯基乳酸
DL-P-hydroxyphenyl lactic acid
63.003 1.849 0.002 0.608↓
十五烷酸Pentadecanoic acid 471.204 1.445 0.022 0.572↓
赖氨酸Lysine 31.804 1.762 0.010 0.567↓ 生物素代谢
1,7-茶碱1,7-dimethylxanthine 32.214 1.391 0.008 0.553↓
L-酪氨酸L-tyrosine 32.224 1.291 0.009 0.540↓ 苯丙氨酸、酪氨酸和
色氨酸的生物合成
D-甘露糖D-mannose 33.015 1.267 0.009 0.535↓
DL-苏氨酸DL-threonine 31.949 1.640 0.007 0.530↓
1,6-脱水-D-吡喃葡萄糖
1,6-anhydro-D-glucopyranose
32.259 2.062 <0.001 0.503↓
甘氨熊去氧胆酸
Glycoursodeoxycholic acid
348.171 1.468 0.028 0.390↓
3-甲基尿苷3-methyluridine 55.917 1.615 0.018 0.386↓
萘啶酸Nalidixic acid 225.779 1.811 <0.001 0.337↓
邻羟基苯丙酸
O-hydroxyphenylpropanoic acid
153.653 2.119 0.011 0.334↓
牛磺鹅去氧胆酸
Taurochenodesoxycholic acid
293.689 2.105 0.043 0.165↓ 初级胆汁酸生物合成
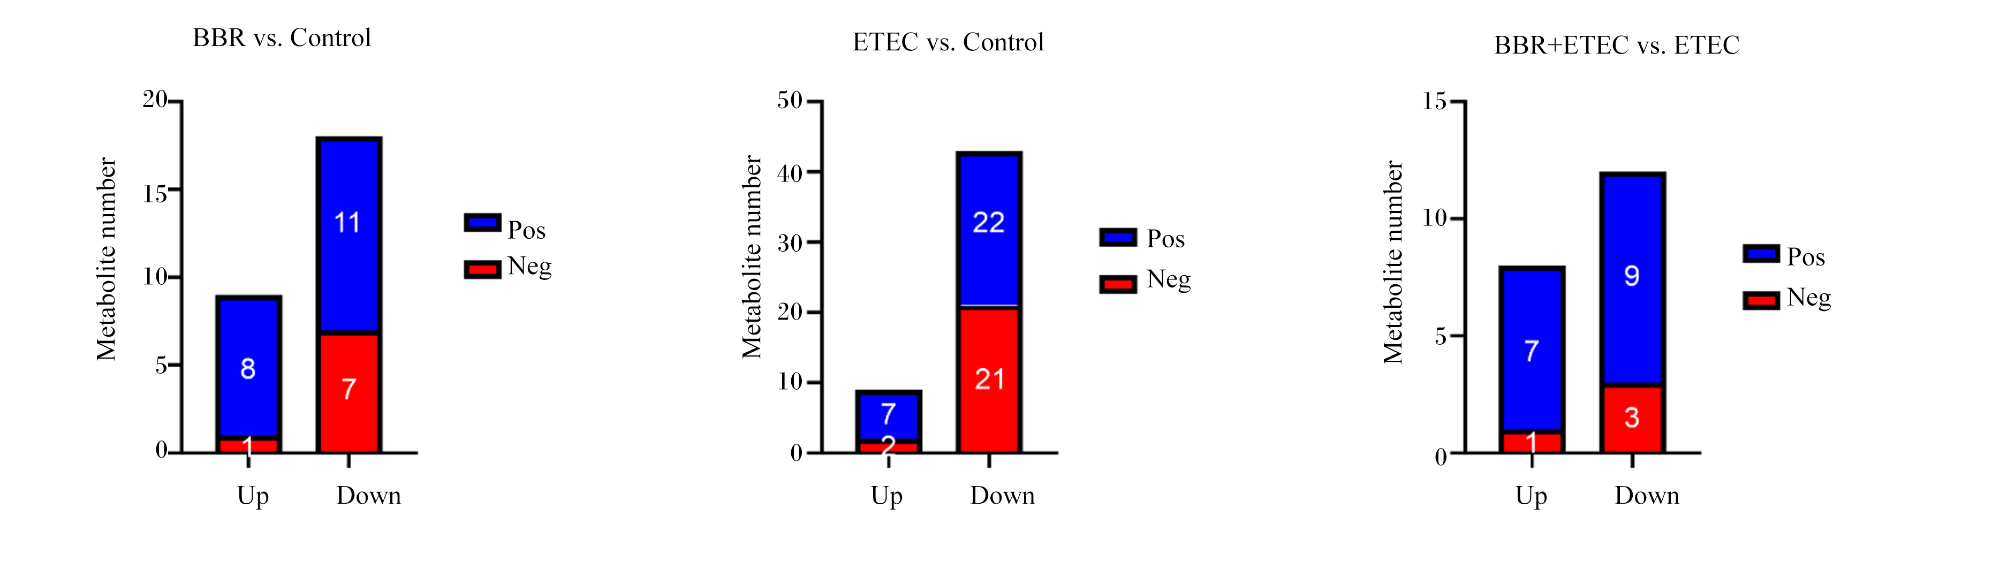
图4所示,利用柱状图对血浆差异代谢物进行可视化分析,发现正离子模式下,BBR组与对照组相比,8个差异代谢物上调,11个差异代谢物下调;ETEC组与对照组相比,7个差异代谢物上调,22个差异代谢物下调;BBR+ETEC与ETEC组相比,7个差异代谢物上调,9个差异代谢物下调。在负离子模式下,BBR组与对照组相比,1个差异代谢物上调,7个差异代谢物下调;ETEC组与对照组相比,2个差异代谢物上调,21个差异代谢物下调;BBR+ETEC与ETEC组相比,1个差异代谢物上调,3个差异代谢物下调。
图4 差异代谢物分布柱状图

Metabolite number:代谢物数量;Up:上调 up-regulated;Down:下调 down-regulated。

Fig.4 Bar charts of differential metabolites distribution

2.5 差异代谢物KEGG通路分析

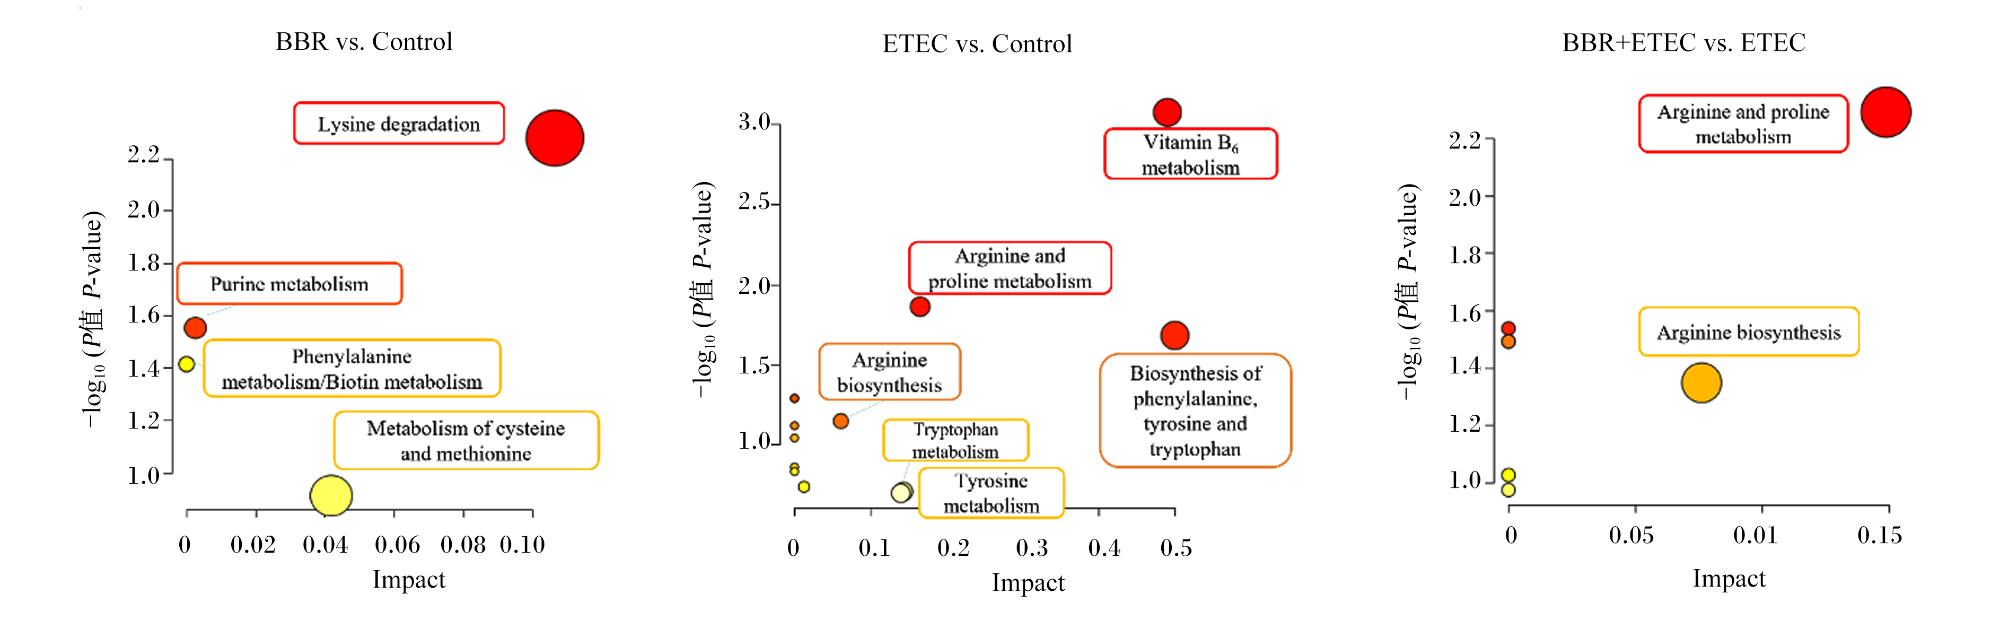
将找到的各组间差异代谢物KEGG编号,导入MetaboAnalyst 6.0网站进行分析。如图5所示,在正离子模式下,与对照组相比,BBR组主要富集的代谢通路有赖氨酸降解、嘌呤代谢、苯丙氨酸代谢、生物素代谢等;其中,Impact>0.05的通路为赖氨酸降解(P<0.05)。与对照组相比,ETEC组主要富集的代谢通路有维生素B6代谢,精氨酸和脯氨酸代谢,精氨酸生物合成,苯丙氨酸、酪氨酸和色氨酸的生物合成等;其中,Impact>0.05的通路为维生素B6代谢,精氨酸和脯氨酸代谢,苯丙氨酸、酪氨酸和色氨酸的生物合成(P<0.05)。与ETEC组相比,BBR+ETEC组主要富集的代谢通路有精氨酸和脯氨酸代谢、精氨酸生物合成等;其中,Impact>0.05的通路为精氨酸和脯氨酸代谢、精氨酸生物合成(P<0.05)。
图5 正离子模式下特征性血浆差异代谢物的代谢通路KEGG富集分析

Lysine degradation:赖氨酸降解;Purine metabolism:嘌呤代谢;Phenylalanine metabolism:苯丙氨酸代谢;Biotin metabolism:生物素代谢;Metabolism of cysteine and methionine:半胱氨酸和甲硫氨酸代谢;Vitamin B6 metabolism:维生素B6代谢;Arginine and proline metabolism:精氨酸和脯氨酸代谢;Arginine biosynthesis:精氨酸生物合成;Tryptophan metabolism:色氨酸代谢;Tyrosine metabolism:酪氨酸代谢;Biosynthesis of phenylalanine, tyrosine and tryptophan:苯丙氨酸、酪氨酸和色氨酸的生物合成。

Fig.5 KEGG enrichment analysis for metabolic pathway of characteristic plasma differential metabolites under positive ion mode

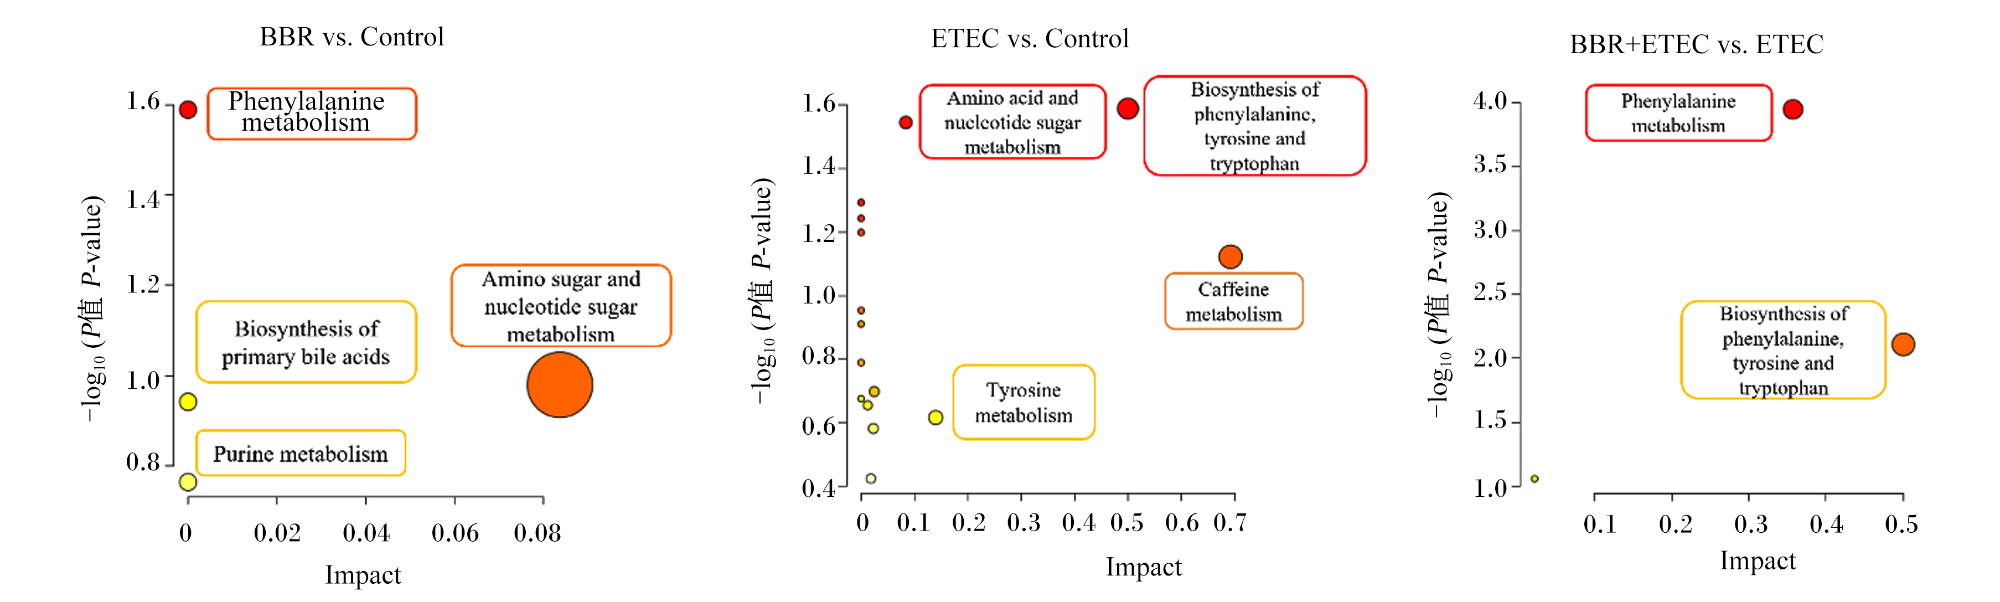
图6所示,在负离子模式下,与对照组相比,BBR组主要富集的代谢通路有苯丙氨酸代谢、氨基糖和核苷酸糖代谢、初级胆汁酸生物合成和嘌呤代谢等;其中,Impact>0.05的通路为氨基糖和核苷酸糖代谢(P<0.05)。与对照组相比,ETEC组主要富集的代谢通路有苯丙氨酸、酪氨酸和色氨酸的生物合成,氨基酸和核苷酸糖代谢,咖啡因代谢,酪氨酸代谢等;其中,Impact>0.05的通路为苯丙氨酸、酪氨酸和色氨酸的生物合成,氨基酸和核苷酸糖代谢(P<0.05)。与ETEC组相比,BBR+ETEC组主要富集的代谢通路有苯丙氨酸代谢,苯丙氨酸、酪氨酸和色氨酸的生物合成等。其中,Impact>0.05的通路为苯丙氨酸、酪氨酸和色氨酸的生物合成(P<0.05)。
图6 负离子模式下特征性血浆差异代谢物的代谢通路KEGG富集分析

Phenylalanine metabolism:苯丙氨酸代谢;Biosynthesis of primary bile acids:初级胆汁酸的生物合成;Amino sugar and nucleotide sugar metabolism:氨基糖和核苷酸糖代谢;Purine metabolism:嘌呤代谢;Biosynthesis of phenylalanine, tyrosine and tryptophan:苯丙氨酸、酪氨酸和色氨酸的生物合成;Caffeine metabolism:咖啡因代谢;Tyrosine metabolism:酪氨酸代谢。

Fig.6 KEGG enrichment analysis for metabolic pathway of characteristic plasma differential metabolites under negative ion mode

2.6 仔猪血浆差异代谢物与生长性能的Spearman相关性分析

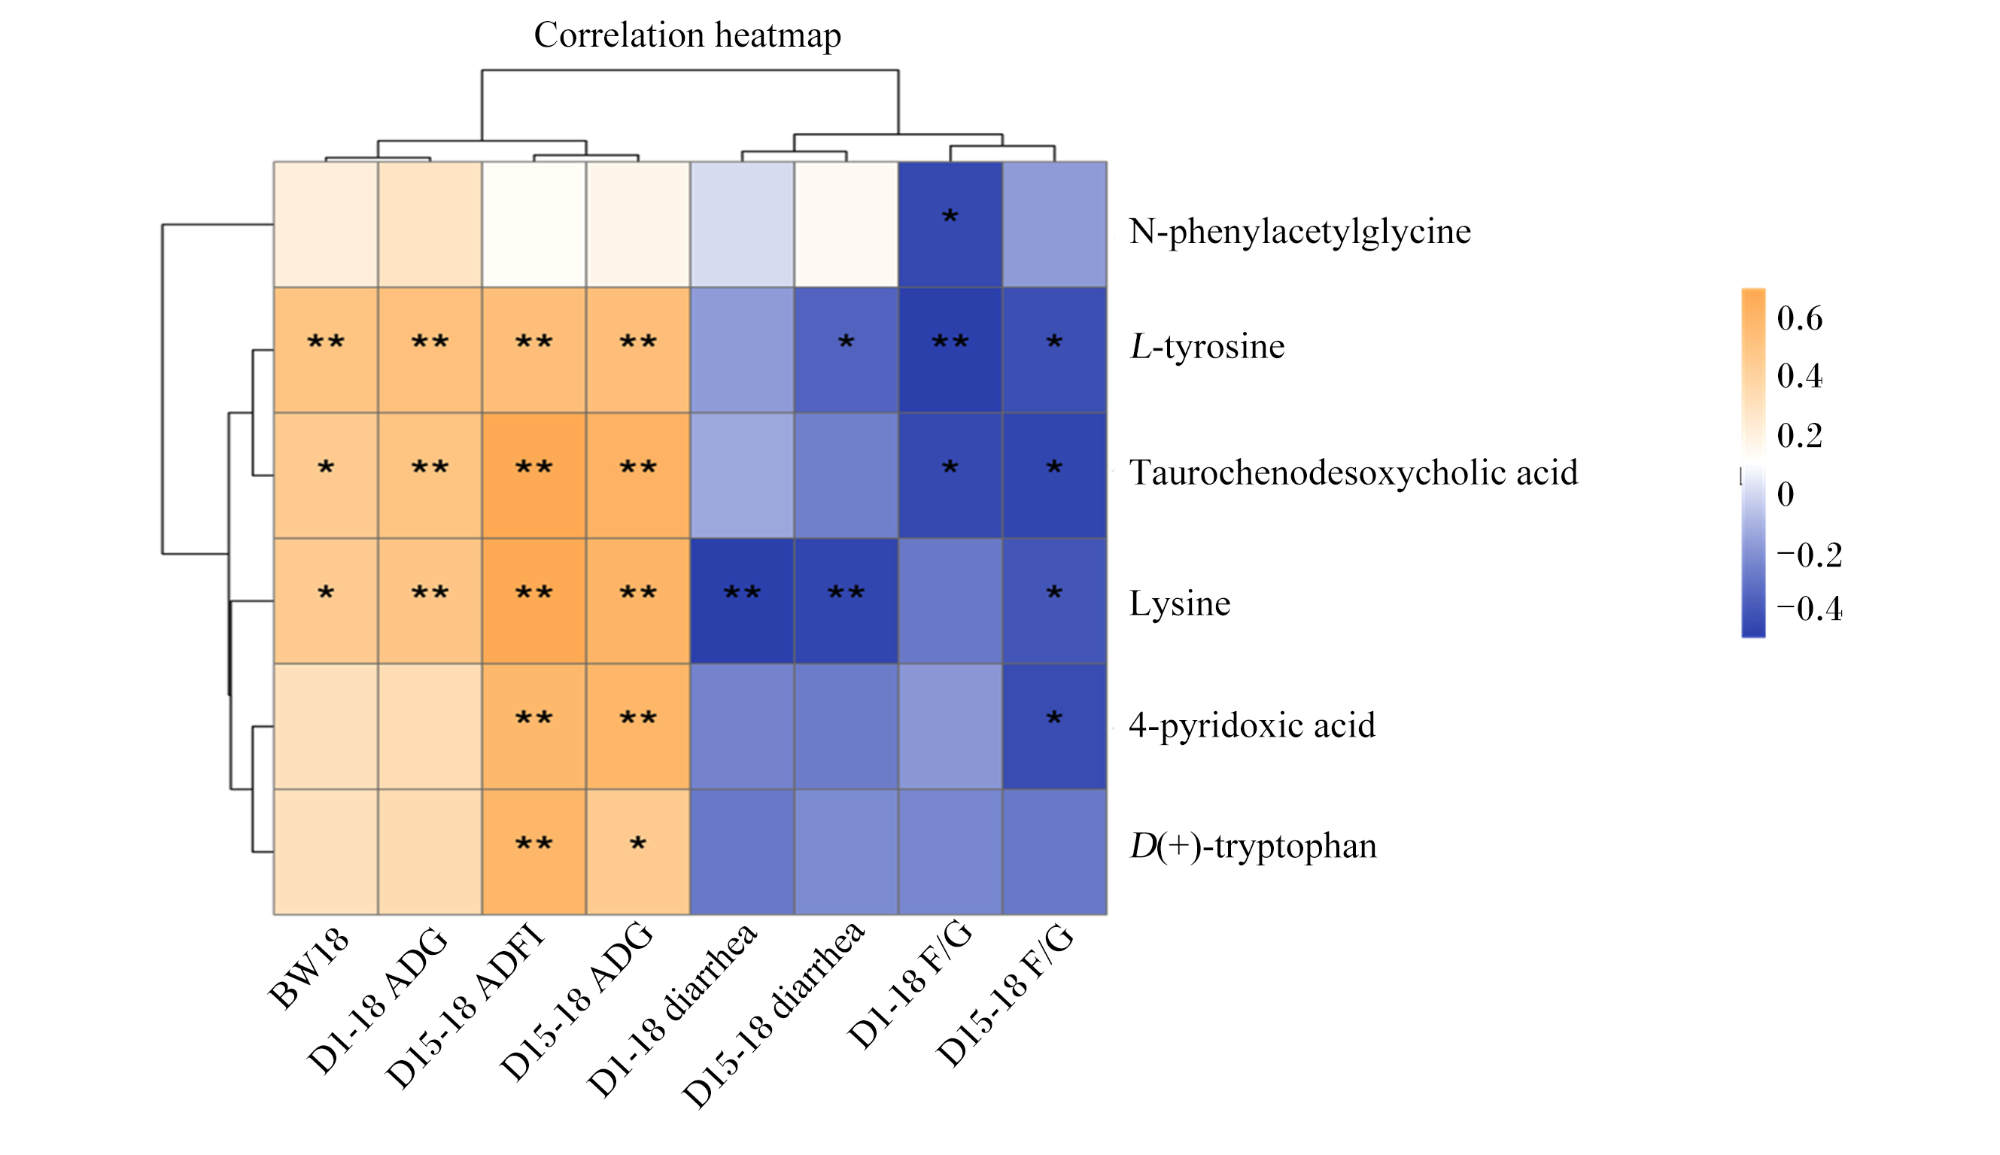
图7所示,血浆L-酪氨酸、牛磺鹅去氧胆酸和赖氨酸含量与第18天体重和第1~18天的平均日增重呈显著或极显著正相关(P<0.05或P<0.01),血浆L-酪氨酸、赖氨酸、牛磺鹅去氧胆酸、4-吡哆酸和D(+)-色氨酸含量与第15~18天平均日增重和第15~18天平均日采食量呈显著或极显著正相关(P<0.05或P<0.01)。血浆L-酪氨酸和赖氨酸含量与第15~18天腹泻率呈显著或极显著负相关(P<0.05或P<0.01),血浆N-苯乙酰甘氨酸、L-酪氨酸和牛磺鹅去氧胆酸含量与第1~18天料重比呈显著或极显著负相关(P<0.05或P<0.01),血浆L-酪氨酸、牛磺鹅去氧胆酸、赖氨酸和4-吡哆酸含量与第15~18天料重比呈显著负相关(P<0.05)。
图7 仔猪血浆差异代谢物与生长性能的Spearman相关性分析

Correlation heatmap:相关性热图;N-phenylacetylglycine:N-苯乙酰甘氨酸;L-tyrosine:L-酪氨酸;Taurochenodesoxycholic acid:牛磺鹅去氧胆酸;Lysine:赖氨酸;4-pyridoxic acid:4-吡哆酸;D(+)-tryptophan:D(+)-色氨酸;BW18:第18天体重 body weight on day 18;D1-18 ADG:第1~18天平均日增重 average daily gain during days 1 to 18;D15-18 ADFI:第15~18天平均日采食量 average daily feed intake during days 15 to 18;D15-18 ADG:第15~18天平均日增重 average daily gain during days 15 to 18;D1-18 diarrhea:第1~18天腹泻率 diarrhea rate during days 1 to 18;D15-18 diarrhea:第15~18天腹泻率 diarrhea rate during days 15 to 18;D1-18 F/G:第1~18天料重比 feed to gain ratio during days 1 to 18;D15-18 F/G:第15~18天料重比 feed to gain ratio during days 15 to 18;*:显著相关(P<0.05) significant correlation (P<0.05);**:极显著相关(P<0.01) extremely significant correlation (P<0.01)。

Fig.7 Spearman correlation analysis between plasma differential metabolites and growth performance of piglets

3 讨论

代谢组是一个生物体内所有代谢物质的动态变化,是机体受到刺激或者变量影响后,变化最直观也是最接近表型的组学,是最能反映外部环境对机体影响的一种研究方法。血浆代谢组是指血浆中所有代谢产物(如糖类、脂类、氨基酸、核苷酸等)的集合,能反映生物体的代谢状态、疾病发展机制以及药物作用等方面的信息,有助于探究基于代谢物变化的疾病诊断以及理解药物或营养物质在体内的代谢过程和作用机制,从而为营养学干预措施提供依据[23]。小檗碱具有抗氧化、调节免疫、抗炎等生理功能,还具有调节肠道菌群、改善肠道形态结构、增强机体免疫、改善ETEC引起的断奶仔猪腹泻等作用[9,11-12,24]。本课题组前期研究发现,ETEC感染显著降低了仔猪第18天体重、第15~18天和第1~18天平均日增重以及第15~18天平均日采食量,并显著提高了第15~18天和第1~18天料重比以及第15~18天腹泻率;而饲粮中添加小檗碱则显著降低了仔猪第15~18天腹泻率,同时有效改善了ETEC感染仔猪第15~18天的生长性能[10],但小檗碱对ETEC感染仔猪机体的代谢机制仍未完全清楚。因此,本研究借助LC-MS/MS系统Thermo Scientific Q ExactiveTM HF-X组合型四极杆OrbitrapTM质谱仪进行非靶标代谢组检测,分析各组仔猪血浆代谢物差异,发现饲喂小檗碱和ETEC攻毒可导致仔猪血浆代谢谱明显偏离对照组。与对照组相比,ETEC组血浆差异代谢物主要有52个,其中色氨酸、赖氨酸、吡哆酸、牛磺鹅去氧胆酸含量显著下降,脱氧胆酸含量出现下降趋势。对BBR+ETEC组与ETEC组的血浆代谢物展开对比分析,结果显示正离子模式和负离子模式下共筛选出20个显著差异代谢物,其中苯甲酰基-L-酪氨酸乙酯、赖氨酸、吡哆酸、牛磺鹅去氧胆酸含量显著提升,精氨酸、苯丙氨酸含量显著下降,苯乙酰甘氨酸含量出现下调趋势。进一步对这些差异代谢物实施KEGG代谢通路富集分析可知,其富集的通路主要包括精氨酸和脯氨酸代谢、精氨酸生物合成、苯丙氨酸代谢以及苯丙氨酸、酪氨酸和色氨酸的生物合成,特别是初级胆汁酸生物合成显著富集。通过Spearman相关性分析初步证实本试验得到仔猪的血浆差异代谢物与前期发表的生长性能[10]存在显著的相关性。
本研究发现,饲粮中添加小檗碱显著影响了ETEC感染仔猪血浆氨基酸代谢。其中,色氨酸是必需氨基酸,可被吲哚胺2,3-双加氧酶1催化降解产生L-犬尿氨酸,进而激活淋巴组织中的芳烃受体,抑制炎症并参与调节T细胞分化,与肠道微生物组成、肠道屏障功能、免疫稳态和肠道疾病的发病机制密切相关[25-28]。其过度消耗会导致全身色氨酸耗竭,影响其正常代谢功能,导致免疫功能异常[29]。多项研究证明,补充色氨酸有助于减轻肠道损伤与炎症,提升生长性能[30-32]。本研究中,ETEC感染导致仔猪体内色氨酸大量消耗,这与徐静[33]研究发现的断奶腹泻的金华仔猪血清代谢物分析中色氨酸含量显著下降的结果一致,提示色氨酸可能是ETEC致病机制和治疗靶点的关键差异物之一。此外,赖氨酸是蛋白质合成、能量代谢和脂肪酸β氧化必需的前体,其含量下降表明机体正处于高分解代谢状态[34]。本试验将BBR+ETEC组与ETEC组差异代谢物进行分析发现,仔猪血浆中苯甲酰基-L-酪氨酸乙酯、赖氨酸含量显著提升,精氨酸、苯丙氨酸含量显著下降,苯乙酰甘氨酸含量出现下调趋势。苯丙氨酸的肠道菌群代谢标志物为苯乙酰甘氨酸,该物质通过苯乙酸与甘氨酸的结合作用生成[35]。有研究发现,猪德尔塔冠状病毒(PDCoV)感染诱导的猪肠道损伤模型的代谢组中苯乙酰甘氨酸及相关菌群含量升高[36]。而本研究中,BBR+ETEC组相比于ETEC组苯乙酰甘氨酸含量出现下调趋势,苯丙氨酸含量显著下调,这说明小檗碱干预后可能抑制了产生苯乙酸的肠道菌群,这类菌群可能与肠道损伤密切相关;同时苯丙氨酸能在苯丙氨酸羟化酶的作用下转化为酪氨酸,进而用于合成多巴胺,酪氨酸也能与苯甲酸进一步结合生成N-苯甲酰-L-酪氨酸乙酯,苯丙氨酸含量的下降也会导致其菌群代谢物苯乙酰甘氨酸含量下降。有研究表明,饲喂小檗碱能促进小鼠苯丙氨酸向酪氨酸转化,导致游离苯丙氨酸含量更低,从而改善大脑多巴胺含量[37]。本研究发现,小檗碱干预后N-苯甲酰-L-酪氨酸乙酯含量极显著上调(FC高达181),其可能原因为小檗碱干扰后,能抑制有害菌的增殖,促进益生菌的增殖,同时益生菌代谢生成苯甲酸。研究发现,益生菌(如乳杆菌属、乳球菌属、地衣芽孢杆菌等)数量与苯甲酸含量正相关[38-39]。苯甲酸进一步结合酪氨酸生成N-苯甲酰-L-酪氨酸乙酯,苯甲酸蓄积有毒性,通过促进酪氨酸结合也可以降低苯甲酸毒性[40]。由此可见,小檗碱缓解ETEC感染的机制可能与苯丙氨酸-酪氨酸代谢密切相关,同时这种调节与小檗碱抑制有害菌生长,促进益生菌的增殖密切相关。研究指出,小檗碱干预后精氨酸含量显著下降,而精氨酸可以经诱导型一氧化氮合酶催化生成的一氧化氮(NO)具有直接抗菌、抑制ETEC黏附和毒素释放的作用[41]。Adefegha等[42]研究证实,口服小檗碱能降低糖尿病大鼠精氨酸酶活性以及增加NO含量。值得注意的是,Spearman相关性分析发现,血浆中的色氨酸、赖氨酸、酪氨酸等差异氨基酸含量与仔猪生长性能的改善显著正相关,赖氨酸和酪氨酸含量与仔猪ETEC感染后的腹泻率存在显著负相关。ETEC攻毒会导致仔猪体内的氨基酸代谢出现紊乱,如色氨酸与赖氨酸等关键氨基酸含量显著下降,导致蛋白质合成不足,进而影响仔猪生长性能。在饲粮中添加小檗碱能有效缓解ETEC感染仔猪机体氨基酸代谢的紊乱,可能通过调节苯丙氨酸-酪氨酸代谢和精氨酸代谢来增强仔猪的免疫应答能力,以帮助仔猪更好的抵抗ETEC感染,间接改善腹泻和生长性能,其中具体机制仍需要进一步验证,可能与菌群调节密切相关。
维生素B6是色氨酸、酪氨酸、半胱氨酸、组氨酸代谢的关键辅酶,同时与神经递质合成、免疫细胞功能等反应密切相关,缺乏维生素B6会导致相关代谢功能受阻,特别是色氨酸转化为犬尿氨酸的途径受阻[43-44]。研究表明,在断奶仔猪饲粮中添加7 mg/kg的维生素B6能改善其肠道形态结构和吸收代谢功能[45]。此外,Ouyang等[46]给热应激的1日龄爱拔益加肉鸡补充维生素B6可能通过调节肠道菌群和代谢稳态,从而改善生长性能。吡哆醛是机体维生素B6的活性辅酶形式,4-吡哆酸是其主要的尿液代谢产物。尽管本研究中ETEC感染后仔猪血浆中吡哆醛含量的变化不显著,但4-吡哆酸含量显著下降,同时Spearman相关性分析发现,血浆中4-吡哆酸含量与前期观察的试验第15~18天平均日增重和第15~18天平均日采食量呈显著或极显著正相关,而与第15~18天料重比呈显著负相关。Rim等[47]在研究ETEC感染对人类志愿者的血浆蛋白和代谢物影响的试验中发现,ETEC大量增殖会导致血浆中吡哆醛-5-磷酸含量下降,同时也显著降低了4-吡哆酸含量。这表明ETEC感染可能引起维生素B6代谢周转受阻,但是饲粮中添加小檗碱后仔猪血浆4-吡哆酸含量增加,维持和恢复维生素B6稳态,这对ETEC腹泻仔猪的氨基酸代谢和免疫功能至关重要。
胆汁酸不仅是脂质乳化剂,更是重要的信号分子,主要通过作用法尼醇X受体(Farnesoid X receptor,FXR)和G蛋白偶联胆汁酸受体5(Takeda G protein receptor 5,TGR5)等调控宿主代谢、炎症反应、肠道屏障功能及菌群组成[48-49]。初级胆汁酸经过肠道菌群代谢生成次级胆汁酸(如脱氧胆酸),初级或次级胆汁酸在肝脏中与甘氨酸、牛磺酸结合形成结合型胆汁酸(如牛磺鹅去氧胆酸)。本研究发现,ETEC感染后仔猪血浆中脱氧胆酸、牛磺鹅去氧胆酸含量显著下降,提示ETEC感染会破坏仔猪肠道黏膜和菌群结构,而肠道菌群功能紊乱及胆汁酸肠肝循环受阻[50]。同时,饲粮中添加小檗碱后,ETEC感染仔猪血浆中牛磺鹅去氧胆酸含量显著升高,这也与本课题组前期发现的小檗碱显著富集ETEC感染仔猪回肠中初级和次级胆汁酸生物合成和胆汁分泌等代谢通路的结果[10]一致。此外,本试验Spearman相关性分析显示,血浆牛磺鹅去氧胆酸含量与第18天仔体重、第1~18天平均日增重、第15~18天平均日增重和第15~18天平均日采食量呈显著或极显著正相关,而与第15~18天和第1~18天料重比呈显著或极显著负相关。因此,推测ETEC感染对仔猪胆汁酸代谢的影响可能与有害菌(如梭菌属等)分泌胆汁盐水解酶(bile salt hydrolase,BSH),导致结合型胆汁酸降解,加速游离型胆汁酸的产生,降低胆汁酸的抗菌能力有关[10-11]。研究也发现,ETEC感染会抑制7α-脱羟基菌,进而减少游离胆汁酸向次级胆汁酸转化[51]。本课题组前期研究表明,ETEC感染可抑制仔猪肝脏胆固醇7α-羟化酶活性,导致其初级胆汁酸合成减少,进一步导致结合型胆汁酸含量下调,引起肠道炎症,破坏肠道屏障功能,而小檗碱可通过调节肠-肝轴改善仔猪肠道菌群和胆汁酸代谢,促进初级胆汁酸合成,改善ETEC引起的仔猪肠道紧密连接受损,有助于维持仔猪肠道稳态[11]。Zhou等[52]在饲粮中添加胆汁酸,发现其能有效改善生长育肥猪的平均日增重、抗氧化能力和养分消化率。许多研究还证实小檗碱也能抑制肠道菌群对结合型胆汁酸的水解,抑制有害菌的BSH活性[11,53-54]。由此可见,小檗碱可通过抑制肠道菌群的BSH活性、促进初级胆汁酸合成上调结合型胆汁酸含量,推测小檗碱可能通过调整结合型胆汁酸比例来间接抑制病原菌的生长,促进有益菌的定植,改善肠道健康和促进仔猪生长。本研究揭示了牛磺鹅去氧胆酸可能是ETEC感染的关键损伤标志物和小檗碱的核心修复靶点。

4 结论

本研究应用非靶标代谢组学发现,小檗碱可以缓解ETEC感染导致的仔猪机体代谢紊乱,这可能通过调节苯丙氨酸-酪氨酸代谢、精氨酸代谢、维生素B6代谢和胆汁酸代谢等通路来增强仔猪的免疫应答能力,这可能通过改善肠道菌群来间接实现,从而缓解仔猪ETEC腹泻和促进仔猪生长。牛磺鹅去氧胆酸可能是ETEC感染的关键损伤标志物和小檗碱的核心修复靶点。本研究结果将为小檗碱在养猪生产中的合理应用以及寻找缓解ETEC腹泻仔猪的有效营养调控措施的潜在生物标记物提供科学依据。
[1]
江伟伟, 阎力君. 防治仔猪大肠杆菌性腹泻的研究进展[J]. 特产研究, 2025, 47(3):191-196.

JIANG W W, YAN L J. Progress on the prevention and treatment of Escherichia coli induced diarrhea in piglets[J]. Special Wild Economic Animal and Plant Research, 2025, 47(3):191-196. (in Chinese)

[2]
吴文文, 丁雪燕, 洪天旗, 等. 猪源产肠毒素性大肠杆菌主要毒力因子研究进展[J]. 中国兽医学报, 2019, 39(7):1403-1409.

WU W W, DING X Y, HONG T Q, et al. Research progress on the main virulence factors of enterotoxin-producing Escherichia coli from pigs[J]. Chinese Journal of Veterinary Science, 2019, 39(7):1403-1409. (in Chinese)

[3]
袁万哲, 何孔旺, 陆承平, 等. 产肠毒素性大肠杆菌主要毒力因子的研究进展[J]. 动物医学进展, 2005, 26(2):6-9.

YUAN W Z, HE K W, LU C P, et al. Progress of study on major virulence factors in enterotoxigenic Escherichia coli[J]. Progress in Veterinary Medicine, 2005, 26(2):6-9. (in Chinese)

[4]
ZHOU C L, LIU Z Z, JIANG J C, et al. Differential gene expression profiling of porcine epithelial cells infected with three enterotoxigenic Escherichia coli strains[J]. BMC Genomics, 2012, 13(1):330.

DOI

[5]
ZHU C, LV Y T, YANG J, et al. Proteomic alteration of porcine intestinal epithelial cells after pretreatment with Lactobacillus plantarum followed by infection with enterotoxigenic Escherichia coli F4[J]. Veterinary Immunology and Immunopathology, 2020, 222:109943.

DOI

[6]
刘娟. 中草药饲料添加剂防治仔猪腹泻的应用[J]. 现代畜牧科技, 2024, 52(9):108-110.

LIU J. Application of Chinese herbal feed additives to control piglet diarrhea[J]. Modern Animal Husbandry Science & Technology, 2024, 52(9):108-110. (in Chinese)

[7]
张弛. 苦参碱对ConA诱导的小鼠自身免疫性肝炎的保护作用及机制研究[D]. 硕士学位论文. 赣州: 赣南医科大学, 2024.

ZHANG C. Study on the protective effects and mechanism of matrine against ConA-induced autoimmune hepatitis in mice[D]. Master’s Thesis. Ganzhou: Gannan Medical University, 2024. (in Chinese)

[8]
王其龙, 杨景森, 黄凯勇, 等. 小檗碱调控动物肠道菌群稳态的研究进展[J]. 中国畜牧杂志, 2022, 58(2):23-26,31.

WANG Q L, YANG J S, HUANG K Y, et al. Research progress on berberine regulating homeostasis of gut microbiota in animals[J]. Chinese Journal of Animal Science, 2022, 58(2):23-26,31. (in Chinese)

[9]
袁书林, 刘明, 王岩, 等. 小檗碱对断奶仔猪生长性能、腹泻、抗氧化指标和肠道生态的影响[J]. 饲料研究, 2022, 45(23):32-36.

YUAN S L, LIU M, WANG Y, et al. Effect of berberine on growth performance,diarrhea,antioxidant index and intestinal microbiota of weaned piglets[J]. Feed Research, 2022, 45(23):32-36. (in Chinese)

[10]
ZHU C, LE M F, HE Z T, et al. Dietary berberine supplementation improves growth performance and alleviates gut injury in weaned piglets by modulating ileal microbiota and metabolites[J]. Food & Function, 2023, 14(9):4143-4162.

[11]
NIE X Y, LU Q, YIN Y C, et al. Microbiome and metabolome analyses reveal significant alterations of gut microbiota and bile acid metabolism in ETEC-challenged weaned piglets by dietary berberine supplementation[J]. Frontiers in Microbiology, 2024, 15:1428287.

DOI

[12]
陈坡, 曹进, 李梦怡, 等. 食品产地溯源技术及结合化学计量学应用进展[J]. 食品安全质量检测学报, 2023, 14(22):116-125.

CHEN P, CAO J, LI M Y, et al. Progress in traceability technology of food origin and its application in combination with chemometrics[J]. Journal of Food Safety and Quality, 2023, 14(22):116-125. (in Chinese)

[13]
CHEN Y, JI H, GUO J R, et al. Non-targeted metabolomics analysis based on LC-MS to assess the effects of different cold exposure times on piglets[J]. Frontiers in Physiology, 2022, 13:853995.

DOI

[14]
GENG Y C, LI L, YUAN X F, et al. Differences in the composition of plasma metabolites and intestinal flora of piglets with different weaning weights revealed by untargeted metabolomics and 16S rRNA gene sequencing[J]. Journal of the Science of Food and Agriculture, 2025, 105(6):3252-3263.

DOI PMID

[15]
SOLBERG R, KULIGOWSKI J, PANKRATOV L, et al. Changes of the plasma metabolome of newly born piglets subjected to postnatal hypoxia and resuscitation with air[J]. Pediatric Research, 2016, 80(2):284-292.

DOI PMID

[16]
CHEN Y M, YEH C A, LIN W H, et al. Dynamic alterations of the intestinal microbiome and metabolome during transmissible gastroenteritis virus infection in weaned pigs[J]. Microbial Pathogenesis, 2025, 206:107705.

DOI

[17]
NRC. Nutrient requirements of swine[S]. 11th ed. Washington,D.C.: National Academies Press, 2012.

[18]
中华人民共和国国家市场监督管理总局,中国国家标准化管理委员会. 饲料中粗蛋白的测定凯氏定氮法:GB/T 6432—2018[S]. 北京: 中国标准出版社, 2018.

State Administration for Market Regulation,National Standardization Administration. Determination of crude protein in feeds-Kjeldahl method:GB/T 6432—2018[S]. Beijing: Standards Press of China, 2018. (in Chinese)

[19]
熊本海, 罗清尧, 周正奎, 等. 中国饲料成分及营养价值表(2018年第29版)制订说明[J]. 中国饲料, 2018(21):63-73.

XIONG B H, LUO Q Y, ZHOU Z K, et al. Introduction of tables of feed composition and nutritive values in China (2018 twenty-ninth edition)[J]. China Feed, 2018(21):63-73. (in Chinese)

[20]
张俊, 葛亚文, 周霄颖, 等. 基于非靶向代谢组学的儿童川崎病血浆生物标志物筛选研究[J]. 中南药学, 2023, 21(7):1726-1732.

ZHANG J, GE Y W, ZHOU X Y, et al. Plasma biomarker screening in pediatric Kawasaki disease based on non-target metabolomics[J]. Central South Pharmacy, 2023, 21(7):1726-1732. (in Chinese)

[21]
张鹏, 许煜迪, 周萍, 等. 基于血浆代谢组学研究制何首乌改善小鼠肾虚的作用机制[J]. 药学学报, 2023, 58(6):1464-1474.

ZHANG P, XU Y D, ZHOU P, et al. Effect and mechanism investigation on improving kidney deficient in mice of Polygoni multiflori Radix praeparata based on plasma metabolomics[J]. Acta Pharmaceutica Sinica, 2023, 58(6):1464-1474. (in Chinese)

[22]
孔维怡, 王菲菲, 岳康, 等. 基于UPLC-MS/MS代谢组学技术分析归芪益母口服液对产后奶牛血浆代谢物的影响[J]. 中国畜牧兽医, 2023, 50(3):913-923.

DOI

KONG W Y, WANG F F, YUE K, et al. Effect of Guiqi Yimu oral liquid on plasma metabolites in postpartum dairy cows based on UPLC-MS/MS metabolomics technology[J]. China Animal Husbandry & Veterinary Medicine, 2023, 50(3):913-923. (in Chinese)

[23]
王建文, 姚新奎, 曾亚琦, 等. 不同比赛途程伊犁马赛后血浆代谢组分析[J]. 动物营养学报, 2023, 35(6):3832-3842.

DOI

WANG J W, YAO X K, ZENG Y Q, et al. Plasma metabolomics analysis of Yili horses at different race distances after racing[J]. Chinese Journal of Animal Nutrition, 2023, 35(6):3832-3842. (in Chinese)

[24]
RADIN T, BASHTANI M, AFSHIN M, et al. Dietary berberine supplementation improves growth performance,liver-related blood parameters,and antioxidative status of fattening lambs[J]. Animal Feed Science and Technology, 2025, 328:116443.

DOI

[25]
SCOTT S A, FU J J, CHANG P V. Microbial tryptophan metabolites regulate gut barrier function via the aryl hydrocarbon receptor[J]. Proceedings of the National Academy of Sciences of the United States of America, 2020, 117(32):19376-19387.

DOI PMID

[26]
ZELANTE T, IANNITTI R G, CUNHA C, et al. Tryptophan catabolites from microbiota engage aryl hydrocarbon receptor and balance mucosal reactivity via interleukin-22[J]. Immunity, 2013, 39(2):372-385.

DOI PMID

[27]
LIU B N, YU D M, SUN J, et al. Characterizing the influence of gut microbiota on host tryptophan metabolism with germ-free pigs[J]. Animal Nutrition, 2022, 11:190-200.

DOI PMID

[28]
HU Z G, FENG L Y, JIANG Q, et al. Intestinal tryptophan metabolism in disease prevention and swine production[J]. Animal Nutrition, 2023, 15:364-374.

DOI PMID

[29]
BASSON C, SEREM J C, HLOPHE Y N, et al. The tryptophan-kynurenine pathway in immunomodulation and cancer metastasis[J]. Cancer Medicine, 2023, 12(18):18691-18701.

DOI

[30]
GU K, LIU G M, WU C M, et al. Tryptophan improves porcine intestinal epithelial cell restitution through the CaSR/Rac1/PLC-γ1 signaling pathway[J]. Food & Function, 2021, 12(18):8787-8799.

[31]
TAO J Y, LIU G M, GU K, et al. Tryptophan alleviates intestinal damage through regulating necroptosis and TLR4/NOD signaling pathways in pigs after lipopolysaccharide challenge[J]. Animal Biotechnology, 2023, 34(9):4938-4946.

DOI

[32]
ALVES DA CUNHA VALINI G, RIGHETTI ARNAUT P, FRANÇA I, et al. Increased dietary Trp,Thr,and MET supplementation improves growth performance and protein deposition of salmonella-challenged growing pigs under poor housing conditions[J]. Journal of Animal Science, 2023, 101:skad141.

DOI

[33]
徐静. 早期断奶腹泻金华仔猪肠道微生物与血清代谢物关联性分析研究[D]. 硕士学位论文. 武汉: 华中农业大学, 2024.

XU J. Study on the correlation analysis between gut microbiota and serum metabolites in early weaned diarrhea Jinhua piglets[D]. Master’s Thesis. Wuhan: Huazhong Agricultural University, 2024. (in Chinese)

[34]
PASINI E, AQUILANI R, DIOGUARDI F S, et al. Hypercatabolic syndrome:molecular basis and effects of nutritional supplements with amino acids[J]. American Journal of Cardiology, 2008, 101(11):S11-S15.

[35]
FENG R, TIAN Z Y, MAO R, et al. Gut microbiome-generated phenylacetylglutamine from dietary protein is associated with Crohn’s disease and exacerbates colitis in mouse model possibly via platelet activation[J]. Journal of Crohn’s & Colitis, 2023, 17(11):1833-1846.

[36]
SHI Y, LI B Q, CHENG J H, et al. Microbial community and metabolome analysis of the porcine intestinal damage model induced by the IPEC-J2 cell culture-adapted porcine deltacoronavirus (PDCoV) infection[J]. Microorganisms, 2024, 12(5):874.

DOI

[37]
WANG Y, TONG Q, MA S R, et al. Oral berberine improves brain dopa/dopamine levels to ameliorate Parkinson’s disease by regulating gut microbiota[J]. Signal Transduction and Targeted Therapy, 2021, 6(1):77.

DOI

[38]
DA SILVA C A, BENTIN L A T, DIAS C P, et al. Impact of zinc oxide,benzoic acid and probiotics on the performance and cecal microbiota of piglets[J]. Animal Microbiome, 2021, 3(1):86.

DOI

[39]
GARMIENE G, SALOMSKIENE J, JASUTIENE I, et al. Production of benzoic acid by lactic acid bacteria from Lactobacillus,Lactococcus and Streptococcus genera in milk[J]. Milchwissenschaft, 2010, 65(3):295-298.

[40]
叶研, 胡丽, 蔡卫红, 等. 苯甲酸对人群健康影响的研究进展[J]. 环境卫生学杂志, 2016, 6(6):451-456.

YE Y, HU L, CAI W H, et al. Research progress on effect of benzoic acid to human health[J]. Journal of Environmental Hygiene, 2016, 6(6):451-456. (in Chinese)

[41]
ESTES BRIGHT L M, CHUG M K, THOMPSON S, et al. Analysis of the broad-spectrum potential of nitric oxide for antibacterial activity against clinically isolated drug-resistant bacteria[J]. Journal of Biomedical Materials Research Part B:Applied Biomaterials, 2024, 112(7):e35442.

DOI

[42]
ADEFEGHA S A, DADA F A, OYELEYE S I, et al. Effect of oral berberine administration on the renal profiles of adenosine deaminase,arginase,and nitric oxide in streptozotocin-induced diabetic nephropathy of rats[J]. Comparative Clinical Pathology, 2022, 31(2):255-263.

DOI

[43]
HA C, MILLER L T, KERKVLIET N I. The effect of vitamin B6 deficiency on cytotoxic immune responses of T cells,antibodies,and natural killer cells,and phagocytosis by macrophages[J]. Cellular Immunology, 1984, 85(2):318-329.

DOI

[44]
RIOS-AVILA L, NIJHOUT H F, REED M C, et al. A mathematical model of tryptophan metabolism via the kynurenine pathway provides insights into the effects of vitamin B6 deficiency,tryptophan loading,and induction of tryptophan 2,3-dioxygenase on tryptophan metabolites[J]. The Journal of Nutrition, 2013, 143(9):1509-1519.

DOI

[45]
LI J, YIN L M, WANG L, et al. Effects of vitamin B6 on growth,diarrhea rate,intestinal morphology, function, and inflammatory factors expression in a high-protein diet fed to weaned piglets[J]. Journal of Animal Science, 2019, 97(12):4865-4874.

DOI

[46]
OUYANG J X, ZHANG C, DENG C X, et al. Dietary vitamin B6 supplementation alleviates heat stress-induced intestinal barrier impairment by regulating the gut microbiota and metabolites in broilers[J]. Poultry Science, 2024, 103(11):104202.

DOI

[47]
RIM S, VEDØY O B, BRØNSTAD I, et al. Inflammation,the kynurenines,and mucosal injury during human experimental enterotoxigenic Escherichia coli infection[J]. Medical Microbiology and Immunology, 2024, 213(1):2.

DOI

[48]
CHEN Z H, CHEN H J, HUANG W W, et al. Bacteroides fragilis alleviates necrotizing enterocolitis through restoring bile acid metabolism balance using bile salt hydrolase and inhibiting FXR-NLRP3 signaling pathway[J]. Gut Microbes, 2024, 16(1):2379566.

DOI

[49]
LIN X L, XIA L, ZHOU Y J, et al. Crosstalk between bile acids and intestinal epithelium:multidimensional roles of Farnesoid X receptor and Takeda G protein receptor 5[J]. International Journal of Molecular Sciences, 2025, 26(9):4240.

DOI

[50]
PENG S S, LI Y J, CHEN Q H, et al. Intestinal and mucosal microbiome response to oral challenge of enterotoxigenic Escherichia coli in weaned pigs[J]. Pathogens, 2022, 11(2):160.

DOI

[51]
MULLISH B H, ALLEGRETTI J R. The contribution of bile acid metabolism to the pathogenesis of Clostridioides difficile infection[J]. Therapeutic Advances in Gastroenterology, 2021, 14:17562848211017725.

DOI

[52]
ZHOU P, YAN H L, ZHANG Y, et al. Growth performance,bile acid profile,fecal microbiome and serum metabolomics of growing-finishing pigs fed diets with bile acids supplementation[J]. Journal of Animal Science, 2023, 101:skad393.

DOI

[53]
WOLF P G, DEVENDRAN S, DODEN H L, et al. Berberine alters gut microbial function through modulation of bile acids[J]. BMC Microbiology, 2021, 21(1):24.

DOI PMID

[54]
TIAN Y, CAI J W, GUI W, et al. Berberine directly affects the gut microbiota to promote intestinal Farnesoid X receptor activation[J]. Drug Metabolism and Disposition, 2019, 47(2):86-93.

DOI PMID

文章导航

/