综述

膳食纤维、肠道微生物与动物健康关系的研究进展

  • 陈鹏 , 1 ,
  • 张春华 2 ,
  • 金鹿 2 ,
  • 孙海洲 , 1, 2, *
展开
  • 1 内蒙古农业大学动物科学学院, 呼和浩特 010018
  • 2 内蒙古自治区农牧业科学院, 内蒙古自治区草食动物营养科学重点实验室, 农业农村部草食家畜健康养殖与畜产品品质调控重点室(部省共建), 呼和浩特 010031
*孙海洲,研究员,博士生导师,E-mail:

陈 鹏(1999—),男,山东日照人,博士研究生,从事动物营养与饲料科学研究。E-mail:

Office editor: 菅景颖

收稿日期: 2025-10-14

  网络出版日期: 2026-04-14

基金资助

国家重点研发计划(2022YFD1301102)

“英才兴蒙”工程二层次团队(2025TEL18)

国家草业技术创新中心(筹)重大创新平台建设专项(CCPTZX2023B06)

国家绒毛用羊产业技术体系(CARS-39-11)

内蒙古自治区草食动物营养科学重点实验室匹配资金项目(2025KYPT0080)

内蒙古自治区草食动物营养科学重点实验室匹配资金项目(2025KYPT0082)

农业农村部草食家畜健康养殖与畜产品品质调控重点室(部省共建)匹配资金项目(2023CXJJM08)

Research Progress on Relationships between Dietary Fiber, Gut Microbiota and Animal Health

  • CHEN Peng , 1 ,
  • ZHANG Chunhua 2 ,
  • JIN Lu 2 ,
  • SUN Haizhou , 1, 2, *
Expand
  • 1 College of Animal Science, Inner Mongolia Agricultural University, Hohhot 010018, China
  • 2 Key Laboratory of Healthy Herbivorous Animal Breeding and Animal Product Quality Control of Ministry of Agriculture and Rural Areas (Jointly Built by the Ministry of Agriculture and Rural Areas), Inner Mongolia Key Laboratory of Herbivorous Animal Nutrition Science, Inner Mongolia Academy of Agriculture and Animal Husbandry Sciences, Hohhot 010031, China
*professor, E-mail:

Received date: 2025-10-14

  Online published: 2026-04-14

摘要

肠道微生物在动物消化吸收、免疫调控及代谢稳态中发挥关键作用,与宿主形成深度共生关系,其代谢产物可影响远端器官功能。膳食纤维作为不能被宿主消化酶降解但可被肠道微生物利用的复合碳水化合物,其生物学功能依赖于与肠道微生物的互作。膳食纤维经肠道微生物发酵产生的短链脂肪酸等代谢产物,通过调控肠上皮屏障功能、免疫反应及代谢通路,影响宿主的肠道健康、机体代谢、繁殖发育及衰老过程;同时,动物宿主的消化能力与免疫状态也影响膳食纤维的利用效率及肠道微生物结构。动态共生网络的失衡,如膳食纤维不足或肠道菌群失调,可导致动物宿主代谢紊乱、炎症反应及多种疾病的发生。本文系统阐述了膳食纤维、肠道微生物与动物宿主之间通过“底物供给-代谢调控-环境适应”机制形成的动态共生网络,并深入解析膳食纤维-肠道微生物-动物宿主三者间的复杂互作路径,旨在为动物营养调控与肠道健康管理提供理论依据。

本文引用格式

陈鹏 , 张春华 , 金鹿 , 孙海洲 . 膳食纤维、肠道微生物与动物健康关系的研究进展[J]. 动物营养学报, 2026 , 38(4) : 2401 -2415 . DOI: 10.12418/CJAN2026.192

Abstract

Gut microbiota plays a crucial role in animal digestion and absorption, immune regulation, and metabolic homeostasis, forming a deep symbiotic relationship with the host. Their metabolic products can affect the function of distant organs. Dietary fiber, as a complex carbohydrate that cannot be degraded by the host’s digestive enzymes but can be utilized by gut microbiota, has biological functions that depend on its interaction with the gut microbiota. The metabolic products such as short-chain fatty acids produced by the fermentation of dietary fiber by gut microbiota can affect the host’s intestinal health, body metabolism, reproduction, development, and aging process by regulating the function of the intestinal epithelial barrier, immune response, and metabolic pathways. At the same time, the digestive capacity and immune status of the animal host also affect the utilization efficiency of dietary fiber and the structure of the gut microbiota. The imbalance of the dynamic symbiotic network, such as insufficient dietary fiber or gut microbiota dysbiosis, can lead to metabolic disorders, inflammatory responses, and the occurrence of various diseases. This article systematically expounded the dynamic symbiotic network formed among dietary fiber, gut microbiota, and animal hosts through the mechanism of “substrate supply-metabolic regulation-environmental adaptation”, and deeply analyzed the complex interaction pathways among dietary fiber, gut microbiota and animal hosts, in order to provide a theoretical basis for animal nutrition regulation and intestinal health management.

肠道微生物作为动物的“第二基因组”,在消化吸收、免疫调控及代谢稳态中扮演着不可替代的角色[1]。这些栖息在胃肠道数量庞大的微生物通过参与营养代谢、免疫调节和病原防御等过程,与宿主形成深度共生关系,深度介入宿主的生理功能[2]。并且,肠道微生物对宿主健康的影响远超消化系统本身,其代谢产物可进入循环系统,影响远端器官功能[3]。大量试验证实,肠道菌群失调与炎症、肠道屏障损伤、代谢紊乱密切相关,并可诱发多种疾病,包括胃肠道炎症性肠病、自身免疫性疾病和癌症等[4-7]
膳食纤维生物学功能的发挥高度依赖与肠道微生物的互作[8],可通过加快肠道内容物通过率、调节肠道菌群组成和促进短链脂肪酸生成来减少肠道病原体增殖,进而改善肠道健康。此外,膳食纤维还可能增加消化物黏度,导致营养物质利用率下降、增加生长猪回肠中肠杆菌数量[9-11]。研究表明,饲粮中添加菊粉能够改善断奶仔猪的肠道屏障,降低肠道黏膜中肿瘤坏死因子-α(TNF-α)的表达水平和盲肠中大肠杆菌(Escherichia coli)的丰度[12];饲粮中补充丁酸钠能够降低断奶仔猪的腹泻率,提高氮素利用效率,增加血清中免疫球蛋白G浓度[13]。尽管膳食纤维在改善动物健康方面取得了一定进展,但关于膳食纤维、肠道微生物和动物健康之间复杂关系的研究仍然有限。因此,本文将阐述膳食纤维、肠道微生物和动物宿主这三者间的互作路径,并探讨三者动态平衡失调对动物健康的影响,旨在为动物营养调控和肠道健康管理提供理论依据。

1 膳食纤维的定义和分类

膳食纤维定义为所有不能被动物消化道分泌的酶所降解,但可被肠道微生物利用的一类复杂碳水化合物[14-16]。膳食纤维的物理化学特性包括发酵性、黏度、溶解性、持水能力、吸附性及粒径等,会因结构和分子质量的差异而变化,并直接影响其发酵效率与生理功效[17]。因此,膳食纤维存在多种分类体系。按在水中的溶解性,可分为可溶性膳食纤维和不溶性膳食纤维[18];按膳食纤维的来源,可分为植物性膳食纤维和动物性膳食纤维,植物性膳食纤维又可分为谷类膳食纤维、水果膳食纤维和蔬菜膳食纤维[19];此外,还可依据化学结构、黏度、发酵性等参数进行分类[20]。2009年,国际食品法典委员会明确膳食纤维的化学组成主要分为以下4类:非淀粉多糖(包括纤维素、半纤维素、果胶和β-葡聚糖)、抗性低聚糖(包括果糖低聚糖和低聚半乳糖)、抗性淀粉和木质素(表1)[21-22]。然而,传统“膳食纤维”概念侧重描述机体消化酶对碳水化合物的消化局限性,未能充分体现肠道微生物组的代谢特性。Chen等[23]研究发现,富含肠道微生物可利用的碳水化合物的食物基质中,特定结构的多糖能够实现对菌群的靶向调控。为了更加直观地体现食物中不可消化成分对肠道微生物的调节作用,研究人员提出了“菌群靶向性纤维”这一衍生概念[24-25]。膳食纤维主要通过以下途径促进肠道健康:调节肠道菌群组成与代谢、为肠上皮细胞供能、促进肠黏膜分泌、刺激肠道蠕动以及维持肠道屏障完整性[22]。然而,反刍动物与单胃动物对膳食纤维的利用存在本质差异。反刍动物依赖瘤胃微生物发酵纤维,其短链脂肪酸中以乙酸盐为主,占比达60%~70%;而单胃动物因缺乏分解纤维素的关键酶,主要依赖大肠微生物发酵纤维,短链脂肪酸中丁酸盐比例较高,占比为40%~50%[26-27]。因此,单胃动物膳食纤维营养价值需结合小肠消化和大肠发酵综合评定,而反刍动物则需重点关注瘤胃发酵效率。
表1 膳食纤维的分类及物理化学特性

Table 1 Classification and physicochemical characteristics of dietary fiber[28]

分类
Classifications
纤维类型
Fiber types
物理化学特性
Physicochemical characteristics
单糖成分
Monosaccharide components
溶解性
Solubility
发酵性
Fermentability
非淀粉多糖
Non-starch polysaccharides
纤维素 葡萄糖 不溶
β-葡聚糖 葡萄糖 低至中
果胶 半乳糖醛酸、鼠李糖、葡萄糖、阿拉伯糖
黏液 半乳糖、阿拉伯糖
树胶 阿拉伯糖、葡萄糖、鼠李糖等
阿拉伯木聚糖 阿拉伯糖、半乳糖 低至高
阿拉伯聚糖 阿拉伯糖、半乳糖
半乳甘露聚糖 甘露糖、半乳糖 中至高
菊粉 核糖、吡喃糖 中至高
海藻酸盐 甘露糖醛酸、葡萄糖醛酸 不溶至高
甲基纤维素 合成 不可发酵

抗性低聚糖
Resistant oligosaccharides
果糖低聚糖 葡萄糖、果糖
低聚半乳糖 葡萄糖、半乳糖
抗性淀粉
Resistant starch (RS)
RS1(物理包被淀粉) 葡萄糖 不溶
RS2(生淀粉颗粒) 葡萄糖
RS3(老化淀粉) 葡萄糖
RS4(改性淀粉) 化学和物理改性 低至高
RS5(淀粉-脂质复合物) 合成(如淀粉-硬脂酸复合物)
其他Other 木质素 聚氨酯交联苯丙烷 不溶

2 膳食纤维-肠道微生物-动物宿主的动态共生网络

膳食纤维作为核心纽带,虽然不能直接被机体利用,却可以通过肠道微生物为机体提供能量和必需营养素;同时,还能通过为肠道微生物提供发酵底物,调控菌群的组成结构与代谢功能,进而影响微生物代谢产物的生成。这些代谢产物可作用于动物的能量代谢、肠道屏障、免疫功能乃至繁殖发育等多个生理过程[29-30]。动物也可通过消化能力与免疫状态影响膳食纤维的利用效率及肠道微生物的定植平衡[31-32]

2.1 膳食纤维对肠道微生物的调控作用

肠道微生物具有编码一系列碳水化合物活性酶,包括糖苷水解酶、糖基转移酶、多糖裂解酶和碳水化合物酯酶,这些酶可以水解多种纤维[33-34]。研究发现,拟杆菌属(Bacteroides)是典型的革兰氏阴性细菌,具有高效的多糖降解系统[35]。膳食纤维影响肠道微生物的组成和种类,同时不同类型纤维的降解需要特定的微生物参与[21-22]。有研究表明,当动物摄入低纤维饲粮时,肠道微生物多样性会降低。这是由于膳食纤维摄入量减少会导致一些依赖膳食纤维的微生物生长受到抑制,同时,低纤维饲粮中蛋白质和脂肪含量较高,这为那些能够利用氨基酸和脂质作为营养物质的微生物提供了更有利的生长条件,使得这些微生物在肠道中占据优势地位,从而改变了肠道微生物群落的组成和结构[36]。这在Huang等[37]的研究中进一步得到验证,不同饮食模式通过改变某些物种的相对丰度显著影响细菌群落组成,草食动物肠道里与分解植物纤维相关的细菌[如细枝真杆菌(Eubacterium ramulus)]更丰富,杂食动物肠道里与肉类摄入相关的细菌[如内脏臭气杆菌(Odoribacter splanchnicus)]更丰富,并且杂食动物的细菌进化比素食动物更活跃。
膳食纤维可以靶向提高益生菌丰富度并促进肠道稳态,从而起到有效的益生元的作用[38]。Yang等[39]研究发现,饲粮中添加5%菊粉能够提高肠道中双歧杆菌属(Bifidobacterium)的丰富度和短链脂肪酸浓度,通过调节肠道菌群组成和功能以及提高肠道屏障完整性来缓解大鼠肝脏脂肪变性。辛怡然[40]研究表明,基础饲粮中添加1.2%菊粉可增强与纤维分解、脂肪沉积等相关有益菌属的互作,减弱与产乙酸、产甲烷菌属的关联,同时提高丙酸浓度及乙酸/丙酸比值。不同类型膳食纤维对动物肠道微生物的影响存在差异,纤维的链长及微生物类型共同决定微生物对纤维的降解能力。有研究发现,短链低聚果糖可被许多微生物[如Bacteroides、粪杆菌属(Faecalibacterium)、Bifidobacterium和乳杆菌属(Lactobacillus)]发酵,而长链果糖只能被少数微生物降解[41-42]。膳食纤维线性链的长度通常与其黏度呈正相关,部分线性聚合物可通过相邻链交联形成凝胶,例如生瓜尔豆胶、β-葡聚糖和洋车前子[43]。适度的黏度有助于延缓食糜排空,延长肠道微生物的作用时间,并促进有益菌的增殖;然而,黏度过高会导致肠腔内容物过度黏稠,阻碍消化酶与食糜充分接触,反而降低养分消化率[17]
植物细胞壁中的可溶性(果胶、β-葡聚糖和半乳甘露聚糖)和不可溶性纤维成分(纤维素、半纤维素和木质素)能够决定膳食纤维在胃肠道中的可发酵性[17]。对于反刍动物,有研究发现,慢发酵纤维选择纤维降解细菌来增强纤维素和半纤维素解聚,进而在山羊瘤胃中产生更多的乙酸盐,而未发酵的纤维流向盲肠被降解为丁酸盐;快发酵纤维选择果胶降解细菌和产生丁酸盐的细菌在山羊瘤胃中产生更多的丁酸盐,而果胶在盲肠中进一步降解成乙酸盐,并且这些快发酵纤维选择的果胶微生物利用过程更有利于山羊生长[26]。对于单胃动物而言,发酵性较好的可溶性膳食纤维能有效调节肠道微生物群,但黏度过高则会加剧肠上皮细胞脱落、降低蛋白质消化率。相比之下,低黏度的可溶性膳食纤维不仅有助于促进益生菌增殖,对营养物质利用和胃肠生理的负面影响也较小[27]
此外,相较于仔畜,成年动物的胃肠道更长、容积更大,消化系统更为成熟,因而具备更强的纤维降解能力。研究表明,与生长猪相比,成年母猪对不溶性膳食纤维的表观消化率更高,短链脂肪酸产量也更高[44]。对于幼龄反刍动物,随着开食料的摄入,其主要消化器官由皱胃逐渐过渡至瘤胃,依赖共生微生物群发酵产生挥发性脂肪酸。这些发酵产物不仅为瘤胃黏膜层提供能量底物,还能促进瘤胃乳头的发育[45]。对怀孕母畜而言,充足的纤维摄入有助于预防便秘、增强饱腹感并维持正常生殖机能。在妊娠后期及哺乳期补充菊粉,可改变哺乳仔畜的肠道菌群结构[46]。此外,在反刍动物中,提高妊娠母羊饲粮中粗饲料的比例,还能显著增强产后羔羊的血清抗氧化能力[47]。膳食纤维的摄入还能够改善老年动物肠道微生物群的稳态,促进短链脂肪酸生成,并调节葡萄糖稳态与脂质代谢[48]。动物品种亦是影响纤维发酵能力的重要因素。Zhao等[49]研究表明,在饲喂含24.1%麦麸、苜蓿粕或米糠的高纤维饲粮条件下,杜洛克×伯克希尔×嘉兴猪后肠的酸性洗涤纤维消化率显著高于杜洛克×长白×约克夏猪。
综上所述,肠道微生物与膳食纤维通过“酶解-供能”双向作用形成动态平衡,而膳食纤维的结构特性则通过调控肠道微生物降解效率与消化时间,共同构建影响动物肠道健康的复杂调控网络。

2.2 膳食纤维通过肠道微生物介导的生理调控作用

2.2.1 肠道屏障与免疫功能

肠道作为防止有害物质通过淋巴和血液系统传递到身体其他部位的重要屏障,肠上皮的结构完整性直接决定肠道乃至机体的健康状态[50]。研究表明,膳食纤维和肠道微生物的互作能够提高肠炎小鼠紧密连接蛋白闭锁小带蛋白-1(ZO-1)和密封蛋白-1(Claudin-1)的表达量,进而增强肠道屏障功能[51-52]。黏液层作为抵御有害细菌的第1道防线,由杯状上皮细胞分泌的黏蛋白组成[53]。膳食纤维发酵产生的短链脂肪酸对肠上皮黏膜完整性具有积极调节作用[50]。研究表明,补充阿拉伯半乳聚糖可促进急性结肠炎小鼠肠道黏蛋白O-聚糖表达,减轻黏膜损伤[54];而低纤维饲粮则会增加小鼠肠道黏液层通透性、减少黏蛋白分泌,进而提高疾病易感性,添加菊粉则可有效改善这一状态[55]。此外,多形拟杆菌(Bacteroides thetaiotaomicron)在发酵膳食纤维生成乙酸盐和丙酸盐的过程中,可促进杯状细胞分化及黏蛋白相关基因表达[36]。宿主与肠道优势菌群之间还存在直接的免疫协作,构成肠道免疫屏障的重要补充。研究发现,宿主肠上皮细胞分泌的载脂蛋白L(APOL)家族蛋白能够识别肠道Bacteroides表面特有的神经酰胺-1-磷酸脂质,进而触发其外膜囊泡释放,增强干扰素-γ信号传导,促进肠上皮细胞主要组织相容性复合物Ⅱ类分子表达,从而提升宿主对有益菌与有害菌的免疫辨识能力[56]。这一由宿主蛋白与共生菌特异性互作所建立的识别机制,不仅强化了肠上皮的微生物免疫监控功能,也为后续短链脂肪酸调控免疫细胞活性提供了初始免疫信号,共同维系宿主-肠道微生物间的免疫平衡网络。
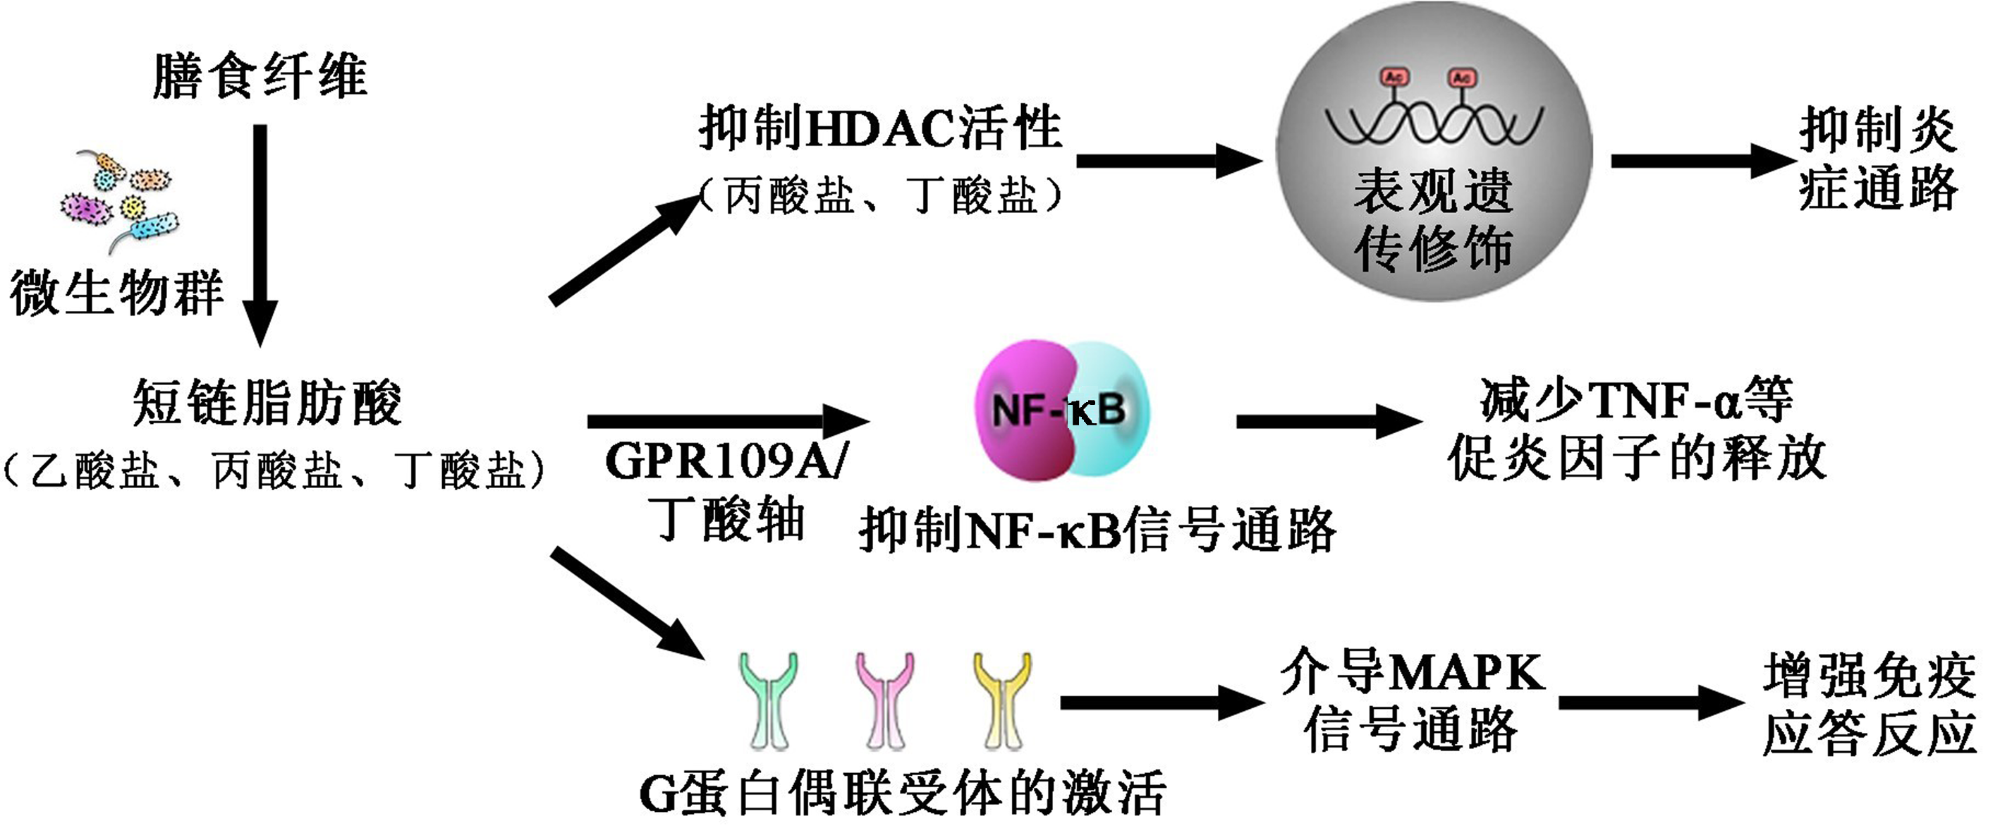
膳食纤维可通过直接或间接途径调节机体免疫功能。一方面,膳食纤维可直接作用于免疫细胞。研究发现,柑橘果胶能以剂量依赖性方式激活T细胞、B细胞及自然杀伤细胞,表现出直接的免疫刺激效应[57]。另一方面,膳食纤维经肠道菌群发酵产生的短链脂肪酸是其发挥免疫调节作用的关键代谢媒介,主要通过抑制组蛋白去乙酰化酶(HDAC)活性及激活G蛋白偶联受体(GPCR)信号通路实现[58]。就HDAC抑制途径而言,短链脂肪酸可作为HDAC抑制剂,通过促进组蛋白乙酰化调控免疫相关基因表达。例如,丁酸盐可抑制结肠巨噬细胞HDAC活性,诱导组蛋白乙酰化,进而下调白细胞介素(IL)-12、IL-6等促炎细胞因子的表达,并参与调控细胞增殖与凋亡[59-61];丙酸盐与丁酸盐还可通过诱导叉头框蛋白p3(Foxp3)基因位点乙酰化,促进转录因子Foxp3表达,驱动T细胞分化,在小鼠肠道炎症控制中发挥关键作用[62]。就GPCR途径而言,短链脂肪酸作为G蛋白偶联受体41(GPR41)/游离脂肪酸受体2(FFAR2)、G蛋白偶联受体43(GPR43)/游离脂肪酸受体3(FFAR3)和G蛋白偶联受体109A(GPR109A)/羟基羧酸受体2(HCAR2)等GPCR的配体,可激活下游蛋白激酶信号通路,诱导肠道黏膜趋化因子与细胞因子表达,增强免疫应答[63];同时,GPR109A/丁酸轴可抑制脂多糖(LPS)诱导的核因子-κB(NF-κB)活化,减少单核细胞趋化蛋白-1(MCP-1)、TNF-α等促炎因子释放,发挥抗炎效应[61]。膳食纤维免疫调控机制的间接途径[61,64]图1所示。
图1 膳食纤维免疫调控机制的间接途径

HDAC:组蛋白去乙酰化酶 histone deacetylase;GPR109A:G蛋白偶联受体109A G-protein coupled receptor 109A;TNF-α:肿瘤坏死因子-α tumor necrosis factor-α;NF-κB:核因子-κB nuclear factor-κB;MAPK:丝裂原活化蛋白激酶 mitogen-activated protein kinase。

Fig.1 Indirect pathways of immune regulatory mechanism of dietary fiber[61,64]

综上所述,膳食纤维一方面通过与肠道微生物互作增强肠上皮屏障完整性,另一方面通过直接激活免疫细胞及其代谢产物介导的HDAC与GPCR信号通路,协同调控机体免疫功能。

2.2.2 机体代谢稳态

膳食纤维的摄入会改变小肠、盲肠、结肠等肠道的长度和大小,进而影响肠道消化和水解功能[65]。Rattigan等[66]研究发现,饲粮中添加海藻多糖能够增加断奶仔猪盲肠中Lactobacillus的丰富度、总挥发性脂肪酸浓度和结肠中丁酸盐的浓度,提高十二指肠和空肠的绒毛高度和葡萄糖转运蛋白的基因表达量,从而提高营养物质的利用率。
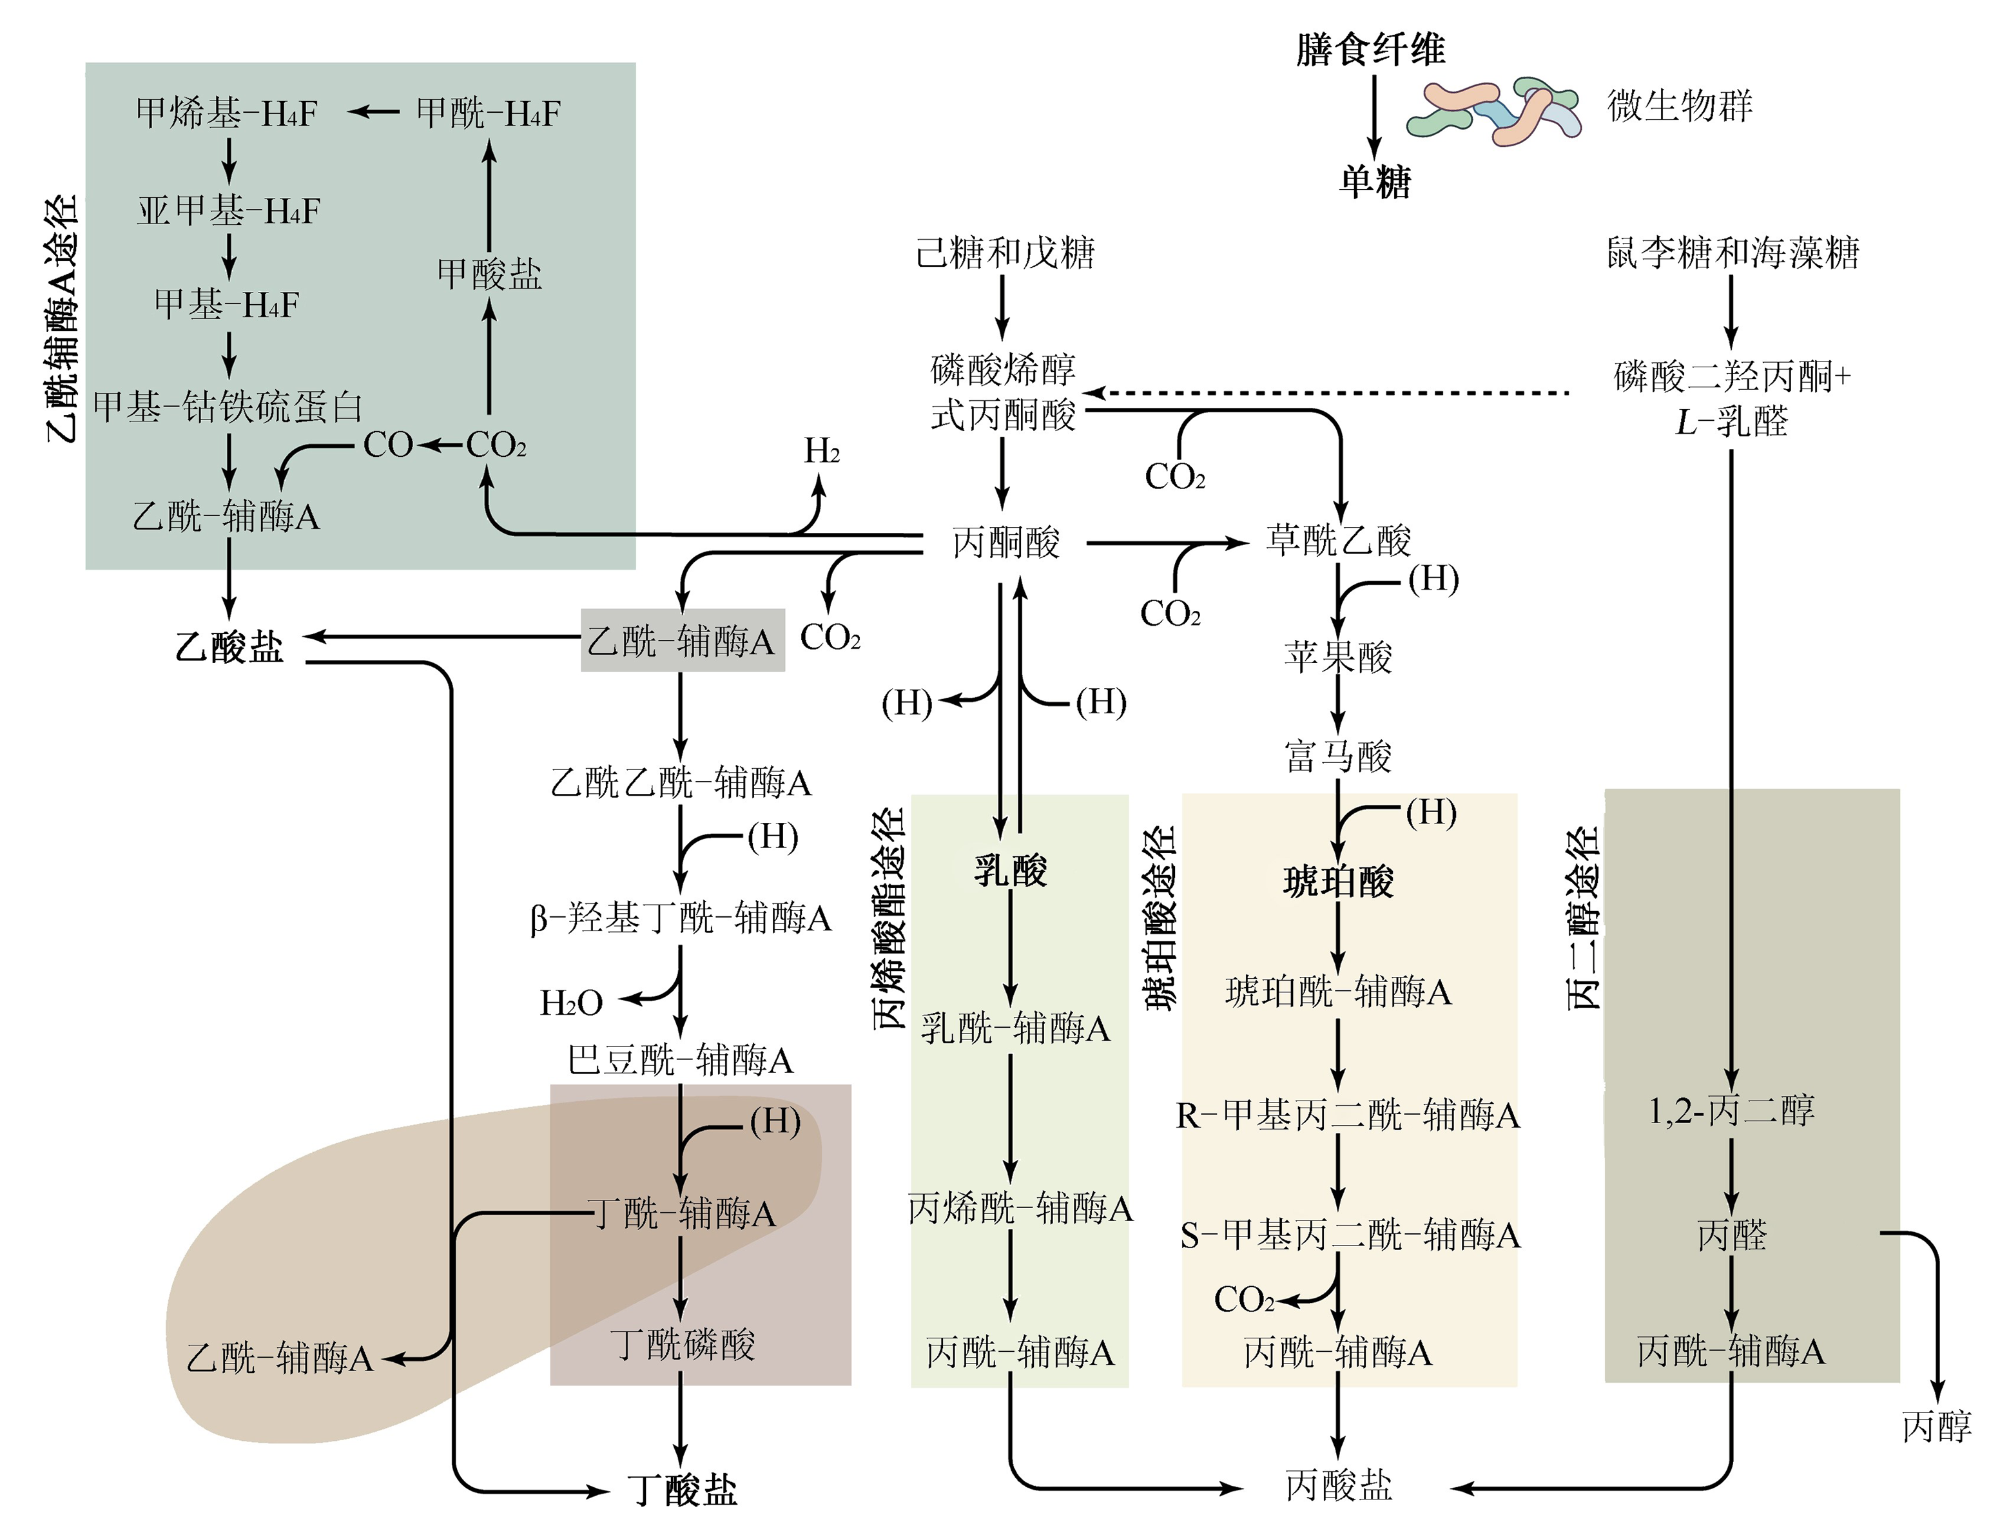
除影响肠道物理结构外,膳食纤维经微生物发酵产生的短链脂肪酸是调控机体代谢的关键信号分子。短链脂肪酸以乙酸、丙酸和丁酸为主,在动物肠道健康维持与能量代谢调节中发挥多重作用[67]。丙酸盐和丁酸盐可通过激活肠道糖异生的互补途径,参与体重控制与血糖稳态调节。研究发现,富含膳食纤维的饲粮可定向富集产短链脂肪酸的有益菌群,如FaecalibacteriumBacteroides、罗氏菌属(Roseburia)、毛螺菌属(Lachnospira)及阿克曼菌属(Akkermansia),同时抑制促炎菌群如柯林斯菌属(Collinsella)和链球菌属(Streptococcus)的增殖[68]。机制上,丙酸盐作为肠道糖异生的底物,经由GPR41介导的肠脑神经回路上调肠道糖异生相关基因表达;丁酸则通过环磷酸腺苷(cAMP)依赖性机制激活肠道糖异生相关基因的转录[69]。在妊娠母猪上的研究显示,膳食纤维可重塑肠道菌群结构,提高乙酸及总短链脂肪酸浓度,进而改善胰岛素敏感性与分娩性能[70]。短链脂肪酸还可通过肠-脑轴调控采食行为。研究显示,乙酸盐通过与中枢神经系统的相互作用来抑制食欲,丁酸盐和丙酸盐则通过诱导肠道激素的产生降低动物的采食量[71]。研究发现,短链脂肪酸能够诱导肠上皮细胞释放胰高血糖素样肽-1和胰高血糖素样肽-2,并通过迷走神经之间的间接信号转导或肝脏代谢调节来影响肠-脑轴,进而调节采食行为[72]。机体内短链脂肪酸的产生途径[73]图2所示。
图2 机体内短链脂肪酸的产生途径

Fig.2 Production pathways of short-chain fatty acids in body[73]

色氨酸代谢受肠道微生物直接或间接调控,通过3条途径进行,即由吲哚胺2,3-双加氧酶1、吲哚胺2,3-双加氧酶2和色氨酸2,3-双加氧酶2介导的犬尿氨酸途径,吲哚衍生物途径和涉及色氨酸羟化酶的5-羟色胺途径[74]。膳食纤维可通过调节肠道微生物代谢影响宿主体内的色氨酸代谢通路。一方面,膳食纤维能够减少小肠对包括色氨酸在内的大量营养物质的吸收,使更多未被消化的色氨酸进入大肠,供肠道微生物代谢利用。同时,高膳食纤维摄入可抑制色氨酸向犬尿氨酸途径的流向,促使代谢转向吲哚衍生物途径[75]。另一方面,膳食纤维经肠道微生物发酵产生的短链脂肪酸可通过促进菌群间的交叉互养重塑肠道微生物群落结构,进而有利于色氨酸代谢菌的定植与富集[76]。Rosser等[77]研究发现,在饲粮中添加500 mg/kg丁酸盐可激活芳基烃受体,提高血清素衍生物5-羟基吲哚-3-乙酸的浓度,以依赖于调节性B细胞的方式抑制小鼠关节炎;同时,添加丁酸盐还使小鼠肠道中与色氨酸代谢相关的异杆菌属(Allobaculum)和Bifidobacterium的数量增加。
在动物肠道中,胆汁酸代谢体现了机体及其微生物群的协同代谢[78]。肠道微生物对胆汁酸的作用,一方面是基于肠道微生物对初级胆汁酸的二次加工修饰,C24-酰胺水解和7α-脱羟基化将胆酸和鹅去氧胆酸的甘氨酸和牛磺酸偶联转化为次级胆汁酸(脱氧胆酸和石胆酸)[78]。有研究发现,聚果糖、果胶、菊粉等膳食纤维被T5KO小鼠摄入后,导致其肠道梭菌簇XIVa的丰富度显著增加并发酵摄入的膳食纤维,通过7α-脱羟基化将初级胆汁酸转化为次级胆汁酸,导致次级胆汁酸过量,从而诱发胆汁淤积性肝癌[79]。另一方面,微生物群可通过动物体内胆汁酸受体(组成型雄甾烷受体、孕烷X受体、维生素D受体和法尼醇X受体)调节胆汁酸代谢和运输[80]。有研究发现,脆弱拟杆菌(Bacteroides fragilis)通过其胆汁盐水解酶活性,抑制法尼醇X受体信号通路,导致肝脏胆汁酸合成过度增加及胆汁分泌障碍,最终促进妊娠期肝内胆汁淤积症的发生[81]。此外,肠道微生物能够通过短链脂肪酸、胆汁酸等代谢物来调控调节性T细胞(Treg)/辅助性T细胞17(Th17)、巨噬细胞等免疫细胞的动态,进而重塑动物骨微环境[82]
综上可知,膳食纤维可通过调控肠道微生物群代谢产生短链脂肪酸、色氨酸衍生物及胆汁酸等代谢物,进而在机体代谢调节、采食行为控制、疾病发生发展等多个生理过程中发挥重要作用。

2.2.3 繁殖、发育及衰老

肠道微生物发酵膳食纤维产生的短链脂肪酸(尤其是丁酸盐、丙酸盐)是肠-生殖轴的关键信号分子[83]。研究表明,肠道微生物组可通过合成丁酸来调节猪颗粒细胞中雌激素的合成和代谢[84]。另外,短链脂肪酸可通过激活GPCR来调节母畜的能量代谢,提高胰岛素敏感性,促进葡萄糖摄取和利用,为卵泡发育提供充足的能量[85]。若产短链脂肪酸的细菌[如布劳特氏菌属(Blautia)、梭菌属(Clostridium)、Roseburia和瘤胃球菌属(Ruminococcus)]减少,导致短链脂肪酸的合成减少,从而可能诱发卵巢早衰[86-87]。Weaver等[88]发现,在饲粮中添加118 g/kg膳食纤维可促进母猪卵母细胞成熟,提高发育到中期Ⅱ期的卵母细胞的比例。在妊娠阶段,膳食纤维通过优化肠道内有益菌的丰度,增强营养物质的消化吸收,为胚胎发育提供充足的营养物质;同时,还通过抑制有害菌的生长,减少内毒素的产生,降低炎症反应及相关炎症因子对胚胎造成的损伤[89]。膳食纤维的代谢产物(如短链脂肪酸)能够通过母体的血液循环到达胎盘,对胚胎的发育产生直接影响。研究发现,丁酸钠可提高大鼠粪便中厚壁菌门(Firmicutes)和拟杆菌门(Bacteroidetes)的丰度以及丁酸和戊酸浓度,降低炎症反应,并提高胎盘中生长因子的水平[90]。另有研究显示,高纤维饲粮能增加有腔卵泡数量,提高卵巢组织中血清素的含量,抑制有腔卵泡凋亡,提高后备母猪卵母细胞质量,同时缩短分娩时间,提高母猪的繁殖性能[91-93]
生命早期是中枢神经和免疫系统发育以及肠道微生物群建立的关键窗口,胚胎期动物的发育会受母体肠道微生物及代谢产物的调控[94]。大量研究表明,母体和产后因素可诱发后代发育中的大脑结构和功能异常,其影响可持续至成年期[95-96]。膳食纤维能够通过母体肠道微生物产生的代谢物来间接调控后代全身免疫反应和神经发育。Nakajima等[97]发现,可溶性膳食纤维的摄入可提高母鼠血浆中短链脂肪酸浓度,进而导致后代小鼠胸腺调节性T细胞的数量增加。随着动物进入衰老阶段,肠道微生物与机体功能的关联进一步凸显。有研究证实,肠道微生物组变化与表观遗传年龄加速和身体素质相关[98]。动物衰老不仅伴随骨骼肌质量流失、肌间脂肪异位沉积等肌肉-脂肪串扰失衡问题[99],还会出现肠道菌群多样性降低、短链脂肪酸生成减少的情况,进而引发肠-脑轴紊乱,加剧中枢神经系统衰老,表现为认知衰退、行为能力下降[100]。研究表明,高纤维(30%)饮食可以帮助中年和自然衰老的小鼠改善糖与脂代谢,降低体脂率,减缓运动能力衰退,并缓解学习和记忆功能受损[101]。值得注意的是,骨骼肌线粒体是减轻与年龄相关的肌肉质量和身体功能下降的关键干预靶点[102]。Mohamed等[103]研究显示,饲粮中补充23%膳食纤维混合物能够增加猪肌肉中脂肪酸分解代谢的能力和线粒体活性。
上述研究表明,膳食纤维与肠道微生物的相互作用不仅可以通过母体肠道微生物代谢物调控后代早期免疫发育,也能改善成年及衰老个体的生理功能与认知能力。

2.3 动物机体与膳食纤维-肠道微生物的双向互作及稳态调控

动物宿主与膳食纤维、肠道微生物之间存在精密且复杂的协同调控网络,该调控机制贯穿消化、免疫等生理过程,对维持机体稳态与健康具有重要意义。动物的消化能力不仅直接调控膳食纤维的利用效率,还通过塑造肠道微生态环境影响微生物群落的组成与功能。膳食纤维进入反刍动物消化道后,瘤胃作为其核心发酵器官,通过节律性蠕动有效破碎纤维结构,显著增加纤维与微生物的接触面积,从而为后续微生物发酵提供适宜环境[104]。同时,杯状细胞分泌的肠道黏液构成微生物附着的重要基质。在生理稳态下,持续分泌的黏液为纤维分解菌营造了稳定的定植条件,使其能够在黏液层中高效降解纤维,并生成短链脂肪酸等有益代谢产物[105]。值得注意的是,宿主的免疫状态可重塑肠道微生物组成,而微生物群落的改变亦反馈调控机体免疫应答。研究显示,结肠炎小鼠肠道中免疫系统被激活,IL-6、诱导型一氧化氮合酶及环氧合酶-2等炎症因子和炎症介质的含量增加,同时Lactobacillus等有益菌受到抑制,而Escherichia coli等潜在致病菌则增殖[106]。肠道免疫细胞在微生物群调控中也发挥关键作用。研究发现,干扰素调节因子8突变斑马鱼因缺失肠道巨噬细胞,导致肠道微生物群失衡,肠道中核心共生菌的丰富度降低,有害菌胞内劳森菌(Lawsonia intracellularis)的丰富度占据主导地位[107]。因此,动物机体通过消化能力与免疫状态对膳食纤维利用及肠道微生物群落形成双向调控,而微生物代谢产物与群落结构变化又反作用于机体生理稳态,三者构成动态平衡的协同调控体系。

3 动态共生网络失衡对动物的影响

3.1 膳食纤维不足对动物的影响

在反刍动物集约化养殖中,为了追求最大的经济效益,大量的精饲料被喂给反刍动物,以满足它们的能量需求,提高它们的生产效率。然而,高精料饲粮富含易发酵的碳水化合物,淀粉含量和能量水平高,纤维含量低[108]。这会导致精饲料在瘤胃微生物作用下迅速发酵,产生大量的挥发性脂肪酸和乳酸,导致瘤胃pH降低,进而诱导反刍动物亚急性瘤胃酸中毒的发生[109]。瘤胃中持续的低pH环境会破坏瘤胃中微生态平衡,导致不耐酸的革兰氏阴性菌释放出大量的内毒素,这些内毒素可通过受损的瘤胃上皮从消化道转移到血液中,引发身体各个组织和器官的炎症反应,导致乳腺炎、肝脓肿和蹄叶炎等疾病发生,同时,急性瘤胃酸中毒还会影响反刍动物的采食量和产奶量[110]。Chen等[108]研究发现,长期饲喂高精料饲粮(精料∶草料=7∶3)能够诱导湖羊发生亚急性瘤胃酸中毒,改变结肠内容物中微生物群落的组成和结构,从而诱导炎症反应并破坏结肠组织中的肠黏膜屏障。虽然单胃动物对膳食纤维的消化能力有限,但依然需要适量的膳食纤维维持肠道结构、菌群平衡、消化功能及机体健康。Wang等[111]研究发现,膳食纤维的缺乏导致鼠伤寒沙门氏菌(Salmonella typhimurium)感染小鼠肠道中肠杆菌属(Enterobacter)的丰富度降低,以至于琥珀酸合成的丙酸量减少,从而削弱了对沙门氏菌的定植抗性,进一步诱发肠道炎症。因此,反刍动物高精料饲喂模式引发的瘤胃酸中毒及单胃动物膳食纤维缺乏导致的肠道炎症,均表明膳食纤维在调控动物肠道微生态平衡、维持黏膜屏障功能及机体健康稳态中具有不可替代的作用。

3.2 微生物失调对动物的影响

在动物机体中,肠道菌群中的Bacteroidetes与Firmicutes是降解膳食纤维的主力菌,其降解过程主要依赖微生物分泌的糖苷水解酶、多糖裂解酶等纤维水解酶。研究表明,当肠道菌群中Bacteroidetes与Firmicutes的比值减少,肠道中丁酸盐浓度往往随之降低,结肠细胞能源物质供应减少,进而导致体重下降[112]。膳食纤维降解菌丰度降低会导致纤维利用率下降,这一观点已得到多项研究支持。Turnbaugh等[113]通过宏基因组分析发现,肥胖小鼠的肠道菌群中Firmicutes比例显著升高,Bacteroidetes比例减少,导致膳食纤维发酵效率降低,未消化纤维堆积进而引发便秘。菌群紊乱进一步降低肠道中短链脂肪酸的浓度,削弱其对有害菌的抑制能力,形成恶性循环。此外,有研究发现,社交压力亦可经由肠道微生物群下调乙酸和丁酸浓度,损害结肠黏液屏障功能,从而增加小鼠对致病菌柠檬酸杆菌属(Citrobacter)的易感性[114]。除此之外,短链脂肪酸可直接刺激L细胞释放胰高血糖素样肽-1,增强胰岛素敏感性,而微生物失调时胰高血糖素样肽-1分泌不足[115]。同样,肠道菌群失调和低短链脂肪酸浓度会降低肠道微生物的多样性,增加产生脂多糖的细菌和提高肠道屏障通透性,导致较多的脂多糖进入血液,引起IL-1β、IL-6和TNF-α浓度升高,诱发慢性炎症。并且,脂多糖和炎症因子通过血脑屏障激活脑内小胶质细胞和星形胶质细胞,加剧神经炎症,促进β淀粉样蛋白沉积和Tau蛋白过度磷酸化,参与神经退行性病变进程[116]。此外,当肠道微生物群的组成或功能发生改变时,微生物群通过抑制小肠上皮细胞中长链非编码RNA Snhg9的表达来重新编程小鼠的肠道脂质代谢,进而影响脂质代谢[117]

3.3 机体代谢紊乱的恶性循环

膳食纤维-肠道微生物-动物宿主的动态共生网络失衡可引发机体代谢紊乱的恶性循环,表现为肠道微生物代谢产物不足、能量调控机制异常与慢性炎症的跨器官感染[118-119]。膳食纤维不足导致短链脂肪酸生成减少,削弱脂肪组织的脂质分解能力,引发脂肪细胞肥大、血清胆固醇含量升高和瘦素抵抗,使人食欲增加、能量消耗降低,进一步加剧肥胖与血脂异常[120]。同时,高血糖与高血脂会导致游离脂肪酸竞争性抑制肌肉细胞对葡萄糖的摄取,同时通过激活蛋白激酶C磷酸化胰岛素受体底物,阻断胰岛素信号传导,引发肝源性和肌源性胰岛素抵抗[121]。胰岛素抵抗与β细胞功能衰退形成恶性循环,导致血糖调控失控。此外,高血糖诱导的晚期糖基化终产物与细胞表面受体晚期糖基化终末产物受体(RAGE)结合,激活NF-κB通路,加剧血管内皮、脂肪组织和肝脏的氧化应激与炎症反应,进一步恶化胰岛素敏感性以及糖与脂代谢[122]。De Vadder等[69]研究证实,丁酸盐通过环磷酸腺苷依赖性机制激活肠道糖异生相关基因表达;丙酸盐则通过肠道-脑轴游离脂肪酸受体3介导的信号通路发挥相同作用,进而改善胰岛素敏感性。此外,肠道屏障受损可使致病菌来源的脂多糖进入血液循环,诱发慢性炎症,炎症因子(如IL-6、TNF-α)不仅直接干扰胰岛素信号传导,还可加剧脂肪组织与肝脏的代谢紊乱[123]。慢性炎症进一步作用于下丘脑食欲调节中枢,上调促食神经肽[神经肽Y(NPY)、刺鼠相关肽(AgRP)]表达,导致摄食量增加,形成恶性循环[124]

4 小结与展望

肠道微生物与膳食纤维、宿主机体通过“底物供给-代谢调控-环境适应”机制形成动态共生网络,三者的互作在能量代谢、免疫调节、肠道屏障维持、机体稳态以及繁殖和发育、衰老的调控中发挥核心作用。膳食纤维作为关键枢纽,其经微生物发酵产生的短链脂肪酸等代谢产物,可通过激活GPCR或抑制HDAC,增强肠道屏障功能与免疫稳态,并经由肠-生殖轴调控路径,优化母畜繁殖性能及后代早期发育。反刍动物与单胃动物因消化生理差异,对纤维的类型需求、适宜剂量及发酵效率存在显著区别。一旦膳食纤维-肠道微生物-动物宿主三者构成的动态平衡被打破,膳食纤维供给不足或肠道菌群紊乱将诱发瘤胃酸中毒、肠道炎症及代谢综合征等多系统疾病,这凸显了维持三者协同稳态的重要性。
未来,该领域的研究需从“供给膳食纤维”向“膳食纤维与机体生理代谢的精准契合”进行转变。当前研究大多集中于膳食纤维的普遍有益效应,然而,不同生理状态(如快速生长期、妊娠期、泌乳期、衰老期)下的动物机体,其代谢需求、免疫状态及肠道菌群结构存在显著差异。因此,未来的研究重点应在于:1)深入解析不同化学结构、物理特性的膳食纤维如何特异性调控肠道关键代谢通路(如短链脂肪酸、胆汁酸、色氨酸代谢)及其背后的微生物分子机制;2)明确动物在不同生命周期和健康状态(如应激、疾病)下,其机体代谢网络对各类膳食纤维及其代谢产物的动态响应与需求变化。在此基础上,构建个性化膳食纤维营养配置策略,实现从“菌群靶向”到“生理状态靶向”的跨越,从而最优化膳食纤维的健康促进作用,推动动物营养学迈向精准化与系统化的新阶段。
[1]
TOADER C, DOBRIN N, COSTEA D, et al. Mind,mood and microbiota-gut-brain axis in psychiatric disorders[J]. International Journal of Molecular Sciences, 2024, 25(6):3340.

DOI

[2]
李博之. 基于代谢组学和肠道微生物组学探讨调肝治法抗抑郁的作用机制[D]. 博士学位论文. 广州: 广州中医药大学, 2024.

LI B Z. Exploring the antidepressive mechanisms of liver-modulating therapy through metabolomics and gut microbiomics[D]. Ph.D.Thesis. Guangzhou: Guangzhou University of Chinese Medicine, 2024. (in Chinese)

[3]
BELKAID Y, HAND T W. Role of the microbiota in immunity and inflammation[J]. Cell, 2014, 157(1):121-141.

DOI PMID

[4]
DESAI M S, SEEKATZ A M, KOROPATKIN N M, et al. A dietary fiber-deprived gut microbiota degrades the colonic mucus barrier and enhances pathogen susceptibility[J]. Cell, 2016, 167(5):1339-1353.e21.

DOI PMID

[5]
SONNENBURG J L, BÄCKHED F. Diet-microbiota interactions as moderators of human metabolism[J]. Nature, 2016, 535(7610):56-64.

DOI

[6]
DE LUCA F, SHOENFELD Y. The microbiome in autoimmune diseases[J]. Clinical and Experimental Immunology, 2019, 195(1):74-85.

DOI PMID

[7]
QIN J J, LI Y R, CAI Z M, et al. A metagenome-wide association study of gut microbiota in type 2 diabetes[J]. Nature, 2012, 490(7418):55-60.

DOI

[8]
TIAN M, CHEN J M, LIU J X, et al. Dietary fiber and microbiota interaction regulates sow metabolism and reproductive performance[J]. Animal Nutrition, 2020, 6(4):397-403.

DOI PMID

[9]
李浩. 基于肠道微生物研究宁乡猪对饲粮纤维的利用机制[D]. 博士学位论文. 长沙: 湖南农业大学, 2024.

LI H. The study on the mechanism of dietary fiber utilization based on intestinal microbiota in Ningxiang pigs[D]. Ph.D.Thesis. Changsha: Hunan Agricultural University, 2024. (in Chinese)

[10]
DEN BESTEN G, VAN EUNEN K, GROEN A K, et al. The role of short-chain fatty acids in the interplay between diet,gut microbiota,and host energy metabolism[J]. Journal of Lipid Research, 2013, 54(9):2325-2340.

DOI

[11]
QUIJADA N M, BODAS R, LORENZO J M, et al. Dietary supplementation with sugar beet fructooligosaccharides and garlic residues promotes growth of beneficial bacteria and increases weight gain in neonatal lambs[J]. Biomolecules, 2020, 10(8):1179.

DOI

[12]
WANG W K, CHEN D W, YU B, et al. Effects of dietary inulin supplementation on growth performance,intestinal barrier integrity and microbial populations in weaned pigs[J]. British Journal of Nutrition, 2020, 124(3):296-305.

DOI

[13]
FANG C L, SUN H, WU J, et al. Effects of sodium butyrate on growth performance,haematological and immunological characteristics of weanling piglets[J]. Journal of Animal Physiology and Animal Nutrition, 2014, 98(4):680-685.

DOI

[14]
JHA R, ROSSNAGEL B, PIEPER R, et al. Barley and oat cultivars with diverse carbohydrate composition alter ileal and total tract nutrient digestibility and fermentation metabolites in weaned piglets[J]. Animal, 2010, 4(5):724-731.

DOI PMID

[15]
HIPSLEY E H. Dietary “fibre” and pregnancy toxaemia[J]. British Medical Journal, 1953, 2(4833):420-422.

PMID

[16]
SLAVIN J. Fiber and prebiotics:mechanisms and health benefits[J]. Nutrients, 2013, 5(4):1417-1435.

DOI

[17]
GILL S K, ROSSI M, BAJKA B, et al. Dietary fibre in gastrointestinal health and disease[J]. Nature Reviews Gastroenterology & Hepatology, 2021, 18(2):101-116.

[18]
EVANS C E L. Dietary fibre and cardiovascular health:a review of current evidence and policy[J]. Proceedings of the Nutrition Society, 2020, 79(1):61-67.

DOI

[19]
DHINGRA D, MICHAEL M, RAJPUT H, et al. Dietary fibre in foods:a review[J]. Journal of Food Science and Technology, 2012, 49(3):255-266.

DOI

[20]
DEEHAN E C, DUAR R M, ARMET A M, et al. Modulation of the gastrointestinal microbiome with nondigestible fermentable carbohydrates to improve human health[J]. Microbiology Spectrum, 2017, 5(5):BAD-0019-2017.

[21]
ARMSTRONG H, MANDER I, ZHANG Z X, et al. Not all fibers are born equal;variable response to dietary fiber subtypes in IBD[J]. Frontiers in Pediatrics, 2020, 8:620189.

DOI

[22]
YE S X, SHAH B R, LI J, et al. A critical review on interplay between dietary fibers and gut microbiota[J]. Trends in Food Science & Technology, 2022, 124:237-249.

[23]
CHEN R Y, MOSTAFA I, HIBBERD M C, et al. Melding microbiome and nutritional science with early child development[J]. Nature Medicine, 2021, 27(9):1503-1506.

DOI PMID

[24]
FAN S T, ZHANG Z H, NIE Q X, et al. Rethinking the classification of non-digestible carbohydrates:perspectives from the gut microbiome[J]. Comprehensive Reviews in Food Science and Food Safety, 2024, 23(6):e70046.

DOI

[25]
SONNENBURG E D, SONNENBURG J L. Starving our microbial self:the deleterious consequences of a diet deficient in microbiota-accessible carbohydrates[J]. Cell Metabolism, 2014, 20(5):779-786.

DOI

[26]
ZHANG X L, ZHONG R Z, WU J, et al. Dietary selection of distinct gastrointestinal microorganisms drives fiber utilization dynamics in goats[J]. Microbiome, 2025, 13(1):118.

DOI

[27]
LI H, YIN J, TAN B, et al. Physiological function and application of dietary fiber in pig nutrition:a review[J]. Animal Nutrition, 2021, 7(2):259-267.

DOI

[28]
WANG W J, FAN Z X, YAN Q Q, et al. Gut microbiota determines the fate of dietary fiber-targeted interventions in host health[J]. Gut Microbes, 2024, 16(1):2416915.

DOI

[29]
AKHTAR M, CHEN Y, MA Z Y, et al. Gut microbiota-derived short chain fatty acids are potential mediators in gut inflammation[J]. Animal Nutrition, 2022, 8:350-360.

DOI PMID

[30]
TAZOE H, OTOMO Y, KAJI I, et al. Roles of short-chain fatty acids receptors,GPR41 and GPR43 on colonic functions[J]. Journal of Physiology and Pharmacology, 2008, 59(S2):251-262.

[31]
FOUHSE J M, ZIJLSTRA R T, WILLING B P. The role of gut microbiota in the health and disease of pigs[J]. Animal Frontiers, 2016, 6(3):30-36.

DOI

[32]
DOMINGUEZ-BELLO M G, GODOY-VITORINO F, KNIGHT R, et al. Role of the microbiome in human development[J]. Gut, 2019, 68(6):1108-1114.

DOI

[33]
HAMAKER B R, TUNCIL Y E. A perspective on the complexity of dietary fiber structures and their potential effect on the gut microbiota[J]. Journal of Molecular Biology, 2014, 426(23):3838-3850.

DOI PMID

[34]
LOMBARD V, GOLACONDA RAMULU H, DRULA E, et al. The carbohydrate-active enzymes database (CAZy) in 2013[J]. Nucleic Acids Research, 2014, 42(D1):D490-D495.

[35]
SINGH R P. Glycan utilisation system in Bacteroides and Bifidobacteria and their roles in gut stability and health[J]. Applied Microbiology and Biotechnology, 2019, 103(18):7287-7315.

DOI

[36]
MAKKI K, DEEHAN E C, WALTER J, et al. The impact of dietary fiber on gut microbiota in host health and disease[J]. Cell Host & Microbe, 2018, 23(6):705-715.

[37]
HUANG K D, MÜLLER M, SIVAPORNNUKUL P, et al. Dietary selective effects manifest in the human gut microbiota from species composition to strain genetic makeup[J]. Cell Reports, 2024, 43(12):115067.

DOI

[38]
ROBERFROID M, GIBSON G R, HOYLES L, et al. Prebiotic effects:metabolic and health benefits[J]. British Journal of Nutrition, 2010, 104(S2):S1-S63.

[39]
YANG Z D, SU H H, LV Y J, et al. Inulin intervention attenuates hepatic steatosis in rats via modulating gut microbiota and maintaining intestinal barrier function[J]. Food Research International, 2023, 163:112309.

DOI

[40]
辛怡然. 菊粉和过瘤胃菊粉对犊牛生产性能及胃肠道菌群的影响[D]. 硕士学位论文. 杨凌: 西北农林科技大学, 2025.

XIN Y R. Effects of inulin and rumen-protected inulin on production performance and gastrointestinal flora in calves[D]. Master’s Thesis. Yangling: Northwest A&F University, 2025. (in Chinese)

[41]
DE VUYST L, LEROY F. Cross-feeding between bifidobacteria and butyrate-producing colon bacteria explains bifdobacterial competitiveness,butyrate production,and gas production[J]. International Journal of Food Microbiology, 2011, 149(1):73-80.

DOI

[42]
RAMIREZ-FARIAS C, SLEZAK K, FULLER Z, et al. Effect of inulin on the human gut microbiota:stimulation of Bifidobacterium adolescentis and Faecalibacterium prausnitzii[J]. British Journal of Nutrition, 2009, 101(4):541-550.

DOI

[43]
MCRORIE J W Jr, MCKEOWN N M. Understanding the physics of functional fibers in the gastrointestinal tract:an evidence-based approach to resolving enduring misconceptions about insoluble and soluble fiber[J]. Journal of the Academy of Nutrition and Dietetics, 2017, 117(2):251-264.

DOI

[44]
LINDBERG J E. Fiber effects in nutrition and gut health in pigs[J]. Journal of Animal Science and Biotechnology, 2014, 5(1):15.

DOI PMID

[45]
POKHREL B, JIANG H L. Postnatal growth and development of the rumen:integrating physiological and molecular insights[J]. Biology, 2024, 13(4):269.

DOI

[46]
PABLACK N, VAHJEN W, ZENTEK J. Dietary inulin affects the intestinal microbiota in sows and their suckling piglets[J]. BMC Veterinary Research, 2015, 11(1):51.

DOI

[47]
张帆, 崔凯, 毕研亮, 等. 妊娠后期母羊饲粮精料比例对羔羊生长性能、消化性能及血清抗氧化指标的影响[J]. 动物营养学报, 2017, 29(10):3583-3591.

ZHANG F, CUI K, BI Y L, et al. Effects of dietary concentrate proportion of ewes during late gestation on growth performance,digestion performance and serum antioxidant capacity of lambs[J]. Chinese Journal of Animal Nutrition, 2017, 29(10):3583-3591. (in Chinese)

[48]
KEENAN M J, MARCO M L, INGRAM D K, et al. Improving healthspan via changes in gut microbiota and fermentation[J]. Age, 2015, 37(5):98.

DOI

[49]
ZHAO J B, ZHANG G, LIU L, et al. Comparative nutrient digestibility in different ingredients fed to Duroc×Landrace×Yorkshire and Duroc×Berkshire×Jiaxing growing barrows[J]. Livestock Science, 2018, 211:1-7.

DOI

[50]
CUI J F, LIAN Y H, ZHAO C Y, et al. Dietary fibers from fruits and vegetables and their health benefits via modulation of gut microbiota[J]. Comprehensive Reviews in Food Science and Food Safety, 2019, 18(5):1514-1532.

DOI

[51]
LLEWELLYN S R, BRITTON G J, CONTIJOCH E J, et al. Interactions between diet and the intestinal microbiota alter intestinal permeability and colitis severity in mice[J]. Gastroenterology, 2018, 154(4):1037-1046.e2.

DOI PMID

[52]
HUNT J E, HARTMANN B, SCHOONJANS K, et al. Dietary fiber is essential to maintain intestinal size,L-cell secretion,and intestinal integrity in mice[J]. Frontiers in Endocrinology, 2021, 12:640602.

DOI

[53]
闵芳芳. 不同乳酸菌对环磷酰胺诱导的肠道损伤小鼠肠道黏膜免疫影响的机制初探[D]. 博士学位论文. 南昌: 南昌大学, 2024.

MIN F F. A preliminary investigation of the mechanism of the effect of different lactic acid bacteria on intestinal mucosal immunity in mice with cyclophosphamide-induced intestinal injury[D]. Ph.D.Thesis. Nanchang: Nanchang University, 2024. (in Chinese)

[54]
ZHAO T, LIU S N, MA X R, et al. Lycium barbarum arabinogalactan alleviates intestinal mucosal damage in mice by restoring intestinal microbes and mucin O-glycans[J]. Carbohydrate Polymers, 2024, 330:121882.

DOI

[55]
SCHROEDER B O, BIRCHENOUGH G M H, STÅHLMAN M, et al. Bifidobacteria or fiber protects against diet-induced microbiota-mediated colonic mucus deterioration[J]. Cell Host & Microbe, 2018, 23(1):27-40.e7.

[56]
YANG T, HU X H, CAO F, et al. Targeting symbionts by apolipoprotein L proteins modulates gut immunity[J]. Nature, 2025, 643(8070):210-218.

DOI

[57]
RAMACHANDRAN C, WILK B J, HOTCHKISS A, et al. Activation of human T-helper/inducer cell,T-cytotoxic cell,B-cell,and natural killer (NK)-cells and induction of natural killer cell activity against K562 chronic myeloid leukemia cells with modified citrus pectin[J]. BMC Complementary and Alternative Medicine, 2011, 11(1):59.

DOI

[58]
冯江鑫, 陈代文, 余冰, 等. 饲粮纤维对猪肠道屏障功能的影响[J]. 动物营养学报, 2018, 30(10):3828-3835.

FENG J X, CHEN D W, YU B, et al. Effect of dietary fiber on intestinal barrier function in pigs[J]. Chinese Journal of Animal Nutrition, 2018, 30(10):3828-3835. (in Chinese)

[59]
YANG W J, YU T M, HUANG X S, et al. Intestinal microbiota-derived short-chain fatty acids regulation of immune cell IL-22 production and gut immunity[J]. Nature Communications, 2020, 11(1):4457.

DOI PMID

[60]
FUNG K Y C, COSGROVE L, LOCKETT T, et al. A review of the potential mechanisms for the lowering of colorectal oncogenesis by butyrate[J]. British Journal of Nutrition, 2012, 108(5):820-831.

DOI

[61]
BLANCO-PÉREZ F, STEIGERWALD H, SCHÜLKE S, et al. The dietary fiber pectin:health benefits and potential for the treatment of allergies by modulation of gut microbiota[J]. Current Allergy and Asthma Reports, 2021, 21(10):43.

DOI

[62]
ARPAIA N, CAMPBELL C, FAN X Y, et al. Metabolites produced by commensal bacteria promote peripheral regulatory T-cell generation[J]. Nature, 2013, 504(7480):451-455.

DOI

[63]
KIM M H, KANG S G, PARK J H, et al. Short-chain fatty acids activate GPR41 and GPR43 on intestinal epithelial cells to promote inflammatory responses in mice[J]. Gastroenterology, 2013, 145(2):396-406.e10.

DOI PMID

[64]
章娜, 李世强, 杨凯丽, 等. 膳食纤维在调节猪肠道健康与缓解肠道疾病中的作用及其机制[J]. 中国畜牧兽医, 2024, 51(8):3375-3384.

DOI

ZHANG N, LI S Q, YANG K L, et al. The role and mechanism of dietary fiber in regulating porcine intestinal health and alleviating intestinal disorders[J]. China Animal Husbandry & Veterinary Medicine, 2024, 51(8):3375-3384. (in Chinese)

[65]
COSTELLO S P, SOO W, BRYANT R V, et al. Systematic review with Meta-analysis:faecal microbiota transplantation for the induction of remission for active ulcerative colitis[J]. Alimentary Pharmacology & Therapeutics, 2017, 46(3):213-224.

[66]
RATTIGAN R, SWEENEY T, MAHER S, et al. Laminarin-rich extract improves growth performance,small intestinal morphology,gene expression of nutrient transporters and the large intestinal microbial composition of piglets during the critical post-weaning period[J]. British Journal of Nutrition, 2020, 123(3):255-263.

DOI

[67]
周迪, 黄健意. 膳食纤维能保障鸡肠道健康[J]. 养禽与禽病防治, 2022(12):2-4.

ZHOU D, HUANG J Y. Dietary fiber can ensure the intestinal health of chickens[J]. Poultry Husbandry and Disease Control, 2022(12):2-4. (in Chinese)

[68]
CANDELA M, BIAGI E, SOVERINI M, et al. Modulation of gut microbiota dysbioses in type 2 diabetic patients by macrobiotic Ma-Pi 2 diet[J]. British Journal of Nutrition, 2016, 116(1):80-93.

DOI

[69]
DE VADDER F, KOVATCHEVA-DATCHARY P, GONCALVES D, et al. Microbiota-generated metabolites promote metabolic benefits via gut-brain neural circuits[J]. Cell, 2014, 156(1/2):84-96.

DOI

[70]
HUANG S B, WU D Y, HAO X Y, et al. Dietary fiber supplementation during the last 50 days of gestation improves the farrowing performance of gilts by modulating insulin sensitivity,gut microbiota,and placental function[J]. Journal of Animal Science, 2023, 101:skad021.

DOI

[71]
RÍOS-COVIÁN D, RUAS-MADIEDO P, MARGOLLES A, et al. Intestinal short chain fatty acids and their link with diet and human health[J]. Frontiers in Microbiology, 2016, 7:185.

[72]
MEDAWAR E, HAANGE S B, ROLLE-KAMPCZYK U, et al. Gut microbiota link dietary fiber intake and short-chain fatty acid metabolism with eating behavior[J]. Translational Psychiatry, 2021, 11(1):500.

DOI PMID

[73]
KOH A, DE VADDER F, KOVATCHEVA-DATCHARY P, et al. From dietary fiber to host physiology:short-chain fatty acids as key bacterial metabolites[J]. Cell, 2016, 165(6):1332-1345.

DOI

[74]
AGUS A, PLANCHAIS J, SOKOL H. Gut microbiota regulation of tryptophan metabolism in health and disease[J]. Cell Host & Microbe, 2018, 23(6):716-724.

[75]
WANG G, FAN Y X, ZHANG G L, et al. Microbiota-derived indoles alleviate intestinal inflammation and modulate microbiome by microbial cross-feeding[J]. Microbiome, 2024, 12(1):59.

DOI PMID

[76]
HU Y, LI J, WANG B Q, et al. Interplay between diet,circulating indolepropionate concentrations and cardiometabolic health in US populations[J]. Gut, 2023, 72(12):2260-2271.

DOI

[77]
ROSSER E C, PIPER C J M, MATEI D E, et al. Microbiota-derived metabolites suppress arthritis by amplifying aryl-hydrocarbon receptor activation in regulatory B cells[J]. Cell Metabolism, 2020, 31(4):837-851.e10.

DOI PMID

[78]
DEVLIN A S, FISCHBACH M A. A biosynthetic pathway for a prominent class of microbiota-derived bile acids[J]. Nature Chemical Biology, 2015, 11(9):685-690.

DOI PMID

[79]
JIA B L, JEON C O. Promotion and induction of liver cancer by gut microbiome-mediated modulation of bile acids[J]. PLoS Pathogens, 2019, 15(9):e1007954.

DOI

[80]
许趁意. 基于助脾散精理论的“胆汁酸-FXR-肠道激素”轴调控T2DM血糖稳态的作用机制研究[D]. 博士学位论文. 成都: 成都中医药大学, 2022.

XU C Y. Study on the mechanism of “bile acid-FXR-intestinal hormones” axis regulating blood glucose homeostasis in T2DM based on the theory of Zhu-Pi-San-Jing[D].Ph.D.Thesis. Chengdu: Chengdu University of Traditional Chinese Medicine, 2022. (in Chinese)

[81]
TANG B, TANG L, LI S P, et al. Gut microbiota alters host bile acid metabolism to contribute to intrahepatic cholestasis of pregnancy[J]. Nature Communications, 2023, 14(1):1305.

DOI PMID

[82]
YOU Y H, XIANG T W, YANG C, et al. Interactions between the gut microbiota and immune cell dynamics:novel insights into the gut-bone axis[J]. Gut Microbes, 2025, 17(1):2545417.

DOI

[83]
ADLERCREUTZ H, PULKKINEN M O, HÄMÄLÄINEN E K, et al. Studies on the role of intestinal bacteria in metabolism of synthetic and natural steroid hormones[J]. Journal of Steroid Biochemistry, 1984, 20(1):217-229.

PMID

[84]
LIU R, ZHANG C H, SHI Y, et al. Dysbiosis of gut microbiota associated with clinical parameters in polycystic ovary syndrome[J]. Frontiers in Microbiology, 2017, 8:324.

DOI PMID

[85]
TAN J K, MACIA L, MACKAY C R. Dietary fiber and SCFAs in the regulation of mucosal immunity[J]. The Journal of Allergy and Clinical Immunology, 2023, 151(2):361-370.

DOI PMID

[86]
WU J M, ZHUO Y Y, LIU Y L, et al. Association between premature ovarian insufficiency and gut microbiota[J]. BMC Pregnancy and Childbirth, 2021, 21(1):418.

DOI PMID

[87]
JIANG L L, FEI H Y, TONG J F, et al. Hormone replacement therapy reverses gut microbiome and serum metabolome alterations in premature ovarian insufficiency[J]. Frontiers in Endocrinology, 2021, 12:794496.

DOI

[88]
WEAVER A C, KELLY J M, KIND K L, et al. Oocyte maturation and embryo survival in nulliparous female pigs (gilts) is improved by feeding a lupin-based high-fibre diet[J]. Reproduction Fertility and Development, 2013, 25(8):1216-1223.

DOI

[89]
ZHOU P, ZHAO Y, ZHANG P, et al. Microbial mechanistic insight into the role of inulin in improving maternal health in a pregnant sow model[J]. Frontiers in Microbiology, 2017, 8:2242.

DOI PMID

[90]
YONG W J, ZHAO Y H, JIANG X E, et al. Sodium butyrate alleviates pre-eclampsia in pregnant rats by improving the gut microbiota and short-chain fatty acid metabolites production[J]. Journal of Applied Microbiology, 2022, 132(2):1370-1383.

DOI

[91]
OH S M, HOSSEINDOUST A, HA S H, et al. Importance of dietary supplementation of soluble and insoluble fibers to sows subjected to high ambient temperatures during late gestation and effects on lactation performance[J]. Animal Nutrition, 2024, 16:73-83.

DOI PMID

[92]
ZHUO Y, CAO M, GONG Y C, et al. Gut microbial metabolism of dietary fibre protects against high energy feeding induced ovarian follicular atresia in a pig model[J]. British Journal of Nutrition, 2021, 125(1):38-49.

DOI

[93]
HAN X B, MA Y, DING S J, et al. Regulation of dietary fiber on intestinal microorganisms and its effects on animal health[J]. Animal Nutrition, 2023, 14:356-369.

DOI PMID

[94]
LIN X, YU Z X, LIU Y, et al. Gut-X axis[J]. iMeta, 2025, 4(1):e270.

DOI PMID

[95]
LEE S, GLEESON J G. Closing in on mechanisms of open neural tube defects[J]. Trends in Neurosciences, 2020, 43(7):519-532.

DOI PMID

[96]
BUSS C. Maternal oxidative stress during pregnancy and offspring neurodevelopment[J]. Brain,Behavior,and Immunity, 2021, 93:6-7.

DOI

[97]
NAKAJIMA A, HABU S, KASAI M, et al. Impact of maternal dietary gut microbial metabolites on an offspring’s systemic immune response in mouse models[J]. Bioscience of Microbiota,Food and Health, 2020, 39(2):33-38.

DOI

[98]
TORMA F, KEREPESI C, JÓKAI M, et al. Alterations of the gut microbiome are associated with epigenetic age acceleration and physical fitness[J]. Aging Cell, 2024, 23(4):e14101.

DOI

[99]
GUO L, QUAN M, PANG W J, et al. Cytokines and exosomal miRNAs in skeletal muscle-adipose crosstalk[J]. Trends in Endocrinology & Metabolism, 2023, 34(10):666-681.

[100]
YANG H, WANG T Y, QIAN C L, et al. Gut microbial-derived phenylacetylglutamine accelerates host cellular senescence[J]. Nature Aging, 2025, 5(3):401-418.

DOI PMID

[101]
HU F C, YU L, TU X Y, et al. A high-fiber diet mimics aging-related signatures of caloric restriction in mammals[J]. Nature Communications, 2025, 16(1):5917.

DOI

[102]
BROOME S C, WHITFIELD J, KARAGOUNIS L G, et al. Mitochondria as nutritional targets to maintain muscle health and physical function during ageing[J]. Sports Medicine, 2024, 54(9):2291-2309.

DOI PMID

[103]
MOHAMED A B, RÉMOND D, GUAL-GRAU A, et al. A mix of dietary fibres changes interorgan nutrients exchanges and muscle-adipose energy handling in overfed mini-pigs[J]. Nutrients, 2021, 13(12):4202.

DOI

[104]
KHIAOSA-ARD R, ZEBELI Q. Diet-induced inflammation:from gut to metabolic organs and the consequences for the health and longevity of ruminants[J]. Research in Veterinary Science, 2018, 120:17-27.

DOI

[105]
PAONE P, CANI P D. Mucus barrier,mucins and gut microbiota:the expected slimy partners?[J]. Gut, 2020, 69(12):2232-2243.

DOI

[106]
GONG H, GAN X N, QIN B Y, et al. Structural characteristics of steamed Polygonatum cyrtonema polysaccharide and its bioactivity on colitis via improving the intestinal barrier and modifying the gut microbiota[J]. Carbohydrate Polymers, 2024, 327:121669.

DOI

[107]
EARLEY A M, GRAVES C L, SHIAU C E. Critical role for a subset of intestinal macrophages in shaping gut microbiota in adult zebrafish[J]. Cell Reports, 2018, 25(2):424-436.

DOI PMID

[108]
CHEN M R, XIE W, ZHOU S D, et al. A high-concentrate diet induces colonic inflammation and barrier damage in Hu sheep[J]. Journal of Dairy Science, 2023, 106(12):9644-9662.

DOI

[109]
ELMHADI M E, ALI D K, KHOGALI M K, et al. Subacute ruminal acidosis in dairy herds:microbiological and nutritional causes,consequences,and prevention strategies[J]. Animal Nutrition, 2022, 10:148-155.

DOI

[110]
ASCHENBACH J R, ZEBELI Q, PATRA A K, et al. Symposium review:the importance of the ruminal epithelial barrier for a healthy and productive cow[J]. Journal of Dairy Science, 2019, 102(2):1866-1882.

DOI

[111]
WANG Z Y, KANG S S, WU Z H, et al. Muribaculum intestinale restricts Salmonella typhimurium colonization by converting succinate to propionate[J]. The ISME Journal, 2025, 19(1):wraf069.

[112]
SIMPSON H L, CAMPBELL B J. Review article:dietary fibre-microbiota interactions[J]. Alimentary Pharmacology & Therapeutics, 2015, 42(2):158-179.

[113]
TURNBAUGH P J, LEY R E, MAHOWALD M A, et al. An obesity-associated gut microbiome with increased capacity for energy harvest[J]. Nature, 2006, 444(7122):1027-1031.

DOI

[114]
MANN E R, LAM Y K, UHLIG H H. Short-chain fatty acids:linking diet,the microbiome and immunity[J]. Nature Reviews Immunology, 2024, 24(8):577-595.

DOI

[115]
AKASH M S H, FIAYYAZ F, REHMAN K, et al. Gut microbiota and metabolic disorders:advances in therapeutic interventions[J]. Critical Reviews in Immunology, 2019, 39(4):223-237.

DOI

[116]
NAVALÓN-MONLLOR V, SORIANO-ROMANÍ L, SILVA M, et al. Microbiota dysbiosis caused by dietetic patterns as a promoter of Alzheimer’s disease through metabolic syndrome mechanisms[J]. Food & Function, 2023, 14(16):7317-7334.

[117]
WANG Y H, WANG M, CHEN J X, et al. The gut microbiota reprograms intestinal lipid metabolism through long noncoding RNA Snhg9[J]. Science, 2023, 381(6660):851-857.

DOI

[118]
蒋起宏, 陈进宇, 沈国新, 等. 膳食果糖的代谢特征及其致病机制的研究进展[J]. 食品科学, 2025, 46(22):101-111.

JIANG Q H, CHEN J Y, SHEN G X, et al. Recent advances in understanding the metabolic characteristics and pathogenic mechanism of dietary fructose[J]. Food Science, 2025, 46(22):101-111. (in Chinese)

[119]
PISTOLLATO F, SUMALLA CANO S, ELIO I, et al. Role of gut microbiota and nutrients in amyloid formation and pathogenesis of Alzheimer disease[J]. Nutrition Reviews, 2016, 74(10):624-634.

DOI PMID

[120]
XU T, WU X Y, LIU J, et al. The regulatory roles of dietary fibers on host health via gut microbiota-derived short chain fatty acids[J]. Current Opinion in Pharmacology, 2022, 62:36-42.

DOI

[121]
LU H G, BOGDANOVIC E, YU Z W, et al. Combined hyperglycemia- and hyperinsulinemia-induced insulin resistance in adipocytes is associated with dual signaling defects mediated by PKC-ζ[J]. Endocrinology, 2018, 159(4):1658-1677.

DOI PMID

[122]
KHALID M, PETROIANU G, ADEM A. Advanced glycation end products and diabetes mellitus:mechanisms and perspectives[J]. Biomolecules, 2022, 12(4):542.

DOI

[123]
李旺林, 刘梦鳌, 曹杰, 等. TLR4在LPS诱导的结肠炎症恢复中的作用[J]. 中国病理生理杂志, 2017, 33(2):336-343.

LI W L, LIU M A, CAO J, et al. Role of TLR4 in process of colonic inflammation recovery induced by LPS[J]. Chinese Journal of Pathophysiology, 2017, 33(2):336-343. (in Chinese)

[124]
LE THUC O, STOBBE K, CANSELL C, et al. Hypothalamic inflammation and energy balance disruptions:spotlight on chemokines[J]. Frontiers in Endocrinology, 2017, 8:197.

DOI

文章导航

/