综述

鼠尾草酸的生物学功能及其改善动物肠道健康和在畜禽生产上应用的研究进展

  • 瞿章俊 ,
  • 徐伟伟 ,
  • 郑梦莉 ,
  • 陈清华 , *
展开
  • 湖南农业大学动物科学技术学院, 长沙 410128
*陈清华,教授,博士生导师,E-mail:

瞿章俊(2002—),男,湖南邵阳人,硕士研究生,从事动物营养与饲料资源开发利用研究。E-mail:

Office editor: 陈燕

收稿日期: 2025-09-11

  网络出版日期: 2026-04-14

基金资助

湖南省教育厅科学研究项目(HNJG-2020-0333)

Research Progress on Biological Functions of Carnosic Acid and Its Application in Improving Animal Intestinal Health and Livestock Production

  • QU Zhangjun ,
  • XU Weiwei ,
  • ZHENG Mengli ,
  • CHEN Qinghua , *
Expand
  • College of Animal Science and Technology, Hunan Agricultural University, Changsha 410128, China
*professor, E-mail:

Received date: 2025-09-11

  Online published: 2026-04-14

摘要

鼠尾草酸(CA)是一种存在于迷迭香和鼠尾草等植物中的二萜类化合物,具有抗氧化、抗炎、抗菌以及免疫调节等多种生物学功能。本文系统性地综述了鼠尾草酸的来源、生物学功能及其对动物肠道健康的改善作用,同时分析了鼠尾草酸及其主要来源物与来源物提取物在猪、家禽和反刍动物生产上的应用效果及作用机理,并剖析了鼠尾草酸当前面临的主要挑战与未来发展方向。

本文引用格式

瞿章俊 , 徐伟伟 , 郑梦莉 , 陈清华 . 鼠尾草酸的生物学功能及其改善动物肠道健康和在畜禽生产上应用的研究进展[J]. 动物营养学报, 2026 , 38(4) : 2448 -2458 . DOI: 10.12418/CJAN2026.196

Abstract

Carnosic acid (CA) is a diterpenoid compound found in plants such as rosemary and sage, possessing multiple biological functions including antioxidant, anti-inflammatory, antimicrobial and immunomodulatory activities. This paper systematically reviews the sources and biological functions of carnosic acid, along with its role in improving animal intestinal health. Furthermore, it analyzes the application effects and underlying mechanisms of carnosic acid, its primary source materials, and their extracts in swine, poultry and ruminant production. Current challenges and future directions for research and application of carnosic acid are also discussed.

畜牧业作为国民经济的重要支柱,其健康发展面临动物疫病的严重威胁和抗生素滥用的双重挑战。肠道健康与动物疾病密切相关,是保障高效生产和提升经济效益的关键基础[1];并且抗生素滥用会导致动物生长性能下降、肠道菌群失衡、肉蛋品质降低、耐药菌加速产生等问题。目前,植物提取物因其残留少、细菌耐药性小和有效成分易降解等优势而备受关注,植物提取物添加到饲粮中可改善动物的肠道健康并提高生产性能。
鼠尾草酸(carnosic acid,CA)作为一种天然的抗氧化剂,凭借其独特的化学结构和多样的生物活性,被应用于畜禽生产领域[2-3]。本文在系统论述鼠尾草酸抗氧化、抗炎、抑菌等基本生物学功能的基础上,重点剖析其改善动物肠道健康的作用机制,并进一步分析鼠尾草酸及其主要来源物与来源物提取物在猪、家禽和反刍动物生产上的应用效果及作用机理;此外,本文还将探讨鼠尾草酸产业化应用过程中面临的瓶颈问题,旨在为新型饲料添加剂的研究与应用提供参考。

1 鼠尾草酸的来源

鼠尾草酸最初是由Linde[4]在鼠尾草(Salvia officinalis L.)中分离得到的,是一种松香烷型二萜化合物,化学式为C20H28O4,具有弱酸性[酸解离常数负对数(pKa)为4.5~5.0],其主要存在于迷迭香、鼠尾草等唇形科植物中,尤其在迷迭香叶片中含量较高,可达(18.72±0.33) mg/g[5]。生长环境、植株发育时期和栽培品种均显著影响迷迭香中鼠尾草酸的积累。例如,人工栽培迷迭香植株的鼠尾草酸含量(68.8~73.5 mg/g)显著高于野生亲本(31.1~53.1 mg/g),且个体间的差异缩小;成熟叶的鼠尾草酸含量较新叶低(21±5)%,这是因为新叶代谢活跃且需要更高的抗氧化保护[6]

1.1 天然提取

天然提取的鼠尾草酸主要来源于迷迭香叶片[7],现有的提取方法主要包括传统溶剂提取、超临界二氧化碳(CO2)萃取、微波辅助提取、超声辅助提取等。传统溶剂提取是最常用的鼠尾草酸提取方法,其原理是利用极性溶剂溶解目标成分,具有成本低、操作简单等优点[8]。魏静等[9]采用无水溶剂提取鼠尾草酸,得到的最佳提取条件为乙酸乙酯超声提取,料液比1∶14,提取4次,每次75 min;此条件下鼠尾草酸的提取率为2.479%。超临界CO2萃取是一种绿色高效技术,适用于热不稳定成分的提取,具有无溶剂残留、选择性高等特点。Pavić等[10]通过响应面法优化超临界CO2萃取鼠尾草酸的条件,得到的最佳萃取条件为压力29.5 MPa,温度49.1 ℃,CO2流速3 kg/h;此条件下鼠尾草酸的提取率为6.54%。微波辅助提取是基于微波能量对极性分子进行选择性加热,该过程能有效改善物质的扩散效果,因此该方法更适合热稳定良好的化合物,这种快速均匀的样品加热可以缩短提取时间并减少溶剂消耗和浪费[11-12]。Liu等[13]通过使用离子液体的微波辅助方法提取鼠尾草酸,研究发现选用1.0 mol/L 1-辛基-3-甲基咪唑溴化物([C8mim]Br)溶液作为溶剂,得到最佳提取条件为固液比1∶12(g/mL)、微波辐照功率700 W、辐照时间15 min;此条件下鼠尾草酸的提取率为33.29%。超声辅助提取是一种创新技术,因其溶剂使用量少、提取时间短、仪器要求低以及经济和对环境影响小,被认为是一种“环保技术”[14]。Zu等[15]通过研究使用离子液体的超声辅助方法提取鼠尾草酸,得到最佳提取条件为固液比1∶20(g/mL),浸泡时间2 h,超声时间30 min,超声功率220 W;使用1.0 mol/L [C8mim]Br溶液作为溶剂时鼠尾草酸的提取率为66.23%。表1为采用不同方法从迷迭香中提取鼠尾草酸的最佳提取条件。
表1 采用不同方法从迷迭香中提取鼠尾草酸的最佳提取条件

Table 1 Optimal extraction conditions for carnosic acid from rosemary using different methods

方法
Methods
最佳提取条件
Optimal extraction
conditions
鼠尾草酸提取率
Extraction rate of
carnosic acid/%
参考文献
References
传统溶剂提取
Traditional solvent extraction
乙酸乙酯超声提取,料液比1∶14,
提取4次,每次75 min
2.479 [9]
超临界二氧化碳萃取
Supercritical CO2 extraction
压力29.5 MPa,温度49.1 ℃,
二氧化碳(CO2)流速3 kg/h
6.54 [10]
微波辅助提取
Microwave-assisted extraction
1.0 mol/L 1-辛基-3-甲基咪唑溴化物([C8mim]Br)溶液,
固液比1∶12(g/mL),微波辐照
功率700 W,辐照时间15 min
33.29 [13]
超声辅助提取
Ultrasound-assisted extraction
1.0 mol/L[C8mim]Br,固液比1∶20(g/mL),浸泡时间2 h,
超声时间30 min,超声功率220 W
66.23 [15]

1.2 生物合成

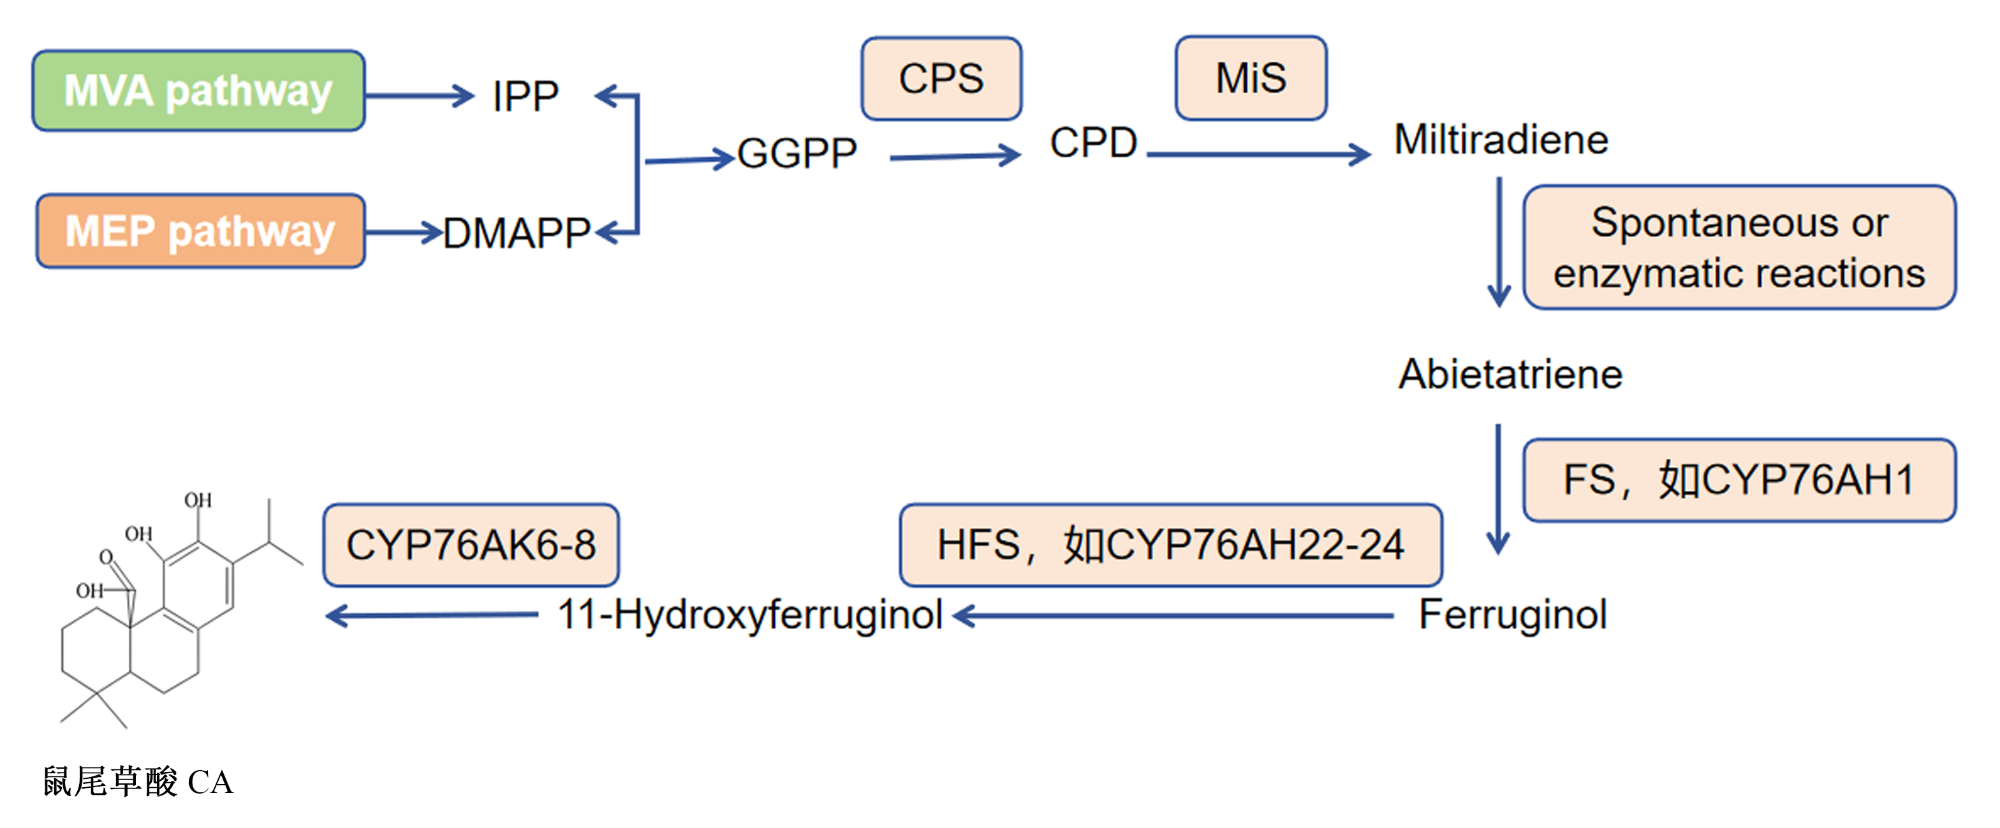
鼠尾草酸的生物合成是涉及多个代谢途径和酶的复杂过程。其生物合成的前体物质为异戊烯焦磷酸(isopentenyl pyrophosphate,IPP)和二甲基丙烯基焦磷酸(dimethylallyl pyrophosphate,DMAPP),主要通过细胞质中的甲羟戊酸(mevalonic acid,MVA)途径或质体中的甲基赤藓糖醇磷酸(methyl erythritol phosphate,MEP)途径进行合成[16],合成的IPP和DMAPP在一系列酶的作用下转化为香叶基焦磷酸(geranyl geranyl pyrophosphate,GGPP),以GGPP作为基础骨架,为后续环化反应提供原料[17]。在共丙二磷酸合成酶(co-propylene diphosphate synthase,CPS)的作用下,GGPP环化生成共丙二磷酸(CPD);随后,米替拉二烯合成酶(miltiradiene synthase,MiS)进一步催化CPD,形成米替拉二烯(miltiradiene);米替拉二烯可通过自发或酶促氧化转化为二萜三烯(abietatriene);接着,铁锈醇合成酶[ferrodiol synthase,FS,如细胞色素P450酶76AH1(CYP76AH1)]催化二萜三烯氧化,生成铁锈醇(ferruginol);然后,11-羟基铁锈醇合成酶[11-hydroxyferrodiol synthase,HFS,如细胞色素P450酶76AH22-24(CYP76AH22-24)]催化铁锈醇在C11位发生羟基化,形成11-羟基铁锈醇(11-hydroxyferruginol);最后,C20氧化酶[细胞色素P450酶76AK6-8(CYP76AK6-8)]催化11-羟基铁锈醇在C20位连续氧化,完成鼠尾草酸的生物合成[18]。鼠尾草酸的生物合成途径如图1所示。
图1 鼠尾草酸的生物合成途径

MVA pathway:甲羟戊酸途径 mevalonic acid pathway;MEP pathway:甲基赤藓糖醇磷酸途径 methyl erythritol phosphate pathway;IPP:异戊烯焦磷酸 isopentenyl pyrophosphate;DMAPP:二甲基丙烯基焦磷酸 dimethylallyl pyrophosphate;GGPP:香叶基焦磷酸 geranyl geranyl pyrophosphate;CPS:共丙二磷酸合成酶 co-propylene diphosphate synthase;CPD:共丙二磷酸 co-propylene diphosphate;MiS:米替拉二烯合成酶 miltiradiene synthase;Miltiradiene:米替拉二烯;Spontaneous or enzymatic reactions:自发或酶促反应;Abietatriene:二萜三烯;FS:铁锈醇合成酶 ferrodiol synthase;CYP76AH1:细胞色素P450酶76AH1 Cytochrome P450 enzyme 76AH1;Ferruginol:铁锈醇;HFS:11-羟基铁锈醇合成酶 11-hydroxyferrodiol synthase;CYP76AH22-24:细胞色素P450酶76AH22-24 Cytochrome P450 enzyme 76AH22-24;11-Hydroxyferruginol:11-羟基铁锈醇;CYP76AK6-8:细胞色素P450酶76AK6-8 Cytochrome P450 enzyme 76AK6-8。

Fig.1 Biosynthetic pathway of carnosic acid[18]

通过调控基因的表达或对相关酶进行改造,有望实现鼠尾草酸及其他具有重要生物活性的酚类二萜在微生物(如酿酒酵母)或植物中的高效合成。Scheler等[18]明确了鼠尾草酸在酵母细胞中的重构,为酚类二萜的代谢工程研究提供了关键基础。该技术路径可替代传统的植物提取方式,进而为鼠尾草酸及相关酚类二萜的工业化生产提供更经济、可持续的生物合成平台[19]
鼠尾草酸的天然提取方法技术成熟且安全性高、原料易获取,但提取率受原料品质影响大、能耗及后续纯化成本高,依赖植物资源易引发环保问题;而通过生物合成方法得到的产物提取率稳定、产物纯度高、反应条件温和且不依赖天然植物资源、环保性更强,不过技术门槛高(需长时间构建高效工程菌株)、发酵对无菌要求严苛,目前工业化规模小且单位成本高于天然提取。所以,天然提取仍然是目前最有效、最方便获取鼠尾草酸的方法。

2 鼠尾草酸的生物学功能

2.1 抗氧化作用

鼠尾草酸是一种具有邻二酚二萜结构的抗氧化剂,其活性主要源于2个酚羟基[20]。Li等[21]评估了不同纯度的鼠尾草酸对60 ℃条件下氧化后的塔拉籽油中过氧化值(PV)和游离脂肪酸(FFA)含量的影响,并对比了鼠尾草酸与合成抗氧化剂的抗氧化活性,结果显示:鼠尾草酸的纯度越高,PV和FFA含量越低,从而有效抑制了塔拉籽油的氧化过程;鼠尾草酸的抗氧化活性高于合成抗氧化剂叔丁基对苯二酚(TBHQ)、丁基羟基茴香醚(BHA)和二丁基羟基甲苯(BHT)。Xiang等[22]研究发现,鼠尾草酸可通过清除自由基和抑制氧化链式反应,保护蛋白质、脂质和DNA免受氧化损伤。因此,鼠尾草酸不仅能有效替代合成的抗氧化剂,而且在预防氧化应激相关疾病方面展现出潜在的应用前景。
鼠尾草酸能够增强细胞内抗氧化防御系统活动。相关研究表明,采用鼠尾草酸对核因子-κB受体活化因子配体(RANKL)诱导的小鼠RAW 264.7细胞和骨髓巨噬细胞(BMMs)进行预处理,可减少细胞内活性氧(reactive oxygen species,ROS)的生成,通过促进核因子E2相关因子2(nuclear factor erythroid 2-related factor 2,Nrf2)的核转位,上调其下游抗氧化酶——血红素加氧酶-1(heme oxygenase-1,HO-1)和NAD(P)H:醌氧化还原酶-1[NAD(P)H quinone oxidoreductase-1,NQO-1]的表达,激活Nrf2信号传导途径,并抑制破骨细胞的分化,从而有效增强细胞的抗氧化能力[23]。Liao等[24]的研究表明,鼠尾草酸处理能有效减轻异氟醚(ISO)诱导的神经元中的氧化应激,具体表现为丙二醛(MDA)水平下降,超氧化物歧化酶(superoxide dismutase,SOD)活性和谷胱甘肽(glutathione,GSH)水平上升,此外,在ISO处理的细胞中,磷酸化AMP活化蛋白激酶(phosphorylated AMP-activated protein kinase,p-AMPK)和蛋白去乙酰化酶1(sirtuin 1,SIRT1)的活性受到抑制,而鼠尾草酸处理则有效抑制了ISO诱导的神经元中AMP活化蛋白激酶(AMPK)和SIRT1活性的升高。由此可见,鼠尾草酸可以通过激活AMPK/SIRT1信号通路,减轻ISO诱导的氧化应激。综上所述,鼠尾草酸通过双重机制发挥抗氧化作用:一方面,激活Nrf2信号通路,上调HO-1、NQO-1表达,降低ROS水平;另一方面,调控AMPK/SIRT1信号通路,降低MDA水平,提升SOD活性和GSH水平,减轻神经元氧化损伤。这种多靶点作用使其成为对抗氧化应激的潜在治疗剂。

2.2 抗炎作用

炎症是机体针对病原体入侵、组织损伤或异物存在所产生的一种防御性反应,其目的在于清除病原体、修复受损组织,并恢复机体内环境的平衡,但是过度炎症会导致特定组织器官损伤、功能异常,并伴随关键促炎因子水平和炎症相关酶活性的升高。鼠尾草酸通过调控关键炎症信号通路、减少促炎因子释放来发挥抗炎作用,同时对炎症损伤的器官具有保护效果。Liu等[25]使用脂多糖(LPS)诱导肉鸡心脏发生炎症反应,导致炎症相关细胞因子肿瘤坏死因子-α(TNF-α)、白细胞介素-6(IL-6)、白细胞介素-1β(IL-1β)的水平及诱导型一氧化氮合酶(iNOS)的活性升高,在连续7 d给予中剂量(40 mg/d)和高剂量(80 mg/d)的鼠尾草酸后,这些炎症相关细胞因子的水平显著降低,心脏功能得到增强,这证实了其有效的抗炎和心脏保护作用。Kuo等[26]研究表明,经过LPS处理过的小鼠RAW 264.7巨噬细胞在鼠尾草酸给药后,能呈剂量依赖性地抑制一氧化氮(NO)和TNF-α产生,并显著降低iNOS、环氧合酶-2(cyclooxygenase-2,COX-2)、磷酸化核因子-κB抑制蛋白(p-IκB)及核因子-κB(nuclear factor-kappa B,NF-κB)的表达水平,以达到抗炎效果。Danisman等[27]研究发现,100 mg/kg鼠尾草酸对吲哚美辛(IND)诱导的Wistar雄性大鼠胃溃疡有缓解作用,它通过抑制IL-1β、IL-6、TNF-α的产生和增加Nrf2、HO-1的表达来减轻炎症损伤,从而达到对胃的保护作用。另外,体外试验结果证实,添加1 μmol/L的鼠尾草酸能够减少百草枯(PQ)诱导的人神经母细胞瘤SH-SY5Y细胞炎症发生率,其作用机制为:激活暴露于PQ的SH-SY5Y细胞中Nrf2/HO-1轴,进而下调NF-κB转录因子活性,该过程抑制了PQ诱导的IL-1β、TNF-α等促炎因子水平升高和COX-2活性增强,并阻断了iNOS的NF-κB依赖性上调和随之而来的NO水平上升,最终发挥抗炎作用[28]。综上所述,鼠尾草酸可通过调控NF-κB、Nrf2/HO-1等炎症信号通路,减少TNF-α、IL-6等促炎因子释放,并清除ROS,从而发挥抗炎作用。

2.3 抑菌和免疫调节作用

鼠尾草酸是一种化学性质稳定的天然抗菌剂,对多种细菌和病原体展现出显著的抗菌活性,广泛应用于食品添加剂、饲料成分、药用化合物及保健品领域[29-30]。鼠尾草酸的抑菌机制主要通过破坏细胞膜、改变细菌代谢以及损害氧化呼吸来实现,在0.2 mg/mL的浓度下,鼠尾草酸能有效抑制腐败希瓦氏菌的增殖;而在0.4 mg/mL的浓度时,则可完全杀灭该细菌[31]。Arun等[32]评估了鼠尾草酸作为根管内药物对粪肠球菌的抑菌效果,发现其抑菌效果与作为根管内药物金标准的氢氧化钙相当,这一结果可能源于鼠尾草酸本身具备的脂溶性,该特性使其能够调节细菌生物膜通透性,并进一步穿透细菌生物膜发挥作用。夏田娟等[33]选取大肠埃希氏菌、金黄色葡萄球菌、表皮葡萄球菌、绿脓假单胞菌、产气肠杆菌、肺炎克雷伯氏菌作为研究对象进行抑菌活性研究,发现鼠尾草酸粗品和鼠尾草酸纯品均能抑制这些细菌的生长繁殖,且整体呈现出较好的抑菌效果。Gao等[34]研究表明,将鼠尾草酸封装在Lewis肺癌(LLC)细胞膜内,合成一种肿瘤特异性仿生Wnt通路抑制因子(CM-CA),通过破坏β-连环蛋白(β-catenin)与B细胞淋巴瘤-9(Bcl-9)的相互作用,抑制Wnt/β-catenin信号通路,进而减少肿瘤细胞增殖、促进其凋亡,同时能促进肿瘤组织中T细胞浸润并增强免疫反应,且具有良好的生物安全性。Liu等[35]研究发现,通过构建一种由酸性响应肽与鼠尾草酸自组装形成的超分子液滴(Pep1@CA),可靶向肿瘤酸性微环境并特异性抑制Wnt/β-catenin信号通路,通过降低β-catenin及其下游靶基因的表达水平,有效抑制肿瘤细胞增殖、诱导细胞凋亡,并在Wnt过度激活的非小细胞肺癌模型中恢复CD8阳性(CD8+)T细胞浸润、减少调节性T细胞(Tregs),从而重新激活T细胞免疫,展现出显著的免疫调节作用及抗肿瘤效果,且不增加生物毒性。以上研究表明,鼠尾草酸在免疫调节方面同样能发挥关键作用,其作为一种天然物质,能够有效增强动物机体的免疫功能,是极具开发潜力的优质资源。

2.4 其他生物学功能

除了上述生物学功能外,鼠尾草酸还具有保护神经、护肝、抗肿瘤等多重作用。Liu等[36]利用SH-SY5Y人神经母细胞瘤细胞构建体外阿尔茨海默病(AD)模型,发现鼠尾草酸主要通过抑制N-甲基-D-天冬氨酸受体2B亚型(NMDAR2B)磷酸化,进而有效遏制钙离子过载,并促进细胞外信号调节激酶(ERK)-cAMP反应元件结合蛋白(CREB)通路的激活,从而防止β淀粉样蛋白寡聚体(AβOS)诱导的神经毒性,这一机制不仅显著提高了神经元的存活率,还能有效修复突触损伤,对于预防AD具有重要的临床意义。鼠尾草酸已被证明可抑制多种癌细胞的增殖并诱导细胞凋亡。El-Huneidi等[37]研究表明,1~200 μg/mL的鼠尾草酸(呈剂量依赖性)通过抑制蛋白激酶B(Akt)/雷帕霉素靶蛋白(mTOR)信号通路的磷酸化/激活,增强聚腺苷二磷酸核糖聚合酶(PARP)的切割,并下调存活素的表达,从而有效抑制人胃癌细胞(AGS和MKN-45)的增殖和存活。此外,鼠尾草酸还能诱导细胞周期停滞在G1期,减少G1和G2-M期的细胞数量。O’Neill等[38]的研究发现,5~150 μmol/L的鼠尾草酸通过上调应激诱导蛋白2(sestrin-2)的表达,促进肝脏激酶B1(LKB1)和AMPK的磷酸化,升高自噬标志物微管相关蛋白1轻链3-Ⅱ(LC3-Ⅱ)水平及裂解的半胱氨酸蛋白酶[半胱天冬酶-3(Caspase-3)、半胱天冬酶-7(Caspase-7)]和PARP的活性,同时降低B细胞淋巴瘤-2(Bcl-2)的水平,从而诱导H1299非小细胞肺癌细胞的凋亡。

3 鼠尾草酸改善动物肠道健康的研究进展

在饲料禁抗的大背景下,鼠尾草酸作为天然抗生素替代物优势显著,它除了具备抗氧化、抗炎等多种生物学功能,在改善动物肠道健康上作用同样突出。一方面,鼠尾草酸可维持肠道黏膜完整性,加固肠道屏障,抵御病原菌侵袭;另一方面,鼠尾草酸能重塑肠道菌群,抑制有害菌滋生,营造良好肠道生态环境[39]。尽管鼠尾草酸已展现出巨大应用潜力,但在不同动物种类、生长阶段的精准添加剂量,以及长期使用的稳定性等方面,仍需进一步探索,以推动其在养殖业的高效应用。

3.1 改善肠道屏障

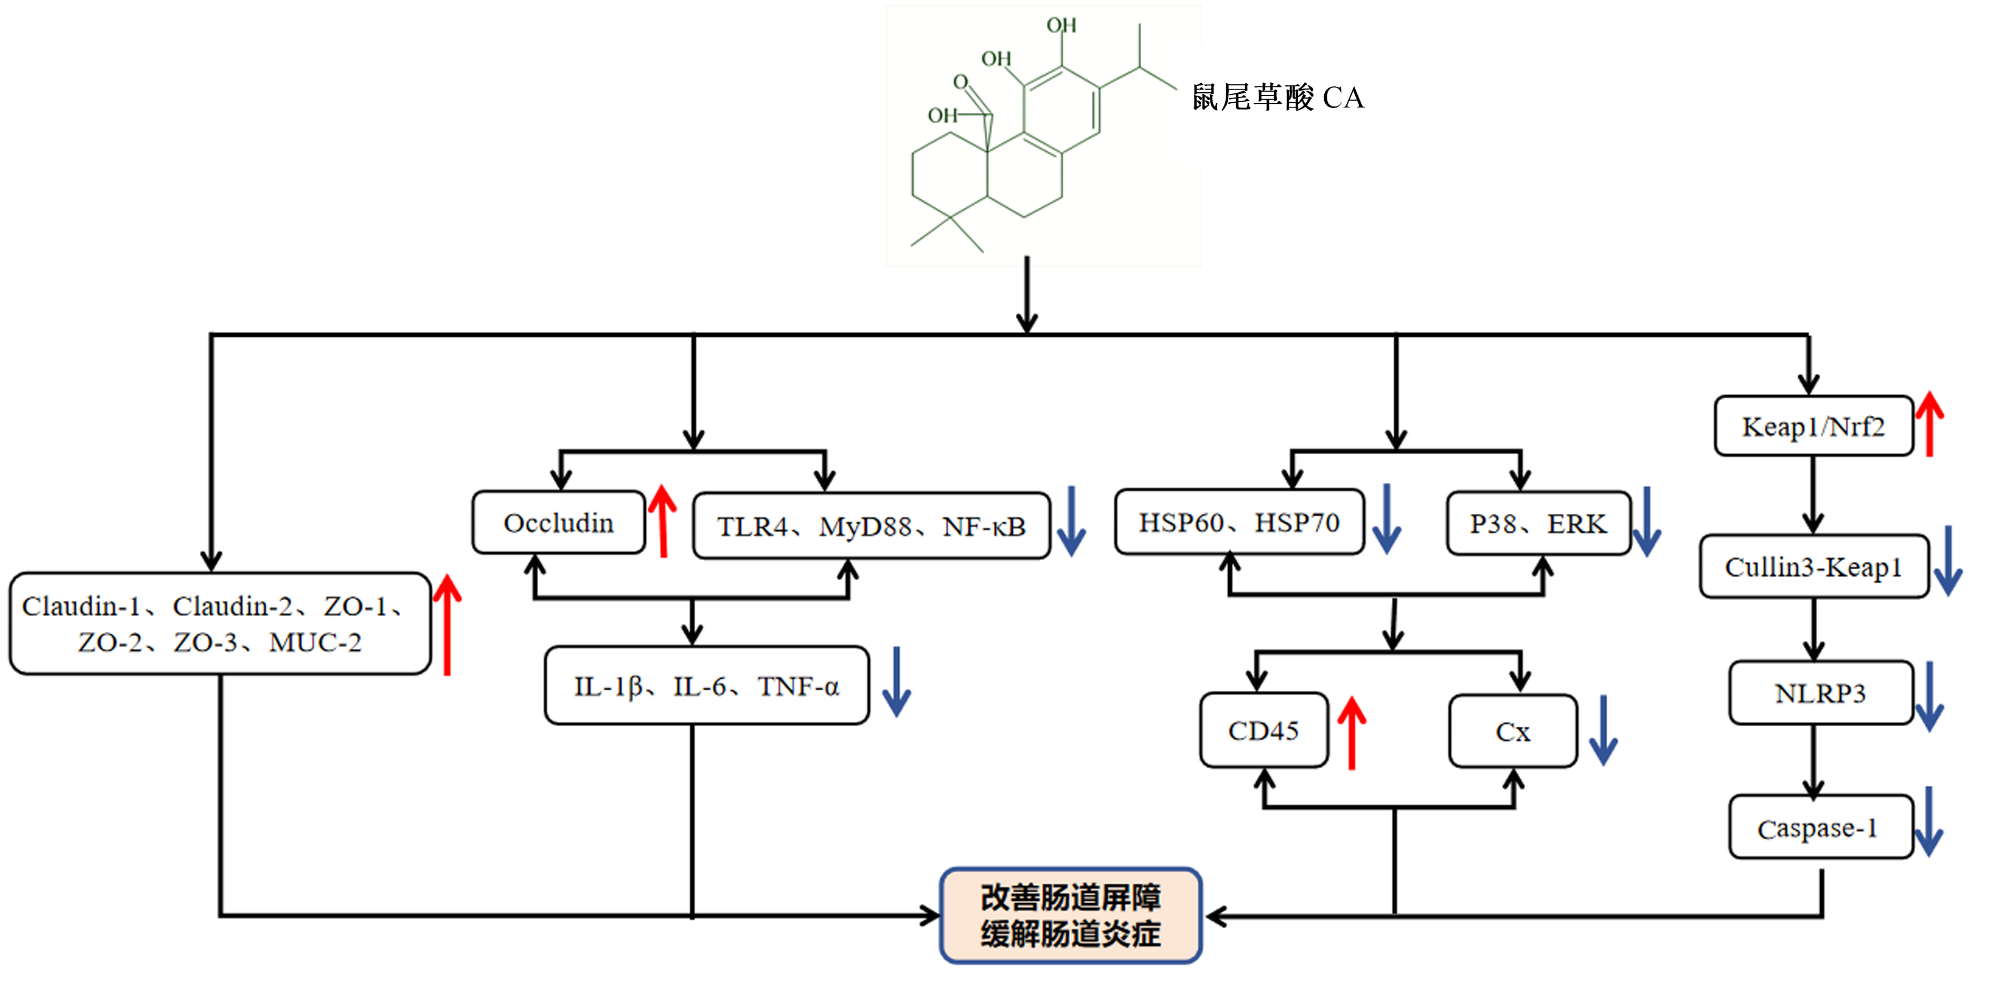
Zhang等[40]的研究表明,饲喂50和100 mg/kg BW鼠尾草酸,能够促进由60%高脂饲粮喂养的肥胖小鼠肠道中闭锁蛋白(Occludin)的表达,并通过抑制Toll样受体4(Toll-like receptor 4,TLR4)/髓系分化因子88(myeloid differentiation primary response protein 88,MyD88)/NF-κB炎症信号通路,降低结肠中IL-1β、IL-6和TNF-α的水平,从而增强肠道屏障功能,减轻结肠炎症。LPS刺激会增强肠道屏障通透性,血浆中D-乳酸(D-LA)和内毒素(ET)水平升高通常是肠通透性增加的标志。Wang等[41]发现,20、40、60 mg/kg鼠尾草酸可降低LPS处理引起的肉鸡血浆中D-LA和ET水平升高,且40、60 mg/kg鼠尾草酸能够显著提高肠道紧密连接蛋白[闭合蛋白-1(Claudin-1)、闭合蛋白-2(Claudin-2)、闭锁小带蛋白-1(ZO-1)、闭锁小带蛋白-2(ZO-2)和闭锁小带蛋白-3(ZO-3)]和黏蛋白2(MUC-2)的表达水平并增加十二指肠杯状细胞的数量,缓解肠道通透性的增加,维持肠道的完整性。

3.2 调节肠道菌群平衡

相关研究表明,肠道菌群与肠道内的营养物质转化、免疫调控以及抗病原体能力密切相关,菌群调节失衡,将直接影响其生长、健康及适应性[42]。Du等[43]研究发现,50、100、200 mg/kg剂量的鼠尾草酸通过增加肠道菌群多样性、调节菌群组成(如恢复厚壁菌门/拟杆菌门比值、增加乳酸菌和双歧杆菌等益生菌丰度、减少相关致病菌)及改善相关代谢物,对葡聚糖硫酸钠(dextran sulfate sodium,DSS)诱导的结肠炎小鼠发挥保护作用,且200 mg/kg剂量在部分指标上效果更显著。在高脂饮食中添加0.1%或0.2%的鼠尾草酸,可通过调节高脂饮食诱导肥胖小鼠的肠道菌群结构,以剂量依赖方式降低厚壁菌门/拟杆菌门比值,增加嗜黏蛋白阿克曼菌(Akkermansia muciniphila)等有益菌丰度,减少与胆汁酸代谢相关的嗜胆菌属(Bilophila)、梭菌属(Clostridium)、乳杆菌属(Lactobacillus)和明串珠菌属(Leuconostoc)的丰度等,促进肠道菌群平衡,进而发挥抗肥胖作用[44]

3.3 缓解肠道炎症

Wan等[45]研究表明,在LPS诱导的家禽肠道炎症模型中,鼠尾草酸通过下调肠道中热休克蛋白60(HSP60)、热休克蛋白70(HSP70)水平,抑制LPS激活的p38丝裂原活化蛋白激酶(p38 MAPK)和ERK信号通路,降低炎症细胞标志物C型酪氨酸磷酸酶受体[如分化簇45(CD45)]的表达水平以减轻炎症细胞浸润,并上调连接蛋白(Cx)水平以维护肠道结构完整性,从而缓解肠道炎症。Yang等[46]发现,鼠尾草酸通过激活Kelch样ECH相关蛋白1(Kelch-like ECH-associated protein 1,Keap1)/Nrf2信号通路,阻断Cullin家族蛋白3(Cullin3)与Keap1的相互作用,减少Nrf2的泛素化降解,缓解氧化应激;同时,核苷酸结合寡聚化结构域样受体蛋白3(NLRP3)炎症小体活化被抑制,半胱天冬酶-1(Caspase-1)活性降低,这可能与Nrf2介导的氧化应激有关;且鼠尾草酸能够抑制NF-κB和c-Jun氨基末端激酶(JNK)信号通路,减少核因子-κB抑制蛋白α(IκBα)和JNK的磷酸化,降低促炎因子[如TNF-α、IL-6、白细胞介素-17A(IL-17A)和IL-1β]的生成,减少小鼠结肠中F4/80阳性(F4/80+)巨噬细胞浸润和髓过氧化物酶(MPO)活性,改善肠道病理损伤(如隐窝结构破坏和杯状细胞缺失)从而缓解DSS诱导的急性结肠炎,为炎症性肠病(IBD)的治疗提供了潜在策略。图2为鼠尾草酸改善肠道屏障和缓解肠道炎症机制示意图。
图2 鼠尾草酸改善肠道屏障和缓解肠道炎症机制示意图

Claudin-1:闭合蛋白-1;Claudin-2:闭合蛋白-2;ZO-1:闭锁小带蛋白-1 zonula occludens-1;ZO-2:闭锁小带蛋白-2 zonula occludens-2;ZO-3:闭锁小带蛋白-3 zonula occludens-3;MUC-2:黏蛋白2 mucin 2;Occludin:闭锁蛋白;TLR4:Toll样受体4 Toll-like receptor 4;MyD88:髓系分化因子88 myeloid differentiation primary response protein 88;NF-κB:核因子-κB nuclear factor-kappa B;IL-1β:白细胞介素-1β interleukin-1 beta;IL-6:白细胞介素-6 interleukin-6;TNF-α:肿瘤坏死因子-α tumor necrosis factor-alpha;HSP60:热休克蛋白60 heat shock protein 60;HSP70:热休克蛋白70 heat shock protein 70;p38 MAPK:p38丝裂原活化蛋白激酶 p38 mitogen-activated protein kinase;ERK:细胞外信号调节激酶 extracellular signal-regulated kinases;CD45:分化簇45 cluster of differentiation 45;Cx:连接蛋白 connexin;Keap1/Nrf2:Kelch样ECH相关蛋白1/核因子E2相关因子2 Kelch-like ECH-associated protein 1/nuclear factor erythroid 2-related factor 2;Cullin3-Keap1:Cullin家族蛋白3与Kelch样ECH相关蛋白1相互作用 cullin family protein 3 interacts with Kelch-like ECH-associated protein 1;NLRP3:核苷酸结合寡聚化结构域样受体蛋白3 NOD-like receptor protein 3;Caspase-1:半胱天冬酶-1。

Fig.2 Schematic diagram of mechanism by which carnosic acid improves intestinal barrier and alleviates intestinal inflammation[40-41,45-46]

4 鼠尾草酸及其主要来源物与来源物提取物在畜禽生产上的应用

植物提取物作为一种安全、高效、绿色的天然添加剂,因其抗氧化、抗菌、抗炎等多种生物活性,在无抗养殖和功能性畜产品开发中具有广阔前景。目前,关于鼠尾草酸直接应用于畜禽生产的研究相对较少,然而,鼠尾草酸的主要来源物及其来源物提取物已在畜禽生产领域得到了较为广泛的应用。
Peng等[47]研究表明,鼠尾草酸能改善猪早期胚胎发育,在体外培养试验证实,添加10 μmol/L鼠尾草酸可显著提高孤雌激活胚胎的卵裂率、囊胚形成率、孵化率及囊胚总细胞数,增大囊胚直径;其通过减少ROS积累、提高GSH水平发挥抗氧化作用,即使在过氧化氢(H2O2)诱导下也能抑制ROS水平升高,还能增强线粒体膜电位(ΔΨm)以提升线粒体功能,同时上调多能性相关基因[胚胎干细胞多能性关键转录因子(Nanog)、SRY相关HMG 框转录因子2(Sox2)]、孵化相关基因[Cox-2、GATA结合蛋白4(Gata4)和整合素α5(Itga5)]和抗凋亡基因[雷帕霉素不敏感伴随蛋白(Rictor)]的表达,下调凋亡相关基因[Caspase-3、凋亡抑制蛋白家族成员5(Birc5)]的表达,从而减少囊胚凋亡率,改善胚胎质量。
鼠尾草酸和鼠尾草酚是迷迭香提取物的主要成分[48]。蒋治国[49]研究发现,在仔猪饲粮中添加200、400和600 mg/kg迷迭香提取物,断奶仔猪血清中抗氧化酶SOD和过氧化氢酶(CAT)活性显著提高,血清中MDA水平显著下降,从而提高了仔猪的抗氧化能力;同时,200 mg/kg的迷迭香提取物还能够显著提高仔猪断奶后的平均日增重与平均日采食量,有效降低料重比,从而提高了仔猪的生长性能。有相关研究表明,在高产奶牛饲粮中添加28 g/d迷迭香提取物可以显著增加牛奶和乳糖产量,提高奶牛的生产性能;同时,还能显著升高血浆SOD活性,显著降低血浆MDA水平,改善了奶牛抗氧化状态并增加了丙酸生成的潜力[50]。Zhang等[51]研究表明,在产蛋后期的蛋鸡饲粮中添加200 mg/kg迷迭香提取物,可清除机体中过量的ROS,减轻黏膜氧化损伤,增加蛋鸡哈夫单位,从而提高蛋鸡的生产性能和蛋品质。
迷迭香精油对畜禽的繁殖性能、肉品质、孵化率等方面具有显著促进作用。Adil等[52]研究表明,在肉鸡饲粮中添加200 mg/kg的纳米胶囊化迷迭香精油,能显著提升增重和饲料转化率,增加胸肌率和大腿肌率,同时显著降低腹脂率,从而有效提高肉鸡的生长性能,并改善其肉品质及胴体性状。Ali等[53]研究表明,在饲粮中添加2 mg/kg BW迷迭香精油可显著提高巴尔基公羊精子细胞浓度、精子个体活动力和睾酮浓度,改善精囊和前列腺等生殖腺功能,提高精子质量和繁殖性能。Aberbour等[54]在日本鹌鹑蛋内注射迷迭香精油,结果表明,蛋内注射低浓度(1 μL/蛋)的迷迭香精油有利于提高鹌鹑胚胎的孵化率和雏鸡孵化时的相对体重,且与注射蒸馏水相比,注射迷迭香精油可以防止蛋壳穿孔造成的损害,所以,用迷迭香精油富集鸡蛋可能是家禽养殖中作为传统生长促进剂的合适替代品。
在罗曼褐蛋鸡饲粮中添加不同剂量的迷迭香叶粉,结果表明,饲粮添加5.2%迷迭香叶粉能提高蛋鸡的日产蛋量、蛋重和饲料转化率;饲粮添加3.5%和5.2%迷迭香叶粉均能显著提高蛋壳重量和蛋壳强度[55]。Zhang等[56]研究发现,饲粮添加0.3%迷迭香叶粉能显著提高蛋鸡的哈夫单位,且能提高机体血清SOD等抗氧化酶活性并调节TNF-α等炎症相关细胞因子的分泌,从而减少氧化损伤,同时增加空肠ZO-1的mRNA表达水平,改善肠道屏障功能,有利于提高蛋鸡生产后期的蛋品质。综上可知,从蛋品质调控的角度来看,迷迭香叶粉可起到显著的促进与提升作用。

5 小结与展望

鼠尾草酸作为新型饲料添加剂,在抗氧化、抗炎、抑菌等方面效果显著,其机制涉及调控Nrf2、NF-κB、AMPK/SIRT1等关键信号通路。在动物肠道健康方面,鼠尾草酸通过增强肠道屏障功能、调节菌群平衡及缓解肠道炎症,有效改善猪、家禽和反刍动物的生产性能与健康状态。此外,其在神经保护、抗肿瘤等方面的潜在应用价值也备受关注。
尽管鼠尾草酸展现出广阔的应用前景,但仍面临一些挑战。其在畜禽生产上的应用研究较少,作用机制尚不十分清楚,需进一步明确不同动物种类和生长阶段的最适添加剂量,并解决长期使用的稳定性问题。鼠尾草酸在未来有望成为替代抗生素的新型绿色添加剂,为畜牧业可持续发展提供重要支持,同时在功能性食品和医药领域也具有潜在开发价值。
[1]
KOGUT M H, ARSENAULT R J. Editorial:gut health:the new paradigm in food animal production[J]. Frontiers in Veterinary Science, 2016, 3:71.

[2]
BIRTIĆ S, DUSSORT P, PIERRE F X, et al. Carnosic acid[J]. Phytochemistry, 2015, 115:9-19.

DOI PMID

[3]
MOLONEY M G. Natural products as a source for novel antibiotics[J]. Trends in Pharmacological Sciences, 2016, 37(8):689-701.

DOI PMID

[4]
LINDE H. Ein neues Diterpen aus Salvia officinalis L.und eine Notiz zur Konstitution von Pikrosalvin[J]. Helvetica Chimica Acta, 1964, 47(5):1234-1239.

DOI

[5]
ERCAN P, EL S N. Bioaccessibility and inhibitory effects on digestive enzymes of carnosic acid in sage and rosemary[J]. International Journal of Biological Macromolecules, 2018, 115:933-939.

DOI PMID

[6]
HIDALGO P J, UBERA J L, TENA M T, et al. Determination of the carnosic acid content in wild and cultivated Rosmarinus officinalis[J]. Journal of Agricultural and Food Chemistry, 1998, 46(7):2624-2627.

DOI

[7]
ARRANZ E, JAIME L, GARCÍA-RISCO M R, et al. Anti-inflammatory activity of rosemary extracts obtained by supercritical carbon dioxide enriched in carnosic acid and carnosol[J]. International Journal of Food Science and Technology, 2015, 50(3):674-681.

DOI

[8]
张彦昕, 柴贝贝, 石玉节, 等. 迷迭香三种成分提取及其体外抗氧化和抑菌活性研究[J]. 云南化工, 2025, 52(1):63-68.

ZHANG Y X, CHAI B B, SHI Y J, et al. Extraction and isolation of three components from rosemary and their antioxidant and antibacterial activities in vitro[J]. Yunnan Chemical Technology, 2025, 52(1):63-68. (in Chinese)

[9]
魏静, 王尚文, 于浩飞, 等. 迷迭香叶中鼠尾草酸的提取工艺研究[J]. 昆明医科大学学报, 2015, 36(1):58-61.

WEI J, WANG S W, YU H F, et al. Study on the extraction process for carnosic acid from Rosmarinus officinalis Linn[J]. Journal of Kunming Medical University, 2015, 36(1):58-61. (in Chinese)

[10]
PAVIĆ V, JAKOVLJEVIĆ M, MOLNAR M, et al. Extraction of carnosic acid and carnosol from sage (Salvia officinalis L.) leaves by supercritical fluid extraction and their antioxidant and antibacterial activity[J]. Plants, 2019, 8(1):16.

DOI

[11]
DESTANDAU E, MICHEL T. Microwave-assisted extraction[M]// ROSTAGNOM A, PRADOJ M. Natural product extraction:principles and applications. 2nd edition. London: The Royal Society of Chemistry, 2022:144-201.

[12]
ELMAS E, ŞEN F B, KUBLAY Ī Z, et al. Green extraction of antioxidants from hazelnut by-products using microwave-assisted extraction,ultrasound-assisted extraction,and pressurized liquid extraction[J]. Food and Bioprocess Technology, 2025, 18(6):5388-5406.

DOI

[13]
LIU T T, SUI X Y, ZHANG R R, et al. Application of ionic liquids based microwave-assisted simultaneous extraction of carnosic acid,rosmarinic acid and essential oil from Rosmarinus officinalis[J]. Journal of Chromatography A, 2011, 1218(47):8480-8489.

DOI

[14]
MOLINA-HERNANDEZ J B, TAPPI S, GIANNINI G, et al. Comparison of ultrasound-assisted extraction of pumpkin seed oil (Curcubita mochata) with conventional extraction methods:response surface methodology for the optimizing of ultrasound-assisted extraction[J]. Food Analytical Methods, 2025, 18(5):856-866.

DOI

[15]
ZU G, ZHANG R R, YANG L, et al. Ultrasound-assisted extraction of carnosic acid and rosmarinic acid using ionic liquid solution from Rosmarinus officinalis[J]. International Journal of Molecular Sciences, 2012, 13(9):11027-11043.

DOI

[16]
HAN D L, LI W L, HOU Z W, et al. The chromosome-scale assembly of the Salvia rosmarinus genome provides insight into carnosic acid biosynthesis[J]. The Plant Journal, 2023, 113(4):819-832.

DOI

[17]
CHEN F, THOLL D, BOHLMANN J, et al. The family of terpene synthases in plants:a mid-size family of genes for specialized metabolism that is highly diversified throughout the kingdom[J]. The Plant Journal, 2011, 66(1):212-229.

DOI

[18]
SCHELER U, BRANDT W, PORZEL A, et al. Elucidation of the biosynthesis of carnosic acid and its reconstitution in yeast[J]. Nature Communications, 2016, 7(1):12942.

DOI

[19]
WEI P P, ZHANG C B, BIAN X K, et al. Metabolic engineering of Saccharomyces cerevisiae for heterologous carnosic acid production[J]. Frontiers in Bioengineering and Biotechnology, 2022, 10:916605.

DOI

[20]
WEI J, LIANG Q, GUO Y X, et al. A deep insight in the antioxidant property of carnosic acid:from computational study to experimental analysis[J]. Foods, 2021, 10(10):2279.

DOI

[21]
LI Z J, YANG F J, YANG L, et al. Comparison of the antioxidant effects of carnosic acid and synthetic antioxidants on tara seed oil[J]. Chemistry Central Journal, 2018, 12(1):37.

DOI

[22]
XIANG Q S, LIU Q, XU L, et al. Carnosic acid protects biomolecules from free radical-mediated oxidative damage in vitro[J]. Food Science and Biotechnology, 2013, 22(5):1-8.

[23]
THUMMURI D, NAIDU V G M, CHAUDHARI P. Carnosic acid attenuates RANKL-induced oxidative stress and osteoclastogenesis via induction of Nrf2 and suppression of NF-κB and MAPK signalling[J]. Journal of Molecular Medicine, 2017, 95(10):1065-1076.

DOI PMID

[24]
LIAO O, XIE K Q, ZHANG X J, et al. Carnosic acid attenuates inflammation,oxidative stress and mitochondrial dysfunction in neurons via activation of AMPK/SIRT1 pathway[J]. Tropical Journal of Pharmaceutical Research, 2022, 21(11):2359-2365.

DOI

[25]
LIU S R, LIANG W Q, WU J X, et al. Alleviation of lipopolysaccharide-induced heart inflammation in poultry treated with carnosic acid via the NF-κB and MAPK pathways[J]. Journal of Animal Science, 2025, 103:skae373.

DOI

[26]
KUO C F, SU J D, CHIU C H, et al. Anti-inflammatory effects of supercritical carbon dioxide extract and its isolated carnosic acid from Rosmarinus officinalis leaves[J]. Journal of Agricultural and Food Chemistry, 2011, 59(8):3674-3685.

DOI

[27]
DANISMAN B, CICEK B, YILDIRIM S, et al. Carnosic acid ameliorates indomethacin-induced gastric ulceration in rats by alleviating oxidative stress and inflammation[J]. Biomedicines, 2023, 11(3):829.

DOI

[28]
DE OLIVEIRA M R, DE SOUZA I C C, FÜRSTENAU C R. Carnosic acid induces anti-inflammatory effects in paraquat-treated SH-SY5Y cells through a mechanism involving a crosstalk between the Nrf2/HO-1 axis and NF-κB[J]. Molecular Neurobiology, 2018, 55(1):890-897.

DOI PMID

[29]
BIAŁEK M, KARPIÑSKA M, CZAUDERNA M. Enrichment of lamb rations with carnosic acid and seleno-compounds affects the content of selected lipids and tocopherols in the pancreas[J]. Journal of Animal and Feed Sciences, 2022, 31(2):161-174.

DOI

[30]
MANTZOURANI C, TARANTILIS P A, KOKOTOU M G. Carnosic acid and carnosol:analytical methods for their determination in plants,foods and biological samples[J]. Separations, 2023, 10(9):481.

DOI

[31]
ZHANG Y F, WU W B, SUN J F, et al. Metabolomics revealed the antibacterial mechanism of carnosic acid against Shewanella putrefaciens[J]. Food Bioscience, 2025, 68:106767.

DOI

[32]
ARUN V, GOVINDARAJU L, PARANTHAMAN R V, et al. Antibacterial efficacy of carnosic acid as an intracanal medicament against Enterococcus faecalis:quantitative polymerase chain reaction study[J]. Journal of Conservative Dentistry and Endodontics, 2024, 27(10):1010-1014.

DOI

[33]
夏田娟, 毕良武, 赵振东, 等. 鼠尾草酸的抗氧化活性及抑菌活性研究[J]. 天然产物研究与开发, 2015, 27(1):35-40.

XIA T J, BI L W, ZHAO Z D, et al. Study on antioxidant and antibacterial activities of carnosic acid[J]. Natural Product Research and Development, 2015, 27(1):35-40. (in Chinese)

DOI

[34]
GAO R Q, ZHENG X Q, JIANG A M, et al. Modulating β-catenin/BCL9 interaction with cell-membrane-camouflaged carnosic acid to inhibit Wnt pathway and enhance tumor immune response[J]. Frontiers in Immunology, 2023, 14:1274223.

DOI

[35]
LIU N, TU Y Z, WANG H Y, et al. Reactivating T cell immunity in Wnt-hyperactivated non-small cell lung cancer through a supramolecular droplet of carnosic acid and peptide[J]. Journal of Pharmaceutical Analysis, 2025, 15(12):101309.

DOI

[36]
LIU W Y, LI Y, LI Y, et al. Carnosic acid attenuates AβOs-induced apoptosis and synaptic impairment via regulating NMDAR2B and its downstream cascades in SH-SY5Y cells[J]. Molecular Neurobiology, 2023, 60(1):133-144.

DOI

[37]
EL-HUNEIDI W, BAJBOUJ K, MUHAMMAD J S, et al. Carnosic acid induces apoptosis and inhibits Akt/mTOR signaling in human gastric cancer cell lines[J]. Pharmaceuticals, 2021, 14(3):230.

DOI

[38]
O’NEILL E J, SZE N S K, MACPHERSON R E K, et al. Carnosic acid against lung cancer:induction of autophagy and activation of sestrin-2/LKB1/AMPK signalling[J]. International Journal of Molecular Sciences, 2024, 25(4):1950.

DOI

[39]
OU J Y, HUANG J Q, ZHAO D Y, et al. Protective effect of rosmarinic acid and carnosic acid against streptozotocin-induced oxidation,glycation,inflammation and microbiota imbalance in diabetic rats[J]. Food & Function, 2018, 9(2):851-860.

[40]
ZHANG J, SHEN M Z, YIN Y, et al. Carnosic acid reduces lipid content,enhances gut health,and modulates microbiota composition and metabolism in diet-induced obese mice[J]. Food & Function, 2025, 16(5):1888-1902.

[41]
WANG Q, LI J W, LI G H, et al. Protective effects of carnosic acid on growth performance,intestinal barrier,and cecal microbiota in yellow-feathered broilers under lipopolysaccharide challenge[J]. Poultry Science, 2025, 104(2):104688.

DOI

[42]
ZHANG L, ZHANG Z Y, XU L, et al. Maintaining the balance of intestinal flora through the diet:effective prevention of illness[J]. Foods, 2021, 10(10):2312.

DOI

[43]
DU C H, LI Z J, ZHANG J, et al. The protective effect of carnosic acid on dextran sulfate sodium-induced colitis based on metabolomics and gut microbiota analysis[J]. Food Science and Human Wellness, 2023, 12(4):1212-1223.

DOI

[44]
HE X, ZHANG M, LI S T, et al. Alteration of gut microbiota in high-fat diet-induced obese mice using carnosic acid from rosemary[J]. Food Science & Nutrition, 2022, 10(7):2325-2332.

DOI

[45]
WAN S S, LI X Y, LIU S R, et al. The function of carnosic acid in lipopolysaccharides-induced hepatic and intestinal inflammation in poultry[J]. Poultry Science, 2024, 103(3):103415.

DOI

[46]
YANG N, XIA Z L, SHAO N Y, et al. Carnosic acid prevents dextran sulfate sodium-induced acute colitis associated with the regulation of the Keap1/Nrf2 pathway[J]. Scientific Reports, 2017, 7(1):11036.

DOI PMID

[47]
PENG Y X, CHEN C Z, LUO D, et al. Carnosic acid improves porcine early embryonic development by inhibiting the accumulation of reactive oxygen species[J]. Journal of Reproduction and Development, 2020, 66(6):555-562.

DOI

[48]
NAIMI M, VLAVCHESKI F, SHAMSHOUM H, et al. Rosemary extract as a potential anti-hyperglycemic agent:current evidence and future perspectives[J]. Nutrients, 2017, 9(9):968.

DOI

[49]
蒋治国. 迷迭香提取物降低仔猪断奶氧化应激、提高生长性能及其机理初探[D]. 博士学位论文. 广州: 华南农业大学, 2020.

JIANG Z G. Mechanism and effect of rosemary extract to alleviate piglets weaning oxidative stress and improve piglets growth performance[D]. Ph.D.Thesis. Guangzhou: South China Agricultural University, 2020. (in Chinese)

[50]
KONG F L, WANG S, DAI D W, et al. Preliminary investigation of the effects of rosemary extract supplementation on milk production and rumen fermentation in high-producing dairy cows[J]. Antioxidants, 2022, 11(9):1715.

DOI

[51]
ZHANG L H, GE J W, GAO F, et al. Rosemary extract improves egg quality by altering gut barrier function,intestinal microbiota and oviductal gene expressions in late-phase laying hens[J]. Journal of Animal Science and Biotechnology, 2023, 14(1):121.

DOI

[52]
ADIL S, BANDAY M T, HUSSAIN S A, et al. Impact of nanoencapsulated rosemary essential oil as a novel feed additive on growth performance,nutrient utilization,carcass traits,meat quality and gene expression of broiler chicken[J]. Foods, 2024, 13(10):1515.

DOI

[53]
ALI M E, ZAINHOM M Y, MONIR A, et al. Dietary supplementation with rosemary essential oil improves genital characteristics,semen parameters and testosterone concentration in Barki rams[J]. The Journal of Basic and Applied Zoology, 2024, 85(1):45.

DOI

[54]
ABERBOUR A, TOUAZI L, BENBERKANE A, et al. The effect of in ovo administration of rosemary essential oil on hatchability,relative hatching weight,and embryo mortality rate in Japanese quail (Coturnix coturnix japonica)[J]. Animals, 2023, 13(7):1217.

DOI

[55]
KEDIR S, TAMIRU M, TADESE D A, et al. Effect of rosemary (Rosmarinus officinalis) leaf meal supplementation on production performance and egg quality of laying hens[J]. Heliyon, 2023, 9(8):e19124.

DOI

[56]
ZHANG L H, GE J W, GAO F, et al. Rosemary leaf powder improves egg quality,antioxidant status,gut barrier function,and cecal microbiota and metabolites of late-phase laying hens[J]. Animal Nutrition, 2024, 17:325-334.

DOI

文章导航

/