研究论文

生长净能矫正安格斯育肥牛饲料转化率动态预测模型的建立与分析

  • 薛夫光 , 1, 2 ,
  • 姜凌 2 ,
  • 邓雅雯 2 ,
  • 刘佳佳 2 ,
  • 杨振刚 3 ,
  • 刘民泽 3 ,
  • 熊本海 , 1, *
展开
  • 1 中国农业科学院北京畜牧兽医研究所, 畜禽营养与饲养全国重点实验室, 北京 100193
  • 2 江西农业大学, 动物科学与技术学院/动物健康与安全生产南昌市重点实验室, 南昌 330045
  • 3 阳信亿利源清真肉类有限公司, 滨州 251802
*熊本海,研究员,博士生导师,E-mail:

薛夫光(1990—),男,山东聊城人,讲师,硕士,研究方向为反刍动物生产。E-mail:

Office editor: 武海龙

收稿日期: 2025-08-05

  网络出版日期: 2026-04-14

基金资助

泰山产业领军人才工程专项项目

国家重点研发计划“牛羊智能饲喂与环控技术集成应用示范”(2024YFD1300600)

国家农业科学数据中心“动物科学数据资源建设与共享服务”(NASDC2024XM02)

Establishment and Analysis on Dynamic Predictive Models for Feed Conversion Ratio of Angus Fattening Cattle Adjusted by Growth Net Energy

  • XUE Fuguang , 1, 2 ,
  • JIANG Ling 2 ,
  • DENG Yawen 2 ,
  • LIU Jiajia 2 ,
  • YANG Zhengang 3 ,
  • LIU Minze 3 ,
  • XIONG Benhai , 1, *
Expand
  • 1 National Key Laboratory of Livestock Nutrition and Feeding, Institute of Animal Science, Chinese Academy of Agricultural Sciences, Beijing 100193, China
  • 2 Nanchang Key Laboratory of Animal Health and Safety Production, College of Animal Science and Technology, Jiangxi Agricultural University, Nanchang 330045, China
  • 3 Yangxin Yiliyuan Halal Meat Co., Ltd., Binzhou 251802, China
*professor, E-mail:

Received date: 2025-08-05

  Online published: 2026-04-14

摘要

本研究通过结合代谢体重(BW0.75)和生长净能摄入量(NEgI)对传统的利用采食量和初始体重估计饲料转化率(FCR)的方法进行矫正,并针对处于不同育肥阶段的安格斯肉牛进行精准估计模型的构建,以期为提高肉牛饲料利用效率、实现肉牛精准营养提供理论依据。选取40头体重[(400±23) kg]相近的安格斯肉牛,按照能量水平随机分为5个组,每组8个重复,每个重复1头肉牛。记录干物质采食量(DMI)、平均日增重(ADG)和FCR。对近年有关肉牛采食量的文献进行系统检索与筛选,并依据安格斯牛的生长规律,将初始体重分为育肥前期(150~300 kg)、育肥中期(300~500 kg)以及育肥后期(>500 kg),共获得育肥前期、育肥中期和育肥后期样本分别为87、98和80个,全部进行后续统计分析。结果表明,引入NEgI后对ADG和FCR预测模型进行矫正,矫正后预测模型分别为:育肥前期, ADG=3.469BW0.75-0.022DMI+13.667NEgI+156.79(n=87, R2=0.878), FCR=0.034BW0.75+1.355DMI-0.103NEgI+4.366(n=87, R2=0.665);育肥中期, ADG=5.442BW0.75+41.62DMI+45.381NEgI-1 347.134(n=98, R2=0.760), FCR=-0.022BW0.75+0.276DMI-0.221NEgI+15.286(n=98, R2=0.708);育肥后期, ADG=5.565BW0.75+47.589DMI+51.086NEgI-1 740.372(n=80, R2=0.621), FCR=-0.034BW0.75+1.511DMI-0.390NEgI+13.695(n=80, R2=0.484)。矫正后预测模型除育肥后期FCR预测模型R2小于0.5,其余预测模型R2均大于0.6,具有较高的准确性。综上所述,利用BW0.75、DMI和NEgI可以对ADG和FCR进行更加精准地预测。

本文引用格式

薛夫光 , 姜凌 , 邓雅雯 , 刘佳佳 , 杨振刚 , 刘民泽 , 熊本海 . 生长净能矫正安格斯育肥牛饲料转化率动态预测模型的建立与分析[J]. 动物营养学报, 2026 , 38(4) : 2687 -2697 . DOI: 10.12418/CJAN2026.216

Abstract

This study was conducted to adjust the traditional method of estimating feed conversion ratio (FCR) using feed intake and initial body weight by combining metabolic body weight (BW0.75) and growth net energy intake (NEgI), and construct precise estimation models for Angus beef cattle at different fattening stages, to provide a theoretical foundation for improving feed utilization efficiency and achieving precision nutrition in beef cattle production. Forty Angus beef cattle with similar initial body weight [(400±23) kg] were randomly assigned to 5 groups based on energy levels, with 8 replicates per group and 1 beef cattle per replicate. The dry matter intake (DMI), average daily gain (ADG) and FCR were recorded. The recent literature related to feed intake of beef cattle were systematic searched and screened, based on the growth patterns of Angus cattle, the initial body weights were divided into early fattening stage (150 to 300 kg), middle fattening stage (300 to 500 kg) and later fattening stage (>500 kg), a total of 87, 98 and 80 samples were obtained for the early fattening stage, middle fattening stage and later fattening stage, respectively, all of which were subjected to subsequent statistical analysis. The results showed that the ADG and FCR predictive models were adjusted by introducing NEgI, and the adjusted predictive models were as follows: early fattening stage, ADG=3.469BW0.75-0.022DMI+13.667NEgI+156.79 (n=87, R2=0.878), FCR=0.034BW0.75+1.355DMI-0.103NEgI+4.366 (n=87, R2=0.665); middle fattening stage, ADG=5.442BW0.75+41.62DMI+45.381NEgI-1 347.134 (n=98, R2=0.760), FCR=-0.022BW0.75+0.276DMI-0.221NEgI+15.286 (n=98, R2=0.708); later fattening stage, ADG=5.565BW0.75+47.589DMI+51.086NEgI-1 740.372 (n=80, R2=0.621), FCR=-0.034BW0.75+1.511DMI-0.390NEgI+13.695 (n=80, R2=0.484). Except for the R2 of FCR predictive model in the later fattening stage was less than 0.5, the R2 of other adjusted predictive models were all greater than 0.6, which had high accuracy. In conclusion, using BW0.75, DMI and NEgI can made more accurate predictions of ADG and FCR.

饲料原料是肉牛饲养过程中最主要的成本支出,占总投入的60%~70%,对肉牛养殖经济效益具有重要影响[1]。提高饲料利用效率、降低肉牛养殖经济损失是提高肉牛养殖经济效益的重要手段。在肉牛饲养过程中,精准掌握肉牛营养需要量,提高饲粮中营养物质的降解率和吸收率,对提高肉牛饲料利用效率及降低成本具有重要作用。因此,建立基于不同育肥阶段的精准化饲喂模型,对于精细化调控肉牛营养、提高饲料利用效率和提升整体管理水平具有重要的理论和实践意义。
饲粮中的能氮平衡是提高肉牛生长性能、减少环境污染的关键因素[2]。能量水平的研究表明,饲粮中能量水平直接关系到肉牛增重速度、饲料转化率(FCR)、胴体品质及整体生产效益[3];饲喂高能量水平饲粮可有效提高肉牛的平均日增重(ADG),其主要原因是充足的能量供应能够满足维持和生长需求,促进蛋白质合成和肌肉发育。然而,过高的能量摄入会引起瘤胃菌群结构紊乱,造成瘤胃酸中毒等代谢疾病。蛋白质水平的研究表明,提高饲粮中过瘤胃蛋白含量可有效减少氮损失,提高蛋白质的利用效率[4-5]。目前用于估算肉牛营养需求的模型主要基于美国国家科学院、工程院和医学院(NASEM)在1979—1993年间发表的数据所建立[6],即DMI(kg/d)={[SBW0.75×(0.243 5×NEma-0.046 6×NEma2-0.112 8)]/NEma}×(BAFA×BI×ADTV×TEMP×MUDI)(式中:DMI为干物质采食量;SBW为绝食体重;NEma为饲粮的维持净能;BAFA为体脂校正因子;BI为品种校正因子;TEMP为温度校正因子;MUDI为牛场泥泞度校正因子)。
近年来,随着肉牛生理机制的研究,统计建模和机器学习等算法的不断发展,饲料利用效率的预测模型不断优化,主要包括以下2类:1)传统回归模型。主要采用线性回归模型,前期主要为基于体重(BW)、ADG、干物质采食量(DMI)等变量预测FCR[7-8]。后续模型提出通过结合代谢体重(BW0.75)和能量需求更加精准估算FCR,然而此模型并未充分考虑个体差异[9]。传统模型依赖DMI精确测量,但由于实际生产中个体采食量数据获取成本高,难度大,从而限制了模型推广。2)机器学习模型。主要通过利用随机森林(RF)、支持向量机(SVM)和神经网络(ANN)等算法分析高维数据(基因组、瘤胃微生物组),以提升预测精度[10]。然而机器学习模型(如XGboost等模型)在提高预测精度的同时,多数统计模型对生理指标或瘤胃微生物组等对应的模型参数的生物学意义解释性不足;现有的机器学习模型多基于静态数据,难以反映饲料成分变化、环境温度或应激对饲料利用效率的动态影响[11-12]
因此,本研究利用生长净能摄入量(NEgI)和BW0.75为主要引入指标,针对传统利用采食量和初始体重估计FCR的方法进行矫正分析,并将处于不同育肥期的安格斯肉牛进行分阶段动态处理,通过构建精准预估模型,以期为提高肉牛饲料利用效率、实现肉牛精准营养提供理论依据。

1 材料与方法

1.1 试验设计

本试验在阳信亿利源清真肉类有限公司5G牧场(37°43' N,117°52'E)进行,试验遵循中国动物福利指南,并获得江西农业大学动物护理与使用委员会批准,批准号:JXAULL-20250218。选取40头体重[(400±23) kg]相近的安格斯肉牛,随机分为5个组,每组8头肉牛,每个重复1头牛。按照生长净能(NEg)梯度递增的方式配制5个梯度的试验饲粮,NEg和NEgI根据消化能(DE)、粗蛋白质(CP)、粗脂肪(EE)、粗纤维(CF)、无氮浸出物(NFE)和DMI进行计算,计算公式如下:
NEg(MJ/kg)=0.815×DE-0.049 7×DE2-1.187;
DE(MJ/kg)=0.209×CP+0.322×EE+0.084×CF+0.002×NFE2+0.046×NFE-0.627;
NEgI=NEg×DMI。
所有饲粮配方符合我国《肉牛饲养标准》(NY/T 815—2004),试验饲粮组成及营养水平见表1
表1 试验饲粮组成及营养水平(风干基础)

Table 1 Composition and nutrient levels of experimental diets (air-dry basis) %

项目
Items
组别Groups
A B C D E
原料Ingredients
玉米Corn 30.0 31.0 32.0 33.0 34.0
棉籽粕Cottonseed meal 3.0 3.0 3.0 3.0 3.0
豆粕Soybean meal 12.0 12.0 12.0 12.0 12.0
小麦麸Wheat bran 8.0 8.0 8.0 8.0 8.0
玉米秸秆Corn straw 23.4 22.4 21.4 20.4 19.4
玉米青贮Corn silage 20.0 20.0 20.0 20.0 20.0
食盐NaCl 0.6 0.6 0.6 0.6 0.6
预混料Premix1) 3.0 3.0 3.0 3.0 3.0
合计Total 100.0 100.0 100.0 100.0 100.0
营养水平Nutrient levels2)
生长净能NEg/(MJ/kg) 5.26 5.31 5.36 5.41 5.46
干物质DM 51.20 51.20 51.20 51.20 51.20
粗蛋白质CP 13.46 13.46 13.46 13.46 13.46
粗脂肪EE 4.38 4.41 4.43 4.45 4.47
酸性洗涤纤维ADF 22.40 21.90 21.10 20.30 19.60
中性洗涤纤维NDF 28.90 28.10 27.40 26.80 26.10
钙Ca 0.69 0.69 0.69 0.69 0.69
磷P 0.44 0.44 0.44 0.44 0.44

1)每千克预混料含有 One kg of the premix contained the following:Fe 1 400 mg,Cu 1 200 mg,Mn 2 400 mg,Zn 5 500 mg; Se 40 mg,Co 30 mg,I 90 mg,VA 900 000 IU,VD 700 000 IU,VE 9 000 IU。
2)营养水平为计算值,参照NRC(2001)。Nutrient levels were calculated values, according to NRC (2001).

所有肉牛每天06:00和18:00各饲喂1次,自由采食和饮水。饲养试验共4个月,每天记录每头牛的饲喂量并于第2天记录每头牛的饲料剩余量,通过两者差值计算每头牛的平均日采食量(ADFI)。每个月最后1天分别对每头牛进行称重,计算ADG和FCR,计算公式如下:
ADG=(结束体重-初始体重)/饲喂天数;
FCR=ADFI/ADG。

1.2 补充数据获取及筛选

为完整补充育肥全期FCR与能量水平和采食量之间的相关关系,本研究对近年有关肉牛采食量的文献进行了系统检索与筛选,数据主要来源为Journal of Animal Science、PubMed和Google Scholar[13-25]。初步筛选标准限定为自由采食条件下的自愿采食量数据。为避免与既往分析数据集重复,二次筛选将纳入范围严格限定为2003—2022年间实施或发表的研究项目。三次筛选标准要求仅纳入直接测定的采食量数据。单处理试验单元数较少、采食量测定周期短暂、放牧饲粮营养价值评估准确性不足、标记物投喂稳定性难以保证和/或标记物回收不完全等数据不计入统计范畴。补充数据收集特征见表2
表2 补充数据收集特征

Table 2 Collection characteristics of supplementary data

项目
Items
文献数目
Literature
number
总文献数目
Total literature
number
平均值
Mean
最大值
Maximum
最小值
Minimum
初始体重150~300 kg IBW 150~300 kg 16 87 236.4 289 186
初始体重300~500 kg IBW 300~500 kg 21 98 403.6 463 311
初始体重>500 kg IBW>500 kg 14 80 532.4 564 503
代谢体重BW0.75/kg 41 207 82.2 112.6 47.7
平均日增重ADG/kg 51 265 1.14 1.37 0.81
生长净能NEg/(MJ/kg) 36 164 40.38 46.74 26.91
干物质采食量DMI/kg 51 265 8.10 9.17 4.62
饲料转化率FCR 51 265 7.17 8.61 4.90
为了更加精准地预测不同育肥阶段FCR的动态变化规律,本研究依据安格斯牛的生长规律,将初始体重分为育肥前期(150~300 kg)、育肥中期(300~500 kg)以及育肥后期(>500 kg)。系统统计拥有个体采食量记录、体增重记录和饲粮配方的样本,并根据上述筛选标准,共获得育肥前期样本87个,育肥中期样本98个、育肥后期样本80个。

1.3 数据统计分析

采用多元线性回归模型,对已获得的数据进行统计分析,模型结构式为:
y=β01x12x2+……pxp+$ \epsilon $
式中:y为因变量(待预测的目标变量);x1、x2…xp为自变量(特征变量);β0为截距项(所有自变量为0时y的基准值);β1、β2…βp为回归系数(表示每个自变量对y的边际贡献);$ \epsilon $为随机误差项(假设服从均值为0的正态分布)。
本研究首先应用DMI和BW0.75作为FCR的预测指标,针对不同育肥阶段进行FCR的预测;随后引入NEgI作为矫正指标,对预测模型进行矫正。以决定系数(R2)越接近1代表拟合度越好。

2 结果与分析

2.1 饲料能量水平及DMI对育肥全期ADG和FCR的影响

利用多元统计模型对全期所有收集数据进行统计分析,首先利用BW0.75和DMI指标对ADG和FCR进行多元线性回归模型预测,预测模型分别为:
ADG=1.438BW0.75+154.978DMI-211.298(n=265,R2=0.521);
FCR=-0.007BW0.75-0.019DMI+7.908(n=265,R2=0.021)。
R2结果可知,利用BW0.75和DMI对ADG和FCR的预测结果可信度较差,需引入更有效指标对预测模型进行矫正,因此引入NEgI指标对ADG和FCR预测模型进行矫正,矫正后预测模型分别为:
ADG=2.747BW0.75+89.201DMI+23.45NEgI-733.169(n=265,R2=0.617);
FCR=-0.014BW0.75+0.334DMI-0.126NEgI+10.710(n=265,R2=0.170)。
通过矫正后的R2结果显示,加入NEgI后,ADG和FCR的预测模型准确率均有提高。为更加直观验证矫正后预测模型对预测结果准确性的提升,对所有参与到预测方程的样本实际值、预测值和矫正后的预测值ADG和FCR指标进行统计分析,以验证预测结果的准确性。如图1所示,引入NEgI的矫正后预测模型准确性相对于没有引入NEgI的预测模型准确性提高,但针对全期的预测模型还有明显不足之处。因此,针对肉牛不同育肥时期探究更加精确的预测模型,对于提高实际生产中ADG和FCR预测的准确性,指导生产具有更加重要的意义。
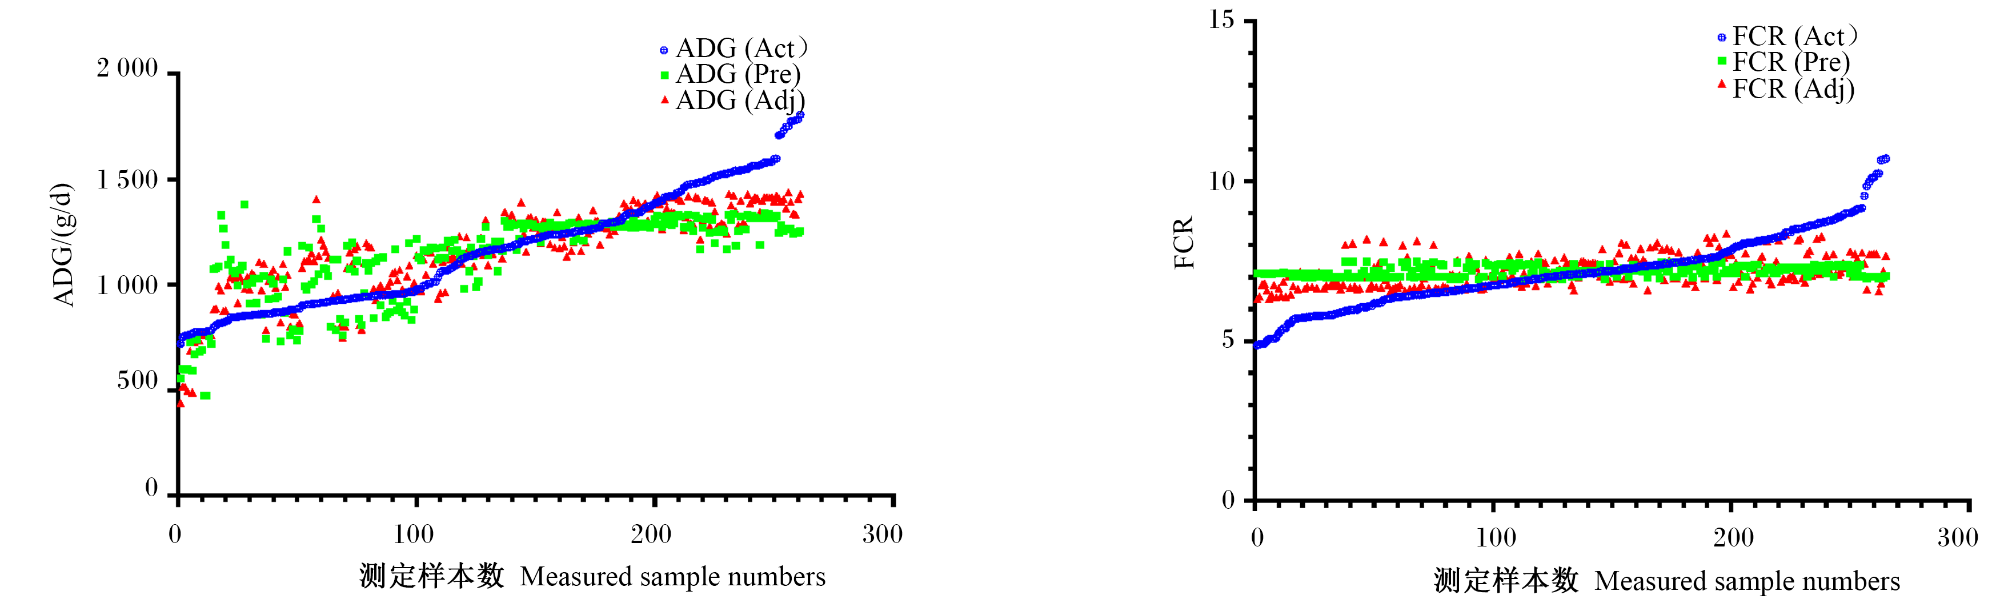
图1 增重净能矫正模型对育肥全期肉牛ADG和FCR的影响

ADG:平均日增重 average daily gain;FCR:饲料转化率 feed conversion ratio;Act:实测值 actual measured value;Pre:预测模型 predictive model;Adj:矫正后预测模型 adjusted predictive model。下图同 the same as below。

Fig.1 Impacts of net energy adjusted model on ADG and FCR of beef cattle during fattening stage

2.2 饲料能量水平及DMI对育肥前期ADG和FCR的影响

首先利用BW0.75和DMI指标对育肥前期肉牛ADG和FCR进行多元线性回归模型预测,预测模型分别为:
ADG=4.89BW0.75+20.513DMI+473.715(n=87,R2=0.407);
FCR=-0.057BW0.75+1.016DMI+3.929(n=87,R2=0.610)。
R2结果可知,利用BW0.75和DMI对ADG的预测结果可信度较差,但对FCR的预测结果可信度较好(R2>0.60)。引入NEgI后对ADG和FCR预测模型进行矫正,矫正后预测模型分别为:
ADG=3.469BW0.75-0.022DMI+13.667NEgI+156.79(n=87,R2=0.878);
FCR=0.034BW0.75+1.355DMI-0.103NEgI+4.366(n=87,R2=0.665)。
通过矫正后的R2结果可知,引入NEgI后,ADG和FCR的预测模型准确率均有提高,且对ADG的预测准确率明显提高。对预测模型进行验证,所有预测后的ADG和FCR指标与实测指标进行差异分析,如图2所示,引入NEgI的矫正后预测模型对ADG和FCR预测的准确性明显提高。
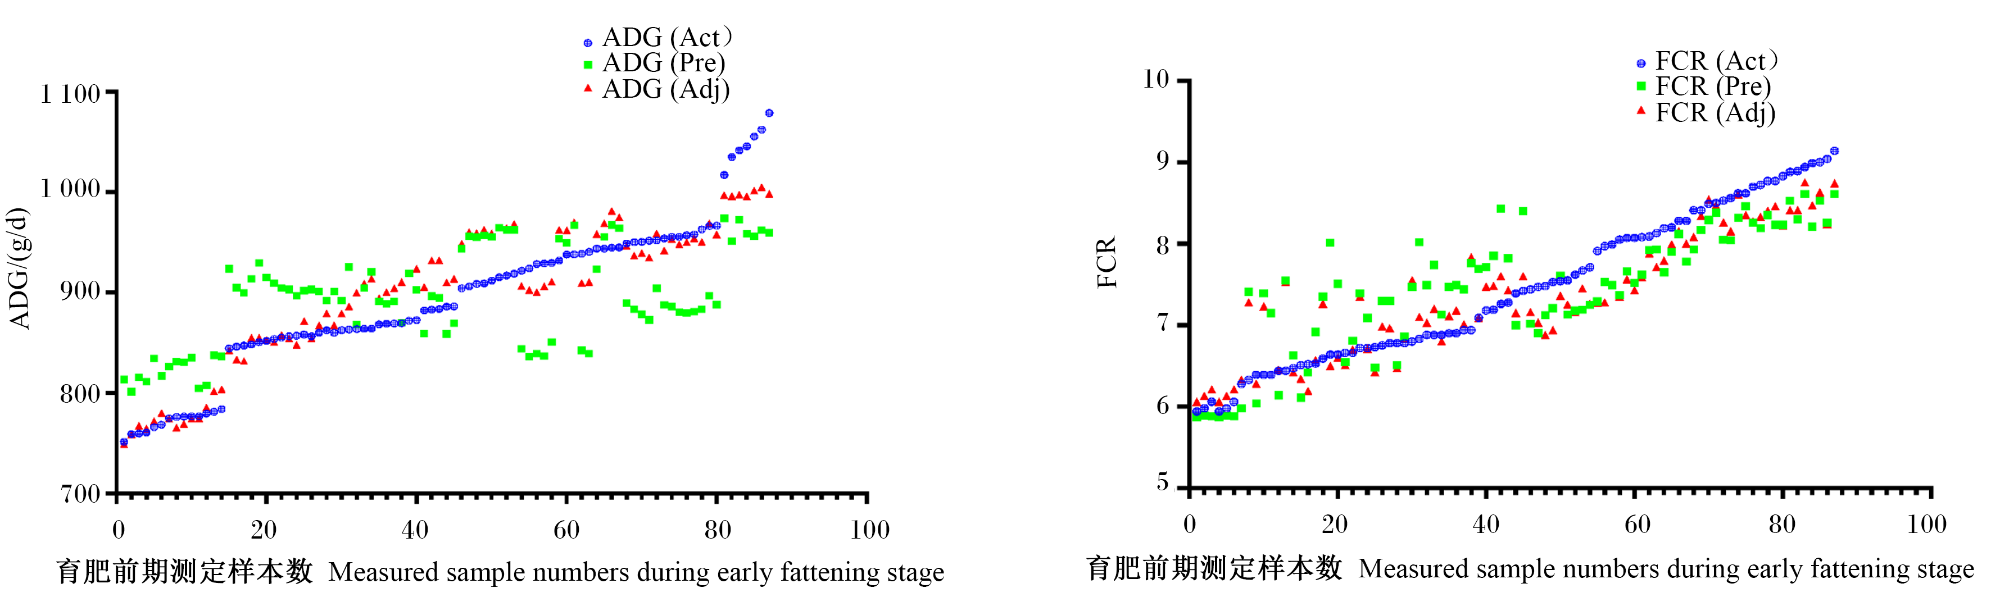
图2 增重净能矫正模型对育肥前期肉牛ADG和FCR的影响

Fig.2 Impacts of net energy adjusted model on ADG and FCR of beef cattle during early fattening stage

2.3 饲料能量水平及DMI对育肥中期ADG和FCR的影响

利用BW0.75和DMI指标对育肥中期肉牛ADG和FCR进行多元线性回归模型预测,预测模型分别为:
ADG=21.466BW0.75+423.598DMI-4 182.821(n=98,R2=0.617);
FCR=-0.101BW0.75-1.585DMI+29.101(n=98,R2=0.490)。
R2结果可知,利用BW0.75和DMI对ADG的预测结果可信度较好(R2>0.60),但对FCR的预测结果较差。引入NEgI后对ADG和FCR预测模型进行矫正,矫正后预测模型分别为:
ADG=5.442BW0.75+41.62DMI+45.381NEgI-1 347.134(n=98,R2=0.760);
FCR=-0.022BW0.75+0.276DMI-0.221NEgI+15.286(n=98,R2=0.708)。
通过矫正后的R2结果可知,引入NEgI后,ADG和FCR的预测模型准确率均有提高,且对FCR的预测准确率明显提高。对预测模型进行验证,所有预测后的ADG和FCR指标与实测指标进行差异分析,如图3所示,引入NEgI的矫正后预测模型对ADG和FCR预测的准确性明显提高。
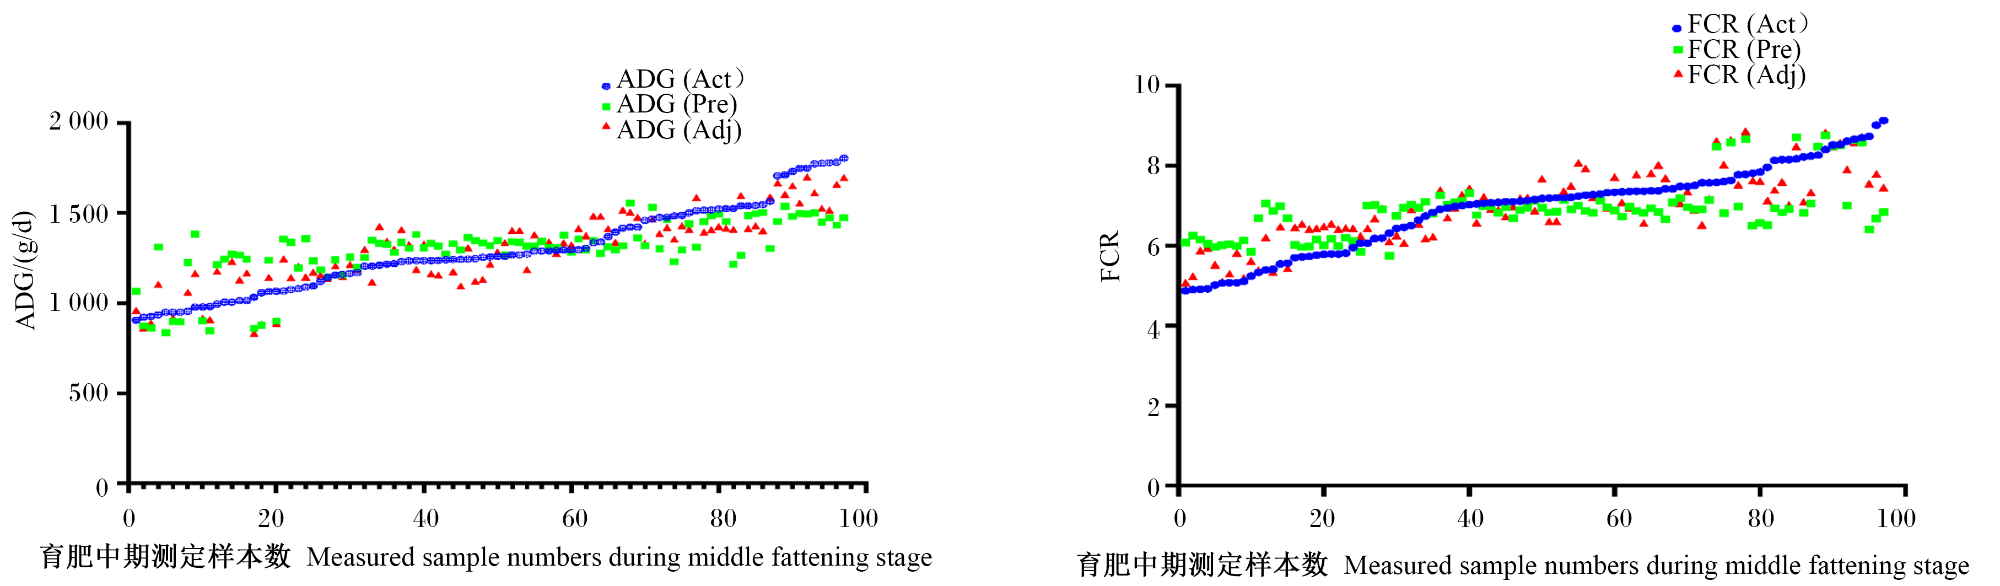
图3 增重净能矫正模型对育肥中期肉牛ADG和FCR的影响

Fig.3 Impacts of net energy adjusted model on ADG and FCR of beef cattle during middle fattening stage

2.4 饲料能量水平及DMI对育肥后期ADG和FCR的影响

利用BW0.75和DMI指标对育肥后期肉牛ADG和FCR进行多元线性回归模型预测,预测模型分别为:
ADG=14.817BW0.75+552.169DMI-5 144.767(n=80,R2=0.527);
FCR=-0.110BW0.75-2.597DMI+41.607(n=80,R2=0.324)。
R2结果可知,利用BW0.75和DMI对ADG的预测结果可信度较好(R2>0.50),但对FCR预测结果较差。引入NEgI后对ADG和FCR预测模型进行矫正,矫正后预测模型分别为:
ADG=5.565BW0.75+47.589DMI+51.086NEgI-1 740.372(n=80,R2=0.621);
FCR=-0.034BW0.75+1.511DMI-0.390NEgI+13.695(n=80,R2=0.484)。
通过矫正后的R2结果显示,引入NEgI后,ADG和FCR的预测模型准确率均有提高。对预测模型进行验证,所有预测后的ADG和FCR指标与实测指标进行差异分析,如图4所示,引入NEgI的矫正后预测模型对ADG和FCR预测的准确性明显提高,但对育肥后期FCR的预测准确性仍然较低。
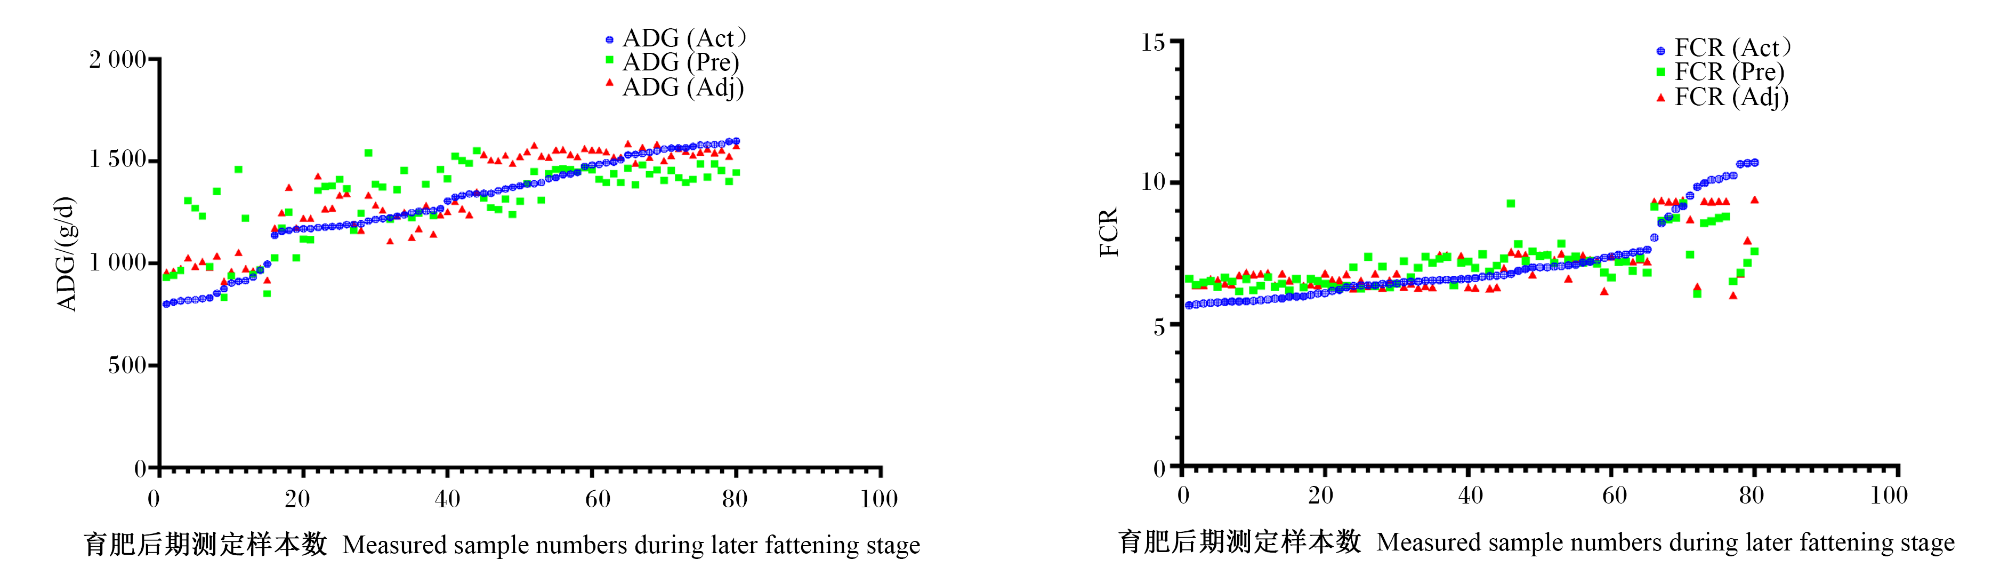
图4 增重净能矫正模型对育肥后期肉牛ADG和FCR的影响

Fig.4 Impacts of net energy adjusted model on ADG and FCR of beef cattle during later fattening stage

3 讨论

3.1 肉牛饲料利用效率预测模型的作用及影响因素

饲料利用效率预测模型对提高饲料利用效率、节约生产成本、指导肉牛饲养具有重要意义。由于数据采集成本的限制,前期对于肉牛和奶牛饲料利用效率预测模型的构建主要基于群体数据进行预测[26-28],因此所得出的预测模型R2较低,且实际应用效果不佳。FCR是肉牛生产中的关键经济性状,直接影响养殖成本和环境可持续性,其影响因素涉及遗传、生理、营养、管理和环境等多个方面[29]。肉牛生长相关基因非染色体结构维护亚基凝聚素Ⅰ复合物亚基G(NCAPG)、配体依赖性核受体辅阻遏物样蛋白(LCORL)被证实显著影响肉牛的生长和代谢,生长素释放肽和肥胖抑制素前原肽(GHRL)基因对调控食欲具有重要作用,且上述基因可通过协同作用,共同调控肉牛饲料利用效率[30-31]。然而,通过基因层面实现饲料利用效率的调控需通过基因组定位进行基因编辑,或通过靶向药物调控基因表达,因其较长的周期以及较高的技术门槛,导致通过基因表达调控饲料利用效率的模型研究较少。
目前,肉牛生产中最为有效的调控方式仍为饲粮营养的组成优化和饲养管理方法的精准操控。饲粮营养物质的需求和摄入也是肉牛采食量、体增重和饲料利用效率估测最重要指标[1]。饲粮营养水平对肉牛饲料利用效率的调控研究主要集中于能量和蛋白质水平,其中以能量水平对体增重和饲料利用效率影响最大[32]。饲粮能量水平是影响肉牛生长性能的关键因素之一,直接关系到增重速度、FCR、胴体品质及整体生产效益。净能主要包括维持净能、生长净能和泌乳净能,其中生长净能对提高肉牛生长性能,促进饲料利用效率具有重要作用[33]。NEgI与饲粮能量水平和肉牛DMI呈显著相关关系。研究显示,肉牛DMI受BW0.75、代谢能、NEgI、泌乳净能摄入量(NEmI)和体脂率调控,并与代谢能、NEgI、NEmI呈显著正相关关系,与体脂率呈显著负相关关系[16-17]。适宜的饲粮能量水平可促进肉牛快速增重,提高肌肉沉积,并通过以下方面影响饲料利用效率。高能量水平饲粮可有效提高肉牛的ADG,其原因主要是充足的能量供应能够满足维持和生长需求,促进蛋白质合成和肌肉发育。具体影响方式为,高能量水平饲粮(尤其是易发酵碳水化合物)可提高瘤胃丙酸产量,丙酸是葡萄糖前体,能促进胰岛素分泌,增强蛋白质合成和脂肪沉积[34]。因此,高能量水平饲粮可有效提高ADG和饲料利用效率。本研究结果证实,在育肥早期和育肥中期,随着NEgI的提高,ADG上升并呈现有规律的线性增长,说明在此阶段适当增加饲粮能量水平,对饲料利用效率具有促进作用。然而,过量的能量摄入会造成皮下脂肪和内脏脂肪过度沉积,且会造成瘤胃挥发性脂肪酸堆积,引起瘤胃酸中毒等营养代谢疾病,使得饲料利用效率降低[35]。因此在饲粮配制中做到瘤胃能氮平衡(RENB)是维持肉牛持续饲料利用效率的关键。
RENB是反刍动物消化吸收饲料中营养物质的重要指标,指瘤胃微生物在发酵过程中,可发酵能量(碳水化合物)与可利用氮(蛋白质、氨等)之间的协调关系[36]。维持RENB状态对于优化反刍动物健康和生长性能至关重要,它显著影响着微生物增殖、营养物降解、上皮发育以及养分吸收等关键生理过程,只有当能量和含氮营养物质的供应达到适宜比例时,瘤胃微生物才能高效合成微生物蛋白(MCP),从而优化饲料利用效率和动物生长性能。因此,针对不同育肥阶段的肉牛提供更为精准的预测模型,对饲喂过程中设置适宜的精粗比、促进肉牛健康、提高饲料利用效率具有重要作用。今后,预测模型的改进应更多考虑饲粮中的能氮平衡,并引入能氮平衡方程对预测模型进行矫正,可以进一步提高ADG和FCR的预测准确度。

3.2 本研究局限性及改进之处

肉牛品种、体重、饲粮组成和营养水平、环境温湿度等因素均能影响饲粮营养物质在瘤胃中的消化吸收,从而影响FCR[37-38]。本研究在模型建立过程中增加了NEgI作为矫正因子,虽在一定范围内增加了预测准确性,但在育肥早期和后期与实际测定数据仍存在一定差异。因此需引入更多参数如温湿度指数来实现更准确预测。
瘤胃微生物是肉牛消化饲料养分并合成生长所需基本营养物质最主要的生态系统。瘤胃微生物的组成和内环境稳态对调控肉牛饲料利用效率具有显著影响[39]。在瘤胃群落中,产乙酸球菌属(Acetitomaculum)和双歧杆菌属(Bifidobacterium)等纤维分解菌,能生成更多的乙酸盐,并随血液循环转移到全身各个部位促进肉牛生长性能[40]。丁酸弧菌属(Butyrivibrio)和假丁酸弧菌属(Pseudobutyrivibrio)可显著促进丁酸盐含量的增加,有助于促进瘤胃上皮的增殖和吸收功能[41]。普雷沃氏菌属(Prevotella)和纤维杆菌属(Fibrobacter)相对丰度更高的肉牛,具有更强的纤维降解能力,有效提高挥发性脂肪酸产生,进而有效提高肉牛生长期的能量供应,从而提高饲料利用效率[42-43]。瘤胃微生物与瘤胃上皮之间的交互作用等对FCR和ADG也具有较大影响。瘤胃上皮中参与能量代谢的关键基因的表达与瘤胃中丁酸产生菌丁酸弧菌属(Butyrivibrio)和假丁酸弧菌属(Pseudobutyrivibrio)的相对丰度具有显著正相关,这些ATP利用基因上调表达增强了上皮细胞的能量利用效率,从而进一步促进了营养物质的吸收,也是提高饲料利用效率的重要影响因子[44-45]。然而截止到目前,瘤胃微生物中已鉴定出的物种不足1%,因此通过瘤胃微生物预测肉牛饲料利用效率模型较少,需借助测序技术和培养组学的发展进行后续研究。
在瘤胃内环境中,瘤胃微生物以瘤胃可降解蛋白(RDP)作为主要氮源,以饲料中碳水化合物作为主要碳源进行自身增殖。饲粮中RDP结合可降解碳水化合物共同刺激瘤胃微生物群落的增殖,增殖后的瘤胃微生物群落天然具有更高的发酵活性,从而导致瘤胃挥发性脂肪酸和微生物蛋白含量增加[46]。因此,在后续饲料利用效率的预测模型中,需要对肉牛饲料营养成分进行更加精细的分析如瘤胃可降解有机物(ROM)含量、RDP含量,并结合能氮平衡方程优化预测模型;此外,可通过瘤胃口腔采液器采集瘤胃液,测定瘤胃主要碳水化合物利用菌相对丰度,结合饲粮营养成分、能氮平衡方程进行全面预测,从而提高模型预测准确性。
随着智能畜牧业研究领域的发展,多源数据融合技术可整合来自自动称重、采食监测、活动量传感器、瘤胃pH与温度监测设备、环境传感器等多种实时数据,并结合影像分析技术构建全面的肉牛数据资源体系,已成为未来发展的潮流。在此基础上,应用机器学习方法优化模型参数、识别影响生长性能的关键因子,并预测难以直接测量的变量,同时借助深度学习技术处理视频、超声图像等非结构化数据,从中提取有效特征以增强模型输入。通过多组学整合策略,将基因组遗传潜力、转录组、蛋白质组及代谢组数据纳入建模框架,进一步通过模型集成与决策支持系统(DSS)的开发,将营养动态模型与牧场管理信息系统、财务分析工具、环境评估模型及市场信息系统深度融合,构建云端或边缘计算支持的智能DSS平台,为牧场管理者提供涵盖饲粮配方优化、健康风险预警、环境效应评估、生长性能预测和经济分析决策,是未来肉牛精准预测模型的主要发展方向。

4 结论

肉牛生长不同阶段对饲粮中营养物质需求具有差异,因此分阶段动态评估肉牛营养需求对发展肉牛精准饲养、降低饲料成本具有重要意义。利用BW0.75、DMI、NEgI和能氮平衡方程等指标对ADG和FCR进行综合预测或可更加精准指导肉牛生产。

感谢阳信亿利源清真肉类有限公司为本研究提供试验场地及试验动物。

[1]
周治宇, 王金泽, 程阳, 等. 肉牛常用精饲料的饲用价值评定及有效降解率预测模型建立[J]. 动物营养学报, 2025, 37(6):4141-4157.

DOI

ZHOU Z Y, WANG J Z, CHENG Y, et al. Evaluation on feeding value and establishing prediction model of effective degradation rate of common concentrate feeds for beef cattle[J]. Chinese Journal of Animal Nutrition, 2025, 37(6):4141-4157. (in Chinese)

DOI

[2]
罗晓瑜, 陈志强, 何立荣, 等. 全混合日粮营养水平对肉牛育肥效果的影响[J]. 饲料工业, 2011, 32(17):49-53.

LUO X Y, CHEN Z Q, HE L R, et al. Influence of nutrition level of TMR on fattening effect for beef cattle[J]. Feed Industry, 2011, 32(17):49-53. (in Chinese)

[3]
熊光源, 夏先林, 陈超, 等. 不同营养水平对杂交肉牛育肥效果的影响研究[J]. 黑龙江畜牧兽医(科技版), 2010(6):5-9.

XIONG G Y, XIA X L, CHEN C, et al. The study on fattening effect for crossbreds cattle with different concentrate allowance[J]. Heilongjiang Animal Science and Veterinary Medicine (Technology Edition), 2010(6):5-9. (in Chinese)

[4]
雒自全, 赵德兵, 马志鹏, 等. 蛋白质水平对肉牛玉米芯粗料型日粮营养物质消化率的影响[J]. 中国草食动物, 2011, 31(6):24-26.

LUO Z Q, ZHAO D B, MA Z P, et al. The influence of protein levels on the digestibility of nutrients in the core-type diet of beef cattle with corn cobs[J]. China Herbivores Science, 2011, 31(6):24-26. (in Chinese)

[5]
邓子棋, 李紫欣, 李想, 等. 肉牛常用蛋白质饲料的饲用价值评价及粗蛋白质有效降解率预测模型建立[J]. 动物营养学报, 2023, 35(11):7247-7259.

DOI

DENG Z Q, LI Z X, LI X, et al. Evaluation on feeding value and establishing prediction model of effective degradability of crude protein of commonly-used protein feedstuffs for beef cattle[J]. Chinese Journal of Animal Nutrition, 2023, 35(11):7247-7259. (in Chinese)

DOI

[6]
KEELE J W, WILLIAMS C B, BENNETT G L. A computer model to predict the effects of level of nutrition on composition of empty body gain in beef cattle:Ⅰ.Theory and development[J]. Journal of Animal Science, 1992, 70(3):841-857.

DOI

[7]
CASSADY C J. Evaluation of intake and feed efficiency measures in beef cattle[D]. Ph.D.Thesis. Urbana: University of Illinois at Urbana-Champaign, 2016.

[8]
ROEHE R, AUFFRET M, DUTHIE C A, et al. Prediction of methane emissions and feed conversion efficiency of beef cattle based on the rumen microbial community at phylum or genus level[J]. Advances in Animal Biosciences, 2017, 8(1):11.

[9]
MENENDEZ H M, BRENNAN J R, EHLERT K A, et al. Improving dry matter intake estimates using precision body weight on cattle grazed on extensive rangelands[J]. Animals, 2023, 13(24):3844.

DOI

[10]
SHIRZADIFAR A, MIAR Y, PLASTOW G, et al. A machine learning approach to predict the most and the least feed-efficient groups in beef cattle[J]. Smart Agricultural Technology, 2023, 5:100317.

DOI

[11]
SCHNIDRIG G A, STRUCHEN R, SCHÄRRER S, et al. Improved cattle farm classification:leveraging machine learning and linked national datasets[J]. Frontiers in Veterinary Science, 2025, 12:1517173.

DOI

[12]
GOYACHE F, DEL COZ J J, QUEVEDO J R, et al. Using artificial intelligence to design and implement a morphological assessment system in beef cattle[J]. Animal Science, 2016, 73(1):49-60.

DOI

[13]
MENENDEZ H M, ATZORI A, BRENNAN J, et al. Using dynamic modelling to enhance the assessment of the beef water footprint[J]. Animal, 2023, 17(S5):100808.

DOI

[14]
BLAKE N E, MATA-PADRINO D, PLUM S, et al. Predicting dry matter intake in beef cattle[J]. Journal of Animal Science, 2023, 101:skad269.

DOI

[15]
CABEZAS-GARCIA E H, LOWE D, LIVELY F. Energy requirements of beef cattle:current energy systems and factors influencing energy requirements for maintenance[J]. Animals, 2021, 11(6):1642.

DOI

[16]
CHANG-FUNG-MARTEL J, HARRISON M T, BROWN J N, et al. Negative relationship between dry matter intake and the temperature-humidity index with increasing heat stress in cattle:a global Meta-analysis[J]. International Journal of Biometeorology, 2021, 65(12):2099-2109.

DOI

[17]
VAN AMBURGH M E, COLLAO-SAENZ E A, HIGGS R J, et al. The Cornell net carbohydrate and protein system: updates to the model and evaluation of version 6.5[J]. Journal of Dairy Science, 2015, 98(9):6361-6380.

DOI PMID

[18]
BRANDÃO DE GOIS R, DO PRADO PAIM T, FONSECA GUIMARÃES PERES R, et al. Relationship between feed efficiency and reproductive traits in precocious Nelore heifers[J]. Tropical Animal Health and Production, 2025, 57(2):88.

DOI PMID

[19]
PURWIN C, WYŻLIC I, POGORZELSKA-PRZYBYEK P, et al. Influence of gender status and feeding intensity on the growth curves of body weight,dry matter intake and feed efficiency in crossbred beef cattle[J]. Journal of Animal and Feed Sciences, 2024, 33(1):101-110.

DOI

[20]
BECK M R, GOUVÊA V N, SMITH J K, et al. Relationships between individual animal variation in dry matter intake and animal performance and feed efficiency of finishing beef cattle[J]. Applied Animal Science, 2024, 40(5):639-646.

DOI

[21]
PEREIRA M C S, CARRARA T V B, DA SILVA J, et al. Effects of different doses of sodium monensin on feeding behaviour,dry matter intake variation and selective consumption of feedlot Nellore cattle[J]. Animal Production Science, 2015, 55(2):170-173.

DOI

[22]
ABO-ISMAIL M K, VANDER VOORT G, SQUIRES J J, et al. Single nucleotide polymorphisms for feed efficiency and performance in crossbred beef cattle[J]. BMC Genetics, 2014, 15(1):14.

DOI

[23]
DUFFIELD T F, MERRILL J K, BAGG R N. Meta-analysis of the effects of monensin in beef cattle on feed efficiency,body weight gain,and dry matter intake[J]. Journal of Animal Science, 2012, 90(12):4583-4592.

DOI

[24]
ARCHER J A, RICHARDSON E C, HERD R M, et al. Potential for selection to improve efficiency of feed use in beef cattle:a review[J]. Australian Journal of Agricultural Research, 1999, 50(2):147-162.

DOI

[25]
ARTHUR P F, ARCHER J A, HERD R M, et al. Genetic and phenotypic variation in feed intake,feed efficiency and growth in beef cattle[C]// Association for the advancement of animal breeding and genetics proceedings of the twelfth conference: breeding responding to client needs. Dubbo: Association for the Advancement of Animal Breeding and Genetics, 1997(Pt 1):234-237.

[26]
BARDEN M, HYDE R, GREEN M, et al. Development and evaluation of predictive models for pregnancy risk in UK dairy cows[J]. Journal of Dairy Science, 2024, 107(12):11463-11476.

DOI PMID

[27]
GUDEX B W, MCPHEE M J, ODDY V H, et al. Prediction of ossification from live and carcass traits in young beef cattle:model development and evaluation[J]. Journal of Animal Science, 2019, 97(1):144-155.

[28]
RABIEE A R, LEAN I J, STEVENSON M A, et al. Effects of feeding organic trace minerals on milk production and reproductive performance in lactating dairy cows:a Meta-analysis[J]. Journal of Dairy Science, 2010, 93(9):4239-4251.

DOI

[29]
ASCOLESE S, MYER P R, BEEVER J E, et al. PSI-2 Molecular mechanisms regulating feed efficiency and muscle growth in beef cattle[J]. Journal of Animal Science, 2024, 102(S3):473-474.

DOI

[30]
FENG X F, WANG Y, ZHAO J, et al. Estimation of genetic parameters and prediction for body weight of Angus cattle[J]. Agriculture, 2025, 15(11):1216.

DOI

[31]
JIMÉNEZ J M, MORALES R M, DEMYDA-PEYRÁS S, et al. Genetic relationships between male and female reproductive traits in retinta beef cattle[J]. Livestock Science, 2025, 291:105610.

DOI

[32]
OJO A O, MULIM H A, CAMPOS G S, et al. Exploring feed efficiency in beef cattle:from data collection to genetic and nutritional modeling[J]. Animals, 2024, 14(24):3633.

DOI

[33]
牛化欣, 胡宗福, 张适, 等. 饲粮能量水平和养殖环境温湿指数对育肥肉牛生长性能、营养物质表观消化率和血清生化指标的影响[J]. 动物营养学报, 2020, 32(7):3190-3198.

DOI

NIU H X, HU Z F, ZHANG S, et al. Effects of dietary energy level and ambient temperature humidity index on growth performance,nutrient apparent digestibility and serum biochemical indices of fattening beef cattle[J]. Chinese Journal of Animal Nutrition, 2020, 32(7):3190-3198. (in Chinese)

[34]
FRANCIS F L, GUBBELS E, HAMILTON T G, et al. Effect of increasing doses of encapsulated butyric acid and zinc on beef feedlot steer growth performance,dietary net energy utilization,and carcass characteristics[J]. Journal of Animal Science, 2022, 100(S2):107-108.

[35]
柏峻, 赵二龙, 李美发, 等. 饲粮能量水平对育肥前期锦江阉牛生长性能、养分消化和能量代谢的影响[J]. 动物营养学报, 2019, 31(2):692-698.

BAI J, ZHAO E L, LI M F, et al. Effects of dietary energy level on growth performance,nutrient digestion and energy metabolism of Jinjiang steers in early stage of fattening[J]. Chinese Journal of Animal Nutrition, 2019, 31(2):692-698. (in Chinese)

[36]
PETZEL E A, ACHARYA S, ZELTWANGER J M, et al. Effects of corn processing and cattle size on total tract digestion and energy and nitrogen balance[J]. Journal of Animal Science, 2021, 99(12):skab349.

[37]
PITTALUGA A, RELLING A E. Inclusion of a multispecies fungal feed additive in forage-based diets fed to beef cattle:effects on growth performance and ruminal fermentation[J]. Journal of Animal Science, 2024, 102(S2):214-215.

[38]
LI H W, WANG Y N, VINSKY M, et al. Accuracy of genomic predictions using single and multiple-trait machine learning methods in Canadian beef cattle population[J]. Journal of Animal Science, 2024, 102(S3):33-34.

[39]
MIZRAHI I, WALLACE R J,MORA? S S. The rumen microbiome:balancing food security and environmental impacts[J]. Nature Reviews Microbiology, 2021, 19(9):553-566.

DOI

[40]
LE VAN T D, ROBINSON J A, RALPH J, et al. Assessment of reductive acetogenesis with indigenous ruminal bacterium populations and Acetitomaculum ruminis[J]. Applied and Environment Microbiology, 1998, 64(9):3429-3436.

DOI

[41]
HUWS S A, SKVORTSOV T, SANTOS F G, et al. Phylogenetic systematics of Butyrivibrio and Pseudobutyrivibrio genomes illustrate possession of open genomes rich in orthologous accessory genes with an abundance of carbohydrate-active enzyme isoforms[J/OL]. Microbial Genomics, 2020, doi:10.21203/rs.3.rs-34780/v1.

[42]
PLATA G, BAXTER N T, HAWKINS T B, et al. Interactions between time on diet,antibiotic treatment,and liver abscess development on the fecal microbiome of beef cattle[J]. Animal Microbiome, 2025, 7(1):45.

DOI

[43]
LAKAMP D, ADAMS S, WELLS J E, et al. Predicting feed efficiency traits in beef cattle using genomics and rumen microbiomics[J]. Journal of Animal Science, 2025, 103(S1):18-19.

[44]
SANCHIZ-CALVO M, COCCIA E, CAWTHORNE C, et al. Loss of the lysosomal lipid flippase ATP10B leads to progressive dopaminergic neurodegeneration and parkinsonian motor deficits[J]. Acta Neuropathologica, 2025, 150(1):5.

DOI

[45]
YU S, WEI W, XIA M, et al. Molecular characterization,alternative splicing and expression analysis of ACSF2 and its correlation with egg-laying performance in geese[J]. Animal Genetics, 2016, 47(4):451-462.

DOI

[46]
陈慧, 唐春梅, 邹华围, 等. 常用饲料的组成差异及其瘤胃降解特性的研究[J]. 中国畜牧杂志, 2013, 49(23):46-51.

CHEN H, TANG C M, ZOU H W, et al. Study on compositions and rumen degradability characteristics of common feeds in beef cattle[J]. Chinese Journal of Animal Science, 2013, 49(23):46-51. (in Chinese)

文章导航

/