综述

哺乳动物雷帕霉素靶蛋白信号通路在鱼类营养代谢调控中的研究进展

  • 荣华 , 1 ,
  • 王鸿盛 1 ,
  • 刘襄河 1 ,
  • 宁丽军 , 2, *
展开
  • 1 襄阳职业技术大学, 襄阳 441050
  • 2 华南农业大学海洋学院, 广州 510642
*宁丽军,副教授,硕士生导师,E-mail:

荣 华(1986—),男,湖北公安人,副教授,博士,主要从事水产动物营养研究。E-mail:

Office editor: 靳爽

收稿日期: 2025-11-03

  网络出版日期: 2026-05-14

基金资助

湖北省自然科学基金创新发展联合基金项目(2024AFD053)

襄阳职业技术学院高层次人才科研启动项目(XYZYZZ02)

广东省自然科学基金(2025A1515012163)

Research Progress on Mammalian Target of Rapamycin Signaling Pathway in Regulation of Fish Nutrient Metabolism

  • RONG Hua , 1 ,
  • WANG Hongsheng 1 ,
  • LIU Xianghe 1 ,
  • NING Lijun , 2, *
Expand
  • 1 Xiangyang Vocational and Technical University, Xiangyang 441050, China
  • 2 College of Marine Sciences, South China Agricultural University, Guangzhou 510642, China
*associate professor, E-mail:

Received date: 2025-11-03

  Online published: 2026-05-14

摘要

哺乳动物雷帕霉素靶蛋白(mTOR)是进化上高度保守的核心调控因子,主要负责调控动物的生长与代谢过程。最新研究发现,mTOR具有感知氨基酸、生长因子及能量状态等上游信号的能力。凭借独特的营养感知与代谢调控功能,mTOR信号通路备受学界关注,已成为水产动物营养研究的核心焦点。本文系统梳理了mTOR感知饲料中各类营养素并介导鱼类相关代谢的最新调控机制,通过构建不同饲料营养素与mTOR信号通路之间的调控网络,试图阐明营养素借助mTOR信号通路调控鱼类摄食、生长代谢及健康维持的分子机制,旨在将鱼类分子营养与饲料配方和机体健康研究相关联,为优化鱼类饲料配方提供分子基础与理论依据。

本文引用格式

荣华 , 王鸿盛 , 刘襄河 , 宁丽军 . 哺乳动物雷帕霉素靶蛋白信号通路在鱼类营养代谢调控中的研究进展[J]. 动物营养学报, 2026 , 38(5) : 3161 -3173 . DOI: 10.12418/CJAN2026.253

Abstract

Mammalian target of rapamycin (mTOR) is an evolutionarily highly conserved core regulatory factor, primarily responsible for regulating the growth and metabolic processes of animals. Recent studies have revealed that mTOR possesses the ability to sense upstream signals such as amino acids, growth factors and energy status. Owing to its unique functions in nutrient sensing and metabolic regulation, the mTOR signaling pathway has attracted extensive attention from academia and become a core focus in aquatic animal nutrition research. This article systematically summarizes the latest regulatory mechanisms by which mTOR senses various nutrients in feed and mediates fish-related metabolism. By constructing the regulatory network between different dietary nutrients and the mTOR signaling pathway, we aim to elucidate the molecular mechanisms through which various nutrients regulate fish feeding, growth metabolism, and health maintenance via the mTOR signaling pathway. The study aims to link fish molecular nutrition with feed formulation and organismal health research, and provide a molecular basis and theoretical reference for optimizing fish feed formulations.

哺乳动物雷帕霉素靶蛋白(mammalian target of rapamycin,mTOR)信号通路与动物生长和营养代谢密切相关,广泛存在于后生动物体内[1]。在多细胞生物中,mTOR信号通路的激活可有效促进细胞增殖与分化,并深度参与蛋白质合成、脂质代谢、免疫反应等关键生物学过程的调控[2-3]。尽管mTOR作为哺乳动物生长与蛋白质翻译的关键调控因子早已被证实,但鱼类mTOR的生物学功能及其调控机制研究仍相对薄弱。现有研究多聚焦于mTOR对鱼类不同营养物质的代谢调控作用,而关于其在不同代谢过程中的作用关联,目前仍缺乏系统性的营养调控网络框架。此外,mTOR在机体细胞的营养感知过程中扮演着核心协调者角色,其信号通路可精准感知氨基酸、生长因子、能量状态等上游信号,并以细胞自主调节方式发挥作用,维持机体生长、代谢和能量稳态[4]。基于此,本文系统综述了近年来mTOR信号通路在动物细胞营养代谢中的研究进展,重点分析饲料中不同营养素通过介导mTOR信号通路对鱼类相关代谢的调控作用,并深入阐述mTOR在鱼类营养感知、代谢调节及健康维持等方面的核心作用,以期帮助人们更好地理解mTOR信号通路的营养调控机制,为改善鱼类生产实践提供更高效的营养管理策略。

1 鱼类mTOR信号通路

雷帕霉素靶蛋白(target of rapamycin,TOR)的发现源于酵母中雷帕霉素耐药性基因的研究,后续通过同源性比对和遗传进化分析证实,TOR基因在所有已完成测序的真核生物基因组中普遍存在,其在哺乳动物中的同源物后被命名为哺乳动物/机制性雷帕霉素靶蛋白[5]。作为一类从酵母到高等动物细胞中均高度保守的丝氨酸/苏氨酸激酶,TOR的基因分布具有物种特异性:酵母特异性地拥有2个TOR同源基因(TOR1和TOR2),而其他真核生物仅保留1个mTOR基因[6]。值得注意的是,真核生物中的mTOR并非以单一形式发挥作用,而是存在于2种结构、功能不同的复合体中,即mTOR复合体1(mTORC1)和mTOR复合体2(mTORC2),二者拥有独特的结合伙伴、底物特异性和雷帕霉素敏感性[7]。具体来看,mTORC1主要由mTOR、mTOR调节相关蛋白(Raptor)和哺乳动物SEC13致死蛋白8(mLST8)组成[8]。该复合体可被营养物质、生长因子及细胞能量状态激活,对雷帕霉素具有急性敏感性,其下游核心调控靶点包括核糖体蛋白S6激酶(S6K)、真核翻译起始因子4E结合蛋白(4E-BP)以及自噬激活激酶ULK1[8-9]。mTORC1通过正向调控蛋白质合成、核糖体生物合成、转录、脂质合成、核苷酸生物合成及营养吸收等合成代谢过程,同时抑制自噬等分解代谢过程,从而实现对细胞代谢稳态的精准调控[6]。mTORC2则由mTOR、mTOR独立伴侣蛋白(Rictor)、哺乳动物应激活化丝裂原活化蛋白激酶相互作用蛋白1(mSin1)和mLST8构成[8]。该复合体通过特异性磷酸化AGC激酶家族(蛋白激酶A、G、C家族激酶)的关键成员——蛋白激酶B(AKT)、血清/糖皮质激素调节激酶(SGK)及蛋白激酶C(PKC)等,精准调控细胞骨架组织、细胞空间生长及存活信号传递等多项核心细胞过程,进而参与维持细胞生理功能的稳态[9]。mTORC2对雷帕霉素的敏感性极低,仅在特定细胞类型和组织中经长期处理后才会被抑制[10]。由于mTORC2对雷帕霉素相对耐受,其生理功能及分子靶点的解析仍面临较大挑战,加之目前针对鱼类的相关研究多聚焦于mTORC1的作用机制,因此在该领域的研究中,常以简化的“mTOR/TOR”统称相关蛋白,暂未对2种复合物进行明确区分。
综上所述,尽管哺乳动物中mTORC1和mTORC2的组成与机制已明确,但在鱼类中,其进化保守性及特异性作用仍不明确。未来可以通过比较分析,着重区分在不同鱼类中进化保守的mTOR模块。

2 mTOR信号通路在鱼类营养代谢中的调控作用

作为机体生长与蛋白质翻译的核心调控因子,mTOR信号通路可被上游的不同营养因子激活,靶向调控下游关键效应分子——包括磷酸化核糖体蛋白S6激酶1(P-S6K1)/S6K1与4E-BP1,进而从翻译水平实现对蛋白质合成与分解代谢的精准调控[11-12]。饲料中营养素介导mTOR信号通路对鱼类营养代谢的影响如表1所示。研究显示,饲料中不同蛋白质源对日本花鲈[13]、红鳍东方鲀[14]、大麻哈鱼[15]体内营养物质代谢的影响均受mTOR信号通路的调控。Liang等[13]采用大豆浓缩蛋白和棉籽浓缩蛋白的混合植物蛋白质完全替代鱼粉饲养日本花鲈,发现替代组在厌食阶段P-S6K1/S6K1、mTOR基因的表达水平显著低于鱼粉组,提示mTOR信号通路潜在参与厌食诱导过程,且S6K1在摄食调节激活中发挥关键作用。Wei等[14]研究发现,红鳍东方鲀肝脏中mTOR和4E-BP基因的表达水平随饲料中棉籽蛋白水解物添加量的增加而上调,其采食量和蛋白质效率也受该成分添加量的显著影响,并确定棉籽蛋白水解物在红鳍东方鲀饲料中替代鱼粉的最适比例为16.80%~27.05%。此外,饲料适宜蛋白质水平可通过调节mTORS6K1基因的表达,激活mTOR信号通路,促进鳜鱼体内蛋白质沉积与生长发育,研究确定鳜鱼饲料的适宜蛋白质水平为46.10%~48.71%[16]。类似地,饲料中脂肪水平的差异也可通过调控磷脂酰肌醇3-激酶(PI3K)、AKTmTOR基因的表达,激活mTOR信号通路,进而影响罗非鱼和大麻哈鱼的抗氧化能力与先天免疫反应[17-18]。除蛋白质与脂肪外,在饲料中添加甘露寡糖等碳水化合物,也能显著提高尼罗罗非鱼mTORS6K1、PI3KAKT等基因的表达水平,同时显著改善其生长性能、血清健康指标和抗氧化能力[19]。此外,多项研究还表明,饲料中添加氨基酸(如亮氨酸和赖氨酸)可通过调节S6K1、4E-BP和真核翻译起始因子4B(eIF4B)等基因的表达激活mTOR信号通路,从而促进斜带石斑鱼[20]、大菱鲆[21]、虹鳟[22]和豹纹鳃棘鲈[23]等鱼类的生长及营养物质沉积。除单一氨基酸外,混合氨基酸及其组成、结构以及代谢衍生物和中间产物等,也能通过mTOR信号通路影响鱼类营养代谢。Pereira等[24]证实,多种复合氨基酸可提高尼罗罗非鱼骨骼肌中mTORRaptor基因的表达水平,激活mTOR信号通路,促进蛋白质合成与鱼类生长。α-酮戊二酸[25]、羟脯氨酸[26-27]和脯氨酸[28]则可通过激活成纤维细胞中的mTOR信号通路,调控鱼类胶原蛋白的合成。除营养因子外,非营养因子亦可通过mTOR信号通路调节鱼类营养代谢。例如,Hu等[29]研究发现,向养殖水体中每日充入氢气(H2)1 h并持续6周,可显著提高大口黑鲈的增重率、终末体重、摄食量、特定生长率和存活率,同时上调mTOR信号通路中PI3KAKTTORSGK和4E-BP1基因的表达;饲料中添加柠檬酸可显著提高mTOR信号通路关键基因(mTORS6K1、PI3KAKT)的表达水平,从而改善黄颡鱼的生长性能,提高矿物质生物利用率,促进肌肉生长与蛋白质合成[30]
表1 饲料中营养素介导mTOR信号通路对鱼类营养代谢的影响

Table 1 Effects of nutrients in feed on fish nutrient metabolism mediated by mTOR signaling pathway

营养素类型
Nutrient type
营养因子
Nutrient
factor
适宜替代比例/添加量
Optimal replacement
ratio/addition level
鱼类
Fish
mTOR信号通路响应
mTOR signaling
pathway response
营养代谢效应
Nutritional metabolic effect
参考文献
References


蛋白质
Protein
大豆浓缩蛋白和棉籽
浓缩蛋白完全
替代鱼粉
日本花鲈 磷酸化核糖体蛋白S6激酶1(P-S6K1)/
核糖体蛋白S6激酶1(S6K1)、哺乳
动物雷帕霉素靶蛋白(mTOR)
基因的表达水平显著降低
产生厌食反应,导致生长速度
较慢且死亡率较高
[13]
棉籽蛋白水解
物替代鱼粉
16.80%~
27.05%
红鳍东方鲀 肝脏中mTOR和真核翻译起始因子
4E结合蛋白(4E-BP)基因表达
上调,但在肌肉中则下调
对生长性能无显著影响 [14]
发酵豆粕
替代鱼粉
35.71% 大麻哈鱼 mTORS6K1基因的表达
水平显著提高
对生长性能、蛋白质沉积、抗氧化酶和
消化酶活性、蛋白质合成及免疫
相关基因表达具有积极影响
[15]
蛋白质水平 46.10%~
48.71%
鳜鱼 mTORS6K1基因的表达水平
与P-S6K1磷酸化水平显著提高
增强鳜鱼的蛋白质沉积和生长性能 [16]


脂肪 Fat


脂肪水平
6.85% 罗非鱼

肝脏中磷脂酰肌醇3-激酶(PI3K)、蛋白
激酶B(AKT)和mTOR基因的表达水平
随饲料脂肪水平的升高呈二次变化趋势


调控抗氧化能力和先天免疫
[17]
18.91% 大麻哈鱼 [18]
碳水化合物
Carbohydrate
甘露寡糖 0.06% 尼罗罗非鱼 mTORS6K1、PI3KAKT基因的表达
水平显著提高
显著提高生长性能、血清健康
指标和抗氧化能力
[19]


氨基酸
Amino acid
亮氨酸 3.51%~4.45% 斜带石斑鱼 正向调控mTOR通路上游基因[mTOR调节
相关蛋白(Raptor)、mTOR、哺乳动物SEC13
致死蛋白8(mLST8)]和中下游
基因[S6K1、4E-BP1、真核翻译起始
因子4B(eIF4B)]的表达
提高生长性能和
营养物质沉积效率
[20]
亮氨酸
(低蛋白质饲料)
45%蛋白质+
1%亮氨酸


大菱鲆


肌肉和肝脏中mTOR、4E-BP1和
核糖体蛋白S6的磷酸化水平提高


显著提高特定生长率、饲料效率、
蛋白质效率和增重率


[21]
精氨酸
(低蛋白质饲料)
45%蛋白质+
1%精氨酸
赖氨酸
(低鱼粉饲料)
15%鱼粉+
4.24%赖氨酸
虹鳟 mTOR、4E-BP1、类胰岛素生长因子-1
(IGF-1)和S6K1基因的表达水平提高
显著提高生长性能和肠道健康水平 [22]
赖氨酸 2.60%~2.97% 豹纹鳃棘鲈 mTORS6K1表达上调,
而4E-BP表达下调
促进蛋白质合成,
提高生长速率和饲料利用率
[23]
结晶氨基酸 6% 尼罗罗非鱼 骨骼肌中mTORRaptor基因的
表达水平提高
对生长性能无不良影响 [24]
综上所述,饲料中的蛋白质源、脂肪、碳水化合物、氨基酸等多种营养成分,以及H2、柠檬酸等非营养因子,均可通过mTOR信号通路调控鱼类的生长性能、代谢稳态、免疫应答及健康维持。mTOR信号通路是介导氨基酸调控鱼类生理效应的核心通路,而植物蛋白质源替代鱼粉常造成鱼体蛋白质合成不足,生长性能下降的现象,其原因在于植物蛋白质源激活鱼体mTOR信号通路的效率显著低于鱼粉,而mTOR信号通路恰恰是决定体蛋白质沉积效率的关键调控开关[31]。这就导致了一个关键问题:即便饲料蛋白质被鱼类充分消化吸收,也难以有效转化为体蛋白质,最终造成鱼类生长速度降低。因此,如何通过有效手段激活鱼体内的mTOR信号通路,同时消除该通路的关键抑制因子,成为提高饲料蛋白质利用率的关键所在。

3 mTOR上游感知营养信号的分子机制

作为细胞中关键的营养传感器与信号枢纽,mTOR在调控转录、翻译、细胞生长、自噬等一系列细胞过程中具有核心作用[9]。此外,mTOR能够感知营养可利用性与细胞能量状态,进而调节多种代谢途径[32-33]。其独特的营养信号与代谢输出协同调控能力,使mTOR信号通路成为动物营养生理学领域的研究焦点[34-35]。但目前关于mTOR在水产动物营养感知及其调控网络中的功能特征与作用机制,仍缺乏系统性的研究报道。下文将简要概述水产动物mTOR在感知氨基酸、生长因子及能量状态等上游信号方面的作用,以期为阐明mTOR在解读营养状态与细胞能量调控中的分子机制提供理论依据。

3.1 mTOR信号通路对氨基酸的感知

作为蛋白质合成的基本结构单位,氨基酸的传统生理功能已广为人知。近年来研究表明,除作为合成底物外,氨基酸还可作为信号分子,在调控机体多种生理过程中发挥关键作用,例如羟脯氨酸[36-37]和脯氨酸[38]可以作为信号分子介导转化生长因子-β(TGF-β)信号通路,进而促进浅色黄姑鱼的胶原蛋白沉积。目前学界普遍认为,氨基酸可通过特定感受器将信号传导至mTORC1,进而调节其活性[8,39]。值得注意的是,氨基酸是mTORC1活化不可或缺的因子,在缺乏氨基酸的情况下,即使存在生长因子,也无法有效激活mTORC1[5-6]。已有研究报道,氨基酸信号的启动与传递主要发生在溶酶体腔中[4,7]。当氨基酸充足时,Ras相关GTP酶(Rag GTPase)被激活,进而促进mTOR向溶酶体募集。其中,由Rag GTPase蛋白家族中的Rag A/B与Rag C/D组成的异二聚体介导的mTORC1溶酶体膜移位过程,是mTORC1感应氨基酸信号的关键环节。该过程依赖于其上游囊泡型ATP酶(V-ATPase)、Ragulator复合物等溶酶体相关蛋白,以及Sestrins、作用于Rag蛋白的GTP酶激活蛋白GATOR等胞质蛋白的协同信号传导[4]。此外,几种小GTP酶(Rheb、RalA、Rab5)、Ragulator复合物、质子偶联氨基酸转运蛋白(PATs)、ADP-核糖基化因子1(Arf1)、mLST8、聚磷酸肌醇多激酶(IPMK)和一般性调控阻遏蛋白激酶2(GCN2)等多种因子也参与了氨基酸至mTOR的信号传递过程[40-41]
近年来研究发现,氨基酸的充足性可通过位于溶酶体膜上的一系列传感器被感知,如溶质载体家族38成员9(SLC38A9)[42-43]、GATOR[44]、Sestrins[45]和KICSTOR[44]等,进而通过Rag-Ragulator机制将信号传递至mTORC1。目前,在水产动物中仅SLC38A9对mTOR的调控作用得到初步探究。研究表明,在鲍鱼中SLC38A9作为mTOR上游的正向调控因子,在精氨酸激活mTOR/S6K1/4E-BP1通路并促进蛋白质合成过程中具有关键作用[43]。然而,关于mTOR上游其他氨基酸传感器的研究仍较为匮乏,这在很大程度上限制了对水产动物mTOR与氨基酸关联信号的深入理解。

3.2 mTOR信号通路对生长因子的感知

研究表明,肌酸、酵母水解物及海洋红酵母可分别通过激活大口黑鲈[46]、鲤鱼[47]、罗非鱼[48]的PI3K-AKT-mTOR通路,进而分别促进大口黑鲈骨骼肌生长、鲤鱼蛋白质合成与罗非鱼脂质代谢。胰岛素及类胰岛素生长因子(IGF)主要通过保守的PI3K-AKT-结节性硬化复合体(TSC)信号轴调控mTORC1活性,该通路在细胞生长与增殖调控中具有核心地位[49]。具体而言,当胰岛素或IGF与其特异性受体结合后,可募集并磷酸化胰岛素受体底物(IRS),进而激活PI3K,催化生成第二信使磷脂酰肌醇-3,4,5-三磷酸(PIP3)。随后,AKT被招募至细胞膜并被磷酸化激活,活化的AKT进一步磷酸化TSC中的TSC2亚基,促使TSC2与TSC1发生构象改变或解聚,从而削弱TSC对Rheb(Ras同源蛋白)的GTP酶激活功能。这一过程最终解除对Rheb的抑制,使其在GTP结合状态下有效激活mTORC1[50]。因此,TSC作为整合生长因子信号与多种应激信号的关键分子枢纽,成为调控mTORC1活性的另一重要节点。

3.3 mTOR信号通路对能量状态的感知

mTOR可特异性介导鱼类细胞对能量信号的感知过程。Zhou等[51]研究发现,线粒体脂肪酸氧化(FAO)的抑制作用可能通过增加细胞质中葡萄糖衍生的乙酰辅酶A含量与蛋白质乙酰化水平来刺激mTORC1的激活,从而显著促进斑马鱼的葡萄糖分解代谢;其具体机制为:为应对细胞内乙酰辅酶A含量的升高,乙酰转移酶调控的一般控制非阻遏蛋白5(GCN5)可通过与Raptor的直接相互作用催化其乙酰化,进而激活mTORC1通路。尽管mTOR上游信号感知细胞能量水平的分子机制在鱼类中的研究尚相对匮乏,但该机制已在人类、小鼠等哺乳动物模型中得到广泛阐释。研究表明,雷帕霉素可干扰小鼠[52]、大鼠[53]及人类[54]的葡萄糖稳态,提示mTOR在维持葡萄糖稳态中发挥关键作用。在细胞水平,营养与能量状态的改变主要通过腺苷酸活化蛋白激酶(AMPK)对mTORC1进行抑制[55]。具体而言,在营养与能量匮乏时,AMPK通过直接磷酸化TSC2以及抑制Raptor的磷酸化,将能量不足信号传递至mTORC1,从而抑制合成代谢并促进分解代谢[1]。此外,在缺氧或DNA损伤等应激状态下,AMPK-TSC通路也可被激活,使多种应激信号汇聚于mTORC1,实现对其活性的精细调控[56]。尽管过去普遍认为葡萄糖主要通过AMPK介导调控mTORC1,但研究发现,即使在AMPK缺失的细胞中,mTORC1仍能响应葡萄糖变化[57]。如在无葡萄糖条件下,己糖激酶-Ⅱ(HK2)能够直接结合mTORC1并抑制其活性[58]。因此,葡萄糖可能通过2种相对独立的机制调控mTORC1:一是经典的AMPK-TSC-mTORC1通路;二是HK2对mTORC1的直接抑制作用。
综上所述,尽管哺乳动物中调控mTOR信号的上游营养感知受体已陆续被阐明,但鱼类中对应的受体仍未明确。这一知识空白凸显了研究鱼类中这些营养感知通路进化保守性与功能特异性的重要性。未来可以深入挖掘鱼类mTOR信号的上游营养感知受体,阐明鱼类独特的营养调控机制,并为精准营养调控提供有效靶点。

4 mTORC1下游信号传导调控鱼类代谢的分子机制

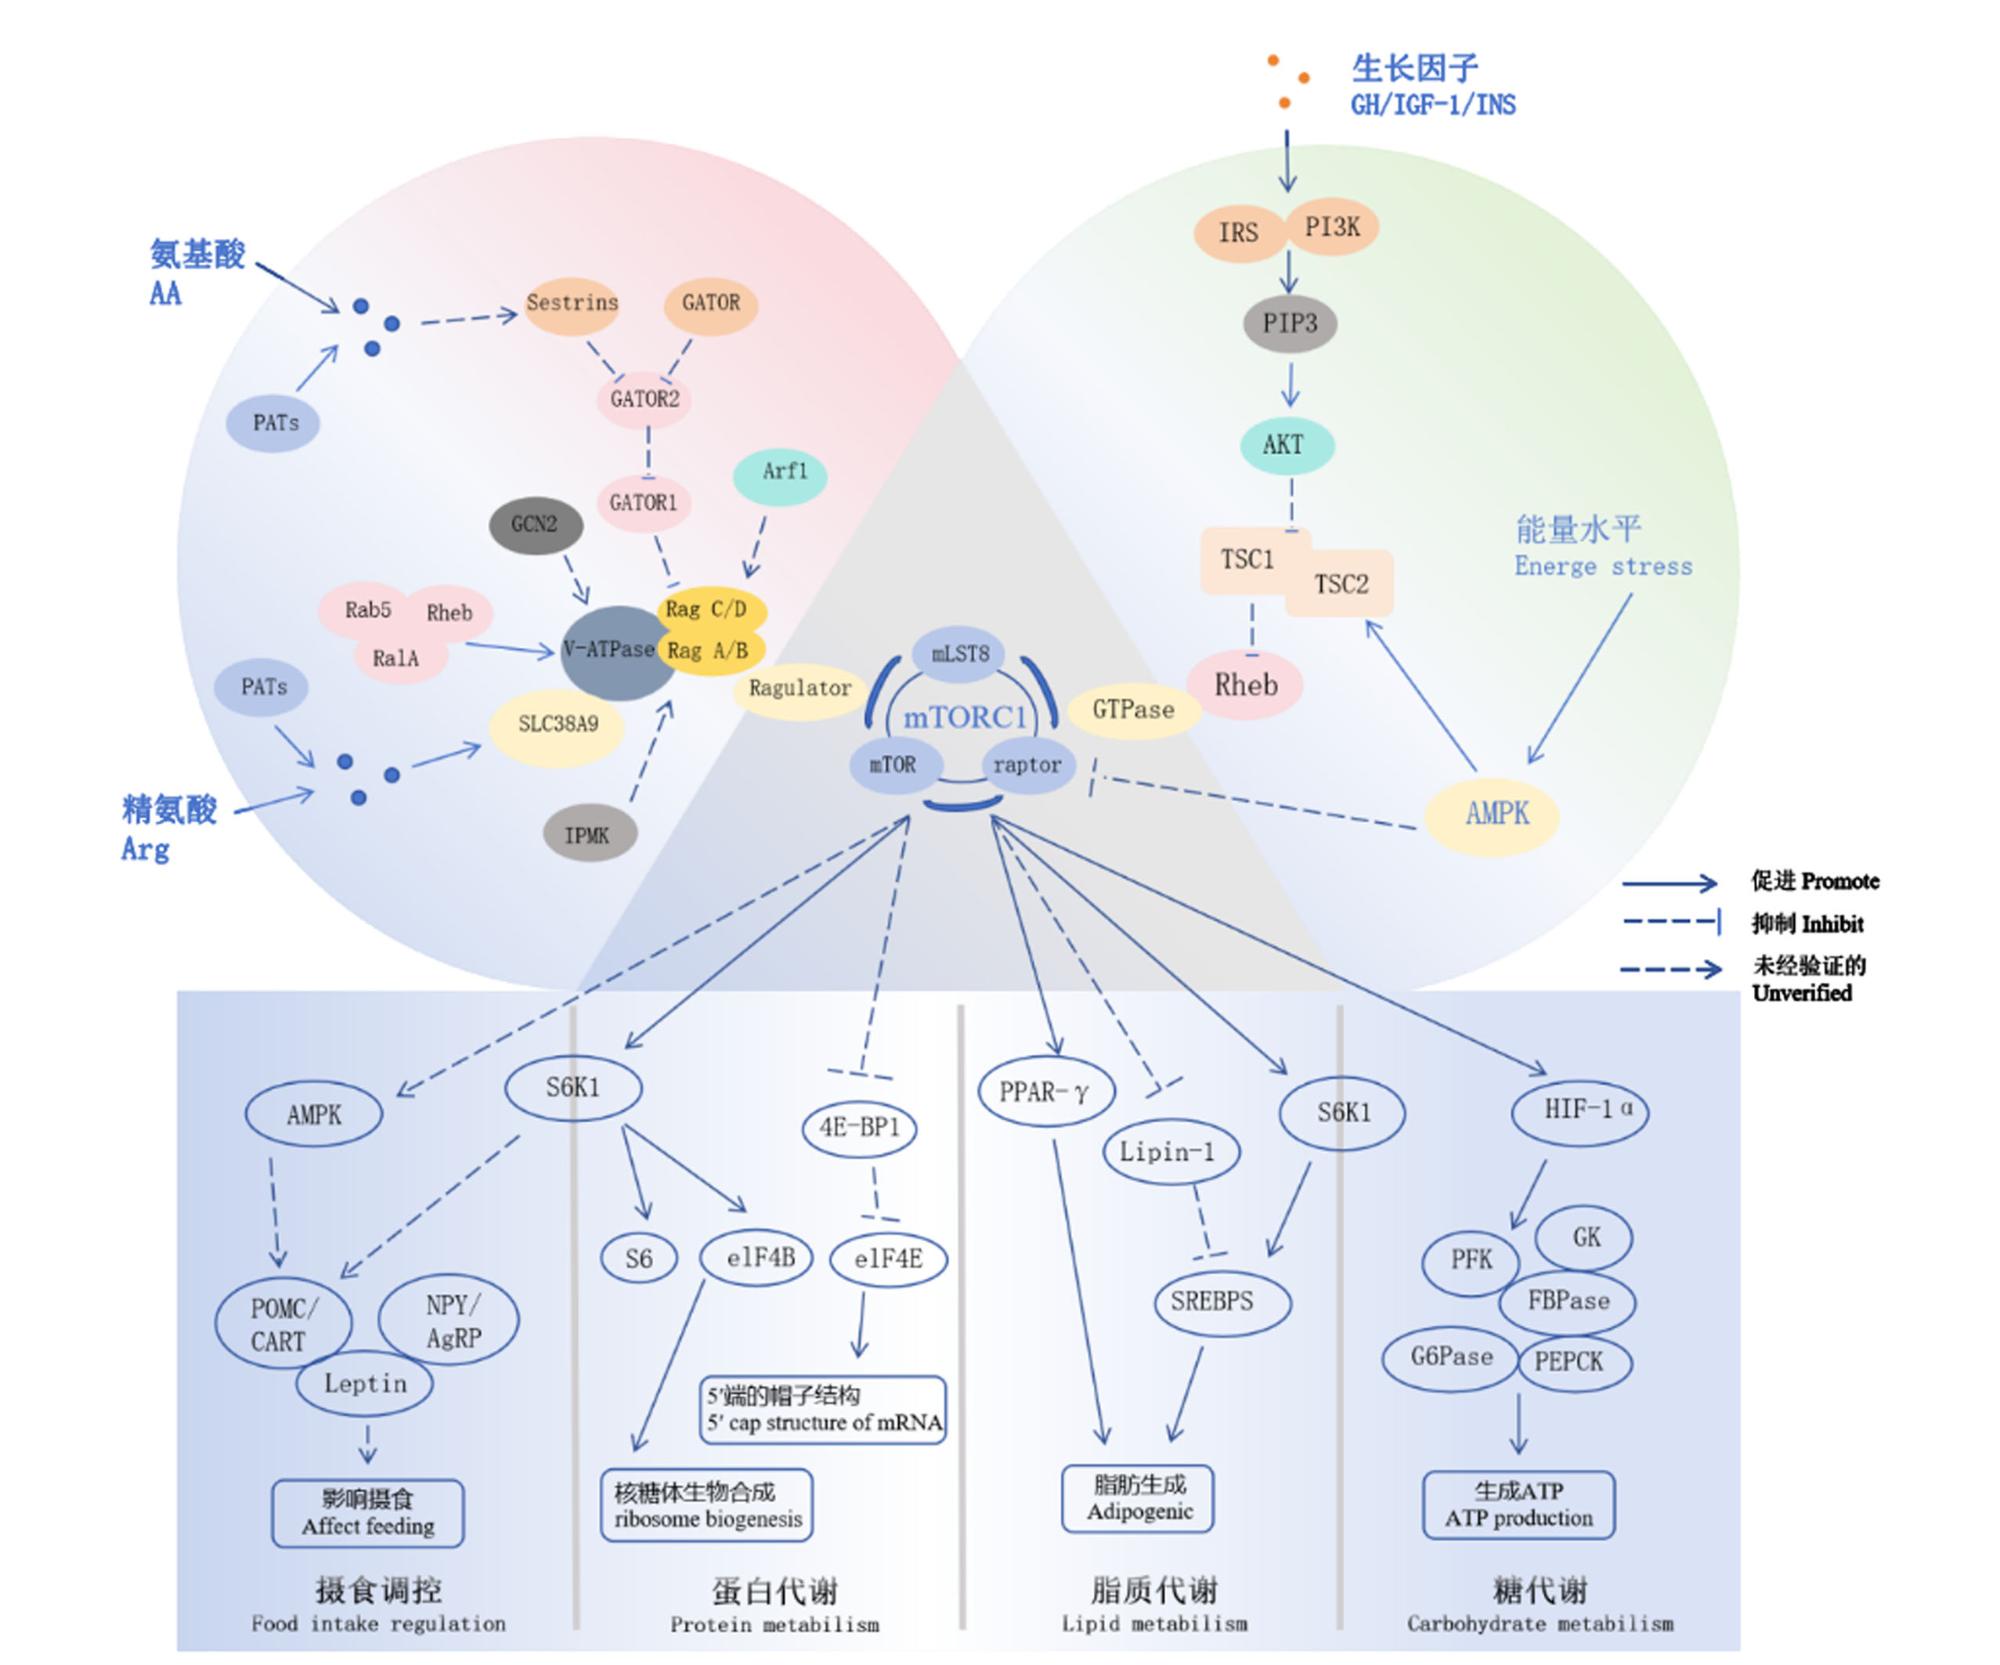
mTORC1作为营养调控网络的核心枢纽,不仅能够感知氨基酸、生长因子及能量状态等多种上游信号,还能将信号传递至下游底物或效应分子,在调控细胞生长与维持代谢稳态中发挥中枢作用。下文将简要阐述mTORC1通过下游信号通路对鱼类摄食行为及蛋白质、脂质、糖类3大营养物质代谢的调控功能,以构建mTORC1介导的鱼类营养调控整体框架(图1)。
图1 mTORC1调控鱼类营养代谢的网络框架

PATs:质子偶联氨基酸转运蛋白 proton-coupled amino acid transporters;GCN2:一般控制非阻遏蛋白2 general control nonderepressible 2;Arf1:ADP-核糖基化因子1 ADP-ribosylation factor 1;V-ATPase:囊泡型ATP酶 vacuolar-type-ATPase;GTPase:GTP酶;SLC38A9:溶质载体家族38成员9 solute carrier family 38 member 9;IPMK:聚磷酸肌醇多激酶 inositol polyphosphate multikinase;mLST8:哺乳动物SEC13致死蛋白8 mammalian lethal with SEC13 protein 8;mTORC1:哺乳动物雷帕霉素靶蛋白复合体1 mammalian target of rapamycin complex 1;mTOR:哺乳动物雷帕霉素靶蛋白 mammalian target of rapamycin;raptor:mTOR调控相关蛋白 regulatory-associated protein of mTOR;TSC1:结节性硬化复合体1 tuberous sclerosis complex 1;TSC2:结节性硬化复合体2 tuberous sclerosis complex 2;AKT:蛋白激酶B protein kinase B;PIP3:磷脂酰肌醇-3,4,5-三磷酸 phosphatidylinositol-3,4,5-trisphosphate;IRS:胰岛素受体底物 insulin receptor substrate;PI3K:磷脂酰肌醇3-激酶 phosphatidylinositol 3-kinase;AMPK:腺苷酸活化蛋白激酶 AMP-activated protein kinase;GH:生长激素 growth hormone;IGF-1:类胰岛素生长因子-1 insulin-like growth factor-1;INS:胰岛素 insulin;S6K1:核糖体蛋白S6激酶1 ribosomal protein S6 kinase 1;4E-BP1:真核翻译起始因子4E结合蛋白1 eukaryotic translation initiation factor 4E-binding protein 1;S6:核糖体蛋白S6 ribosomal protein S6;eIF4B:真核翻译起始因子4B eukaryotic translation initiation factor 4B;eIF4E:真核翻译起始因子4E eukaryotic translation initiation factor 4E;POMC/CART:阿黑皮素原/可卡因-苯丙胺调节转录肽 pro-opiomelanocortin/Cocaine- and amphetamine-regulated transcript;NPY/AgRP:神经肽Y/刺鼠相关蛋白 neuropeptide Y/Agouti-related protein;Leptin:瘦素;PPAR-γ:过氧化物酶体增殖物激活受体-γ peroxisome proliferator-activated receptor-γ;Lipin-1:脂素-1;SREBPS:固醇调节元件结合蛋白 sterol regulatory element-binding proteins;HIF-1α:缺氧诱导因子-1α hypoxia-inducible factor-1α;PFK:磷酸果糖激酶 phosphofructokinase;GK:葡萄糖激酶 glucokinase;FBPase:果糖-1,6-二磷酸酶 fructose-1,6-bisphosphatase;G6Pase:葡萄糖-6-磷酸酶 glucose-6-phosphatase;PEPCK:磷酸烯醇式丙酮酸羧激酶 phosphoenolpyruvate carboxykinase。

Fig.1 Network framework of fish nutrient metabolism regulated by mTORC1

4.1 mTOR信号通路调控鱼类摄食

鱼类摄食调节是一个复杂的生理过程,与哺乳动物类似,该过程依赖于下丘脑对营养水平变化的感知,并涉及中枢神经系统(CNS)中多种信号通路的协同作用[59]。研究表明,mTOR通过整合营养和激素信号,在调控摄食和体重增长中发挥核心作用。在营养缺乏条件下,AMPK被激活并进一步作用于mTOR,促使促食基因神经肽Y(NPY)/刺鼠相关蛋白(AgRP)的表达水平上升,同时抑制厌食基因可卡因-苯丙胺调节转录肽(CART)/阿黑皮素原(POMC)的转录[60-61]。Cota等[62]研究发现,精氨酸与亮氨酸可激活下丘脑mTOR,进而下调NPYAgRP的表达,从而抑制动物摄食行为。此外,胰岛素也可通过PI3K途径激活mTOR,参与摄食调控[2]。Liang等[13]研究发现,饲喂植物蛋白质饲料的日本花鲈在试验第3天,厌食相关基因POMCmTOR及瘦素(Leptin)的表达水平升高,而S6K1磷酸化水平与促食基因AgRP的表达趋势一致,说明中枢神经系统中S6K1的激活可能是调控日本花鲈在厌食、适应及被动停食阶段摄食行为的关键分子开关。Hu等[29]研究表明,H2处理显著提高了大口黑鲈幼鱼的摄食率(FI),并上调了mTOR信号通路相关基因(PI3KAKTmTORSGK1和4E-BP1)的表达。另有研究指出,高碳水化合物饲料可通过AMPK/mTOR信号通路诱导鳜鱼下丘脑自噬,进而上调厌食基因CARTPOMC及下调摄食基因NPY的表达,最终抑制其食欲[63-64]
综上所述,除经典的胃饥饿素/瘦素-AgRP/POMC通路外,mTOR/S6K1-POMC通路、mTOR/AMPK通路以及PI3K/mTOR/NPY通路等也在鱼类摄食行为调控中扮演重要角色,这些通路共同构成了鱼类多层次的摄食调控信号网络。

4.2 mTOR信号通路调控鱼类蛋白质代谢

蛋白质合成是动物生长发育的关键环节,也是目前mTOR信号通路中研究最为清晰的生命过程之一,其中翻译起始是蛋白质合成的限速步骤。作为真核生物蛋白质合成的核心调控激酶,mTORC1对整体翻译水平具有重要调控作用。该复合物通过促进其下游效应蛋白S6K1与4E-BP1的磷酸化,进而调控核糖体RNA的翻译进程与蛋白质合成,最终影响细胞生长、增殖、凋亡和自噬等生命活动[1-2]。大量研究证实,雷帕霉素在显著抑制鱼类S6K1和4E-BP1等关键蛋白磷酸化的同时,会抑制机体蛋白质的合成[4,10]。在翻译调控机制中,真核翻译起始因子4E(eIF4E)等起始因子发挥着核心作用。eIF4E通过识别mRNA 5'端的帽结构,参与形成真核翻译起始因子4F(eIF4F)复合物,该复合物为核糖体结合所必需[4]。4E-BP1作为翻译抑制因子,可竞争性结合eIF4E,阻止eIF4F复合物的组装;而当4E-BP1被磷酸化后,则与eIF4E解离,进而启动eIF4F复合物形成,促进翻译起始[2,4]。与此同时,mTORC1通过磷酸化级联反应激活S6K1,活化的S6K1进一步促使核糖体蛋白S6的多个丝氨酸残基磷酸化,增强对含嘧啶基因的mRNA翻译效率。这一系列磷酸化事件有助于促进翻译起始与肽链延伸,从而加速蛋白质合成[2]
综上所述,mTOR下游信号主要经由S6K1/S6与4E-BP1/eIF4E两条通路进行传递,共同调控蛋白质翻译过程,进而影响肌肉生长等生理功能。

4.3 mTOR信号通路调控鱼类脂质代谢

固醇调节元件结合蛋白(SREBP)、过氧化物酶体增殖物激活受体-γ(PPAR-γ)与脂素-1(Lipin-1)是调控细胞脂质稳态的关键转录因子。研究表明,mTORC1可通过促进Lipin-1的磷酸化及其核位移,进一步激活SREBP 1/2转录因子,从而调控一系列参与脂肪酸、胆固醇、甘油三酯及磷脂合成与吸收相关基因的表达[65]。另有研究指出,mTORC1还通过调控PPAR-γ的翻译过程,促进脂肪细胞的终末分化[66]。大量试验证实,雷帕霉素介导的mTORC1抑制能够显著下调虹鳟[67]、大菱鲆[68]和尼罗罗非鱼[69]体内SREBP及其下游脂质合成相关基因(如脂肪酸、甘油三酯和胆固醇合成关键基因)的表达,并抑制脂肪酸合酶(FAS)功能,说明mTORC1在鱼类肝脏脂肪生成过程中有抑制性调控作用。除直接激活脂肪生成因子达到促进脂肪组织扩张外,mTORC1还可通过其下游效应蛋白p-S6K1间接调控SREBP的磷酸化及其靶基因的激活[70]
综上所述,mTOR信号通路在机体脂质代谢中发挥核心作用,在鱼类中,该过程主要由mTORC1通过调控SREBP、Lipin-1、PPAR-γ及S6K1等关键转录因子共同实现。

4.4 mTOR信号通路调控鱼类糖代谢

尽管与已较为清晰的蛋白质代谢调控通路相比,mTOR在糖代谢中的作用机制尚未完全阐明,但多项研究均表明其在激活糖代谢过程中扮演重要角色。研究显示,在细胞能量水平较低时,mTORC1可通过正向调控缺氧诱导因子-1α(HIF-1α)的转录与翻译,进而增强糖酵解过程,促进ATP生成[2]。此外,mTOR还能够通过影响葡萄糖激酶(GK)、葡萄糖-6-磷酸酶(G6Pase)等关键代谢酶的活性,参与调控鱼类的糖酵解与糖异生过程[2,4]。有研究证实,雷帕霉素抑制mTOR可显著降低虹鳟GKG6Pase及果糖-1,6-二磷酸酶(FBPase)基因的表达水平,并显著抑制虹鳟肝脏中的GK活性;禁食后恢复投喂可使GK的mRNA表达量急剧上升数百倍,而该过程可被雷帕霉素显著抑制[67]。Han等[69]在尼罗罗非鱼的高脂饲料中添加雷帕霉素后发现,其肝脏与脂肪组织中GK转录水平显著上升;同时,mTOR的抑制还下调了肝脏中磷酸果糖激酶(PFK)、G6PaseFBPase基因的表达。这些结果共同提示,mTOR在鱼类糖代谢中具有复杂且尚未被充分揭示的调控潜力,其具体效应可能因生理、环境与营养背景而异,亟需开展系统研究以阐明mTOR在鱼类中的特异性、依赖性调控机制,从而推进水产精准营养研究,缓解水产养殖系统中的代谢功能障碍。
综上所述,胰岛素/IGF、能量状态(如AMPK)及氨基酸信号等均可激活mTOR,进而调控其下游靶点S6K1与4E-BP1,最终对鱼类生长和生理功能产生影响。然而,S6K1的过度表达会通过负反馈机制抑制胰岛素受体底物IRS1的活性,进一步削弱PI3K-AKT信号,并促进糖异生关键基因G6Pase与磷酸烯醇式丙酮酸羧激酶(PEPCK)的表达,形成“负反馈环路”,最终导致胰岛素抵抗[71]。由此可见,mTOR信号通路与生长因子、能量状态及氨基酸等多种营养信号之间存在广泛交叉对话,可共同协调蛋白质、脂质与糖类代谢,并在细胞应激应答中发挥整合作用。

5 小结与展望

mTOR信号通路因其具备将营养信号与代谢反应相耦联的独特能力,已成为水产动物营养领域的研究热点。简而言之,氨基酸可通过特定氨基酸传感器调控Rag-Ragulator复合物,进而激活mTOR;而生长因子和能量信号则分别经PI3K/AKT通路与AMPK通路调控TSC,最终影响mTOR的活性。活化的mTOR进一步通过S6K1、S6、eIF4B及4E-BP1等下游效应分子,参与调控鱼类的摄食行为、生长代谢与健康维持等关键生理过程。尽管已有诸多研究证实,饲料中多种营养素可通过mTOR信号通路调控鱼类细胞的营养代谢过程,但其直接作用的分子靶点及物种间特异性调控机制仍有待系统阐明。
未来的研究可围绕以下3大核心方向系统展开,以深化mTOR信号通路在鱼类养殖中的应用研究。1)挖掘食性依赖的mTOR调控网络差异:鱼类食性具有显著多样性,涵盖肉食性、杂食性、滤食性、草食性等,这种食性分化直接导致mTOR介导的代谢调控网络存在明显物种依赖性。系统解析该调控网络的物种特异性与饮食适应性机制,可为精准营养干预方案的设计、定制化饲料配方的开发提供科学依据,进而实现水产养殖中生长效率、代谢功能与抗逆性能的协同优化;2)优化鱼粉替代蛋白质源的mTOR激活效率:现有替代蛋白质源对鱼体mTOR通路的激活效率普遍低于鱼粉,这一现象与抗营养因子去除效果、氨基酸组成平衡度、生物活性物质可利用性及机体代谢适应性密切相关。未来研究应整合精准营养设计与加工技术优化,通过靶向改良替代蛋白质源的营养特性与消化利用效率,提升水产动物对蛋白质的吸收转化效率,同步改善其生长性能与健康状况;3)靶向调控乙酰辅酶A介导的mTOR激活通路:乙酰辅酶A作为3大营养素代谢的关键交叉节点,既是合成代谢反应的核心前体,也是酶活性调控的重要调节剂,更是蛋白质乙酰化修饰的关键决定因素,同时还是实现“蛋白质节约效应”的核心作用靶点。未来研究需整合多维度分子营养手段,通过靶向调控非蛋白质物质来源的细胞乙酰辅酶A含量(如线粒体脂肪酸氧化抑制可促进葡萄糖分解代谢,进而增加乙酰辅酶A生成),激活mTOR信号通路以增强蛋白质合成、抑制蛋白质分解,最终实现动物体蛋白质沉积量的提升或饲料蛋白质需求量的降低。
[1]
辛芳, 王雷, 刘梅, 等. 水产动物雷帕霉素受体信号通路的研究进展[J]. 海洋科学, 2016, 40(1):147-154.

XIN F, WANG L, LIU M, et al. Mechanistic target of rapamycin signaling in aquatic animals[J]. Marine Sciences, 2016, 40(1):147-154. (in Chinese)

[2]
吴龙华, 梁化亮, 戈贤平, 等. 鱼类雷帕霉素靶蛋白信号通路生物学功能的研究进展[J]. 动物营养学报, 2021, 33(10):5486-5496.

DOI

WU L H, LIANG H L, GE X P, et al. Research progress on biological function of target of rapamycin signaling pathway in fish[J]. Chinese Journal of Animal Nutrition, 2021, 33(10):5486-5496. (in Chinese)

[3]
孟迎冬, 王旋, 刘成栋, 等. 激活mTOR信号通路对低蛋白饲料下中国花鲈生长性能、氨基酸代谢及肠道健康的影响[J]. 水产学报, 2025, 49(10):109601.

MENG Y D, WANG X, LIU C D, et al. Effects of mTOR signalling pathway activation on growth performance,amino acid metabolism and intestinal health of sea bass (Lateolabrax maculatus) fed low-protein diets[J]. Journal of Fisheries of China, 2025, 49(10):109601. (in Chinese)

[4]
LIU Y, MAI K S, ZHANG W B. mTOR signaling in aquaculture animals:a central nutrient-sensing hub orchestrating growth,metabolism,health and quality[J]. Reviews in Aquaculture, 2025, 17(4):e70068.

DOI

[5]
KENNEDY B K, LAMMING D W. The mechanistic target of rapamycin:the grand ConducTOR of metabolism and aging[J]. Cell Metabolism, 2016, 23(6):990-1003.

DOI

[6]
KIM J, GUAN K L. mTOR as a central hub of nutrient signalling and cell growth[J]. Nature Cell Biology, 2019, 21(1):63-71.

DOI PMID

[7]
LIU G Y, SABATINI D M. mTOR at the nexus of nutrition,growth,ageing and disease[J]. Nature Reviews Molecular Cell Biology, 2020, 21(4):183-203.

DOI

[8]
SHIMOBAYASHI M, HALL M N. Multiple amino acid sensing inputs to mTORC1[J]. Cell Research, 2016, 26(1):7-20.

DOI PMID

[9]
ALBERT V, HALL M N. mTOR signaling in cellular and organismal energetics[J]. Current Opinion in Cell Biology, 2015, 33:55-66.

DOI PMID

[10]
SOENGAS J L. Integration of nutrient sensing in fish hypothalamus[J]. Frontiers in Neuroscience, 2021, 15:653928.

DOI

[11]
何林岳, 刘昊昆, 韩冬, 等. 低蛋白饲料补充必需氨基酸对异育银鲫生长、氨基酸转运和mTOR信号通路相关基因的影响[J]. 水生生物学报, 2024, 48(1):1-9.

HE L Y, LIU H K, HAN D, et al. Low-protein diets supplemented with essential amino acids on growth,amino acid transporters and gene expression of the mTOR signaling pathway in gibel carp (Carassius gibelio)[J]. Acta Hydrobiologica Sinica, 2024, 48(1):1-9. (in Chinese)

[12]
ZHANG Q, YANG Q Y, GUO M J, et al. The effects of dietary fermented soybean meal supplementation on the growth,antioxidation,immunity,and mTOR signaling pathway of juvenile coho salmon (Oncorhynchus kisutch)[J]. Fishes, 2023, 8(9):448.

DOI

[13]
LIANG X F, HAN J, XUE M, et al. Growth and feed intake regulation responses to anorexia,adaptation and fasting in Japanese seabss,Lateolabrax japonicas when fishmeal is totally replaced by plant protein[J]. Aquaculture, 2019, 498:528-538.

DOI

[14]
WEI Y L, FAN Y H, LI Y L, et al. Evaluation of cottonseed protein hydrolysate for replacing fish meal in diets of juvenile tiger puffer (Takifugu rubripes)[J]. Animal Feed Science and Technology, 2025, 324:116307.

DOI

[15]
ZHANG Q, GUO M J, LI F H, et al. Evaluation of fermented soybean meal to replace a portion fish meal on growth performance,antioxidant capacity,immunity,and mTOR signaling pathway of coho salmon (Oncorhynchus kisutch)[J]. Aquaculture Nutrition, 2023, 2023(1):2558173.

[16]
ZHANG Q W, LI J, DING L Y, et al. Effects of dietary protein level on growth performance,plasma parameters,nutritional metabolism,and mTOR pathway of Chinese perch (Siniperca chuatsi)[J]. Aquaculture Reports, 2024, 39:102390.

DOI

[17]
LIU Y Q, HUANG E H, XIE Y, et al. The effect of dietary lipid supplementation on the serum biochemistry,antioxidant responses,initial immunity,and mTOR pathway of juvenile tilapia (Oreochromis niloticus)[J]. Fishes, 2023, 8(11):535.

DOI

[18]
YU H R, SHAN L L, LI L Y, et al. Effect of dietary lipid levels on the anti-oxidant responses,initial immunity,and mTOR signaling in the liver of coho salmon (Oncorhynchus kisutch)[J]. Aquaculture Reports, 2022, 23:101090.

DOI

[19]
ZHANG Q, LI L Q, MA Z Y, et al. Effects of mannan oligosaccharides on growth,antioxidant and immune performance,and mTOR signaling pathway in juvenile tilapia (Oreochromis niloticus)[J]. Animals, 2025, 15(16):2459.

DOI

[20]
NIU X J, QIAN X L, FENG H M, et al. Growth and metabolic responses of grouper juveniles (Epinephelus coioides) fed diets containing varying levels of leucine[J]. Aquaculture, 2021, 534:736281.

DOI

[21]
田原, 刘成栋, 王旋, 等. 低蛋白饲料添加亮氨酸、精氨酸对大菱鲆幼鱼生长、消化、免疫及mTOR信号通路的影响[J]. 中国海洋大学学报(自然科学版), 2024, 54(5):33-43.

TIAN Y, LIU C D, WANG X, et al. Effects of leucine and arginine supplements of low-protein diets on growth,digestion,immunity and target of rapamycin signaling pathway of juvenile turbot[J]. Periodical of Ocean University of China(Natural Science Edition), 2024, 54(5):33-43. (in Chinese)

[22]
ZHANG S Z, WANG C A, LIU S Y, et al. Impact of dietary lysine on growth,nutrient utilization,and intestinal health in triploid rainbow trout (Oncorhynchus mykiss) fed low fish meal diets[J]. Aquaculture Reports, 2024, 39:102402.

DOI

[23]
DOU X M, LIU Y, CAO Y X, et al. Effects of dietary lysine level on growth performance and protein metabolism in juvenile leopard coral grouper (Plectropomus leopardus)[J]. Aquaculture Nutrition, 2023, 2023(1):1017222.

[24]
PEREIRA DA CRUZ T, MICHELATO M, DAL-PAI-SILVA M, et al. Growth performance,amino acid retention and mRNA levels of mTORC1 signaling pathway genes in Nile tilapia fingerlings fed protein-bound and crystalline amino acids[J]. Aquaculture, 2021, 543:736953.

DOI

[25]
GE J, CUI H C, XIE N, et al. Glutaminolysis promotes collagen translation and stability via α-ketoglutarate-mediated mTOR activation and proline hydroxylation[J]. American Journal of Respiratory Cell and Molecular Biology, 2018, 58(3):378-390.

DOI PMID

[26]
RONG H, LIN F, ZHANG Y L, et al. The TOR pathway participates in the regulation of growth development in juvenile spotted drum (Nibea diacanthus) under different dietary hydroxyproline supplementation[J]. Fish Physiology and Biochemistry, 2020, 46(6):2085-2099.

DOI

[27]
荣华, 王正阳, 郝亭亭, 等. 甘氨酸、脯氨酸及羟脯氨酸介导胶原蛋白代谢研究进展[J]. 西北农林科技大学学报(自然科学版), 2021, 49(11):53-61.

RONG H, WANG Z Y, HAO T T, et al. Research progress of glycine,proline and hydroxyproline mediated collagen metabolism[J]. Journal of Northwest A&F University (Natural Science Edition), 2021, 49(11):53-61. (in Chinese)

[28]
RONG H, LIN F, ZHANG Y L, et al. Effects of dietary proline on growth,physiology,biochemistry and TOR pathway-related gene expression in juvenile spotted drum Nibea diacanthus[J]. Fisheries Science, 2020, 86(3):495-506.

DOI

[29]
HU J R, HUANG L, WANG L, et al. Hydrogen administration improves the growth performance of juvenile largemouth bass (Micropterus salmoides) by increasing feed intake,reducing serum lipids,activating mTOR and Nrf2 signaling pathways,and altering the intestinal microbiota[J]. Aquaculture Reports, 2023, 33:101749.

DOI

[30]
ZHAO T, XU J J, KOTZAMANIS Y P, et al. Effects of dietary citric acid on growth performance,mineral status,body and muscle composition,muscle growth and mTOR signaling in yellow catfish Pelteobagrus fulvidraco fed with low-manganese diets[J]. Aquaculture, 2024, 582:740569.

DOI

[31]
麦康森, 吕美东, 何艮. 水产饲料的蛋白源问题——提高饲料蛋白质利用率新思路[J]. 饲料工业, 2021, 42(1):2-6.

MAI K S, LV M D, HE G. The issue of protein sources of aquafeed-a new approach to improve utilization efficiency of feed protein[J]. Feed Industry, 2021, 42(1):2-6. (in Chinese)

[32]
NOURELDEIN M H, EID A A. Gut microbiota and mTOR signaling:insight on a new pathophysiological interaction[J]. Microbial Pathogenesis, 2018, 118:98-104.

DOI

[33]
GU D H, ZHAO J Y, LIMBU S M, et al. Arginine supplementation in plant-rich diets affects growth,feed utilization,body composition,blood biochemical indices and gene expressions of the target of rapamycin signaling pathway in juvenile Asian red-tailed catfish (Hemibagrus wyckoiides)[J]. Journal of the World Aquaculture Society, 2022, 53(1):133-150.

DOI

[34]
赵垚, 刘成栋, 周慧慧, 等. 低鱼粉饲料中添加mTOR激活剂对中国花鲈幼鱼生长、抗氧化能力和肠道健康的影响[J]. 水产学报, 2025, 49(9):099605.

ZHAO Y, LIU C D, ZHOU H H, et al. Effects of adding mTOR activators to low-fishmeal diets on growth,antioxidant capacity,and intestinal health of spotted seabass (Lateolabrax maculatus)[J]. Journal of Fisheries of China, 2025, 49(9):099605. (in Chinese)

[35]
王馨聆, 王旋, 刘成栋, 等. mTOR信号通路对凡纳滨对虾生长、抗氧化及非特异性免疫力的影响[J]. 中国海洋大学学报(自然科学版), 2025, 55(4):39-48.

WANG X L, WANG X, LIU C D, et al. Effects of mTOR signaling pathway on growth,antioxidant and non-specific immunity of Litopenaeus vannamei[J]. Periodical of Ocean University of China(Natural Science Edition), 2025, 55(4):39-48. (in Chinese)

[36]
荣华, 李德强, 马敏伟, 等. TGF-β/Smads信号通路介导脯氨酸促进浅色黄姑鱼鱼鳔胶原蛋白沉积[J]. 水生生物学报, 2022, 46(11):1649-1657.

RONG H, LI D Q, MA M W, et al. TGF-β/Smads signaling pathway regulates pro to promote collagen deposition in the swim bladder of Chu’s croaker (Nibea coibor)[J]. Acta Hydrobiologica Sinica, 2022, 46(11):1649-1657. (in Chinese)

[37]
荣华, 杨钰香, 王晓雯, 等. 脯氨酸对浅色黄姑鱼鱼鳔胶原蛋白沉积及相关基因表达的影响[J]. 动物营养学报, 2022, 34(5):3184-3193.

DOI

RONG H, YANG Y X, WANG X W, et al. Effects of proline on collagen deposition and related gene expression in swim bladder of Chu’s croaker (Nibea coibor)[J]. Chinese Journal of Animal Nutrition, 2022, 34(5):3184-3193. (in Chinese)

DOI

[38]
荣华, 杨石坤, 杜有家, 等. 抑制TGF-β/Smads通路对Hyp促进浅色黄姑鱼鱼鳔胶原蛋白沉积的影响[J]. 西北农林科技大学学报(自然科学版), 2022, 50(9):1-10.

RONG H, YANG S K, DU Y J, et al. Effects of inhibiting TGF-β/Smads pathway on hydroxyproline promotion of collagen deposition in swim bladder of Chu’s croaker (Nibea coibor)[J]. Journal of Northwest A&F University (Natural Science Edition), 2022, 50(9):1-10. (in Chinese)

[39]
GOBERDHAN D C I, WILSON C, HARRIS A L. Amino acid sensing by mTORC1:intracellular transporters mark the spot[J]. Cell Metabolism, 2016, 23(4):580-589.

DOI

[40]
张翔, 王祖峰. 分子伴侣Hsp70变构机制及其在水生动物中的应用研究进展[J]. 大连海洋大学学报, 2022, 37(4):707-718.

ZHANG X, WANG Z F. Advances in allosteric mechanism and potential application of Hsp70 molecular chaperones in aquaculture animals:a review[J]. Journal of Dalian Ocean University, 2022, 37(4):707-718. (in Chinese)

[41]
WOLFSON R L, SABATINI D M. The dawn of the age of amino acid sensors for the mTORC1 pathway[J]. Cell Metabolism, 2017, 26(2):301-309.

DOI PMID

[42]
WANG S Y, TSUN Z Y, WOLFSON R, et al. The amino acid transporter SLC38A9 is a key component of a lysosomal membrane complex that signals arginine sufficiency to mTORC1[J]. Science, 2015, 347(6218):188-194.

DOI

[43]
LIU Y, YU H X, GUO Y L, et al. Arginine regulates TOR signaling pathway through SLC38A9 in abalone Haliotis discus hannai[J]. Cells, 2021, 10(10):2552.

DOI

[44]
WOLFSON R L, CHANTRANUPONG L, WYANT G A, et al. KICSTOR recruits GATOR1 to the lysosome and is necessary for nutrients to regulate mTORC1[J]. Nature, 2017, 543(7645):438-442.

DOI

[45]
WOLFSON R L, CHANTRANUPONG L, SAXTON R A, et al. Sestrin2 is a leucine sensor for the mTORC1 pathway[J]. Science, 2016, 351(6268):43-48.

DOI PMID

[46]
YU H D, HE Y, QIN M, et al. Dietary creatine promotes creatine reserves,protein deposition,and myofiber hyperplasia in muscle of juvenile largemouth bass (Micropterus salmoides)[J]. Aquaculture, 2024, 583:740591.

DOI

[47]
YUAN X Y, WANG C L, LIU W B, et al. Evaluation of yeast hydrolysate as a substitute to dietary fish meal of juvenile Jian carp (Cyprinus carpio var. Jian):protein synthesis via TOR pathway[J]. Aquaculture Nutrition, 2021, 27(6):1853-1860.

DOI

[48]
LIU Y Q, HUANG E H, LI X M, et al. Effects of dietary marine red yeast supplementation on growth performance,antioxidant,immunity,lipid metabolism and mTOR signaling pathway in Juvenile tilapia (Oreochromis niloticus)[J]. Aquaculture Reports, 2024, 37:102196.

DOI

[49]
DIBBLE C C, CANTLEY L C. Regulation of mTORC1 by PI3K signaling[J]. Trends in Cell Biology, 2015, 25(9):545-555.

DOI PMID

[50]
HOPKINS B D, GONCALVES M D, CANTLEY L C. Insulin-PI3K signalling:an evolutionarily insulated metabolic driver of cancer[J]. Nature Reviews Endocrinology, 2020, 16(5):276-283.

DOI

[51]
ZHOU W H, LOU Y, LI R X. Inhibition of mitochondrial fatty acid β-oxidation activates mTORC1 pathway and protein synthesis via Gcn5-dependent acetylation of raptor in zebrafish[J]. Journal of Biological Chemistry, 2023, 299(10):105220.

DOI

[52]
LAMMING D W, YE L, KATAJISTO P, et al. Rapamycin-induced insulin resistance is mediated by mTORC2 loss and uncoupled from longevity[J]. Science, 2012, 335(6076):1638-1643.

DOI PMID

[53]
HOUDE V P, BRÛLÉ S, FESTUCCIA W T, et al. Chronic rapamycin treatment causes glucose intolerance and hyperlipidemia by upregulating hepatic gluconeogenesis and impairing lipid deposition in adipose tissue[J]. Diabetes, 2010, 59(6):1338-1348.

DOI PMID

[54]
JOHNSTON O, ROSE C L, WEBSTER A C, et al. Sirolimus is associated with new-onset diabetes in kidney transplant recipients[J]. Journal of the American Society of Nephrology, 2008, 19(7):1411-1418.

DOI PMID

[55]
GWINN D M, SHACKELFORD D B, EGAN D F, et al. AMPK phosphorylation of raptor mediates a metabolic checkpoint[J]. Molecular Cell, 2008, 30(2):214-226.

DOI PMID

[56]
FENG Z H, HU W W, DE STANCHINA E, et al. The regulation of AMPK beta1,TSC2,and PTEN expression by p53:stress,cell and tissue specificity,and the role of these gene products in modulating the IGF-1-AKT-mTOR pathways[J]. Cancer Research, 2007, 67(7):3043-3053.

DOI

[57]
EFEYAN A, ZONCU R, CHANG S, et al. Regulation of mTORC1 by the rag GTPases is necessary for neonatal autophagy and survival[J]. Nature, 2013, 493(7434):679-683.

DOI

[58]
ROBERTS D J, TAN-SAH V P, DING E Y, et al. Hexokinase-Ⅱ positively regulates glucose starvation-induced autophagy through TORC1 inhibition[J]. Molecular Cell, 2014, 53(4):521-533.

DOI

[59]
DELGADO M J, CERDÁ-REVERTER J M, SOENGAS J L. Hypothalamic integration of metabolic,endocrine,and circadian signals in fish:involvement in the control of food intake[J]. Frontiers in Neuroscience, 2017, 11:354.

DOI

[60]
OH T S, CHO H, CHO J H, et al. Hypothalamic AMPK-induced autophagy increases food intake by regulating NPY and POMC expression[J]. Autophagy, 2016, 12(11):2009-2025.

DOI

[61]
SCHNEEBERGER M, CLARET M. Recent insights into the role of hypothalamic AMPK signaling cascade upon metabolic control[J]. Frontiers in Neuroscience, 2012, 6:185.

DOI PMID

[62]
COTA D, PROULX K, BLAKE SMITH K A, et al. Hypothalamic mTOR signaling regulates food intake[J]. Science, 2006, 312(5775):927-930.

DOI PMID

[63]
YOU J J, REN P, HE S, et al. Histone methylation of H3K4 involved in the anorexia of carnivorous mandarin fish (Siniperca chuatsi) after feeding on a carbohydrate-rich diet[J]. Frontiers in Endocrinology, 2020, 11:323.

DOI

[64]
LI H Y, ZENG Y Z, WANG G J, et al. Betaine improves appetite regulation and glucose-lipid metabolism in Mandarin fish (Siniperca chuatsi) fed a high-carbohydrate-diet by regulating the AMPK/mTOR signaling[J]. Heliyon, 2024, 10(7):e28423.

DOI

[65]
PETERSON T R, SENGUPTA S S, HARRIS T E, et al. mTOR complex 1 regulates lipin 1 localization to control the SREBP pathway[J]. Cell, 2011, 146(3):408-420.

DOI PMID

[66]
ANGELA M, ENDO Y, ASOU H K, et al. Fatty acid metabolic reprogramming via mTOR-mediated inductions of PPARγ directs early activation of T cells[J]. Nature Communications, 2016, 7(1):13683.

DOI

[67]
DAI W W, PANSERAT S, MENNIGEN J A, et al. Post-prandial regulation of hepatic glucokinase and lipogenesis requires the activation of TORC1 signalling in rainbow trout (Oncorhynchus mykiss)[J]. The Journal of Experimental Biology, 2013, 216(Pt 23):4483-4492.

DOI PMID

[68]
WANG Q C, HE G, MAI K S, et al. Chronic rapamycin treatment on the nutrient utilization and metabolism of juvenile turbot (Psetta maxima)[J]. Scientific Reports, 2016, 6(1):28068.

DOI

[69]
HAN S L, WANG J, LI L Y, et al. The regulation of rapamycin on nutrient metabolism in Nile tilapia fed with high-energy diet[J]. Aquaculture, 2020, 520:734975.

DOI

[70]
DÜVEL K, YECIES J L, MENON S, et al. Activation of a metabolic gene regulatory network downstream of mTOR complex 1[J]. Molecular Cell, 2010, 39(2):171-183.

DOI PMID

[71]
WULLSCHLEGER S, LOEWITH R, HALL M N. TOR signaling in growth and metabolism[J]. Cell, 2006, 124(3):471-484.

DOI PMID

文章导航

/