综述

鼠尾草酸的抗氧化作用机制及其在畜禽生产中的应用

  • 刘娉婷 , 1, 2 ,
  • 黄璇 2, 3 ,
  • 戴求仲 2, 3 ,
  • 李颖慧 , 1, 2, *
展开
  • 1 湖南农业大学动物科学技术学院, 长沙 410128
  • 2 岳麓山实验室, 长沙 410128
  • 3 湖南省畜牧兽医研究所, 长沙 410131
*李颖慧,副教授,硕士生导师,E-mail:

刘娉婷(2002—),女,湖南娄底人,硕士研究生,动物营养与饲料研究专业。E-mail:

Office editor: 陈燕

收稿日期: 2025-10-15

  网络出版日期: 2026-05-14

基金资助

湖南省自然科学基金项目(2024JJ5183)

湖南省自然科学基金项目(2025JJ70125)

Antioxidant Mechanisms of Carnosic Acid and Its Applications in Livestock and Poultry Production

  • LIU Pingting , 1, 2 ,
  • HUANG Xuan 2, 3 ,
  • DAI Qiuzhong 2, 3 ,
  • LI Yinghui , 1, 2, *
Expand
  • 1 College of Animal Science and Technology, Hunan Agriculture University, Changsha 410128, China
  • 2 Yuelu Mountain Laboratory, Changsha 410128, China
  • 3 Hunan Institute of Animal Science and Veterinary Medicine, Changsha 410131, China
*associate professor, E-mail:

Received date: 2025-10-15

  Online published: 2026-05-14

摘要

鼠尾草酸(CA)是迷迭香(Rosmarinus officinalis)与鼠尾草(Salvia officinalis)提取物的核心活性成分,凭借优异的抗氧化、抗炎功效及脂质代谢调节能力,在畜禽生产领域备受关注。本文系统综述CA的抗氧化作用机制及其在畜禽生产中的应用实践,重点探讨其通过直接清除活性氧(ROS)、调控抗氧化酶系统,以及激活核因子红细胞2相关因子2(Nrf2)、抑制核因子-κB(NF-κB)/丝裂原活化蛋白激酶(MAPK)通路缓解氧化应激的分子机制,深入评估其作为绿色饲料添加剂改善畜禽健康状态、提升生产性能的可行性,为CA在现代畜牧业中的高效、科学应用提供参考。

本文引用格式

刘娉婷 , 黄璇 , 戴求仲 , 李颖慧 . 鼠尾草酸的抗氧化作用机制及其在畜禽生产中的应用[J]. 动物营养学报, 2026 , 38(5) : 3302 -3311 . DOI: 10.12418/CJAN2026.264

Abstract

Carnosic acid (CA), as the core active component in the extracts of Rosmarinus officinalis (rosemary) and Salvia officinalis (sage), has attracted considerable attention in the field of livestock and poultry production owing to its excellent antioxidant, anti-inflammatory effects, and lipid metabolism-regulating capability. This review systematically summarizes the antioxidant mechanisms of CA and its practical applications in livestock and poultry production. It particularly focuses on elucidating the molecular mechanisms through which CA alleviates oxidative stress, including direct scavenging of reactive oxygen species (ROS), modulation of the antioxidant enzyme system, activation of the nuclear factor erythroid 2-related factor 2 (Nrf2) signaling pathway, and inhibition of the nuclear factor-κB (NF-κB) and mitogen-activated protein kinase (MAPK) pathways. Furthermore, this article provides an in-depth assessment of the feasibility of utilizing CA as a green feed additive to enhance animal health status and improve production performance. The review aims to offer a scientific reference for the effective and rational application of CA in modern animal husbandry.

现代集约化畜牧生产中,高密度饲养、环境应激(如高温、运输)及饲料营养失衡等因素,易导致畜禽体内活性氧(reactive oxygen species,ROS)过量蓄积,打破氧化-抗氧化平衡,诱发氧化应激反应。这不仅会抑制畜禽生长发育、损害免疫功能、降低生产性能,还会增加疾病易感性,导致肉、蛋、奶等畜禽产品品质下降[1-2]。工业合成抗氧化剂虽能缓解氧化应激,但其存在成本高、热稳定性差及长期使用潜在安全风险等问题,这些缺陷限制了该类抗氧化剂的广泛应用[3]。因此,开发高效、安全的天然抗氧化剂成为研究热点。富含多酚类化合物的植物提取物[如迷迭香(Rosmarinus officinalis)与鼠尾草(Salvia officinalis)],因具备卓越的抗氧化性能脱颖而出,其抗氧化活性已在多项体内外试验中得到验证[4-5]。Romano等[6]证实鼠尾草酸(carnosic acid,CA)是迷迭香提取物抗氧化作用的核心成分;后续研究发现,CA可通过直接清除ROS、激活核因子红细胞2相关因子2(nuclear factor erythroid 2-related factor 2,Nrf2)、抑制核因子-κB(nuclear factor-κB,NF-κB)/丝裂原活化蛋白激酶(mitogen-activated protein kinase,MAPK)炎症信号通路,实现抗氧化与抗炎的协同效应[7-8]。尽管CA的抗氧化活性及畜禽应用效果已有部分报道,但其通过Nrf2、NF-κB、MAPK等信号通路协同调控氧化应激的分子机制尚未全面阐明,极大程度地限制其在畜牧业中的推广应用。本文将系统综述CA的抗氧化机制及其在畜禽生产中应用效果,重点聚焦其通过信号通路调控抗氧化过程的机制,为CA作为绿色饲料添加剂在可持续畜牧生产中的应用提供参考。

1 CA的来源与化学结构

1.1 CA的来源与提取方法

CA是唇形科(Lamiaceae)植物特有的二萜类化合物,最初从鼠尾草中分离鉴定[9];后续研究发现,迷迭香叶片中CA含量更为丰富,其干叶含量可达30 mg/g干物质重(约3%),且含量范围为3~50 mg/g干物质重,这使得迷迭香成为CA商业化提取的主要原料;而鼠尾草属植物中CA含量波动较大,含量范围为0.1~21.8 mg/g干物质重[10]。从细胞亚结构看,CA主要富集于迷迭香叶的叶绿体中(含量约为整叶的6倍),细胞内质网、高尔基体及质膜等细胞器中均未检测到CA,表明叶绿体是CA的主要储存场所[11],这一特征为其高效提取提供了重要方向。目前,CA的提取技术主要包括水提取法、溶剂萃取法(含微波辅助溶剂萃取)及超临界流体提取法3类。其中,水提取法操作简便、成本低,但CA水溶性差,提取效率低且易引入水溶性杂质,后续纯化难度大,仅适用于初步分离。溶剂萃取法以乙醇、甲醇、丙酮等为溶剂,其中乙醇-水混合体系[乙醇含量40%~60%(w/w)]提取效率高(回收率75%以上)且安全性好,是工业生产中应用最广的方案[12];丙酮-水混合体系虽提取效率高,但丙酮残留难控制,限制其在食品、饲料领域的直接应用[13]。超临界流体提取法无溶剂残留、提取纯度高,但设备投资与运行成本高,仅适用于高纯度CA(如医药级)的小规模制备[14]。综上所述,优化提取技术以平衡效率、成本与安全性,是CA实现规模化、工业化生产的核心方向。

1.2 CA的化学结构

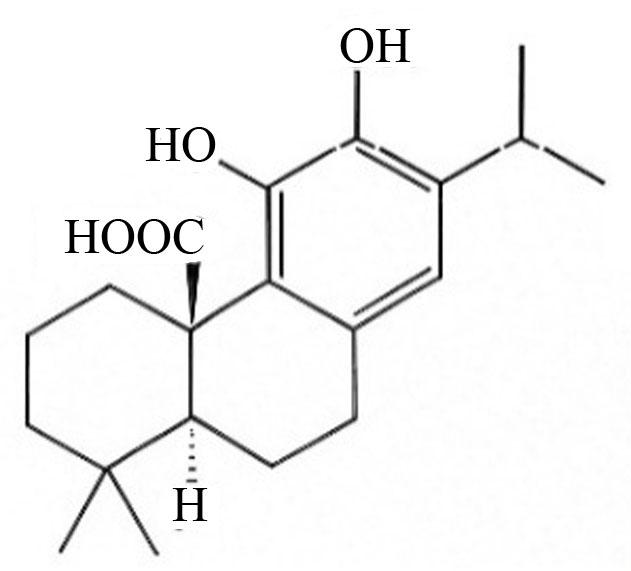
CA属于酚类二萜化合物(分子式为C20H28O4,相对分子质量为332.43),亦是萜类次级代谢产物。如图1所示,其分子中的2个酚羟基(C11、C12位)与共轭双键系统,共同构成抗氧化活性中心[15];酚羟基通过单电子转移(single electron transfer,SET)或氢原子转移(hydrogen atom transfer,HAT)机制中和自由基,形成稳定酚氧自由基以终止氧化链式反应;共轭双键系统通过电子离域增强分子稳定性、降低自由基活性,同时延长酚氧自由基半衰期,提升持续抗氧化能力[16]。尽管CA因含酚羟基常归为酚类物质,但其在生物合成途径、物理性质及功能特点上与典型酚类化合物(如类黄酮)差异显著:1)在生物合成途径方面,CA通过甲基赤藓糖醇磷酸(methylerythritol phosphate,MEP)途径在叶绿体中合成,而类黄酮多通过莽草酸途径在细胞质中合成;2)在物理性质方面,CA因脂溶性高易穿透生物膜发挥作用,而类黄酮多为水溶性或两亲性;3)在功能特点方面,类黄酮因可调控的信号通路具有多样性(已发现通路数量>10种)而适合系统性慢性病干预,亲电性高的CA在急性氧化损伤时表现出更快的响应速度[17-19]。CA的化学结构特征,为其在畜禽体内发挥抗氧化应激作用、维持组织器官功能稳定提供了必要的化学基础。
图1 鼠尾草酸化学结构

Fig.1 Molecular structure of CA

2 CA的抗氧化作用机制

2.1 直接清除自由基

在畜禽生产中,高温、密集饲养、病原感染等常见应激因素,会诱导机体产生过量ROS,包括超氧阴离子(${\mathrm{O}}_{2}^{-}$·)、羟自由基(·OH)、过氧化氢(H2O2)及单线态氧(1O2),这些ROS可通过攻击细胞膜结构中的不饱和脂肪酸触发脂质过氧化反应,导致蛋白质变性与DNA损伤,进而诱发机体免疫抑制、炎症反应异常与代谢紊乱,最终影响畜禽健康与生产性能[20]。CA通过分子结构中的活性中心直接与ROS反应,实现高效清除:一方面,酚羟基(C11、C12位)通过SET或HAT机制中和ROS,形成稳定的酚氧自由基;另一方面,共轭双键系统通过电子离域增强分子稳定性,延长抗氧化作用时间[21]。体外试验证实CA的强自由基清除能力:在2,2-二苯基-1-苦基肼自由基(DPPH)、2,2-联氮-二(3-乙基-苯并噻唑-6-磺酸)二铵盐(ABTS)自由基清除及铁离子还原能力(FRAP)试验中发现,CA的抗氧化活性仅次于人工合成抗氧化剂叔丁基对苯二酚(TBHQ),且优于没食子酸丙酯(PG)、丁基羟基茴香醚(BHA)、二丁基羟基甲苯(BHT)及维生素E(VE),各物质抗氧化活性排序为TBHQ>CA>PG>BHA>BHT>VE[22]。在中波紫外线(UVB)诱导的Hs68人皮肤成纤维细胞氧化损伤模型中,10 μmol/L CA可显著降低ROS生成,有效保护DNA免受氧化损伤[23]。此外,Aruoma等[24]发现,CA对过氧自由基的清除速率比鼠尾草醇高约10倍。值得注意的是,CA在氧化环境中形成的代谢产物(如鼠尾草醇及其他酚类二萜衍生物)可与其发挥协同抗氧化作用:CA既能直接清除过氧自由基,又可通过1O2诱导的非酶促反应转化为鼠尾草醇;而鼠尾草醇不直接清除过氧自由基,但可高效抑制脂质过氧化过程[21,25]。通过“母体化合物-代谢产物”的协同作用,CA的抗氧化谱得以拓展,使其能应对畜禽体内多种ROS的共同引发的氧化损伤,同时为后续调控抗氧化酶系统活性、维持细胞氧化还原稳态奠定基础。

2.2 调控脂质合成与代谢

在畜禽生产及代谢性疾病(如脂肪肝、高脂血症)中,体内过量蓄积的脂质易成为ROS攻击的主要底物。ROS通过氧化脂质生成丙二醛(MDA)、4-羟基壬烯醛(4-HNE)等毒性产物,不仅会破坏细胞膜结构完整性,引发细胞凋亡与组织损伤,还会导致畜产品品质下降[26]。CA是调控脂质代谢的关键分子,其核心机制在于靶向调控脂质合成与代谢相关转录因子固醇调节元件结合蛋白-1c(SREBP-1c)mRNA表达,包括过氧化物酶体增殖物激活受体γ(PPARγ)、SREBP-1c、沉默信息调节因子1(SIRT1),进而调控下游脂肪酸合成酶(FASN)、硬脂酰辅酶A去饱和酶-1(SCD-1)、肉碱棕榈酰转移酶1A(CPT1A)等关键酶的表达,最终实现脂质代谢的精准调控[27]。在高脂饮食诱导的肥胖小鼠模型中,50~100 mg/kg BW CA可显著下调肝脏和附睾脂肪组织中PPARγFASNSCD-1的mRNA表达水平,有效降低脂肪蓄积[28]。在小鼠3T3-L1脂肪细胞模型中,CA(0.1~10 μmol/L)以剂量依赖性方式降低PPARγSREBP-1c、CCAAT增强子结合蛋白α(C/EBPα)和SCD-1的mRNA表达水平,最终使脂质积累量减少约40%[27]。在畜禽模型中,CA的应用效果显著且更具实践价值:对羔羊而言,CA可显著降低肌内脂肪(intramuscular fat,IMF)中饱和脂肪酸水平,提高单不饱和脂肪酸的Δ9-去饱和指数及多不饱和脂肪酸水平,优化n-6/n-3脂肪酸比率;同时还能促进脂肪酸延长与去饱和化途径活性,增加整体脂质不饱和度、降低脂质合成饱和度,此外可降低心脏总胆固醇(TC)水平,并通过减少MDA生成增强机体抗氧化保护能力,维持脂质代谢稳态[29]。值得注意的是,CA对畜禽脂质代谢的调控效应存在明显的物种特异性:在西门塔尔牛中,饲粮添加6 g/d CA可显著增加背最长肌IMF水平;而在黄羽肉鸡中,饲粮添加约3.65 mg/d CA则显著降低胸肌IMF水平[30-31]。这种物种差异可能与不同畜禽的脂质代谢通路活性、CA代谢效率差异相关,具体机制仍需深入研究。综上所述,CA通过靶向调节PPARγSREBP-1cFASN等关键分子,从“抑制脂质合成-促进脂质分解”双维度调控脂质代谢,同时减轻脂质过氧化损伤,这为改善畜禽代谢健康、优化畜产品品质提供了重要的分子机制支撑。

2.3 增强抗氧化酶系统功能

细胞抗氧化防御体系中,超氧化物歧化酶(superoxide dismutase,SOD)、过氧化氢酶(catalase,CAT)和谷胱甘肽过氧化物酶(glutathione peroxidase,GPx)构成清除ROS的核心网络,这些酶协同维持细胞氧化还原稳态:SOD首先将 ${\mathrm{O}}_{2}^{-}$·转化为H2O2,CAT随后将H2O2分解为水和氧气,GPx则通过将H2O2和有机过氧化物还原为水或醇,进一步清除残留过氧化物;在GPx的催化过程中,还原型谷胱甘肽(GSH)被氧化为氧化型谷胱甘肽(GSSG),此时谷胱甘肽还原酶(GR)会将GSSG重新还原为GSH,维持GPx的持续活性[32-33]。CA可通过激活Nrf2等信号通路,上调SOD、CAT、GPx活性及GSH水平,同时降低MDA、ROS及总氧化状态(TOS)等氧化应激标记物水平,上述作用共同促进细胞抗氧化酶系统功能显著增强,保护组织器官免受氧化损伤。多项动物模型研究证实了这一作用:在异丙肾上腺素诱导的小鼠心肌氧化应激模型、丙烯酰胺诱导的大鼠肝损伤模型、黄曲霉毒素B1诱导的大鼠肝肾和心脏毒性模型、脂多糖(LPS)诱导的肉鸡肝肠模型及大鼠肝毒性模型中,CA均能提高SOD、CAT等抗氧化酶活性,降低MDA水平与ROS积累,减轻组织炎症反应,广泛保护心肌、肝脏、肾脏及畜禽肝肠等组织器官[34-38],为其在畜禽生产中缓解氧化应激、保护组织健康提供了科学依据。

2.4 调控氧化应激相关信号通路

2.4.1 Nrf2通路的激活

Nrf2-Kelch样ECH相关蛋白1(Keap1)系统是细胞应对氧化应激的核心防御机制,在维持氧化还原稳态中起关键作用。正常生理状态下,Nrf2与Keap1在胞质形成复合物,Keap1通过结合Nrf2-ECH同源结构域2(Neh2),介导其经Cullin3依赖的泛素-蛋白酶体途径降解,维持Nrf2低活性;氧化应激时,ROS或亲电物质改变Keap1构象,使Nrf2解离并入核,与小Maf蛋白(small Maf proteins,sMaf)形成异二聚体,结合靶基因的抗氧化反应元件(ARE),启动抗氧化基因转录[39]。CA作为亲电性二萜化合物,通过以下4种机制激活Nrf2通路。1)Keap1半胱氨酸残基修饰:CA转化为亲电中间体,与Keap1的关键半胱氨酸残基(如Cys151、Cys273、Cys288)发生S-烷基化修饰,抑制其降解Nrf2,促进Nrf2核转位[40];该修饰是激活关键步骤,半胱氨酸残基周围的碱性氨基酸降低酸解离常数(Ka)的负对数(pKa),使其易与亲电物质反应,修饰后构象改变即可释放Nrf2;在非洲绿猴肾上皮细胞(COS-7细胞)与大鼠肾上腺嗜铬细胞瘤(PC12h)细胞中,CA处理可显著提升Nrf2核转位水平,同时上调依赖还原型辅酶Ⅰ(Ⅱ)醌氧化还原酶1[NAD(P)H:quinine oxidoreductase 1,NQO1]、血红素氧合酶-1(heme oxygenase-1,HO-1)与谷氨酸-半胱氨酸连接酶(GCL)的表达水平,提高胞内GSH水平,缓解氧化应激诱导的神经元损伤[40]。2)上游信号通路调控:CA可通过激活磷脂酰肌醇3激酶(phosphatidylinositol 3-kinase,PI3K)/蛋白激酶B(protein kinase B,Akt)、p38丝裂原活化蛋白激酶(p38 mitogen-activated protein kinase,p38 MAPK,简称p38)等上游信号通路,进一步增强Nrf2通路的激活;在人神经母细胞瘤细胞系(SH-SY5Y)细胞中,CA通过激活PI3K/Akt通路促进Nrf2核转位,进而上调下游抗氧化基因的表达,而PI3K抑制剂LY294002可逆转CA对Nrf2的活化作用,这一结果证实PI3K/Akt信号通路参与Nrf2稳定性调控[41];在大鼠肝细胞(Clone 9细胞)中,CA通过p38-Nrf2通路激活NQO1,p38抑制剂SB203580可阻断CA诱导的Nrf2核内积累,表明p38是CA激活Nrf2过程的关键上游激酶[42-43]。3)整合应激反应(integrated stress response,ISR)通路激活:高剂量(50 μmol/L)CA可同时激活Nrf2和ISR通路,诱导激活转录因子4(activating transcription factor 4,ATF4)表达,协同诱导神经生长因子(NGF)和HO-1基因的表达;在针对4种真核翻译起始因子2α(eIF2α)激酶的敲低试验中,仅对血红素调节激酶(heme-regulated inhibitor,HRI)进行敲低时,完全消除了CA对ATF4蛋白以及ASNS mRNA的诱导作用,表明CA可通过HRI/磷酸化eIF2α通路激活ATF4信号通路[44-45]。4)Nrf2-p62/ZIP-原肌球蛋白受体激酶A(tropomyosin receptor kinase A,TrkA)轴形成:CA诱导p62/ZIP蛋白表达,形成Nrf2-p62/ZIP-TrkA轴,与Nrf2协同上调HO-1等基因表达。在PC12h细胞模型中,CA对p62/ZIP蛋白表达的诱导作用依赖于Nrf2;当p62/ZIP敲低后,CA诱导的ARE激活水平会减弱(约30%),这表明,细胞内存在Nrf2-p62/ZIP-TrkA正反馈循环,且进一步研究证实,Nrf2可独立调控细胞外信号调节激酶1和2(extracellular signal-regulated kinase 1 and 2,ERK1/2)信号传导[46]

2.4.2 NF-κB与MAPK通路的抑制

CA通过抑制NF-κB和MAPK通路,在氧化应激诱导的炎症反应与细胞损伤中发挥抗氧化与抗炎协同作用,进一步增强抗氧化防御能力。NF-κB通路的核心是胞质-核动态平衡:在稳态环境下,NF-κB复合物(主要为p50/p65异二聚体)通过与核因子-κB抑制蛋白α(inhibitor of NF-κBα,IκBα)结合而滞留于细胞质中,维持非活性状态;当受到氧化应激[如肿瘤坏死因子-α(tumor necrosis factor-α,TNF-α)或LPS刺激]时,上游的核因子-κB抑制蛋白激酶(nuclear factor-κB inhibitor protein kinase,IKK)复合物被激活,导致IκBα发生磷酸化和泛素化降解,释放的NF-κB随后转入细胞核并激活促炎基因的转录程序[47]。MAPK通路主要包括p38、细胞外信号调节激酶(extracellular signal-regulated kinase,ERK)、c-Jun氨基末端激酶(c-Jun amino-terminal kinase,JNK)3个亚型,该通路作为IKK的激活因子,可进一步放大炎症级联反应[48]。CA通过靶向IKK/IκBα磷酸化轴与MAPK磷酸化,在NF-κB激活早期实现阻断作用,从而有效阻止氧化应激与炎症反应间恶性循环的形成。在TNF-α诱导的3T3-L1脂肪细胞炎症模型中,CA(5~20 μmol/L)以剂量依赖性方式降低磷酸化IKKα/β(p-IKKα/β)和磷酸化IκBα(p-IκBα)表达,阻断核因子-κB p65亚基(NF-κB p65)核转位及NF-κB、激活蛋白1(activator protein 1,AP-1)的DNA结合活性,减少白细胞介素-6(IL-6)生成[49]。在砷诱导的肝毒性小鼠模型中,每天饲喂10和20 mg/kg BW CA可降低肝脏组织中p-IκBα水平,减少NF-κB激活诱导的MDA水平与ROS积累,同时下调磷酸化p38(p-p38)/磷酸化JNK(p-JNK)表达,阻断促凋亡信号,还可下调磷酸化NF-κB p65(p-NF-κB p65)水平,抑制内源和外源凋亡途径[50]。在高脂饮食诱导的小鼠脑损伤模型中,通过灌胃方式给予20 mg/kg BW CA可降低脑组织p-NF-κB p65和磷酸化IKKα(p-IKKα)水平,减少白细胞介素-1β(IL-1β)、IL-6和TNF-α mRNA表达水平,抑制半胱天冬蛋白酶-3(cysteinyl aspartate specific proteinase-3,Caspase-3)激活过程,保护神经元免受氧化损伤与炎性损伤[51]。在IL-1β诱导的人牙周韧带细胞(HPDLCs)模型中,CA(剂量范围1~10 μmol/L)可通过抑制JNK磷酸化、阻断NF-κB核转位,减少下游IL-6、TNF-α等炎症因子转录水平,同时抑制信号转导与转录激活因子3(signal transducer and activator of transcription 3,STAT3)通路的磷酸化,进而与JNK/NF-κB通路协同作用,降低细胞因子的表达[52]
综上所述,CA对NF-κB通路的调控表现为“抑制磷酸化-阻断核转位-降低转录活性”的多环节干预,而对MAPK通路的抑制作为上游协同机制,该机制可进一步减少促炎信号传递效率,从而增强细胞的抗氧化与抗炎能力。

2.4.3 通路间的交互协同网络

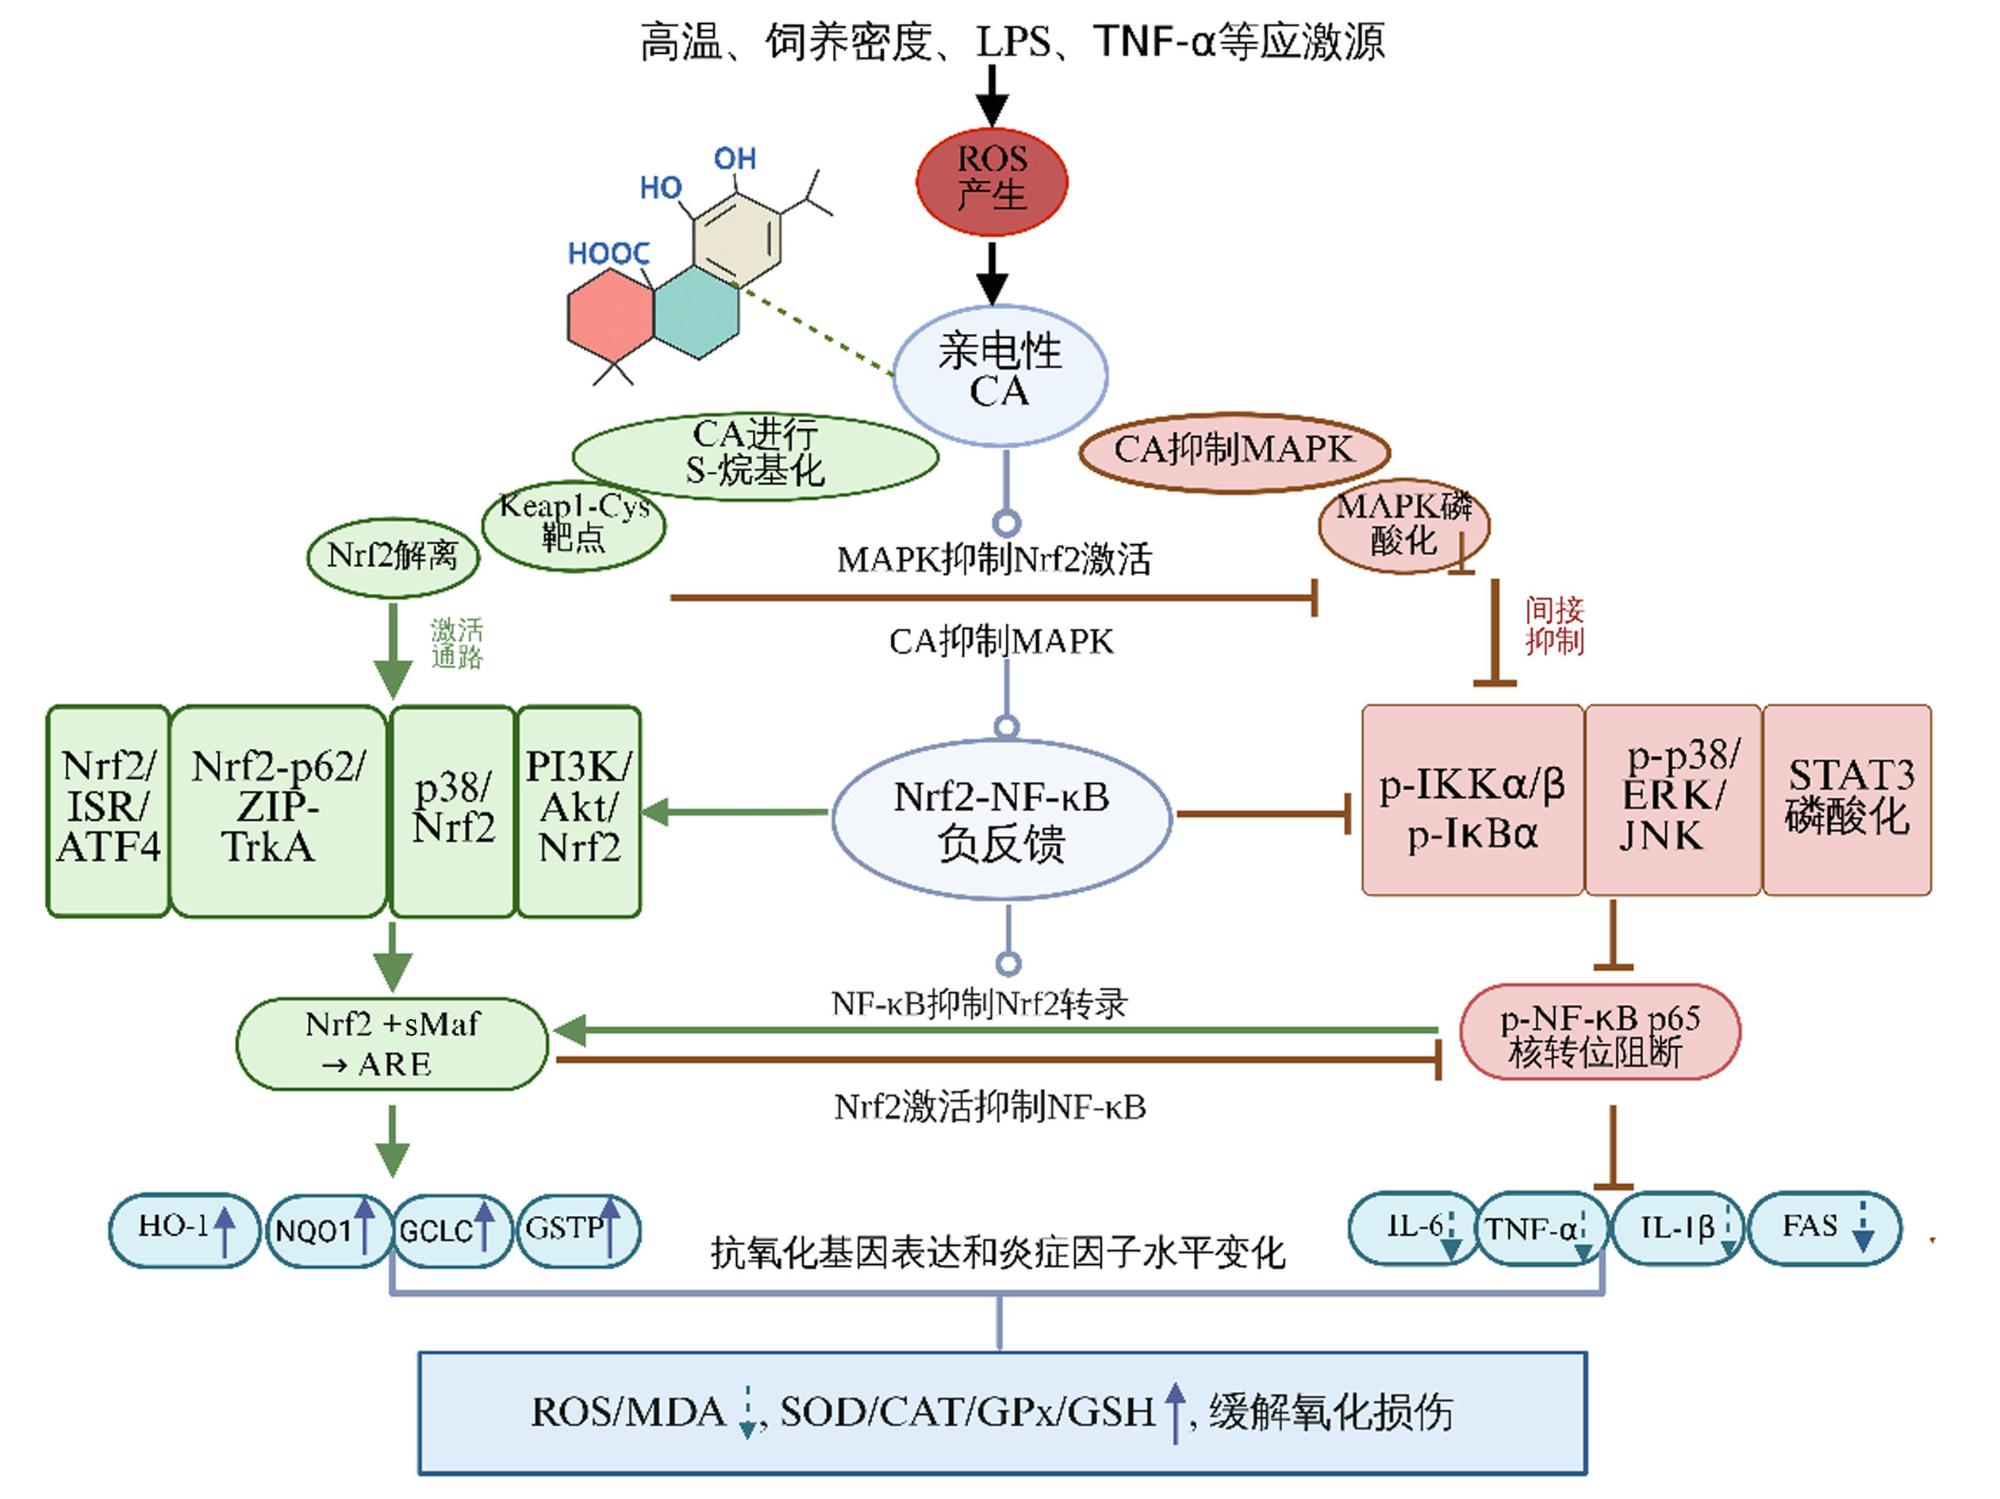
NF-κB通路的抑制与Nrf2通路的激活常协同作用,形成互补的抗氧化防御网络,而MAPK通路则作为桥梁参与这一交互过程(图2)。多项研究模型证实了这一协同作用:在糖尿病肾病小鼠模型中,每天摄入15和30 mg/kg BW CA可降低肾脏组织中p-NF-κB p65和p-IκBα水平,减少TNF-α和单核细胞趋化蛋白-1(MCP-1)的表达水平;同时上调细胞核内Nrf2、HO-1和NQO1水平,减少MDA水平和ROS积累,最终改善肾小球硬化和纤维化[53]。在葡聚糖硫酸钠(dextran sulfate sodium,DSS)诱导的急性结肠炎小鼠模型中,每天灌胃50和100 mg/kg BW CA通过抑制NF-κB介导的IL-1βTNF-α产生,同时激活Nrf2通路提升抗氧化酶活性,缓解肠黏膜氧化损伤[54]。在NF-κB受体激活剂配体(RANKL)诱导的小鼠破骨细胞中,CA(剂量范围1.25~5.00 μmol/L)通过激活Nrf2及其转录靶点消除RANKL诱导的ROS生成,同时抑制RANKL诱导的NF-κB和MAPK信号传导激活,发挥骨保护作用[55]。在6-羟基多巴胺(6-hydroxydopamine,6-OHDA)分别诱导的SH-SY5Y细胞和大鼠神经毒性模型中,分别通过体外培养体系给予SH-SY5Y细胞1 μmol/L CA,体内试验给予大鼠20 mg/kg BW CA证实,CA可显著降低JNK、P38磷酸化水平;当采用小干扰RNA(small interfering RNA,siRNA)敲低Nrf2可缓解CA对p38和JNK1/2磷酸化的逆转,表明Nrf2介导CA对MAPK信号通路的调控[56-57]
图2 鼠尾草酸参与氧化应激信号通路

LPS:脂多糖 lipopolysaccharide;TNF-α:肿瘤坏死因子-α tumor necrosis factor-α;ROS:活性氧 reactive oxygen species;CA:鼠尾草酸 carnosic acid;Keap1:Kelch样ECH相关蛋白1 Kelch-like ECH-associated protein 1;Cys:半胱氨酸 cysteine;Nrf2:核因子红细胞2相关因子2 nuclear factor erythroid 2-related factor 2;MAPK:丝裂原活化蛋白激酶 mitogen activated protein kinase;ISR:整合应激反应 integrated stress response;ATF4:激活转录因子4 activating transcription factor 4;p62/ZIP:自噬受体蛋白p62与ZRT/IRT样蛋白sequestosome 1 and ZRT-/IRT-like protein;TrkA:原肌球蛋白受体激酶A tropomyosin receptor kinase A;p38:p38丝裂原活化蛋白激酶 p38 mitogen-activated protein kinase;PI3K:激活磷脂酰肌醇3激酶 phosphatidylinositol 3-kinase;Akt:蛋白激酶B protein kinase B;NF-κB:核因子-κB nuclear factor-κB;p-IKKα/β:磷酸化核因子-κB抑制蛋白激酶α/β phosphorylated nuclear factor-κB inhibitor protein kinase α/β;p-IκBα:磷酸化核因子-κB抑制蛋白α phosphorylated inhibitor of nuclear factor κBα;p-p38:磷酸化p38 phosphorylated p38;ERK:细胞外信号调节激酶 extracellular signal-regulated kinase;JNK:c-Jun氨基末端激酶 c-Jun amino-terminal kinase;STAT3:信号转导与转录激活因子3 signal transducer and activator of transcription 3;sMaf:小Maf蛋白 small Maf proteins;ARE:抗氧化应答元件 antioxidant response element;p-NF-κB p65 磷酸化核因子-κB p65亚基 phosphorylated nuclear factor-κB p65 subunit;HO-1:血红素氧合酶-1 heme oxygenase-1;NQO1:依赖还原型辅酶Ⅰ(Ⅱ)醌氧化还原酶1 NAD(P)H:quinine oxidoreductase 1;GCLC:谷氨酸-半胱氨酸连接酶催化亚基 glutamate-cysteine ligase catalytic subunit;GSTP:谷胱甘肽S-转移酶π glutathione S-transferase pi;IL-6:白细胞介素-6 interleukin-6;IL-1β:白细胞介素-1β interleukin-1β;FAS:Fas细胞表面死亡受体 Fas cell surface death receptor;MDA:丙二醛 malondialdehyde;SOD:超氧化物歧化酶 superoxide dismutase;CAT:过氧化氢酶 catalase;GPx:谷胱甘肽过氧化物酶 glutathione peroxidase;GSH:还原性谷胱甘肽 glutathione。

表示氧化应激中机体产生ROS的过程 represents the process by which the body produces ROS during oxidative stress; 表示CA通过Nrf2-NF-κB-MAPK协同发挥作用的过程 represents the process by which CA exerts its effects through the Nrf2-NF-κB-MAPK synergy; 表示激活和促进作用 indicates activation and promotion effects; 表示负向调控和阻断作用 indicates negative regulation and blocking effects; 表示上调表达水平 indicates an upregulated expression level; 表示下调表达水平 indicates a downregulated expression level。

Fig.2 Carnosic acid regulates the oxidative stress signaling pathways

3 CA在畜禽生产中的应用

CA作为迷迭香提取物的核心活性成分,凭借其优异的抗氧化特性,在畜禽饲料添加剂领域展现出广阔的应用前景。现有研究已证实,CA可通过增强体内抗氧化酶活性、降低氧化应激标志物水平,同时调控Nrf2、NF-κB、MAPK等关键信号通路,在改善畜禽肠道健康、提升抗氧化能力、优化生长性能等方面发挥重要作用,且该效应已在肉鸡、猪、反刍动物等多种畜禽中得到验证。在肉鸡研究中,CA的抗氧化与抗炎作用呈现出稳定的通路依赖性。在LPS诱导的白羽肉鸡肝肠炎症模型和正常生理状态下的黄羽肉鸡中,CA可通过下调Keap1表达,上调Nrf2及其下游HO-1、GPx等靶基因的表达,显著提高SOD、GPx等抗氧化酶活性,同时降低MDA等氧化损伤标志物水平,其中40 mg/kg被证实为肉鸡饲粮最佳添加剂量[31]。此外,CA还可与天然活性成分表现出协同效应,将CA与桑叶黄酮复配后,150 mg/kg的复配剂量可同时调控Nrf2-Keap1抗氧化通路与JNK炎症通路,抑制肉鸡氧化应激引起的肠道炎症,实现生长性能提升[58]。在猪的研究中,CA的作用效果因生理阶段不同而呈现功能差异。体外试验表明,10 μmol/L CA是促进卵母细胞成熟和胚胎发育的有效剂量,其核心机制在于降低ROS水平,提升GSH水平,稳定线粒体膜电位并改善三磷酸腺苷(ATP)生成能力[59],这为优化母猪繁殖性能提供了新的干预靶点。而对于断奶仔猪,饲粮添加200 mg/kg富含CA(≥60%)的迷迭香提取物则更聚焦于缓解应激损伤,通过增强血清SOD、CAT、GPx活性,有效减轻断奶应激引发的氧化损伤与腹泻问题[60]。而在反刍动物的研究中,饲粮添加1 g/kg CA可通过调节羔羊机体脂肪酸代谢通路,显著提高IMF中n-3长链多不饱和脂肪酸和共轭亚油酸的沉积水平,同时降低心脏MDA水平,且与硒协同使用时效应更强[29]。在高产荷斯坦奶牛中,饲粮添加28 g/d迷迭香提取物(约含1.18 g/d CA),可从2个方面发挥作用:一方面调节瘤胃微生物结构组成,改善瘤胃发酵功能;另一方面调控机体氧化应激状态,最终实现产奶量提高与乳品质改善[61]。而在育肥期肉牛中,饲粮添加6 g/(d·头)CA则主要作用在于调节血脂代谢:提高高密度脂蛋白胆固醇(HDL-C)水平,并降低甘油三酯(TG)、总胆固醇、低密度脂蛋白胆固醇(LDL-C)水平,最终可提升背最长肌IMF水平[30],对优化肉牛育肥效果具有积极作用。

4 小结

CA因独特的化学结构与多靶点调控机制,在畜禽生产中展现出显著的抗氧化调节潜力。本文系统阐述了CA的来源、提取方法、化学特性,并深入解析其抗氧化作用机制,具体包括直接清除ROS、调控脂质合成与代谢、增强抗氧化酶系统功能,以及调控Nrf2、NF-κB和MAPK等氧化应激相关信号通路。这些机制通过协同作用,可有效缓解氧化应激诱导的畜禽组织炎性损伤,同时提升生长性能并改良肉品性状。尽管CA在体外试验和动物模型中已初步证实应用潜力,但仍有若干关键问题需深入探讨:1)CA生物利用度的有效提升策略;2)不同畜禽品种与不同生长阶段的适宜剂量优化及其长期安全性评估;3)CA与饲粮中其他成分的交互作用;4)多应激叠加环境下CA的调控机制。未来研究可围绕上述问题,结合绿色畜牧生产需求,开展CA与其他天然活性成分的复配研究,开发高效、安全的复合饲料添加剂;同时,通过大规模田间试验评估其经济效益,推动CA作为抗生素替代物在可持续畜禽生产中的广泛应用,为保障畜产品安全与促进畜牧业绿色发展提供技术支撑。
[1]
BAI D, GUO C, MA P, et al. Comprehensive analysis of the effects of high stocking density stress on broiler health[J]. Frontiers in Veterinary Science, 2026, 12:1741407.

DOI

[2]
PONNAMPALAM E N, KIANI A, SANTHIRAVEL S, et al. The importance of dietary antioxidants on oxidative stress,meat and milk production,and their preservative aspects in farm animals:antioxidant action,animal health,and product quality-invited review[J]. Animals, 2022, 12(23):3279.

DOI

[3]
PISOSCHI A M, POP A. The role of antioxidants in the chemistry of oxidative stress:a review[J]. European Journal of Medicinal Chemistry, 2015, 97:55-74.

DOI

[4]
NIETO G, ROS G, CASTILLO J. Antioxidant and antimicrobial properties of rosemary (Rosmarinus officinalis,L.):a review[J]. Medicines, 2018, 5(3):98.

DOI

[5]
LU Y R, YEAP FOO L. Antioxidant activities of polyphenols from sage (Salvia officinalis)[J]. Food Chemistry, 2001, 75(2):197-202.

DOI

[6]
ROMANO C S, ABADI K, REPETTO V, et al. Synergistic antioxidant and antibacterial activity of rosemary plus butylated derivatives[J]. Food Chemistry, 2009, 115(2):456-461.

DOI

[7]
DE OLIVEIRA M R, DE SOUZA I C C, FÜRSTENAU C R. Carnosic acid induces anti-inflammatory effects in paraquat-treated SH-SY5Y cells through a mechanism involving a crosstalk between the Nrf2/HO-1 axis and NF-κB[J]. Molecular Neurobiology, 2018, 55(1):890-897.

DOI PMID

[8]
LIU S R, LIANG W Q, WU J X, et al. Alleviation of lipopolysaccharide-induced heart inflammation in poultry treated with carnosic acid via the NF-κB and MAPK pathways[J]. Journal of Animal Science, 2025, 103:skae373.

[9]
WHITE A I, JENKINS G L. Salvia carnosa (dougl.).Ⅰ-a phytochemical study[J]. Journal of the American Pharmaceutical Association, 1942, 31(2):33-37.

[10]
WENKERT E, FUCHS A, MCCHESNEY J D. Chemical artifacts from the family labiatae[J]. The Journal of Organic Chemistry, 1965, 30(9):2931-2934.

DOI

[11]
MUNNÉ-BOSCH S, ALEGRE L. Subcellular compartmentation of the diterpene carnosic acid and its derivatives in the leaves of rosemary[J]. Plant Physiology, 2001, 125(2):1094-1102.

DOI

[12]
DURLING N E, CATCHPOLE O J, GREY J B, et al. Extraction of phenolics and essential oil from dried sage (Salvia officinalis) using ethanol-water mixtures[J]. Food Chemistry, 2007, 101(4):1417-1424.

DOI

[13]
YOUNES M, AGGETT P, AGUILAR F, et al. Refined exposure assessment of extracts of rosemary (E 392) from its use as food additive[J]. EFSA Journal, 2018, 16(8):e05373.

[14]
PAVIĆ V, JAKOVLJEVIĆ M, MOLNAR M, et al. Extraction of carnosic acid and carnosol from sage (Salvia officinalis L.) leaves by supercritical fluid extraction and their antioxidant and antibacterial activity[J]. Plants, 2019, 8(1):16.

DOI

[15]
RICHHEIMER S L, BERNART M W, KING G A, et al. Antioxidant activity of lipid-soluble phenolic diterpenes from rosemary[J]. Journal of the American Oil Chemists’ Society, 1996, 73:507-514.

DOI

[16]
WEI J, LIANG Q, GUO Y X, et al. A deep insight in the antioxidant property of carnosic acid:from computational study to experimental analysis[J]. Foods, 2021, 10(10):2279.

DOI

[17]
TRIKKA F A, NIKOLAIDIS A, IGNEA C, et al. Combined metabolome and transcriptome profiling provides new insights into diterpene biosynthesis in S.pomifera glandular trichomes[J]. BMC Genomics, 2015, 16(1):935.

DOI

[18]
PSARROU I, OREOPOULOU A, TSIMOGIANNIS D, et al. Extraction kinetics of phenolic antioxidants from the hydro distillation residues of rosemary and effect of pretreatment and extraction parameters[J]. Molecules, 2020, 25(19):4520.

DOI

[19]
OREOPOULOU A, CHOULITOUDI E, TSIMOGIANNIS D, et al. Six common herbs with distinctive bioactive,antioxidant components.A review of their separation techniques[J]. Molecules, 2021, 26(10):2920.

DOI

[20]
YOSHIKAWA T, YOU F. Oxidative stress and bio-regulation[J]. International Journal of Molecular Sciences, 2024, 25(6):3360.

DOI

[21]
MASUDA T, INABA Y, TAKEDA Y. Antioxidant mechanism of carnosic acid:structural identification of two oxidation products[J]. Journal of Agricultural and Food Chemistry, 2001, 49(11):5560-5565.

DOI

[22]
夏田娟, 毕良武, 赵振东, 等. 鼠尾草酸的抗氧化活性及抑菌活性研究[J]. 天然产物研究与开发, 2015, 27(1):35-40.

XIA T J, BI L W, ZHAO Z D, et al. Study on antioxidant and antibacterial activities of carnosic acid[J]. Natural Product Research and Development, 2015, 27(1):35-40. (in Chinese)

DOI

[23]
PARK M, HAN J, LEE C S, et al. Carnosic acid,a phenolic diterpene from rosemary,prevents UV-induced expression of matrix metalloproteinases in human skin fibroblasts and keratinocytes[J]. Experimental Dermatology, 2013, 22(5):336-341.

DOI

[24]
ARUOMA O I, HALLIWELL B, AESCHBACH R, et al. Antioxidant and pro-oxidant properties of active rosemary constituents:carnosol and carnosic acid[J]. Xenobiotica, 1992, 22(2):257-268.

DOI

[25]
LOUSSOUARN M, KRIEGER-LISZKAY A, SVILAR L, et al. Carnosic acid and carnosol,two major antioxidants of rosemary,act through different mechanisms[J]. Plant Physiology, 2017, 175(3):1381-1394.

DOI

[26]
BACOU E, WALK C, RIDER S, et al. Dietary oxidative distress:a review of nutritional challenges as models for poultry,swine and fish[J]. Antioxidants, 2021, 10(4):525.

DOI

[27]
PARK M Y, SUNG M K. Carnosic acid inhibits lipid accumulation in 3T3-L1 adipocytes through attenuation of fatty acid desaturation[J]. Journal of Cancer Prevention, 2015, 20(1):41-49.

DOI

[28]
沈梦珠, 陈毓濡, 张静, 等. 鼠尾草酸对高脂饮食小鼠脂质合成与代谢相关基因的调节作用[J]. 现代食品科技, 2025, 41(8):51-60.

SHEN M Z, CHEN Y R, ZHANG J, et al. Regulatory effect of carnosic acid on genes related to lipid synthesis and metabolism in mice on high-fat diet[J]. Modern Food Science and Technology, 2025, 41(8):51-60. (in Chinese)

[29]
BIAŁEK M, CZAUDERNA M, ZAWORSKI K, et al. Dietary carnosic acid and seleno-compounds change concentrations of fatty acids,cholesterol,tocopherols and malondialdehyde in fat and heart of lambs[J]. Animal Nutrition, 2021, 7(3):812-822.

DOI

[30]
孙强. 鼠尾草酸通过铜死亡-线粒体调控机制增加牛肌间脂肪的应用[D]. 硕士学位论文. 长春: 吉林大学, 2025.

SUN Q. Carnosic acid increases the application of bovine intermuscular fat through cuproptosis-mitochondrial regulation mechanism[D]. Master’s Thesis. Changchun: Jilin University, 2025. (in Chinese)

[31]
ZHANG S, WANG Q, DONG J J, et al. Dietary carnosic acid supplementation improves the growth performance,the antioxidant status,and diversity of intestinal microbiota in broilers[J]. Antioxidants, 2025, 14(8):1026.

DOI

[32]
JOMOVA K, RAPTOVA R, ALOMAR S Y, et al. Reactive oxygen species,toxicity,oxidative stress,and antioxidants:chronic diseases and aging[J]. Archives of Toxicology, 2023, 97(10):2499-2574.

DOI

[33]
SIES H. Oxidative stress:oxidants and antioxidants[J]. Experimental Physiology, 1997, 82(2):291-295.

DOI

[34]
XIANG Q S, LIU Z G, WANG Y T, et al. Carnosic acid attenuates lipopolysaccharide-induced liver injury in rats via fortifying cellular antioxidant defense system[J]. Food and Chemical Toxicology, 2013, 53:1-9.

DOI PMID

[35]
SAHU B D, PUTCHA U K, KUNCHA M, et al. Carnosic acid promotes myocardial antioxidant response and prevents isoproterenol-induced myocardial oxidative stress and apoptosis in mice[J]. Molecular and Cellular Biochemistry, 2014, 394(1/2):163-176.

DOI

[36]
DONMEZ D B, KACAR S, BAGCI R, et al. Protective effect of carnosic acid on acrylamide-induced liver toxicity in rats:mechanistic approach over Nrf2-Keap1 pathway[J]. Journal of Biochemical and Molecular Toxicology, 2020, 34(9):e22524.

DOI

[37]
ALBADRANI G M, ALTYAR A E, KENSARA O A, et al. Antioxidant,anti-inflammatory,and anti-DNA damage effects of carnosic acid against aflatoxin B1-induced hepatic,renal,and cardiac toxicities in rats[J]. Toxicology Research, 2024, 13(3):tfae083.

[38]
WAN S S, LI X Y, LIU S R, et al. The function of carnosic acid in lipopolysaccharides-induced hepatic and intestinal inflammation in poultry[J]. Poultry Science, 2024, 103(3):103415.

DOI

[39]
YAMAMOTO M, KENSLER T W, MOTOHASHI H. The KEAP1-NRF2 system:a thiol-based sensor-effector apparatus for maintaining redox homeostasis[J]. Physiological Reviews, 2018, 98(3):1169-1203.

DOI

[40]
SATOH T, KOSAKA K, ITOH K, et al. Carnosic acid,a catechol-type electrophilic compound,protects neurons both in vitro and in vivo through activation of the Keap1/Nrf2 pathway via S-alkylation of targeted cysteines on Keap1[J]. Journal of Neurochemistry, 2008, 104(4):1116-1131.

DOI

[41]
DE OLIVEIRA M R, FERREIRA G C, SCHUCK P F. Protective effect of carnosic acid against paraquat-induced redox impairment and mitochondrial dysfunction in SH-SY5Y cells:role for PI3K/Akt/Nrf2 pathway[J]. Toxicology in Vitro, 2016, 32:41-54.

DOI

[42]
LIN C Y, WU C R, CHANG S W, et al. Induction of the pi class of glutathione S-transferase by carnosic acid in rat Clone 9 cells via the p38/Nrf2 pathway[J]. Food & Function, 2015, 6(6):1936-1943.

[43]
TSAI C W, LIN C Y, WANG Y J. Carnosic acid induces the NAD(P)H:quinone oxidoreductase 1 expression in rat Clone 9 cells through the p38/nuclear factor erythroid-2 related factor 2 pathway[J]. The Journal of Nutrition, 2011, 141(12):2119-2125.

DOI

[44]
AMERI K, HARRIS A L. Activating transcription factor 4[J]. International Journal of Biochemistry & Cell Biology, 2008, 40(1):14-21.

DOI

[45]
MIMURA J, INOSE-MARUYAMA A, TANIUCHI S, et al. Concomitant Nrf2- and ATF4-activation by carnosic acid cooperatively induces expression of cytoprotective genes[J]. International Journal of Molecular Sciences, 2019, 20(7):1706.

DOI

[46]
KOSAKA K, MIMURA J, ITOH K, et al. Role of Nrf2 and p62/ZIP in the neurite outgrowth by carnosic acid in PC12h cells[J]. Journal of Biochemistry, 2010, 147(1):73-81.

DOI PMID

[47]
HAYDEN M S, GHOSH S. NF-κB,the first quarter-century:remarkable progress and outstanding questions[J]. Genes & Development, 2012, 26(3):203-234.

DOI

[48]
KYRIAKIS J M, AVRUCH J. Mammalian MAPK signal transduction pathways activated by stress and inflammation:a 10-year update[J]. Physiological Reviews, 2012, 92(2):689-737.

DOI

[49]
TSAI C W, LIU K L, LIN Y R, et al. The mechanisms of carnosic acid attenuates tumor necrosis factor-α-mediated inflammation and insulin resistance in 3T3-L1 adipocytes[J]. Molecular Nutrition & Food Research, 2014, 58(4):654-664.

[50]
DAS S, JOARDAR S, MANNA P, et al. Carnosic acid,a natural diterpene,attenuates arsenic-induced hepatotoxicity via reducing oxidative stress,MAPK activation,and apoptotic cell death pathway[J]. Oxidative Medicine and Cellular Longevity, 2018, 2018(1):1421438.

DOI

[51]
LIU Y, ZHANG Y, HU M, et al. Carnosic acid alleviates brain injury through NF-κB-regulated inflammation and caspase-3-associated apoptosis in high fat-induced mouse models[J]. Molecular Medicine Reports, 2019, 20(1):495-504.

[52]
HOSOKAWA I, HOSOKAWA Y, OZAKI K, et al. Carnosic acid inhibits inflammatory cytokines production in human periodontal ligament cells[J]. Immunopharmacology and Immunotoxicology, 2020, 42(4):373-378.

DOI

[53]
XIE Z S, ZHONG L J, WU Y R, et al. Carnosic acid improves diabetic nephropathy by activating Nrf2/ARE and inhibition of NF-κB pathway[J]. Phytomedicine, 2018, 47:161-173.

DOI PMID

[54]
YANG N, XIA Z L, SHAO N Y, et al. Carnosic acid prevents dextran sulfate sodium-induced acute colitis associated with the regulation of the Keap1/Nrf2 pathway[J]. Scientific Reports, 2017, 7(1):11036.

DOI PMID

[55]
THUMMURI D, NAIDU V G M, CHAUDHARI P. Carnosic acid attenuates RANKL-induced oxidative stress and osteoclastogenesis via induction of Nrf2 and suppression of NF-κB and MAPK signalling[J]. Journal of Molecular Medicine, 2017, 95(10):1065-1076.

DOI PMID

[56]
WU C R, TSAI C W, CHANG S W, et al. Carnosic acid protects against 6-hydroxydopamine-induced neurotoxicity in in vivo and in vitro model of Parkinson’s disease:involvement of antioxidative enzymes induction[J]. Chemico-Biological Interactions, 2015, 225:40-46.

DOI

[57]
CHEN J H, OU H P, LIN C Y, et al. Carnosic acid prevents 6-hydroxydopamine-induced cell death in SH-SY5Y cells via mediation of glutathione synthesis[J]. Chemical Research in Toxicology, 2012, 25(9):1893-1901.

DOI

[58]
LIU C M, HUANG H, CHEN Y L, et al. Dietary supplementation with mulberry leaf flavonoids and carnosic acid complex enhances the growth performance and antioxidant capacity via regulating the p38 MAPK/Nrf2 pathway[J]. Frontiers in Nutrition, 2024, 11:1428577.

DOI

[59]
彭艳侠. 鼠尾草酸对猪卵母细胞体外成熟及孤雌激活胚胎发育的影响[D]. 硕士学位论文. 长春: 吉林大学, 2022.

PENG Y X. Effects of carnosic acid on porcine oocyte in vitro maturation and parthenogenetically activated embryo development[D]. Master’s Thesis. Changchun: Jilin University, 2022. (in Chinese)

[60]
YANG M, YIN Y X, WANG F, et al. Effects of dietary rosemary extract supplementation on growth performance,nutrient digestibility,antioxidant capacity,intestinal morphology,and microbiota of weaning pigs[J]. Journal of Animal Science, 2021, 99(9):skab237.

[61]
KONG F L, WANG S, DAI D W, et al. Preliminary investigation of the effects of rosemary extract supplementation on milk production and rumen fermentation in high-producing dairy cows[J]. Antioxidants, 2022, 11(9):1715.

DOI

文章导航

/