研究论文

杂粮杂粕和低蛋白质杂粮杂粕饲粮对后备公猪生长性能、营养物质表观消化率和睾丸发育的影响

  • 王兴琦 ,
  • 方正锋 ,
  • 车炼强 ,
  • 冯斌 ,
  • 徐盛玉 ,
  • 卓勇 ,
  • 李健 ,
  • 江雪梅 ,
  • 花伦 ,
  • 刘光芒 ,
  • 吴德 ,
  • 林燕 , *
展开
  • 四川农业大学动物营养研究所, 成都 611130
*林 燕,教授,博士生导师,E-mail:

王兴琦(2000—),男,河南焦作人,硕士研究生,从事公猪营养研究。E-mail:

Office editor: 陈燕

收稿日期: 2025-10-22

  网络出版日期: 2026-05-14

基金资助

四川省十四五科技重大专项(2021ZDZX0009)

十四五国家重点研发计划项目(2023YFD1300804)

国家自然基金面上项目(32272911)

国家现代农业产业科技技术体系四川省生猪创新团队(SCCXTD-2024-8)

Effects of Miscellaneous Grain and Meal and Low-Protein Miscellaneous Grain and Meal Diets on Growth Performance, Nutrient Apparent Digestibility and Testicular Development of Replacement Boars

  • WANG Xingqi ,
  • FANG Zhengfeng ,
  • CHE Lianqiang ,
  • FENG Bin ,
  • XU Shengyu ,
  • ZHUO Yong ,
  • LI Jian ,
  • JIANG Xuemei ,
  • HUA Lun ,
  • LIU Guangmang ,
  • WU De ,
  • LIN Yan , *
Expand
  • Institute of Animal Nutrition, Sichuan Agricultural University, Chengdu 611130, China
*professor, E-mail:

Received date: 2025-10-22

  Online published: 2026-05-14

摘要

本试验旨在研究使用杂粮杂粕(小麦、大麦、高粱、糙米、棉籽粕、菜籽粕、亚麻籽饼和玉米干酒糟及其可溶物)和低蛋白质杂粮杂粕饲粮替代玉米豆粕型饲粮对后备公猪生长性能、营养物质表观消化率和睾丸发育的影响。选取27头65日龄、初始体重为(17.76±1.28) kg的三元杂交公猪,随机分为3组,每组9个重复。对照组(CON组)饲喂玉米豆粕型基础饲粮,杂粮杂粕组(UD组)饲喂与基础饲粮等粗蛋白质水平的杂粮杂粕饲粮,低蛋白质杂粮杂粕组(LUD组)饲喂粗蛋白质水平降低2个百分点的杂粮杂粕饲粮。试验期55 d,包括前期(第1~12天)、中期(第13~34天)和后期(第35~55天)。结果表明:1)前期UD组后备公猪料重比(F/G)显著低于CON组和LUD组(P<0.05);而中期、后期以及全期,UD组与CON组和LUD组后备公猪的平均日增重(ADG)、平均日采食量(ADFI)及F/G均无显著差异(P>0.05)。2)与CON组相比,中期UD组后备公猪饲粮粗蛋白质、干物质及总能的表观消化率极显著或显著降低(P<0.01或P<0.05),但粗脂肪的表观消化率显著升高(P<0.05);后期UD组只有总能的表观消化率显著降低(P<0.05)。与UD组相比,中期LUD组各营养物质的表观消化率均显著或极显著下降(P<0.05或P<0.01);后期LUD组除了粗脂肪和总能的表观消化率外,其他营养物质的表观消化率均显著或极显著下降(P<0.05或P<0.01)。3)与UD组相比,LUD组后备公猪血清尿素氮(UN)含量显著降低(P<0.05)。4)UD组与CON组和LUD组后备公猪睾丸体积、重量和睾丸指数以及睾丸每管生精小管中精原细胞和支持细胞数量均没有显著差异(P>0.05)。5)UD组后备公猪血清黄体生成素(LH)含量显著高于CON组(P<0.05),LUD组睾丸组织促卵泡素(FSH)含量显著低于UD组(P<0.05)。6)LUD组睾丸组织中与睾酮合成相关基因细胞色素P450 11A1(P450scc)的相对表达量显著高于UD组(P<0.05)。综上所述,本试验条件下,饲喂杂粮杂粕和低蛋白质杂粮杂粕饲粮的后备公猪生长性能和睾丸发育不受影响,而干物质、粗蛋白质和总能的表观消化率出现下降,粗脂肪表观消化率有所提高;同时,饲喂杂粮杂粕饲粮的后备公猪血清LH含量下降;饲喂低蛋白质杂粮杂粕饲粮的后备公猪睾丸FSH含量下降,睾酮合成相关基因表达有上调趋势。

本文引用格式

王兴琦 , 方正锋 , 车炼强 , 冯斌 , 徐盛玉 , 卓勇 , 李健 , 江雪梅 , 花伦 , 刘光芒 , 吴德 , 林燕 . 杂粮杂粕和低蛋白质杂粮杂粕饲粮对后备公猪生长性能、营养物质表观消化率和睾丸发育的影响[J]. 动物营养学报, 2026 , 38(5) : 3333 -3348 . DOI: 10.12418/CJAN2026.267

Abstract

This experiment was conducted to investigate the effects of replacing corn-soybean meal diet with miscellaneous grain and meal diets (including wheat, barley, sorghum, brown rice, cottonseed meal, rapeseed meal, linseed cake, and corn DDGS) with normal or low-protein on growth performance, nutrient apparent digestibility, and testicular development of replacement boars. Twenty-seven 65-day-old three-way crossbred boars with an initial body weight of (17.76±1.28) kg were randomly assigned to 3 groups with 9 replicates per group. Boars in the control group (CON group) were fed a basal corn-soybean meal diet, those in the miscellaneous grain and meal group (UD group) were fed a miscellaneous grain and meal diet with the same crude protein level as the CON group, and those in the low-protein miscellaneous grain and meal group (LUD group) were fed a miscellaneous grain and meal diet with crude protein level reduced by 2 percentage points. The experiment lasted for 55 days, including an early phase (days 1 to 12), a middle phase (days 13 to 34), and a late phase (days 35 to 55). The results showed as follows: 1) during the early phase, the feed-to-gain ratio (F/G) of replacement boars in the UD group was significantly lower than that in the CON and LUD groups (P<0.05). However, during the middle, late, and overall phases, no significant differences were observed in average daily gain (ADG), average daily feed intake (ADFI), and F/G among the UD, CON, and LUD groups (P>0.05). 2) Compared with the CON group, during the middle phase, the UD group had significantly or extremely significantly lower apparent digestibility of crude protein, dry matter, and gross energy (P<0.05 or P<0.01), but significantly higher apparent digestibility of ether extract (P<0.05). During the late phase, only the apparent digestibility of gross energy in the UD group was significantly lower than that in the CON group (P<0.05). Compared with the UD group, during the middle phase, all nutrient apparent digestibility in the LUD group were significantly or extremely significantly decreased (P<0.05 or P<0.01); during the late phase, except for the apparent digestibility of ether extract and gross energy, all other nutrient apparent digestibility in the LUD group were significantly or extremely significantly decreased (P<0.05 or P<0.01). 3) Compared with the UD group, the serum urea nitrogen (UN) content of replacement boars in the LUD group was significantly decreased (P<0.05). 4) No significant differences were found in testicular volume, weight, testicular index, or the numbers of spermatogonia and Sertoli cells per seminiferous tubule among the UD, CON, and LUD groups (P>0.05). 5) The serum luteinizing hormone (LH) content of replacement boars in the UD group was significantly higher than that in the CON group (P<0.05), while the testicular tissue follicle-stimulating hormone (FSH) content in the LUD group was significantly lower than that in the UD group (P<0.05). 6) The relative expression level of the testosterone synthesis-related gene cytochrome P450 11A1 (P450scc) in testicular tissue of the LUD group was significantly higher than that of the UD group (P<0.05). In summary, under the conditions of this experiment, feeding miscellaneous grain and meal diets with normal or low-protein does not affect the growth performance and testicular development of replacement boars; although the apparent digestibility of dry matter, crude protein, and gross energy decreases, while the apparent digestibility of ether extract increases. Additionally, feeding the miscellaneous grain and meal diet decreases serum LH content, while feeding the low-protein miscellaneous grain and meal diet decreases testicular FSH content and tends to upregulate the expression of genes related to testosterone synthesis.

当前我国畜禽养殖业主要采用以玉米豆粕型为主导的饲粮配方体系,相关数据显示该体系消耗的原粮约占全国粮食总产量的40%[1],此外还需进口大量玉米和豆粕作为补充性饲料原料。然而,在玉米与豆粕原料供应波动加剧、国家粮食安全保障需求提升以及非常规饲料资源开发应用等多重因素影响下,传统玉米豆粕型饲粮逐渐显现出明显的应用局限性。在此背景下,通过采用小麦、糙米、米糠粕、菜籽粕等杂粮杂粕对玉米和豆粕进行部分或完全替代的减量替代技术,已成为优化现有饲粮配方结构、降低玉米豆粕依赖度的有效解决方案。
猪饲粮的营养构成主要包括能量物质、蛋白质、膳食纤维、维生素及矿物元素等。作为动物机体生命活动、生长发育及生产性能的能量基础,饲粮能量主要由碳水化合物和脂类物质供给,其中玉米、小麦和高粱等谷物是常见的能量原料来源。当玉米市场价格波动时,小麦因其营养特性常被作为替代玉米的首选能量饲料。然而,小麦中存在的β-葡聚糖、阿拉伯木聚糖、纤维素以及植酸等抗营养因子,会显著降低饲料中营养物质和能量的利用率[2-3]。大麦具有与玉米相近的营养价值且富含更高水平的蛋白质与氨基酸,但其同样含有木聚糖、β-葡聚糖和纤维素等与小麦类似的抗营养因子。高粱营养成分与玉米接近甚至略优于玉米,其中性洗涤纤维、干物质、钙和磷等含量与玉米接近,粗蛋白质和淀粉的含量却高于玉米[4],而单宁、植酸等抗营养因子是限制高粱在饲料中添加的重要因素。作为稻谷脱壳后的初级加工产物,糙米与玉米的营养价值基本相当,然而由于质地坚硬导致的适口性欠佳及消化吸收率偏低等固有缺陷,使其在畜牧养殖业的饲料配方应用中受到明显制约[5]
蛋白质是动物组织构成及酶与激素合成的重要组成部分,对猪只的生长发育和健康具有至关重要的作用[6]。从营养学角度分析,膳食蛋白质可划分为植物源性和动物源性两大类别,其中大豆粕、菜籽粕及棉籽粕构成了主要的植物性蛋白质原料。菜籽粕不仅具有与豆粕相近的蛋白质含量,其富含具有重要生理功能的含硫氨基酸[7],在蛋白质饲料领域存在着巨大的潜力,但因存在硫代葡萄糖苷、单宁和植酸等抗营养因子和低赖氨酸的问题,限制了其在动物生产中的应用[8]。棉籽粕是一种优质蛋白质饲料,粗蛋白含量高达40%以上,其精氨酸(Arg)含量丰富,但蛋氨酸(Met)和赖氨酸(Lys)含量较低[9]。棉籽粕中对动物影响最大的抗营养因子是棉酚,研究发现,棉酚对雄性精子生成的影响与时间和剂量有关[10]。酒糟是乙醇生产的谷物副产物,中国每年生产约1亿t酒糟[11],其中干白酒糟产量可达800万t左右[12]。酒糟的粗蛋白质、粗脂肪以及钙磷等矿物元素含量高,将玉米经发酵蒸馏形成玉米干酒糟及其可溶物(DDGS)的粗蛋白质、粗纤维和氨基酸含量差异较大,经微生物发酵作用能提高其营养价值[13]。亚麻是我国重要的油料作物之一,亚麻籽富含木酚素和α-亚麻酸[14]。亚麻饼粕作为植物性蛋白质源具有显著的营养特性,其粗蛋白质含量可达30%~35%,呈现出较高的色氨酸(Trp)和Arg含量特征,然而在Met和Lys等必需氨基酸组成方面则相对不足。
在探索非常规饲料原料替代传统玉米豆粕型饲粮的同时,降低饲粮蛋白质水平的技术研究具有同等重要的科学价值。通过将饲粮粗蛋白质含量降低2~4个百分点的技术方案,可在确保畜禽生产性能不受显著影响的前提下,有效减少豆粕在饲粮配方中的使用比例[15],同时通过添加适宜种类和数量合成氨基酸来满足动物对氨基酸的需求,从而在不影响动物的生长性能和产品品质情况下,减少蛋白质饲料消耗,而且大量减少了养殖过程中的甲烷、硫化氢、氨气等有害气体的排放量[16]
然而,现有研究多针对单一非常规饲料原料开展替代试验,对于多种非常规饲料原料混合应用的研究仍显不足,且由于抗营养因子的存在,杂粮杂粕在后备公猪上的研究与应用仍相对缺乏。因此,本试验旨在利用杂粮杂粕等非常规饲料原料来替代玉米和豆粕,从而减少饲粮中玉米和豆粕的用量,探究杂粮杂粕饲粮以及在杂粮杂粕基础上降低粗蛋白质水平对种公猪生长性能、营养物质表观消化率和睾丸发育的影响。

1 材料与方法

1.1 试验材料

试验所用杂粮杂粕的饲料原料包括小麦、大麦、糙米、高粱、棉籽粕、菜籽粕、亚麻籽饼和玉米DDGS,其中,小麦、糙米和高粱购于眉山市惠康农业发展有限公司,大麦购于凤台县品硕商贸有限公司,棉籽粕和玉米DDGS购于四川特驱农牧科技集团有限公司,菜籽粕购于成都市新兴粮油有限公司,亚麻籽饼购于宁夏君星坊食品科技有限公司。

1.2 试验设计

本试验中的动物试验方案经过四川农业大学动物管理与福利委员会批准,批准号:SICAU-2024-116。
选取27头65日龄、初始体重为(17.76±1.28) kg的三元杂交公猪,随机分为3组,每组9个重复,每个重复1头猪。对照组(CON组)饲喂玉米豆粕型基础饲粮,杂粮杂粕组(UD组)饲喂与基础饲粮等粗蛋白质水平的杂粮杂粕饲粮,低蛋白质杂粮杂粕组(LUD组)饲喂粗蛋白质水平降低2个百分点的杂粮杂粕饲粮。试验期55 d,包括前期(第1~12天)、中期(第13~34天)和后期(第35~55天)。基础饲粮参照NRC(2012)猪营养需要标准配制;杂粮杂粕饲粮在维持粗蛋白质水平不变的情况下,用小麦、大麦、高粱和糙米部分替代玉米以及菜籽粕、棉籽粕、亚麻籽饼和玉米DDGS部分替代豆粕的方式配制;低蛋白质杂粮杂粕饲粮在粗蛋白质水平降低2个百分点的情况下,用小麦、大麦、高粱和糙米部分替代玉米以及菜籽粕、棉籽粕、亚麻籽饼和玉米DDGS部分替代豆粕的方式配制。试验饲粮组成及营养水平见表1
表1 试验饲粮组成及营养水平(风干基础)

Table 1 Composition and nutrient levels of experimental diets (air-dry basis)%

项目
Items
第1~12天 Days 1 to 12 第13~55天 Days 13 to 55
CON组
CON group
UD组
UD group
LUD组
LUD group
CON组
CON group
UD组
UD group
LUD组
LUD group
原料 Ingredients
玉米 Cron 65.12 44.66 50.15 70.59 30.85 37.36
小麦 Wheat grain 6.00 6.00 12.00 12.00
大麦 Barley 5.20 5.20 6.00 6.00
高粱 Sorghum grain 5.00 5.00 10.00 10.00
糙米 Brain rice 5.50 5.50 12.50 12.50
豆粕 Soybean meal 26.00 20.06 13.57 20.53 11.20 4.82
菜籽粕 Rapeseed meal 1.50 1.50 2.50 2.50
棉籽粕 Cottonseed meal 1.50 1.50 1.50 1.50
亚麻籽粕 Flaxseed meal 1.50 1.50 2.50 2.50
玉米干酒糟及其可溶物 Corn DDGS 1.50 1.50 3.00 3.00
小麦麸 Wheat bran 2.00 1.00 2.00
大豆油 Soybean oil 0.60 1.20 0.80 0.95 1.90 1.35
鱼粉 Fish meal 1.50 1.50 1.50 1.50 1.50 1.50
蔗糖 Sucrose 1.50 1.50 1.50 1.50 1.50 1.50
氯化钠 NaCl 0.20 0.20 0.20 0.20 0.20 0.20
磷酸氢钙 CaHPO4 1.00 0.95 1.00 0.90 0.80 0.85
碳酸钙 CaCO3 0.87 0.87 0.90 0.90 0.90 0.94
L-赖氨酸盐酸盐 L-Lys·HCl 0.44 0.56 0.75 0.30 0.47 0.67
DL-蛋氨酸 DL-Met 0.08 0.09 0.11 0.02 0.03 0.06
L-苏氨酸 L-Thr 0.15 0.17 0.26 0.08 0.12 0.20
L-色氨酸 L-Trp 0.04 0.04 0.06 0.03 0.03 0.05
氯化胆碱 Choline chloride 0.15 0.15 0.15 0.15 0.15 0.15
预混料 Premix1) 0.35 0.35 0.35 0.35 0.35 0.35
合计 Total 100.00 100.00 100.00 100.00 100.00 100.00
营养水平 Nutrient levels2)
总能 GE/(MJ/kg) 15.69 15.77 15.69 15.86 15.98 16.23
代谢能 ME/(MJ/kg) 13.09 12.97 12.89 13.30 13.01 12.93
净能 NE/(MJ/kg) 10.08 10.08 10.08 10.33 10.33 10.33
粗蛋白质 CP 18.94 18.88 16.58 15.75 16.28 14.15
钙 Ca 0.70 0.70 0.70 0.67 0.67 0.67
有效磷 AP 0.33 0.33 0.33 0.31 0.31 0.31
粗纤维 CF 2.13 2.17 2.95 2.25 2.66 2.30
可溶性纤维 SDF 1.66 2.01 1.98 1.61 2.06 2.01
不可溶性纤维 IDF 11.65 12.12 12.00 11.33 12.43 12.07
总膳食纤维 TDF 13.31 14.14 13.99 12.85 14.29 14.18
标准回肠可消化赖氨酸
SID Lys
1.23 1.23 1.23 0.98 0.98 0.98
标准回肠可消化蛋氨酸
SID Met
0.36 0.36 0.36 0.28 0.28 0.28
标准回肠可消化苏氨酸
SID Thr
0.73 0.73 0.73 0.59 0.59 0.59
标准回肠可消化色氨酸
SID Trp
0.20 0.20 0.20 0.17 0.17 0.17

1)预混料为每千克饲粮提供 The premix provided the following per kg of diets:VA 12 000 U,VB1 2 mg,VB2 7.2 mg,VB5 25 mg,VB12 0.02 mg,VD3 2 300 U,VE 100 U,VK3 4.8 mg,生物素 biotin 0.48 mg,叶酸 folic acid 4.0 mg,烟酸 nicotinic acid 40 mg,Cu (as copper sulfate) 5 mg,Fe (as ferrous sulfate) 100 mg,Mn (as manganese sulfate) 3 mg,Zn (as zinc sulfate) 80 mg,I (as potassium iodide) 0.14 mg,Se (as sodium selenite) 0.25 mg。

2)总能、粗蛋白质和粗纤维为实测值,其余为计算值,均根据《中国饲料成分及营养价值表(2022年第33版)》计算。GE, CP and CF were measured values, while the others were calculated values, all calculated with reference to the Tables of Feed Composition and Nutritive Values in China (33rd edition, 2022).

1.3 样品采集

在试验第33~34天和第54~55天收集新鲜粪便约300 g,置于65 ℃的烘箱中干燥72 h,然后回潮1 d达恒重状态。干燥处理后的粪便样品经粉碎后过40目筛,分装保存,待测。在试验第55天,空腹12 h后,采集前腔静脉的血液,将血样在4 ℃条件下以1 301×g离心力离心15 min以获得血清,置于-20 ℃保存,待测。在试验第56天,根据体重经耳缘静脉对猪只注射1.5~2.0 mL舒泰50进行麻醉,经手术取出睾丸及附睾并称重,记录其双侧重量与长短径。采用冰袋预冷处理睾丸样品,并迅速完成组织样本的分割取样操作:首先从左侧睾丸中部精确切取1 cm3立方体组织样本,经0.9%生理盐水充分冲洗并用无菌滤纸吸除表面液体后,立即转移至10%中性福尔马林固定液中进行组织固定;同时从右侧睾丸中间区域采集等量样本,置于预冷1.5 mL冻存管内,经锡箔纸包裹后迅速投入液氮实施瞬时冷冻处理,最后将样本保存于-80 ℃超低温冰箱,待测。

1.4 指标测定

1.4.1 生长性能

试验期间每天记录采食量,在试验第12、34和56天称量猪只体重,并计算后备公猪在前期、中期、后期以及全期的平均日增重(ADG)、平均日采食量(ADFI)和料重比(F/G)。

1.4.2 营养物质含量和表观消化率

选择三氧化二铬(Cr2O3)作为外源指示剂进行消化试验,其添加量为0.4%。饲粮和粪便样品中干物质、粗灰分和粗脂肪含量分别参照GB/T 6435—2014、GB/T 6438—2007和GB/T 6433—2025方法进行测定;粗纤维含量参照GB/T 6434—2022方法,采用全自动纤维分析仪(FT12,Gerhardt,德国)进行测定;粗蛋白质含量参考GB/T 6432—2018,采用凯氏定氮仪(Kjeltec 8400,瑞典)进行测定;总能水平参考GB/T 45104—2024,采用全自动氧氮热量仪(Calorimeter,6400)进行测定;根据以上结果计算无氮浸出物和有机物含量以及营养物质表观消化率。计算公式如下:

无氮浸出物含量(%)=干物质含量-粗蛋白质

含量-粗脂肪含量-粗纤维含量-粗灰分含量;

有机物含量(%)=干物质含量-粗灰分含量;

某营养物质表观消化率(%)=[1-(饲粮中指示剂

含量/粪便中指示剂含量)×(粪便中

该营养物质含量/饲粮中

该营养物质含量)]×100。

1.4.3 血清生化指标以及血清和睾丸组织的抗氧化与激素指标

血清生化指标包括总胆固醇(TC)、葡萄糖(GLU)、甘油三酯(TG)、总蛋白(TP)、尿素氮(UN)、谷丙转氨酶(ALT)、低密度脂蛋白胆固醇(LDL-C)、谷草转氨酶(AST)、高密度脂蛋白胆固醇(HDL-C)、乳酸脱氢酶(LDH)含量或者活性,均采用全自动生化分析仪(LA-BOSPECT 7600P,日本)进行测定;血清和睾丸组织的抗氧化指标包括超氧化物歧化酶(SOD,NO.G0101W)、过氧化氢酶(CAT,NO.G0105W)活性,丙二醛(MDA,G0109W)含量和总抗氧化能力(T-AOC,NO.G0142W),通过生化试剂盒(苏州格锐思生物科技有限公司)测定。血清和睾丸组织的激素指标包括促卵泡素(FSH,NO.RXM501049P)、黄体生成素(LH,JRXW501050P)和睾酮(T,JRXW710896)含量,通过猪酶联免疫吸附试验(ELISA)试剂盒(泉州市睿信生物科技有限公司)测定。

1.4.4 睾丸发育指标

通过测量每头猪两侧睾丸的长径和短径计算睾丸体积,用手指顶住睾丸内侧以固定,用游标卡尺分别测量其纵向和横向的最大距离,作为睾丸的长径与短径。记录附睾的重量与附睾长。通过测得睾丸重量和猪的体重计算睾丸指数。计算公式如下:

睾丸体积(cm3)=0.523 6×长径×短径2;

睾丸指数(%)=睾丸重量/体重。

取左侧睾丸组织,经4%多聚甲醛固定、石蜡包埋后,使用石蜡切片机制备厚度为5 μm的常规切片。切片经苏木精-伊红(HE)染色后,采用NDP.view 2.9.22软件进行观察与图像采集。对睾丸组织进行定量分析时,测定并记录生精小管横截面的每管的精原细胞和支持细胞数量以及生精小管直径和上皮厚度。为保障数据代表性,从每头公猪的切片中随机选取20个400倍视野进行观测,并计算各项指标的平均值。

1.4.5 总RNA的提取和实时荧光定量PCR(qRT-PCR)

使用RNA提取试剂盒(FastPure Complex Cell/Tissue Total RNA Isolation Kit,Vazyme,南京)提取睾丸样品RNA,提取步骤参照试剂盒说明书进行。然后使用NanoDrop超微量分光光度计(ND-2000,Thermo Fisher,美国)检测提取的RNA浓度和质量。之后按照HiScriptⅢ RT预混试剂盒(Vazyme,南京)说明书进行反转录。最后,用快速实时荧光定量PCR系统(ABI-7900HT,Applied Biosystems,美国),配合SYBR qPCR预混液(Vazyme,南京)进行实时荧光定量PCR反应。所用引物序列如表2所示,引物由擎科生物技术有限公司合成,结果以β-肌动蛋白(β-actin)作为内参基因,采用2-ΔΔCt法计算目的基因的相对表达量。
表2 引物序列

Table 2 Primer sequences

基因 Genes 引物序列 Primer sequences (5'—3')
细胞周期蛋白B1
CCNB1
F:TGGTGAATGGACACCAACTC
R:TGCTTTGTAAGCCCTCGATT
细胞周期蛋白依赖性激酶4
CDK4
F:GCATCCCAATGTTGTCCG
R:GGGGTGCCTTGTCCAGATA
类固醇合成急性调节蛋白
STAR
F:GGTTCTCAGCTGGAAGACACT
R:ACCTCGTCCCCATTCTCCTG
细胞色素P450 11A1
P450scc
F:TCGGCAACTTGGAATCTGTT
R:AATGCTGGTGATAGGCAACC
细胞色素P450 17A1
CYP17A1
F:GACTACCGTGGTAATTGGTGAC
R:GCAATCCCCTTTTGGTTGTC
17β-羟基类固醇脱氢酶
17β-HSD
F:ACTTGGCTGTTCGCCTAGC
R:GAGGGCATCCTTGAGTCCTG
β-肌动蛋白
β-actin
F:TCTGGCACCACACCTTCT
R:TGATCTGGGTCATCTTCTCAC

1.5 数据统计分析

试验数据经过Excel 2019处理后,分别用Shapiro-Wilk和Levene’s对数据进行正态性检验和方差齐性检验,采用SPSS 27.0统计软件进行独立样本t检验。使用GraphPad Prism 9.4软件制作图片。所有数据均用“平均值±标准误”表示,P<0.05表示差异显著,P<0.01表示差异极显著,0.05≤P<0.10表示有变化趋势。

2 结果

2.1 杂粮杂粕和低蛋白质杂粮杂粕对后备公猪生长性能的影响

表3可知,前期UD组后备公猪F/G显著低于CON组和LUD组(P<0.05);而中期、后期以及全期,UD组与CON组和LUD组后备公猪的初始体重、结束体重、ADFI、ADG以及F/G均无显著差异(P>0.05)。
表3 杂粮杂粕饲粮和低蛋白质杂粮杂粕饲粮对后备公猪生长性能的影响

Table 3 Effects of miscellaneous grain and meal and low-protein miscellaneous grain and meal diets on growth performance of replacement boars

项目
Items
CON组
CON group
UD组
UD group
LUD组
LUD group
P1
P1-value
P2
P2-value
前期 Early phase
初始体重 Initial weight/kg 17.61±0.40 17.88±0.51 17.78±0.41 0.680 0.993
结束体重 Final weight/kg 26.33±0.50 27.94±0.67 27.33±0.56 0.073 0.263
平均日采食量 ADFI/(g/d) 1 200.38±18.48 1 218.24±22.75 1 225.63±25.46 0.551 0.574
平均日增重 ADG/(g/d) 696.15±23.01 758.65±19.13 716.83±20.43 0.055 0.056
料重比 F/G 1.75±0.04 1.60±0.03 1.70±0.03 0.014 0.014
中期 Middle phase
初始体重 Initial weight/kg 26.33±0.50 27.94±0.67 27.33±0.56 0.073 0.263
结束体重 Final weight/kg 47.50±1.09 48.10±0.99 45.72±1.34 0.690 0.172
平均日采食量 ADFI/(g/d) 2 037.19±57.25 1 968.05±55.45 1 841.55±91.12 0.398 0.257
平均日增重 ADG/(g/d) 962.12±32.58 916.16±23.86 835.86±43.65 0.272 0.132
料重比 F/G 2.12±0.02 2.15±0.05 2.21±0.04 0.572 0.379
后期 Late phase
初始体重 Initial weight/kg 47.50±1.09 48.10±0.99 45.72±1.34 0.690 0.172
结束体重 Final weight/kg 74.00±1.43 73.39±1.47 69.06±2.21 0.769 0.123
平均日采食量 ADFI/(g/d) 2 695.06±91.12 2 651.35±96.12 2 473.79±147.09 0.746 0.327
平均日增重 ADG/(g/d) 1 204.55±29.83 1 149.49±39.15 1 060.61±51.10 0.280 0.186
料重比 F/G 2.24±0.04 2.31±0.05 2.32±0.05 0.274 0.848
全期 Overall phase
初始体重 Initial weight/kg 17.61±0.40 17.88±0.51 17.78±0.41 0.680 0.993
结束体重 Final weight/kg 74.00±1.43 73.39±1.47 69.06±2.21 0.769 0.123
平均日采食量 ADFI/(g/d) 2 089.63±56.15 2 050.22±50.77 1 935.66±93.16 0.610 0.301
平均日增重 ADG/(g/d) 1 006.94±24.55 991.17±24.59 915.67±37.07 0.656 0.112
料重比 F/G 2.07±0.02 2.07±0.03 2.11±0.03 0.917 0.395

P1:CON组vs UD组 CON group vs UD group;P2:UD组vs LUD组 UD group vs LUD group。下表同the same as below。

2.2 杂粮杂粕和低蛋白质杂粮杂粕对后备公猪营养物质表观消化率的影响

表4可知,与CON组相比,中期UD组后备公猪饲粮粗蛋白质的表观消化率极显著降低(P<0.01),干物质及总能的表观消化率显著降低(P<0.05),但粗脂肪的表观消化率显著升高(P<0.05);与UD组相比,中期LUD组各营养物质的表观消化率均显著或极显著下降(P<0.05或P<0.01),其中粗纤维的表观消化率下降最为明显。与CON组相比,后期UD组只有总能的表观消化率显著降低(P<0.05);与UD组相比,后期LUD组除了粗脂肪和总能的表观消化率外,其他营养物质的表观消化率均显著或极显著下降(P<0.05或P<0.01)。
表4 杂粮杂粕和低蛋白质杂粮杂粕饲粮对后备公猪营养物质表观消化率的影响

Table 4 Effects of miscellaneous grain and meal and low-protein miscellaneous grain and meal diets on nutrient apparent digestibility of replacement boars%

项目
Items
CON组
CON group
UD组
UD group
LUD组
LUD group
P1
P1-value
P2
P2-value
中期 Middle phase
干物质 DM 85.29±0.44 84.01±0.36 81.14±0.46 0.040 <0.001
粗蛋白质 CP 80.04±1.18 76.19±0.56 70.16±1.11 0.009 <0.001
粗脂肪 EE 57.65±1.18 62.55±1.25 59.80±1.32 0.012 <0.001
粗纤维 CF 43.88±2.92 45.66±1.42 26.13±1.75 0.590 <0.001
总能 GE 86.97±0.40 85.80±0.34 83.50±0.41 0.042 <0.001
有机物 OM 86.93±0.44 85.97±0.38 84.04±0.41 0.114 0.003
无氮浸出物 NFE 92.33±0.18 92.43±0.32 91.55±0.24 0.800 0.042
后期 Late phase
干物质 DM 86.50±0.42 85.44±0.42 83.65±0.58 0.090 0.023
粗蛋白质 CP 82.10±1.05 79.80±0.81 75.35±1.06 0.102 <0.001
粗脂肪 EE 63.05±0.65 64.99±1.21 67.08±0.75 0.174 0.161
粗纤维 CF 48.97±2.64 46.67±2.80 32.56±2.13 0.557 0.001
总能 GE 88.59±0.39 87.20±0.36 85.85±0.54 0.019 0.052
有机物 OM 88.62±0.41 87.49±0.39 85.90±0.51 0.064 0.026
无氮浸出物 NFE 93.62±0.24 93.34±0.22 92.00±0.39 0.397 0.009

2.3 杂粮杂粕和低蛋白质杂粮杂粕对后备公猪血清生化指标及血清和睾丸抗氧化指标的影响

表5可知,与CON组相比,UD组后备公猪血清生化指标均无显著差异(P>0.05)。与UD组相比,LUD组后备公猪血清UN含量显著降低(P<0.05),并且血清葡萄糖和总蛋白含量分别有升高和降低的趋势(0.05≤P<0.10)。
表5 杂粮杂粕和低蛋白质杂粮杂粕饲粮对后备公猪血清生化指标的影响

Table 5 Effects of miscellaneous grain and meal and low-protein miscellaneous grain and meal diets on the serum biochemistry indexes of replacement boars

项目
Items
CON组
CON group
UD组
UD group
LUD组
LUD group
P1
P1-value
P2
P2-value
葡萄糖 GLU/(mmol/L) 6.05±0.21 5.85±0.12 6.33±0.20 0.412 0.053
总蛋白 TP/(g/L) 54.75±1.23 53.74±0.52 51.73±0.83 0.459 0.056
总胆固醇 TC/(mmol/L) 1.93±0.09 2.16±0.10 2.24±0.08 0.101 0.570
甘油三酯 TG/(mmol/L) 0.43±0.04 0.41±0.04 0.44±0.03 0.789 0.613
低密度脂蛋白胆固醇 LDL-C/(mmol/L) 1.00±0.05 0.92±0.06 0.98±0.03 0.277 0.339
高密度脂蛋白胆固醇 HDL-C/(mmol/L) 0.59±0.02 0.60±0.04 0.59±0.03 0.669 0.828
尿素氮 UN/(mmol/L) 2.71±0.22 2.23±0.18 1.23±0.16 0.104 0.001
乳酸脱氢酶 LDH/(U/L) 675.77±47.95 592.38±28.36 658.97±38.46 0.154 0.183
谷丙转氨酶 ALT/(U/L) 112.10±7.18 101.35±6.86 106.44±5.09 0.297 0.559
谷草转氨酶 AST/(U/L) 30.38±3.35 29.02±3.41 26.00±2.55 0.559 0.489
表6可知,CON组与UD组后备公猪血清与睾丸中T-AOC及SOD、MDA、CAT活性或者含量均无显著差异(P>0.05),UD组与LUD组的血清与睾丸抗氧化指标也无显著差异(P>0.05)。
表6 杂粮杂粕和低蛋白质杂粮杂粕饲粮对后备公猪血清和睾丸抗氧化指标的影响

Table 6 Effects of miscellaneous grain and meal and low-protein miscellaneous grain and meal diets on serum and testicular antioxidant indexes of replacement boars

项目
Items
CON组
CON group
UD组
UD group
LUD组
LUD group
P1
P1-value
P2
P2-value
血清 Serum
超氧化物歧化酶 SOD/(U/mL) 4.44±0.44 4.54±0.45 5.09±0.40 0.880 0.373
丙二醛 MDA/(nmol/mL) 1.17±0.21 1.29±0.05 1.47±0.18 0.764 0.352
过氧化氢酶 CAT/(U/mL) 143.86±4.68 154.69±3.63 143.77±5.55 0.566 0.126
总抗氧化能力 T-AOC/(μmol/mL) 3.87±0.11 4.03±0.07 4.02±0.05 0.263 0.992
睾丸 Testis
超氧化物歧化酶 SOD/(U/mg) 12.87±0.59 11.70±1.61 12.71±1.36 0.508 0.640
丙二醛 MDA/(nmol/mg) 10.75±2.67 7.78±1.52 12.07±2.22 0.326 0.137
过氧化氢酶 CAT/(U/mg) 10.38±1.81 8.33±2.25 5.26±1.02 0.256 0.266
总抗氧化能力 T-AOC/(μmol/mg) 3.68±0.10 3.45±0.14 3.66±0.11 0.224 0.266

2.4 杂粮杂粕和低蛋白质杂粮杂粕对后备公猪睾丸发育和激素指标的影响

2.4.1 睾丸体积和睾丸指数

表7可知,UD组与CON组后备公猪睾丸体积、重量和睾丸指数以及附睾重量和附睾长均无显著差异(P>0.05),UD组与LUD组相比上述指标也无显著差异(P>0.05)。
表7 杂粮杂粕和低蛋白质杂粮杂粕饲粮对后备公猪睾丸体积和睾丸指数的影响

Table 7 Effects of miscellaneous grain and meal and low-protein miscellaneous grain and meal diets on testicular volume and index of replacement boars

项目
Items
CON组
CON group
UD组
UD group
LUD组
LUD group
P1
P1-value
P2
P2-value
睾丸体积 Testicular volume/cm3 51.07±2.93 51.60±6.16 49.19±4.78 0.939 0.762
睾丸重量 Testicular weight/g 106.89±8.21 110.33±9.32 102.00±10.16 0.785 0.554
睾丸指数 Testicular index/% 0.14±0.01 0.15±0.01 0.15±0.02 0.700 0.918
附睾重量 Epididymal weight/g 22.22±0.63 25.83±1.87 22.56±0.58 0.769 0.476
附睾长 Epididymis length/mm 135.25±3.15 132.30±9.37 139.52±3.22 0.086 0.113

2.4.2 睾丸组织形态学指标

图1所示,120日龄后备公猪的睾丸组织结构清晰完整,此时生精小管尚未发育完全,管内各类细胞排列有序;在400倍放大下观察可见,各组生精小管内的生殖细胞均排列紧凑。由表8可知,通过对睾丸组织学定量分析发现,在120日龄时,UD组与CON组和LUD组后备公猪睾丸每管生精小管中精原细胞和支持细胞数量没有显著差异(P>0.05),同时生精小管直径和生精上皮厚度之间也没有显著差异(P>0.05)。
图1 120日龄后备公猪睾丸组织切片结果

Fig.1 Histological section results of testicular tissues from 120-day-old replacement boars

A、D:CON组 CON group;B、E:UD组 UD group;C、F:LUD组 LUD group。

A、B、C:100×;D、E、F:400×。

表8 杂粮杂粕和低蛋白质杂粮杂粕饲粮对后备公猪睾丸组织学形态指标的影响

Table 8 Effects of miscellaneous grain and meal and low-protein miscellaneous grain and meal diets on histological morphology indexes of testicular tissue of replacement boars

项目
Items
CON组
CON group
UD组
UD group
LUD组
LUD group
P1
P1-value
P2
P2-value
每管生精小管中精原细胞数量
Number of spermatogonia per
seminiferous tubule/个
22.20±1.12 25.48±1.33 24.40±1.54 0.096 0.610
每管生精小管中支持细胞数量
Number of Sertoli cells per seminiferous
tubule/个
10.08±0.79 10.92±1.64 8.16±1.55 0.657 0.256
生精小管直径
Seminiferous tubular diameter/μm
126.62±2.89 133.63±6.79 130.96±8.84 0.370 0.817
生精上皮厚度
Seminiferous epithelium height/μm
39.66±1.28 37.76±1.44 37.90±2.52 0.353 0.962

2.4.3 杂粮杂粕和低蛋白质杂粮杂粕饲粮对后备公猪血清和睾丸激素指标的影响

表9可知,与CON组相比,UD组后备公猪血清LH含量显著升高(P<0.05)。与UD组相比,LUD组睾丸组织FSH含量显著降低(P<0.05)。
表9 杂粮杂粕和低蛋白质杂粮杂粕饲粮对后备公猪血清和睾丸激素指标的影响

Table 9 Effects of miscellaneous grain and meal and low-protein miscellaneous grain and meal diets on serum and testicular hormone indexes of replacement boars

项目
Items
CON组
CON group
UD组
UD group
LUD组
LUD group
P1
P1-value
P2
P2-value
血清 Serum
促卵泡素 FSH/(mU/mL) 33.52±2.50 30.30±4.92 29.82±4.98 0.554 0.948
黄体生成素 LH/(mU/mL) 29.26±0.22 30.21±0.29 30.00±0.23 0.022 0.568
睾酮 T/(pg/mL) 60.28±7.39 66.43±7.70 58.21±7.26 0.577 0.455
睾丸 Testis
促卵泡素 FSH/(mU/mg) 3.50±0.30 2.71±0.28 1.91±0.15 0.076 0.028
黄体生成素 LH/(mU/mg) 3.72±0.45 3.84±0.44 3.96±0.26 0.856 0.718
睾酮 T/(pg/mg) 370.35±8.27 381.05±11.91 396.11±8.23 0.462 0.329

2.5 杂粮杂粕和低蛋白质杂粮杂粕饲粮对后备公猪睾丸细胞增殖和睾酮合成相关基因表达的影响
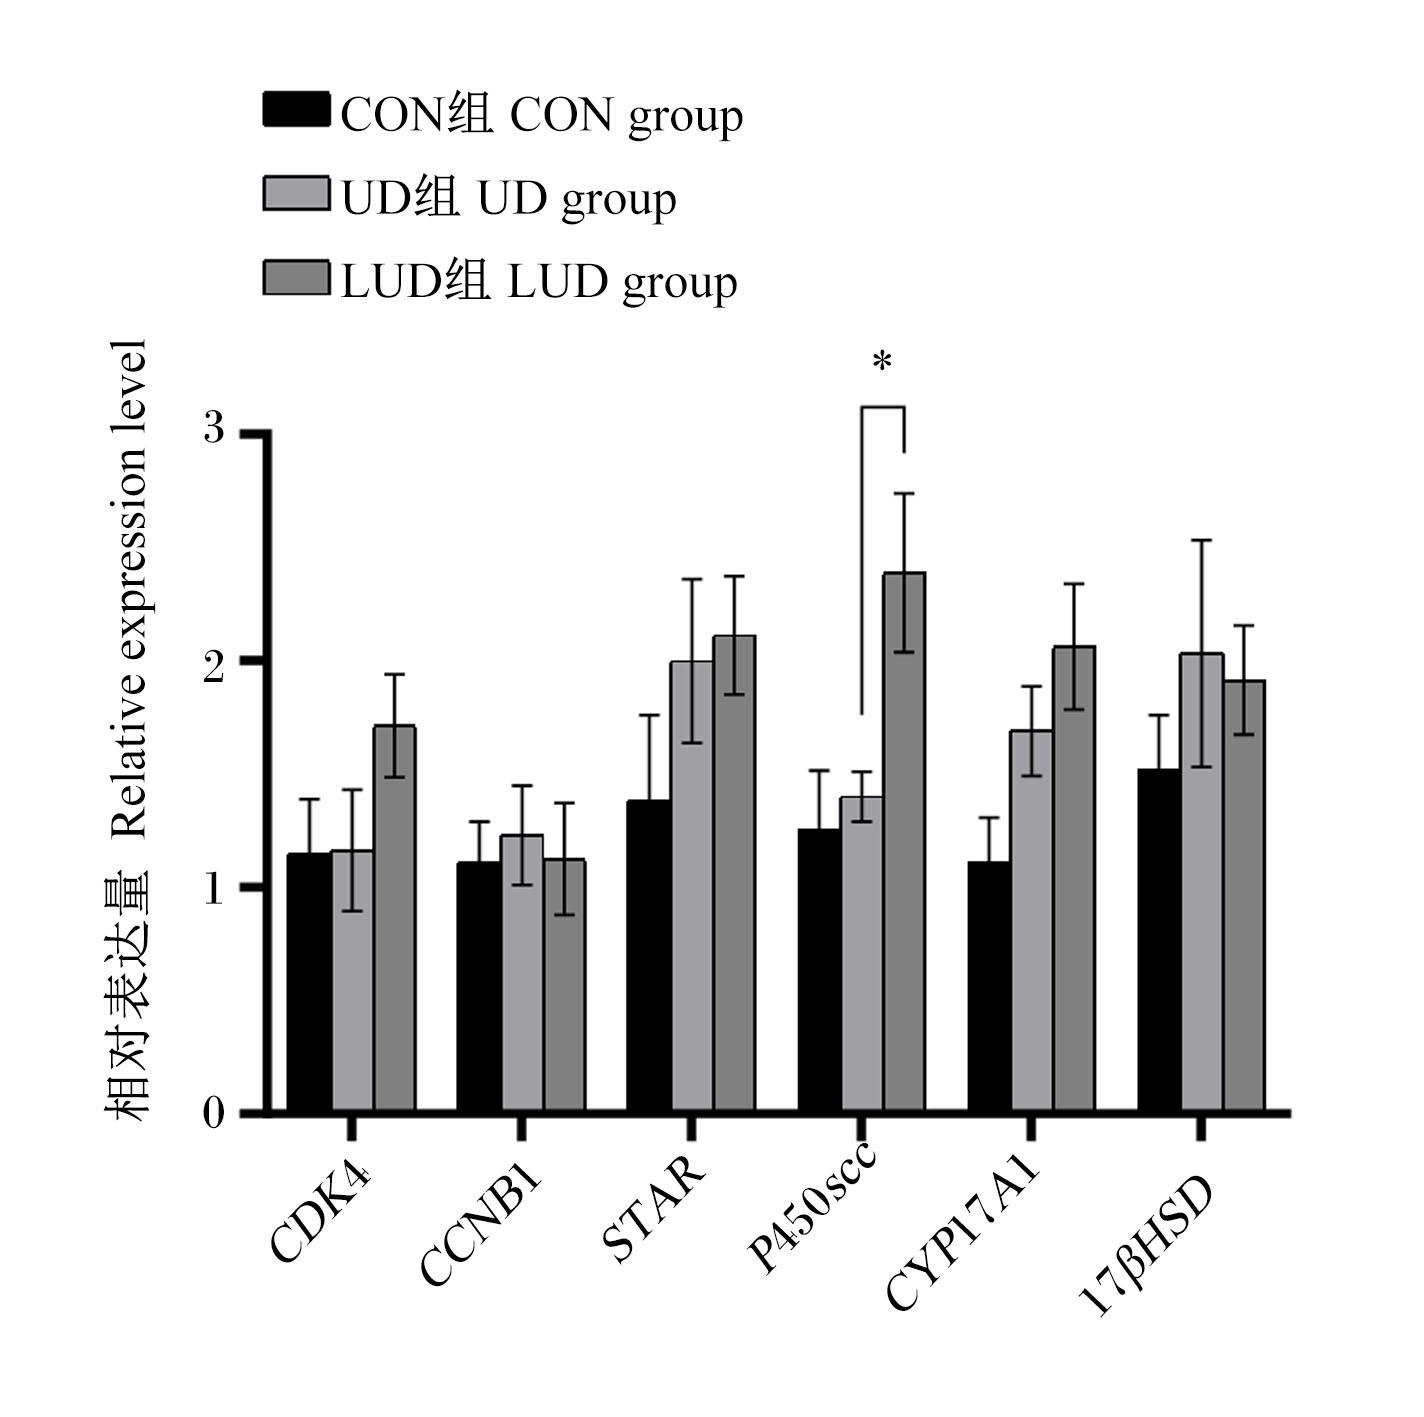
图2可知,UD组与CON组和LUD组后备公猪睾丸组织中与细胞增殖相关基因细胞周期蛋白依赖性激酶4(CDK4)和细胞周期蛋白B1(CCNB1)的相对表达量并没有显著差异(P>0.05);LUD组睾丸组织中与睾酮合成相关基因细胞色素P450 11A1(P450scc)的相对表达量显著高于UD组(P<0.05)。
图2 杂粮杂粕和低蛋白质杂粮杂粕饲粮对后备公猪睾丸细胞增殖和睾酮合成相关基因表达的影响

“*”表示差异显著(P<0.05)。“*” indicated a significant difference (P<0.05).

CDK4:细胞周期蛋白依赖性激酶 4;CCNB1:细胞周期蛋白 B1;STAR:类固醇合成急性调节蛋白;P450scc:细胞色素 P450 11A1;CYP17A1:细胞色素 P450 17A1;17β-HSD:17β- 羟基类固醇脱氢酶。

Fig.2 Effects of miscellaneous grain and meal and low-protein miscellaneous grain and meal diets on expression of genes related to testicular cell proliferation and testosterone synthesis of replacement boars

3 讨论

3.1 杂粮杂粕和低蛋白质杂粮杂粕饲粮对后备公猪生长性能的影响

生长性能是综合评价后备公猪生长和健康状况的关键指标。本试验结果表明,从试验全期来看,饲喂杂粮杂粕饲粮对后备公猪ADG以及F/G并没有显著影响。研究发现,在断奶仔猪中小麦部分替代玉米(30%),试验全期ADG有提高趋势[17]。Ma等[18]在使用大麦替代50%玉米时发现,大麦组料重比显著升高。宋献艺等[19]在生长育肥猪饲粮中分别添加30%、65%和100%的高粱来替代玉米。结果表明,在高粱30%和65%替代玉米时不会影响肥育猪的ADFI或F/G。糙米营养价值高,但是质地偏硬,Lee等[20]使用磨碎糙米完全替代玉米饲喂断奶仔猪,并不影响生长性能和腹泻频率。菜籽粕在国内国外具有独特的优势,一直作为替代豆粕的研究对象[21]。李洪志等[22]研究表明,生长期猪添加8%菜粕时,对猪只F/G和ADG无负面影响。
我国棉花产量位居全球首位,并由此形成了年产高达600万t棉籽粕的副产品产能[23]。而且价格相较于豆粕低,来源广泛。棉籽粕的粗蛋白质含量仅次于豆粕,可达到40%以上,是优质的饲料蛋白质资源之一。秦金胜等[24]在猪生长育肥期饲粮中以不同比例的普通棉籽粕和发酵棉籽粕替代豆粕发现,普通棉籽粕替代豆粕的比例达到5%时猪的ADG有下降趋势;达10%时可显著降低猪的ADG和饲料报酬,因此在棉籽粕的应用中还需严格控制替代比例。发酵酒糟营养水平差异随加工工艺等因素影响变化较大,黄伟杰等[25]研究发现,饲粮中添加10%玉米DDGS和15%高粱,不会对生长育肥猪的生产性能产生显著影响。亚麻籽油比其他油脂具有更好的n-6/n-3多不饱和脂肪酸比例,对不同阶段猪均有较好的生产效益。Wiecek等[26]研究表明,育肥期饲粮中添加4%亚麻油可显著增加猪背膘中的n-3多不饱和脂肪酸含量和ADG。亚麻籽饼中同样存在丰富的亚麻油,但亚麻籽饼在公猪饲粮中的应用还有待更进一步的研究。目前低蛋白质饲粮技术的研究主要集中在断奶仔猪和生长育肥猪,在公猪上的应用研究较少。低蛋白质饲粮的应用,可从经济成本到环境效益的两方面实现综合优化,不仅能够直接降低了饲料成本,还可有效减少氮磷排放,同时有助于提升畜禽的整体生长性能[27-28]

3.2 杂粮杂粕和低蛋白质杂粮杂粕饲粮对后备公猪营养物质表观消化率的影响

营养物质消化率是评估动物消化吸收能力的关键指标,直接关系到动物的生长发育。通常来说,消化吸收能力越强,对动物的生长和发育越有利。研究表明,在生长猪饲粮中,用杂粕(菜籽粕、棉籽粕、葵花粕)部分或全部替代豆粕,对饲粮粗蛋白质、粗脂肪和总能的表观消化率无显著影响[29]。也有研究发现,断奶仔猪饲粮中小麦替代50%玉米,粗纤维、粗蛋白质、干物质和总能的表观消化率均会降低[30];Ma等[18]在使用大麦替代50%玉米时发现,与对照组相比,大麦组F/G显著升高,而表观消化率仅数值上降低,其差异不显著。这些结果可能与大麦和小麦所含的非淀粉多糖(NSP)有关,NSP通过增加食糜黏度影响营养物质的消化吸收,甚至改变肠道健康和生理功能。在本试验中,与CON组相比,中期UD组干物质和总能的表观消化率显著降低,粗蛋白质的表观消化率则极显著降低。这可能与杂粕中较高的粗纤维含量有关,饲粮中总膳食纤维的含量增加,导致食糜通过速率加快,从而影响了营养物质的消化吸收。此外,杂粮中的NSP无法被肠道内源消化酶分解[31]。杂粮中的植酸可以直接与消化酶分子结合,改变其构象,使其失去催化功能,尤其是植酸能特异性地与胰蛋白酶结合并抑制其活性,失活会严重影响到后续整个蛋白质消化过程[32];植酸在胃中会与蛋白质结合,消耗胃酸,这可能在一定程度上影响胃内最适pH环境的建立,进一步抑制营养物质的消化。尽管如此,本试验中,干物质、总能表观消化率的降低幅度均控制在3%以内,且粗脂肪的表观消化率显著提高。有研究表明,随着饲粮中脂肪含量增加,粗脂肪消化率会呈曲线上升[33]。在本试验中,为了保证饲粮总能的一致,在杂粮杂粕饲粮中补充了更多的大豆油,这可能是粗脂肪消化率提高的原因。

3.3 杂粮杂粕和低蛋白质杂粮杂粕饲粮对后备公猪血清生化指标的影响

血清生化指标是客观评价动物机体健康状态的重要参数。本试验结果表明,与CON组相比,UD组后备公猪血清生化指标没有显著变化,由该结果可知杂粮杂粕饲粮对后备公猪机体健康未见负面影响。但值得注意的是,与UD组相比,LUD组血清UN的含量极显著降低。血清UN含量是评估动物体内蛋白质代谢和氨基酸平衡状态的关键指标:氨基酸平衡越理想,UN含量通常越低[34]。这一规律与氮排泄研究相互印证。Jongbloed等[35]研究发现,猪饲粮中约20%和50%的氮分别经由粪便和尿液排出,且当氨基酸组成不平衡时,会加剧氮的流失。Galassi等[36]结果证明:低蛋白质饲粮能显著降低长白猪的尿氮含量,且饲粮蛋白质水平每降低1%,氮排放量可相应降低8%。在本试验中,在合理补充氨基酸满足动物机体营养需求的前提下,使用杂粮杂粕替代玉米和豆粕并降低饲粮粗蛋白质水平,能够有效降低血清UN含量,同时提高蛋白质的生物学效价。这进一步支持了低蛋白质饲粮在优化公猪蛋白质代谢方面的潜力。

3.4 杂粮杂粕和低蛋白质饲杂粮杂粕粮对后备公猪睾丸发育和激素分泌的影响

睾丸是雄性重要的生殖及内分泌器官,在精子生成过程中发挥着核心作用[37]。公猪睾丸的发育状态是其生殖能力的重要指标,睾丸体积越大,性欲和精子生成能力往往越强[38]。睾丸发育质量可通过体积、组织结构及内部细胞数量进行评估。
本试验发现,UD组与CON组后备公猪睾丸体积、重量和睾丸指数以及附睾重量和附睾长均无显著差异;LUD组的睾丸体积比UD组下降3个百分点,但差异不显著。通过观察120日龄公猪的睾丸组织切片发现,与CON组相比,UD组睾丸生精小管组织形态,生殖细胞排列无明显差异;睾丸组织学定量分析后发现,UD组每管生精小管中精原细胞和支持细胞数量及生精小管直径和生精上皮厚度与其他2组均没有显著差异。以上结果表明,在本试验条件下,饲喂杂粮杂粕饲粮并不会对后备公猪的睾丸发育产生负面影响。研究发现,杂粮杂粕中的抗营养因子在超过一定的量后会损害公猪睾丸组织。棉籽粕中对动物影响最大的抗营养因子是棉酚,棉酚含有活性醛基和羟基,易与其他物质发生各种化学反应而引起毒性[39]。研究发现,经棉酚处理的雄性动物精子浓度下降,尾部线粒体受损,生殖上皮损伤[40]。王霞等[41]以原代分离培养仔猪睾丸支持细胞为模型,通过使用不同浓度的醋酸棉酚的培养基,研究发现,棉酚可能通过生成过量ROS而造成细胞氧化应激来诱导仔猪睾丸支持细胞凋亡。因此在公猪生产中添加适量的棉籽粕替代豆粕是可行的,要严格控制棉酚的含量,以免对动物生殖造成损害。
精子发生的启动与维持,依赖于下丘脑促性腺激素释放激素(GnRH)驱动的垂体促性腺激素LH和FSH。其中,LH的关键作用在于刺激睾酮生成,而睾酮是有效精子发生、第二性征维持及合成代谢所不可或缺的基石[42-44]。FSH则通过调控支持细胞协同增强睾酮的作用。这些激素共同构成了维持睾丸生育功能的核心调控网络[43-45]。在本试验中,与CON组相比,UD组后备公猪血清LH含量显著升高;与UD组相比,LUD组睾丸组织FSH含量显著降低。LH的主要功能是与肾上腺皮质细胞表面的黄体生成素受体(LHR)结合,从而刺激睾酮的分泌。FSH仅特异性作用于表达促卵泡素受体(FSHR)的支持细胞,且其效应与动物生理阶段有关:在产前及青春期,FSH主要刺激支持细胞增殖,从而影响支持细胞数量[46],同时支持细胞会通过分泌抑制素负反馈抑制垂体FSH分泌[47]。饲喂低蛋白质杂粮杂粕饲粮后备公猪睾丸组织FSH含量显著降低,由于在睾丸组织切片中观测结果发现LUD组支持细胞数量以及形态与CON组相比没有显著差别,因此判断饲喂低蛋白质杂粮杂粕饲粮引起的FSH含量的降低可能与其负反馈机制有关。

3.5 杂粮杂粕和低蛋白质杂粮杂粕饲粮对后备公猪睾丸细胞增殖和睾酮合成相关基因表达的影响

姚晓磊等[48]指出,CCNB1主要在精子细胞内的生精小管中表达,其表达量可作为评估精子细胞增殖和分化能力的指标。在细胞分裂过程中,细胞周期蛋白依赖性激酶(CDK)只有当特定的细胞周期蛋白亚基作为调节亚基与之结合时,才会获得蛋白激酶的活性[49]。研究发现,CCNB1与CDK4结合成的复合物可调控哺乳动物的精母细胞从减数分裂至成熟这一进程,CCNB1和CDK4保证了细胞周期的有序进行,可使细胞周期由G2转换至M期,这对哺乳动物的繁殖和发育至关重要[50]。在本试验中,各组之间CCNB1与CDK4基因相对表达量无显著差异,这表明杂粮杂粕饲粮并不会影响睾丸增殖相关基因的表达,同时与睾丸体积和睾丸指数的结果相一致。本试验通过测定睾丸组织中与睾酮合成相关基因类固醇合成急性调节蛋白(STAR)、P450scc、细胞色素P450 17A1(CYP17A1)以及17β-羟基类固醇脱氢酶(17βHSD)的相对表达量,发现LUD组的睾丸组织中P450scc相对表达量显著高于UD组,而这4种基因的相对表达量呈现出LUD组>UD组>CON组的趋势,与睾丸组织中LH和睾酮含量趋势基本一致,推测导致睾酮合成相关基因相对表达量升高的原因可能与睾丸中LH含量有关。本试验中,LUD组睾丸组织FSH含量降低,而P450scc基因相对表达量升高,推测这是青春期发育正常且顺利的一种表现,这可能表明睾丸产生的睾酮和抑制素已能有效抑制垂体FSH的分泌,从而导致睾丸组织中FSH含量降低[51]

4 结论

本试验条件下,饲喂杂粮杂粕和低蛋白质杂粮杂粕饲粮的后备公猪生长性能和睾丸发育不受影响,而干物质、粗蛋白质和总能的表观消化率出现下降,粗脂肪表观消化率有所提高;同时,饲喂杂粮杂粕饲粮的后备公猪血清LH含量下降;饲喂低蛋白质杂粮杂粕饲粮的后备公猪睾丸FSH含量下降,睾酮合成相关基因表达有上调趋势。
[1]
周道玮, 张平宇, 孙海霞, 等. 中国粮食生产与消费的区域平衡研究——基于饲料粮生产及动物性食物生产的分析[J]. 土壤与作物, 2017, 6(3):161-173.

ZHOU D W, ZHANG P Y, SUN H X, et al. Regional difference of grain production and its consumed fraction in China[J]. Soils and Crops, 2017, 6(3):161-173. (in Chinese)

[2]
WEISS E, AUMILLER T, SPINDLER H K, et al. Wheat and barley differently affect porcine intestinal microbiota[J]. Journal of the Science of Food and Agriculture, 2016, 96(6):2230-2239.

DOI PMID

[3]
THAVASIAPPAN V, SELVARAJ P, JAYACHANDRAN S, et al. Influence of enzyme supplementation on intestinal physio chemical characteristics and nutrient digestablity in broilers[J]. Journal of Entomology and Zoology Studies, 2020, 8(3):506-509.

[4]
朱安南, 刘欢, 孟勇, 等. 高粱的营养特性及其在畜禽生产中的应用[J]. 中国饲料, 2023(5):147-151,162.

ZHU A N, LIU H, MENG Y, et al. Reserch progress on nutritional characteristics of sorghum and its application in livestock and poultry production[J]. China Feed, 2023(5):147-151,162. (in Chinese)

[5]
KIM S, CHO J H, KIM Y, et al. Effects of substitution of corn with ground brown rice on growth performance,nutrient digestibility,and gut microbiota of growing-finishing pigs[J]. Animals, 2021, 11(2):375.

DOI

[6]
ZHANG S H, HENG J H, SONG H Q, et al. Role of maternal dietary protein and amino acids on fetal programming,early neonatal development,and lactation in swine[J]. Animals, 2019, 9(1):19.

DOI

[7]
朱文优. 菜籽粕的营养价值与毒性[J]. 江西饲料, 2009(增刊):10-12.

ZHU W Y. Nutritional value and toxicity of rapeseed meal[J]. Jiangxi Feed, 2009(Suppl. 1):10-12. (in Chinese)

[8]
刘承鑫, 孔繁刚, 张海燕, 等. 菜粕在猪生产中的应用[J]. 广东饲料, 2024, 33(6):43-45.

LIU C X, KONG F G, ZHANG H Y, et al. Application of rapeseed meal in pig production[J]. Guangdong Feed, 2024, 33(6):43-45. (in Chinese)

[9]
刘少娟, 陈家顺, 姚康, 等. 棉粕的营养组成及其在畜禽生产中的应用[J]. 畜牧与饲料科学, 2016, 37(9):45-49.

LIU S J, CHEN J S, YAO K, et al. Nutritional composition of cottonseed meal and its application in poultry and animal production[J]. Animal Husbandry and Feed Science, 2016, 37(9):45-49. (in Chinese)

[10]
RANDEL R D, CHASE C C Jr, WYSE S J. Effects of gossypol and cottonseed products on reproduction of mammals[J]. Journal of Animal Science, 1992, 70(5):1628-1638.

PMID

[11]
ZHOU X B, ZHENG P. Spirit-based distillers’ grain as a promising raw material for succinic acid production[J]. Biotechnology Letters, 2013, 35(5):679-684.

DOI

[12]
杨丽华, 张婷婷, 孟建宇. 混菌固态发酵白酒酒糟制蛋白饲料的研究[J]. 中国饲料, 2021(13):135-138.

YANG L H, ZHANG T T, MENG J Y. Study on preparation of protein feed from distiller’s grains by mixed solid-state fermentation[J]. China Feed, 2021(13):135-138. (in Chinese)

[13]
彭昱雯, 吴冬梅. 酒糟发酵生物饲料的生产及其对动物生产性能的影响[J]. 饲料研究, 2022, 45(2):158-160.

PENG Y W, WU D M. Production of distiller’s grain fermentation biological feed and its effect on animal performance[J]. Feed Research, 2022, 45(2):158-160. (in Chinese)

[14]
吴酬飞. 高效降解生氰糖苷的工程菌株构建与亚麻籽发酵脱毒研究[D]. 博士学位论文. 广州: 中山大学, 2012.

WU C F. Construction of a recombinant engineering strain for high-efficiency degradation of cyanogenic glycosides and detoxification of flaxseed by fermentation[D]. Ph.D.Thesis. Guangzhou: Sun Yat-Sen University, 2012. (in Chinese)

[15]
张法玲, 徐群, 张桂凤, 等. 低蛋白氨基酸平衡日粮技术在猪生产中的应用研究进展[J]. 山东畜牧兽医, 2025, 46(5):107-112.

ZHANG F L, XU Q, ZHANG G F, et al. Research progress on the application of low-protein amino acid-balanced diets technology in pig production[J]. Shandong Journal of Animal Science and Veterinary Medicine, 2025, 46(5):107-112. (in Chinese)

[16]
尤瑞祺, 肖桂萍, 李韬, 等. 猪低蛋白氨基酸平衡日粮配制的关键技术[J]. 北方牧业, 2025,(14):15.

YOU R Q, XIAO G P, LI T, et al. Key techniques for formulating low-protein amino acid-balanced diets in pigs[J]. Northern Animal Husbandry, 2025(14):15. (in Chinese)

[17]
BLOXHAM D J, DOVE C R, AZAIN M. Effect of wheat as a feedstuff in starter diets on nursery pig growth performance and digestibility[J]. Livestock Science, 2018, 207:98-104.

DOI

[18]
MA X K, LI Z Q, ZHANG Y B. Effects of the partial substitution of corn with wheat or barley on the growth performance,blood antioxidant capacity,intestinal health and fecal microbial composition of growing pigs[J]. Antioxidants, 2022, 11(8):1614.

DOI

[19]
宋献艺, 杜丽英, 贾丽军, 等. 高粱替代玉米对育肥猪生长性能、血液生化指标、抗氧化性能和免疫力的影响[J]. 中国畜牧杂志, 2019, 55(11):116-120.

SONG X Y, DU L Y, JIA L J, et al. Effect of sorghum replacing corn on growth performance,serum biochemical parameters,antioxidant trait and immune function of finishing pigs[J]. Chinese Journal of Animal Science, 2019, 55(11):116-120. (in Chinese)

[20]
LEE J J, KIM S, CHO J H, et al. Potential use of ground brown rice for weanling pigs[J]. Journal of Animal Science, 2021, 99(10):skab267.

[21]
MEJICANOS G, SANJAYAN N, KIM I H, et al. Recent advances in canola meal utilization in swine nutrition[J]. Journal of Animal Science and Technology, 2016, 58(1):7.

DOI

[22]
李洪志, 傅善江. 日粮添加菜粕对生长猪生长性能、养分消化及血清指标的影响[J]. 中国饲料, 2021(10):54-57.

LI H Z, FU S J. Effects of rapeseed meal supplementation on growth performance,nutrient digestion and serum parameters of growing pigs[J]. China Feed, 2021(10):54-57. (in Chinese)

[23]
欧阳龙. 我国棉籽加工产业的发展现状与展望[J]. 湖南饲料, 2012(5):11-13.

OUYANG L. Current development status and prospects of cottonseed processing industry in China[J]. Hunan Feed, 2012(5):11-13. (in Chinese)

[24]
秦金胜, 禚梅, 许衡, 等. 发酵棉粕和普通棉粕替代豆粕对猪生长性能的影响[J]. 新疆农业大学学报, 2010, 33(6):496-501.

QIN J S, ZHUO M, XU H, et al. Effect of common cottonseed meal and fermented cottonseed meal substituted for soybean meal on the growth performance of pigs[J]. Journal of Xinjiang Agricultural University, 2010, 33(6):496-501. (in Chinese)

[25]
黄伟杰, 温玉梅, 卢文钦, 等. 添加高粱和谷物干酒精糟对生长猪生长性能的影响[J]. 养猪, 2015(2):17-18.

HUANG W J, WEN Y M, LU W Q, et al. Effects of adding sorghum and dried distillers grains with solubles on growth performance of growing pigs[J]. Swine Production, 2015(2):17-18. (in Chinese)

[26]
WIECEK J, REKIEL A, SKOMIAŁ J. Effect of feeding level and linseed oil on some metabolic and hormonal parameters and on fatty acid profile of meat and fat in growing pigs[J]. Archives Animal Breeding, 2010, 53(1):37-49.

DOI

[27]
HRISTOV A N, HANIGAN M, COLE A, et al. Ammonia emissions from dairy farms and beef feedlots:a review[J]. Canadian Journal of Animal Science, 2011, 91:1-35.

DOI

[28]
赵卿尧, 顾宪红. 低蛋白日粮应用前景与研究进展[J]. 家畜生态学报, 2020, 41(3):9-14.

ZHAO Q Y, GU X H. Application prospect and research progress of low protein diet[J]. Acta Ecologiae Animalis Domastici, 2020, 41(3):9-14. (in Chinese)

[29]
HE Z T, ZHAN X L, CAO S T, et al. Effect of miscellaneous meal replacements for soybean meal on growth performance,serum biochemical parameters,and gut microbiota of 50-75 kg growing pigs[J]. Animals, 2023, 13(22):3499.

DOI

[30]
余有贵, 贺建华, 聂新志. 加酶小麦日粮对生长猪消化与微生物的影响[J]. 安徽农业大学学报, 2005, 32(4):444-450.

YU Y G, HE J H, NIE X Z. Effects of enzyme-supplemented wheat-based diet on digestion and microorganisms in growing pigs[J]. Journal of Anhui Agricultural University, 2005, 32(4):444-450. (in Chinese)

[31]
KERR B J, SHURSON G C. Strategies to improve fiber utilization in swine[J]. Journal of Animal Science and Biotechnology, 2013, 4(1):11.

DOI PMID

[32]
COWIESON A J, ACAMOVIC T, BEDFORD M R. The effects of phytase and phytic acid on the loss of endogenous amino acids and minerals from chickens[J]. British Poultry Science, 2004, 45(1):101-108.

DOI

[33]
JØRGENSEN H, JAKOBSEN K, EGGUM B O. Determination of endogenous fat and fatty acids at the terminal ileum and on faeces in growing pigs[J]. Acta Agriculturae Scandinavica,Section A-Animal Science, 1993, 43(2):101-106.

[34]
MALMOLF K. Amino acid in farm animal nutrition metabolism,partition and consequences of imbalance[J]. Swedish Journal of Agriculture Research, 1988, 18:191-193.

[35]
JONGBLOED A W, LENIS N P. Alteration of nutrition as a means to reduce environmental pollution by pigs[J]. Livestock Production Science, 1992, 31(1/2):75-94.

DOI

[36]
GALASSI G, COLOMBINI S, MALAGUTTI L, et al. Effects of high fibre and low protein diets on performance,digestibility,nitrogen excretion and ammonia emission in the heavy pig[J]. Animal Feed Science and Technology, 2010, 161(3/4):140-148.

DOI

[37]
DING H S, LUO Y, LIU M, et al. Histological and transcriptome analyses of testes from duroc and Meishan boars[J]. Scientific Reports, 2016, 6(1):20758.

DOI

[38]
程栩. 饲粮添加不同比例的多不饱和脂肪酸对后备公猪繁殖性能的影响[D]. 硕士学位论文. 雅安: 四川农业大学, 2015.

CHENG X. Effects of different dietary polyunsaturated fatty acids ratios on boar reproduction[D]. Master’s Thesis. Ya’an: Sichuan Agricultural University, 2015. (in Chinese)

[39]
周培校, 赵飞, 潘晓亮, 等. 棉粕和棉籽壳饲用的研究进展[J]. 畜禽业, 2009(8):52-55.

ZHOU P X, ZHAO F, PAN X L, et al. Research progress on the application of cottonseed meal and cottonseed hulls in feed[J]. Livestock and Poultry Industry, 2009(8):52-55. (in Chinese)

[40]
GADELHA I C N, FONSECA N B S, OLORIS S C S, et al. Gossypol toxicity from cottonseed products[J]. The Scientific World Journal, 2014, 2014(1):231635.

[41]
王霞, 邬静. 棉酚对仔猪睾丸支持细胞氧化应激和细胞凋亡的影响[J]. 湖南农业大学学报(自然科学版), 2019, 45(3):312-315.

WANG X, WU J. Influence of gossypol on oxidative stress and apoptosis in piglet sertoli cells[J]. Journal of Hunan Agricultural University(Natural Sciences), 2019, 45(3):312-315. (in Chinese)

[42]
ANDERSON R A, BAIRD D T. Male contraception[J]. Endocrine Reviews, 2002, 23(6):735-762.

PMID

[43]
MCLACHLAN R I, O’DONNELL L, MEACHEM S J, et al. Identification of specific sites of hormonal regulation in spermatogenesis in rats,monkeys,and man[J]. Recent Progress in Hormone Research, 2002, 57:149-179.

DOI

[44]
HUHTANIEMI I. Mechanisms in endocrinology:hormonal regulation of spermatogenesis:mutant mice challenging old paradigms[J]. European Journal of Endocrinology, 2018, 179(3):R143-R150.

[45]
ODUWOLE O O, HUHTANIEMI I T. Feasibility of male hormonal contraception:lessons from clinical trials and animal experiments[J]. Current Molecular Pharmacology, 2014, 7(2):109-118.

DOI

[46]
产舒恒, 陈子璇, 张戌园, 等. FSH和LH及其受体基因在梅山猪公猪HPT轴的表达[J]. 江苏农业科学, 2018, 46(1):23-26.

CHAN S H, CHEN Z X, ZHANG X Y, et al. Expression of FSH,LH,and their receptor genes in the hypothalamic-pituitary-testicular axis of Meishan boars[J]. Jiangsu Agricultural Sciences, 2018, 46(1):23-26. (in Chinese)

[47]
STRAUSS J F, BARBIERI R L. 生殖内分泌学[M].林守清,译. 5版. 北京: 人民卫生出版社, 2006:363-384.

STRAUSS J F, BARBIERI R L. Reproductive endocrinology[M]. LIN S Q,translated.5th ed. Beijing: People’s Medical Publishing House,2006:363-384. (in Chinese)

[48]
姚晓磊, 宋瑞高, 吕丽华, 等. 不同日龄犊牛睾丸中细胞周期调控基因CyclinB1和p34cdc2表达的差异[J]. 畜牧兽医学报, 2015, 46(2):245-250.

YAO X L, SONG R G, LV L H, et al. Expressions of cell cycle regulation genes CyclinB1 and p34cdc2 in the testes of calves aged on different days[J]. Acta Veterinaria et Zootechnica Sinica, 2015, 46(2):245-250. (in Chinese)

[49]
DE FALCO M, FEDELE V, COBELLIS L, et al. Pattern of expression of cyclin D1/CDK4 complex in human placenta during gestation[J]. Cell and Tissue Research, 2004, 317(2):187-194.

PMID

[50]
马友记, 卢曾奎, 张全伟, 等. CDK1和CyclinB1在不同月龄绵羊睾丸中的表达与定位[J]. 农业生物技术学报, 2016, 24(3):342-348.

MA Y J, LU Z K, ZHANG Q W, et al. Expression and cellular localization of CDK1 and CyclinB1 in the sheep (Ovis aires) testes of different months[J]. Journal of Agricultural Biotechnology, 2016, 24(3):342-348. (in Chinese)

[51]
TILBROOK A J, DE KRETSER D M, CLARKE I J. Influence of the degree of stimulation of the pituitary by gonadotropin-releasing hormone on the action of inhibin and testosterone to suppress the secretion of the gonadotropins in rams[J]. Biology of reproduction, 2001, 64(2):473-481.

PMID

文章导航

/