研究论文

基于转录组学技术探究葛根多糖缓解热应激致肉鸡肝脏损伤的保护作用及机制

  • 罗羽欣 , 1 ,
  • 丁瑜琰 1, * ,
  • 赵坤山 1, * ,
  • 郑伟剑 1 ,
  • 曾致 1 ,
  • 张瀚文 1 ,
  • 王郡东 1 ,
  • 蒲月婉 1 ,
  • 黄东璋 , 2, ** ,
  • 沈留红 , 1, **
展开
  • 1 四川农业大学动物医学院, 成都 611130
  • 2 江苏农牧科技职业学院, 泰州 225300
**黄东璋,副研究员,E-mail: ;
沈留红,教授,博士生导师,E-mail:

*同等贡献作者

罗羽欣(2000—),女,四川乐山人,硕士研究生,从事天然产物与兽医临床应用研究。E-mail:

Office editor: 武海龙

收稿日期: 2025-10-30

  网络出版日期: 2026-05-14

基金资助

江苏农牧科技职业学院科研项目(NSF2024ZR08)

江苏农牧科技职业学院科研项目(NSF2022ZR03)

四川省科学技术厅重点研发项目(2024YFFK0146)

国家自然科学基金资助项目(32473109)

四川农业大学本科科研兴趣项目(20251803)

Protective Effects and Mechanisms of Pueraria lobata Polysaccharides in Alleviating Heat Stress-Induced Liver Injury of Broilers Based on Transcriptomics Technology

  • LUO Yuxin , 1 ,
  • DING Yuyan 1 ,
  • ZHAO Kunshan 1 ,
  • ZHENG Weijian 1 ,
  • ZENG Zhi 1 ,
  • ZHANG Hanwen 1 ,
  • WANG Jundong 1 ,
  • PU Yuewan 1 ,
  • HUANG Dongzhang , 2, ** ,
  • SHEN Liuhong , 1, **
Expand
  • 1 College of Veterinary Medicine, Sichuan Agricultural University, Chengdu 611130, China
  • 2 Jiangsu Agri-Animal Husbandry Vocational College, Taizhou 225300, China
**HUANG Dongzhang, associate professor, E-mail: ;
SHEN Liuhong, professor, E-mail:

*Contributed equally

Received date: 2025-10-30

  Online published: 2026-05-14

摘要

本试验旨在基于转录组学技术探究葛根多糖缓解热应激致肉鸡肝脏损伤的保护作用及机制。选取120只1日龄爱拔益加(AA)白羽肉鸡,饲养至21日龄,随机分为4个组,每组6个重复,每个重复5只。对照组(NC组)和热应激组(HS组)饲喂基础饲粮,试验组在基础饲粮中分别添加100(PLP-L组)和400 mg/kg(PLP-H组)葛根多糖。HS组、PLP-L组和PLP-H组肉鸡在21~35日龄进行热应激处理。试验期35 d。结果表明:1)与NC组相比,HS组终末体重(FBW)、平均日增重(ADG)、平均日采食量(ADFI)和肝脏超氧化物歧化酶(SOD)、过氧化氢酶(CAT)活性显著降低(P<0.05),血清谷草转氨酶(AST)、谷丙转氨酶(ALT)活性以及肝脏丙二醛(MDA)、活性氧(ROS)、白细胞介素-6(IL-6)、白细胞介素-1β(IL-1β)、肿瘤坏死因子-α(TNF-α)含量和热休克蛋白70(HSP70)、热休克蛋白90(HSP90)蛋白表达水平显著升高(P<0.05)。2)与HS组相比,PLP-L组和PLP-H组血清AST、ALT活性以及肝脏ROS含量和HSP70、HSP90蛋白表达水平显著降低(P<0.05);PLP-L组FBW、ADG和肝脏SOD活性显著升高(P<0.05),肝脏MDA、IL-6、IL-1β、TNF-α含量显著降低(P<0.05)。3)转录组学分析结果表明,葛根多糖作用核心基因涉及17-β-羟基类固醇脱氢酶4(HSD17B4)、3-羟基酰辅酶A脱氢酶(EHHADH)等,核心通路集中于过氧化物酶体增殖物激活受体(PPARs)、脂肪酸代谢和脂肪酸降解信号通路。由此可见,葛根多糖可缓解热应激导致的肉鸡体重下降,提高生长性能、抗氧化能力和抗炎水平,改善肝脏组织结构;其机制可能是通过调控PPARs、脂肪酸代谢和脂肪酸降解等信号通路,介导相关基因表达而发挥作用。

本文引用格式

罗羽欣 , 丁瑜琰 , 赵坤山 , 郑伟剑 , 曾致 , 张瀚文 , 王郡东 , 蒲月婉 , 黄东璋 , 沈留红 . 基于转录组学技术探究葛根多糖缓解热应激致肉鸡肝脏损伤的保护作用及机制[J]. 动物营养学报, 2026 , 38(5) : 3387 -3402 . DOI: 10.12418/CJAN2026.271

Abstract

This experiment aimed to investigate the protective effects and mechanisms of Pueraria lobata polysaccharides in alleviating heat stress-induced liver injury of broilers based on transcriptomics technology. A total of 120 one-day-old Arbor Acres (AA) white feather broilers were reared to 21 days of age, then randomly divided into 4 groups with 6 replicates per group and 5 broilers per replicate. Broilers in control group (NC group) and heat stress group (HS group) were fed basal diets, and others in experimental groups were fed basal diets supplemented with 100 (PLP-L group) and 400 mg/kg (PLP-H group), respectively. Broiler chickens in HS group, PLP-L group, and PLP-H group were subjected to heat stress treatment at 21 to 35 days of age. The experiment lasted for 35 days. The results showed as follows: 1) compared with NC group, the final body weight (FBW), average daily gain (ADG), average daily feed intake (ADFI) and liver superoxide dismutase (SOD), catalase (CAT) activities of HS group were significantly decreased (P<0.05), and the serum aspartate aminotransferase (AST), alanine aminotransferase (ALT) activities and liver malondialdehyde (MDA), reactive oxygen species (ROS), interleukin-6 (IL-6), interleukin-1β (IL-1β), tumor necrosis factor-α (TNF-α) contents and heat shock protein 70 (HSP70), heat shock protein 90 (HSP90) protein expression levels were significantly increased (P<0.05). 2) Compared with HS group, the serum AST, ALT activities and liver ROS content and HSP70, HSP90 protein expression levels of PLP-L group and PLP-H group were significantly decreased (P<0.05); the FBW, ADG and liver SOD activity of PLP-L group were significantly increased (P<0.05), and the liver MDA, IL-6, IL-1β and TNF-α contents were significantly decreased (P<0.05). 3) The transcriptomics analysis results indicated that the core genes involved in the action of Pueraria lobata polysaccharides included 17-beta-hydroxysteroid dehydrogenase 4 (4HSD17B4) and 3-hydroxyacyl CoA dehydrogenase (EHHADH) et al, and the core pathways were mainly concentrated in peroxisome proliferator-activated receptors (PPARs), fatty acid metabolism and fatty acid degradation signaling pathways. In conclusion, the Pueraria lobata polysaccharides can alleviate the weight loss of broilers caused by heat stress, improve growth performance, antioxidant capacity and anti-inflammatory level, and improve liver tissue structure; the mechanism may be by regulating PPARs, fatty acid metabolism and fatty acid degradation signaling pathways and mediating the expression of related genes.

随着高密度饲养模式发展和夏季高温的影响,热应激(heat stress,HS)已成为畜牧业可持续发展的制约因素之一[1]。肉鸡对高温敏感,在养殖过程中更易受热应激影响[2]。热应激可引起肉鸡肝脏抗氧化酶活性下降,线粒体功能异常,呼吸链受损,活性氧(reactive oxygen species,ROS)生成增加且清除能力减弱,诱导肉鸡处于氧化应激状态,并进一步导致肝脏损伤和代谢紊乱[3-4]。肝脏线粒体为脂质代谢中心,其功能障碍会抑制肝脏脂质分解代谢,造成脂质累积,最终加剧氧化应激进程[5]。目前,缓解肉鸡热应激的常用措施有环境管理和添加维生素、电解质等。然而,环境管理效果不稳定;维生素和电解质多为短期补充,成本高昂,且长期使用可能造成体内电解质失衡或产生耐受性[6-7]。因此,开发能够有效缓解肉鸡热应激且增强其抗氧化能力的天然植物提取物作为饲料添加剂,对保障肉鸡健康和产品安全具有重要意义。
植物及其提取物在促进动物生长方面已有较多研究报道[8-9]。葛根作为一种天然药食同源植物,富含多糖、异黄酮类、多酚等,葛根多糖(Pueraria lobata polysaccharide,PLP)是其主要生物活性成分,具有抗氧化、抗炎和调节免疫等作用[10];并可通过调节脂质代谢、减少脂质蓄积,发挥肝脏保护作用[11]。课题组前期研究表明,葛根多糖可有效提高犊牛抗氧化能力,增强免疫功能,减轻炎性反应,调节肠道功能,从而促进其生长发育[12]。葛根多糖生物学功能与肉鸡氧化应激状态下需求密切吻合,具有改善热应激环境下肉鸡氧化应激的潜在价值。目前,尚无关于葛根多糖缓解热应激白羽肉鸡肝脏损伤的研究报道。因此,本试验旨在研究葛根多糖对热应激肉鸡肝脏损伤的影响,并初步探讨其作用机制,为开发葛根多糖作为缓解肉鸡热应激的饲料添加剂提供理论支持。

1 材料与方法

1.1 伦理声明

本研究获四川农业大学实验动物福利与伦理委员会批准(批准号:2023303166)。

1.2 试验材料

葛根多糖由四川省成都市某生物科技有限公司提供,纯度40.00%,添加量以葛根多糖含量计。

1.3 试验设计

选取120只1日龄爱拔益加(AA)白羽肉鸡,平均体重为(42.31±0.94) g,饲养至21日龄,随机分为4个组,每组6个重复,每个重复5只。对照组(NC组)和热应激组(HS组)饲喂基础饲粮,试验组在基础饲粮中分别添加100(PLP-L组)和400 mg/kg(PLP-H组)葛根多糖。HS组、PLP-L组和PLP-H组肉鸡在21~35日龄进行热应激处理。试验期35 d。
参照《鸡饲养标准》(NY/T 33—2004)配制基础饲粮,其组成及营养水平见表1。饲粮中代谢能和有效磷含量参照《中国饲料成分及营养价值表(2020年第31版)》计算,粗蛋白质、钙、氨基酸含量分别参照GB/T 6432—2018、GB/T 6436—2018、GB/T 18246—2019的方法测定。
表1 基础饲粮组成及营养水平(风干基础)

Table 1 Composition and nutrient levels of basal diets (air-dry basis)%

项目
Items
1~21日龄
1 to 21
days of age
22~35日龄
22 to 35
days of age
原料 Ingredients
玉米 Corn 54.02 59.11
豆油 Soybean oil 3.53 4.33
豆粕 Soybean meal 38.19 32.68
赖氨酸盐酸盐
Lys·HCl (78.8%)
0.15 0.12
石粉 Limestone 1.20 1.14
二水合磷酸氢钙
CaHPO4·2H2O
1.88 1.61
DL-蛋氨酸
DL-Met (98.5%)
0.20 0.18
食盐 NaCl 0.40 0.40
氯化胆碱 Choline chloride 0.15 0.15
维生素预混料 Vitamin premix1) 0.03 0.03
矿物质预混料 Mineral premix2) 0.20 0.20
砻糠 Rice chaff 0.01 0.01
米糠 Rice bran 0.04 0.04
合计 Total 100.00 100.00
营养水平 Nutrient levels3)
代谢能 ME/(MJ/kg) 12.34 12.76
粗蛋白质 CP 21.00 19.00
钙 Ca 1.00 0.90
有效磷 AP 0.45 0.40
赖氨酸 Lys 1.15 1.01
蛋氨酸 Met 0.50 0.46
蛋氨酸+半胱氨酸Met+Cys 0.83 0.76

1)维生素预混料为每千克饲粮提供 The vitamin premix provided the following per kg of diets:VA 12 500 IU,VD 3 000 IU,VE 18.75 IU,VK3 3 mg,VB1 1 mg,VB28 mg,VB5 15 mg,VB6 2 mg,叶酸 folic acid 1.05 mg,烟酸 nicotinic acid 30 mg,生物素 biotin 0.14 mg。

2)矿物质预混料为每千克饲粮提供 The mineral premix provided the following per kg of diets: Fe (FeSO4·H2O) 119.8 mg,Cu (CuSO4·5H2O) 8.14 mg,Mn (MnSO4·H2O) 122.7 mg,Zn (ZnSO4·H2O) 105.6 mg,I (KIO3) 0.35 mg,Se (Na2SeO3) 0.35 mg。

3)代谢能和有效磷为计算值,其他营养水平为测定值。ME and AP were calculated values, while the other nutrient levels were measured values.

1.4 饲养管理

试验于2024年8—9月在四川农业大学张家山园区动物房进行。饲养前对动物房进行严格清洗消毒、熏蒸和通风。采用网上平养,期间自由采食和饮水,每日记录各组饲粮添加量和前1天剩余量。所有动物试验程序均按《中华人民共和国国务院实验动物管理条例》执行。NC组每日温度设置为(24±2) ℃,相对湿度为50%~60%;HS组、PLP-L组和PLP-H组每日温度设置为(32±2) ℃,相对湿度为60%~70%。温度使用电暖器(HFV-20E,广州美的电器制造有限公司)和养殖加热灯(MGD-3,中山市亚红灯饰有限公司)共同控制,湿度使用喷雾和加湿器(MH-L395,长虹美菱电器制造有限公司)共同控制,于每日09:00开始升温,1 h达到目标温度,维持至18:00结束,每日热应激维持9 h,为期14 d。参照《肉仔鸡饲养管理手册》进行免疫程序接种。

1.5 样本采集和处理

于肉鸡21、35日龄称重(称重前12 h断粮处理,自由饮水),35日龄体量记为终末体重(final body weight,FBW)。每组随机抽取6只肉鸡,采集右侧翅静脉血5 mL至无抗凝管中,室温静置30 min后4 ℃、975×g离心10 min分离血清。每组随机抽取6只肉鸡,颈部放血处死,迅速分离肝脏组织,称取肝脏重。迅速采集部分肝脏左叶样品,10%多聚甲醛磷酸盐缓冲液(pH 7.2)和4%戊二醛固定,用于组织切片制作;随后取部分肝脏右叶样品,切割分装于1.5 mL冻存管中,液氮速冻后放入-80 ℃冰箱保存备用,用于肝脏抗氧化、炎性因子指标及蛋白、基因表达检测。

1.6 指标测定

1.6.1 生长性能

计算21~35日龄平均日增重(average daily gain,ADG)、平均日采食量(average daily feed intake,ADFI)和料重比(feed to gain ratio,F/G)。

1.6.2 肝脏指数和总蛋白含量检测

取肝脏样本于电子天平(JM-A30002,诸暨市超泽衡器设备有限公司)上精确称取,按以下公式计算肝脏指数:

肝脏指数(%)=(肝脏重/体重)×100。

加入预冷的生理盐水(质量∶体积=1∶9),冰浴条件下使用电动匀浆器(FSH-2A,常州越新仪器制造有限公司)将肝脏组织充分研磨,低温超速离心(7 950×g,4 ℃,15 min),取上清液,随即使用BCA试剂盒(A045-3,南京建成生物工程研究所)测定总蛋白含量。

1.6.3 血清生化指标

血清谷草转氨酶(aspartate aminotransferase,AST)、谷丙转氨酶(alanine aminotransferase,ALT)活性及白蛋白(albumin,ALB)、葡萄糖(glucose,GLU)、甘油三酯(triglycerides,TG)含量采用全自动生化分析仪(SMT-120VP,成都斯马特科技有限公司)进行检测。

1.6.4 肝脏组织形态

取4%多聚甲醛中固定24 h后的肝脏样本,依次进行乙醇梯度脱水、二甲苯透明、石蜡包埋、烘箱固化,苏木精-伊红(HE)染色后进行镜检。

1.6.5 肝脏抗氧化和炎性因子指标

肝脏过氧化氢酶(catalase,CAT)、谷胱甘肽过氧化物酶(glutathione peroxidase,GSH-Px)、超氧化物歧化酶(superoxide dismutase,SOD)活性和谷胱甘肽(glutathione,GSH)、丙二醛(malondialdehyde,MDA)含量均采用生化试剂盒(南京建成生物工程研究所)测定,肿瘤坏死因子-α(tumor necrosis factor-α,TNF-α)、白细胞介素-1β(interleukin-1β,IL-1β)、白细胞介素-6(interleukin-6,IL-6)和ROS含量均采用酶联免疫吸附测定(ELISA)试剂盒(江苏酶免实业有限公司)测定。

1.6.6 热休克蛋白表达

肝脏总蛋白含量检测后进行变性,冷却后放入-20 ℃备用。配制分离胶和浓缩胶,待凝固后转移至电泳槽上样,设置十二烷基磺酸钠-聚丙烯酰胺凝胶(SDS-PAGE)电泳程序,浓缩胶电压90 V,分离胶电压150 V,电泳至底部1 cm终止。取出凝胶进行转膜。将转印成功的聚偏二氟乙烯(PVDF)膜进行热休克蛋白70(heat shock protein 70,HSP70)和热休克蛋白90(heat shock protein 90,HSP90)抗体及二抗孵育,完成回收后进行洗涤,使用凝胶成像系统及软件对PVDF膜化学发光成像,ImageJ统计灰度值进行数据分析。

1.6.7 肝脏转录组学

1.6.7.1 RNA提取和转录组测序技术分析

取NC、HS、PLP-L组肝脏样本,通过TRIzol®试剂(广州美基生物科技有限公司)提取总RNA,进行样品质量检测,合格RNA样品进行聚合酶链式反应(polymerase chain reaction,PCR)扩增,并评估构建文库的质量。文库质检后在NovaSeq 6000 PE150平台上机测序。

1.6.7.2 差异表达基因(differentially expressed genes,DEGs)筛选和功能富集

转录表达水平用FPKM值表示,使用R语言的DESeq 2软件包进行组间差异表达计算。以|log2差异倍数(FC)|>0.58、P<0.05为阈值筛选DEGs,同时使用微生信平台进行GO功能和KEGG通路富集分析,P<0.05为显著性富集阈值。

1.6.7.3 DEGs蛋白质-蛋白质交互作用(protein-protein interactions,PPI)网络分析

利用STRING数据库(https://string-db.org)对DEGs进行PPI网络分析(置信度得分>0.7),利用Cytoscape软件(版本3.10)对PPI网络进行可视化,生成PPI网络图。

1.6.7.4 实时荧光定量PCR(qRT-PCR)

为验证转录组测序技术基因表达准确性,随机挑选8个DEGs,利用Primer 5软件进行引物设计(表2),引物由生工生物工程(上海)股份有限公司成都分公司合成。使用RNA Easy Fast Tissue Kit(DP451)从肝脏组织中提取样本总RNA,FastKing gDNA Dispelling RT SuperMix(KR118)反转录为cDNA,FastReal qPCR PreMix(SYBR Green)(FP217)测定mRNA相对定量,以上试剂均由天根生化科技(北京)有限公司提供。随后使用荧光定量PCR仪(CFX,美国Bio-Rad公司)进行扩增,条件如下:95 ℃预变性2 min;95 ℃变性5 s,60 ℃退火/延伸15 s(40个循环)。采用2-ΔΔCt法对结果进行分析。
表2 引物序列信息

Table 2 Primer sequence information

基因
Genes
序列
Sequences (5'—3')
产物长度
Product length/bp
登录号
Accession number
Toll样受体4
TLR4
F: CTTCTGTCCTGTCTCCCACC
R: CTTTTCACTTTGCCCAGCCC
93 NM_001030693.2
精氨酸应答因子
RSFR
F: ATGAGCTCCCTGTGGTGGA
R: TTGGGAACGATGTCTTCGGG
124 XM_046942845.1
淋巴细胞质蛋白2
LCP2
F: TCATTTGGGGGAAGAGGTGC
R: GGGGTTTCGTGCTTCTGTCT
118 NM_204701.2
组织蛋白酶S
CTSS
F: CTCACACGCAGCCCCAC
R:CATCACAGCCACCAGAGTGA
81 NM_001031345.2
钙调节热稳定蛋白1
CARHSP1
F:TGATAAGTGTCTGCTGTGGCATT
R:TCCATCCAGAGGCAAGTCTAGTA
132 XM_040647497.2
蛋白酪氨酸磷酸酶受体C
PTPRC
F:TGTGCCAGGATGCTTTTGC
R:GTGGAGCGTGTAGGTGTAGG
91 XM_046944231.1
三功能多酶复合体β亚基
HADHB
F:TTTGCTCACCCTGAACCGAG
R:GCAGAGTGCCCCATAGTCTC
135 NM_001389485.2
整合素β2
ITGB2
F:CGGCAAAATGAATGCAGCCT
R:GCCTGCCACAGGGTGAG
118 NM_001396549.1
甘油醛-3-磷酸脱氢酶
GAPDH
F:ACTTTGGCATTGTGGAGGGT
R:GGACGCTGGGATGATGTTCT
82 NM_204305.2

1.7 统计分析

试验数据采用GraphPad Prism 10.1.2软件和SPSS 27.0软件进行统计分析,采用单因素方差分析(one-way ANOVA)检验独立样本均值间显著性差异,使用LSD法进行事后多重比较。所有数据均用平均值±标准差表示。P>0.05为差异不显著,P<0.05为差异显著。

2 结果与分析

2.1 葛根多糖对热应激肉鸡生长性能和肝脏指数的影响

表3可知,与NC组相比,HS组FBW、ADG、ADFI显著降低(P<0.05),肝脏指数显著升高(P<0.05)。与HS组相比,PLP-L组FBW、ADG显著升高(P<0.05),肝脏指数显著降低(P<0.05),ADFI无显著差异(P>0.05);PLP-H组FBW、ADG、ADFI、肝脏指数无显著差异(P>0.05)。各组之间F/G无显著差异(P>0.05)。
表3 葛根多糖对热应激肉鸡生长性能和肝脏指数影响

Table 3 Effects of PLP on growth performance and liver index of broilers under heat stress

项目
Items
组别 Groups P
P-value
NC HS PLP-L PLP-H
21日龄体重 BW at 21 days of age/g 792.31±34.17 794.14±33.17 787.20±29.13 779.85±19.46 0.699
终末体重 FBW/g 2 018.98±55.99a 1 637.45±66.95c 1 751.31±32.00b 1 688.03±36.01c <0.001
平均日增重 ADG/g 87.85±1.84a 58.34±5.61c 67.95±4.15b 63.16±3.25c <0.001
平均日采食量 ADFI/g 149.05±9.91a 115.93±8.08b 124.08±7.38b 120.65±6.96b 0.005
料重比 F/G 1.70±0.14 2.01±0.31 1.81±0.13 1.92±0.14 0.304
肝脏指数 Liver index/% 1.99±0.11b 2.26±0.20a 2.01±0.02b 2.08±0.25ab 0.049

同行数据肩标不同小写字母表示差异显著(P<0.05),相同或无字母表示差异不显著(P>0.05)。下表同。

In the same row, values with different small letter superscripts mean significant difference (P<0.05), while with the same or no letter superscripts mean no significant difference (P>0.05). The same as below.

2.2 葛根多糖对热应激肉鸡血清生化指标的影响

表4可知,与NC组相比,HS组血清AST、ALT活性和TG含量显著升高(P<0.05)。与HS组相比,PLP-L组和PLP-H组血清AST、ALT活性和TG含量显著降低(P<0.05)。各组之间血清ALB、GLU含量无显著差异(P>0.05)。
表4 葛根多糖对热应激肉鸡血清生化指标的影响

Table 4 Effects of PLP on serum biochemical indexes of broilers under heat stress

项目
Items
组别 Groups P
P-value
NC HS PLP-L PLP-H
谷草转氨酶 AST/(U/L) 239.50±0.55c 312.17±0.51a 265.50±0.54b 263.67±0.94b <0.001
谷丙转氨酶 ALT/(U/L) 12.00±0.82b 15.50±0.96a 12.00±1.63b 11.00±1.29b <0.001
白蛋白 ALB/(g/L) 16.90±0.58 17.90±0.76 16.55±0.92 17.60±1.59 0.124
葡萄糖 GLU/(mmol/L) 12.09±0.87 12.75±0.61 13.04±0.65 12.41±0.51 0.113
甘油三酯 TG/(mmol/L) 0.44±0.08c 0.77±0.12a 0.52±0.05bc 0.56±0.04b <0.001

2.3 葛根多糖对热应激肉鸡肝脏组织形态的影响

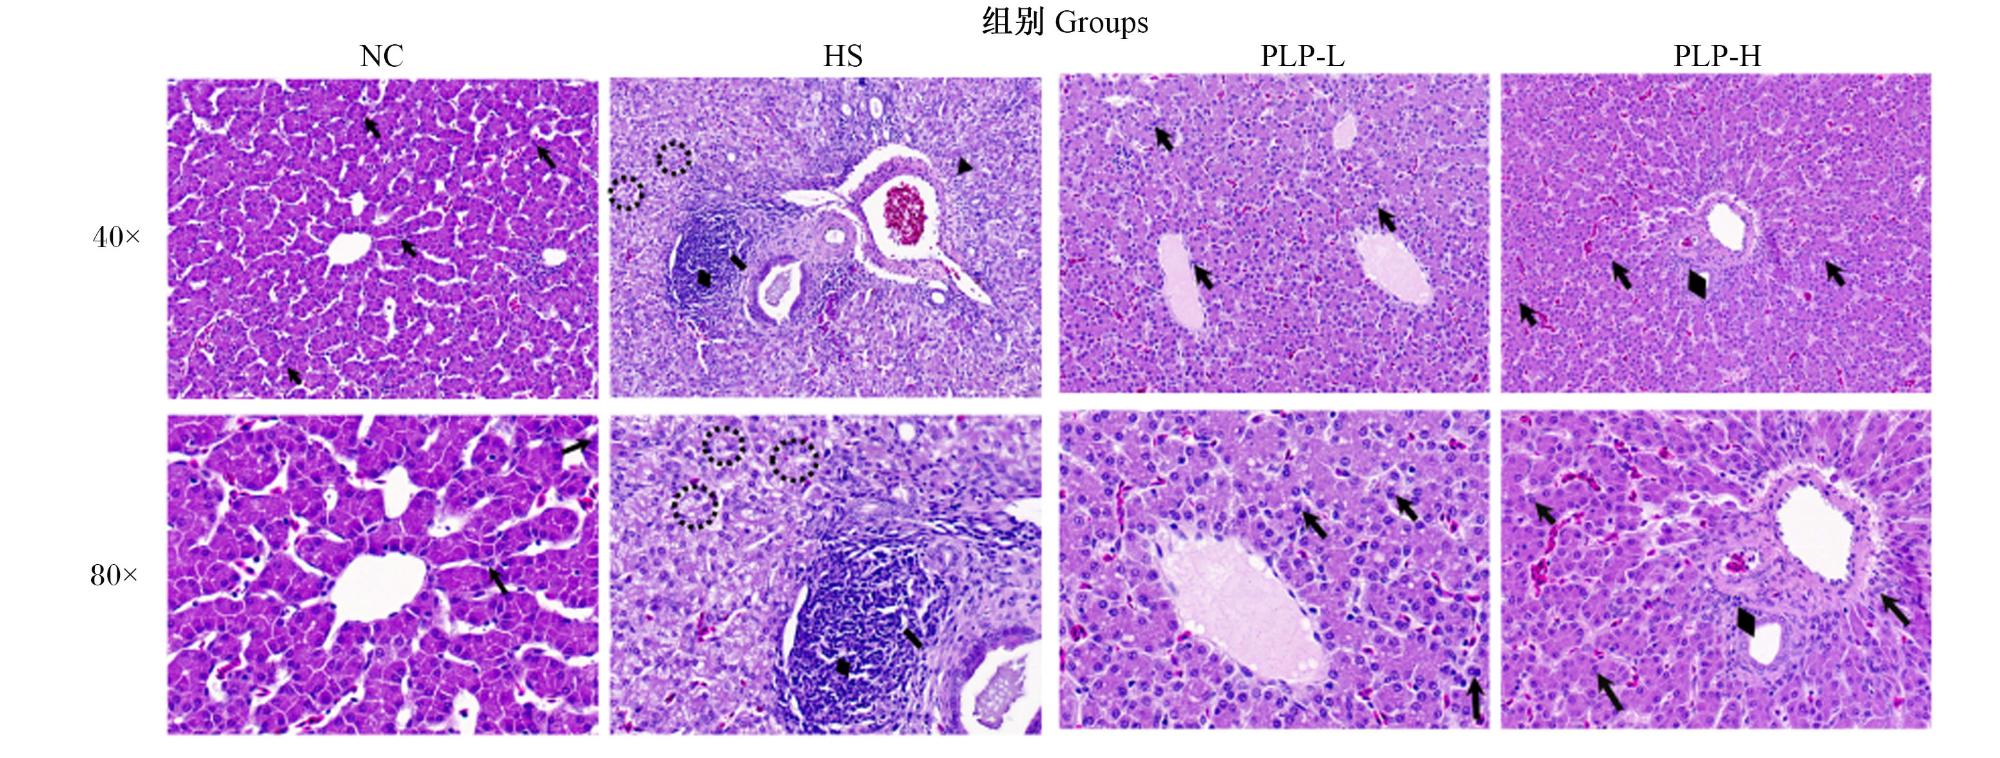
图1可知,NC组肝细胞围绕中央静脉呈辐射状,结构形态完整,呈现典型肝小叶结构,核形态规则,肝索排列整齐,整体未见病理性损伤或坏死迹象;与NC组相比,HS组肝细胞排列紊乱,可见部分肝细胞水肿和轻度坏死,炎性细胞浸润和脂肪变性;与HS组相比,PLP-L组和PLP-H组肝细胞排列整齐,细胞肿胀与炎性细胞浸润显著减少,基本恢复正常结构,但PLP-H组仍存在少量肝细胞轻度坏死。
图1 肝脏HE染色

“→”表示双核肝细胞,“▲”表示肝细胞水肿,“□”表示炎性细胞浸润,“◆”表示肝细胞坏死,“○”表示轻微脂肪变性。

Fig.1 Liver HE stain

“→” indicated binuclear hepatocytes,“▲” indicated hepatocyte edema,“□” indicated inflammatory cell infiltration,“◆”indicated hepatocyte necrosis, “○” indicated mild fatty degeneration.

2.4 葛根多糖对热应激肉鸡肝脏氧化和炎性因子指标的影响

表5可知,与NC组相比,HS组肝脏MDA、ROS、IL-6、IL-1β、TNF-α含量显著升高(P<0.05),肝脏SOD、CAT活性显著降低(P<0.05)。与HS组相比,PLP-L组肝脏MDA、ROS、IL-6、IL-1β、TNF-α含量显著降低(P<0.05),肝脏SOD活性显著升高(P<0.05),肝脏CAT活性无显著差异(P>0.05);PLP-H组肝脏ROS含量显著降低(P<0.05),肝脏MDA、IL-6、IL-1β、TNF-α含量和SOD、CAT活性无显著差异(P>0.05)。各组之间肝脏GSH含量和GSH-Px活性无显著差异(P>0.05)。
表5 葛根多糖对热应激肉鸡肝脏抗氧化和炎性因子指标的影响

Table 5 Effects of PLP on liver antioxidant and inflammatory factor indexes of broilers under heat stress

项目
Items
组别 Groups P
P-value
NC HS PLP-L PLP-H
丙二醛 MDA/(nmol/mg prot) 0.63±0.18c 1.30±0.25a 1.05±0.16b 1.24±0.18ab <0.001
活性氧 ROS/(ng/mg prot) 0.34±0.06c 0.78±0.04a 0.45±0.09b 0.39±0.11bc 0.001
超氧化物歧化酶 SOD/(U/mg prot) 24.39±0.79a 16.71±1.02b 22.31±0.81a 20.02±0.82ab 0.032
过氧化氢酶 CAT/(U/mg prot) 2.85±0.28a 2.01±0.45b 2.30±0.13b 2.27±0.34b 0.002
谷胱甘肽过氧化物酶 GSH-Px/(U/mg prot) 71.79±11.49 55.95±6.69 62.73±6.20 59.30±11.29 0.154
谷胱甘肽 GSH/(mg/g prot) 61.31±6.85 56.93±9.05 67.35±4.89 63.25±10.93 0.680
白细胞介素-1β IL-1β/(pg/mg prot) 14.72±1.23b 16.77±2.11a 15.25±1.04b 15.36±1.84ab 0.013
白细胞介素-6 IL-6/(pg/mg prot) 6.15±1.05b 8.14±0.87a 6.12±1.17b 6.95±0.61a 0.011
肿瘤坏死因子-α TNF-α/(pg/mg prot) 9.21±0.19bc 13.05±1.16a 10.01±0.16c 12.64±0.60ab 0.010

2.5 葛根多糖对热应激肉鸡肝脏HSP70、HSP90蛋白表达的影响

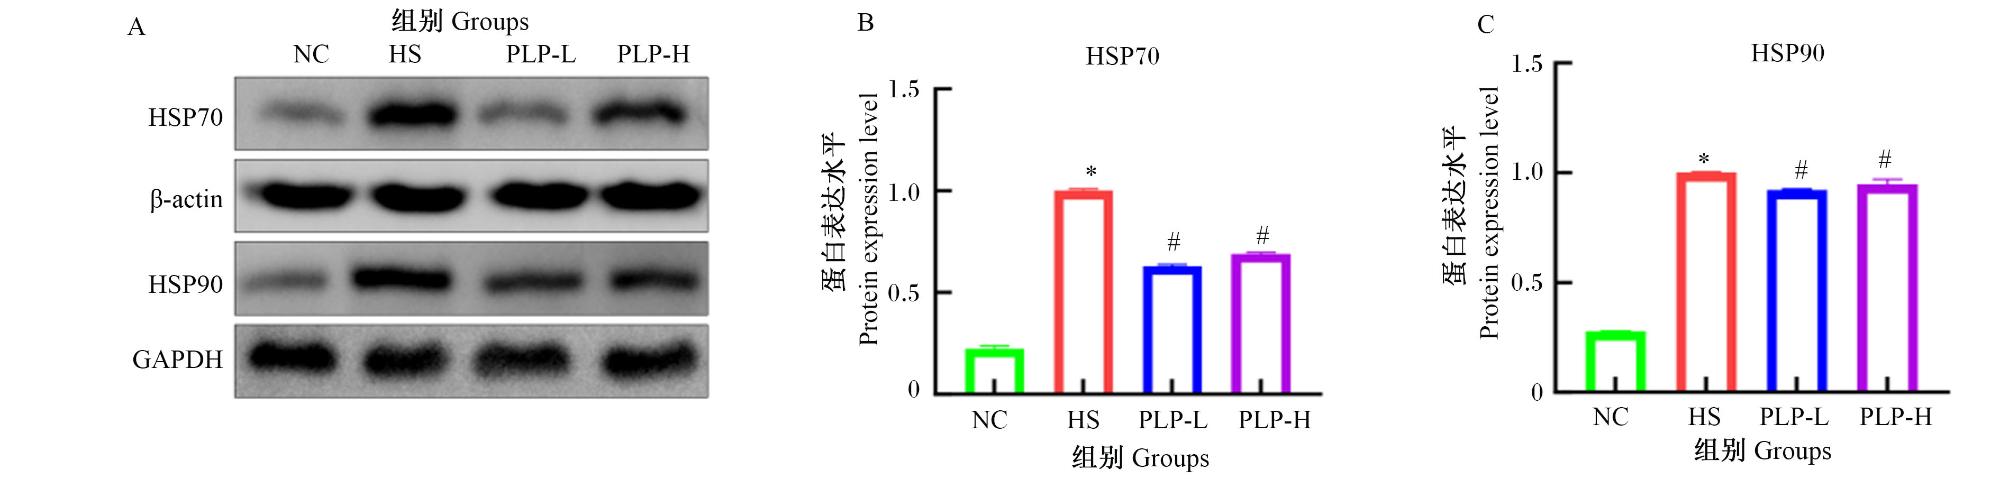
图2可知,与NC组相比,HS组肝脏HSP70、HSP90蛋白表达水平显著升高(P<0.05)。与HS组相比,PLP-L组和PLP-H组肝脏HSP70、HSP90蛋白表达水平显著降低(P<0.05)。
图2 葛根多糖对热应激肉鸡肝脏HSP70、HSP90蛋白表达的影响

HSP70:热休克蛋白70 heat shock protein 70;β-actin:β-肌动蛋白;HSP90:热休克蛋白90 heat shock proteins 90;GAPDH:甘油醛-3-磷酸脱氢酶 glyceraldehyde-3-phosphate dehydrogenase。

“*”表示与NC组相比差异显著(P<0.05);“#”表示与HS组相比差异显著(P<0.05)。图7同。“*” indicated significant differences compared with NC group (P<0.05), and “#” indicated significant differences compared with HS group (P<0.05). The same as Fig.7.

Fig.2 Effects of PLP on liver HSP70 and HSP90 protein expression of broilers under heat stress

综上结果表明,PLP-L组热应激肉鸡生长性能及肝脏功能、组织结构、抗氧化和炎症因子等指标优于PLP-H组,最终确定适宜葛根多糖添加剂量为100 mg/kg。因此,选取PLP-L组用于后续转录组学检测。

2.6 葛根多糖对热应激肉鸡肝脏DEGs的影响

2.6.1 肉鸡肝脏DEGs分析和筛选

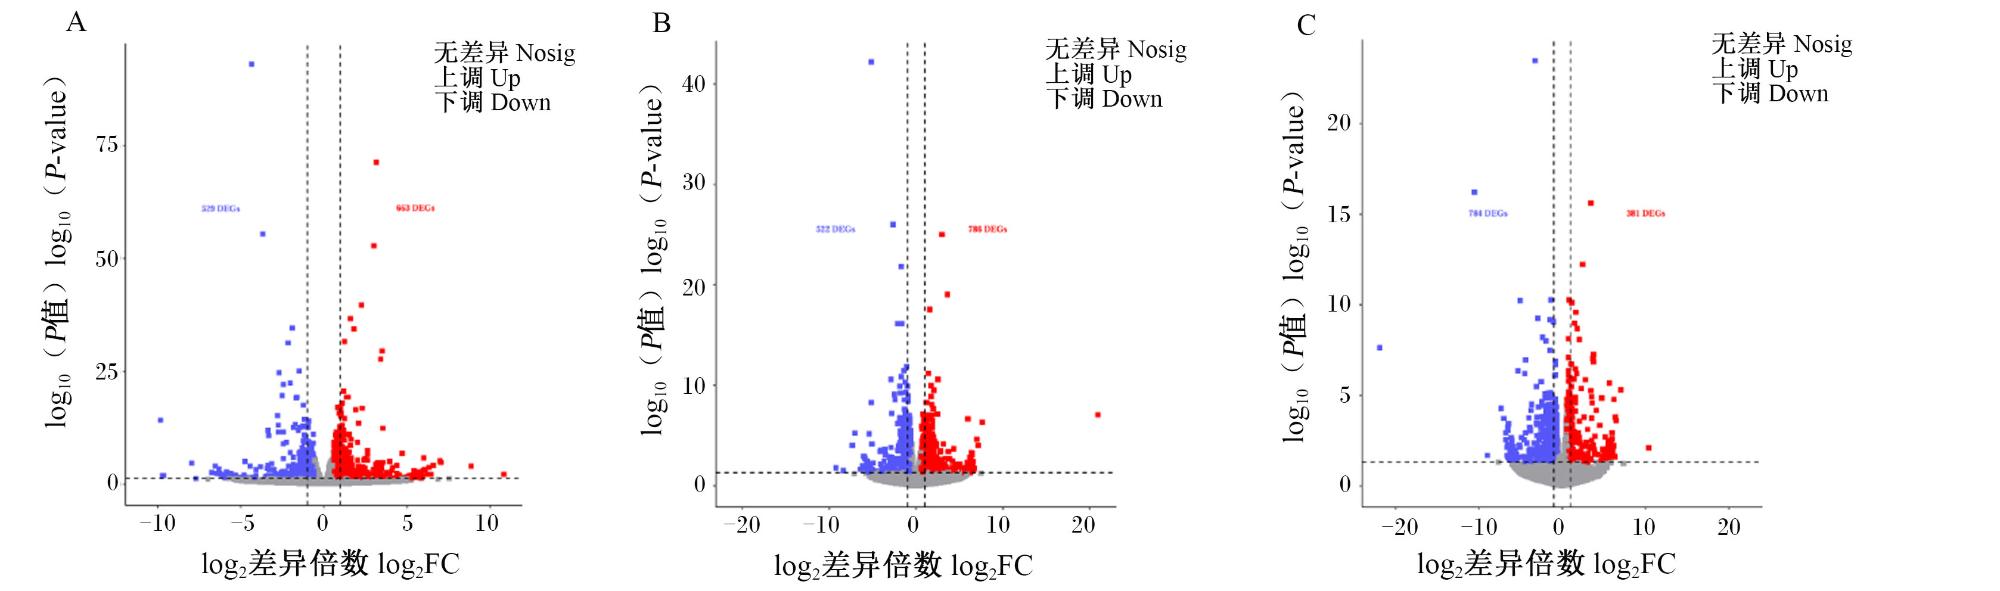
以|log2FC|>0.58、P<0.05标准筛选DEGs,DEGs分析结果见表6。以log2FC为横坐标,log10(P值)为纵坐标,对不同组间DEGs进行可视化,绘制了DEGs火山图(图3)。
表6 DEGs分析结果

Table 6 Analysis results of DEGs

项目
Items
上调的基因
Up-regulated genes
下调的基因
Down-regulated genes
合计
Total
PLP-L组vs NC组 PLP-L group vs NC group 663 529 1 192
HS组vs NC组 HS group vs NC group 786 522 1 308
PLP-L组vs HS组 PLP-L group vs HS group 381 784 1 165
图3 DEGs火山图

A:HS组vs NC组DEGs火山图;B:PLP-L组vs HS组DEGs火山图;C:PLP-L组vs NC组DEGs火山图。

Fig.3 Volcano plot of DEGs

A: HS group vs NC group volcano plot of DEGs; B: PLP-L group vs HS group volcano plot of DEGs; C: PLP-L group vs NC group volcano plot of DEGs.

2.6.2 PPI网络构建与分析

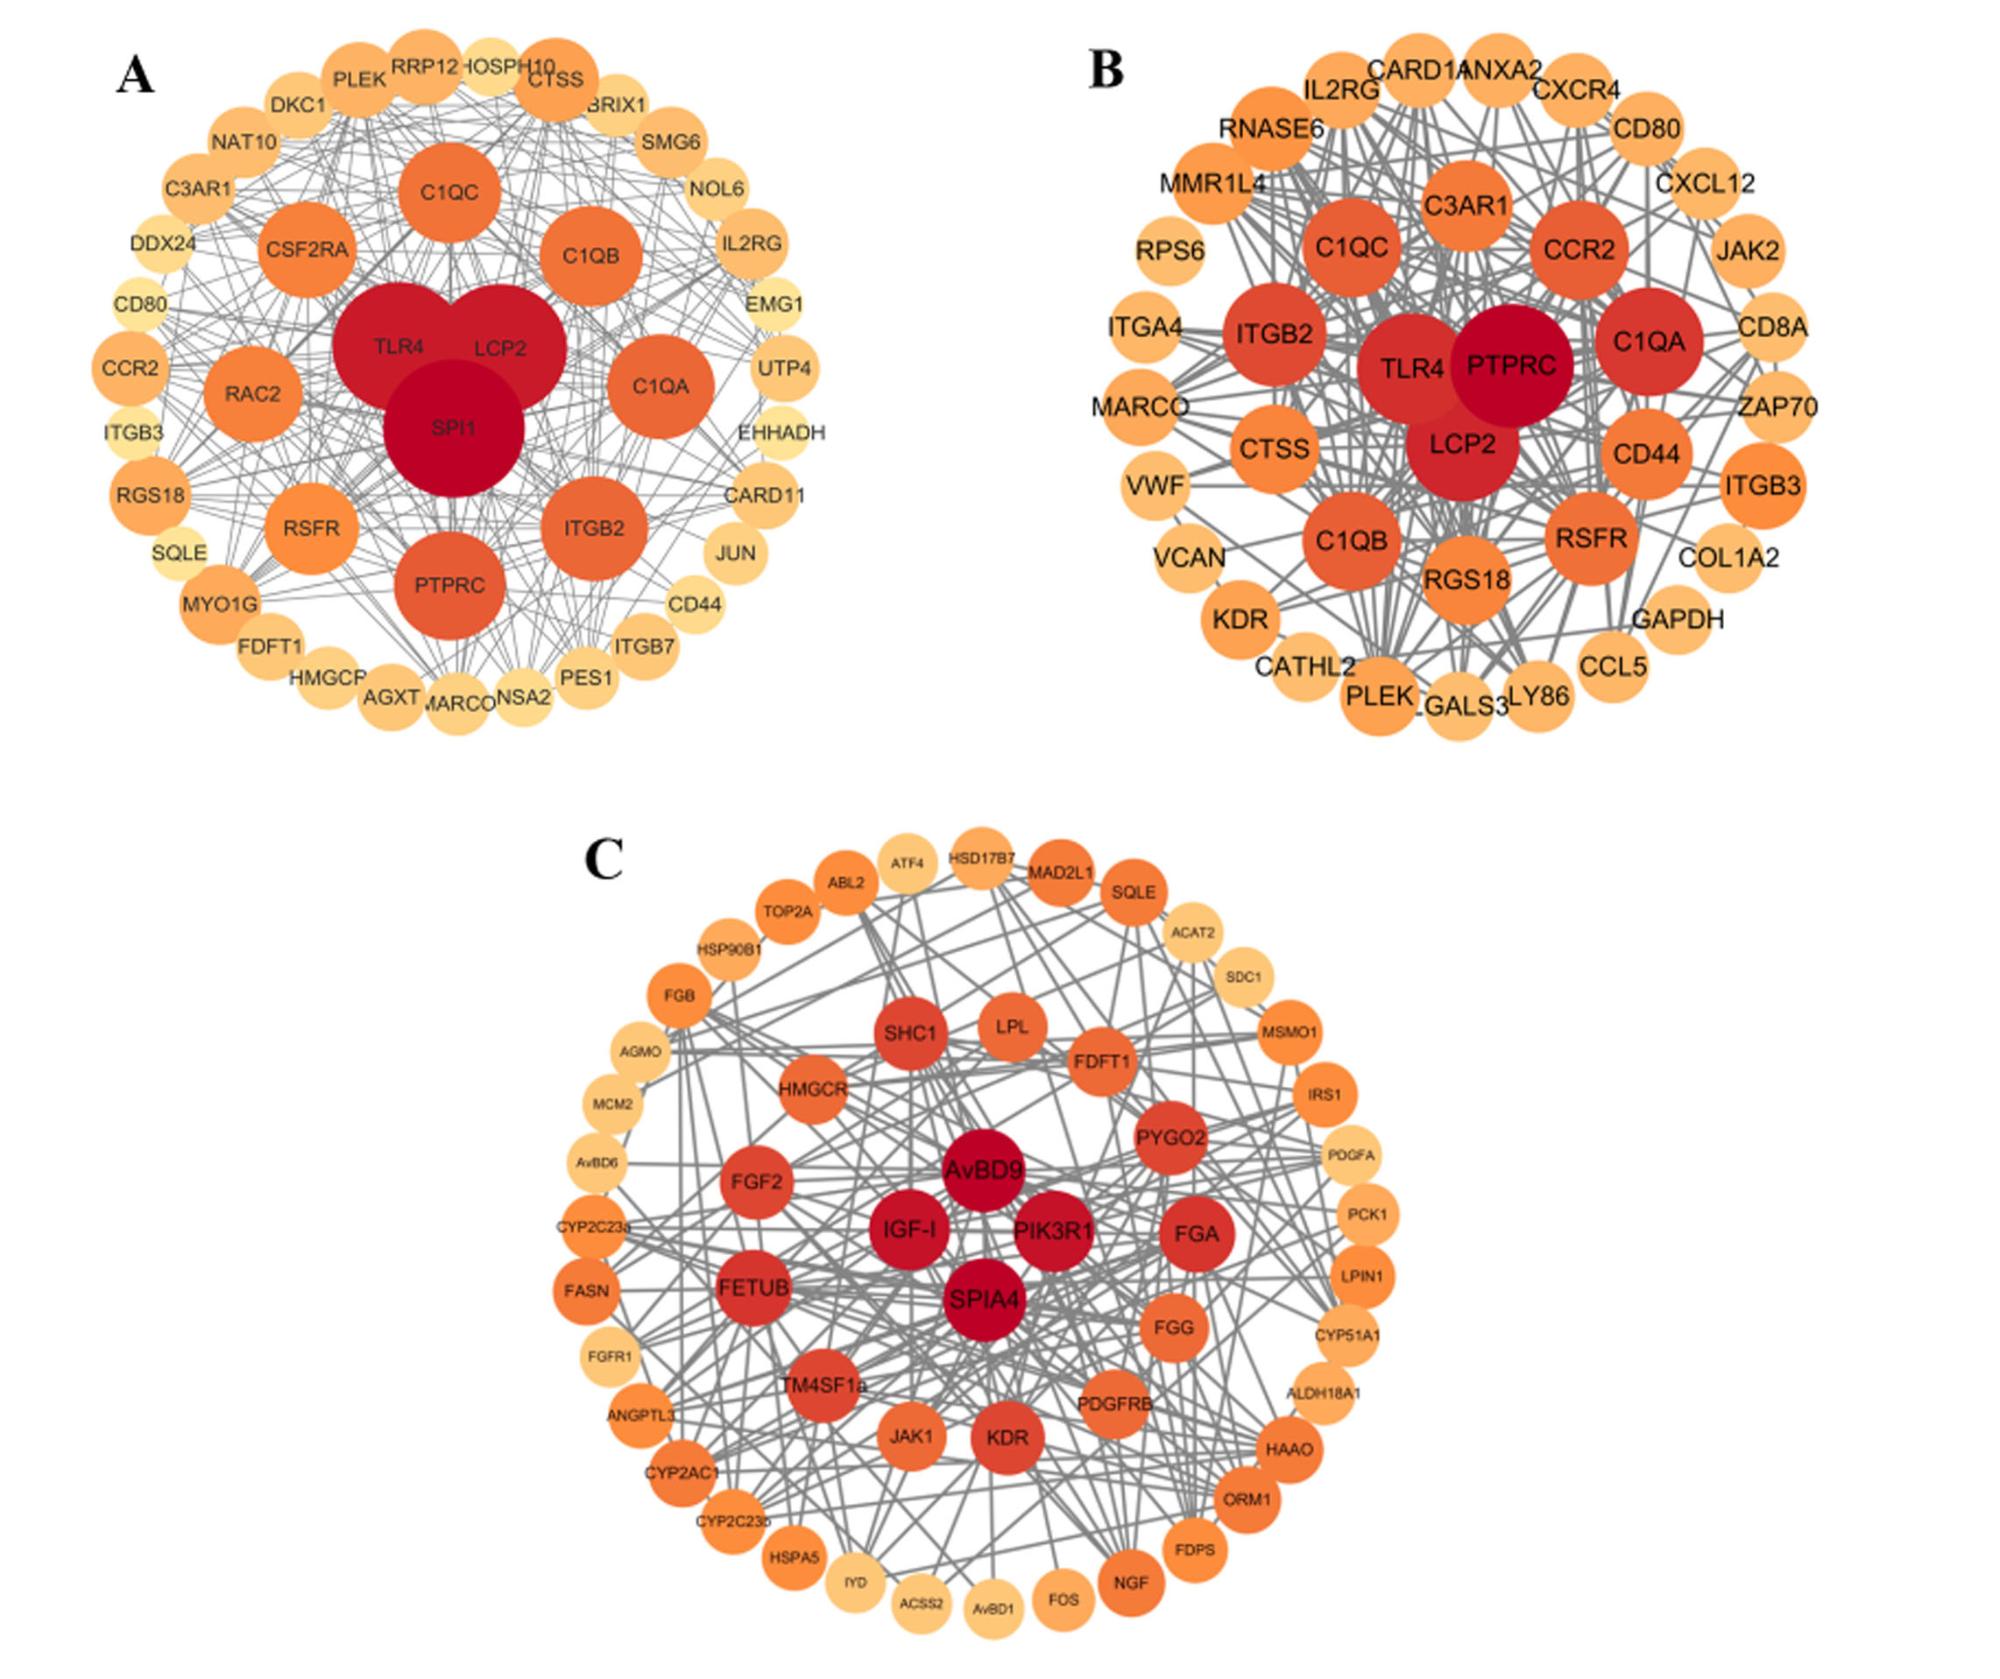
利用STRING数据库对DEGs进行PPI分析,并使用Cytoscape软件生成PPI网络图。由图4可知,节点大小和颜色依据中心度值(Degree)设定,即该靶点的重要程度。HS组vs NC组中,Spi-1原癌基因(SPI1)等基因Degree较大(图4-A);PLP-L组vs HS组中,蛋白酪氨酸磷酸酶受体C(PTPRC)等基因Degree较大(图4-B);PLP-L组vs NC组中,磷脂酰肌醇-3-激酶调节亚基1(PIK3R1)等基因Degree较大(图4-C)。
图4 PPI网络图

仅注释核心靶点 only annotated core targets。TLR4:Toll样受体4 Toll-like receptor 4;LCP2:淋巴细胞质蛋白2 lymphocyte cytosolic protein 2;SPI1:Spi-1原癌基因 Spi-1 proto oncogene;PTPRC:蛋白酪氨酸磷酸酶受体C protein tyrosine phosphatase receptor C;IGF-1:胰岛素样生长因子-1 insulin like growth factor-1;AvBD9:禽β-防御素9 avian β-defensin 9;SPIA4:Spi-1原癌基因转录变体4 Spi-1 proto oncogene transcript variant 4;PIK3R1:磷脂酰肌醇-3-激酶调节亚基1 phosphatidylinositol-3-kinase regulatory subunit 1。

A:HS组vs NC组PPI网络图;B:PLP-L组vs HS组PPI网络图;C:PLP-L组vs NC组PPI网络图。A: HS group vs NC group PPI network diagram; B: PLP-L group vs HS group PPI network diagram; C: PLP-L group vs NC group PPI network diagram.

Fig.4 PPI network diagram

2.6.3 GO功能富集分析

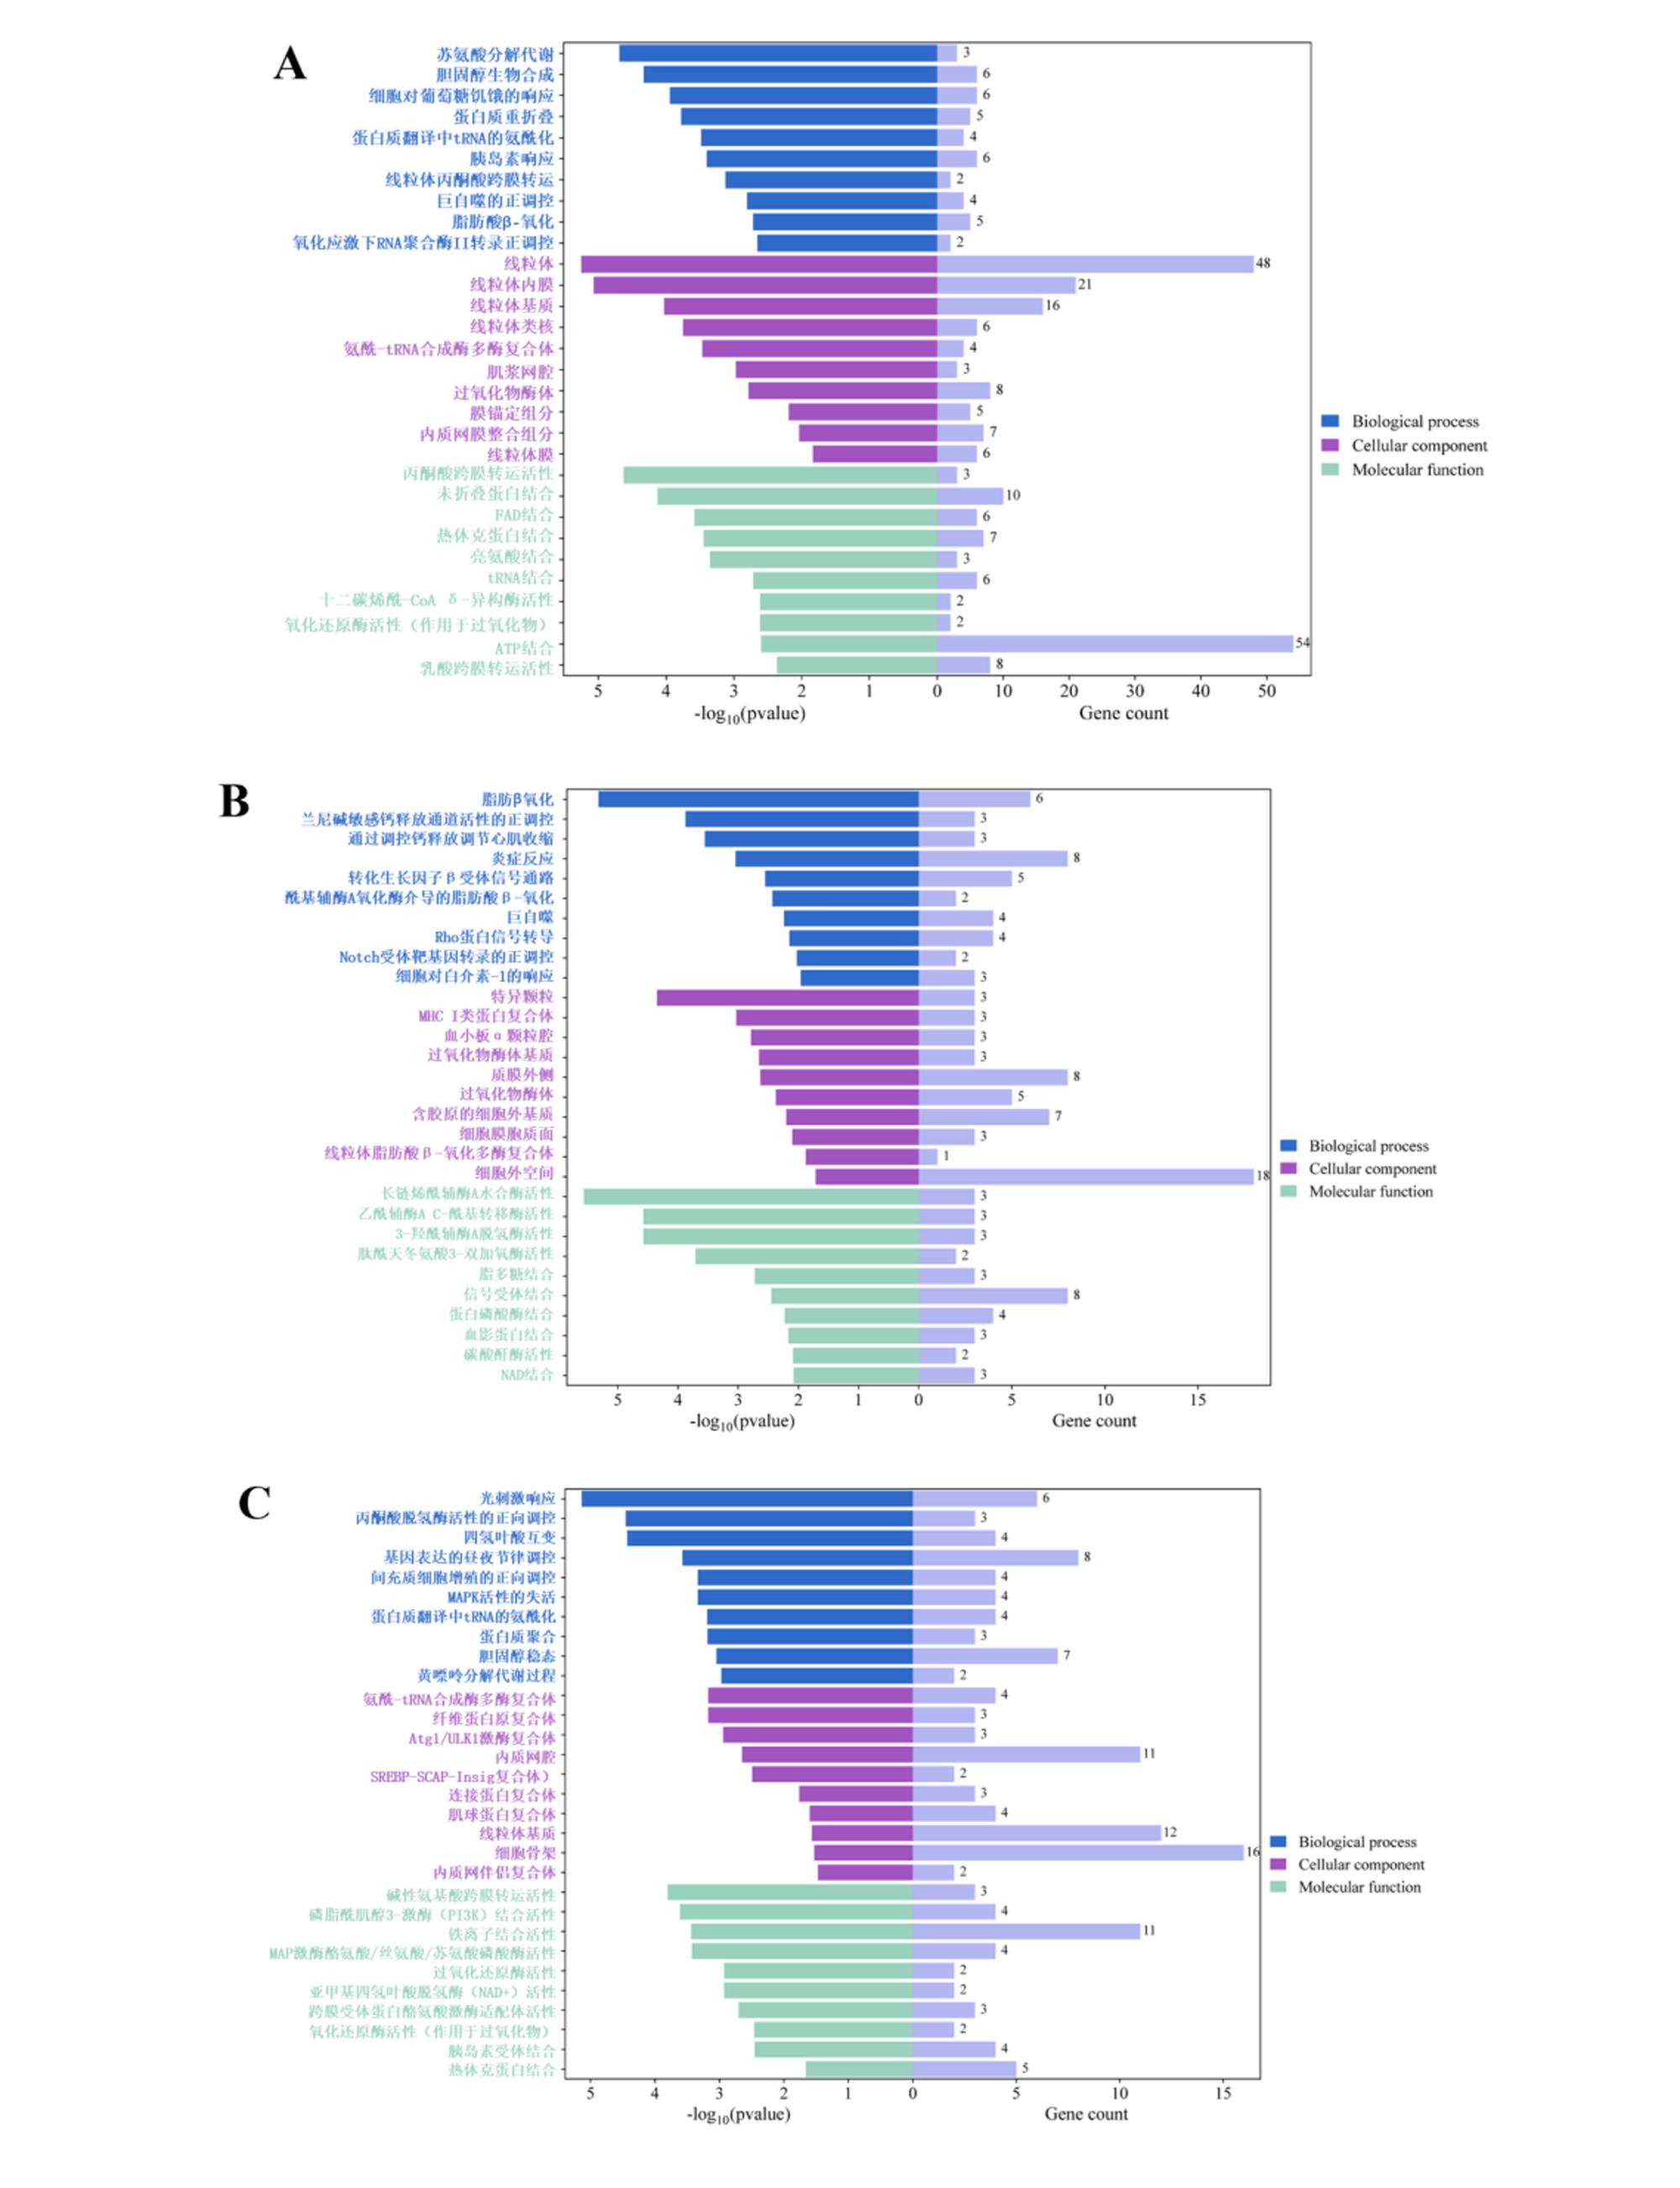
GO功能富集柱状图可直观反映DEGs在生物过程(biological process,BP)、细胞组分(cellular component,CC)和分子功能(molecular function,MF)中分布情况。HS组vs NC组共富集371条GO条目(P<0.05),PLP-L组vs HS组共富集398条GO条目(P<0.05),PLP-L组vs NC组共富集443条GO条目(P<0.05),图5分别展示了各组BP、CC和MF前10条GO条目。
图5 GO功能富集分析

Biological process:生物过程;Cellular component:细胞组分;Molecular function:分子功能;pvalue:PP-value;Gene count:基因数量。

A:HS组vs NC组GO功能富集分析;B:PLP-L组vs HS组GO功能富集分析;C:PLP-L组vs NC组GO功能富集分析。A: HS group vs NC group GO functional enrichment analysis; B: PLP-L group vs HS group GO functional enrichment analysis; C: PLP-L group vs NC group GO functional enrichment analysis.

Fig.5 GO functional enrichment analysis

2.6.4 KEGG通路富集分析

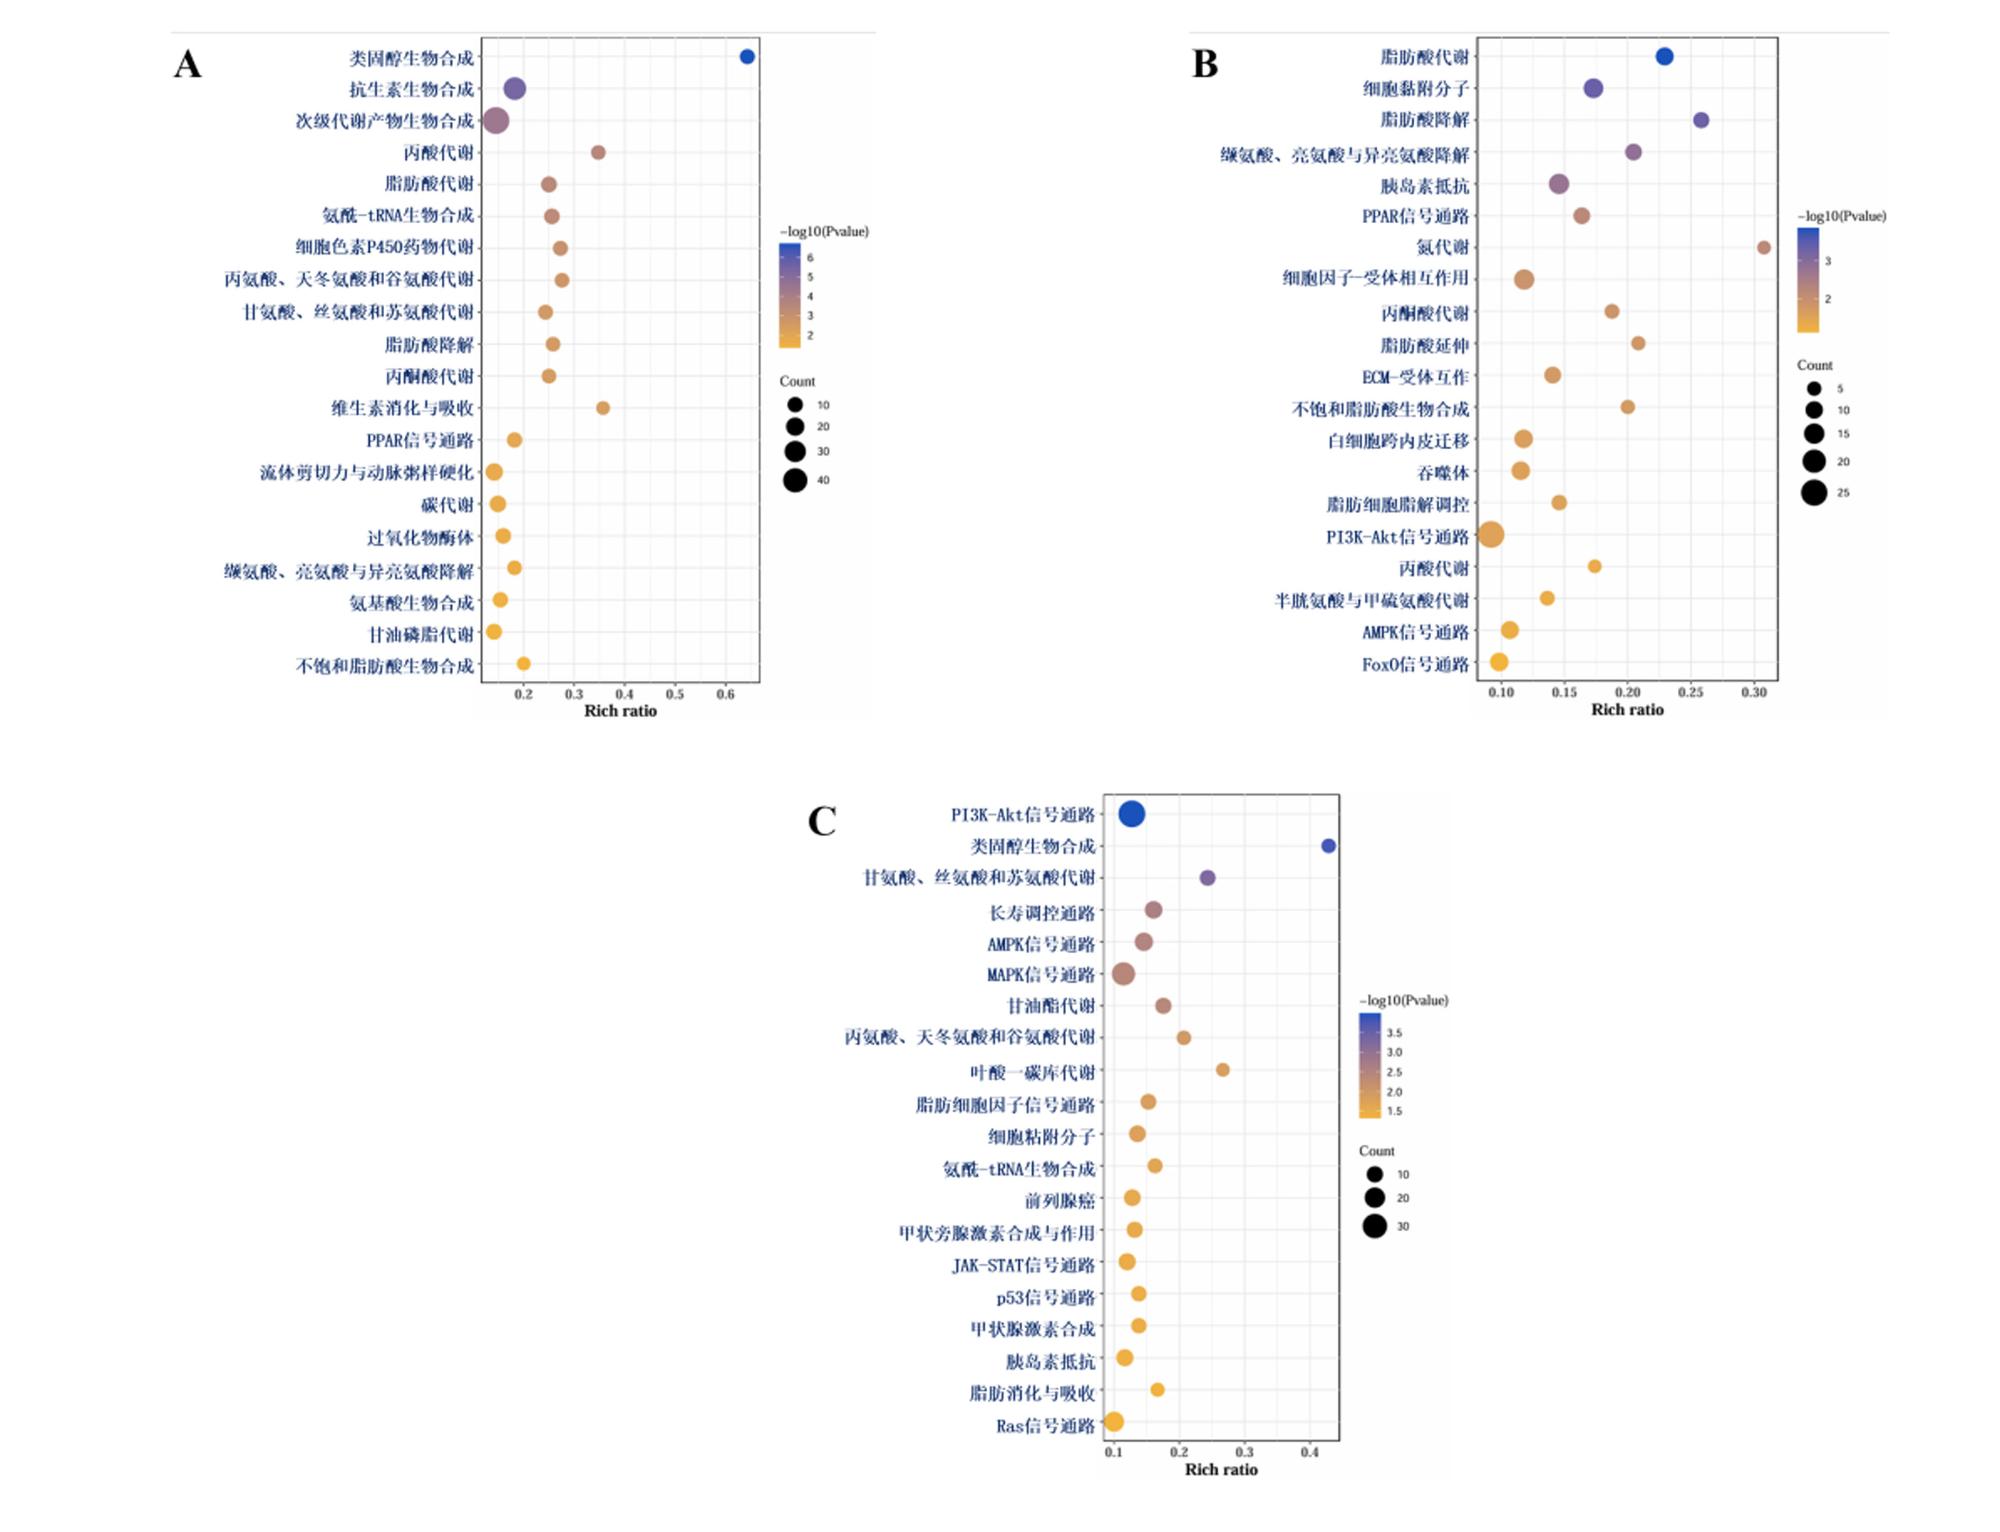
为深入了解相关基因参与代谢途径和信号通路,利用KEGG数据库对各组DEGs进行KEGG通路富集分析。HS组vs NC组共富集到32条KEGG通路(P<0.05),PLP-L组vs HS组共富集到34条KEGG通路(P<0.05),PLP-L组vs NC组共富集到26条KEGG通路(P<0.05)。图6分别展示了各组前20条KEGG通路。
图6 KEGG通路富集分析

pvalue:PP-value;Count:数量;Rich ratio:富集率。

A:HS组vs NC组KEGG通路富集分析;B:PLP-L组vs HS组KEGG通路富集分析;C:PLP-L组vs NC组KEGG通路富集分析。A: HS group vs NC group KEGG pathway enrichment analysis; B: PLP-L group vs HS group KEGG pathway enrichment analysis; C: PLP-L group vs NC group KEGG pathway enrichment analysis.

Fig.6 KEGG pathway enrichment analysis

2.6.5 转录组DEGs qRT-PCR验证结果

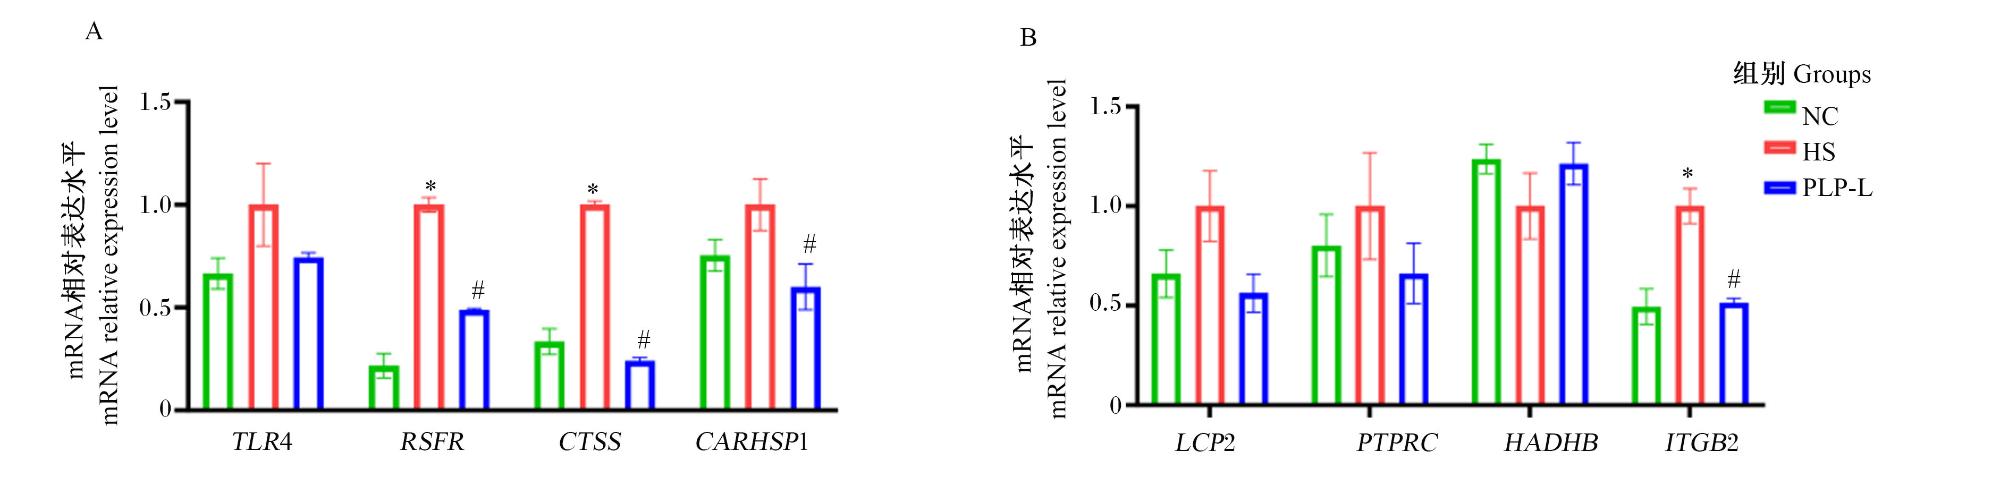
随机选取8个DEGs进行qRT-PCR验证。由图7可知,各组DEGs表达上调或下调趋势与RNA-Seq结果一致,说明转录组测序数据准确及可重复。
图7 转录组DEGs qRT-PCR验证结果

TLR4:Toll样受体4 Toll-like receptor 4;RSFR:精氨酸应答因子 arginine response factor;CTSS:组织蛋白酶S cathepsin S;CARHSP1:钙调节热稳定蛋白1 calcium-regulated heat-stable protein 1;LCP2:淋巴细胞质蛋白2 lymphocyte cytosolic protein 2;PTPRC:蛋白酪氨酸磷酸酶受体C protein tyrosine phosphatase receptor C;HADHB:三功能多酶复合体β亚基 trifunctional multi-enzyme complex beta subunit;ITGB2:整合素β2 integrin beta 2。

Fig.7 Transcriptome DEGs qRT-PCR verification results

3 讨论

3.1 葛根多糖对热应激肉鸡生长性能和肝脏指数的影响

由于肉鸡羽毛覆盖、无汗腺、代谢率高、产热大及耐性差,对高温环境敏感。而肝脏为肉鸡主要代谢、产热器官,是热应激主要靶器官[13]。研究表明,热应激引起肉鸡采食量减少,体重和肝脏指数下降[14]。本研究结果显示,热应激引起肉鸡FBW、ADG、ADFI下降,肝脏指数增加。热应激期间肉鸡减少代谢活动,限制内热产生,刺激脂肪组织产生厌食肽,影响瘦素分泌及其受体表达,从而减少肉鸡采食量[15];且热应激上调血液中糖皮质激素含量,降低消化酶活性,导致营养物质吸收不良。饲粮中添加植物提取物可提高肉鸡生长性能[9,16],其通过刺激下丘脑中神经肽Y(neuropeptide Y,NPY)和刺鼠相关肽(agouti-related peptide,AgRP)mRNA表达,促进采食量增加[9],而下丘脑调节食物摄入,NPY和AgRP为下丘脑弓状核中的促食欲神经肽[17]。此外,植物提取物还可上调小肠中钠葡萄糖协同转运蛋白1(sodium glucose cotransporters 1,SGLT1)、葡萄糖转运蛋白2(glucose transporters 2,GLUT2)和葡萄糖转运蛋白5(glucose transporters 5,GLUT5)mRNA表达,促进小肠摄取营养物质,改善生长性能[8]。饲粮中添加葛根多糖提高了热应激肉鸡FBW、ADG、ADFI,改善了由热应激引起的采食量减少及体重下降等,具有缓解热应激导致肉鸡生长性能下降的作用。

3.2 葛根多糖对热应激肉鸡血清生化指标的影响

ALT、AST可作为反映肝脏损伤的特异性标志物,正常生理状态下主要存在于细胞质和线粒体,在血清中活性较低。当热应激造成肝脏局部缺血缺氧,肝细胞结构受损,膜结构完整性被破坏,ALT、AST释放入血,导致血清AST、ALT活性异常升高,表明机体已肝细胞性损伤[18-19]。ALB含量反映动物体内蛋白质合成与分解代谢动态平衡,其在肝脏合成,代偿能力强,当肝细胞合成功能或肝脏发生严重损伤后ALB含量才会出现明显变化[20]。GLU是肉鸡营养性碳水化合物消化分解的产物,为机体直接能量来源,其含量反映饲粮消化吸收和糖代谢情况[21]。TG主要在肝脏合成,为衡量机体脂质代谢指标[22]。研究表明,热应激激活下丘脑-垂体-肾上腺轴,引起如皮质醇和儿茶酚胺等激素大量分泌,促进糖异生作用,同时产生胰岛素抵抗,使得机体对GLU摄取利用效率降低,最终皮质酮和GLU与胰岛素之间不平衡,血清GLU含量升高;热应激会加速脂肪酸酯化,合成大量TG,导致其蓄积于肝脏且释放入血,致使血清TG含量升高[22-23]。本试验发现,热应激肉鸡血清AST、ALT活性和TG含量升高,ALB含量无显著变化,表明热应激引起肝脏受损并导致糖、脂代谢紊乱,但肝脏尚未严重损伤,这与Jing等[24]研究结果一致。本试验结果表明,饲粮中添加葛根多糖可降低热应激肉鸡血清AST、ALT活性和TG含量,改善肝脏生理功能,减轻肝脏损伤,对肝脏有保护作用。

3.3 葛根多糖对热应激肉鸡肝脏组织形态的影响

肝脏主要由肝细胞组成,肝索围绕中央静脉辐射状排列形成肝小叶构成,其组织形态结构可直观反映肝脏健康与损伤状况。热应激引起肉鸡肝脏脂肪堆积、炎性浸润,发生空泡变性诱导肝细胞凋亡,且局部坏死增加,肝脏功能损坏[13,25]。本试验中,热应激环境下肉鸡肝细胞间隙增大,排列紊乱,部分水肿及轻度坏死,且炎性细胞浸润,出现脂肪变性,表明HS组肉鸡肝脏结构受损。植物提取物对热应激引起的肝脏结构损伤具有良好保护作用,白藜芦醇可改善热应激引起的肝细胞排列紊乱、肝间质充血等,并促使中性粒细胞和淋巴细胞浸润减少[14];甘草多糖显著减少肉鸡肝脏脂质沉积,改善脂肪变性[26];竹叶提取物可抑制肝星状细胞扩增和胶原生成,增强肝细胞分化、繁殖,发挥肝脏保护作用[27]。本试验中,PLP-L组和PLP-H组肝细胞排列整齐,肝索肝窦明显,细胞水肿与炎性浸润减少,脂肪变性受到抑制,表明饲粮中添加葛根多糖可改善热应激造成的肝脏损伤,具有保护肝脏作用。

3.4 葛根多糖对热应激肉鸡肝脏抗氧化和炎性因子指标的影响

热应激造成肝脏抗氧化酶活性及mRNA表达水平降低,自由基清除能力降低,ROS过量产生,损伤机体抗氧化系统,最终导致肉鸡发生氧化应激[28]。SOD、CAT和GSH-Px是机体清除ROS的主要抗氧化酶,GSH作为电子供体协助GSH-Px清除过量ROS[29]。此外,热应激导致线粒体功能障碍,且促进儿茶酚胺分泌,进一步增加自由基过量产生[4]。当肉鸡发生氧化应激后,毒性脂质代谢物产生,诱发脂质过氧化反应产生MDA,MDA含量反映热应激诱导的氧化应激造成的脂质损伤程度[30]。本研究中,热应激降低了肉鸡肝脏SOD、CAT活性,提高了肝脏ROS、MDA含量,自由基氧化与抗氧化失衡,与Hu等[28]报道热应激肝脏氧化应激结果一致。柚皮素通过下调丙酮酸脱羧酶(PDC)等蛋白的表达介导ROS产生,抑制热应激诱导的ROS过度积累[31];竹叶提取物可作为氢供体与自由基反应,通过终止自由基反应以表现出抗氧化防御作用,且增强抗氧化反应元件结合活性和调节核因子E2相关因子2(Nrf2)抗氧化系统,减轻热应激引起的氧化应激[27];海藻提取物可通过上调抗氧化基因表达,激活Nrf2/Kelch样ECH关联蛋白1(Keap1)通路来减轻超敏C反应蛋白诱导的肝脏氧化损伤[32]。本研究发现,饲粮中添加葛根多糖降低了热应激肉鸡肝脏ROS含量,提高了肝脏抗氧化酶活性,增强了机体抗氧化能力及清除自由基和脂质过氧化产物能力,缓解了热应激引起的氧化应激。
氧化应激与炎症密切相关,ROS可作为信号分子激活促炎症信号通路,其调节促炎基因转录,增强促炎分泌介质表达[33]。热应激可增加核因子-κB(NF-κB)蛋白表达,引起促炎细胞因子IL-6、TNF-α合成和分泌,驱动氧化应激的促炎转变,同时激活Pyrin结构域3(pyrin domain-containing receptor 3,NLRP3)信号通路,而NLRP3炎症小体激活导致IL-1β分泌增加,最终共同诱导肉鸡肝脏炎症发生[25]。本研究中,热应激导致肉鸡肝脏IL-1β、IL-6和TNF-α含量显著升高,表明热应激诱导肝脏炎症,与Liu等[25]结果一致。植物提取物可通过抑制Toll样受体4(TLR4)介导的NF-κB信号通路减轻炎症信号转导,调节抑制NF-κB磷酸化和下调巨噬细胞丝裂原活化的细胞外信号调节激酶信号来降低炎性因子过量表达,以此缓解热应激引起的炎症[34]。本研究中,饲粮中添加葛根多糖降低了热应激肉鸡肝脏IL-1β、IL-6和TNF-α含量,从而改善了肝脏炎症。

3.5 葛根多糖对热应激肉鸡肝脏HSP70、HSP90蛋白表达的影响

HSP70和HSP90是机体在应激条件下合成的非特异性自我保护蛋白质,高温条件下被激活,提高肉鸡在热应激条件下的适应性,两者被广泛用作肉鸡热应激标志物,热应激介导热休克因子激活编码HSP70、HSP90上游启动子序列,使其蛋白表达上调[35]。HSP70可抑制ROS产生,增强分子伴侣网络,抵御热应激引起的氧化应激损伤,同时介导基质相互作用分子1(stromal-interaction molecule 1,STIM1)控制环烯烃共聚弹性体(COCE)通道,以此调控钙离子(Ca2+)跨膜转运,缓解由氧化应激引起的钙通道蛋白功能紊乱,维持细胞内钙稳态[36-37],而Ca2+过载使线粒体钙摄入增加,导致线粒体中ROS生成增加[38];HSP90通过晚期折叠阶段与底物蛋白质互作实现构象重塑[39],修复受损蛋白质,并激活蛋白激酶B(Akt)和丙酮酸激酶M2(pyruvate kinase M2,PKM2)信号,促进B细胞淋巴瘤-2(B-cell lymphoma-2,Bcl-2)转位至线粒体并磷酸化,阻止ROS产生,最终抑制线粒体钙超载引起氧化应激[40]。本研究中,热应激导致肉鸡肝脏HSP70、HSP90蛋白表达水平显著增加,证明试验模型的有效性。饲粮中添加白藜芦醇可下调肉鸡肝HSP70、HSP90蛋白表达水平[14]。本研究中,饲粮中添加葛根多糖可下调肉鸡肝脏HSP70、HSP90蛋白表达水平,改善热应激引起的氧化应激,减轻肝脏损伤。

3.6 基于肝脏转录组学探讨葛根多糖调节热应激肉鸡肝脏氧化应激的作用机制

目前,转录组学已被广泛应用于研究环境应激引起组织损伤或代谢改变的分子机制。本研究进行肝脏转录组筛选DEGs,并通过功能富集进一步探究葛根多糖缓解热应激肉鸡肝脏损伤的作用机制。HS组vs NC组中,496个基因上调,352个基因下调,DEGs与脂肪酸β氧化等生物过程、过氧化物酶体等细胞组分和热休克蛋白结合等分子功能有关,并广泛参与PPARs和过氧化物酶体信号通路。PLP-L组vs HS组中,221个基因上调,486个基因下调,DEGs与脂肪酸β氧化等生物过程、过氧化物酶体等细胞组分和长链烯酰辅酶A水合酶活性等分子功能有关,并广泛参与过氧化物酶体增殖物激活受体(peroxisome proliferator-activated receptors,PPARs)和脂肪酸代谢信号通路。PLP-L组vs NC组中,382个基因上调,340个基因下调,DEGs与丙酮酸脱氢酶活性正向调控等生物过程、线粒体基质等细胞组分和热休克蛋白结合等分子功能有关,并广泛参与脂肪细胞因子信号通路。由KEGG通路富集分析结果可知,葛根多糖作用核心集中于PPARs、脂肪酸代谢和脂肪酸降解信号通路。PPARs作为脂肪酸激活转录因子,在氧化组织中高度表达,参与底物递送、氧化磷酸化和能量调节及代谢[41],其亚型PPARα主要介导脂肪酸转运、酯化和氧化,调节肝脏脂质代谢;PPARβ/δ介导脂肪酸β氧化,调节脂肪因子表达及诱导信号转导与转录激活因子3(STAT3)激活介导脂肪代谢;PPARγ调控脂肪细胞摄取脂质及脂质代谢基因表达,维持脂质能量稳态,并作为线粒体电子传递链基因转录因子[42]
此外,PPARs通过抑制WNT/β-连环蛋白(β-catenin)信号通路减少ROS产生,抑制因线粒体和内质网应激诱导的载脂蛋白B合成,改善脂肪变性,同时PPARs存在抗炎作用,抑制NF-κB活化和TNF-α、IL-6等促炎细胞因子产生[43]。研究表明,热应激上调PPARs、脂肪酸合成酶转录水平,促进肉鸡肝脏脂质生物合成,上调脂质合成相关基因表达,同时下调脂解相关基因表达,抑制脂质分解,引起脂质蓄积[44];堆积的脂肪酸激活过氧化物酶体酰基-辅酶A氧化酶产生过氧化氢,并进入线粒体β氧化途径,造成电子传递链超载及解偶联,导致电子泄露并生成超氧阴离子[45],且脂质蓄积诱导线粒体ROS释放增加,降低GSH含量,最终造成脂质过氧化产物增加,发生氧化应激和脂肪变性。本试验结果显示,在HS组vs NC组和PLP-L组vs HS组中,17-β-羟基类固醇脱氢酶4(HSD17B4)、3-羟基酰辅酶A脱氢酶(EHHADH)、超长链脂肪酸延长酶7(ELOVL7)和乙酰辅酶A酰基转移酶1(ACAA1)等多个PPARs、脂肪酸基因发挥关键作用,且在PPARs、脂肪酸代谢和脂肪酸降解相关途径和通路均显著富集,表明热应激影响机体PPARs与脂肪酸代谢分解调节及相关基因表达。ELOVL7是脂肪酸延长酶,催化长链饱和脂肪酸(long chain fatty acids,LCFAs)合成,而LCFAs作为PPARs配体调节脂肪能量代谢[46]。HSD17B4和EHHADH均为过氧化物酶体双功能酶,调控过氧化物酶体β氧化和乙酰辅酶A合成,其表达下调使过氧化物酶体脂肪酸β氧化受阻,导致脂肪酸堆积及脂代谢紊乱[47],最终引起ROS产生增加。ACAA1为乙酰辅酶A酰基转移酶,调控β氧化最终步骤。本试验中,在HS组vs NC组中,ELOVL7表达上调,HSD17B4、EHHADHACAA1表达下调;而在PLP-L组vs HS组中,HSD17B4、EHHADHACAA1等表达上调,ELOVL7表达下调。这表明热应激上调肝脏中脂肪酸合成转录水平,促进脂质生成,同时下调脂质分解和脂肪酸氧化相关蛋白转录水平,过氧化物酶体和线粒体脂肪酸β氧化能力下降,肝脏中脂肪酸氧化受阻,脂肪酸大量堆积,ROS产生增加,最终导致肝脏氧化应激和脂肪变性。基于转录组数据推测葛根多糖可能通过调控PPARs及脂肪酸代谢信号通路,显著上调HSD17B4、EHHADHACAA1表达,过氧化物酶体对长链脂肪酸β氧化水平增强,促进脂肪酸代谢及降解,同时下调ELOVL7表达以减少LCFAs过度合成,减少肝脏脂质蓄积。
综上所述,热应激促进脂质生物合成,抑制脂质分解。葛根多糖可能通过激活PPARs信号通路,上调β氧化相关蛋白表达促进肝脏脂肪酸摄取、转运和氧化分解;通过下调脂肪酸合成蛋白表达抑制脂质过度合成,减少脂质蓄积以减少ROS产生;通过抑制NF-κB活化及TNF-αIL-6等促炎细胞因子表达,减轻炎症引起氧化应激,同时介导WNT/β-catenin信号通路和线粒体、内质网应激减少ROS产生,改善热应激引起的肉鸡肝脏氧化应激。

4 结论

葛根多糖可缓解热应激导致的肉鸡体重下降,提高生长性能、抗氧化能力和抗炎水平,改善肝脏组织结构;其作用机制可能是通过调控PPARs、脂肪酸代谢和脂肪酸降解等信号通路,介导相关基因表达而发挥作用。饲粮中添加100 mg/kg葛根多糖可预防热应激引起的肉鸡肝脏氧化损伤。
[1]
ZHANG X S, JIA Y Q, YUAN Z W, et al. Sheng Mai San ameliorated heat stress-induced liver injury via regulating energy metabolism and AMPK/Drp1-dependent autophagy process[J]. Phytomedicine, 2022, 97:153920.

DOI

[2]
LARA L J, ROSTAGNO M H. Impact of heat stress on poultry production[J]. Animals, 2013, 3(2):356-369.

DOI PMID

[3]
AKBARIAN A, MICHIELS J, DEGROOTE J, et al. Association between heat stress and oxidative stress in poultry;mitochondrial dysfunction and dietary interventions with phytochemicals[J]. Journal of Animal Science and Biotechnology, 2016, 7:37.

DOI

[4]
SAHIN K, ORHAN C, TUZCU M, et al. Epigallocatechin-3-gallate prevents lipid peroxidation and enhances antioxidant defense system via modulating hepatic nuclear transcription factors in heat-stressed quails[J]. Poultry Science, 2010, 89(10):2251-2258.

DOI PMID

[5]
PENG K Y, WATT M J, RENSEN S, et al. Mitochondrial dysfunction-related lipid changes occur in nonalcoholic fatty liver disease progression[J]. Journal of Lipid Research, 2018, 59(10):1977-1986.

DOI

[6]
李洋洋. 家畜温热环境应激评价及热应激缓解方法研究[D]. 博士学位论文. 北京: 中国农业科学院, 2024.

LI Y Y. Study on the evaluation of thermal environmental stress and heat stress mitigation methods for domestic animals[D]. Ph.D.Thesis. Beijing: Chinese Academy of Agricultural Sciences, 2024. (in Chinese)

[7]
宫玥, 吴天佑, 张少泽, 等. 浅谈热应激动物的营养调控策略[J]. 广东饲料, 2023, 32(7):45-48.

GONG Y, WU T Y, ZHANG S Z, et al. Discussion on nutrition regulation strategy of heat-stressed animals[J]. Guangdong Feed, 2023, 32(7):45-48. (in Chinese)

[8]
YIN F Q, LAN R X, WU Z M, et al. Yupingfeng polysaccharides enhances growth performance in Qingyuan partridge chicken by up-regulating the mRNA expression of SGLT1,GLUT2 and GLUT5[J]. Veterinary Medicine and Science, 2019, 5(3):451-461.

DOI

[9]
ZHAO Y Y, LI C X, WANG X Y, et al. Effects of glycyrrhiza polysaccharide on growth performance,appetite,and hypothalamic inflammation in broilers[J]. Journal of Animal Science, 2023, 101:skad027.

[10]
WANG S G, ZHANG S M, WANG S P, et al. A comprehensive review on Pueraria:insights on its chemistry and medicinal value[J]. Biomedicine & Pharmacotherapy, 2020, 131:110734.

DOI

[11]
CAO W, WU J P, ZHAO X Y, et al. Structural elucidation of an active polysaccharide from Radix Puerariae lobatae and its protection against acute alcoholic liver disease[J]. Carbohydrate Polymers, 2024, 325:121565.

DOI

[12]
郑伟剑, 曾致, 黄东璋, 等. 葛根主要成分、生物学功能及其在畜禽生产中的应用[J]. 动物营养学报, 2024, 36(10):6223-6233.

DOI

ZHENG W J, ZENG Z, HUANG D Z, et al. Main components,biological functions of Pueraria lobata and its application in livestock and poultry production[J]. Chinese Journal of Animal Nutrition, 2024, 36(10):6223-6233. (in Chinese)

[13]
MA B B, XING T, LI J L, et al. Chronic heat stress causes liver damage via endoplasmic reticulum stress-induced apoptosis in broilers[J]. Poultry Science, 2022, 101(10):102063.

DOI

[14]
DING K N, LU M H, GUO Y N, et al. Resveratrol relieves chronic heat stress-induced liver oxidative damage in broilers by activating the Nrf2-Keap1 signaling pathway[J]. Ecotoxicology and Environmental Safety, 2023, 249:114411.

DOI

[15]
ARYAL B, KWAKYE J, ARIYO O W, et al. Major oxidative and antioxidant mechanisms during heat stress-induced oxidative stress in chickens[J]. Antioxidants, 2025, 14(4):471.

DOI

[16]
WU S J. Effect of dietary Astragalus membranaceus polysaccharide on the growth performance and immunity of juvenile broilers[J]. Poultry Science, 2018, 97(10):3489-3493.

DOI

[17]
BOSWELL T, DUNN I C. Regulation of agouti-related protein and pro-opiomelanocortin gene expression in the avian arcuate nucleus[J]. Frontiers in Endocrinology, 2017, 8:75.

DOI PMID

[18]
WANG X Q, LI H, JI L, et al. Association between aspartate aminotransferase to alanine aminotransferase ratio and the risk of diabetes in Chinese prediabetic population:a retrospective cohort study[J]. Frontiers in Public Health, 2022, 10:1045141.

DOI

[19]
刘娅娅. 限时饲喂缓解热应激引起仔猪肝脏损伤的作用机制[D]. 硕士学位论文. 扬州: 扬州大学, 2024.

LIU Y Y. The mechanism of time-restricted feeding in alleviating heat stress-induced liver injury in piglets[D]. Master’s Thesis. Yangzhou: Yangzhou University, 2024. (in Chinese)

[20]
李立青, 史蓉华, 王晓玲, 等. PA、ALB、TBIL、TBA和CHE在肝脏疾病诊断中的应用价值[J]. 标记免疫分析与临床, 2010, 17(6):394-396.

LI L Q, SHI R H, WANG X L, et al. Application value of PA,ALB,TBIL,TBA and CHE in the diagnosis of liver diseases[J]. Labeled Immunoassays and Clinical Medicine, 2010, 17(6):394-396. (in Chinese)

[21]
马顺, 宋阳, 林晓艳, 等. 包被丁酸钠对肉鸡生长性能、肉品质、血清生化指标及盲肠菌群结构的影响[J]. 动物营养学报, 2025, 37(2):950-960.

DOI

MA S, SONG Y, LIN X Y, et al. Effects of coated sodium butyrate on growth performance,meat quality,serum biochemical indices and cecal microbial structure of broilers[J]. Chinese Journal of Animal Nutrition, 2025, 37(2):950-960. (in Chinese)

[22]
YANG L Y, LIU Z M, OU K P, et al. Evolution,dynamic expression changes and regulatory characteristics of gene families involved in the glycerophosphate pathway of triglyceride synthesis in chicken (Gallus gallus)[J]. Scientific Reports, 2019, 9(1):12735.

DOI

[23]
高腾飞, 杨鑫, 李亚莉, 等. 共轭亚油酸对边鸡生长性能、血清生化指标、肉品质和抗氧化能力以及其在肌肉中富集的影响[J]. 动物营养学报, 2025, 37(1):320-329.

DOI

GAO T F, YANG X, LI Y L, et al. Effects of conjugated linoleic acid on growth performance,serum biochemical indices,meat quality,antioxidant capacity and its enrichment in muscle of Bian chickens[J]. Chinese Journal of Animal Nutrition, 2025, 37(1):320-329. (in Chinese)

[24]
JING J Z, ZENG H J, SHAO Q J, et al. Selenomethionine alleviates environmental heat stress induced hepatic lipid accumulation and glycogen infiltration of broilers via maintaining mitochondrial and endoplasmic reticulum homeostasis[J]. Redox Biology, 2023, 67:102912.

DOI

[25]
LIU Y L, DING K N, SHEN X L, et al. Chronic heat stress promotes liver inflammation in broilers via enhancing NF-κB and NLRP3 signaling pathway[J]. BMC Veterinary Research, 2022, 18(1):289.

DOI

[26]
JI X Y, HOU H N, WANG X Y, et al. Effect of dietary Glycyrrhiza polysaccharides on growth performance,hepatic antioxidant capacity and anti-inflammatory capacity of broiler chickens[J]. Research in Veterinary Science, 2024, 167:105114.

DOI

[27]
YUAN J J, LI Y, MIAO J J, et al. Bamboo leaf flavonoids ameliorate cyclic heat stress-induced oxidative damage in broiler liver through activation of Keap1-Nrf2 signaling pathway[J]. Poultry Science, 2025, 104(4):104952.

DOI

[28]
HU H, DAI S F, LI J Q, et al. Glutamine improves heat stress-induced oxidative damage in the broiler thigh muscle by activating the nuclear factor erythroid 2-related 2/Kelch-like ECH-associated protein 1 signaling pathway[J]. Poultry Science, 2020, 99(3):1454-1461.

DOI PMID

[29]
樊磊. 奶牛胎盘提取物对D-半乳糖诱导小鼠肝脏损伤的保护作用及其机制[D]. 硕士学位论文. 雅安: 四川农业大学, 2024.

FAN L. Protective effect and mechanism of cow placenta extract on D-galactose-induced liver damage in mice[D]. Master’s Thesis. Ya’an: Sichuan Agricultural University, 2024. (in Chinese)

[30]
ZHANG Q L, SHEN X T, YUAN X, et al. Lipopolysaccharide binding protein resists hepatic oxidative stress by regulating lipid droplet homeostasis[J]. Nature Communications, 2024, 15(1):3213.

DOI PMID

[31]
LIU Z N, TANG R Y, QI Q R, et al. Naringenin alleviates heat stress-induced liver injury in Ningdu yellow chickens by decreasing RIPK3 and PDC binding[J]. The Journal of Nutritional Biochemistry, 2025, 140:109894.

DOI

[32]
ZHAO Z X, YUAN Y M, ZHAO Z H, et al. Phlorotannin alleviates liver injury by regulating redox balance,apoptosis,and ferroptosis of broilers under heat stress[J]. Antioxidants, 2024, 13(9):1048.

DOI

[33]
LUO Y X, ZHANG Z R, ZHENG W J, et al. Molecular mechanisms of plant extracts in protecting aging blood vessels[J]. Nutrients, 2024, 16(14):2357.

DOI

[34]
吴怡佳, 杨茹洁, 邓谭杰, 等. 豆蔻明对热应激儋州鸡肝脏抗氧化和抗炎性能的影响[J]. 中国饲料, 2025(3):99-105.

WU Y J, YANG R J, DENG T J, et al. Effect of cardamonin on antioxidant and anti-inflammatory properties of heat stress Danzhou chicken liver[J]. China Feed, 2025(3):99-105. (in Chinese)

[35]
XIE J J, TANG L, LU L, et al. Differential expression of heat shock transcription factors and heat shock proteins after acute and chronic heat stress in laying chickens (Gallus gallus)[J]. PLoS One, 2014, 9(7):e102204.

DOI

[36]
LIU Y, WANG X C, HU D, et al. Heat shock protein 70 protects PC12 cells against ischemia-hypoxia/reoxygenation by maintaining intracellular Ca2+ homeostasis[J]. Neural Regeneration Research, 2016, 11(7):1134-1140.

DOI

[37]
TUPLING A R, GRAMOLINI A O, DUHAMEL T A, et al. HSP 70 binds to the fast-twitch skeletal muscle sarco(endo)plasmic reticulum Ca2+-ATPase (SERCA1a) and prevents thermal inactivation[J]. Journal of Biological Chemistry, 2004, 279(50):52382-52389.

DOI

[38]
LUO M, ANDERSON M E. Mechanisms of altered Ca2+ handling in heart failure[J]. Circulation Research, 2013, 113(6):690-708.

DOI

[39]
GOEL A, NCHO C M, CHOI Y H. Regulation of gene expression in chickens by heat stress[J]. Journal of Animal Science and Biotechnology, 2021, 12(1):11.

DOI PMID

[40]
YAO X, ZHU J, LI L, et al. HSP90 protected chicken primary myocardial cells from heat-stress injury by inhibiting oxidative stress and calcium overload in mitochondria[J]. Biochemical Pharmacology, 2023, 209:115434.

DOI

[41]
CHRISTOFIDES A, KONSTANTINIDOU E, JANI C, et al. The role of peroxisome proliferator-activated receptors (PPAR) in immune responses[J]. Metabolism, 2021, 114:154338.

DOI

[42]
WOLF G. The function of the nuclear receptor peroxisome proliferator-activated receptor delta in energy homeostasis[J]. Nutrition Reviews, 2003, 61(11):387-390.

PMID

[43]
VALLÉE A, LECARPENTIER Y. Crosstalk between peroxisome proliferator-activated receptor gamma and the canonical WNT/β-catenin pathway in chronic inflammation and oxidative stress during carcinogenesis[J]. Frontiers in Immunology, 2018, 9:745.

DOI PMID

[44]
HUANG Y N, XIE H Y, PAN P, et al. Heat stress promotes lipid accumulation by inhibiting the AMPK-PGC-1α signaling pathway in 3T3-L1 preadipocytes[J]. Cell Stress & Chaperones, 2021, 26(3):563-574.

DOI

[45]
SCHÖNFELD P, WOJTCZAK L. Short- and medium-chain fatty acids in energy metabolism:the cellular perspective[J]. Journal of Lipid Research, 2016, 57(6):943-954.

DOI

[46]
SHI H B, WANG L, LUO J, et al. Fatty acid elongase 7 (ELOVL7) plays a role in the synthesis of long-chain unsaturated fatty acids in goat mammary epithelial cells[J]. Animals, 2019, 9(6):389.

DOI

[47]
BAE J E, JANG S, KIM J B, et al. HSD17B4 deficiency causes dysregulation of primary cilia and is alleviated by acetyl-CoA[J]. Nature Communications, 2025, 16(1):2663.

DOI

文章导航

/