研究论文

粪肠球菌对籽鹅生长性能、十二指肠消化吸收与屏障功能及肠道菌群的影响

  • 邢金秋 , 1, 2 ,
  • 王秋菊 , 1, 2, * ,
  • 周玥妍 1, 2 ,
  • 刘磊 1, 2 ,
  • 王莹 1, 2 ,
  • 李远 1, 2 ,
  • 武震宇 1, 2
展开
  • 1 黑龙江八一农垦大学动物科技学院, 大庆 163319
  • 2 黑龙江省寒区白鹅种质资源发掘与创新利用重点实验室, 大庆 163319
*王秋菊,教授,博士生导师,E-mail:

邢金秋(1997—),女,黑龙江黑河人,硕士研究生,研究方向为鹅的营养调控。E-mail:

Office editor: 菅景颖

收稿日期: 2025-10-07

  网络出版日期: 2026-05-14

基金资助

黑龙江省优秀青年教师基础研究重点项目(2024ZR164A02)

黑龙江省农业农村厅种业创新和发展项目([2024]07)

黑龙江省“双一流”特色学科平台项目(HLJTSXK2022)

黑龙江省科技成果转化与扶贫推广项目(HLJJYT201912)

黑龙江省畜牧技术推广专项(HLJNY202109)

Effects of Enterococcus faecalis on Growth Performance, Duodenal Digestion, Absorption and Barrier Function, and Intestinal Microbiota of Zi Geese

  • XING Jinqiu , 1, 2 ,
  • WANG Qiuju , 1, 2, * ,
  • ZHOU Yueyan 1, 2 ,
  • LIU Lei 1, 2 ,
  • WANG Ying 1, 2 ,
  • LI Yuan 1, 2 ,
  • WU Zhenyu 1, 2
Expand
  • 1 College of Animal Science and Technology, Heilongjiang Bayi Agricultural University, Daqing 163319, China
  • 2 Key Laboratory of Exploration and Innovative Utilization of White Goose Germplasm Resources in the Cold Region of Heilongjiang Province, Daqing 163319, China
*professor, E-mail:

Received date: 2025-10-07

  Online published: 2026-05-14

摘要

本试验旨在探究粪肠球菌对籽鹅生长性能、十二指肠消化吸收与屏障功能及肠道菌群的影响。选取100只30日龄平均体重为(942.60±24.43) g的公籽鹅,随机分为2组,每组5个重复,每个重复10只。对照组饲喂基础饲粮,试验组饲喂基础饲粮的同时,饮水补充粪肠球菌,菌液现用现配,每日每只鹅通过饮水摄入的粪肠球菌总量为1×10⁸ CFU。预试期7 d,正试期40 d。结果表明:1)与对照组相比,试验组籽鹅57和77日龄时体重极显著升高(P<0.01),37~57日龄及37~77日龄阶段平均日增重极显著升高(P<0.01),37~77日龄阶段料重比显著降低(P<0.05)。2)与对照组相比,试验组57和77日龄时十二指肠中α-淀粉酶、脂肪酶、胰蛋白酶、糜蛋白酶及碱性磷酸酶的活性显著升高(P<0.05)。3)与对照组相比,试验组57和77日龄时十二指肠绒毛高度、绒隐比显著或极显著升高(P<0.05或P<0.01),隐窝深度极显著下降(P<0.01)。4)与对照组相比,试验组57和77日龄时十二指肠中闭合蛋白-1(Claudin-1)、咬合蛋白(Occludin)、闭锁小带蛋白-1(ZO-1)、闭锁小带蛋白-2(ZO-2)的mRNA相对表达量显著或极显著升高(P<0.05或P<0.01)。5)与对照组相比,试验组57和77日龄时十二指肠中兴奋性氨基酸转运蛋白3(EAAT3)、阳离子氨基酸转运蛋白-1(CAT-1)、Na+/Cl-依赖性中性及碱性氨基酸转运蛋白B(0,+)[ATB(0,+)]的蛋白相对表达量显著或极显著升高(P<0.05或P<0.01)。6)试验组37日龄时肠道菌群Shannon指数与相比对照组显著升高(P<0.05);在肠道菌群组成方面,试验组57和77日龄时厚壁菌门的相对丰度显著高于对照组(P<0.05),77日龄时芽孢杆菌科芽孢杆菌属的相对丰度显著高于对照组(P<0.05)。综上所述,通过饮水补充粪肠球菌(每日每只鹅1×108 CFU)可提高十二指肠中消化酶活性,增强肠道屏障功能与氨基酸转运蛋白表达,改善肠道形态结构及菌群组成,进而提升籽鹅的生长性能。

本文引用格式

邢金秋 , 王秋菊 , 周玥妍 , 刘磊 , 王莹 , 李远 , 武震宇 . 粪肠球菌对籽鹅生长性能、十二指肠消化吸收与屏障功能及肠道菌群的影响[J]. 动物营养学报, 2026 , 38(5) : 3431 -3445 . DOI: 10.12418/CJAN2026.274

Abstract

This study aimed to investigate the effects of Enterococcus faecalis on the growth performance, duodenal digestion, absorption and barrier function, and intestinal microbiota of Zi geese. A total of 100 male Zi geese aged 30 days with an average body weight of (942.60±24.43) g were randomly divided into two groups with five replicates per group and ten geese per replicate. Geese in control group were fed a basal diet, while those in test group received the basal diet supplemented with Enterococcus faecalis via drinking water. The bacterial suspension was prepared fresh daily, and each goose received a total of 1×10⁸ CFU of Enterococcus faecalis per day through drinking water. The pre-test period lasted 7 days, and the formal test period lasted 40 days. The results showed as follows: 1) compared with the control group, the body weight at 57 and 77 days of age of the test group was extremely significantly increased (P<0.01), and the average daily gain during 37 to 57 days of age and 37 to 7 days of age was extremely significantly increased (P<0.01), while the feed/gain ratio during 37 to 77 days of age was significantly decreased (P<0.05). 2) Compared with the control group, the activities of α-amylase, lipase, trypsin, chymotrypsin, and alkaline phosphatase in the duodenum were significantly increased in the test group at 57 and 77 days of age (P<0.05). 3) Compared with the control group, the duodenal villus height and villus height/crypt depth ratio were significantly or extremely significantly increased (P<0.05 or P<0.01), while the crypt depth was extremely significantly decreased (P<0.01) in the test group at 57 and 77 days of age. 4) Compared with the control group, the mRNA relative expression levels of Claudin-1, Occludin, ZO-1 and ZO-2 in the duodenum were significantly or extremely significantly increased in the test group at 57 and 77 days of age (P<0.05 or P<0.01). 5) Compared with the control group, the protein relative expression levels of excitatory amino acid transporter 3 (EAAT3), cationic amino acid transporter-1 (CAT-1) and sodium- and chloride-dependent neutral and cationic amino acid transporter B(0,+) [ATB(0,+)] in the duodenum were significantly or extremely significantly increased in the test group at 57 and 77 days of age (P<0.05 or P<0.01). 6) At 37 days of age, the Shannon index of intestinal microbiota was significantly increased in the test group compared with the control group (P<0.05). In terms of intestinal microbiota composition, the relative abundance of Firmicutes in the test group was significantly higher than that in the control group at 57 and 77 days of age (P<0.05), and the relative abundance of Bacillaceae_Bacillus in the test group was significantly higher than that in the control group at 77 days of age (P<0.05). In conclusion, supplementation with Enterococcus faecalis (1×10⁸ CFU per goose per day) via drinking water can increase the duodenal digestive enzyme activities, enhance the intestinal barrier function and amino acid transporter expression, improve the intestinal morphology and microbiota composition, and consequently promote the growth performance of Zi geese.

伴随我国经济发展与畜产品结构的持续优化,鹅产业凭借其独特的经济价值与市场潜力,已成为我国重要的畜禽产业之一。为追求更高的经济效益,抗生素在畜牧养殖业中曾得到广泛应用,但其残留问题严重威胁人类与动物健康[1]。肠道致病菌是危害畜禽健康的主要因素之一,因此,寻找安全有效的饲料添加剂成为当前研究的热点[2]。已有研究表明,益生菌可作为动物营养领域中有效的“替抗”方案[3]。粪肠球菌(Enterococcus faecalis)是已获中华人民共和国农业农村部批准的可用于畜禽养殖的饲料添加剂,属畜牧生产中常用的乳酸菌菌种,来源于家禽肠道。研究表明,粪肠球菌可有效调节动物肠道菌群平衡[4],并与其他厌氧菌协同形成生物膜菌群,抑制金黄色葡萄球菌、沙门氏菌和大肠杆菌在肠道内定植,从而降低致病风险[5-6]。此外,粪肠球菌能够改善肉鸡肠道免疫水平,优化菌群结构,进而缓解由禽致病大肠杆菌引发的肉鸡生长性能下降与肠道损伤问题[7-8];同时,该菌对产气荚膜梭菌的生长具有抑制作用,有助于改善因坏死性肠炎导致的肉鸡生长性能降低、肠道病变及菌群失衡等问题[9-10]。禽类的生长发育依赖于肠道对饲粮中蛋白质的消化吸收。蛋白质经胰腺分泌的各类蛋白酶分解为游离氨基酸与小肽,十二指肠作为食糜最初接触的部位,同时也是胰液的主要释放位点,可启动蛋白质的初步水解,为后续肠道内的氨基酸吸收提供可利用底物[11]。游离氨基酸需借助氨基酸转运载体才能被小肠上皮细胞吸收[12],肠上皮中氨基酸转运载体的表达水平直接影响肠道内可利用氨基酸的吸收效率[13]。目前,关于粪肠球菌对籽鹅十二指肠中氨基酸转运蛋白表达的调控及其与肠道健康综合关系的研究报道尚较少。因此,本试验以籽鹅为研究对象,探究粪肠球菌对十二指肠中氨基酸转运蛋白、紧密连接蛋白相关基因及肠道菌群等的影响,以期为粪肠球菌作为饲料添加剂在鹅养殖业中的合理应用提供理论依据。

1 材料与方法

1.1 伦理声明

本试验所有程序均按照黑龙江八一农垦大学试验伦理委员会批准的方案进行,批准文号为DWKJXY2024019。

1.2 试验材料

本试验所选用的粪肠球菌由黑龙江省寒区白鹅种质资源发掘和创新利用重点实验室分离和鉴定,现存于中国微生物保藏中心,保藏编号为CGMCC No.24881,其有效活菌数为1×10¹¹ CFU/g。

1.3 试验设计与饲粮

选取30日龄、平均体重为(942.60±24.43) g的公籽鹅100只,随机分为2组,每组5个重复,每个重复10只鹅。对照组饲喂基础饲粮,并供应城市饮用水;试验组在饲喂基础饲粮的同时,通过饮水途径补充粪肠球菌。菌液现用现配,于每日09:00将0.01 g菌粉(活菌数1×10¹¹ CFU/g)加入1 L饮用水中,充分混匀,配制成浓度为1×10⁹ CFU/L的菌液。每个重复(10只鹅)配备独立真空饮水器,将1 L菌液作为试验组鹅只在首次饲喂期间的唯一饮用水源,并确保在配制后1 h内饮毕,菌液饮毕后更换为静置过夜的城市饮用水。经计算,每只鹅每日通过饮水摄入的粪肠球菌总量为1×10⁸ CFU/只。试验期间,每日于09:00和17:00定时饲喂2次,饲喂时间持续2 h。2组鹅均自由采食与饮水,并按正常免疫程序进行免疫接种。料槽与水槽每2 d于饲喂前使用次氯酸钠溶液消毒,消毒后用清水彻底冲洗并晾干,以避免消毒剂残留影响菌液活性。基础饲粮参照NRC(1994)并结合籽鹅养殖实际需要配制,其组成及营养水平见表1。养殖试验采用舍内地面平养,自然光照模式,共持续47 d,其中预试期7 d,正试期40 d。试验期间及时清理粪污,每日记录采食量。
表1 基础饲粮组成及营养水平(风干基础)

Table 1 Composition and nutrient levels of the basal diet (air-dry basis)%

项目 Items 含量 Content
原料 Ingredients
玉米 Corn 61.50
豆粕 Soybean meal 25.00
稻壳粉 Rice hulls 7.00
小麦麸 Wheat bran 3.00
食盐 NaCl 0.30
预混料 Premix1) 1.00
DL-蛋氨酸 DL-Met (98%) 0.10
磷酸氢钙 CaHPO4 1.10
石粉 Limestone 1.00
合计 Total 100.00
营养水平 Nutrient levels2)
代谢能 ME/(MJ/kg) 10.92
粗蛋白质 CP 16.02
粗纤维 CF 5.60
钙 Ca 0.72
总磷 TP 0.54
赖氨酸 Lys 0.80
蛋氨酸 Met 0.33

1)预混料为每千克饲粮提供The premix provided the following per kg of the diet:Zn (as zinc sulfate) 60 mg,Cu (as copper sulfate) 7 mg,Mn (as manganese sulfate) 80 mg,Fe (as ferrous sulfate) 50 mg,I (as potassium iodide) 0.42 mg,Se (as sodium selenite) 0.3 mg,VA 8 000 IU,VE 20 mg,VD3 700 IU,VK3 2 mg,烟酸 nicotinic acid 60 mg,D-泛酸 D-pantothenic acid 15 mg,生物素 biotin 0.1 mg。

2)粗蛋白质(凯氏定氮法,GB/T 6432—2018)、粗纤维(滤袋法,GB/T 6434—2022)、钙(高锰酸钾法,GB/T 6436—2018)、总磷(分光光度法,GB/T 6437—2018)和氨基酸(离子交换色谱法,GB/T 15399—2018)为实测值,代谢能依据《中国饲料成分及营养价值表(2023年第34版)》计算。CP (Kjeldahl method, GB/T 6432—2018), CF (filter bag method, GB/T 6434—2022), Ca (potassium permanganate method, GB/T 6436—2018), TP (spectrophotometric method, GB/T 6437—2018) and amino acids (ion-exchange chromatography, GB/T 15399—2018) were measured values, while ME was calculated based on the China Feed Composition and Nutritive Value Table (34th edition, 2023).

1.4 样品采集

在37、57和77日龄时,从2组的每个重复中随机选取1只籽鹅,禁食禁水12 h后,经颈部血管放血处死。宰杀后,剖取距幽门约1/3处的十二指肠中段2 cm左右,经0.9%生理盐水洗净后置于4%多聚甲醛中固定;另取部分十二指肠肠段及内容物置于冻存管中液氮速冻后运回实验室,在-80 ℃超低温冰箱中保存待测。

1.5 测定指标及方法

1.5.1 生长性能测定

在37、57和77日龄时进行晨饲前称重,在称重前1天19:00对2组鹅只统一停料,统计每日消耗饲粮量,计算平均日增重、平均日采食量及料重比。

1.5.2 十二指肠中消化酶活性测定

取冻存于-80 ℃超低温冰箱中的十二指肠组织,采用相应试剂盒(苏州格锐思生物科技有限公司)分别测定α-淀粉酶、脂肪酶、胰蛋白酶、糜蛋白酶及碱性磷酸酶活性。测定方法为底物比色法,具体操作步骤参照试剂盒说明书。

1.5.3 十二指肠组织形态学观察

取保存于4%多聚甲醛中的十二指肠组织样本,采用苏木精-伊红(HE)染色法制备石蜡切片。每只籽鹅选取3张肠道组织切片,在40倍视野下,每张切片选取3个肠道绒毛结构完整、隐窝清晰可辨的观测区域进行拍照观察。使用Image J软件测量绒毛高度及隐窝深度,并计算绒隐比(绒毛高度/隐窝深度)。以每只籽鹅3张切片测量值的平均值作为单样本数据。

1.5.4 十二指肠中紧密连接蛋白相关基因表达测定

取出冻存于-80 ℃超低温冰箱中的十二指肠组织,采用TRIzol法提取总RNA。使用超微量核酸蛋白测定仪(Nabi,MicroDigital Co., Ltd.,韩国)检测RNA的纯度与浓度后,采用反转录试剂盒(TaKaRa,日本)将RNA逆转录为cDNA,并通过实时荧光定量PCR仪(qTOWER3G,Analytik Jena AG,德国)进行荧光定量PCR检测。PCR反应体系为20 μL:ChamQ Universal SYBR qPCR Master Mix 10 μL,上、下游引物各1 μL,模板cDNA 2 μL,ddH2O 6 μL。反应条件为:95 ℃预变性3 min;95 ℃变性5 s,60 ℃退火15 s,72 ℃延伸15 s,共40个循环。以β-肌动蛋白(β-actin)为内参基因,选择闭合蛋白-1(Claudin-1)、咬合蛋白(Occludin)、闭锁小带蛋白-1(ZO-1)和闭锁小带蛋白-2(ZO-2)作为目的基因,采用2-ΔΔCt法计算目的基因的mRNA相对表达量。引物参照NCBI提供的序列进行设计,由上海生工生物工程技术服务有限公司合成,引物序列见表2
表2 实时荧光定量PCR所用引物序列

Table 2 Primer sequences employed in RT-qPCR

基因名称 引物序列 产物大小 NCBI编码
Gene names Primer sequences (5'—3') Product size/bp NCBI No.
闭合蛋白-1 F:GACCAGGTGAAGAAGATGCGGATG 107 XM_013199194.3
Claudin-1 R:CGAGCCACTCTGTTGCCATACC
咬合蛋白 F:GGTGATTACGGCTACGACTACGG 97 XM_066983783.1
Occludin R:GCGGCGAGGTCCACTTGTAG
闭锁小带蛋白-1 F:CAGATACAGAAGGTGGTGCTTATACG 89 XM_048060261.2
ZO-1 R:TGTAATAGCGGATTCAGGAGGAGTC
闭锁小带蛋白-2 F:GGTCTTCGGCTTGGAAGTCA 172 XM_066988260.1
ZO-2 R:GCTTTCCCCGTGACTTCTCA
β-肌动蛋白 F:CCCAGCCATGTATGTAGCCATCC 91 XM_013174886.1
β-actin R:AACACCATCACCAGAGTCCATCAC

1.5.5 十二指肠中氨基酸转蛋白表达测定

采用蛋白质免疫印迹(Western Blot)法检测十二指肠中兴奋性氨基酸转运蛋白3(EAAT3)、阳离子氨基酸转运蛋白-1(CAT-1)、Na+/Cl-依赖性中性及碱性氨基酸转运蛋白B(0,+)[ATB(0,+)]的蛋白相对表达量,以β-actin为内参蛋白。提取十二指肠组织蛋白,使用BCA蛋白浓度测定试剂盒(北京酷来搏科技有限公司)测定样本总蛋白浓度。随后进行十二烷基硫酸钠-聚丙烯酰胺凝胶电泳(SDS-PAGE),上样后以浓缩胶80 V、分离胶120 V的条件进行电泳。电泳结束后,将蛋白转至经甲醇活化的聚偏二氟乙烯(PVDF)膜上,用5%脱脂乳封闭2 h。一抗于4 ℃摇床孵育过夜后,用TBST缓冲液冲洗4次,每次8 min。二抗室温孵育2 h,再次用TBST冲洗4次,每次8 min。使用增强型ECL化学发光液显色,将膜置于化学发光仪中拍照保存。采用Image J软件对蛋白条带进行灰度值分析。蛋白质免疫印迹分析所用抗体信息见表3
表3 蛋白质免疫印迹分析所用抗体信息

Table 3 Antibody information used for Western Blot analysis

项目
Items
名称
Name
生产商
Manufacture
货号
Number
稀释比例
Dilution ratio


一抗
Primary antibodies
EAAT3 Abclonal A2903 1∶500
CAT-1 Abclonal A6365 1∶100
ATB(0,+) Abclonal A10582 1∶500
β-actin Boster BM0627 1∶5 000
二抗 Secondary antibodies 羊抗兔IgG-HRP Abclonal AS014 1∶2 000

1.5.6 肠道菌群分析

取出冻存的十二指肠内容物,采用十六烷基三甲基溴化铵(CTAB)-十二烷基硫酸钠(SDS)法提取DNA。利用琼脂糖凝胶电泳检测DNA完整性,并使用Nanodrop 2000评估其纯度。选取合格的DNA样本,采用特异性引物338F(5'-ACTCCTACGGGAGGCAGCA-3')和806R(5'-GGACTACHVGGGTWTCTAAT-3'),针对16S rRNA基因的V3~V4区进行PCR扩增。扩增产物使用TruSeq Nano DNA LT Library Prep Kit(Illumina,美国)构建测序文库,并在Illumina MiSeq平台进行PE300双端测序。原始数据通过QIIME2平台进行分析,采用DADA2算法对序列进行过滤、去噪、拼接等处理。使用QIIME2软件计算各样本的Alpha多样性指数,以评估不同样品在扩增子序列变体(ASV)水平上的物种丰富度与均匀度。基于UniFrac距离,利用R软件和QIIME2软件进行Beta多样性分析,探究样本间微生物群落结构的差异,并采用主坐标分析(PCoA)进行可视化。在优势菌门和优势菌属水平上,统计并比较不同样本中微生物类群的相对丰度。

1.6 数据统计与分析

试验数据通过Excel 2016进行初步整理,结果均以“平均值±标准误”表示。采用SPSS 27.0软件进行独立样本t检验,P<0.05表示差异显著,P<0.01表示差异极显著。使用GraphPad Prism 10软件作图。

2 结果与分析

2.1 粪肠球菌对籽鹅生长性能的影响

表4可知,试验组37日龄体重与对照组无显著差异(P>0.05),57和77日龄体重则极显著高于对照组(P<0.01);试验组58~77日龄阶段平均日增重与对照组无显著差异(P>0.05),但37~57日龄和37~77日龄阶段平均日增重较对照组极显著升高(P<0.01);与对照组相比,试验组各日龄阶段平均日采食量无显著变化(P>0.05);此外,试验组37~77日龄阶段料重比显著低于对照组(P<0.05)。
表4 粪肠球菌对籽鹅生长性能的影响

Table 4 Effects of Enterococcus faecalis on growth performance of Zi geese

项目
Items
日龄
Days of age
对照组
Control group
试验组
Test group
P
P-value


体重
BW/g
37 1 295.00±10.68 1 316.40±12.26 0.225
57 2 521.20±22.15 2 737.60±19.71** <0.001
77 3 435.40±24.45 3 727.40±39.57** <0.001


平均日增重
ADG/g
37~57 61.31±1.24 71.06±0.70** <0.001
58~77 45.71±1.63 49.49±1.88 0.168
37~77 53.51±0.71 60.27±1.00** <0.001


平均日采食量
ADFI/g
37~57 366.67±6.47 378.90±7.38 0.248
58~77 209.23±6.72 211.98±7.11 0.786
37~77 287.95±1.88 295.44±6.06 0.294
料重比 F/G 37~77 5.38±0.08 4.90±0.13* 0.017

试验组数据标注“*”表示与对照组差异显著(P<0.05),标注“**”表示与对照组差异极显著(P<0.01)。下表同。

In the test group, values with “*” indicated a significant difference (P<0.05), and “**” indicated an extremely significant difference compared with the control group (P<0.01). The same as below.

2.2 粪肠球菌对籽鹅十二指肠中消化酶活性的影响

表5可知,在37日龄时,试验组相较于对照组十二指肠中α-淀粉酶、脂肪酶、胰蛋白酶、糜蛋白酶和碱性磷酸酶活性均无显著变化(P>0.05);在57和77日龄时,试验组十二指肠中α-淀粉酶、脂肪酶、胰蛋白酶、糜蛋白酶和碱性磷酸酶活性均显著高于对照组(P<0.05)。
表5 粪肠球菌对籽鹅十二指肠中消化酶活性的影响

Table 5 Effects of Enterococcus faecalis on duodenal digestive enzyme activities of Zi geese

项目
Items
日龄
Days of age
对照组
Control group
试验组
Test group
P
P-value


α-淀粉酶
α-AL/(μg/mg prot)
37 2.52±0.14 2.55±0.18 0.894
57 3.16±0.27 4.27±0.31* 0.025
77 5.02±0.31 6.19±0.38* 0.040


脂肪酶
LPS/(U/g prot)
37 13.86±0.45 14.38±0.30 0.364
57 16.81±0.61 18.88±0.51* 0.027
77 20.62±0.58 23.27±0.67* 0.014


胰蛋白酶
Try/(U/g prot)
37 1.99±0.14 2.28±0.13 0.190
57 2.70±0.18 3.31±0.15* 0.028
77 3.84±0.18 4.94±0.29* 0.011


糜蛋白酶
Chy/(U/g prot)
37 6.34±0.35 6.40±0.41 0.902
57 8.03±0.33 9.21±0.36* 0.039
77 10.82±0.48 12.90±0.59* 0.022


碱性磷酸酶
AKP/(U/g prot)
37 2.15±0.12 2.06±0.13 0.636
57 3.35±0.31 4.32±0.29* 0.047
77 5.33±0.30 6.51±0.38* 0.037

2.3 粪肠球菌对籽鹅十二指肠组织形态的影响

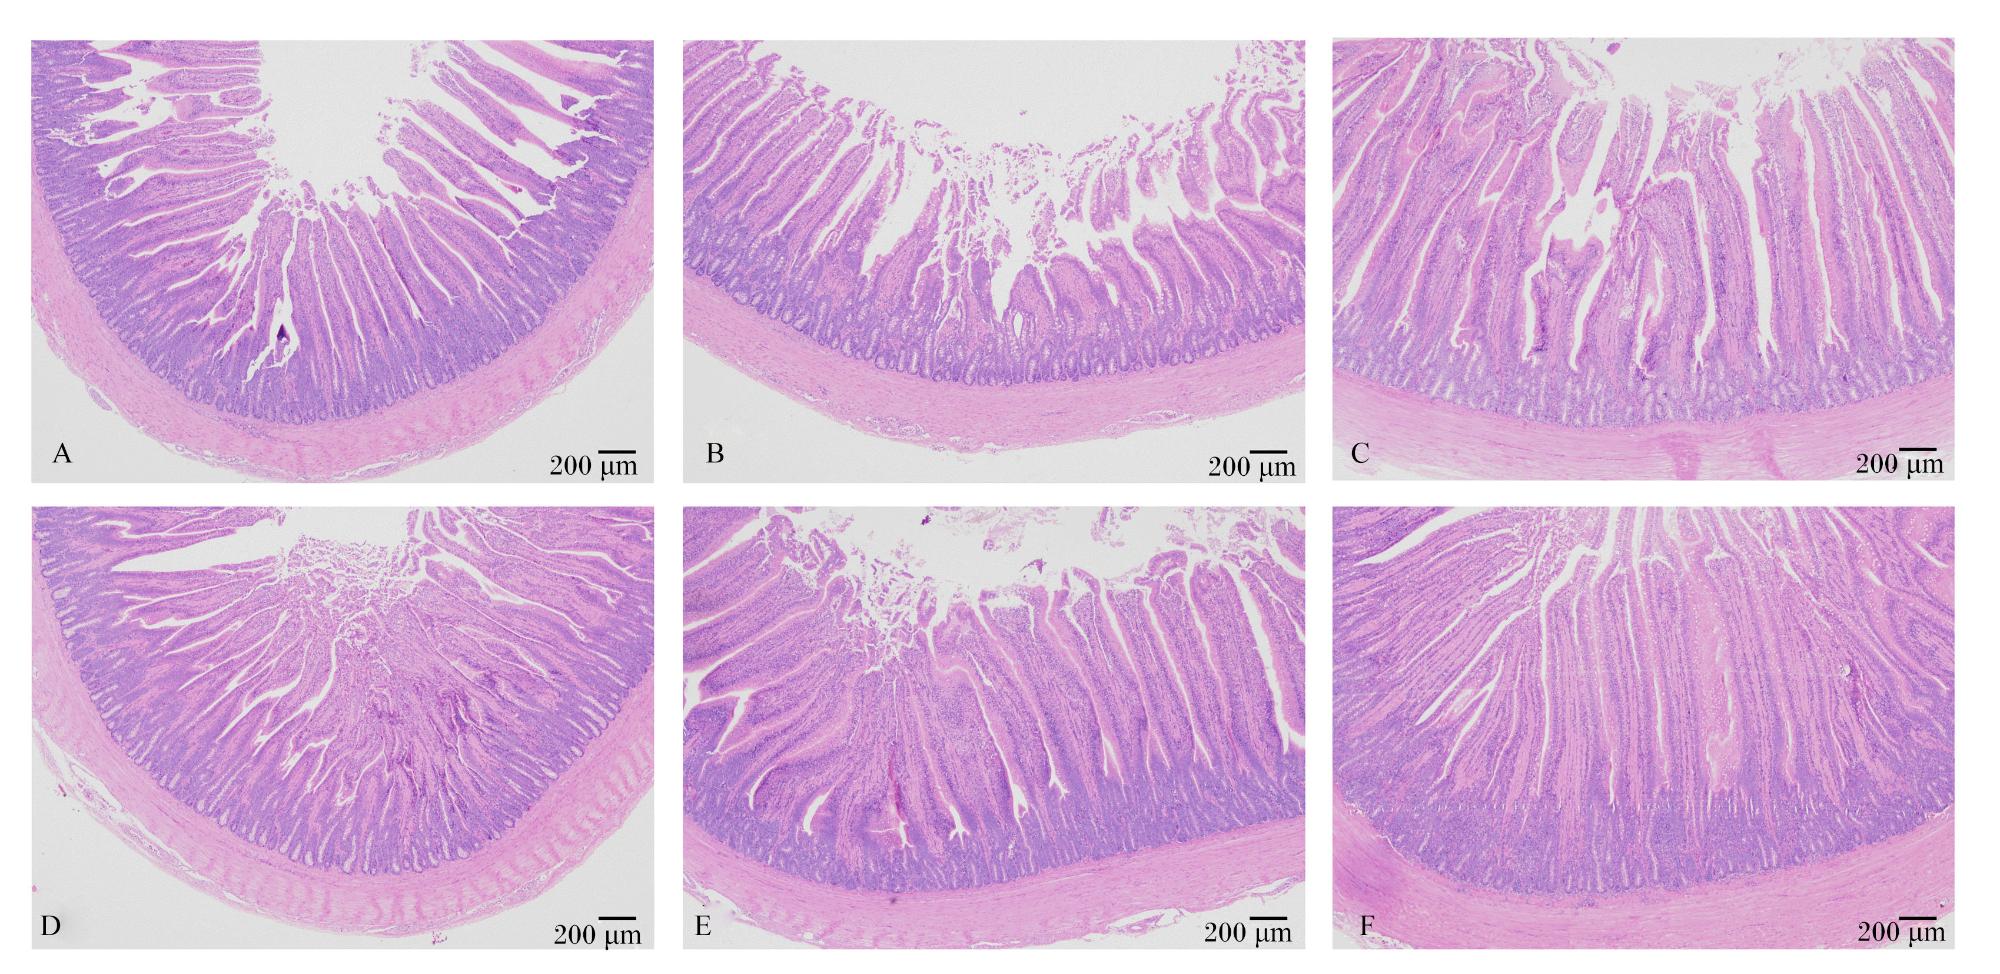
各组籽鹅十二指肠组织切片见图1。由表6可知,在37日龄时,试验组与对照组十二指肠绒毛高度、隐窝深度及绒隐比无显著差异(P>0.05);在57和77日龄时,与对照组相比,试验组十二指肠绒毛高度显著或极显著升高(P<0.05或P<0.01),绒隐比极显著升高(P<0.01),隐窝深度则极显著降低(P<0.01)。
图1 各组籽鹅十二指肠组织切片(HE染色)

A、B、C分别为对照组籽鹅37、57和77日龄时十二指肠组织形态;D、E、F分别为试验组籽鹅37、57和77日龄时十二指肠组织形态。

Fig.1 Duodenal tissue sections of Zi geese in each group (HE staining)

A, B and C represented the duodenal tissue morphology of the control group at 37, 57 and 77 days of age, respectively; D, E and F represented the duodenal tissue morphology of the test group at 37, 57 and 77 days of age, respectively.

表6 粪肠球菌对籽鹅十二指肠组织形态的影响

Table 6 Effects of Enterococcus faecalis on duodenal tissue morphology of Zi geese

项目
Items
日龄
Days of age
对照组
Control group
试验组
Test group
P
P-value


绒毛高度
Villus height/μm
37 662.85±9.86 705.75±12.75 0.056
57 954.34±12.31 1 064.87±21.08* 0.011
77 1 091.70±18.84 1 218.19±6.44** 0.003


隐窝深度
Crypt depth/μm
37 342.21±4.42 352.46±6.66 0.269
57 377.71±5.40 325.82±8.16** 0.006
77 402.65±12.22 298.37±14.98** 0.006


绒隐比
Villus height/crypt depth ratio
37 1.93±0.04 2.00±0.07 0.459
57 2.52±0.06 3.27±0.11** 0.005
77 2.71±0.08 4.10±0.19** 0.003

2.4 粪肠球菌对籽鹅十二指肠中紧密连接蛋白相关基因表达的影响

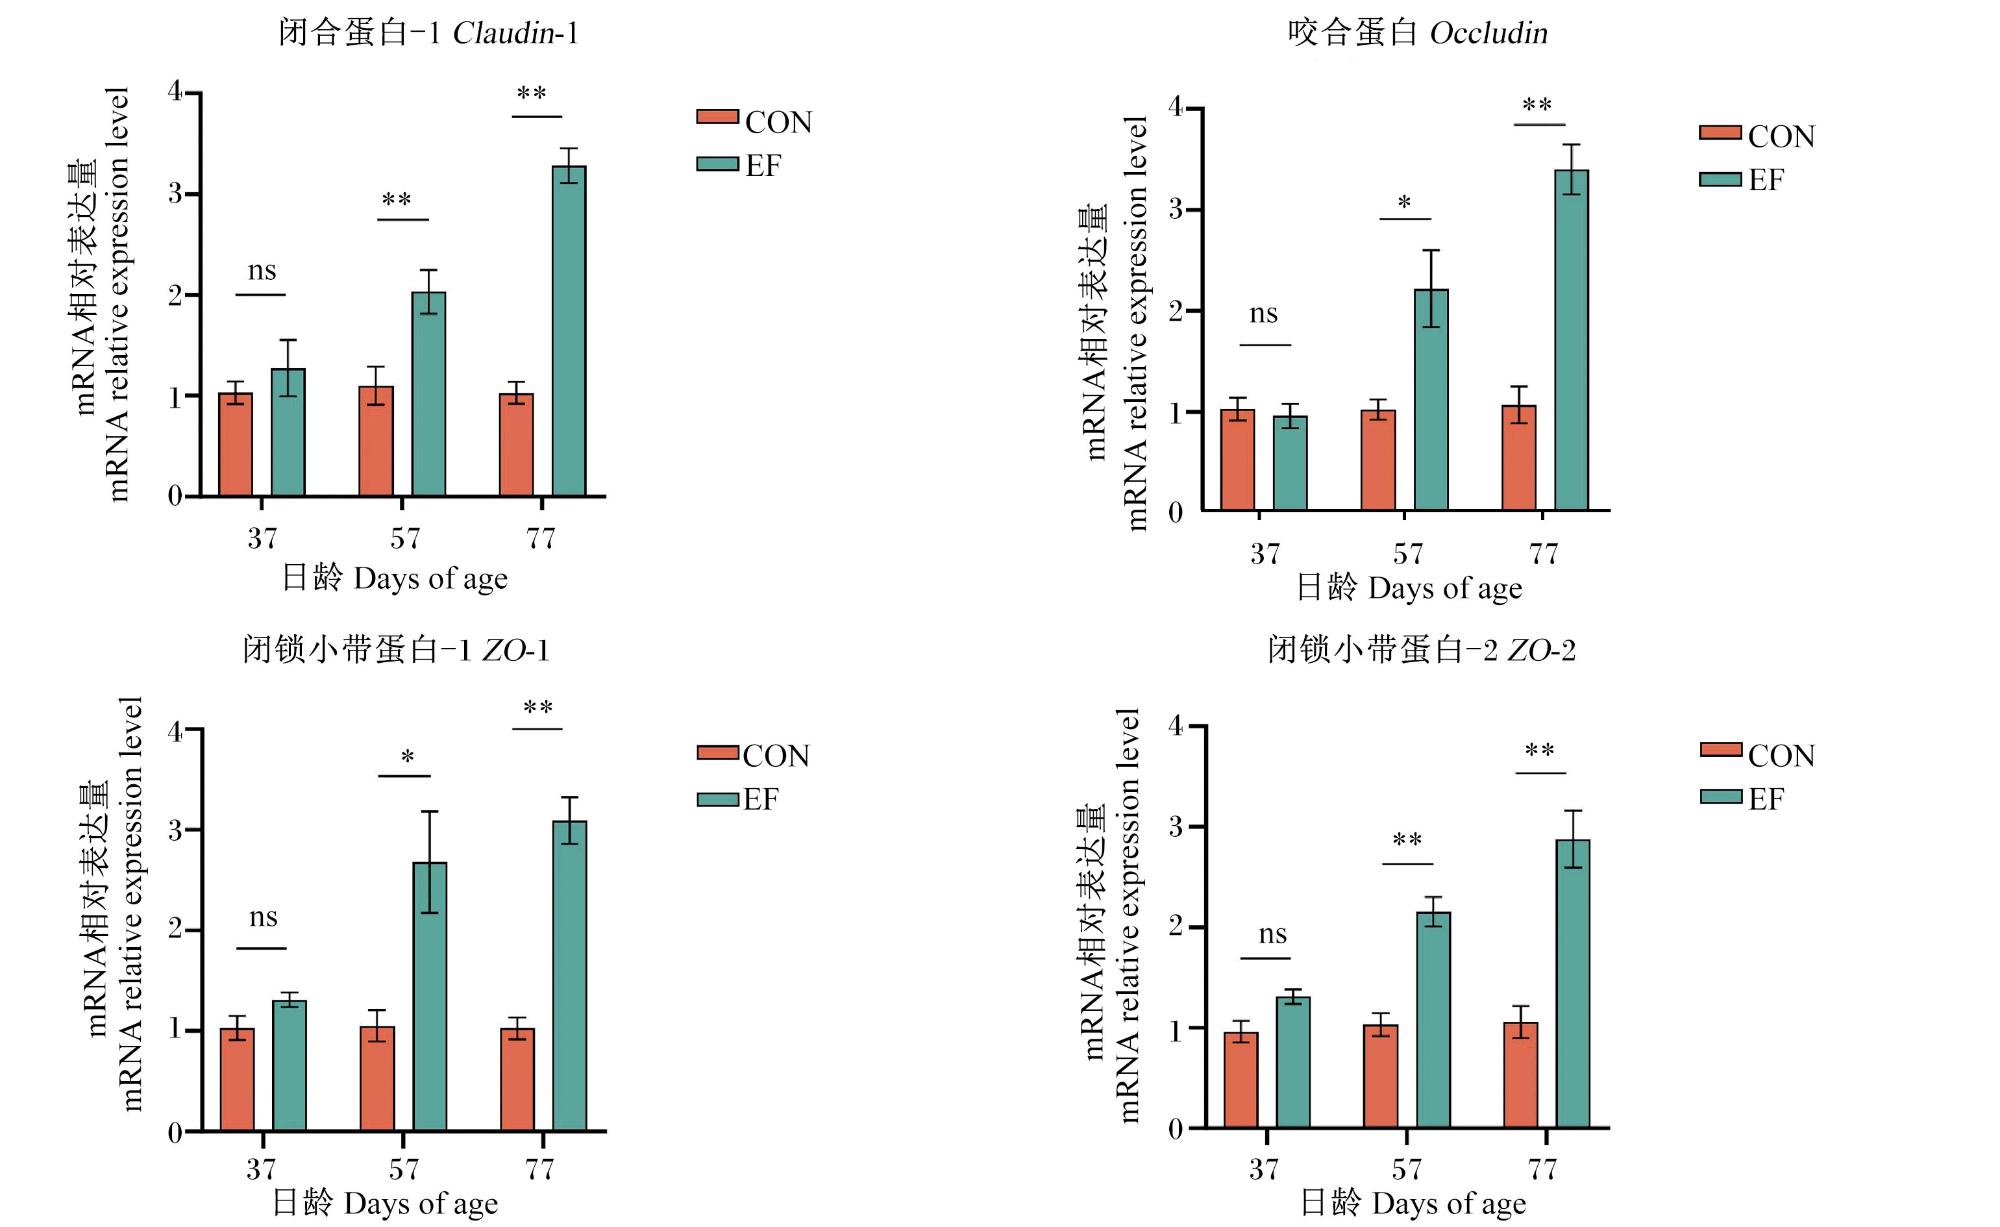
图2可知,在37日龄时,与对照组相比,试验组十二指肠中Claudin-1、OccludinZO-1、ZO-2的mRNA相对表达量无显著变化(P>0.05);但在57和77日龄时,试验组十二指肠中Claudin-1、OccludinZO-1、ZO-2的mRNA相对表达量显著或极显著高于对照组(P<0.05或P<0.01)。
图2 粪肠球菌对籽鹅十二指肠中紧密连接蛋白相关基因表达的影响

CON代表对照组,EE代表试验组。“ns”表示差异不显著(P>0.05),“*”表示差异显著(P<0.05),“**”表示差异极显著(P<0.01)。图3图4同。

Fig.2 Effects of Enterococcus faecalis on expression of tight junction protein-related genes in duodenum of Zi geese

CON represented the control group, and EE represented the test group. “ns” indicated no significant difference (P>0.05), “*” indicated a significant difference (P<0.05), and “**” indicated an extremely significant difference (P<0.01). The same as Fig.3 and Fig.4.

2.5 粪肠球菌对籽鹅十二指肠中氨基酸转运蛋白表达的影响

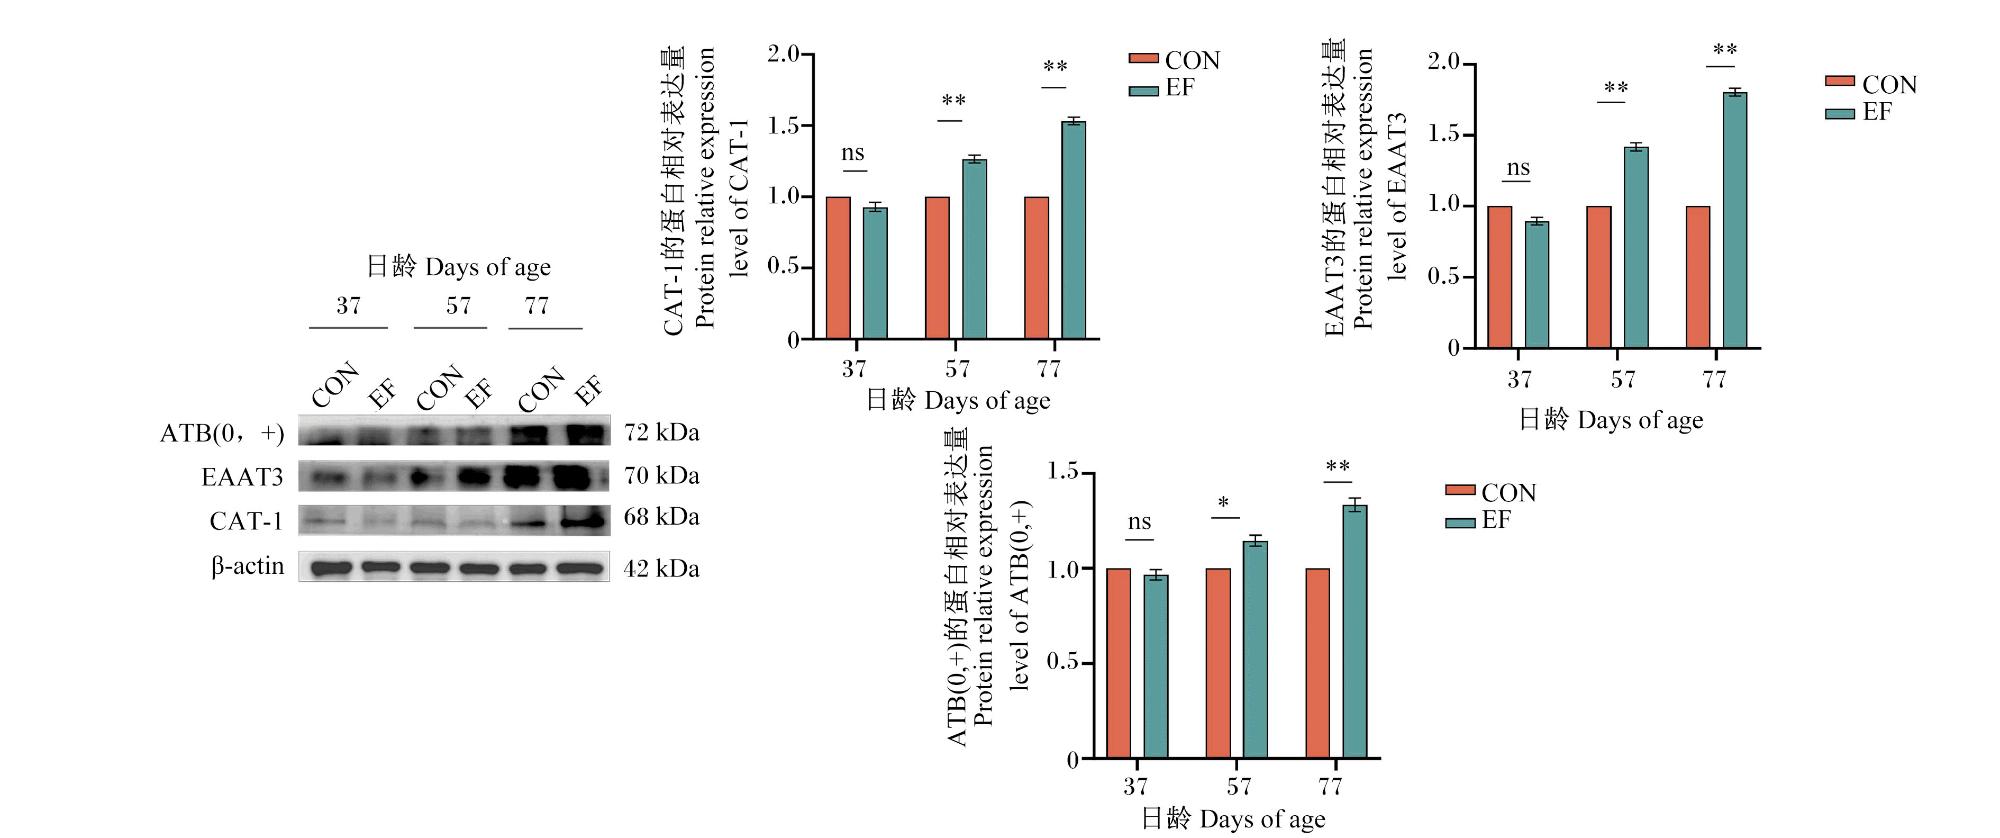
图3可知,在37日龄时,与对照组相比,试验组十二指肠中EAAT3、CAT-1和ATB(0,+)的蛋白相对表达量均无显著变化(P>0.05);但在57和77日龄时,试验组十二指肠中EAAT3、CAT-1和ATB(0,+)的相对表达量显著或极显著高于对照组(P<0.05或P<0.01)。
图3 粪肠球菌对籽鹅十二指肠中氨基酸转运蛋白表达的影响

EAAT3:兴奋性氨基酸转运蛋白3 excitatory amino acid transporter 3;CAT-1:阳离子氨基酸转运蛋白-1 cationic amino acid transporter-1;ATB(0,+):Na+/Cl-依赖性中性和阳离子氨基酸转运蛋白B(0,+) sodium- and chloride-dependent neutral and cationic amino acid transporter B(0,+);β-actin:β-肌动蛋白。

Fig.3 Effects of Enterococcus faecalis one expression of amino acid transporters in duodenum of Zi geese

2.6 粪肠球菌对籽鹅肠道菌群的影响

2.6.1 肠道菌群Alpha多样性分析

表7可知,与对照组相比,试验组Chao1指数在37日龄时无显著变化(P>0.05),在57和77日龄时虽有所下降,但差异不显著(P>0.05);试验组Shannon指数在37日龄时显著高于对照组(P<0.05),在57和77日龄时则与对照组无显著差异(P>0.05);2组之间Simpson指数在各日龄时均无显著差异(P>0.05)。
表7 粪肠球菌对籽鹅肠道菌群Alpha多样性的影响

Table 7 Effects of Enterococcus faecalis on intestinal microbiota Alpha diversity of Zi geese

项目
Items
日龄
Days of age
对照组
Control group
试验组
Test group
P
P-value


Chao1指数
Chao1 index
37 659.69±75.58 796.87±41.62 0.151
57 424.13±118.76 265.92±58.51 0.298
77 605.39±221.06 342.87±93.69 0.306


Shannon指数
Shannon index
37 6.40±0.19 7.07±0.18* 0.035
57 6.02±0.71 4.72±0.53 0.221
77 5.89±0.88 5.72±0.77 0.886


Simpson指数
Simpson index
37 0.94±0.01 0.96±0.01 0.128
57 0.94±0.02 0.83±0.07 0.277
77 0.90±0.05 0.91±0.04 0.899

2.6.2 肠道菌群Beta多样性分析

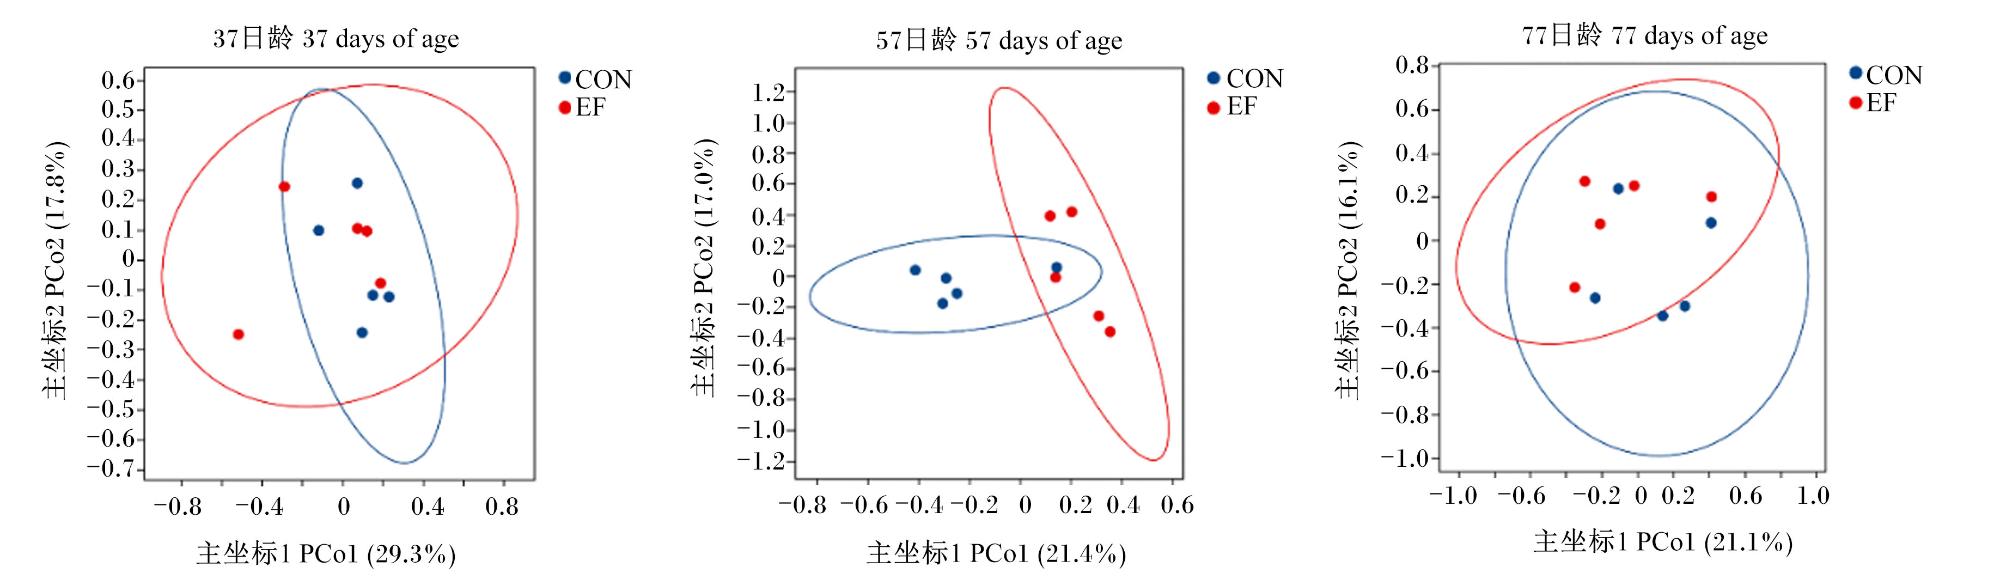
图4所示,PCoA分析结果显示,在37和77日龄时,2组之间样本分布存在明显重叠,说明微生物群落结构差异较小;在57日龄时,对照组样本分布在负向区域,试验组样本集中在正向区域,2组之间几乎无重叠,呈现明显分离,说明微生物群落结构差异较大。
图4 粪肠球菌对籽鹅肠道菌群Beta多样性的影响

Fig.4 Effects of Enterococcus faecalis on intestinal microbiota Beta diversity of Zi geese

2.6.3 肠道菌群物种组成分析

表8可知,在门水平上,2组之间各日龄时厚壁菌门(Firmicutes)、放线菌门(Actinobacteria)、变形菌门(Proteobacteria)三者的相对丰度之总均占肠道菌群总丰度的70%以上;试验组各日龄时厚壁菌门的相对丰度均高于对照组,但37日龄时差异未达到显著水平(P>0.05),而57和77日龄时差异达到显著水平(P<0.05);2组之间拟杆菌门(Bacteroidetes)、放线菌门和变形菌门的相对丰度在各日龄时均无显著差异(P>0.05),其中,试验组籽鹅肠道变形菌门的相对丰度在57和77日龄时相较于对照组有所下降。
表8 肠道菌群中优势菌门的相对丰度

Table 8 Relative abundance of dominant phyla in intestinal microbiota%

项目
Items
日龄
Days of age
对照组
Control group
试验组
Test group
P
P-value


厚壁菌门
Firmicutes
37 36.97±5.20 52.71±6.69 0.101
57 22.56±2.71 45.11±5.55* 0.019
77 36.55±1.50 66.39±7.31* 0.016


拟杆菌门
Bacteroidetes
37 0.65±0.35 0.39±0.06 0.504
57 1.67±0.42 2.52±0.69 0.337
77 0.99±0.41 1.75±0.72 0.417


放线菌门
Actinobacteria
37 53.79±4.36 38.88±7.05 0.118
57 20.86±2.43 20.91±4.91 0.993
77 27.14±2.00 16.22±8.31 0.271


变形菌门
Proteobacteria
37 8.13±3.89 7.39±1.53 0.863
57 35.33±7.69 19.43±2.40 0.096
77 26.37±9.14 13.66±1.96 0.246
表9可知,在属水平上,2组之间棒杆菌属(Corynebacterium)、螺杆菌属(Helicobacter)、乳杆菌属(Lactobacillus)、链球菌属(Streptococcus)和肠球菌属(Enterococcus)的相对丰度在各日龄时均无显著差异(P>0.05),其中,在77日龄时试验组棒杆菌属和螺杆菌属的相对丰度较对照组有所下降,57和77日龄时试验组乳杆菌属的相对丰度则较对照组有所升高;与对照组相比,试验组芽孢杆菌科芽孢杆菌属(Bacillaceae_Bacillus)的相对丰度在37和57日龄时无显著变化(P>0.05),在77日龄时则显著升高(P<0.05)。
表9 肠道菌群中优势菌属的相对丰度

Table 9 Relative abundance of dominant genera in intestinal microbiota

项目
Items
日龄
Days of age
对照组
Control group
试验组
Test group
P
P-value


棒杆菌属
Corynebacterium
37 45.03±4.17 30.13±5.71 0.068
57 5.25±2.17 5.28±2.69 0.993
77 5.55±2.88 0.65±0.35 0.167


螺杆菌属
Helicobacter
37 0.15±0.08 0.39±0.35 0.528
57 16.52±8.61 0.33±0.27 0.133
77 30.01±24.34 21.28±16.07 0.780


乳杆菌属
Lactobacillus
37 0.74±0.69 0.83±0.62 0.927
57 1.47±1.22 3.96±2.83 0.443
77 8.59±5.10 12.04±6.44 0.697


链球菌属
Streptococcus
37 4.39±2.42 2.40±0.57 0.447
57 1.67±0.51 4.00±1.71 0.230
77 2.27±1.34 0.53±0.32 0.276


肠球菌属
Enterococcus
37 1.09±0.14 2.59±1.05 0.227
57 0.83±0.20 6.25±4.22 0.269
77 0.45±0.12 1.29±1.17 0.546


芽孢杆菌科芽孢杆菌属
Bacillaceae_Bacillus
37 0.47±0.39 1.25±0.45 0.237
57 1.70±0.33 0.84±0.42 0.149
77 0.12±0.08 2.69±0.06** <0.001

3 讨论

3.1 粪肠球菌对籽鹅生长性能的影响

粪肠球菌是天然存在于人类和动物肠道内的一种乳酸菌,其自身含有的营养物质可被动物机体吸收利用,从而提供额外的营养补充。同时,粪肠球菌在肠道繁殖和定植的过程中,可产生大量的活性物质,尤其是维生素和各种酶类,可增强宿主的消化功能,促进动物机体对营养物质的消化和利用。Shehata等[14]以科宝肉鸡为试验对象,每日每只通过口服补充108 CFU的粪肠球菌,结果发现,在24、30和40日龄时,试验组体重均显著高于对照组,且试验组料重比得到显著改善,提升了肉鸡的经济效益;Zhang等[15]的研究显示,在基础饲粮中添加1×10⁹ CFU/kg的粪肠球菌显著提升了肉鸡的平均日增重,降低了料重比。本试验结果与上述研究结果基本一致,每日每只鹅通过饮水补充1×108 CFU粪肠球菌显著提高了57和77日龄籽鹅的体重以及37~57日龄和37~77日龄阶段的平均日增重,且体重随着日龄的增长呈上升趋势,同时显著降低了37~77日龄阶段的料重比。上述结果表明,粪肠球菌可通过提高饲料利用率,有效改善籽鹅的生长性能。

3.2 粪肠球菌对籽鹅十二指肠中消化酶活性的影响

机体的生长发育主要依赖于营养物质的吸收,而这有赖于肠道中高活性的消化酶对饲料的分解、吸收与利用。益生菌可通过激活肠道内源性消化酶(如蛋白酶、淀粉酶)或直接分泌辅助消化酶,提高饲粮中蛋白质和碳水化合物的降解效率,从而减少未消化营养物质的排泄损失[16-18]。黄金国等[19]研究表明,在饲粮中添加200 g/t粪肠球菌(活菌数为2×1010 CFU/g)可使肉鸡十二指肠内胰蛋白酶、淀粉酶、脂肪酶的活性显著提高;刘军等[20]研究报道,在饲粮中添加200 mg/kg粪肠球菌(活菌数为1×1010 CFU/g)可以显著提高爱拔益加(AA)肉鸡小肠内胰蛋白酶、脂肪酶和糜蛋白酶的活性。本试验结果表明,每日每只鹅通过饮水补充1×108 CFU粪肠球菌显著提高了籽鹅十二指肠中α-淀粉酶、脂肪酶、胰蛋白酶、糜蛋白酶和碱性磷酸酶的活性,且随着日龄的增长呈现递增趋势,与上述研究结果基本一致。家禽体内营养物质的吸收过程由胃蛋白酶、胰蛋白酶、糜蛋白酶和脂肪酶等共同参与完成,碱性磷酸酶可调节十二指肠pH、抑制炎症产生。籽鹅小肠内消化酶活性的显著提高表明其对饲粮的利用能力提升,从而提高籽鹅的生长性能。

3.3 粪肠球菌对籽鹅十二指肠组织形态的影响

肠道是家禽消化吸收营养物质的关键部位,肠道健康是促进家禽生长发育的重要因素,肠道组织形态是反映肠道健康状况的主要依据之一,绒毛高度、隐窝深度、绒隐比是反映肠道吸收营养能力的重要指标,绒毛高度增加是肠道吸收能力增强的标志,隐窝变浅有利于肠道干细胞的分泌功能,绒隐比降低表示肠道吸收营养物质的能力减弱[21-22]。研究发现,在每千克饲粮中添加含有粪肠球菌的复合益生菌,可提高肉鸡空肠和回肠的绒毛高度,降低隐窝深度,提升绒隐比,表明粪肠球菌在肠道发育过程中起到积极作用[23-24]。在本试验中,每日每只鹅通过饮水补充1×10⁸ CFU粪肠球菌显著或极显著提高了57和77日龄籽鹅十二指肠绒毛高度及绒隐比,并极显著降低了隐窝深度,说明粪肠球菌可有效改善籽鹅肠黏膜的形态结构,促进肠道更好的吸收营养物质,增强肠道防御力及机体免疫力,从而进一步促进籽鹅的生长。

3.4 粪肠球菌对籽鹅十二指肠中紧密连接蛋白相关基因表达的影响

十二指肠起自幽门,控制食糜由胃进入空肠,作为胃分泌物、胆汁及消化酶的首要接触部位,在消化调节、营养吸收与维持肠道蠕动中发挥核心作用。肠道黏膜屏障的完整性与炎症反应及全身免疫密切相关,肠黏膜上皮细胞构成的物理屏障可有效阻断内毒素与致病菌入侵,上皮细胞间存在紧密连接、黏着连接、间隙连接及桥粒连接4种连接方式,其中紧密连接通过形成复合体调控营养物质跨膜转运[25-28]。紧密连接主要由闭合蛋白家族(Claudins)、咬合蛋白和闭锁小带蛋白家族(ZOs)等紧密连接蛋白组装而成,紧密连接蛋白表达量的降低会导致肠道通透性增加,其表达量的高低是评估肠道屏障功能的重要指标之一。Yang等[29]研究表明,每日每只鸡口服补充1 mL浓度为1×10⁸ CFU/mL的植物乳杆菌与粪肠球菌复合菌剂,可上调肉鸡肠道中紧密连接蛋白相关基因Claudin-1、ZO-1和Occludin的表达,从而缓解由肠道沙门氏菌引起的肠道屏障损伤。Martin等[30]研究发现,每日每只鸡口服补充0.2 mL浓度为1×10⁹ CFU/mL的粪肠球菌,可显著上调11日龄雏鸡回肠中Occludin的mRNA相对表达量,以及5和11日龄雏鸡回肠中Claudin-1的mRNA相对表达量。在本试验中,每日每只鹅通过饮水补充1×108 CFU粪肠球菌显著或极显著上调了57和77日龄籽鹅十二指肠中Claudin-1、OccludinZO-1、ZO-2的mRNA相对表达量,说明粪肠球菌对籽鹅肠道屏障功能的调控存在积极作用,从而促进肠道发育及营养吸收,改善生长性能。

3.5 粪肠球菌对籽鹅十二指肠中氨基酸转运蛋白表达的影响

氨基酸不仅是动物机体维持正常生长发育的核心营养素,更是机体所需众多重要物质合成的前体,其发挥功能的过程离不开肠道上皮细胞氨基酸转运载体的精准转运,氨基酸通常由分布在肠道上皮细胞膜的氨基酸转运载体的协助进入上皮细胞,再由细胞基底部的氨基酸转运载体转出细胞最终被机体利用,且随着动物肠道组织的成熟与发育,肠道上皮细胞中氨基酸转运蛋白的表达量会有所提升,其介导的氨基酸转运效率也随之增强,从而更高效地促进肠道对氨基酸的转运吸收[31-33]。蛋氨酸和赖氨酸为种禽的第一和第二限制性氨基酸,对其生长发育具有重要作用。氨基酸转运蛋白EAAT3、CAT-1、ATB(0,+)主要分布在肠上皮细胞中[31],且转运底物包括赖氨酸与蛋氨酸。本试验结果显示,每日每只鹅通过饮水补充1×10⁸ CFU粪肠球菌显著或极显著上调了57和77日龄籽鹅十二指肠中氨基酸转运蛋白EAAT3、CAT-1、ATB(0,+)的相对表达量,表明粪肠球菌可能促进籽鹅对氨基酸的转运吸收。

3.6 粪肠球菌对籽鹅肠道菌群的影响

肠道菌群是肠道环境的重要组成部分,调控宿主的生长发育及健康稳态,既能促进营养物质的消化吸收,又在维护肠道免疫功能等方面发挥重要作用。肠道菌群可通过竞争性定植于肠道黏膜表面形成物理屏障,并分泌多种抑菌物质有效抵御病原体的入侵并抑制有害菌生长,进而增强机体的免疫功能,为动物的健康提供保障[34-36]。有研究表明,外源添加粪肠球菌改善了肉鸡的肠道微生物群落组成,增加了厚壁菌门的相对丰度,对变形菌门的定植起着负向调控作用[7-8]。这与本试验的结果基本一致,本研究发现,每日每只鹅通过饮水补充1×10⁸ CFU粪肠球菌显著提升了57和77日龄籽鹅肠道中厚壁菌门的相对丰度,明显降低变形菌门的相对丰度。变形菌门相对丰度的升高是肠道微生物群落失调及患病风险增加的重要标志[37]。厚壁菌门与拟杆菌门作为优势菌门,均具有产生丁酸的能力,二者协同作用可促进蛋白质合成与能量吸收[38]。有研究报道,厚壁菌门与拟杆菌门的比值与动物体内脂肪沉积量成正比[39]。胡新月[40]研究发现,在基础饲粮中添加1.5 g/kg的粪肠球菌(浓度为5×109 CFU/g)可以增加肠道内乳杆菌属的相对丰度,本试验结果与此一致乳杆菌属与芽孢杆菌属作为常见的益生菌属,可清除宿主体内病原菌,改善肠道屏障功能[41-42]。此外,本试验中,试验组螺杆菌属的相对丰度在57和77日龄均低于对照组。研究表明,螺杆菌属是家禽腺肌性胃炎的重要致病因素,严重影响家禽生长性能[43]。上述结果表明,粪肠球菌可促进肠道中有益菌的增殖,抑制有害菌的相对丰度,从而改善籽鹅的肠道健康。

4 结论

通过饮水补充粪肠球菌(每日每只鹅1×10⁸ CFU)可提高籽鹅十二指肠中消化酶活性,上调紧密连接蛋白相关基因的表达,增强肠道屏障功能;同时,可促进十二指肠中氨基酸转运蛋白的表达,增强氨基酸的转运与吸收能力,改善肠道形态及菌群组成,维持肠道健康,从而提升籽鹅的生长性能。
[1]
NAMMI J, PASALA R, ANDHE N, et al. Antibiotic misuse:an in-depth examination of its global consequences and public health challenges[J]. Cureus, 2025, 17(6):e85941.

[2]
赵树生, 和世春, 戴思凡, 等. 畜禽肠道菌群耐药基因的研究进展[J]. 饲料工业, 2025, 46(4):154-160.

ZHAO S S, HE S C, DAI S F, et al. Research progress on drug resistance genes in the gut microbiota of livestock and poultry[J]. Feed Industry, 2025, 46(4):154-160. (in Chinese)

[3]
MOUNTZOURIS K C, TSITRSIKOS P, PALAMIDI I, et al. Effects of probiotic inclusion levels in broiler nutrition on growth performance,nutrient digestibility,plasma immunoglobulins,and cecal microflora composition[J]. Poultry Science, 2010, 89(1):58-67.

DOI

[4]
ADIL S, MAGRAY S. Impact and manipulation of gut microflora in poultry:a review[J]. Journal of Animal and Veterinary Advances, 2012, 11(6):873-877.

DOI

[5]
LIU Z L, CHEN Y J, MENG Q L, et al. Progress in the application of Enterococcus faecium in animal husbandry[J]. Frontiers in Cellular and Infection Microbiology, 2023, 13:1168189.

DOI

[6]
OGNIK K, KRAUZE M, CHOLEWIŃSKA E, et al. The effect of a probiotic containing Enterococcus faecium DSM 7134 on redox and biochemical parameters in chicken blood[J]. Annals of Animal Science, 2017, 17(4):1075-1088.

DOI

[7]
LING C, YAN F, LIN K X, et al. A native probiotic strain Enterococcus faecalis TMBC 10513 alleviates avian pathogenic Escherichia coli-induced growth impairment and intestinal disruptions in yellow-feathered broilers at the early stage of infection[J]. Poultry Science, 2025, 104(11):105725.

DOI

[8]
HUSSAIN M, AIZPURUA O, PÉREZ DE ROZAS A, et al. Positive impact of early-probiotic administration on performance parameters,intestinal health and microbiota populations in broiler chickens[J]. Poultry Science, 2024, 103(12):104401.

DOI

[9]
ZHANG G R, ZAHRA A, YANG T R, et al. Enterococcus faecalis strains derived from wild bird provide protection against Clostridium perfringens challenge in locally-sourced broilers[J]. Frontiers in Veterinary Science, 2025, 12:1601605.

DOI

[10]
GARCÍA-VELA S, BEN SAID L, SOLTANI S, et al. Targeting enterococci with antimicrobial activity against Clostridium perfringens from poultry[J]. Antibiotics, 2023, 12(2):231.

DOI

[11]
SHAMES B. Anatomy and physiology of the duodenum[M]// YEO C J.Shackelford’s surgery of the alimentary tract. 8th ed.Philadelphia:Elsevier, 2019:786-803.

[12]
景小平, 彭全辉, 胡瑞, 等. 冷季补饲对藏羊小肠形态发育及营养物质转运载体基因表达量的影响[J]. 畜牧兽医学报, 2017, 48(2):260-271.

JING X P, PENG Q H, HU R, et al. Effects of supplementation in cold season on morphological development of small intestine and the expression of nutrient transporter gene[J]. Acta Veterinaria et Zootechnica Sinica, 2017, 48(2):260-271. (in Chinese)

DOI

[13]
BRÖER S. Intestinal amino acid transport and metabolic health[J]. Annual Review of Nutrition, 2023, 43:73-99.

DOI

[14]
SHEHATA A A, TARABEES R, BASIOUNI S, et al. Effect of a potential probiotic candidate Enterococcus faecalis-1 on growth performance,intestinal microbiota,and immune response of commercial broiler chickens[J]. Probiotics and Antimicrobial Proteins, 2020, 12(2):451-460.

DOI

[15]
ZHANG L, LI J, YUN T T, et al. Effects of pre-encapsulated and pro-encapsulated Enterococcus faecalis on growth performance,blood characteristics,and cecal microflora in broiler chickens[J]. Poultry Science, 2015, 94(11):2821-2830.

DOI

[16]
TARABEES R, GAFAR K M, EL-SAYED M S, et al. Effects of dietary supplementation of probiotic mix and prebiotic on growth performance,cecal microbiota composition,and protection against Escherichia coli O78 in broiler chickens[J]. Probiotics and Antimicrobial Proteins, 2019, 11(3):981-989.

DOI

[17]
刘冬, 丁兆忠, 胡蕾, 等. 发酵桑叶替代基础日粮对育肥猪生长性能、血清生化指标、养分表观消化率及肉品质的影响[J]. 饲料研究, 2023, 46(15):17-22.

LIU D, DING Z Z, HU L, et al. Effect of fermented mulberry leaves replacing basic diet on growth performance,serum biochemical indexes,nutrient apparent digestibility,and meat quality of finishing pigs[J]. Feed Research, 2023, 46(15):17-22. (in Chinese)

[18]
NEVELING D P, DICKS L M T. Probiotics:an antibiotic replacement strategy for healthy broilers and productive rearing[J]. Probiotics and Antimicrobial Proteins, 2021, 13(1):1-11.

DOI

[19]
黄金贵, 张勇, 李方方, 等. 包被屎肠球菌、枯草芽孢杆菌及其复合菌对肉鸡生长性能、屠宰性能及肠道功能的影响[J]. 动物营养学报, 2023, 35(7):4370-4386.

DOI

HUANG J G, ZHANG Y, LI F F, et al. Effects of encapsulated Enterococcus faecium,Bacillus subtilis and their complex bacteria on growth performance,slaughter performance and intestinal function of broilers[J]. Chinese Journal of Animal Nutrition, 2023, 35(7):4370-4386. (in Chinese)

[20]
刘军, 彭众, 喻礼怀, 等. 屎肠球菌对AA肉鸡肠道酶活和绒毛形态的影响[J]. 中国家禽, 2020, 42(2):64-68.

LIU J, PENG Z, YU L H, et al. Effect of Enterococcus faecium on intestinal enzyme activity and villous morphology of AA broilers[J]. China Poultry, 2020, 42(2):64-68. (in Chinese)

[21]
KOGUT M H. The effect of microbiome modulation on the intestinal health of poultry[J]. Animal Feed Science and Technology, 2019, 250:32-40.

DOI

[22]
李祥, 何金环, 潘春梅, 等. 丁酸钠对肉鸡肠道形态与消化吸收功能影响的研究进展[J]. 中国畜牧兽医, 2021, 48(5):1603-1612.

DOI

LI X, HE J H, PAN C M, et al. Research progress on effect of sodium butyrate on intestinal morphology,digestion and absorption function of broilers[J]. China Animal Husbandry & Veterinary Medicine, 2021, 48(5):1603-1612. (in Chinese)

[23]
CHICHLOWSKI M, CROOM W J, EDENS F W, et al. Microarchitecture and spatial relationship between bacteria and ileal,cecal,and colonic epithelium in chicks fed a direct-fed microbial,primalac,and salinomycin[J]. Poultry Science, 2007, 86(6):1121-1132.

DOI

[24]
AWAD W, GHAREEB K, BÖHM J. Intestinal structure and function of broiler chickens on diets supplemented with a synbiotic containing Enterococcus faecium and oligosaccharides[J]. International Journal of Molecular Sciences, 2008, 9(11):2205-2216.

DOI

[25]
MARCHIANDO A M, GRAHAM W V, TURNER J R. Epithelial barriers in homeostasis and disease[J]. Annual Review of Pathology, 2010, 5(1):119-144.

DOI

[26]
REN Z H, GUO C Y, YU S M, et al. Progress in mycotoxins affecting intestinal mucosal barrier function[J]. International Journal of Molecular Sciences, 2019, 20(11):2777.

DOI

[27]
WAUTERS L, TALLEY N J, WALKER M M, et al. Novel concepts in the pathophysiology and treatment of functional dyspepsia[J]. Gut, 2020, 69(3):591-600.

DOI PMID

[28]
AN J, LIU Y Q, WANG Y Q, et al. The role of intestinal mucosal barrier in autoimmune disease:a potential target[J]. Frontiers in Immunology, 2022, 13:871713.

DOI

[29]
YANG Y T, HONG J J, ZHANG Z, et al. Oral supplementation with lactic acid bacteria improve the intestinal epithelial barrier and gut microbiota of broiler chicks to alleviate Salmonella enteritidis infection[J]. Poultry Science, 2024, 103(12):104385.

DOI

[30]
MARTIN L, VIERA K, L’UBOMÍRA G, et al. Impact of Enterococcus faecium AL41 on growth performance,immune parameters,morphology,and tight junction proteins in intestine of chicks[J]. Poultry Science, 2025, 104(8):105361.

DOI

[31]
黄薪蓓, 许庆彪, 刘建新. 肠道氨基酸和小肽转运载体的基因表达、影响因素与分子调控机制[J]. 动物营养学报, 2015, 27(1):21-27.

DOI

HUANG X B, XU Q B, LIU J X. Gene expression,influence factors and molecular regulation of amino acid and peptide transporters in intestine[J]. Chinese Journal of Animal Nutrition, 2015, 27(1):21-27. (in Chinese)

[32]
贺越, 赵圣国, 骆超超, 等. 动物氨基酸转运载体的研究进展[J]. 中国畜牧兽医, 2020, 47(3):744-753.

DOI

HE Y, ZHAO S G, LUO C C, et al. Research progress on animal amino acid transporter[J]. China Animal Husbandry & Veterinary Medicine, 2020, 47(3):744-753. (in Chinese)

[33]
YANG C B, ALBIN D M, WANG Z R, et al. Apical Na+-D-glucose cotransporter 1 (SGLT1) activity and protein abundance are expressed along the jejunal crypt-villus axis in the neonatal pig[J]. American Journal of Physiology:Gastrointestinal and Liver Physiology, 2011, 300(1):G60-G70.

[34]
QAMAR A, WAHEED J, HAMZA A, et al. The role of intestinal microbiota in chicken health,intestinal physiology and immunity[J]. The Journal of Animal & Plant Sciences, 2021, 31(2):342-351.

[35]
MILLS S, STANTON C, LANE J A, et al. Precision nutrition and the microbiome,part Ⅰ:current state of the science[J]. Nutrients, 2019, 11(4):923.

DOI

[36]
ROTHSCHILD D, WEISSBROD O, BARKAN E, et al. Environment dominates over host genetics in shaping human gut microbiota[J]. Nature, 2018, 555(7695):210-215.

DOI

[37]
SHIN N R, WHON T W, BAE J W. Proteobacteria:microbial signature of dysbiosis in gut microbiota[J]. Trends in Biotechnology, 2015, 33(9):496-503.

DOI

[38]
邢东旭, 符兵, 王君雁, 等. 发酵桑叶粉对黄羽肉鸡生长性能、抗氧化和免疫能力及肠道菌群结构的影响[J]. 中国畜牧兽医, 2025, 52(1):169-181.

DOI

XING D X, FU B, WANG J Y, et al. Effects of dietary fermented mulberry leaf powder on growth performance,antioxidant and immune capacity,and gut microbiota structure of yellow-feathered broilers[J]. China Animal Husbandry & Veterinary Medicine, 2025, 52(1):169-181. (in Chinese)

[39]
TURNBAUGH P J, LEY R E, MAHOWALD M A, et al. An obesity-associated gut microbiome with increased capacity for energy harvest[J]. Nature, 2006, 444(7122):1027-1031.

DOI

[40]
胡新月. 载粪肠球菌蒙脱石对肉鸡生长性能、血液生化和肠道菌群的影响[D]. 硕士学位论文. 南昌: 江西农业大学, 2024.

HU X Y. Effects of Enterococcus faecalis-montmorillonite on growth performance,blood biochemistry and intestinal flora of broiler chickens[D]. Master’s Thesis. Nanchang: Jiangxi Agricultural University, 2024. (in Chinese)

[41]
HUANG R J, WU F, ZHOU Q, et al. Lactobacillus and intestinal diseases:mechanisms of action and clinical applications[J]. Microbiological Research, 2022, 260:127019.

DOI

[42]
TANG X P, ZENG Y, XIONG K N, et al. Bacillus spp. as potential probiotics:promoting piglet growth by improving intestinal health[J]. Frontiers in Veterinary Science, 2024, 11:1429233.

DOI

[43]
张海涵, 蒋建霞. 螺杆菌属细菌感染与致病的研究概况[J]. 中国家禽, 2017, 39(8):40-44.

ZHANG H H, JIANG J X. Research progress on infection and pathogenicity of Helicobacter[J]. China Poultry, 2017, 39(8):40-44. (in Chinese)

文章导航

/