研究论文

基于自动头室系统的肉牛瘤胃甲烷排放规律及其与嗳气峰形特征的相关性研究

  • 冯鑫辉 , 1, 2, 3 ,
  • 伍志武 2 ,
  • 魏仲珊 4 ,
  • 谭支良 2 ,
  • 王敏 2 ,
  • 王荣 , 2, * ,
  • 赵玉蓉 , 1, 3, *
展开
  • 1 湖南农业大学动物科学技术学院, 长沙 410128
  • 2 中国科学院亚热带农业生态研究所, 农业生态过程重点实验室, 长沙 410125
  • 3 岳麓山实验室, 长沙 410128
  • 4 湖南德人生物科技有限公司, 常德 415921
*王 荣,副研究员,E-mail: ;
赵玉蓉,教授,博士生导师,E-mail:

冯鑫辉(1999—),男,河南洛阳人,硕士研究生,研究方向为反刍动物营养与饲料研究。E-mail:

Office editor: 陈燕

收稿日期: 2025-10-14

  网络出版日期: 2026-05-14

基金资助

湖南省科技创新计划项目(2024RC3244)

国家重点研发计划项目(2023YFD1300900)

优质牧草与秸秆生物发酵饲料技术中心建设(2024ZYQ085)

Study on Rumen Methane Emission Patterns and Their Correlation with Eructation Peak Shape Characteristics in Beef Cattle Based on Automatic Head Chamber System

  • FENG Xinhui , 1, 2, 3 ,
  • WU Zhiwu 2 ,
  • WEI Zhongshan 4 ,
  • TAN Zhiliang 2 ,
  • WANG Min 2 ,
  • WANG Rong , 2, * ,
  • ZHAO Yurong , 1, 3, *
Expand
  • 1 College of Animal Science and Technology, Hunan Agricultural University, Changsha 410128, China
  • 2 Key Laboratory of Agroecological Processes, Institute of Subtropical Agriculture, Chinese Academy of Sciences, Changsha 410125, China
  • 3 Yuelu Mountain Laboratory, Changsha 410128, China
  • 4 Hunan Deren Biotechnology Co., Ltd., Changde 415921, China
*WANG Rong, associate professor, E-mail: ;
ZHAO Yurong, professor, E-mail:

Received date: 2025-10-14

  Online published: 2026-05-14

摘要

本研究旨在通过自动头室(AHC)瘤胃甲烷排放监测系统(简称AHC系统)探究肉牛瘤胃甲烷排放规律及其与嗳气峰形特征的相关性。选取20头健康肉牛作为试验动物,包括8头利木赞肉牛和12头利木赞×西门塔尔杂交肉牛(以下简称杂交牛)。试验共设置8个测定时间点,分别为01:00、04:00、07:00、10:00、13:00、16:00、19:00和22:00,每头肉牛在每个时间点均完成2次测定。预试期7 d;正试期共12 d,分为2个批次进行,每批次测定4头利木赞肉牛和6头杂交牛,每批次进行2个重复测定,每个重复测定在3 d内完成全部8个时间点的数据采集。结果表明:与利木赞肉牛相比,杂交牛的干物质采食量、甲烷日排放量、采食每千克干物质甲烷排放量及甲烷排放速率均无显著差异(P>0.05);与饲喂之前相比,甲烷排放速率在饲喂后呈现出明显的增加趋势;不同时间点对嗳气的波峰面积、波峰频率、波峰持续时间和波峰高度均有显著影响(P<0.05);相关性分析表明,甲烷日排放量与嗳气的波峰高度呈显著的正相关关系(R2≥0.853,P<0.001),与波峰频率(R2≤0.113,P≥0.288)和波峰持续时间(R2≤0.147,P≥0.206)均无显著的相关性。综上所述,基于AHC系统发现,肉牛在不同时间点甲烷排放速率的差异与采食行为有关,而嗳气的波峰高度可作为快速预测肉牛瘤胃甲烷排放量高低的潜在参考指标。

本文引用格式

冯鑫辉 , 伍志武 , 魏仲珊 , 谭支良 , 王敏 , 王荣 , 赵玉蓉 . 基于自动头室系统的肉牛瘤胃甲烷排放规律及其与嗳气峰形特征的相关性研究[J]. 动物营养学报, 2026 , 38(5) : 3471 -3479 . DOI: 10.12418/CJAN2026.277

Abstract

This study aimed to investigate the diurnal variation patterns of rumen methane (CH4) emission patterns and their correlation with eructation peak shape characteristics in beef cattle using an automated head-chamber (AHC) rumen methane emission monitoring system (referred to as AHC system). Twenty healthy beef cattle were selected, including eight Limousin beef cattle and twelve Limousin × Simmental crossbred beef cattle (hereinafter referred to as crossbred cattle). A total of 8 measurement time points (01:00, 04:00, 07:00, 10:00, 13:00, 16:00, 19:00 and 22:00) were set in the experiment, with two replicates per time point for each animal. The experiment consisted of a 7-day pre-test period followed by a 12-day formal test period, which was conducted in two batches. Each batch included four Limousin beef cattle and six crossbred cattle, with two replicates per batch. Data collection for all eight time points was completed within three days per replicate. The results showed as follows: no significant differences were observed between Limousin beef cattle and crossbred cattle in dry matter intake, daily CH4 emissions, CH4 emissions per kg of dry matter intake, or rates of CH4 emission (P>0.05). Compared with before feeding, rates of CH4 emission showed an obviously increasing trend after feeding. Time points significantly affected peak area, peak frequency, peak duration and peak height of eructation (P<0.05). Correlation analysis revealed that daily CH4 emissions were significantly positively correlated with peak height (R2≥0.853, P<0.001), but showed no significant correlation with peak frequency (R2≤0.113, P≥0.288) or peak duration (R2≤0.147, P≥0.206). In conclusion, based on the AHC system, differences in rates of CH4 emission across different time points are associated with feeding behavior, and eructation peak height may serve as a potential indicator for rapid prediction of ruminal methane emission levels in beef cattle.

随着人们生活水平和物质需求的进一步提高,牛肉、羊肉和奶制品的消费量呈现不断增长的趋势。这不仅推动了反刍家畜养殖业的发展,同时也提高了反刍动物的甲烷(CH4)排放总量[1]。甲烷是仅次于二氧化碳的第2大温室气体,其全球增温潜势是二氧化碳的28倍;同时,甲烷排放会造成反刍动物2%~12%的能量损失[2-3]。研究结果显示,反刍动物通过胃肠道排放的甲烷量占家畜甲烷排放总量的90%以上,是人类农业活动中甲烷排放的最主要来源[4]。反刍动物排放的甲烷主要是由瘤胃微生物的厌氧发酵过程产生,饲料进入瘤胃后,首先会在瘤胃内经厌氧发酵,生成二氧化碳和氢气[5-6],然后瘤胃甲烷菌以二氧化碳和氢气为底物,通过还原反应合成甲烷,并最终通过嗳气将其排出体外[7]
准确测定反刍动物瘤胃甲烷排放数据对于建立可靠的温室气体排放清单和制定减排策略至关重要[8-9]。迄今为止,在直接测定反刍家畜胃肠道甲烷排放数据的方法中,呼吸代谢室法、六氟化硫(SF6)示踪技术和Greenfeed系统已经被广泛应用于反刍家畜的甲烷排放测定。Poteko等[10]利用呼吸代谢舱研究发现,亚麻籽可以降低奶牛单位可消化中性洗涤纤维(dNDFI)的甲烷排放量。呼吸代谢室法因测定结果精准可靠,而被称为反刍家畜的甲烷排放测定的“黄金标准”,但该方法存在成本高、适用场景局限于实验室及小规模研究等问题,且在测定过程中容易对试验动物造成应激反应,进而导致其采食量和生产性能降低[11-12]。Benetel等[13]研究表明,六氟化硫示踪技术可用于评估牛至精油和百里香精油对肉牛甲烷排放的影响。六氟化硫示踪技术虽然成本较低,且适用于群体水平测定,但其测量数据变异性较大且易受环境中六氟化硫和甲烷浓度的影响[14-15]。Starsmore等[16]利用Greenfeed系统研究,结果显示甲烷排放量与体况评分(BCS)呈负相关,与干物质采食量(DMI)呈正相关。该系统虽然能够满足大群动物的短期测定需求,但受设备价格昂贵的影响,其在国内使用受到限制[17]。作为一种替代方案,自动头室(automated head-chamber,AHC)瘤胃甲烷排放监测系统(简称AHC系统)是目前国产化设备中直接测定反刍家畜甲烷排放数据的最新技术,该系统通过诱食料吸引动物进入料槽,然后对动物呼出的甲烷进行连续监测分析,具有无创伤、非侵入式、测量时间短和可用于大群动物的优点,应用前景广阔[18-19]
研究发现,在对反刍动物嗳气释放的甲烷进行“点”测定时,其甲烷排放结果通常会表现出独特的脉冲式变化模式,包括释放的甲烷浓度快速上升后呈指数衰减趋势[20]。反刍家畜的嗳气频率及每次嗳气释放的甲烷量与总甲烷排放量密切相关,可用于计算全天甲烷排放量[21]。然而,关于瘤胃甲烷排放规律与嗳气峰形特征相关性研究很少。本研究旨在通过使用AHC系统测定20头肉牛的瘤胃甲烷排放规律及嗳气峰形特征,旨在阐明肉牛瘤胃甲烷日排放量与嗳气峰形特征之间的相关性,为快速预测肉牛瘤胃甲烷排放量高低提供技术支撑。

1 材料与方法

1.1 伦理声明

本研究所有动物试验程序均按照中国科学院亚热带农业生态研究所动物伦理委员会批准的方案进行,动物伦理批准编号:ISA-2024-0030。

1.2 AHC系统

该系统主要由自动下料系统、负压装置、流量计、空气过滤系统、样品采集与测定系统、数据传输系统组成[22]。试验开始之前,首先对该系统的甲烷回收率进行测定,具体操作如下:将已知固定体积(300 mL)的甲烷(>99.9%)分5次等量释放在料槽中,释放点位于料槽的底部和进料口的中心,以模拟肉牛在料槽采食诱食料时的瘤胃甲烷排放过程。根据该系统测定的甲烷排放量和注射的甲烷实际体积,计算甲烷回收率,重复3次,每次甲烷回收率的结果需要稳定在95%~105%。

1.3 试验设计

选取20头健康肉牛作为试验动物,包括8头(11.0±0.1)月龄利木赞肉牛和12头(11.0±0.2)月龄利木赞×西门塔尔杂交肉牛(以下简称杂交牛)。试验共设置8个测定时间点,分别为01:00、04:00、07:00、10:00、13:00、16:00、19:00和22:00,每头肉牛在每个时间点均完成2次测定。预试期7 d,使肉牛逐步适应测定系统,以减轻甲烷测定过程中的应激反应;正试期共12 d,分为2个批次进行,每批次测定4头利木赞肉牛和6头杂交牛,每批次进行2个重复测定,每个重复测定在3 d内完成全部8个时间点的数据采集:第1天测定01:00、10:00和19:00,第2天测定04:00、13:00和22:00,第3天测定07:00和16:00。每次测定时确保所有肉牛的甲烷测定在1.5 h内完成,且同一头肉牛相邻2次测定时间间隔不少于6 h,以避免对采食行为产生干扰。在测定时,首先利用诱食料将肉牛引导至AHC系统料槽,随后连续采集瘤胃甲烷排放数据至少5 min,并确保出现不少于3个嗳气的波峰,最后测定2 min外界环境中的甲烷浓度。

1.4 饲养管理

试验在广西壮族自治区的一个规模化肉牛场开展,所有试验肉牛均采用该养殖场常规全混合日粮(TMR)进行饲喂,饲粮组成及营养水平见表1。所有试验肉牛均采用散养方式,集中饲养于同一牛舍内,每天在07:00和13:00各饲喂1次,试验期间自由饮水。每天清扫圈舍,并定期清理水槽,以保持圈舍清洁卫生。
表1 饲粮组成及营养水平(风干基础)

Table 1 Composition and nutrient levels of thediet (air-dry basis)%

项目 Items 含量 Content
原料 Ingredients
酒糟混谷壳
Distillers grains mixed with husks
68.00
稻草 Rice straw 13.00
精料补充料 Concentrate supplement1) 19.00
合计 Total 100.00
营养水平 Nutrient levels2)
总能 GE/(MJ/kg) 16.52
有机物 OM 91.20
粗蛋白质 CP 10.70
粗脂肪 EE 1.30
中性洗涤纤维 NDF 54.70
酸性洗涤纤维 ADF 37.30

1)精料补充料由玉米、豆粕、麸皮、枯草芽孢杆菌、地衣芽孢杆菌、多种微量元素和多种维生素等配制而成,其营养水平为粗蛋白质≥17.0%、粗纤维≤15.0%、粗灰分≤20.0%、赖氨酸≥0.4%、钙0.5%~2.0%、氯化钠0.5%~2.0%、总磷≥0.4%、水分≤13%。Concentrate supplement was formulated from corn, soybean meal, bran, Bacillus subtilis, Bacillus licheniformis, various trace elements and vitamins. Its nutritional levels were as follows: CP≥17.0%, CF≤15.0%, Ash≤20.0%, Lys≥ 0.4%, Ca 0.5%~2.0%, NaCl 0.5%~2.0%, TP≥0.4% and moisture ≤13%.

2)营养水平均为实测值。Nutrient values were measured values.

1.5 测定指标及方法

1.5.1 饲粮营养成分测定

总能(GE)含量参照GB/T 45104—2024测定,干物质(DM)含量参照GB/T 6435—2014测定,粗灰分含量参照GB/T 6438—2007测定,有机物(OM)含量由干物质总量减去粗灰分含量计算得到,粗蛋白质(CP)含量参照GB/T 6432—2018测定,粗脂肪(EE)含量参照GB/T 6433—2006测定,中性洗涤纤维(NDF)含量参照GB/T 20806—2022测定,酸性洗涤纤维(ADF)含量参照NY/T 1459—2022测定。

1.5.2 采食量测定

在同一牛舍内,紧邻公共饲喂栏设置一个独立饲喂栏,每2 d随机选取3头体型接近且同一品种的试验肉牛转移至独立饲喂栏,连续2 d记录饲粮饲喂量和剩余量,测定其采食量。若相邻2 d的采食量差值小于5%,则更换另外3头肉牛进行下一轮测定;若差值大于5%,则再增加1 d测定。最后根据均值计算肉牛的干物质采食量。

1.5.3 肉牛瘤胃甲烷排放量测定和嗳气的峰形特征分析

根据每个时间点连续采集至少5 min的瘤胃甲烷排放监测数据,计算甲烷排放速率、甲烷日排放量以及采食每千克干物质甲烷排放量,并且对嗳气的波峰特性进行对比分析。
肉牛瘤胃的甲烷排放速率(Ri)按照以下公式计算:
Ri (g/h)=$\frac{{F}_{i}\times (C{C}_{i}-C{B}_{j})\times 16}{{R}_{g}\times {10}^{6}\times 22.4}$。
式中:Fi是管道中气体的流速(L/h);CCi是在ti时出口气体中的甲烷浓度(μL/L);CBj是在tj时外界环境中的甲烷浓度(μL/L);Rg是AHC系统的甲烷回收率(%);ij是在每次测定中的样本数量。
肉牛瘤胃的甲烷日排放量(M24 h)按照以下公式计算:
M24 h(g/d)= $\stackrel{-}{R}$×24。
式中: $\stackrel{-}{R}$是在24 h内测定8次的平均甲烷排放速率(g/h)。
采食每千克干物质甲烷排放量按照以下公式计算:
采食每千克干物质甲烷排放量(g/kg)=甲烷日排放量/干物质采食量。
嗳气的峰形特征,包括波峰面积、波峰持续时间、波峰频率和波峰高度。波峰持续时间(s)通过每次波峰的开始和结束来计算;波峰频率(peaks/min)=60/波峰持续时间;波峰高度指每次波峰中甲烷浓度的最大值,即波峰高度(μL/L,v/v)=每次波峰最大值-环境中甲烷浓度。波峰面积(w)代表总甲烷释放量,计算公式如下:

w(mg CH4/peak)= ${\sum }_{k=1}^{k=n}$ΔWk;

ΔWk (g)=Rk×Δt;

Δt(s)=tk-t(k-1)

式中:ΔWk是在tktk-1之间的甲烷排放量;Rk是在tk时的甲烷排放速率(g/h);Δt是甲烷波峰测定的持续时间;k是不同的测定时间点AHC系统测定的气体样本次数。

1.6 数据统计分析

采用SPSS 21.0软件对试验数据进行统计分析。数据使用一般线性模型(GLM)进行分析,该模型包括了肉牛品种(k=2;利木赞肉牛或杂交牛)作为固定因子。当考虑到测定时间点时,数据采用复合对称协方差结构的线性混合模型进行分析,该模型包括肉牛品种(k=2;利木赞肉牛或杂交牛)作为固定因子,测定时间点(i=8;01:00、04:00、07:00、10:00、13:00、16:00、19:00和22:00)作为重复测定,时间点与肉牛品种之间的交互作用作为固定因子,以及肉牛(j=20;1、2、3、4、5、6、7、8、9、10、11、12、13、14、15、16、17、18、19和20)作为随机因子,并采用Duncan氏法进行多重比较。利用RStudio软件(R×64 3.5.0)对肉牛瘤胃甲烷日排放量与峰形特征进行相关性分析,以获得决定系数(R2)及其统计显著性结果。P<0.05表示差异显著;P>0.05表示差异不显著;0.05≤P≤0.10表示有升高或降低的变化趋势。
回归模型如下:
Y01X12X23X1X2+ε。
式中:Y是肉牛瘤胃甲烷日排放量;β0是截距;X1X2分别是甲烷峰形特征和肉牛品种的主效应;β1和β2分别是甲烷峰形特征和肉牛品种的回归系数;X1X2是甲烷峰形特征和肉牛品种之间的交互作用;β3是交互项的回归系数;ε是随机误差。

2 结果与分析

2.1 不同品种对肉牛瘤胃甲烷排放量和排放速率的影响

表2可知,与利木赞肉牛相比,杂交牛的干物质采食量、甲烷日排放量和采食每千克干物质甲烷排放量均无显著差异(P>0.05);杂交牛的瘤胃甲烷排放速率的平均值、最大值和中位值均无显著差异(P>0.05),仅甲烷排放速率的最小值有增加的趋势(P=0.094)。
表2 不同品种对肉牛瘤胃甲烷排放量和排放速率的影响

Table 2 Effects of different breeds on ruminal CH4 emission and emission rate in beef cattle

项目
Items
利木赞肉牛
Limousin beef cattle
杂交牛
Crossbred cattle
均值标准误
SEM
P
P-value
干物质采食量 Dry matter intake/(kg/d) 6.23 6.15 0.039 0.705
甲烷日排放量 Daily CH4 emission/(g/d) 209.95 215.23 2.640 0.695
采食每千克干物质甲烷排放量
CH4 emission per kg of dry matter intake/(g/kg)
34.62 35.98 0.682 0.326
甲烷排放速率 Rate of CH4 emission/(g/h)
平均值 Mean 8.75 8.97 0.110 0.695
最大值 Maximum 12.18 12.23 0.025 0.950
最小值 Minimum 5.31 6.27 0.480 0.094
中位值 Median 8.47 8.66 0.095 0.750

同行数据肩标无字母表示差异不显著(P>0.05)。

In the same row, values with no letter superscripts mean no significant difference (P>0.05).

2.2 不同时间点肉牛瘤胃甲烷的排放规律及嗳气峰形特征分析

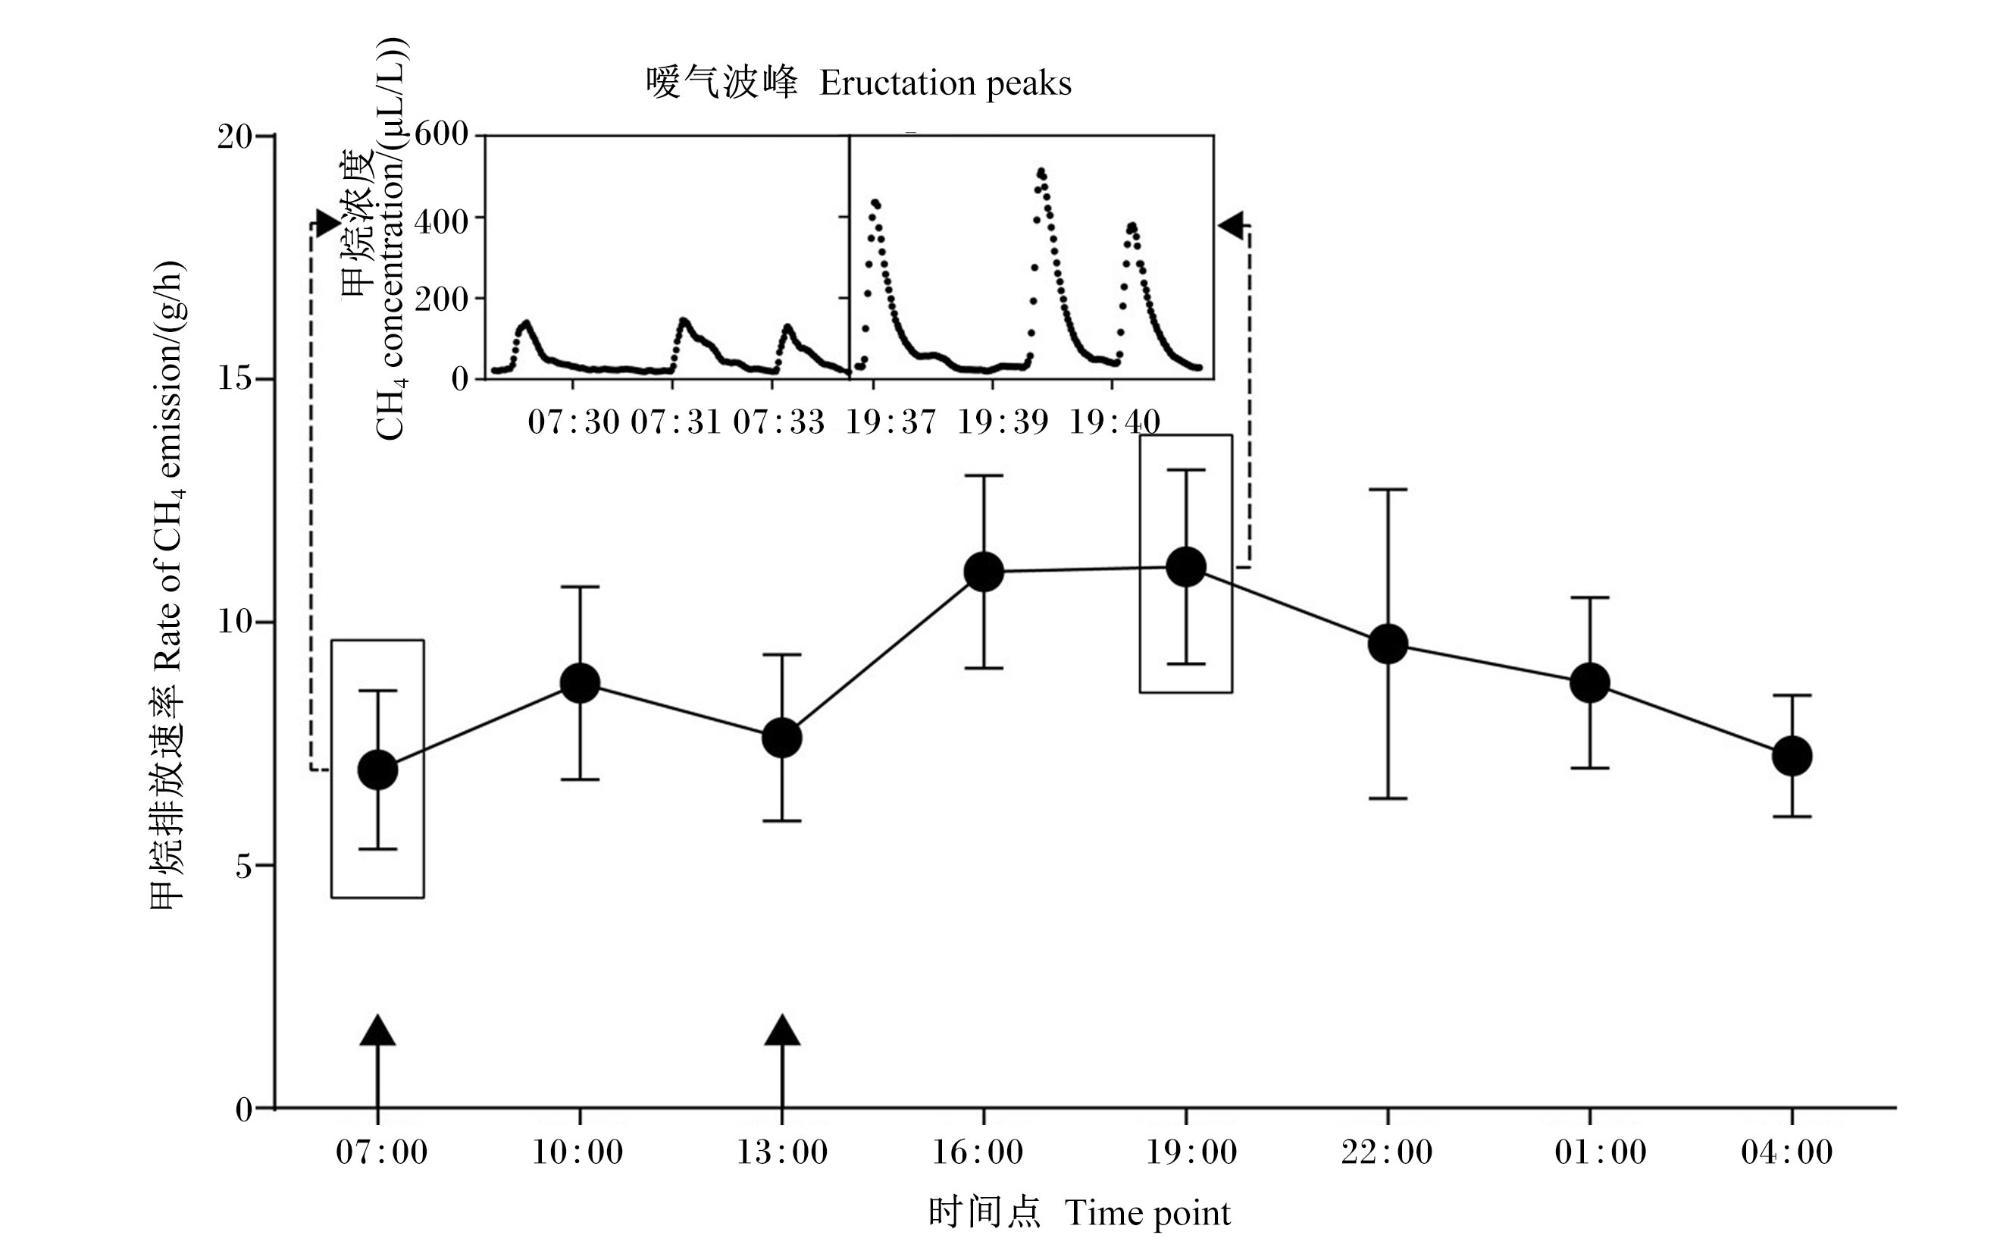
图1可知,肉牛瘤胃甲烷排放速率并非全天恒定,而是随昼夜变化呈现出节律性变化规律。本次试验肉牛每天喂食2次,瘤胃甲烷排放速率呈现出2个明显的峰值。在饲喂之前,瘤胃甲烷排放速率分别于07:00和13:00达到6.96和7.61 g/h;在饲喂之后,瘤胃甲烷排放速率均明显升高,分别在10:00和19:00达到峰值,为8.74和11.14 g/h,随后逐渐下降至饲喂前水平。选取1头肉牛(5号),在其瘤胃甲烷排放速率的最低点(07:00)和最高点(19:00)进行峰形分析,结果显示,2个时间点的峰形特征存在明显差异,其中最低点的波峰持续时间、波峰频率、波峰高度和波峰面积分别为129.00 s、0.47 peaks/min、138.23 μL/L和131.38 mg CH4/peak,而最高点的对应值分别为104.00 s、0.58 peaks/min、442.67 μL/L和258.92 mg CH4/peak。
图1 肉牛全天瘤胃甲烷排放速率变化规律及嗳气峰形特征

Fig.1 Variation pattern and eructation peak shape characteristics of rumen CH4 emission rate in beef cattle throughout the day

表3可知,在肉牛瘤胃甲烷排放监测过程中,不同时间点对嗳气的波峰面积、波峰频率、波峰持续时间和波峰高度均有显著影响(P<0.05),波峰面积在07:00和13:00时显著低于01:00、10:00、16:00、19:00和22:00时(P<0.05),波峰高度在07:00和13:00时显著低于10:00、16:00、19:00和22:00时(P<0.05),波峰频率在01:00时显著低于07:00、16:00和19:00时(P<0.05),波峰持续时间在16:00时显著低于01:00和04:00时(P<0.05)。不同品种对肉牛嗳气的波峰面积、波峰频率、波峰持续时间和波峰高度均无显著影响(P>0.05),并且时间点和肉牛品种在肉牛嗳气的峰形特征上不存在显著的交互作用(P>0.05)。
表3 不同时间点和品种对肉牛嗳气峰形特征的影响

Table 3 Effects of different time points and breeds on peak shape characteristics of rumen CH4 in beef cattle

项目
Items
波峰面积
Peak area/(mg
CH4/peak)
波峰频率
Peak frequency/
(peaks/min)
波峰持续时间
Peak duration/s
波峰高度
Peak height/
(μL/L)
时间点 Time points
01:00 230.50ab 0.65c 93.88a 230.44cd
04:00 183.50cd 0.67bc 93.85a 195.44d
07:00 157.63d 0.74ab 84.09ab 202.59d
10:00 216.04bc 0.68bc 89.92ab 269.99bc
13:00 179.13d 0.71abc 85.68ab 217.13d
16:00 241.36ab 0.78a 79.35b 323.47a
19:00 256.32a 0.75ab 82.72ab 302.78ab
22:00 231.14ab 0.70abc 86.93ab 273.74bc
均值标准误 SEM 12.247 0.015 1.841 16.800
肉牛品种 Beef breeds
利木赞肉牛 Limousin beef cattle 210.68 0.71 87.68 252.66
杂交牛 Crossbred cattle 213.23 0.71 86.42 251.16
均值标准误 SEM 1.274 0.004 0.630 0.754
PP-value
时间点 Time point <0.001 0.027 0.032 <0.001
肉牛品种 Beef breed 0.780 0.694 0.606 0.896
时间点×肉牛品种 Time point×beef breed 0.529 0.977 0.972 0.451

同列数据肩标无字母或相同字母表示差异不显著(P>0.05),不同小写字母表示差异显著(P<0.05)。

In the same column, values with no letter or the same letter superscripts mean no significant difference (P>0.05), while with different small letter superscripts mean significant difference (P<0.05).

2.3 肉牛瘤胃甲烷日排放量与嗳气峰形特征的相关性分析

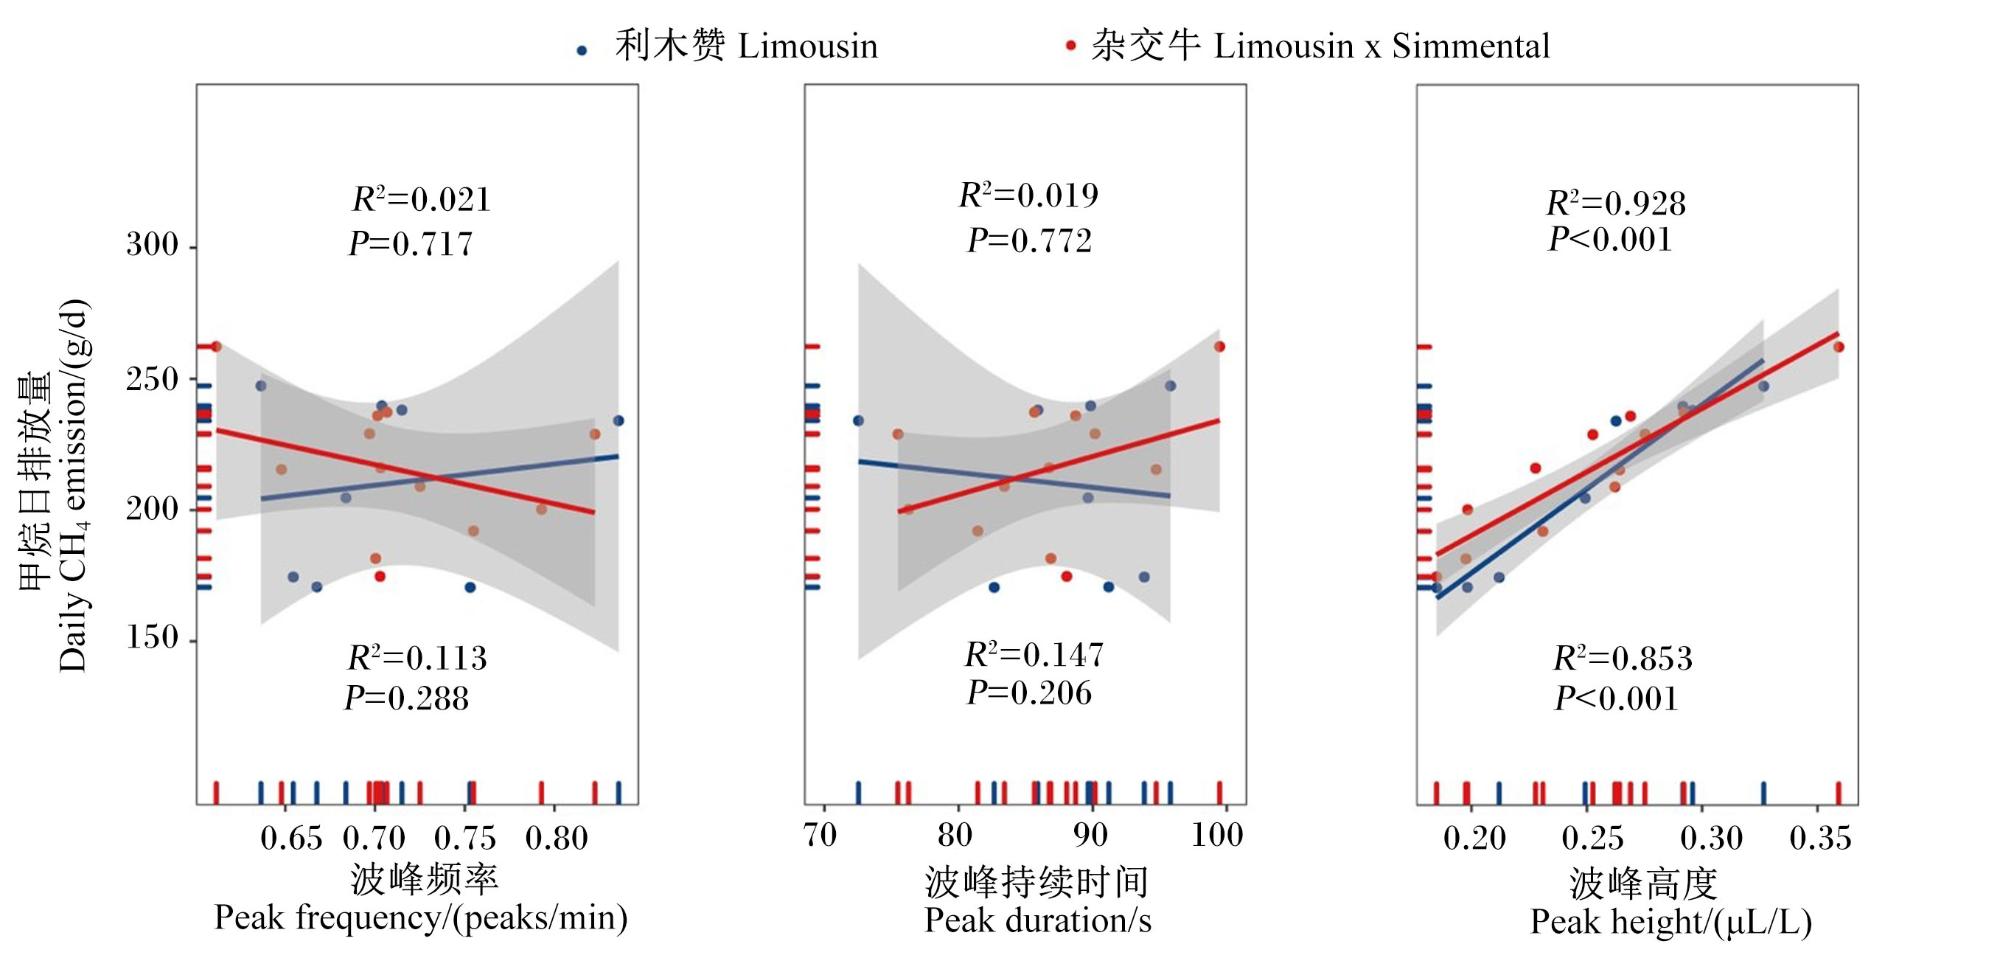
图2可知,相关性分析表明,肉牛瘤胃甲烷日排放量与嗳气的波峰高度呈显著的正相关关系,并且不受肉牛品种的影响(利木赞肉牛:R2=0.928,P<0.001;杂交牛:R2=0.853,P<0.001),而与嗳气的波峰频率(R2≤0.113,P≥0.288)和波峰持续时间(R2≤0.147,P≥0.206)均无显著的相关性。
图2 肉牛瘤胃甲烷日排放量与波峰频率、波峰持续时间和波峰高度的相关性

Fig.2 Correlation between daily ruminal CH4 emissions from beef cattle and peak frequency, peak duration and peak height

3 讨论

3.1 不同品种对肉牛甲烷排放的影响

在本研究中,与利木赞肉牛相比,杂交牛的干物质采食量、甲烷日排放量和采食每千克干物质甲烷排放量均无显著差异。大量研究结果表明,反刍动物甲烷排放量的差异往往与采食量相关[23-24]。Wallace等[25]研究发现,安格斯杂交牛的日采食量及甲烷日排放量均高于利木赞杂交牛,当校正品种间采食量差异后,二者甲烷排放量差异显著缩小。Rooke等[26]通过比较利木赞肉牛和安格斯牛发现,安格斯牛甲烷产量(150.4 g/d)显著高于利木赞牛(136 g/d),而该差异是由干物质采食量的不同所导致。Kaewpila等[27]研究发现,日本杂交黑牛的日采食量和甲烷日排放量显著低于夏洛莱杂交牛,但二者采食每千克干物质甲烷排放量无显著差异。在本研究中,利木赞肉牛和杂交牛的干物质采食量分别为6.23和6.15 kg/d,二者没有明显差异,这可能是导致2种肉牛甲烷日排放量没有差异的主要原因。

3.2 不同时间点肉牛瘤胃甲烷的排放规律及嗳气峰形特征分析

反刍动物瘤胃产生的甲烷主要通过嗳气(打嗝)途径排出。在本研究中,肉牛瘤胃甲烷排放速率并非全天恒定,而是在饲喂后明显升高,达到最大值后逐渐下降至饲喂前的水平,呈现出节律性变化,这与前期研究结果相一致[28-29]。采食是反刍动物瘤胃甲烷生成的主要驱动因素,因此甲烷排放速率最低的时刻总是在全天的第1次饲喂之前[30]。Lin等[31]对定时定量饲喂的西门塔尔肉牛进行全天的甲烷监测发现,在08:00和17:30饲喂之后,全天的甲烷排放速率分别在09:30和19:30达到峰值。Hempel等[32]的研究发现,甲烷排放的峰值出现在第2次饲喂后约2 h(14:00)。这些研究结果说明,肉牛瘤胃甲烷排放速率的最大值往往发生在饲喂后1~3 h。反刍动物瘤胃甲烷排放受采食行为影响。阿拉达尔等[33]研究表明,温度升高会降低动物的干物质采食量,从而减少动物瘤胃甲烷排放。在本研究中,肉牛在07:00饲喂后,甲烷排放速率到10:00达到峰值,与前人的研究结果相符;不同的是,在13:00饲喂后,甲烷排放速率到19:00达到峰值(11.14 g/h),与16:00的甲烷排放速率(11.04 g/h)相近,该现象可能与夏季白天温度升高导致肉牛分阶段采食,从而使甲烷排放峰值后移有关。
在本研究中,甲烷排放速率最高和最低的时间点分别是19:00和07:00,并伴随着明显差异的峰形特征,与在07:00时相比,19:00时嗳气的波峰高度和波峰面积更大,这表明甲烷排放速率可能与嗳气的波峰变化密切相关。进一步分析嗳气的波峰昼夜变化规律发现,饲喂前后的波峰高度和波峰面积均具有显著差异,在本研究中,嗳气的波峰面积和波峰高度在07:00和13:00时均显著低于10:00、16:00和19:00时,而波峰持续时间和波峰频率在07:00时与16:00和19:00时之间均无显著差异,这说明饲喂后瘤胃甲烷排放的变化主要与嗳气的波峰高度和波峰面积的变化有关,而与波峰持续时间及波峰频率关系不大。

3.3 肉牛瘤胃甲烷日排放量与嗳气峰形特征的相关性分析

反刍动物瘤胃产生的甲烷主要通过嗳气(打嗝)途径排出,肉牛全天的甲烷排放量是每次嗳气释放的甲烷量累积获得,并与嗳气的频率、每次嗳气释放的甲烷量以及峰形特性密切相关。在本研究中,相关性分析表明,肉牛瘤胃甲烷日排放量与嗳气的波峰高度呈显著的正相关关系,并且不受肉牛品种的影响。也有研究发现,干奶期与泌乳期奶牛在瘤胃甲烷排放量和峰形特征上存在显著差异,进一步的相关性结果表明,干奶期与泌乳期奶牛的甲烷排放速率与波峰高度均呈现显著的正相关关系,并且与嗳气的波峰持续时间和波峰频率均无显著影响[34],这与本研究结果相一致。

4 结论

基于AHC系统发现,肉牛在不同时间点甲烷排放速率的差异与采食行为有关,而嗳气的波峰高度可作为快速预测肉牛瘤胃甲烷排放量高低的潜在参考指标。
[1]
张秀敏, 王荣, 马志远, 等. 反刍家畜胃肠道甲烷排放与减排策略[J]. 农业环境科学学报, 2020, 39(4):732-742.

ZHANG X M, WANG R, MA Z Y, et al. Enteric methane emissions and mitigation strategies in ruminants[J]. Journal of Agro-Environment Science, 2020, 39(4):732-742. (in Chinese)

[2]
JOHNSON K A, JOHNSON D E. Methane emissions from cattle[J]. Journal of Animal Science, 1995, 73(8):2483-2492.

DOI PMID

[3]
GERBER P J, STEINFELD H, HENDERSON B, et al. Tackling climate change through livestock—a global assessment of emissions and mitigation opportunities[R]. Rome:FAO, 2013.

[4]
KUMARI S, FAGODIYA R K, HILOIDHARI M, et al. Methane production and estimation from livestock husbandry:a mechanistic understanding and emerging mitigation options[J]. Science of the Total Environment, 2020, 709:136135.

DOI

[5]
PEREIRA A M, DE LURDES NUNES ENES DAPKEVICIUS M, BORBA A E S. Alternative pathways for hydrogen sink originated from the ruminal fermentation of carbohydrates:which microorganisms are involved in lowering methane emission?[J]. Animal Microbiome, 2022, 4(1):5.

DOI

[6]
WANG K, XIONG B H, ZHAO X. Could propionate formation be used to reduce enteric methane emission in ruminants?[J]. Science of the Total Environment, 2023, 855:158867.

DOI

[7]
ZHAO Y C, ZHAO G Y. Decreasing ruminal methane production through enhancing the sulfate reduction pathway[J]. Animal Nutrition, 2022, 9:320-326.

DOI PMID

[8]
VIBART R, DE KLEIN C, JONKER A, et al. Challenges and opportunities to capture dietary effects in on-farm greenhouse gas emissions models of ruminant systems[J]. Science of the Total Environment, 2021, 769:144989.

DOI

[9]
ARNDT C, HRISTOV A N, PRICE W J, et al. Full adoption of the most effective strategies to mitigate methane emissions by ruminants can help meet the 1.5 ℃ target by 2030 but not 2050[J]. Proceedings of the National Academy of Sciences, 2022, 119(20):e2111294119.

[10]
POTEKO J, SCHRADE S, ZEYER K, et al. Methane emissions and milk fatty acid profiles in dairy cows fed linseed,measured at the group level in a naturally ventilated housing and individually in respiration chambers[J]. Animals, 2020, 10(6):1091.

DOI

[11]
MA W H, JI X T, DING L Y, et al. Automatic monitoring methods for greenhouse and hazardous gases emitted from ruminant production systems:a review[J]. Sensors, 2024, 24(13):4423.

DOI

[12]
BEKELE W, GUINGUINA A, ZEGEYE A, et al. Contemporary methods of measuring and estimating methane emission from ruminants[J]. Methane, 2022, 1(2):82-95.

DOI

[13]
BENETEL G, FAGUNDES G M, DE MÉO-FILHO P, et al. Essential oils in nellore beef cattle:in vivo impact on rumen emissions[J]. Animals, 2024, 14(11):1664.

DOI

[14]
HUHTANEN P, CABEZAS-GARCIA E H, UTSUMI S, et al. Comparison of methods to determine methane emissions from dairy cows in farm conditions[J]. Journal of Dairy Science, 2015, 98(5):3394-3409.

DOI PMID

[15]
贾鹏, 屠焰, 李发弟, 等. 反刍动物甲烷排放量测定方法的研究进展[J]. 动物营养学报, 2020, 32(6):2483-2490.

DOI

JIA P, TU Y, LI F D, et al. Research advance in measurement methods of methane emission from ruminants[J]. Chinese Journal of Animal Nutrition, 2020, 32(6):2483-2490. (in Chinese)

[16]
STARSMORE K, LOPEZ-VILLALOBOS N, SHALLOO L, et al. Animal factors that affect enteric methane production measured using the GreenFeed monitoring system in grazing dairy cows[J]. Journal of Dairy Science, 2024, 107(5):2930-2940.

DOI

[17]
HAMMOND K J, CROMPTON L A, BANNINK A, et al. Review of current in vivo measurement techniques for quantifying enteric methane emission from ruminants[J]. Animal Feed Science and Technology, 2016, 219:13-30.

DOI

[18]
普宣宣, 王荣, 张秀敏, 等. 豆渣混贮对青年期奶牛生长性能、营养物质表观消化率、瘤胃发酵及甲烷排放的影响[J]. 动物营养学报, 2024, 36(3):1724-1733.

DOI

PU X X, WANG R, ZHANG X M, et al. Effects of soybean residue mixed silage on growth performance,nutrient apparent digestibility,rumen fermentation and methane emission of cows[J]. Chinese Journal of Animal Nutrition, 2024, 36(3):1724-1733. (in Chinese)

[19]
WANG R, CAO Y R, ZHANG X M, et al. Relationship between daily variations of methane emissions and eructation peaks in dairy cows measured with automated head-chamber system[J]. Animal Feed Science and Technology, 2023, 303:115714.

DOI

[20]
HARDAN A, GARNSWORTHY P C, BELL M J. Detection of methane eructation peaks in dairy cows at a robotic milking station using signal processing[J]. Animals, 2022, 12(1):26.

DOI

[21]
BELL M J, SAUNDERS N, WILCOX R H, et al. Methane emissions among individual dairy cows during milking quantified by eructation peaks or ratio with carbon dioxide[J]. Journal of Dairy Science, 2014, 97(10):6536-6546.

DOI PMID

[22]
王荣, 王敏, 张秀敏, 等. 一种智能反刍家畜瘤胃温室气体测定系统:CN202320336714.4[P].2023-02-28.

WANG R, WANG M, ZHANG X M, et al. An intelligent rumen greenhouse gas measurement system for ruminants:CN202320336714.4[P].2023-02-28. (in Chinese)

[23]
刘卓凡. 不同生理阶段荷斯坦后备奶牛甲烷排放与营养物质消化率的规律研究[D]. 硕士学位论文. 阿拉尔: 塔里木大学, 2023.

LIU Z F. Study on the regularity of methane emission and nutrient digestibility in Holstein reserve cows at different physiological stages[D]. Master’s Thesis. Alaer: Tarim University, 2023. (in Chinese)

[24]
TEE T P, GOH Y M, ZAINUDIN M H M, et al. Enteric methane emission models for diverse beef cattle feeding systems in south-east Asia:a Meta-analysis[J]. Animal Feed Science and Technology, 2022, 294:115474.

DOI

[25]
WALLACE R J, ROOKE J A, DUTHIE C A, et al. Archaeal abundance in post-mortem ruminal digesta may help predict methane emissions from beef cattle[J]. Scientific Reports, 2014, 4(1):5892.

DOI

[26]
ROOKE J A, WALLACE R J, DUTHIE C A, et al. Hydrogen and methane emissions from beef cattle and their rumen microbial community vary with diet,time after feeding and genotype[J]. British Journal of Nutrition, 2014, 112(3):398-407.

DOI

[27]
KAEWPILA C, SOMMART K, MITSUMORI M. Dietary fat sources affect feed intake,digestibility,rumen microbial populations,energy partition and methane emissions in different beef cattle genotypes[J]. Animal, 2018, 12(12):2529-2538.

DOI

[28]
RAMIN M, FANT P, HUHTANEN P. The effects of gradual replacement of barley with oats on enteric methane emissions,rumen fermentation,milk production,and energy utilization in dairy cows[J]. Journal of Dairy Science, 2021, 104(5):5617-5630.

DOI

[29]
FRESCO S, BOICHARD D, FRITZ S, et al. Comparison of methane production,intensity,and yield throughout lactation in Holstein cows[J]. Journal of Dairy Science, 2023, 106(6):4147-4157.

DOI

[30]
WANG R, WANG M, UNGERFELD E M, et al. Nitrate improves ammonia incorporation into rumen microbial protein in lactating dairy cows fed a low-protein diet[J]. Journal of Dairy Science, 2018, 101(11):9789-9799.

DOI PMID

[31]
LIN Z, LIAO W H, YANG Y Y, et al. CH4 and N2O emissions from China’s beef feedlots with ad libitum and restricted feeding in fall and spring seasons[J]. Environmental Research, 2015, 138:391-400.

DOI

[32]
HEMPEL S, WILLINK D, JANKE D, et al. Methane emission characteristics of naturally ventilated cattle buildings[J]. Sustainability, 2020, 12(10):4314.

DOI

[33]
阿拉达尔, 乌日力嘎, 晓敏, 等. 热应激对反刍动物营养物质消化、瘤胃发酵、甲烷生成的影响及缓解热应激的措施[J]. 饲料研究, 2021, 44(3):122-126.

ALDER, WURLIG, XIAO M, et al. Effects of heat stress on nutrient digestion,rumen fermentation and methane production in ruminants and the measures to ameliorate heat stress[J]. Feed Research, 2021, 44(3):122-126. (in Chinese)

[34]
WANG R, CAO Y R, ZHANG X M, et al. Relationship between daily variations of methane emissions and eructation peaks in dairy cows measured with an automated head-chamber system[J]. Animal Feed Science and Technology, 2023, 303:115714.

DOI

文章导航

/