研究论文

饲料蛋白质水平对大口黑鲈雌性亲鱼产后抗氧化能力和免疫功能的影响

  • 贾丽 ,
  • 徐阳 ,
  • 谭悦 ,
  • 丁志丽 ,
  • 孔有琴 ,
  • 叶金云 ,
  • 徐奇友 , * ,
  • 戚常乐 , *
展开
  • 湖州师范学院生命科学学院, 水生动物繁殖与营养国家地方联合工程实验室,浙江省水生生物资源养护与开发技术研究重点实验室, 湖州 313000
*徐奇友,研究员,博士生导师,E-mail: ;
戚常乐,副教授,硕士生导师,E-mail:

贾 丽(2000—),女,山西忻州人,硕士研究生,研究方向为水产动物营养与饲料学。E-mail:

Office editor: 菅景颖

收稿日期: 2025-09-29

  网络出版日期: 2026-05-14

基金资助

浙江省“尖兵”“领雁”研发攻关计划项目(2023C02024)

Effects of Dietary Protein Level on Antioxidant Capacity and Immune Function of Female Largemouth Bass (Micropterus salmoides) Broodstock after Spawning

  • JIA Li ,
  • XU Yang ,
  • TAN Yue ,
  • DING Zhili ,
  • KONG Youqin ,
  • YE Jinyun ,
  • XU Qiyou , * ,
  • QI Changle , *
Expand
  • Zhejiang Provincial Key Laboratory of Aquatic Resources Conservation and Development, National-Local Joint Engineering Laboratory of Aquatic Animal Breeding and Nutrition, School of Life Sciences, Huzhou University, Huzhou 313000, China
*XU Qiyou, professor, E-mail: ;
QI Changle, associate professor, E-mail:

Received date: 2025-09-29

  Online published: 2026-05-14

摘要

本试验旨在探究饲料蛋白质水平对大口黑鲈(Micropterus salmoides)雌性亲鱼产后抗氧化能力和免疫功能的影响。配制5种等脂等能的试验饲料,其蛋白质水平分别为35%、40%、45%、50%和55%(对应分组命名为35%、40%、45%、50%和55%组)。选取产卵后大口黑鲈雌性亲鱼,随机分为5组,每组设6个重复,每个重复放养7尾鱼,分别投喂上述试验饲料,养殖试验为期8周。结果表明:1)随着饲料蛋白质水平的升高,肝脏比(HSI)和肠系膜脂肪系数(MFI)呈下降趋势。2)45%、50%和55%组肝脏和卵巢中超氧化物歧化酶(SOD)活性显著高于35%和40%组(P<0.05)。3)在肝脏中,45%组免疫球蛋白M(IgM)含量最高,显著高于其他各组(P<0.05);在卵巢中,45%组溶菌酶(LZM)活性和IgM含量显著高于其他各组(P<0.05)。4)在肝脏中,随着饲料蛋白质水平的升高,谷胱甘肽硫转移酶(GST)和锰-超氧化物歧化酶(Mn-SOD)的mRNA相对表达量均呈上升趋势,其中45%组Mn-SOD的mRNA相对表达量显著高于35%组(P<0.05);在卵巢中,45%组超氧化物歧化酶1(SOD1)、铜/锌-超氧化物歧化酶(Cu/Zn-SOD)和Mn-SOD的mRNA相对表达量均显著高于35%和40%组(P<0.05)。5)在肝脏中,45%组Toll样受体3(TLR3)的mRNA相对表达量显著高于35%和55%组(P<0.05),IgM的mRNA相对表达量显著高于35%、40%和50%组(P<0.05);在卵巢中,45%组LZM的mRNA相对表达量显著高于40%、50%和55%组(P<0.05),热休克蛋白70(HSP70)和Toll样受体1(TLR1)的mRNA相对表达量显著高于35%、40%和55%组(P<0.05),IgM的mRNA相对表达量显著高于40%和50%组(P<0.05)。由此可见,适宜的饲料蛋白质水平(45%)能够提高雌性大口黑鲈亲鱼产卵后肝脏和卵巢的抗氧化能力和免疫功能,有利于亲鱼产后恢复,提高其再利用率。

本文引用格式

贾丽 , 徐阳 , 谭悦 , 丁志丽 , 孔有琴 , 叶金云 , 徐奇友 , 戚常乐 . 饲料蛋白质水平对大口黑鲈雌性亲鱼产后抗氧化能力和免疫功能的影响[J]. 动物营养学报, 2026 , 38(5) : 3564 -3579 . DOI: 10.12418/CJAN2026.285

Abstract

This experiment aimed to investigate the effects of dietary protein level on the antioxidant capacity and immune function of female largemouth bass (Micropterus salmoides) broodstock after spawning. Five isonitrogenous and isolipidic experimental diets were formulated with protein levels of 35%, 40%, 45%, 50% and 55% (designated as the 35%, 40%, 45%, 50% and 55% groups), respectively. Post-spawning female largemouth bass broodstock were randomly assigned to five groups, each with six replicates and seven fish per replicate. The fish were fed the respective experimental diets for an 8-week feeding trial. The results showed as follows: 1) hepatosomatic index (HSI) and mesenteric fat index (MFI) tended to decrease with dietary protein level increasing. 2) Superoxide dismutase (SOD) activity in the liver and ovary was significantly higher in the 45%, 50% and 55% groups than in the 35% and 40% groups (P<0.05). 3) In the liver, immunoglobulin M (IgM) content was highest in the 45% group and was significantly higher than that in the other groups (P<0.05); in the ovary, lysozyme (LZM) activity and IgM content in the 45% group were significantly higher than those in the other groups (P<0.05). 4) In the liver, the mRNA relative expression levels of glutathione S-transferase (GST) and manganese superoxide dismutase (Mn-SOD) tended to increase with dietary protein level increasing, with the Mn-SOD mRNA relative expression level in the 45% group was significantly higher than that in the 35% group (P<0.05). In the ovary, the mRNA relative expression levels of superoxide dismutase 1 (SOD1), copper/zinc superoxide dismutase (Cu/Zn-SOD) and Mn-SOD in the 45% group were significantly higher than those in the 35% and 40% groups (P<0.05). 5) In the liver, the mRNA relative expression level of Toll-like receptor 3 (TLR3) in the 45% group was significantly higher than that in the 35% and 55% groups (P<0.05), and the mRNA relative expression level of immunoglobulin M (IgM) was significantly higher than that in the 35%, 40% and 50% groups (P<0.05). In the ovary, the mRNA relative expression level of lysozyme (LZM) in the 45% group was significantly higher than that in the 40%, 50% and 55% groups (P<0.05); the mRNA relative expression levels of heat shock protein 70 (HSP70) and Toll-like receptor 1 (TLR1) were significantly higher than those in the 35%, 40% and 55% groups (P<0.05), and the mRNA relative expression level of IgM was significantly higher than that in the 40% and 50% groups (P<0.05). In conclusion, an appropriate dietary protein level (45%) can enhance the antioxidant capacity and immune function of the liver and ovary of female largemouth bass broodstock after spawning, facilitating their recovery after spawning and improving their reusability.

雌性亲鱼在产卵期间对自身体能消耗极大[1]。在繁殖过程中亲鱼出现免疫能力下降,甚至在产卵后阶段死亡的现象[2]。被用于进行人工繁殖的亲鱼,在其发生较短的连续产卵过程中,鱼体的营养状况下降,产卵后雌性亲鱼的营养状况会更低[3]。这些情况都会对亲鱼健康产生负面影响,造成优质亲鱼的数量减少。蛋白质作为水生动物机体不可或缺的营养素,在其性成熟阶段发挥着至关重要的作用[4]。在卵巢发育过程中,亲本摄入的蛋白质被用于合成并积累卵黄相关物质,如卵黄脂磷蛋白和卵黄蛋白原等[5]。这些卵黄蛋白的合成与积累不仅是卵巢发育成熟的先决条件,更从根本上奠定了卵巢发育的物质基础[6]
蛋白质是饲料中的核心营养元素,适宜的饲料蛋白质水平不仅有助于提升水生动物的生长性能[7],也对维持其机体健康具有积极作用[8]。当饲料中蛋白质水平不足时,易导致肝脏和腹腔内脂肪堆积,进而诱发肝脏功能异常及炎症反应[9-10];而过量的蛋白质则会使动物在代谢多余氨基酸的过程中增加能量消耗与代谢负担,同时排出的含氮废物也会影响其健康状态[11]。在亲鱼研究中,蛋白质被证实能促进卵母细胞的生长与成熟[12]。适宜水平的饲料蛋白质还可有效提高水生动物的繁殖力与产卵量[13]。例如,Lu等[11]研究表明,饲料中蛋白质水平为35.77%~41.12%时,可显著促进克氏原螯虾(Procambarus clarkii)卵母细胞的成熟;类似地,Iqbal等[14]研究发现,何氏细须鲃(Leptobarbus hoevenii)在摄入蛋白质水平为400 g/kg的饲料后,其雌性亲鱼的性腺指数、繁殖力及卵母细胞直径均达到最高水平。目前,关于亲鱼蛋白质营养的研究多集中于对初次卵巢发育和繁殖性能的影响。然而,部分鱼类具有多批次产卵的特性,而有关饲料蛋白质在亲鱼产卵后恢复及二次产卵过程中的作用研究仍较为薄弱。因此,进一步探究饲料蛋白质对亲鱼产卵后健康状况的影响,对提升其二次乃至多次繁殖性能具有重要意义。
大口黑鲈(Micropterus salmoides),俗称加州鲈,隶属于鲈形目太阳鱼科黑鲈属,原产于北美[15]。该物种雌性亲鱼的怀卵量为40 000~100 000粒,属典型的多批次产卵鱼类[16]。近年来,借助反季节繁殖技术,已可在同一年秋季诱导大口黑鲈亲鱼进行第2次产卵,显著缩短其繁殖周期[17]。然而,目前关于大口黑鲈雌性亲鱼在不同繁殖阶段的蛋白质营养需求研究仍相对薄弱,尤其是产卵后阶段的适宜蛋白质供给及其对亲鱼健康恢复的影响,鲜有系统报道。为此,本研究拟通过设置不同蛋白质水平的饲料,探究其对大口黑鲈雌性亲鱼产卵后抗氧化能力和免疫功能的影响,以明确该阶段亲鱼饲料的适宜蛋白质水平,为优化亲鱼产卵后饲料配方、改善雌性亲鱼健康状况、提高其存活率与利用率提供理论依据。

1 材料与方法

1.1 试验设计

试验中所用产卵后大口黑鲈雌性亲鱼采购于浙江省湖州市某养殖场,放置于暂养池中暂养1周,使其适应试验条件。暂养结束后,选择健康无病的初始体重为(493.85±3.36) g的大口黑鲈雌性亲鱼共210尾,进行打标后随机分为5组,放入30个桶(500 L)中,每组6个桶(重复),每桶7尾鱼。5组亲鱼饲喂蛋白质水平分别为35%、40%、45%、50%和55%试验饲料(对应分组命名为35%、40%、45%、50%和55%组),循环水养殖8周。该动物试验经湖州师范学院实验动物伦理委员会审查批准(批准代码20220701)。

1.2 试验饲料

试验饲料以鱼粉、豆粕和大豆浓缩蛋白为蛋白质源,且3种蛋白质源成比例递增,以预糊化淀粉为糖源,以鱼油、豆油和大豆卵磷脂为脂肪源,配制5种蛋白质水平分别为35%、40%、45%、50%和55%的等脂等能试验饲料。试验饲料组成及营养水平见表1,其氨基酸组成见表2。在制作饲料之前,先将所有原料进行粉碎处理,均粉碎至能过60目的筛网,且筛上物小于5%。粉碎完原料之后,按照饲料配方进行称重、手动混匀、加油搅拌、过筛;随后使用双螺旋挤条机制成直径为2.5 mm的颗粒饲料,用烘箱在65 ℃温度下熟化2 h后,45 ℃下烘干;常温冷却,装袋编号后置于-20 ℃冰箱保存备用。
表1 试验饲料组成及营养水平(干物质基础)

Table 1 Composition and nutrient levels of experimental diets (DM basis)%

项目
Items
组别 Groups
35% 40% 45% 50% 55%
原料 Ingredients
鱼粉 Fish meal 28.70 32.80 36.90 41.00 45.10
豆粕 Soybean meal 5.60 6.40 7.20 8.00 8.80
大豆浓缩蛋白 Soy protein concentrate 21.70 24.80 27.90 31.00 34.10
预糊化淀粉 Pregelatinized starch 31.40 23.80 16.20 8.60 1.00
鱼油 Fish oil 2.80 2.60 2.40 2.20 2.00
豆油 Soybean oil 2.80 2.60 2.40 2.20 2.00
大豆卵磷脂 Soybean lecithin 2.00 2.00 2.00 2.00 2.00
维生素预混料 Vitamin premix1) 0.50 0.50 0.50 0.50 0.50
矿物质预混料 Mineral premix2) 0.50 0.50 0.50 0.50 0.50
磷酸二氢钙 Ca(H2PO4)2 1.50 1.50 1.50 1.50 1.50
氯化胆碱 Choline chloride 0.50 0.50 0.50 0.50 0.50
羧甲基纤维素钠 Na-CMC 2.00 2.00 2.00 2.00 2.00
合计 Total 100.00 100.00 100.00 100.00 100.00
营养水平 Nutrient levels3)
粗蛋白质 Crude protein 35.53 38.37 44.92 50.98 54.88
粗脂肪 Crude lipid 10.39 10.40 10.40 10.41 10.41
粗灰分 Crude ash 9.78 10.73 11.80 12.83 13.86

1)维生素预混料为每千克饲料提供 Vitamin premix provided the following per kg of diets:VA 32 mg,VD3 4 mg,VC 151.52 mg,VK3 10 mg,VB1 16 mg,VB2 45 mg,VB6 20 mg,VB12 0.4 mg,VE 360 mg,泛酸钙 calcium pantothenate 70 mg,烟酸 nicotinic acid 80 mg,叶酸 folic acid 5 mg,生物素 biotin 1 mg,肌醇 inositol 320 mg,沸石粉 zeolite powder 3 885.08 mg。

2)矿物质预混料为每千克饲料提供 Mineral premix provided the following per kg diets:CuSO4·5H2O 9.77 mg,ZnSO4·7H2O 154.53 mg,MnSO4·H2O 26.15 mg,FeSO4·7H2O 124.13 mg,Ca(IO3)2 2.31 mg,Na2SeO3 0.44 mg,CoCl2·6H2O 1.60 mg,MgSO4·7H2O 1 224.49 mg,沸石粉 zeolite powder 3 456.58 mg。

3)营养水平为测定值。Nutrient levels were measured values.

表2 试验饲料的氨基酸组成(干物质基础)

Table 2 Amino acid composition of experimental diets (DM basis)%

氨基酸
Amino acids
组别 Groups
35% 40% 45% 50% 55%
天冬氨酸 Asp 1.82 1.93 2.26 2.43 2.58
谷氨酸 Glu 4.81 5.04 6.04 6.61 7.11
丝氨酸 Ser 1.15 1.22 1.69 1.61 1.76
甘氨酸 Gly 0.74 0.78 0.96 0.99 1.06
组氨酸 His 1.11 1.25 1.53 1.64 1.74
精氨酸 Arg 2.39 2.58 3.33 3.45 3.66
苏氨酸 Thr 1.25 1.45 1.78 1.97 2.19
丙氨酸 Ala 2.41 2.55 3.09 3.37 3.66
脯氨酸 Pro 1.68 1.78 2.16 2.34 2.57
酪氨酸 Tyr 1.20 1.30 1.58 1.84 2.05
缬氨酸 Val 2.07 2.17 2.56 2.85 3.08
甲硫氨酸 Met 0.96 1.03 1.24 1.36 1.45
异亮氨酸 Ile 2.12 2.28 2.73 3.00 3.25
亮氨酸 Leu 3.53 3.76 4.50 4.99 5.38
苯丙氨酸 Phe 1.84 1.96 2.39 2.60 2.91
赖氨酸 Lys 3.06 3.33 3.97 4.35 4.78

1.3 饲养管理

养殖试验在浙江省湖州师范学院养殖中心循环系统中进行。每日换水1次,换水量为整个水体的1/3,每日2次(09:00和16:00)定时定量定点投喂,日投喂量为鱼体重的2%~5%,并根据温度和天气情况进行调整,各组投喂量保持基本一致。每日采用虹吸方式进行吸污。在自然光照周期下,水温保持在19~25 ℃,水体中溶解氧浓度>6.5 mg/L,pH为6.8~7.5,氨氮浓度≤0.1 mg/L。

1.4 样品采集和指标测定

1.4.1 饲料营养成分

取制作完成的试验饲料测定营养成分含量。采用杜马斯定氮仪(GB/T 24318—2009)测定粗蛋白质含量;采用索氏抽提法(GB/T 6433—2006)测定粗脂肪含量;采用105 ℃恒温烘干失重法(GB/T 6435—2014)测定水分(干物质)含量;采用马弗炉550 ℃灼烧法(GB/T 6438—2007)测定粗灰分含量;采用高效液相色谱仪进行氨基酸组成分析。

1.4.2 形体指标

养殖试验结束后,从每组的6个重复中各随机取试验鱼1尾(每组共6尾),将其放入含有丁香酚的水中进行麻醉,随后扫标,称量体重;解剖后,称取内脏团重、肝脏重和肠系膜脂肪重,并按照以下公式计算形体指标:

肝体比(HSI,%)=(Wh/Wt)×100;

脏体比(VSI,%)=(Wv/Wt)×100;

肠系膜脂肪系数(MFI,%)=(Wf/Wt)×100。

式中:Wt为最终体重(g);Wh为肝脏重(g);Wv为内脏团重(g);Wf为肠系膜脂肪重(g)。

1.4.3 肝脏和卵巢中抗氧化和免疫相关指标的测定

取适量肝脏和卵巢组织,采用上海恒远生物科技有限公司提供的试剂盒测定抗氧化和免疫相关指标,包括超氧化物歧化酶(SOD,试剂盒编号P-942-SH)、过氧化氢酶(CAT,试剂盒编号A-005-SH)、谷胱甘肽过氧化物酶(GPx,试剂盒编号B-114-SH)、还原型谷胱甘肽(GSH,试剂盒编号B-118-SH)、溶菌酶(LZM,试剂盒编号P-823-SH)、酸性磷酸酶(ACP,试剂盒编号P-931-SH)、碱性磷酸酶(AKP,试剂盒编号L-726-SH)、免疫球蛋白(IgM,试剂盒编号HS318-QT)含量或活性。所有样品的测定过程均严格按照试剂盒说明书进行。

1.4.4 肝脏和卵巢中抗氧化和免疫相关基因表达分析

分别取适量肝脏和卵巢组织,提取总RNA,并使用PrimeScriptTM RT Master Mix反转录试剂盒(TaKaRa,日本)反转录为cDNA。所测抗氧化和免疫相关基因包括CAT、谷胱甘肽转移酶(GST)、GPx、超氧化物歧化酶1(SOD1)、超氧化物歧化酶3(SOD3)、锰-超氧化物歧化酶(Mn-SOD)、铜/锌-超氧化物歧化酶(Cu/Zn-SOD)、热休克蛋白70(HSP70)、Toll样受体1(TLR1)、Toll样受体2(TLR2)、Toll样受体3(TLR3)、Toll样受体9(TLR9)、转化生长因子-β3(TGF-β3)、IgMLZM、白细胞介素-1β(IL-1β)、白细胞介素-8(IL-8)、肿瘤坏死因子-α(TNF-α),基因序列来源于课题组前期获得的肝胰腺转录组测序结果及NCBI数据库,使用NCBI在线引物设计工具Primer BLAST进行引物设计,引物信息见表3。采用江苏康为世纪生物科技股份有限公司生产的SYBR染料,在CFX96 Real-Time PCR仪(Bio-Rad,美国)上进行实时荧光定量PCR(RT-qPCR)。反应程序为:95 ℃预变性10 min;随后进行40个循环,包括95 ℃变性10 s,60 ℃退火30 s,72 ℃延伸32 s。以β-肌动蛋白(β-actin)和甘油醛-3-磷酸脱氢酶(GAPDH)作为内参基因,采用2-ΔΔCt方法计算各目的基因的mRNA在肝脏和卵巢中的相对表达量。
表3 本试验所用的引物序列

Table 3 Sequences of primers used in this experiment

基因名称
Gene names
引物序列
Primer sequences (5'—3')
产物长度
Product length/bp
基因序列号
Gene sequence number
β-肌动蛋白
β-actin
F:TCACAGTCCTCCTAAGCCGA
R:GGCCCATACCAACCATCACA
186 MH018565.1
甘油醛-3-磷酸脱氢酶
GAPDH
F:GGTGAGGTCAAGGTTGAGGG
R:CCACTTGATGTTAGCGGGGT
90 JQ896302.1
过氧化氢酶
CAT
F:CTGCTGTTCCCGTCCTTCAT
R:GGTAGCCATCAGGCAAACCT
154 MK614708.1
谷胱甘肽转移酶
GST
F:GGTCTCACGCTCAACCAGAA
R:CAGCTTGACCTCAGCACTCA
123 AY335905.1
谷胱甘肽过氧化物酶
GPx
F:CGTTATTCTGGGTGTGCCCT
R:AAACAAGGGGTGTGCATCCT
166 MK614713.1
超氧化物歧化酶1
SOD1
F:GCATGTTGGAGACTTGGGGA
R:CAATGATCGAGTACGGGCCA
104 MK614709.1
超氧化物歧化酶3
SOD3
F:ACCCCTACCATCCTGGAGAC
R:ATGGAGCACCACTGCTCTTC
125 MK614711.1
锰-超氧化物歧化酶
Mn-SOD
F:CTCCCTGACCTGACCTACGA
R:CATCTCCCTTCGCTAGTGCC
151 MK614710.1
铜/锌-超氧化物歧化酶
Cu/Zn-SOD
F:ACCACAGAAACTTACGCGACA
R:AATAAACGGTCCCGGTGGTC
100 FJ030929.1
热休克蛋白70
HSP70
F:GGACAGGTGCAACGAGGTTA
R:ACAGCTTGGTGATGATGGGG
119 FJ751227.1
Toll样受体1
TLR1
F:GGTCAGCGTTACCTGTTCCA
R:GGAAAGGGTCAGTGTGCGTA
195 OL795919.1
Toll样受体2
TLR2
F:ATGACATGGGCATGGCTGAA
R:AGTCCCAGAGCCTCCATCAT
189 MN807054.1
Toll样受体3
TLR3
F:TACCTCTGCCACCCCGATTA
R:TAAGACTCGTCAGGCCGGTA
128 OP918018.1
Toll样受体9
TLR9
F:TCCCATGTGACACTGACGTG
R:AAGGAGACATGCGTGAGTGG
70 OL795924.1
转化生长因子-β3
TGF-β3
F:ATCCACTTGCACTACGGTGG
R:GGCCAGAACCTGAAACGGTA
142 XM_038729533.1
免疫球蛋白M
IgM
F:ATGAATGGAGCAAGGGGGTG
R:GCATGAACACTGAAGGACGC
123 MN871984.1
溶菌酶
LZM
F:TGCATGGGACAGTGAGGAAC
R:AATGGACGTTTCTGTCCCCC
152 MH087462.1
白细胞介素-1β
IL-1β
F:CTGAGCGACCGCAGTAAGAA
R:TCACTTTGTGGGTGCTGTGT
97 XM_038733429.1
白细胞介素-8
IL-8
F:ACCTCTATCGTGGTGCTCCT
R:GTGGGAGTTGGCAGGAATCA
156 MW751832.1
肿瘤坏死因子-α
TNF-α
F:CGTGAACCAGGAGGAAGACC
R:CGTCAGCCTGGATAGACGAC
188 OK493793.1

1.5 数据统计与分析

试验数据采用SPSS 25.0软件进行统计分析。首先通过单因素方差分析(one-way ANOVA)检验各组间差异的显著性,随后采用Duncan氏法进行多重比较。以P<0.05作为差异显著性的判断标准。试验结果以平均值±标准误(mean±SE)的形式表示。

2 结果与分析

2.1 饲料蛋白质水平对大口黑鲈雌性亲鱼产卵后形体指标的影响

表4可知,35%组大口黑鲈亲鱼的HSI和MFI均显著高于50%和55%组(P<0.05),与40%和45%组无显著差异(P>0.05);饲料蛋白质水平对大口黑鲈亲鱼的VSI无显著影响(P>0.05)。
表4 饲料蛋白质水平对大口黑鲈雌性亲鱼产卵后形体指标的影响

Table 4 Effects of dietary protein level on morphology indexes of largemouth bass female broodstock after spawning

项目
Items
组别 Groups
35% 40% 45% 50% 55%
肝体比 HSI 1.56±0.27a 1.18±0.13ab 1.21±0.10ab 1.04±0.07b 0.93±0.11b
脏体比 VSI 7.69±0.73 7.15±0.37 7.17±0.38 6.20±0.17 6.47±0.60
肠系膜脂肪系数 MFI 1.49±0.18a 1.26±0.09ab 1.17±0.12ab 1.05±0.12b 1.10±0.06b

同行数据肩标不同字母表示差异显著(P<0.05),肩标相同字母或无字母表示差异不显著(P>0.05)。下表同。

Values in the same row with different letter superscripts indicated significant difference (P<0.05), while with the same letter or no letter superscripts indicated no significant difference (P>0.05). The same as below.

2.2 饲料蛋白质水平对大口黑鲈雌性亲鱼产卵后肝脏和卵巢中抗氧化指标的影响

表5可知,饲料蛋白质水平对大口黑鲈亲鱼肝脏和卵巢中CAT、GPx活性与GSH含量均无显著影响(P>0.05);45%、50%和55%组肝脏和卵巢中SOD活性显著高于35%和40%组(P<0.05)。
表5 饲料蛋白质水平对大口黑鲈雌性亲鱼产卵后肝脏和卵巢中抗氧化指标的影响

Table 5 Effects of dietary protein level on antioxidant indexes in liver and ovary of female largemouth bass broodstock after spawning

项目
Items
组别 Groups
35% 40% 45% 50% 55%
肝脏 Liver
超氧化物歧化酶
SOD/(U/g)
319.61±27.85b 333.14±14.32b 640.54±20.19a 588.47±29.08a 642.23±26.24a
过氧化氢酶
CAT/(U/g)
561.13±27.61 542.19±39.28 518.35±35.25 551.08±11.81 551.04±33.69
谷胱甘肽过氧化物酶
GPx/(U/g)
1.64±0.11 1.69±0.07 1.76±0.19 1.81±0.19 1.61±0.15
还原型谷胱甘肽
GSH/(μmol/g)
8.35±0.65 9.21±0.39 8.32±0.69 9.02±0.87 8.50±0.91
卵巢 Ovary
超氧化物歧化酶
SOD/(U/g)
444.53±30.38b 441.60±30.34b 906.33±114.18a 769.77±25.17a 855.02±97.13a
过氧化氢酶
CAT/(U/g)
636.75±56.04 600.78±10.25 572.43±13.30 620.98±17.38 617.15±24.69
谷胱甘肽过氧化物酶
GPx/(U/g)
2.14±0.15 2.21±0.14 2.19±0.07 2.03±0.04 1.99±0.18
还原型谷胱甘肽
GSH/(μmol/g)
6.68±0.58 6.84±0.87 6.23±0.26 6.17±1.04 6.68±0.64

2.3 饲料蛋白质水平对大口黑鲈雌性亲鱼产卵后肝脏和卵巢中免疫指标的影响

表6可知,在肝脏中,35%组LZM活性显著低于50%和55%组(P<0.05),ACP活性显著高于其他各组(P<0.05),AKP活性显著高于40%和55%组(P<0.05);随着蛋白质水平升高,IgM含量呈先上升再下降的趋势,以45%组最高,显著高于其他各组(P<0.05)。在卵巢中,45%组LZM活性和IgM含量最高,显著高于其他各组(P<0.05);35%组ACP活性显著高于其他各组(P<0.05);随着饲料蛋白质水平的升高,AKP活性持续降低,55%组显著低于35%、40%、45%和50%组(P>0.05)。
表6 饲料蛋白质水平对大口黑鲈雌性亲鱼产卵后肝脏和卵巢中免疫指标的影响

Table 6 Effects of dietary protein level on immune indexes in liver and ovary of female largemouth bass broodstock after spawning

项目
Items
组别 Groups
35% 40% 45% 50% 55%
肝脏 Liver
溶菌酶 LZM/(U/g) 170.07±3.88c 180.26±8.44bc 185.50±2.93bc 193.29±7.02b 239.45±3.96a
酸性磷酸酶 ACP/(U/g) 1.89±0.02a 1.57±0.07b 1.67±0.08b 1.48±0.05b 1.52±0.09b
碱性磷酸酶 AKP/(U/g) 2.89±0.02a 2.55±0.06b 2.72±0.07ab 2.70±0.06ab 1.90±0.08c
免疫球蛋白 IgM/(μg/g) 26.93±1.04d 30.35±0.37c 38.06±0.54a 34.58±0.40b 35.01±0.62b
卵巢 Ovary
溶菌酶 LZM/(U/g) 126.88±7.05c 109.03±1.86d 176.72±5.66a 140.89±0.51b 134.24±0.88bc
酸性磷酸酶 ACP/(U/g) 1.68±0.03a 1.27±0.08b 1.31±0.04b 1.34±0.08b 1.20±0.12b
碱性磷酸酶 AKP/(U/g) 2.24±0.08a 2.09±0.06a 1.95±0.10a 1.88±0.15a 1.06±0.17b
免疫球蛋白 IgM/(μg/g) 24.65±0.81bc 24.20±0.83c 31.82±1.85a 28.54±1.31ab 26.14±1.00bc

2.4 饲料蛋白质水平对大口黑鲈雌性亲鱼产卵后肝脏和卵巢中抗氧化相关基因表达的影响
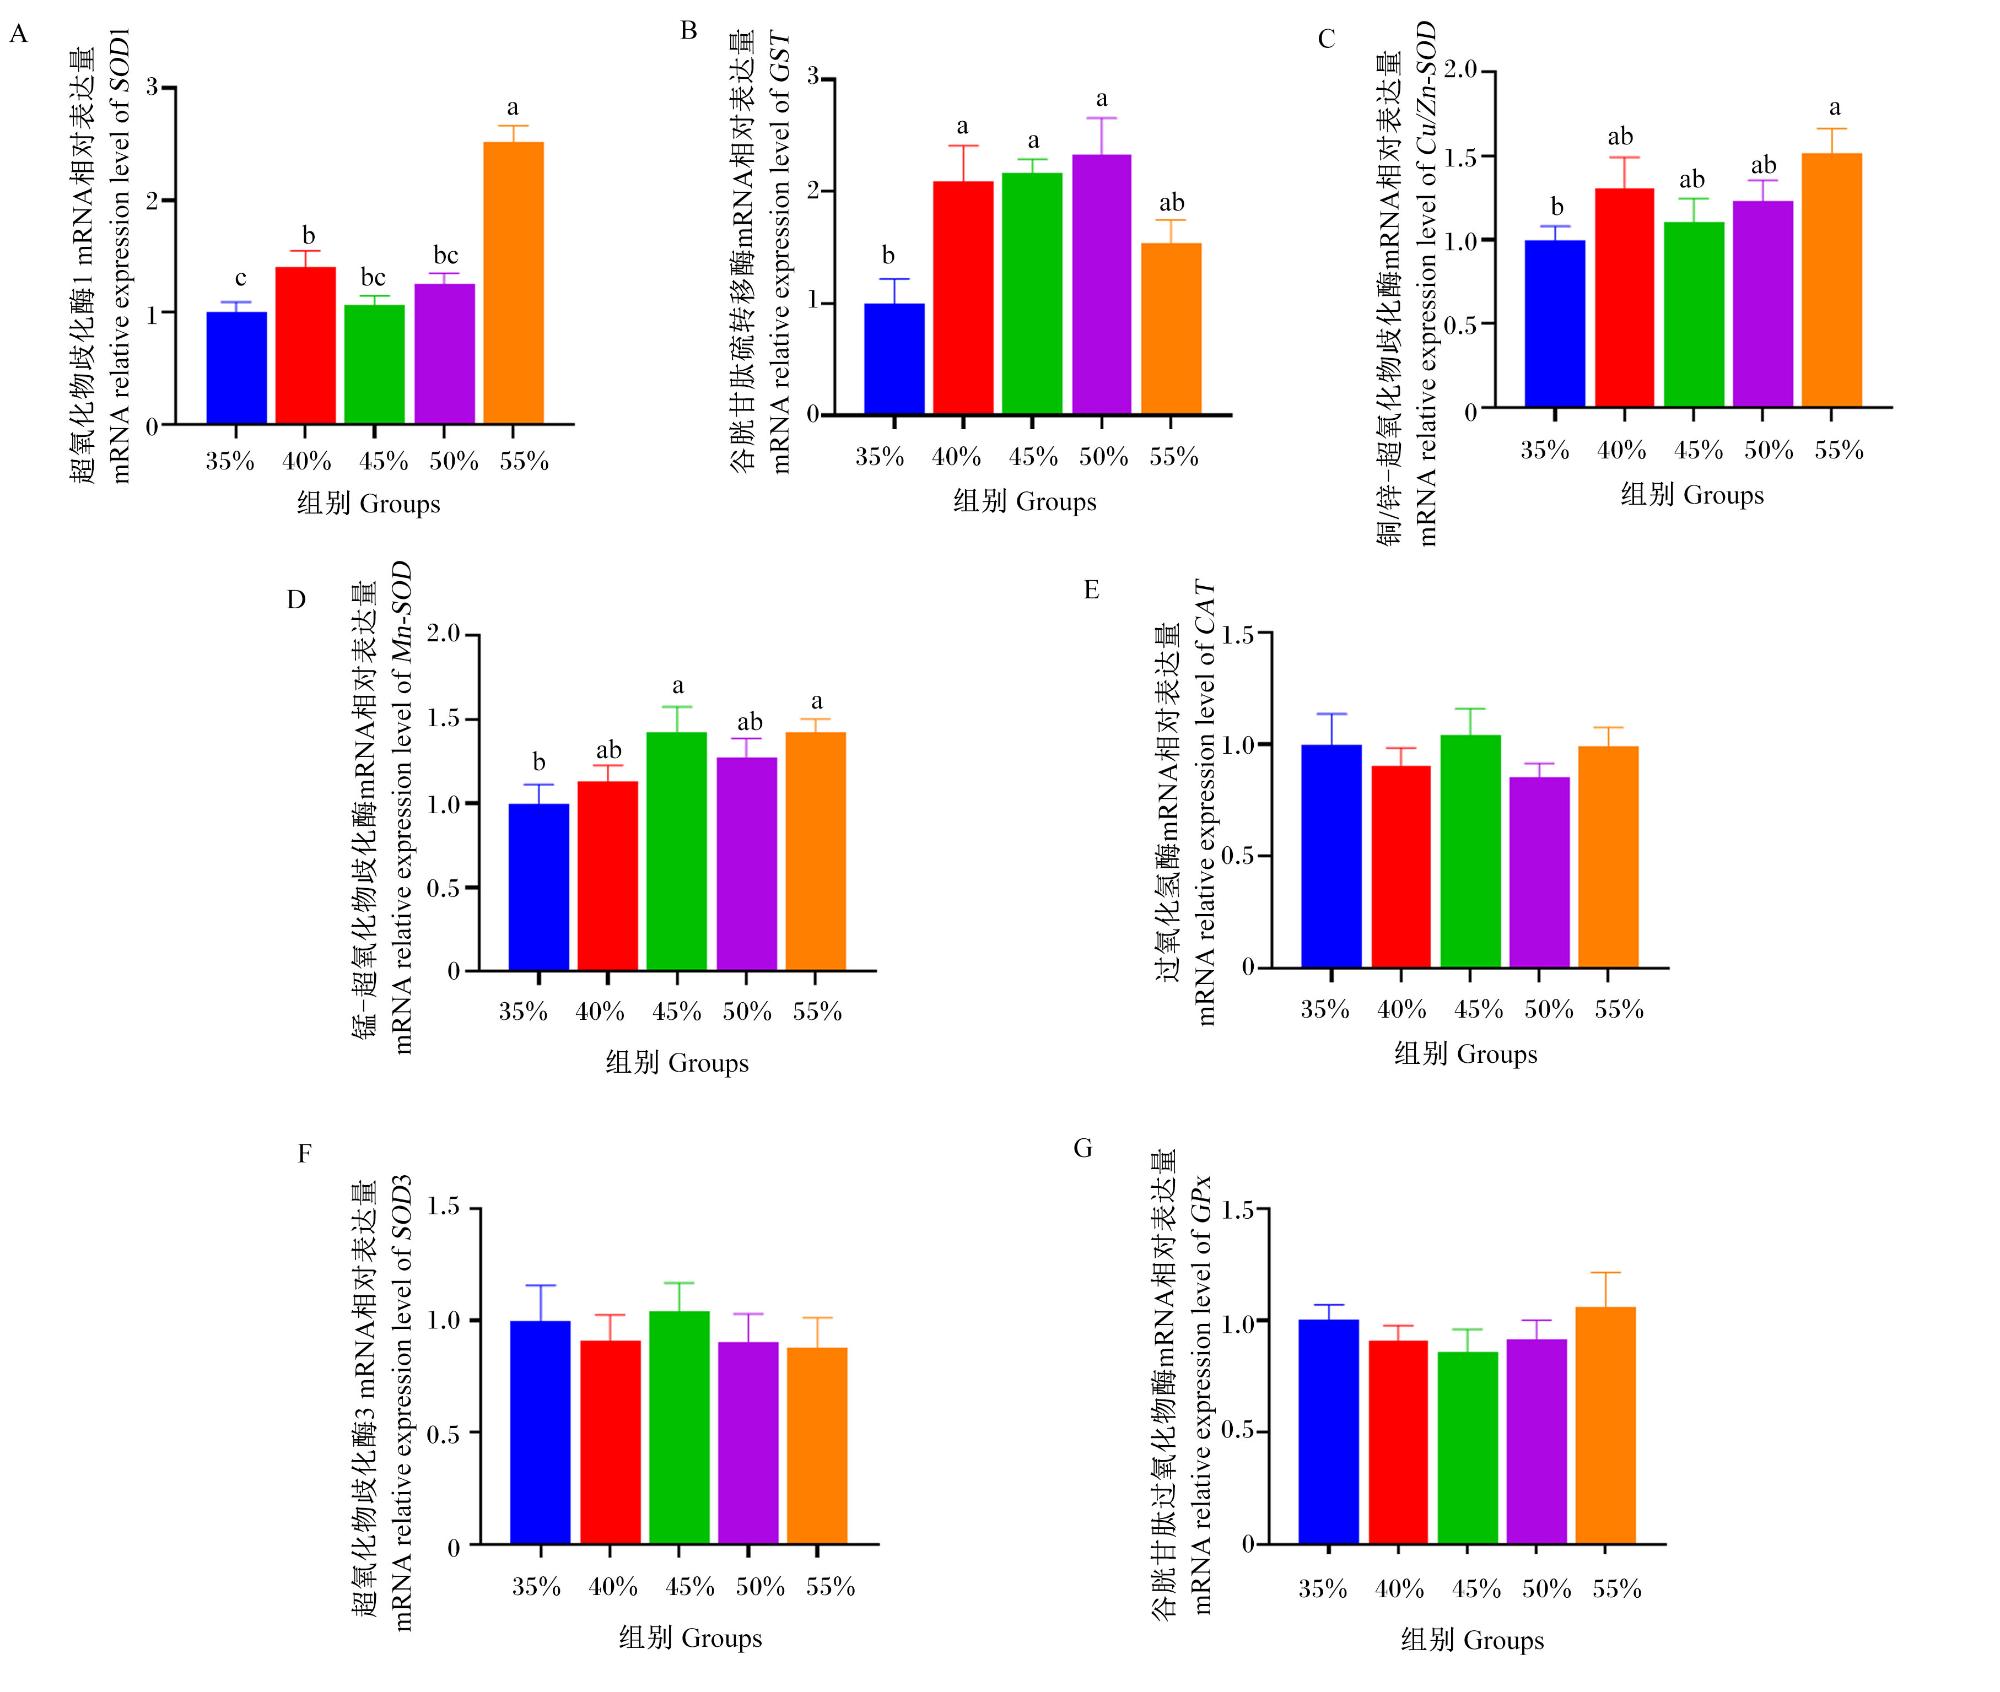
饲料蛋白质水平对大口黑鲈雌性亲鱼产卵后肝脏中抗氧化相关基因表达的影响如图1所示。55%组SOD1的mRNA相对表达量最高,显著高于其他各组(P<0.05);35%组GSTCu/Zn-SOD的mRNA相对表达量最低,其中GST的mRNA相对表达量显著低于40%、45%和50%组(P<0.05),Cu/Zn-SOD的mRNA相对表达量显著低于55%组(P<0.05);45%和55%组Mn-SOD的mRNA相对表达量显著高于35%组(P<0.05);饲料蛋白质水平对CATSOD3和GPx的mRNA相对表达量无显著影响(P>0.05)。
图1 饲料蛋白质水平对大口黑鲈雌性亲鱼产卵后肝脏中抗氧化相关基因表达的影响

数据柱标注不同字母表示差异显著(P<0.05),标注相同字母或无字母表示差异不显著(P>0.05)。下图同。

Fig.1 Effects of dietary protein level on expression of antioxidant-related genes in liver of largemouth bass broodstock after spawning

Values columns with different letters indicated significant difference (P<0.05), while with the same letter or no letter indicated no significant difference (P>0.05). The same as below.

饲料蛋白质水平对大口黑鲈雌性亲鱼产卵后卵巢中抗氧化相关基因表达的影响如图2所示。饲料蛋白质水平对CATSOD3、GSTGPx的mRNA相对表达量没有显著影响(P>0.05); 45%组SOD1的mRNA相对表达量显著高于35%、40%和55%组(P<0.05),但45%和50%组之间没有显著差异(P>0.05);45%组Cu/Zn-SOD的mRNA相对表达量最高,显著高于其他各组(P<0.05);45%、50%和55%组Mn-SOD的mRNA相对表达量差异不显著(P>0.05),但均显著高于35%和40%组(P<0.05)。
图2 饲料蛋白质水平对大口黑鲈雌性亲鱼产卵后卵巢中抗氧化相关基因表达的影响

Fig.2 Effects of dietary protein level on expression of antioxidant-related genes in ovary of largemouth bass broodstock after spawning

2.5 饲料蛋白质水平对大口黑鲈雌性亲鱼产卵后肝脏和卵巢中免疫相关基因表达的影响

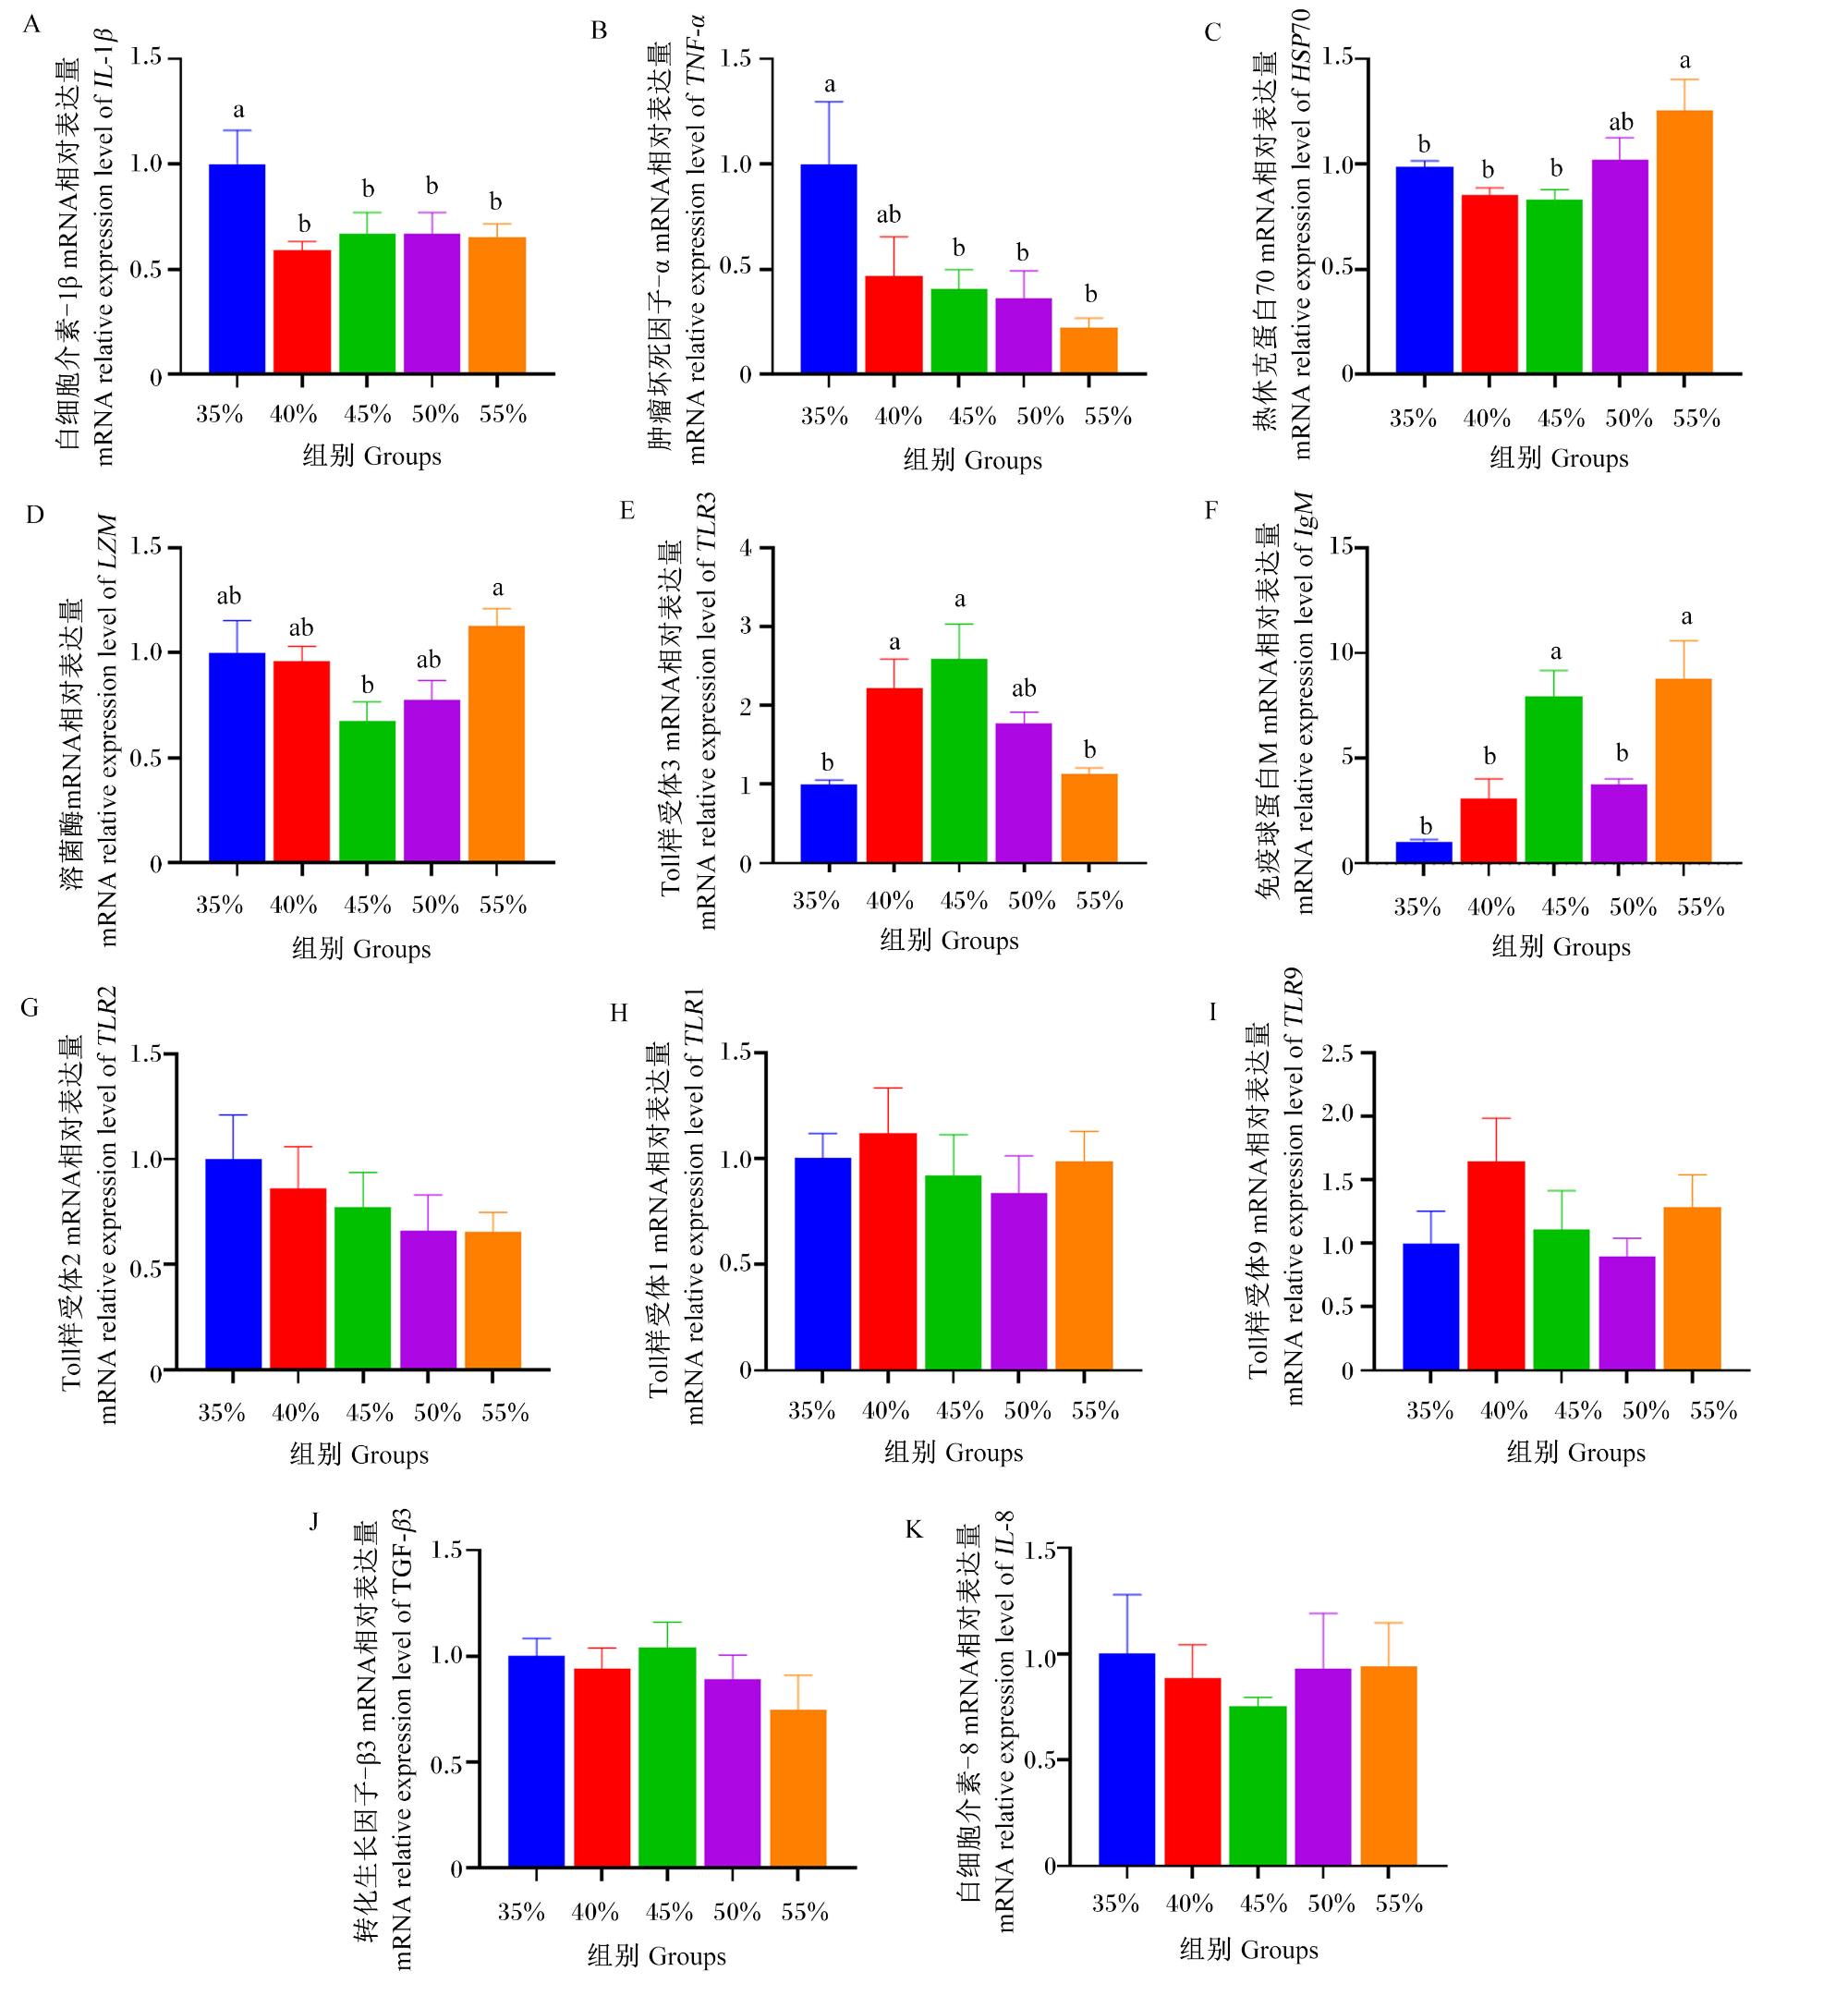
饲料蛋白质水平对大口黑鲈雌性亲鱼产卵后肝脏中免疫相关基因表达的影响如图3所示。35%组IL-1βTNF-α的mRNA相对表达量最高,其中IL-1β的mRNA相对表达量显著高于其他各组(P<0.05),TNF-α的mRNA相对表达量显著高于45%、50%和55%组(P<0.05);55%组HSP70的mRNA相对表达量最高,显著高于35%、40%和45%组(P<0.05);55%组LZM的mRNA相对表达量显著高于45%组(P<0.05),与其他3组无显著差异(P>0.05);40%和45%组TLR3的mRNA相对表达量显著高于35%和55%组(P<0.05);45%和55%组IgM的mRNA相对表达量显著高于35%、40%和50%组(P<0.05);随着饲料蛋白质水平的升高,TLR2的mRNA相对表达量呈下降趋势,但各组之间的差异均未达到显著水平(P>0.05);此外,TLR1、TLR9、TGF-β3和IL-8的mRNA相对表达量在各组之间均没有显著差异(P>0.05)。
图3 饲料蛋白质水平对大口黑鲈雌性亲鱼产卵后肝脏中免疫相关基因表达的影响

Fig.3 Effects of dietary protein level on expression of immune-related genes in liver of largemouth bass broodstock after spawning

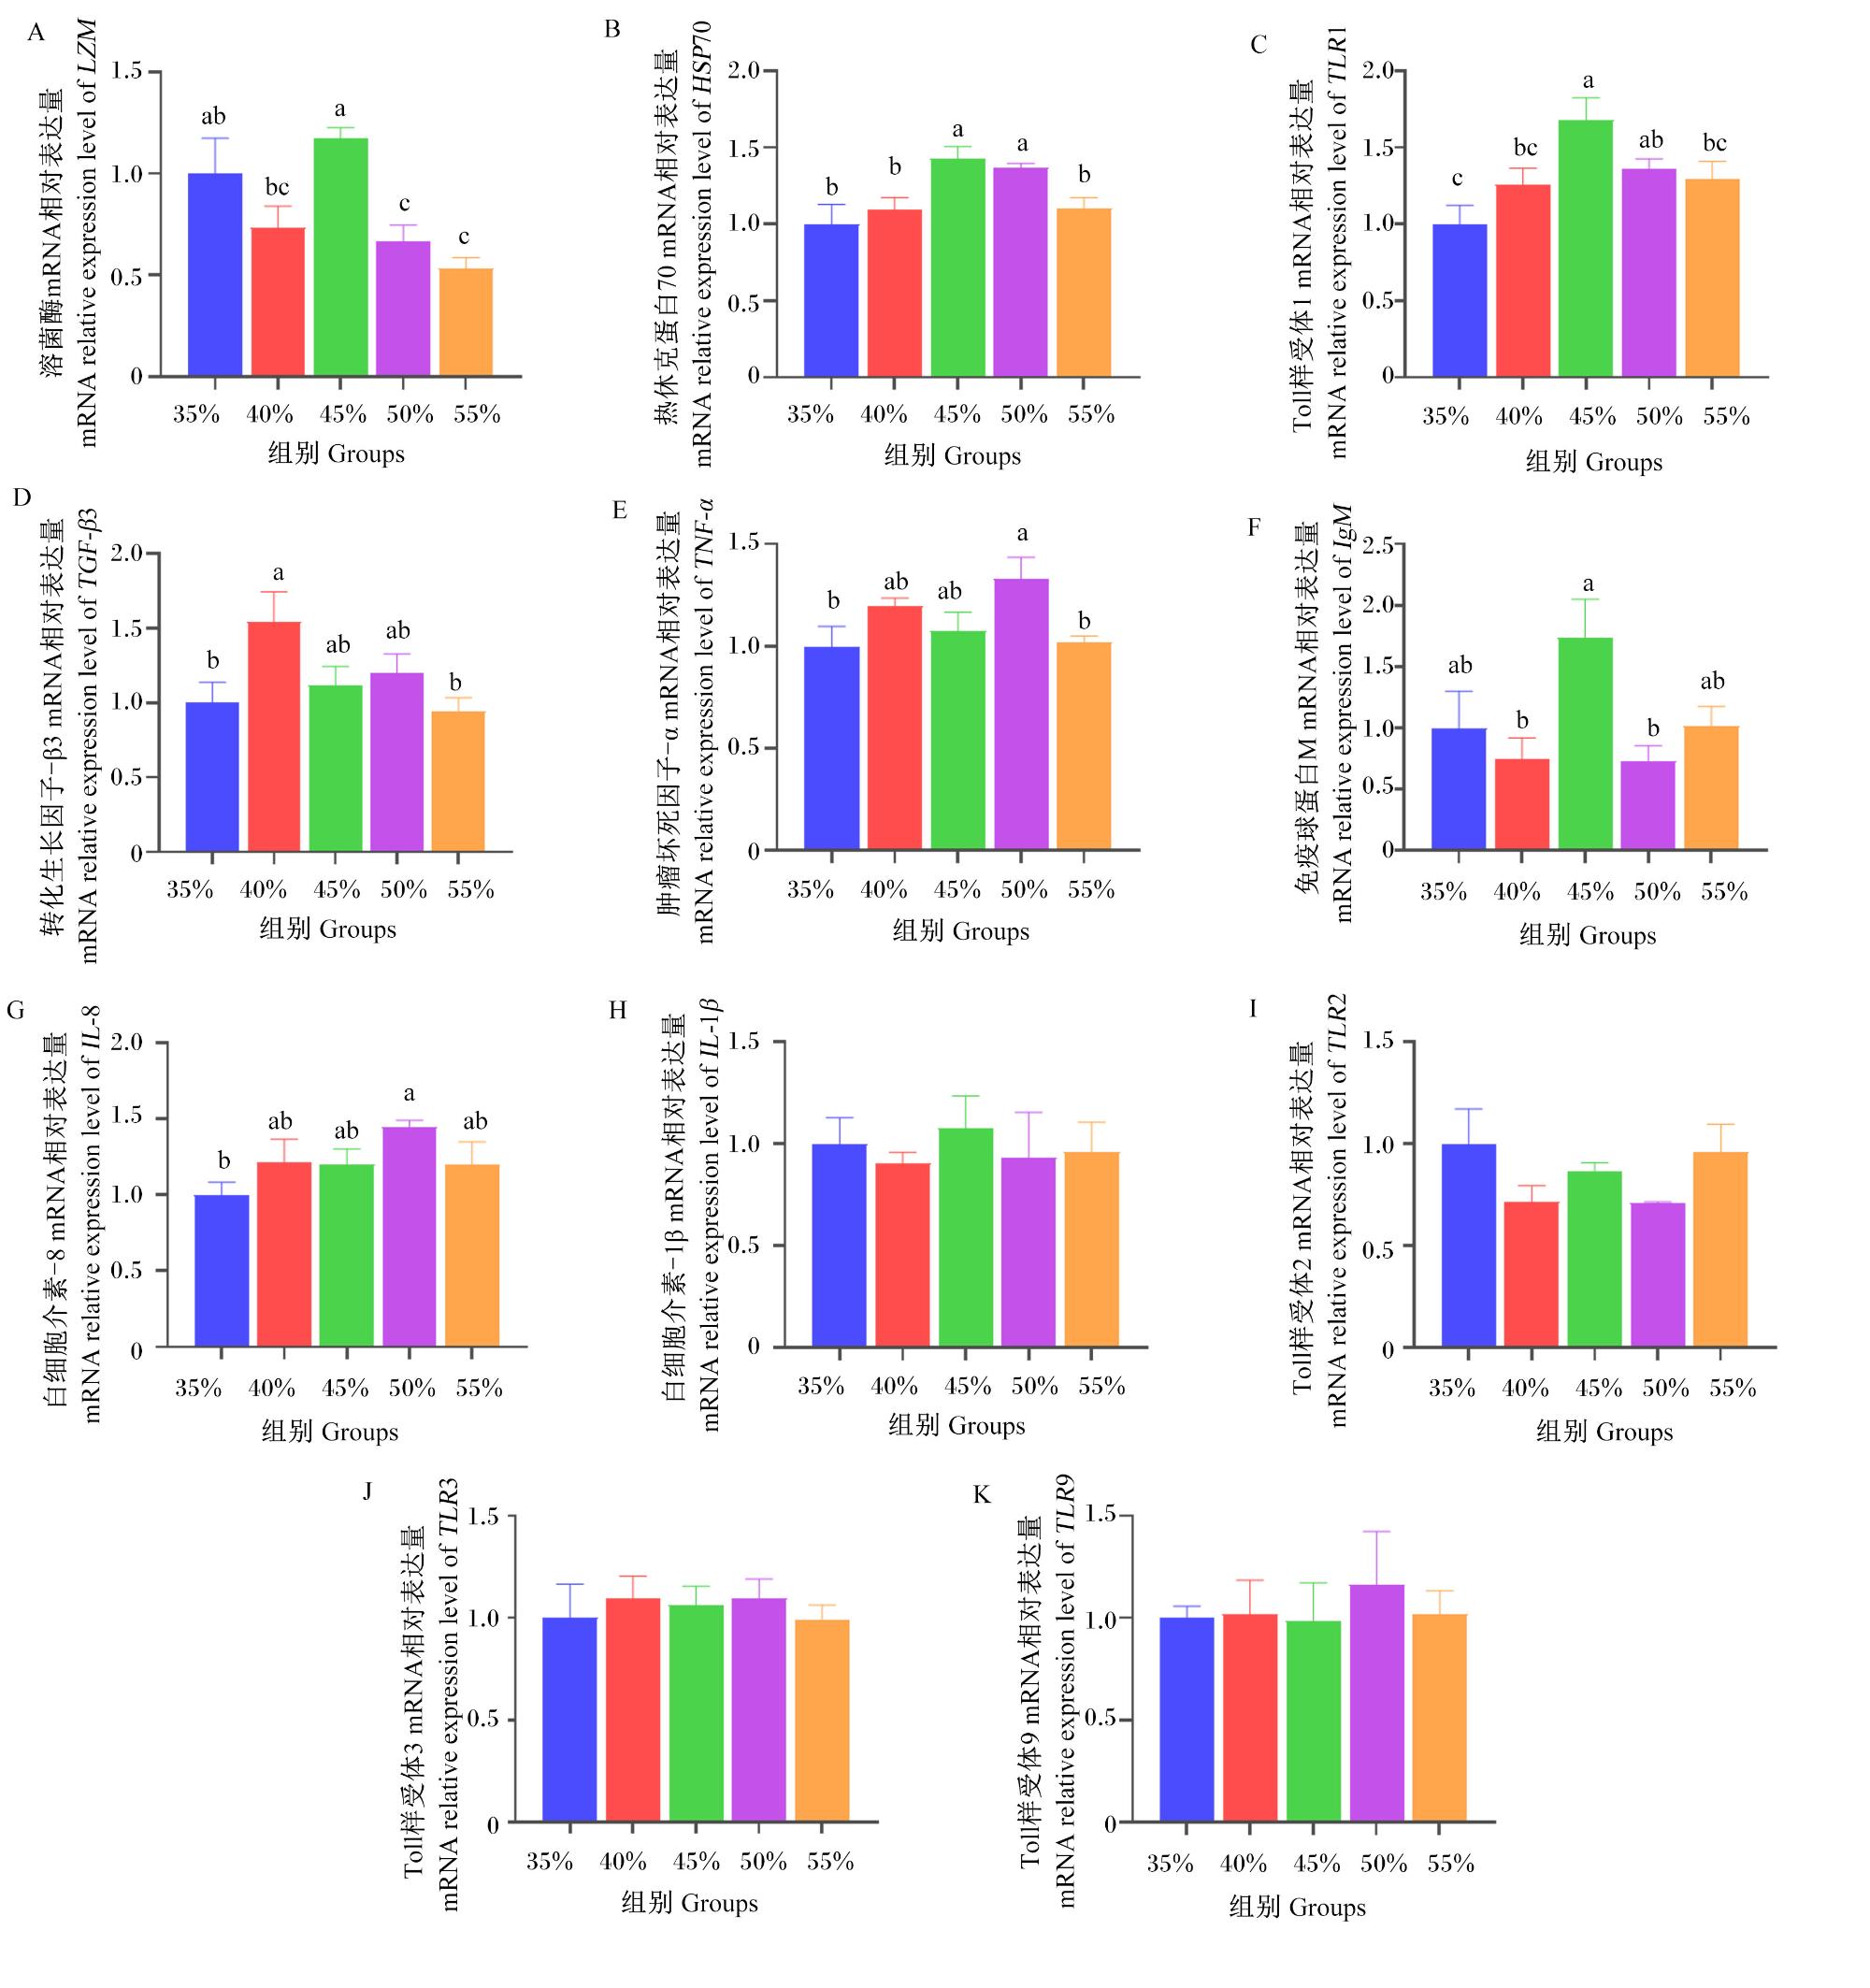
饲料蛋白质水平对大口黑鲈雌性亲鱼产卵后卵巢中免疫相关基因表达的影响如图4所示。饲料蛋白质水平对TLR2、TLT3、TLR9和IL-1β的mRNA相对表达量均无显著影响(P>0.05);45%组LZM的mRNA相对表达量显著高于40%、50%和55%组(P<0.05),与35%组无显著差异(P>0.05);45%组HSP70和TLR1的mRNA相对表达量最高,显著高于35%、40%和55%组(P<0.05),但与50%组无显著差异(P>0.05);40%组TGF-β3的mRNA相对表达量显著高于35%和55%组(P<0.05);50%组TNF-α的mRNA相对表达量显著高于35%和55%组(P<0.05),其余4组之间则无显著差异(P>0.05);45%组IgM的mRNA相对表达量显著高于40%和50%组(P<0.05),但与35%和55%组没有显著差异(P>0.05);50%组IL-8的mRNA相对表达量显著高于35%组(P<0.05),其他各组之间没有显著差异(P>0.05)。
图4 饲料蛋白质水平对大口黑鲈雌性亲鱼产卵后卵巢中免疫相关基因表达的影响

Fig.4 Effects of dietary protein level on expression of immune-related genes in ovary of postpartum largemouth bass broodstock after spawning

3 讨论

3.1 饲料蛋白质水平对大口黑鲈雌性亲鱼产卵后形体指标的影响

鱼类生长状况最直观的反映是形体指标,其中HSI、VSI和MFI常被用于评估鱼类的生理状态。鱼类体内脂肪主要积累于肝脏和肠系膜等部位,脂肪过度沉积会对肝脏及其他器官造成代谢负担[18]。已有研究表明,太湖鲂鲌(Culter alburnus ♀×Megalobrama terminalis♂)幼鱼的HSI与饲料碳水化合物水平呈正相关,与饲料蛋白质水平呈负相关,过高的碳水化合物摄入会促进脂肪合成,进而导致脂肪在体内过度蓄积[19]。本研究结果显示,随着饲料蛋白质水平的升高,大口黑鲈亲鱼的HSI和MFI整体呈现下降趋势,这与在黄姑鱼(Nibea diacanthus)[20]和光倒刺鲃(Spinibarbus hollandi)[21]幼鱼上的研究结果一致。为维持各组饲料等脂等能,饲料蛋白质水平越低,则碳水化合物水平相应越高。在饲料蛋白质水平为35%时,大口黑鲈亲鱼的HSI和MFI最高,这可能是由于蛋白质水平过低导致肝脏和肠系膜中脂肪蓄积增加,进而影响机体健康,说明适宜提高饲料蛋白质水平对亲鱼肝脏健康具有改善作用。本试验中,饲料蛋白质水平对大口黑鲈亲鱼的VSI无显著影响,这与在大规格鳙(Aristichthys nobilis)[22]上所得研究结果一致。

3.2 饲料蛋白质水平对大口黑鲈雌性亲鱼产卵后肝脏和卵巢中抗氧化指标的影响

SOD是生物体内关键的抗氧化酶之一,能够特异性催化超氧阴离子自由基发生歧化反应,生成过氧化氢(H2O2),随后H2O2在GPx或CAT的作用下被还原为水,从而有效清除活性氧(ROS),保护机体免受氧化应激损伤[23-24]。因此,通过测定SOD活性可以客观评估机体的抗氧化能力。本试验结果显示,高蛋白质水平组(45%、50%和55%组)大口黑鲈亲鱼产卵后肝脏和卵巢中SOD活性均显著高于低蛋白质水平组(35%和40%组),这与Liu等[25]在虹鳟(Oncorhynchus mykiss)上的研究结果一致。上述结果表明,饲料中45%的蛋白质水平能够显著提高大口黑鲈亲鱼产卵后的SOD活性,进而增强机体的抗氧化能力。

3.3 饲料蛋白质水平对大口黑鲈亲鱼产卵后肝脏和卵巢中免疫指标的影响

LZM作为体液中的重要免疫因子,是鱼类非特异性免疫系统的关键组成部分[26]。LZM的活性常被用作评估鱼类代谢状态、营养状况及免疫功能的重要指标[27]。Zhang等[28]研究发现,摄食高蛋白质饲料的黄颡鱼(Pelteobagrus fulvidraco)体内LZM活性显著提高,表明充足的蛋白质摄入可为免疫相关酶的合成提供必需的氨基酸,从而维持机体健康。IgM含量亦是鱼类免疫学研究中衡量机体健康状况的可靠指标之一[29]。本试验结果显示,在45%组卵巢中LZM活性以及肝脏和卵巢中IgM含量最高,且显著高于其他各组。上述结果表明,饲料中45%的蛋白质水平能够有效提高大口黑鲈亲鱼产卵后的免疫酶活性和免疫球蛋白含量,进而增强机体的免疫功能。

3.4 饲料蛋白质水平对大口黑鲈雌性亲鱼产卵后肝脏和卵巢中抗氧化相关基因表达的影响

在正常生理条件下,动物细胞内会持续产生一定水平的ROS;当ROS过量积累时,其细胞毒性作用会对机体组织造成氧化应激损伤,进而危害健康[30]。SOD(包括Cu/Zn-SOD和Mn-SOD等)、CAT及GPx是评估机体抗氧化能力的重要指标,对维持动物健康具有关键作用[31]。本试验结果显示,55%组肝脏中SOD1、Cu/Zn-SODMn-SOD的mRNA相对表达量均显著高于35%组;同时,45%和55%组肝脏和卵巢中Mn-SOD的mRNA相对表达量均显著高于35%组。尽管饲料蛋白质水平的变化对大口黑鲈亲鱼产卵后肝脏和卵巢中CATSOD3及GPx的mRNA相对表达量未产生显著影响,但从数值上看,45%和55%组相对较高,这与在草鱼(Ctenopharyngodon idella)[32]及锦鲤(Cyprinus carpio)[33]幼鱼上所得研究结果类似。卵巢作为雌性亲鱼关键的繁殖器官,其抗氧化状态对繁殖性能至关重要。本试验中,当饲料蛋白质水平为45%时,大口黑鲈亲鱼产卵后卵巢中SOD1、Cu/Zn-SODMn-SOD的mRNA相对表达量均显著高于35%组。综上所述,饲料中45%的蛋白质水平能够有效上调大口黑鲈亲鱼产卵后抗氧化酶基因的表达,增强机体抗氧化能力,从而减轻氧化应激对肝脏和卵巢的损伤,改善亲鱼的整体健康状况。
本试验结果显示,在肝脏组织中,35%组抗氧化相关基因的整体表达量最低,表明该组鱼体的抗氧化能力最差。推测其原因在于,35%组饲料中淀粉含量相对较高,鱼体在代谢过量碳水化合物时,会导致糖原和脂肪过度合成并在肝脏中蓄积,进而诱发肝脏脂质过氧化,引发机体的氧化应激反应。雌性亲鱼不仅需要维持自身正常的生长与代谢,还需为繁殖过程储备充足的物质与能量[34]。在本研究中,尽管卵巢中CATSOD3、GSTGPx的mRNA相对表达量在各组间未呈现显著差异,但SOD3和GPx的mRNA相对表达量随饲料蛋白质水平的升高均表现出一定的上升趋势。推测其原因可能是,亲鱼在产卵后机体能量代谢水平整体下降,ROS的产生相应减少,从而使得饲料蛋白质水平对卵巢抗氧化相关基因表达的调控作用未达到显著水平。

3.5 饲料蛋白质水平对大口黑鲈雌性亲鱼产卵后肝脏和卵巢中免疫相关基因表达的影响

已有研究表明,Toll样受体(TLRs)能够识别微生物病原体,从而激活机体的免疫系统[35]。其中,TLR1和TLR2定位于细胞表面,主要识别细菌、真菌和原生动物来源的病原相关分子模式;而TLR3和TLR9则在细胞内表达,识别病毒或细菌的核酸成分[36]。上述受体可通过不同信号途径调控髓系分化因子88(MyD88)的表达与活化,进而激活核转录因子-κB(NF-κB),诱导巨噬细胞等免疫细胞产生炎症细胞因子[37]。在本研究中,当饲料蛋白质水平为45%时,大口黑鲈肝脏中TLR3以及卵巢中TLR1的mRNA相对表达量均显著上调。白细胞介素(IL)和肿瘤坏死因子(TNF)是两类关键的炎症相关细胞因子[38]。其中,IL-1β可由单核细胞、巨噬细胞及淋巴细胞等多种免疫细胞分泌,是启动炎症反应的重要介质;TNF-α作为一种强效促炎因子,能够协同IL-1β调节下游细胞因子的表达,放大炎症信号;IL-8则主要介导中性粒细胞的趋化作用,促进其黏附于内皮细胞并向炎症部位迁移[39]。本试验结果显示,在35%组中,肝脏中IL-1βTNF-α的mRNA相对表达量显著上调,提示该组鱼体可能处于炎症激活状态;而在45%组中,IL-1βTNF-αIL-8的mRNA相对表达量均明显降低。这一趋势与Ma等[40]在皱纹盘鲍(Haliotis discus hannai)上的研究结果相似,该研究显示,与17.64%和43.27%的饲料蛋白质水平相比,适宜的蛋白质水平(30.49%)显著下调了肝胰腺中TNF-α的表达,从而增强了机体的免疫功能。综上所述,适宜的饲料蛋白质水平(45%)能够显著下调大口黑鲈亲鱼产卵后炎症相关基因的表达,提高其抗炎能力,降低机体在繁殖后发生炎症反应的风险。
本试验结果还显示,当饲料蛋白质水平为45%时,大口黑鲈亲鱼产卵后卵巢中LZM的mRNA相对表达量显著上调。这一结果与海参(Apostichopus japonicus)[41]和彭泽鲫(Carassius auratus var. Pengze)[42]上的研究结论一致:适宜的饲料蛋白质水平可有效提高LZM活性,增强机体的非特异性免疫能力;然而,当饲料蛋白质水平超过适宜范围时,LZM活性反而受到抑制,进而削弱机体的免疫防御功能。综上所述,本试验条件下,45%的饲料蛋白质水平能够上调大口黑鲈亲鱼产卵后卵巢中LZM的表达,对机体的免疫功能发挥积极作用。
热休克蛋白(HSPs)是一类在应激条件及代谢损伤下被诱导表达的关键分子,在维持细胞稳态中发挥核心作用[43]。研究表明,在高温胁迫下,饲料蛋白质水平为32%时,团头鲂(Megalobrama amblycephala Yih)体内HSP70的表达量显著提高,表明适宜的饲料蛋白质水平有助于增强鱼体对环境应激的抵抗力[44]。本试验结果显示,在卵巢中,HSP70的mRNA相对表达量随饲料蛋白质水平的升高呈现先上升后下降的趋势,且在45%组达到峰值,显著高于35%、40%和55%组。类似的结果在海胆(Strongylocentrotus intermedius)研究中亦有报道:在热应激条件下,摄食较高蛋白质水平(30%)饲料的海胆肠道中HSP70的表达量显著增加[45]。在肝脏中,HSP70的表达趋势与卵巢中有所不同吗,表现为55%组显著高于45%组,这一结果与在多鳞鱚(Sillago sihama)[46]幼鱼上的研究结果一致。推测其原因在于,过高的饲料蛋白质水平可能增加了肝脏的代谢负担,从而诱导HSP70在肝脏中高表达,以应对代谢压力带来的细胞应激。
与哺乳动物相比,鱼类的特异性免疫系统相对较弱,其体内免疫球蛋白主要以IgM形式存在[47]。IgM是机体免疫应答中最早产生的抗体,在免疫调节和黏膜防御中发挥关键作用。本研究结果显示,当饲料蛋白质水平为45%时,大口黑鲈肝脏和卵巢中IgM的mRNA相对表达量均较其他组显著提高。这一结果与在金鱼(Carassius auratus)[48]、鳙鱼(Aristichthys nobilis)[49]及虹鳟(Oncorhynchus mykiss)[50]上所得研究结果一致:适宜或较高的蛋白质水平能够上调IgM基因的表达并增强其活性,从而提升鱼体的特异性免疫能力;反之,饲料蛋白质水平过低则可能导致机体健康状况下降,增加病原感染的易感性。
转化生长因子-β(TGF-β)是一类重要的免疫调节因子,在T细胞和B细胞的增殖分化以及巨噬细胞等免疫细胞的激活过程中发挥关键调控作用。本研究结果显示,随着饲料蛋白质水平的升高,肝脏中TGF-β3的mRNA相对表达量呈上升趋势。在草鱼的相关研究中显示,适宜的饲料蛋白质水平能够上调抗炎细胞因子TGF-β的表达,减轻肠道炎症反应,增强肠道免疫功能和屏障完整性[51]。这与本研究结果相呼应,表明45%的饲料蛋白质水平有助于提高大口黑鲈亲鱼产卵后的特异性免疫能力。

4 结论

综上所述,适宜的饲料蛋白质水平(45%)能够提升产卵后大口黑鲈雌性亲鱼的抗氧化能力和免疫功能,从而有效改善亲鱼产卵后的健康状况,提高其再利用率。
MW751832.1
[1]
WOOTTON R J. Energetics of reproduction[M]// TYTLER P,CALOW P.Fish energetics. Dordrecht: Springer Netherlands, 1985:231-254.

[2]
LI Y, QIN J G, ABBOTT C A, et al. Synergistic impacts of heat shock and spawning on the physiology and immune health of Crassostrea gigas:an explanation for summer mortality in pacific oysters[J]. American Journal of Physiology:Regulatory,Integrative and Comparative Physiology, 2007, 293(6):R2353-R2362.

[3]
BIRNIE-GAUVIN K, BERTHELSEN C, LARSEN T, et al. The physiological costs of reproduction in a capital breeding fish[J]. Physiological and Biochemical Zoology, 2023, 96(1):40-52.

DOI

[4]
WILSON R P. Protein and amino acid requirements of fishes[J]. Annual Review of Nutrition, 1986, 6:225-244.

PMID

[5]
高文. 水产动物亲体蛋白营养与繁殖性能研究进展[J]. 北京水产, 2008(5):39-41,45.

GAO W. Research progress on the nutritional and reproductive performance of parental proteins in aquatic animals[J]. Journal of Beijing Fisheries, 2008(5):39-41,45. (in Chinese)

[6]
马杰, 张士璀. 卵黄蛋白的结构和功能[J]. 鲁东大学学报(自然科学版), 2012, 28(3):252-260,275.

MA J, ZHANG S C. Structure and functions of yolk proteins[J]. Ludong University Journal (Natural Science Edition), 2012, 28(3):252-260,275. (in Chinese)

[7]
GUO Z Q, ZHU X M, LIU J S, et al. Effects of dietary protein level on growth performance,nitrogen and energy budget of juvenile hybrid sturgeon,Acipenser baerii ♀×A. gueldenstaedtii ♂[J]. Aquaculture, 2012,338-341:89-95.

[8]
WANG S H, TIAN J W, JIANG X N, et al. Effects of different dietary protein levels on the growth performance,physicochemical indexes,quality,and molecular expression of yellow river carp (Cyprinus carpio haematopterus)[J]. Animals, 2023, 13(7):1237.

DOI

[9]
XU T T, LIU X W, HUANG W Q, et al. Effects of dietary carbohydrate levels on growth,metabolic enzyme activities and oxidative status of hybrid snakehead (Channa maculata ♀×Channa argus ♂)[J]. Aquaculture, 2023, 563(Pt 2):738960.

DOI

[10]
WANG C A, LIU E T, ZHANG H, et al. Dietary protein optimization for growth and immune enhancement in juvenile hybrid sturgeon (Acipenser baerii×A. schrenckii):balancing growth performance,serum biochemistry,and expression of immune-related genes[J]. Biology, 2024, 13(5):324.

DOI

[11]
LU X, PENG D, CHEN X R, et al. Effects of dietary protein levels on growth,muscle composition,digestive enzymes activities,hemolymph biochemical indices and ovary development of pre-adult red swamp crayfish (Procambarus clarkii)[J]. Aquaculture Reports, 2020, 18:100542.

DOI

[12]
GUNASEKERA R M, SHIM K F, LAM T J. Effect of dietary protein level on puberty,oocyte growth and egg chemical composition in the tilapia,Oreochromis niloticus (L.)[J]. Aquaculture, 1995, 134(1/2):169-183.

DOI

[13]
MASRIZAL, ZEIN M,BULANIN U.Effect of energy,lipid and protein content in broodstock diets on spawning fecundity and eggs quality of giant gourami (Ospheronemus gouramy Lac)[J]. Pakistan Journal of Nutrition, 2015, 14(7):412-416.

DOI

[14]
IQBAL M F, LIEW H J, RAHMAH S. Dietary protein level influenced reproductive development of hoven’s carp Leptobarbus hoevenii female broodstock[J]. Animal Feed Science and Technology, 2021, 281:115112.

DOI

[15]
YUSUF A, HUANG X X, CHEN N S, et al. Impact of dietary vitamin C on plasma metabolites,antioxidant capacity and innate immunocompetence in juvenile largemouth bass,Micropterus salmoides[J]. Aquaculture Reports, 2020, 17:100383.

DOI

[16]
许晖. 淡水养殖新品种——加州鲈鱼[J]. 水产科技情报, 1986(4):18-19.

XU H. A new variety of freshwater aquaculture-California bass[J]. Fisheries Science & Technology Information, 1986(4):18-19. (in Chinese)

[17]
崔庆奎, 沈志刚, 田宇, 等. 大口黑鲈的卵巢发育周年变化及反季节繁殖研究[J]. 水生生物学报, 2021, 45(1):76-88.

CUI Q K, SHEN Z G, TIAN Y, et al. Study on the annual development of ovary and out-of-season spawning in largemouth bass Micropterus salmoides[J]. Acta Hydrobiologica Sinica, 2021, 45(1):76-88. (in Chinese)

[18]
高敏敏, 吴代武, 周露阳, 等. 饲料鱼溶浆影响黄颡鱼的胆汁酸代谢及脂肪沉积[J]. 水生生物学报, 2019, 43(4):731-738.

GAO M M, WU D W, ZHOU L Y, et al. Effects of stickwater on bile acid and lipid metabolism of yellow catfish (Pelteobagrus fulvidraco)[J]. Acta Hydrobiologica Sinica, 2019, 43(4):731-738. (in Chinese)

[19]
陈建明, 黄爱霞, 田儒品, 等. 饲料蛋白质水平对太湖鲂鲌幼鱼生长性能、体组成和消化酶活性的影响[J]. 动物营养学报, 2019, 31(10):4843-4851.

DOI

CHEN J M, HUANG A X, TIAN R P, et al. Effects of dietary protein level on growth performance,body composition and digestive enzyme activities of juvenile hybrid of Culter alburnus (♀)×Megalobrama terminalis (♂)[J]. Chinese Journal of Animal Nutrition, 2019, 31(10):4843-4851. (in Chinese)

[20]
LI W J, WEN X B, ZHAO J, et al. Effects of dietary protein levels on growth,feed utilization,body composition and ammonia-nitrogen excretion in juvenile Nibea diacanthus[J]. Fisheries Science, 2016, 82(1):137-146.

DOI

[21]
YANG S D, LIN T S, LIOU C H, et al. Influence of dietary protein levels on growth performance,carcass composition and liver lipid classes of juvenile Spinibarbus hollandi (Oshima)[J]. Aquaculture Research, 2003, 34(8):661-666.

DOI

[22]
余含, 戈贤平, 孙盛明, 等. 膨化饲料中蛋白水平对大规格鳙生长、消化酶活性和抗氧化能力的影响[J]. 南京农业大学学报, 2019, 42(6):1158-1166.

YU H, GE X P, SUN S M, et al. The effect of dietary protein level on the growth,digestive enzymes activities and antioxidant ability of the bighead carp (Aristichthys nobilis)[J]. Journal of Nanjing Agricultural University, 2019, 42(6):1158-1166. (in Chinese)

[23]
WANG H F, ZHONG X H, SHI W Y, et al. Study of malondialdehyde (MDA) content,superoxide dismutase (SOD) and glutathione peroxidase (GSH-Px) activities in chickens infected with avian infectious bronchitis virus[J]. African Journal of Biotechnology, 2011, 10(45):9213-9217.

DOI

[24]
DING L Y, CHEN J C, HE F L, et al. Effects of dietary arginine supplementation on growth performance,antioxidant capacity,intestinal digestive enzyme activity,muscle transcriptome,and gut health of Siniperca chuatsi[J]. Frontiers in Marine Science, 2024, 10:1305192.

DOI

[25]
LIU G X, WANG L, YU H X, et al. Effects of dietary protein levels on growth performance,digestibility,anti-oxidative responses and expressions of growth-related genes in triploid rainbow trout Oncorhynchus mykiss farmed in seawater[J]. Aquaculture Nutrition, 2021, 27(4):998-1008.

DOI

[26]
WEI J F, LIU B S, FAN S G, et al. Serum immune response of pearl oyster Pinctada fucata to xenografts and allografts[J]. Fish & Shellfish Immunology, 2017, 62:303-310.

[27]
YU Z, HUANG Z Q, DU H L, et al. Influence of differential protein levels of feed on growth,copper-induced immune response and oxidative stress of Rhynchocypris lagowski in a biofloc-based system[J]. Aquaculture Nutrition, 2020, 26(6):2211-2224.

DOI

[28]
ZHANG J, ZHAO N N, SHARAWY Z, et al. Effects of dietary lipid and protein levels on growth and physiological metabolism of Pelteobagrus fulvidraco larvae under recirculating aquaculture system (RAS)[J]. Aquaculture, 2018, 495:458-464.

DOI

[29]
MAGNADOTTIR B, LANGE S, GUDMUNDSDOTTIR S, et al. Ontogeny of humoral immune parameters in fish[J]. Fish & Shellfish Immunology, 2005, 19(5):429-439.

[30]
JIANG W D, LIU Y, HU K, et al. Copper exposure induces oxidative injury,disturbs the antioxidant system and changes the Nrf2/ARE (CuZnSOD) signaling in the fish brain:protective effects of myo-inositol[J]. Aquatic Toxicology, 2014, 155:301-313.

DOI

[31]
TRENZADO C, HIDALGO M C, GARCÍA-GALLEGO M, et al. Antioxidant enzymes and lipid peroxidation in sturgeon Acipenser naccarii and trout Oncorhynchus mykiss. A comparative study[J]. Aquaculture, 2006, 254(1/2/3/4):758-767.

DOI

[32]
XU J, FENG L, JIANG W D, et al. Different dietary protein levels affect flesh quality,fatty acids and alter gene expression of Nrf2-mediated antioxidant enzymes in the muscle of grass carp (Ctenopharyngodon idella)[J]. Aquaculture, 2018, 493:272-282.

DOI

[33]
王哲淅, 刘志恒, 陈成勋, 等. 不同蛋白水平饲料对锦鲤生长性能、肠道消化酶活性及抗氧化功能的影响[J]. 饲料研究, 2023, 46(13):56-59.

WANG Z X, LIU Z H, CHEN C X, et al. Effect of different protein levels diets on growth performance,intestinal digestive enzymes activity and antioxidant capacity of Cyprynus carpio[J]. Feed Research, 2023, 46(13):56-59.

[34]
CHEN Z, FEI S Z, DUAN Y H, et al. Effects of dietary protein level on the growth,reproductive performance,and larval quality of female yellow catfish (Pelteobagrus fulvidraco) broodstock[J]. Aquaculture Reports, 2022, 24:101102.

DOI

[35]
KUMAR H, KAWAI T, AKIRA S. Pathogen recognition by the innate immune system[J]. International Reviews of Immunology, 2011, 30(1):16-34.

DOI PMID

[36]
REBL A, GOLDAMMER T, SEYFERT H M. Toll-like receptor signaling in bony fish[J]. Veterinary Immunology and Immunopathology, 2010, 134(3/4):139-150.

DOI

[37]
ZHU L Y, NIE L, ZHU G, et al. Advances in research of fish immune-relevant genes:a comparative overview of innate and adaptive immunity in teleosts[J]. Developmental & Comparative Immunology, 2013, 39(1/2):39-62.

[38]
LI R Y, LUO X, LI L B, et al. The protective effects of melatonin against oxidative stress and inflammation induced by acute cadmium exposure in mice testis[J]. Biological Trace Element Research, 2016, 170(1):152-164.

DOI PMID

[39]
EL-LEITHY A A A, HEMEDA S A, EL NABY W S H A, et al. Optimum salinity for Nile tilapia (Oreochromis niloticus) growth and mRNA transcripts of ion-regulation,inflammatory,stress- and immune-related genes[J]. Fish Physiology and Biochemistry, 2019, 45(4):1217-1232.

DOI

[40]
MA S L, GUO Y L, SUN L, et al. Over high or low dietary protein levels depressed the growth,TOR signaling,apoptosis,immune and anti-stress of abalone Haliotis discus hannai[J]. Fish & Shellfish Immunology, 2020, 106:241-251.

[41]
LIAO M, REN T, HE L, et al. Optimum dietary protein level for growth and coelomic fluid non-specific immune enzymes of sea cucumber Apostichopus japonicus juvenile[J]. Aquaculture Nutrition, 2014, 20(4):443-450.

DOI

[42]
DING L Y, CHEN W J, FU H Y, et al. Estimation of the optimum dietary protein to lipid ratio in juvenile Pengze crucian carp (Carassius auratus var. Pengze)[J]. Aquaculture Nutrition, 2022, 2022(1):2485134.

[43]
YAMASHITA M, YABU T, OJIMA N. Stress protein HSP70 in fish[J]. Aqua-BioScience Monographs, 2010, 3(4):111-141.

DOI

[44]
HABTE-TSION H M, REN M C, GE X P, et al. Adequate dietary protein level enhances stress resistance and immune status of blunt snout bream (Megalobrama amblycephala Yih,1955)[J]. Journal of Applied Ichthyology, 2017, 33(1):75-83.

DOI

[45]
ZUO R T, HOU S Q, WU F X, et al. Higher dietary protein increases growth performance,anti-oxidative enzymes activity and transcription of heat shock protein 70 in the juvenile sea urchin (Strongylocentrotus intermedius) under a heat stress[J]. Aquaculture and Fisheries, 2017, 2(1):18-23.

DOI

[46]
LIU H, DONG X H, TAN B P, et al. Effects of two dietary protein levels on growth,body composition,intestinal microflora and expression of TOR,IGF-Ⅰ,LPL and HSP70 of juvenile silver sillago,Sillago sihama[J]. Aquaculture Nutrition, 2021, 27(6):2218-2230.

DOI

[47]
LEE C S, LIM C, GATLIN D M. Dietary nutrients,additives and fish health[M]. Hoboken: Wiley Blackwell, 2015.

[48]
AHM KHALIL A, EL-HUSSEINY W, F ABDEL FATTAH A, et al. Effect of feeding with different dietary protein levels and starvation on the health,nonspecific immune parameters,behavior and histoarchitectures of fantail goldfish (Carassius auratus L.)[J]. Veterinary Science & Technology, 2016, 7(1):1-12.

[49]
SUN S M, WU Y, YU H, et al. Serum biochemistry,liver histology and transcriptome profiling of bighead carp Aristichthys nobilis following different dietary protein levels[J]. Fish & Shellfish Immunology, 2019, 86:832-839.

[50]
KIRON V, WATANABE T, FUKUDA H, et al. Protein nutrition and defence mechanisms in rainbow trout Oncorhynchus mykiss[J]. Comparative Biochemistry and Physiology Part A:Physiology, 1995, 111(3):351-359.

DOI

[51]
XU J, WU P, JIANG W D, et al. Optimal dietary protein level improved growth,disease resistance,intestinal immune and physical barrier function of young grass carp (Ctenopharyngodon idella)[J]. Fish & Shellfish Immunology, 2016, 55:64-87.

文章导航

/