研究论文

饲料蛋白质水平对瓦氏黄颡鱼雌性亲本生长性能、繁殖性能及仔鱼质量的影响

  • 刘奇行 , 1 ,
  • 彭迪 2 ,
  • 董立学 2 ,
  • 程珂 2 ,
  • 刘明典 2 ,
  • 王爱琴 3 ,
  • 易提林 , 2, * ,
  • 蒋明 , 2, *
展开
  • 1 长江大学动物科学技术学院, 荆州 434023
  • 2 中国水产科学研究院长江水产研究所, 武汉 430223
  • 3 武昌首义学院城市建设学院, 武汉 430064
*易提林,副教授,硕士生导师,E-mail: ;
蒋 明,研究员,硕士生导师,E-mail:

刘奇行(1998—),男,河南漯河人,硕士研究生,从事水产动物营养与饲料研究。E-mail:

Office editor: 靳爽

收稿日期: 2025-10-20

  网络出版日期: 2026-05-14

基金资助

国家重点研发计划项目(2022YFD2400902)

Effects of Dietary Protein Levels on Growth Performance, Reproductive Performance and Larval Quality of Female Pelteobagrus vachelli Broodstock

  • LIU Qihang , 1 ,
  • PENG Di 2 ,
  • DONG Lixue 2 ,
  • CHENG Ke 2 ,
  • LIU Mingdian 2 ,
  • WANG Aiqin 3 ,
  • YI Tilin , 2, * ,
  • JIANG Ming , 2, *
Expand
  • 1 College of Animal Science and Technology, Yangtze University, Jingzhou 434023, China
  • 2 Yangtze River Fisheries Research Institute, Chinese Academy of Fishery Sciences, Wuhan 430223, China
  • 3 School of Urban Construction, Wuchang Shouyi University, Wuhan 430064, China
*YI Tilin, associate professor, E-mail: ;
JIANG Ming, professor, E-mail:

Received date: 2025-10-20

  Online published: 2026-05-14

摘要

本试验旨在探究饲料蛋白质水平对瓦氏黄颡鱼雌性亲本生长性能、繁殖性能及仔鱼质量的影响。选取300尾初始体重为(167.63±5.98) g的瓦氏黄颡鱼雌性亲本,随机分为5组,每组3个重复,每个重复20尾鱼。5组分别投喂蛋白质水平为34.27%(P1组)、40.85%(P2组)、47.45%(P3组)、54.14%(P4组)和60.63%(P5组)的等脂试验饲料,进行为期77 d的养殖试验。结果表明:1)P3、P4及P5组终末体重、增重率和特定生长率均显著高于P1和P2组(P<0.05),且以P3组最高。2)P3组绝对繁殖力和相对繁殖力显著高于P1组(P<0.05);二次回归分析结果显示,饲料蛋白质水平为50.79%时,亲本相对繁殖力最高;P3和P4组卵巢卵黄蛋白原含量显著高于P1组(P<0.05)。3)P3组血清谷丙转氨酶活性及甘油三酯含量显著低于P1组(P<0.05);P4组肝脏超氧化物歧化酶活性显著高于其余各组(P<0.05);P5组肝脏丙二醛含量显著高于其余各组(P<0.05)。4)P3、P4及P5组仔鱼终末体重、增重率和存活率均显著高于P1组(P<0.05)。由此可见,饲料蛋白质水平为47.45%~54.14%时,可改善瓦氏黄颡鱼雌性亲本的生长性能、繁殖性能及机体健康,并能提升仔鱼质量;而蛋白质水平过高(60.63%)可能诱发氧化应激,对亲本健康产生不利影响。综合二次回归分析结果,建议瓦氏黄颡鱼雌性亲本饲料蛋白质水平为47.45%~50.79%。

本文引用格式

刘奇行 , 彭迪 , 董立学 , 程珂 , 刘明典 , 王爱琴 , 易提林 , 蒋明 . 饲料蛋白质水平对瓦氏黄颡鱼雌性亲本生长性能、繁殖性能及仔鱼质量的影响[J]. 动物营养学报, 2026 , 38(5) : 3580 -3591 . DOI: 10.12418/CJAN2026.286

Abstract

This experiment was conducted to investigate the effects of dietary protein levels on growth performance, reproductive performance and larval quality of female Pelteobagrus vachelli broodstock. A total of 300 female Pelteobagrus vachelli broodstock with an initial body weight of (167.63±5.98) g were randomly divided into 5 groups with 3 replicates per group and 20 fish per replicate. Fish in the 5 groups were fed isolipidic experimental diets with dietary protein levels of 34.27% (P1 group), 40.85% (P2 group), 47.45% (P3 group), 54.14% (P4 group) and 60.63% (P5 group), respectively, for a 77-day culture trial. The results showed as follows: The final body weight, weight gain rate and specific growth rate of P3, P4 and P5 groups were significantly higher than those of P1 and P2 groups (P<0.05), with P3 group being the highest. 2) The absolute fecundity and relative fecundity of P3 group were significantly higher than those of P1 group (P<0.05). Quadratic regression analysis showed that the relative fecundity of broodstock reached the maximum when the dietary protein level was 50.79%. The ovarian vitellogenin content of P3 and P4 groups was significantly higher than that of P1 group (P<0.05). 3) The serum alanine aminotransferase activity and triglyceride content of P3 group were significantly lower than those of P1 group (P<0.05). The hepatic superoxide dismutase activity of P4 group was significantly higher than that of the other groups (P<0.05). The hepatic malondialdehyde content of P5 group was significantly higher than that of the other groups (P<0.05). 4) The final body weight, weight gain rate and survival rate of larvae in P3, P4 and P5 groups were significantly higher than those in P1 group (P<0.05). It can be concluded that the dietary protein level of 47.45%~54.14% can improve the growth performance, reproductive performance and body health of female Pelteobagrus vachelli broodstock, and enhance the larval quality; while an excessively high protein level (60.63%) may induce oxidative stress and have adverse effects on the health of broodstock. Based on the comprehensive results of quadratic regression analysis, it is recommended that the dietary protein level for female Pelteobagrus vachelli broodstock is 47.45%~50.79%.

硬骨鱼类胚胎发育及早期仔鱼阶段的生存与生长高度依赖于卵内储存的营养物质。亲鱼的营养状况直接决定了卵子中营养物质的积累量与组成,从而在胚胎发育和仔鱼孵化后的营养供应中发挥关键作用,并最终影响子代质量[1-2]。蛋白质是鱼类生命活动不可或缺的物质基础,不仅是肌肉、鳞片和器官的主要结构成分,还作为酶、激素(如生长激素和性激素)、卵黄蛋白和抗体的合成前体,参与机体的新陈代谢、免疫防御及繁殖调控[3-4]。卵黄蛋白原(Vtg)作为卵黄蛋白的前体,是卵黄蛋白组分的主要来源,其合成、转运与沉积过程直接受到亲鱼饲料中蛋白质水平与氨基酸组成的影响[5]。亲鱼饲料蛋白质水平不足或氨基酸组成失衡,不仅会限制亲鱼自身的生长和性腺发育,还会导致卵黄中蛋白质和必需氨基酸的储备不足,直接影响胚胎发育的能量供给、组织器官分化以及孵化后仔鱼的活力、畸形率、抗逆性和开口摄食成功率[6]。此外,亲鱼的生理状态,如Vtg合成能力、激素含量、抗氧化能力、消化吸收效率及免疫状态,也与其摄入的蛋白质营养密切相关[7]
瓦氏黄颡鱼(Pelteobagrus vachelli)隶属于鲇形目(Siluriformes)鲿科(Bagridae)黄颡鱼属(Pelteobagrus),是长江中下游流域特有的重要经济鱼类。因其肉质细嫩、无肌间刺、富含不饱和脂肪酸而深受消费者喜爱,是具有良好养殖前景的品种,在长江流域渔业经济中占有重要地位[8]。长期以来,其野生资源主要依赖长江天然捕捞。自2020年长江流域实施全面禁捕政策后,商业捕捞活动停止,导致市场供应出现较大缺口。为弥补这一空缺,推动瓦氏黄颡鱼的人工养殖发展成为必然趋势。目前,关于瓦氏黄颡鱼的研究多集中于仔鱼营养[9-10]、养殖技术[11]、繁殖生物学[8]和免疫机制[12]等方面,而有关营养素对亲鱼生长和繁殖性能影响的研究仍较为缺乏。因此,本研究系统探讨饲料蛋白质水平对瓦氏黄颡鱼雌性亲本生长性能、繁殖性能、血清生化指标、肝脏抗氧化指标及仔鱼质量的影响,以确定其适宜蛋白质需要量,旨在为瓦氏黄颡鱼亲本培育提供科学的饲料配方依据,提升亲本繁殖效率与仔鱼质量,促进瓦氏黄颡鱼人工养殖的健康可持续发展。

1 材料与方法

1.1 试验饲料

以鱼粉、大豆浓缩蛋白、豆粕、谷朊粉、鸡肉粉和虾粉为蛋白质源,鱼油和大豆油为脂肪源,配制5种不同蛋白质水平(33%、40%、47%、54%和60%)的等脂试验饲料,蛋白质水平实测值分别为34.27%、40.85%、47.45%、54.14%和60.63%,依次记为P1、P2、P3、P4和P5。试验饲料组成及营养水平见表1。所有原料粉碎后过60目筛,逐级混匀后,与适量的水和油脂充分混合。随后使用双螺杆饲料机(F26型,广州华工光机电科技有限公司)制成粒径为3.0 mm的颗粒饲料,将颗粒饲料放入60 ℃烘箱(1215型,常州苏正干燥设备有限公司)中干燥90 min后,于-20 ℃条件下保存备用。参照AOAC(2023)[13]的方法测定饲料养分含量,其中粗蛋白质含量采用全自动凯氏定氮仪(Kjeltec-2300,FOSS,瑞典)测定,粗脂肪含量采用索氏抽提法测定,粗灰分含量采用马弗炉灼烧法测定,总能采用氧弹量热仪(SDACM-4000,湖南三德科技股份有限公司)测定。
表1 试验饲料组成及营养水平(风干基础)

Table 1 Composition and nutrient levels of experimental diets (air-dry basis)%

项目
Items
饲料 Diets
P1 P2 P3 P4 P5
原料 Ingredients
鱼粉 Fish meal 20.00 24.00 28.00 32.00 36.00
大豆浓缩蛋白 Soy protein concentrate 8.00 9.60 11.20 12.80 14.40
豆粕 Soybean meal 6.00 7.20 8.40 9.60 10.80
谷朊粉 Wheat gluten 4.00 4.80 5.60 6.40 7.20
鸡肉粉 Chicken powder 10.00 12.00 14.00 16.00 18.00
虾粉 Shrimp powder 2.00 2.00 2.00 2.00 2.00
鱼油 Fish oil 4.00 3.70 3.30 2.80 2.20
大豆油 Soybean oil 3.00 3.00 3.00 3.00 3.00
大豆卵磷脂 Soy lecithin 1.00 1.00 1.00 1.00 1.00
玉米淀粉 Corn starch 38.00 28.70 19.50 10.40 1.40
维生素预混料 Vitamin premix1) 1.00 1.00 1.00 1.00 1.00
矿物质预混料 Mineral premix2) 1.00 1.00 1.00 1.00 1.00
氯化胆碱 Choline chloride 0.10 0.10 0.10 0.10 0.10
磷酸二氢钙 Ca(H2PO4)2 1.00 1.00 1.00 1.00 1.00
膨润土 Bentonite 0.90 0.90 0.90 0.90 0.90
合计 Total 100.00 100.00 100.00 100.00 100.00
营养水平 Nutrient levels3)
粗蛋白质 CP 34.27 40.85 47.45 54.14 60.63
粗脂肪 EE 11.32 12.31 11.85 12.30 11.51
粗灰分 Ash 9.39 10.76 10.96 12.13 13.38
总能 GE/(MJ/kg) 20.68 20.78 21.75 21.46 21.36

1)每千克维生素预混料含有 Each kilogram of the vitamin premix contained the following:VA 0.8 g,VD3 0.08 g,VE 20 g,VK3 18.6 g,VB1 10 g,VB2 12.5 g,VB6 8 g,VC 400 mg, VB5 20 g,叶酸 folic acid 3.2 g,生物素 biotin 3 g,肌醇 inositol 40.6 g,烟酸 nicotinic acid 12 g。

2)每千克矿物质预混料含有 Each kilogram of the mineral premix contained the following:乳酸钙 calcium lactate 500 g,NaH2PO4 100 g,FeSO4 20 g,MgSO4 100 g,AlCl3 0.6 g,ZnSO4 20 g,MnSO4 4 g,CuSO4 2 g,KCl 40 g,CoCl2 2 g,KIO3 0.6 g,Na2SeO3 0.004 g。

3)营养水平为实测值。Nutrient levels were measured values.

1.2 试验设计与饲养管理

本试验在中国水产科学研究院长江水产研究所实验动物福利伦理委员会批准下进行,批准号为YFI2024JM08。
养殖试验于2024年4—6月在中国水产科学研究院长江水产研究所窑湾试验场室外养殖网箱中进行。试验用瓦氏黄颡鱼亲本来源于荆州鑫创渔业有限公司。在正式试验开始之前,亲本先以P1饲料进行为期7 d的暂养,使其适应试验饲料和试验条件。暂养结束后,挑选300尾健康、规格均一、初始体重为(167.63±5.98) g的瓦氏黄颡鱼雌性亲本,随机分配到15个规格为1 m×1 m×1.2 m的网箱中,每个网箱20尾。将15个网箱随机分为5组,每组3个重复,分别投喂5种试验饲料。挑选80尾雄鱼随机分配到4个网箱中,每个网箱20尾,投喂P3饲料。试验期77 d。试验期间,每天分别于06:00和19:00定量投喂试验饲料,投喂量为鱼体重的1%~3%,每天记录摄食情况以及时调整投喂量,并记录死亡情况。养殖期间,水温为21~29 ℃,水体pH为7.2~8.3,溶解氧浓度>5 mg/L。

1.3 繁殖管理

养殖试验结束后,从每组选取9尾性腺发育良好(泄殖孔呈粉红色、腹部饱满)的雌性亲本以及9尾雄性亲本进行人工繁殖。采用胸鳍腋下注射法进行催产,催产剂为地欧酮(DOM)、促黄体素释放激素类似物2(LRH-A2)和绒毛膜促性腺激素(HCG)的混合溶液。雌鱼注射剂量为:DOM 4 mg/kg、LRH-A2 10 μg/kg、HCG 1 100 IU/kg;雄鱼注射剂量为雌鱼的1/2。注射后,将每组的9尾雌性亲本分配至3个新的圆形养殖桶中(每桶3尾),维持水温24~26 ℃。10~12 h后定期检查雌鱼性腺发育情况,对达到效应时间的亲本,通过人工挤压腹部采集卵粒至盆中。同时,解剖2~3尾雄鱼,取精巢研磨后获得精液,进行干法受精。随即用黄泥水对受精卵进行脱黏处理。随后,将盆中的受精卵分别转移至15个孵化桶中,将孵化水温调节至26 ℃。约72 h后,受精卵陆续孵化。记录每尾雌鱼产卵后的体重;从每尾雌鱼泄殖孔采集卵样,每组收集6份样本,每份置于2 mL EP管中,经液氮速冻后转移至-80 ℃冰箱保存,用于后续分析。

1.4 样品采集

养殖试验结束后,将所有试验鱼禁食24 h。随后,对每尾雌鱼进行称重并记录尾数。从每个重复中随机选取6尾鱼,使用50 mg/L的MS-222进行麻醉。采用1 mL注射器自尾静脉采集血样,于室温下静置4 h后,在4 ℃条件下以960×g离心20 min,收集上层血清并置于-80 ℃冰箱保存,用于后续血清生化指标及激素含量的测定。随后将鱼置于冰盘上迅速解剖,分离内脏团、肝脏、性腺(卵巢)和肠系膜脂肪等组织并称重;从卵巢中随机取约50粒卵,用万分之一天平称重并计算单个卵子均重。肝脏和卵巢组织经液氮速冻后转移至-80 ℃冰箱保存,用于后续分析。

1.5 指标测定

1.5.1 生长性能

生长性能相关指标计算公式如下:

增重率(WGR,%)=100×

(终末体重-初始体重)/初始体重;

特定生长率(SGR,%/d)=100×(ln终末

体重-ln初始体重)/试验天数;

肝体比(HSI,%)=100×肝脏重/体重;

脏体比(VSI,%)=100×内脏团重/体重;

肠系膜脂肪指数(MFI,%)=100×

肠系膜脂肪重/体重。

1.5.2 繁殖性能

参照Orlando等[14]的方法计算以下繁殖性能指标:

性腺指数(GSI,%)=100×性腺重/体重;

绝对繁殖力(AF,粒)=总卵巢重量/单个卵子均重;

相对繁殖力(RF,粒/g)=绝对繁殖力/雌鱼体重;

受精率(FR,%)=100×受精卵数/总卵数。

1.5.3 卵巢组织学分析

每组取6份卵巢组织样品,采用4%多聚甲醛固定24 h后,使用乙醇进行常规梯度脱水,随后依次完成透化、浸蜡及石蜡包埋;将包埋后的组织制成4~6 μm的切片,烘片后进行苏木精-伊红(HE)染色,随后置于生物显微镜(IRX50,宁波舜宇仪器有限公司)下观察并拍照记录,使用其配套图像分析软件测量卵径。

1.5.4 血清、肝脏及卵巢指标

血清总胆固醇(TC)、甘油三酯(TG)、葡萄糖(GLU)、白蛋白(ALB)、总蛋白(TP)含量及谷草转氨酶(AST)、谷丙转氨酶(ALT)、碱性磷酸酶(ALP)活性使用CHEMIX-800全自动生化分析仪(Sysmex公司,日本)测定。肝脏ALP、超氧化物歧化酶(SOD)活性及丙二醛(MDA)、还原型谷胱甘肽(GSH)含量采用南京建成生物工程研究所生产的试剂盒进行测定。血清与卵巢中雌二醇(E2)和Vtg含量采用上海酶联生物科技有限公司生产的酶联免疫吸附试验(ELISA)试剂盒进行测定。

1.5.5 仔鱼生长性能

待仔鱼从受精卵孵化出后,每组设3个重复,每个重复300尾仔鱼,以重复为单位养殖于水体体积为10 L的长方体养殖缸中,养殖周期12 d。每天分别于08:00和17:00各投喂1次皱褶臂尾轮虫(Brachionus plicatilis),投喂密度为5个/mL。观察记录仔鱼死亡情况,计算仔鱼每日存活率。养殖期间每天换水30%,维持水温为24~26 ℃,水体pH为7.1~7.8,溶解氧浓度>5 mg/L,光照采用自然光周期。使用生物显微镜(IRX50,宁波舜宇仪器有限公司)及其配套图像分析软件测量仔鱼全长;采用万分之一电子天平称量仔鱼的初始体重和终末体重,生长性能指标参照1.5.1中的公式计算。

1.6 数据统计分析

使用R studio软件进行统计分析。所有数据在单因素方差分析(one-way ANOVA)前均经过方差齐性检验(Levene’s test),对不满足齐性假设的指标进行对数转换后再进行分析。ANOVA模型为$Y_{i j}=\mu+\alpha_{i}+\epsilon_{i j}$,其中Yij为观测值,μ为总体均值,αi为组效应,$\epsilon_{i j}$为随机误差项且假定服从N(0,σ2)。若方差分析结果显示组间存在显著差异,则采用Duncan氏法进行事后多重比较。结果以平均值±标准差(mean±SD)表示,统计学显著性水平设定为P<0.05。

2 结果与分析

2.1 饲料蛋白质水平对瓦氏黄颡鱼雌性亲本生长性能的影响

表2可知,饲料蛋白质水平显著影响终末体重、WGR和SGR(P<0.05),P3、P4及P5组终末体重、WGR和SGR均显著高于P1和P2组(P<0.05),且以P3组最高。各组间HSI和VSI无显著差异(P>0.05)。MFI随饲料蛋白质水平的升高呈剂量依赖性降低,其中P4和P5组MFI显著低于P1组(P<0.05)。
表2 饲料蛋白质水平对瓦氏黄颡鱼雌性亲本生长性能的影响

Table 2 Effects of dietary protein levels on growth performance of female Pelteobagrus vachelli broodstock

项目
Items
组别 Groups P
P-value
P1 P2 P3 P4 P5
初始体重 IBW/g 169.83±6.51 169.33±7.32 165.00±5.00 167.33±6.37 166.67±8.10 0.898
终末体重 FBW/g 194.22±5.34a 203.11±7.37a 227.89±10.91b 223.22±2.78b 217.56±5.34b 0.001
增重率 WGR/% 14.43±3.75a 19.97±0.86a 38.08±3.42c 33.52±5.09bc 30.64±3.59b <0.001
特定生长率 SGR/(%/d) 0.17±0.04a 0.24±0.01a 0.42±0.03c 0.38±0.05bc 0.35±0.04b <0.001
肝体比 HSI/% 1.45±0.35 1.39±0.20 1.36±0.21 1.35±0.20 1.59±0.36 0.069
脏体比 VSI/% 22.76±5.04 23.96±2.87 25.10±1.49 23.89±3.12 25.76±5.14 0.106
肠系膜脂肪指数 MFI/% 3.13±1.62b 2.69±1.31ab 2.15±0.91ab 1.57±1.12a 1.63±1.49a 0.038

同行数据肩标无字母或相同小写字母表示差异不显著(P>0.05),不同小写字母表示差异显著(P<0.05)。下表同。

In the same row, values with no letter or the same small letter superscripts mean no significant difference (P>0.05), while with different small letter superscripts mean significant difference (P<0.05). The same as below.

2.2 饲料蛋白质水平对瓦氏黄颡鱼雌性亲本繁殖性能的影响

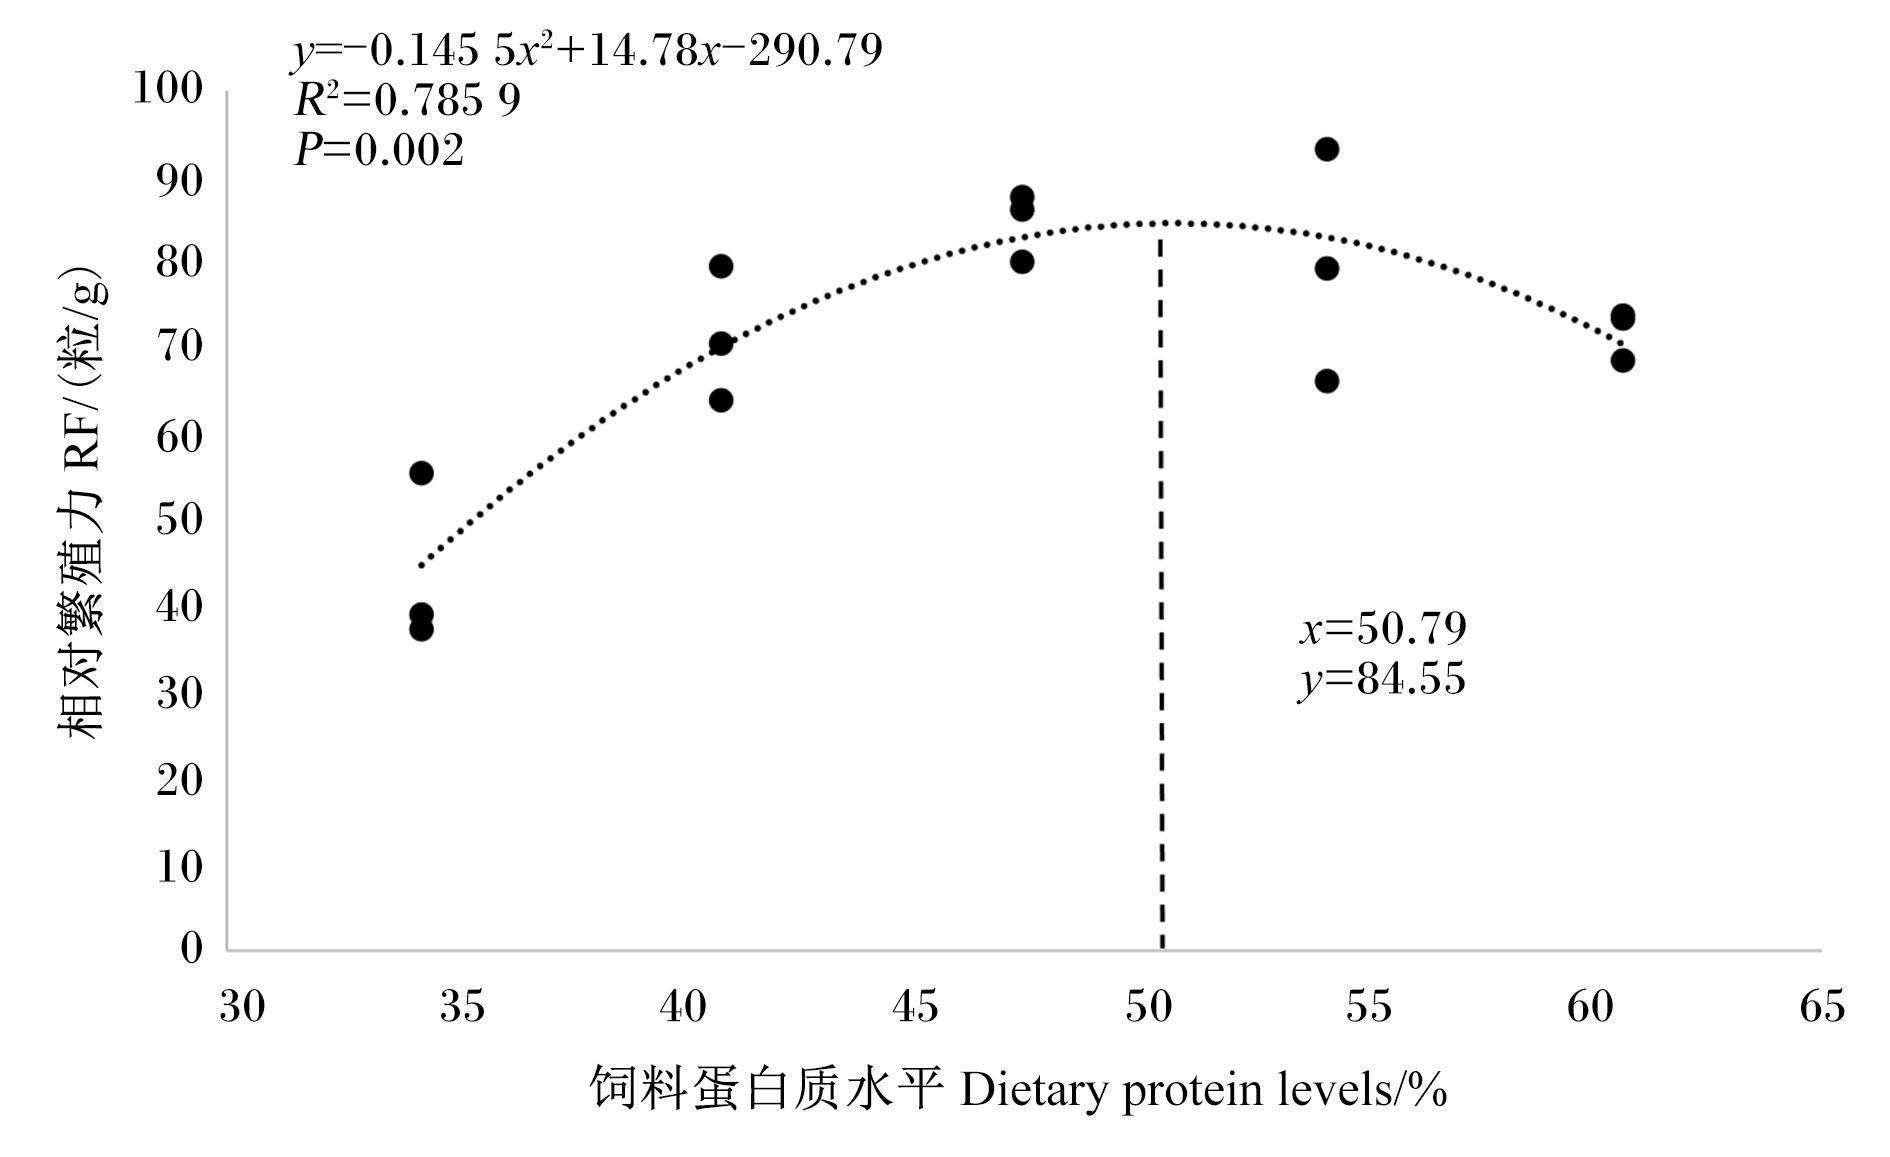
表3可知,各组间卵重、卵径和受精率均无显著差异(P>0.05)。饲料蛋白质水平显著影响GSI、AF和RF(P<0.05),其中,GSI随饲料蛋白质水平的升高而增加,P5组达最大值且显著高于P1组(P<0.05);AF与RF随饲料蛋白质水平的升高呈先升后降趋势,二者均在P3组达最大值,且显著高于P1组(P<0.05)。二次回归分析(图1)显示,饲料蛋白质水平为50.79%时,瓦氏黄颡鱼雌性亲本相对繁殖力最高,达84.55粒/g。
表3 饲料蛋白质水平对瓦氏黄颡鱼雌性亲本繁殖性能的影响

Table 3 Effects of dietary protein levels on reproductive performance of female Pelteobagrus vachelli broodstock

项目
Items
组别 Groups P
P-value
P1 P2 P3 P4 P5
性腺指数 GSI/% 14.23
±3.27a
16.95
±2.41ab
18.71
±1.75b
18.29
±3.24b
19.40
±5.09b
0.018
卵重 Egg weight/mg 2.42
±0.23
2.30
±0.10
2.41
±0.24
2.63
±0.49
2.62
±0.22
0.113
卵径 Egg diameter/μm 938.27
±174.39
984.31
±183.12
982.01
±139.17
1 005.19
±132.79
937.39
±168.40
0.301
受精率 FR/% 66.37
±8.24
66.17
±13.06
73.60
±23.73
64.24
±7.69
68.65
±13.56
0.480
绝对繁殖力 AF/粒 8 408.23
±1 759.73a
13 919.45
±3 181.36b
19 369.55
±1 624.71c
15 023.22
±4 324.89bc
14 362.41
±2 551.26b
0.006
相对繁殖力 RF/(粒/g) 43.99
±10.04a
71.37
±7.80b
84.60
±3.96b
79.55
±13.48b
71.95
±2.94b
0.002
图1 瓦氏黄颡鱼雌性亲本相对繁殖力的二次回归分析

Fig.1 Quadratic regression analysis of relative fecundity of female Pelteobagrus vachelli broodstock

2.3 饲料蛋白质水平对瓦氏黄颡鱼雌性亲本卵巢形态学的影响

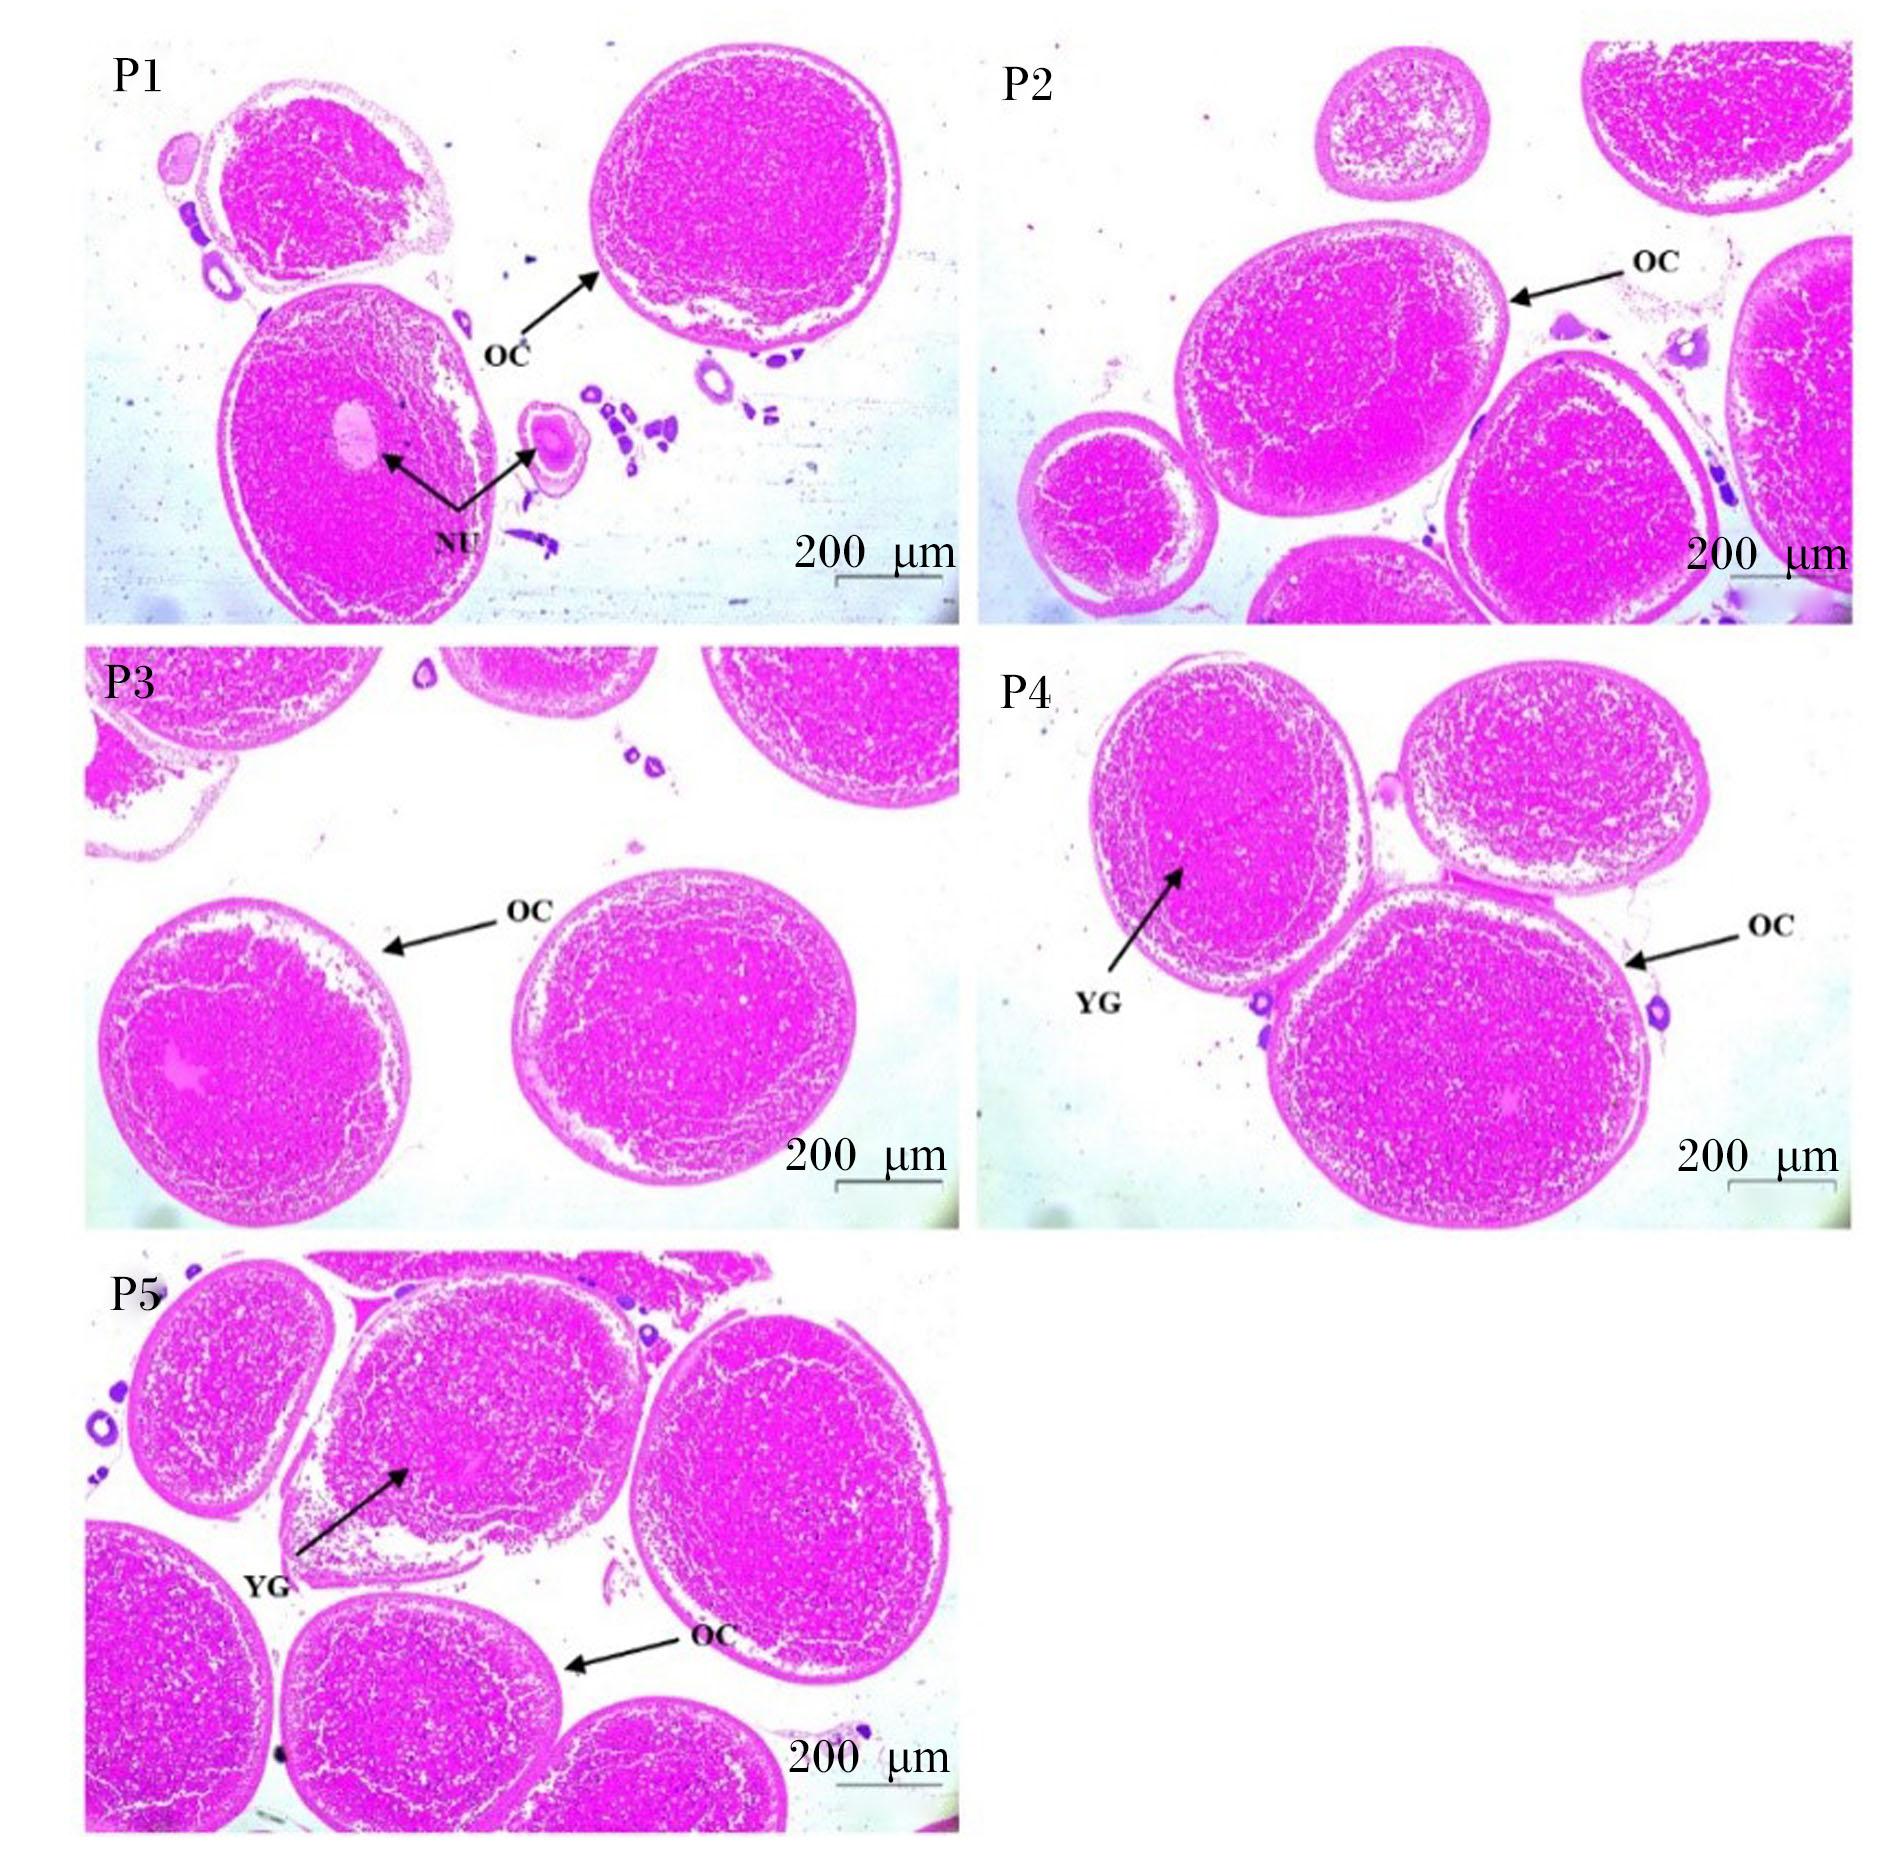
卵巢组织学切片(图2)显示,P1组卵巢以第Ⅰ、Ⅱ时相卵母细胞为主,仅见少量第Ⅲ、Ⅳ时相卵母细胞;P2组卵巢以第Ⅳ、Ⅴ时相卵母细胞占主导,卵径异质性明显;P3、P4及P5组卵巢则主要分布第Ⅴ、Ⅵ时相卵母细胞。
图2 饲料蛋白质水平对瓦氏黄颡鱼雌性亲本卵巢形态学的影响

NU:细胞核 nucleus;OC:卵母细胞 oocytes;YG:卵黄颗粒 yolk granules。

P1:P1组 P1 group;P2:P2组 P2 group;P3:P3组 P3 group;P4:P4组 P4 group;P5:P5组 P5 group。图3同 the same as Fig.3

Fig.2 Effects of dietary protein levels on ovarian morphology of female Pelteobagrus vachelli broodstock

2.4 饲料蛋白质水平对瓦氏黄颡鱼雌性亲本血清与卵巢中E2和Vtg含量的影响

表4可知,饲料蛋白质水平显著影响卵巢Vtg含量(P<0.05)。P3与P4组卵巢Vtg含量显著高于P1组(P<0.05),而P5组卵巢Vtg含量显著低于P3组(P<0.05)。
表4 饲料蛋白质水平对瓦氏黄颡鱼雌性亲本血清与卵巢中E2和Vtg含量的影响

Table 4 Effects of dietary protein levels on E2 and Vtg contents in serum and ovary of female Pelteobagrus vachelli broodstock

项目
Items
组别 Groups P
P-value
P1 P2 P3 P4 P5
血清 Serum
雌二醇 E2/(pmol/L) 137.54±1.07 136.83±0.27 136.75±1.94 140.40±1.88 138.23±1.56 0.069
卵黄蛋白原
Vtg/(ng/mL)
95.39±18.35 96.36±8.06 102.09±5.15 94.59±11.55 93.84±12.33 0.917
卵巢 Ovary
雌二醇
E2/(pmol/g prot)
139.76±1.40 140.19±0.57 139.14±1.37 139.95±0.50 140.07±0.77 0.506
卵黄蛋白原
Vtg/(ng/mg prot)
61.32±7.75a 68.35±5.10ab 80.78±7.67c 74.93±5.46bc 69.38±4.13ab 0.001

2.5 饲料蛋白质水平对瓦氏黄颡鱼雌性亲本血清生化指标的影响

表5可知,饲料蛋白质水平对血清ALP、AST活性及ALB、TC含量无显著影响(P>0.05)。血清TP含量随饲料蛋白水平的升高呈上升趋势,P5组血清TP含量显著高于P1和P2组(P<0.05);P3组血清ALT活性显著低于P1和P4组(P<0.05);P3组血清GLU含量显著低于其余各组(P<0.05);血清TG含量随饲料蛋白水平的升高呈先降后升趋势,P3组达最低值且显著低于除P4组外的其余各组(P<0.05)。
表5 饲料蛋白质水平对瓦氏黄颡鱼雌性亲本血清生化指标的影响

Table 5 Effects of dietary protein levels on serum biochemical indices of female Pelteobagrus vachelli broodstock

项目
Items
组别 Groups P
P-value
P1 P2 P3 P4 P5
总蛋白 TP/(g/L) 39.93±1.92a 40.50±4.30a 46.23±5.90ab 44.97±3.00ab 51.91±5.44b 0.042
白蛋白 ALB/(g/L) 12.97±1.10 12.33±1.21 14.70±1.54 15.23±1.63 15.67±1.46 0.056
葡萄糖 GLU/(mmol/L) 2.93±0.81b 2.93±0.41b 1.16±0.06a 2.43±0.84b 2.80±1.36b 0.015
碱性磷酸酶 ALP/(U/L) 58.90±5.12 64.30±23.31 70.20±15.58 55.17±7.15 50.73±11.04 0.506
谷草转氨酶 AST/(U/L) 606.10±75.75 534.70±100.73 665.63±46.58 580.63±35.68 637.77±229.59 0.713
谷丙转氨酶 ALT/(U/L) 11.57±2.36bc 6.58±0.13ab 4.30±1.65a 13.57±4.15c 9.73±4.57abc 0.024
甘油三酯 TG/(mmol/L) 11.89±2.43c 10.21±2.12bc 4.54±1.01a 6.97±2.12ab 10.64±1.45c 0.005
总胆固醇 TC/(mmol/L) 7.15±0.57 7.71±1.24 7.04±1.68 7.92±0.46 7.91±0.86 0.754

2.6 饲料蛋白质水平对瓦氏黄颡鱼雌性亲本肝脏抗氧化指标和ALP活性的影响

表6可知,P5组肝脏ALP活性最低,显著低于P2、P3及P4组(P<0.05);P4组肝脏SOD活性最高,显著高于其余各组(P<0.05);P5组肝脏MDA含量显著高于其余各组(P<0.05);P3组肝脏GSH含量最低,显著低于P1、P2及P5组(P<0.05)。
表6 饲料蛋白质水平对瓦氏黄颡鱼雌性亲本肝脏抗氧化指标和ALP活性的影响

Table 6 Effects of dietary protein levels on antioxidant indices and ALP activity in liver of female Pelteobagrus vachelli broodstock

项目
Items
组别 Groups P
P-value
P1 P2 P3 P4 P5
碱性磷酸酶
ALP/(金氏单位/g prot)
38.11±9.37ab 40.75±6.01b 43.63±5.51b 45.93±10.54b 28.41±6.91a 0.021
超氧化物歧化酶
SOD/(U/mg prot)
96.99±23.47a 112.90±9.00a 109.40±14.46a 196.24±99.21b 115.80±36.31a 0.049
丙二醛
MDA/(nmol/mg prot)
5.48±2.01a 4.54±1.15a 4.40±1.66a 6.49±3.93a 11.28±5.16b 0.025
还原型谷胱甘肽
GSH/(μmol/g prot)
4.46±0.61b 5.50±1.64b 1.45±0.24a 2.48±0.82a 5.30±1.94b <0.001

2.7 饲料蛋白质水平对瓦氏黄颡鱼雌性亲本F1代仔鱼生长性能的影响

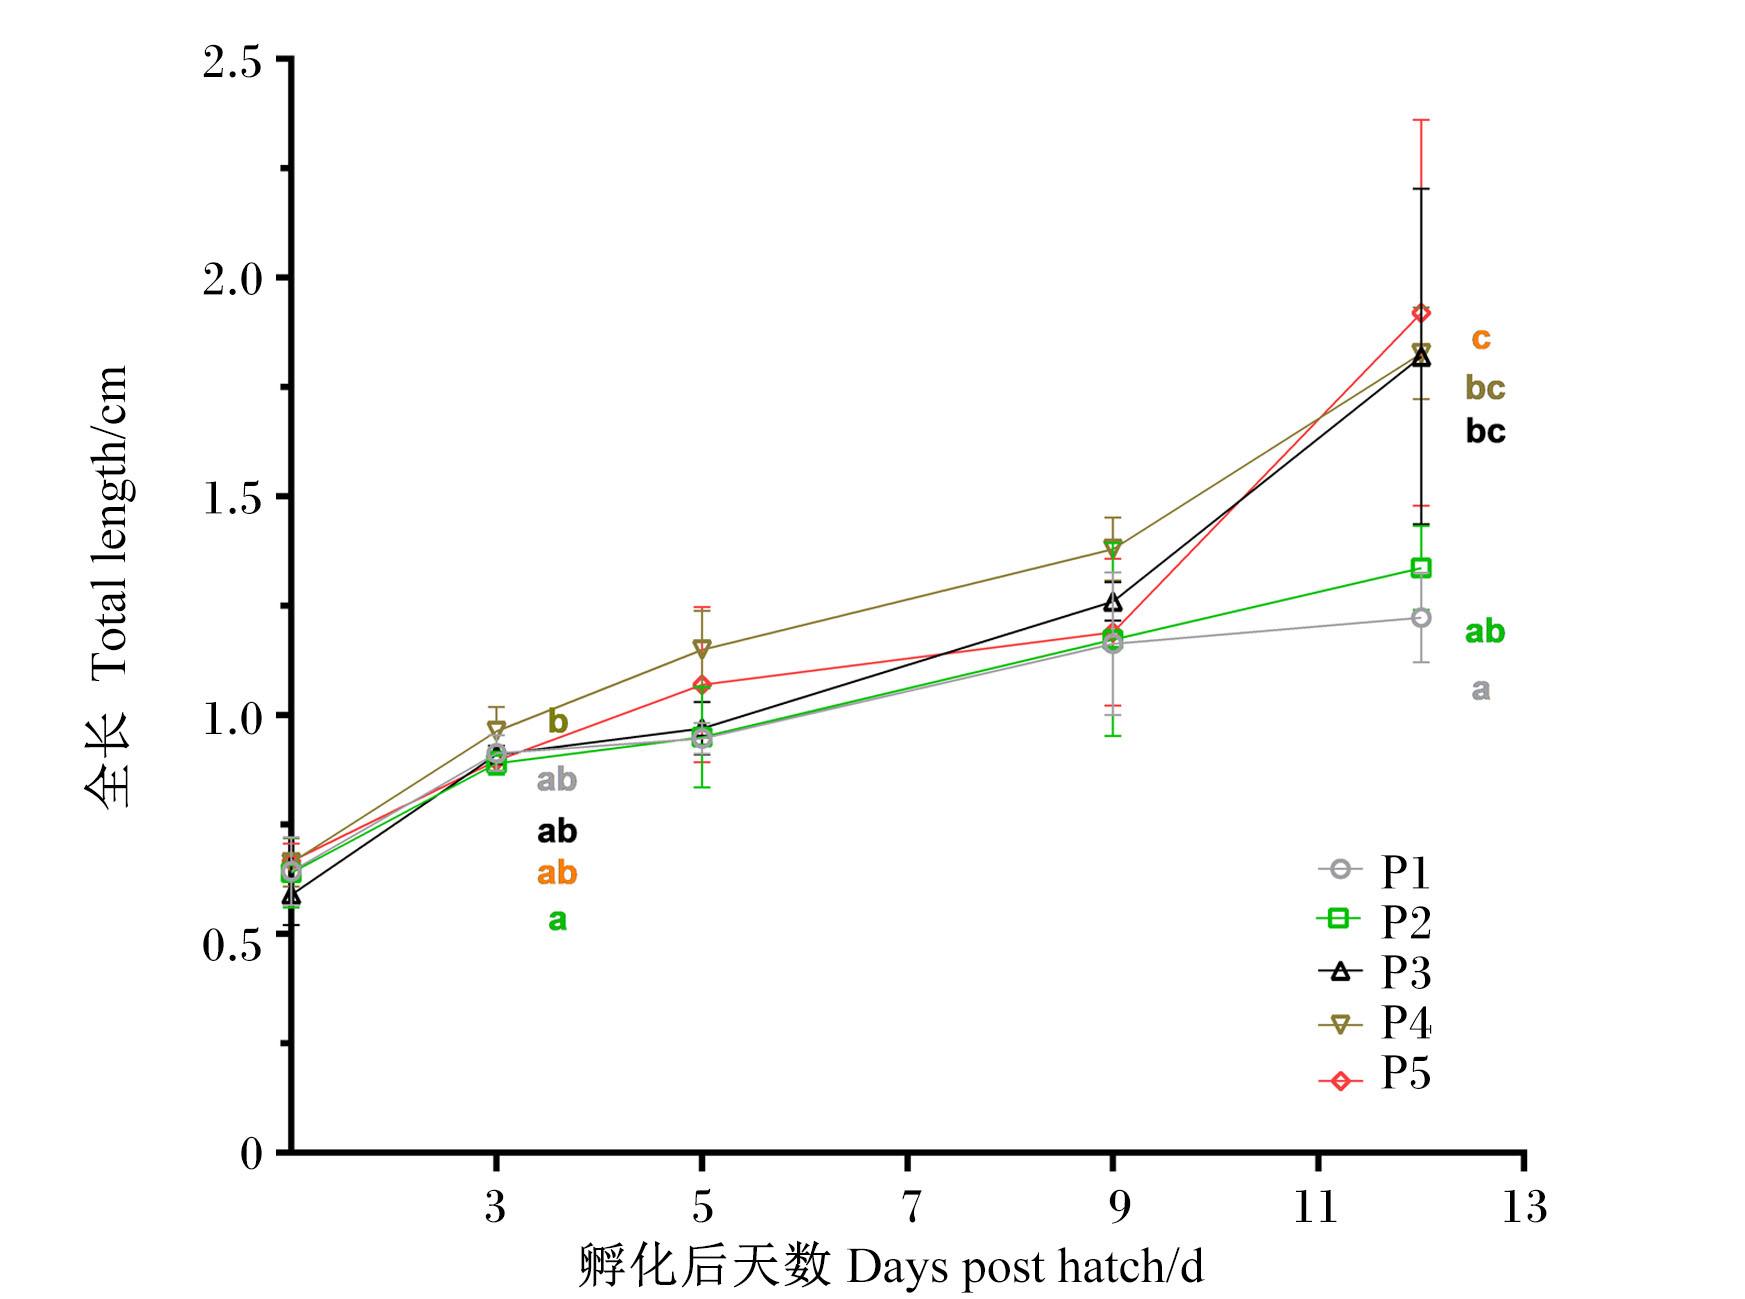
表7可知,饲料蛋白质水平对F1代仔鱼的初始体重有显著影响(P<0.05),P1组仔鱼初始体重显著低于其余各组(P<0.05)。仔鱼终末体重、WGR和SGR均在P5组达到最大值,并显著高于P1组(P<0.05),但P3组、P4组与P5组间无显著差异(P>0.05)。P3、P4及P5组仔鱼存活率显著高于P1组(P<0.05)。由图3可知,孵化后第12天,P5组仔鱼全长最长,显著高于P1和P2组(P<0.05),但与P3和P4组无显著差异(P>0.05)。
表7 饲料蛋白质水平对瓦氏黄颡鱼雌性亲本F1代仔鱼生长性能的影响

Table 7 Effects of dietary protein levels on growth performance of F1 larvae from female Pelteobagrus vachelli broodstock

项目
Items
组别 Groups P
P-value
P1 P2 P3 P4 P5
初始体重
IBW/mg
2.25±0.10a 2.64±0.16b 2.72±0.11b 2.56±0.10b 2.68±0.23b 0.018
终末体重
FBW/mg
22.17±6.77a 41.77±6.96ab 71.47±22.74b 61.20±18.20b 75.00±28.95b 0.031
增重率
WGR/%
890.59±327.75a 1 479.16±191.32ab 2 505.54±721.26b 2 310.39±818.74b 2 734.99±1 124.27b 0.011
特定生长率
SGR/(%/d)
18.83±2.59a 22.96±0.98ab 26.97±2.21b 26.22±2.67b 27.35±3.78b 0.012
存活率
SR/%
51.33±6.51a 56.00±4.00ab 63.00±5.57bc 66.00±4.36c 61.67±4.04bc 0.031
图3 饲料蛋白质水平对瓦氏黄颡鱼雌性亲本F1代仔鱼全长的影响

同一孵化后天数,不同组数据点标注无字母或相同小写字母表示差异不显著(P>0.05),不同小写字母表示差异显著(P<0.05)。

Fig.3 Effects of dietary protein levels on total length of F1 larvae from female Pelteobagrus vachelli broodstock

At the same days post hatch, data points of different groups with no letter or the same lowercase letter mean no significant difference (P>0.05), while with different lowercase letters mean significant difference (P<0.05).

3 讨论

3.1 饲料蛋白质水平对瓦氏黄颡鱼雌性亲本生长性能的影响

精准投喂是提高水产养殖生产效率的重要途径,然而目前针对亲鱼营养的研究仍相对缺乏。在实际养殖过程中,由于缺乏专用亲鱼饲料,常出现亲鱼性腺发育不良、受精率低及仔鱼质量差等问题[15]。本研究结果显示,饲料蛋白质水平显著影响瓦氏黄颡鱼雌性亲本的终末体重、WGR和SGR;当饲料蛋白质水平为47.45%(P3组)和54.14%(P4组)时,亲鱼的上述指标均显著高于34.27%(P1组)、40.85%(P2组)和60.63%(P5组)蛋白质水平组。该结果与已有研究结果[15-16]相符,表明适宜的饲料蛋白质水平可显著改善养殖鱼类的生长性能。蛋白质是鱼类完成各项生理过程所必需的关键营养素,繁殖期鱼类对蛋白质的需求通常高于其他发育阶段。Chen等[5]针对黄颡鱼(Pelteobagrus fulvidraco)的研究表明,与34.40%的饲料蛋白质水平相比,44.15%~52.72%的蛋白质水平可显著提高亲鱼的终末体重、WGR和SGR。本研究确定的瓦氏黄颡鱼亲鱼适宜饲料蛋白质水平略高于该研究结果,这一差异可能源于物种生物学特性的不同:与黄颡鱼相比,瓦氏黄颡鱼雌性亲鱼个体更大、怀卵量更多,因此在繁殖过程中对蛋白质的需求相应更高。本研究中,瓦氏黄颡鱼亲鱼的WGR处于较低水平(14.43%~38.08%),与田佳明等[17]的研究结果一致,其原因可能在于试验亲鱼初始体重较高,且繁殖期间摄取的能量主要分配于性腺发育。此外,本研究发现亲鱼MFI随饲料蛋白质水平的升高呈降低趋势,且与GSI呈负相关,这与胡伟华等[18]在黄颡鱼中的发现相似,即MFI较高的亲鱼,其GSI往往较低,该现象的具体调控机制仍有待进一步研究。

3.2 饲料蛋白质水平对瓦氏黄颡鱼雌性亲本繁殖性能的影响

亲本营养对卵子发生和性腺发育具有关键作用。蛋白质被认为是卵子发生和胚胎发育过程中的关键营养素之一[19]。本研究结果表明,适宜的饲料蛋白质水平可提高瓦氏黄颡鱼雌性亲本的GSI、AF及RF。这一发现与在黄颡鱼[5]、亚洲鲶鱼(Clarias batrachus)[20]、高体鰤(Seriola dumerili)[6]和罗非鱼(Oreochromis niloticus)[21]中的研究结果一致,说明适宜的饲料蛋白质水平有助于提升亲本的繁殖性能;而饲料蛋白质供应不足则会导致亲本繁殖性能下降[22]。卵巢形态学观察结果显示,随着饲料蛋白质水平的升高,瓦氏黄颡鱼雌性亲本卵巢中第Ⅴ、Ⅵ时相卵母细胞的占比呈上升趋势,这进一步证实了适宜的蛋白质水平对卵巢发育的促进作用。在卵黄形成期,E2含量会随性腺发育逐步升高,进而诱导肝脏合成Vtg[23]。Vtg经血液循环转运至卵巢后,会被发育中的卵母细胞通过胞饮作用摄取,并进一步转化为卵黄蛋白储存于卵内,为后续胚胎发育提供营养储备。
卵巢中Vtg的含量直接反映卵黄积累状况,是评估卵子质量和胚胎存活潜力的关键指标[2]。本研究中,尽管各组间血清与卵巢E2含量未呈现显著差异,但P3和P4组卵巢Vtg含量显著高于P1组。这一结果可从卵黄发生的动态过程得到解释:在卵黄发生的主要阶段,适宜的高蛋白质饲料可能持续促进了肝脏Vtg的合成及其向卵巢的转运过程。在该过程中,E2作为关键启动信号,其含量可能在卵黄发生前期已达到峰值并发挥诱导作用;至性腺发育后期,E2含量进入平台期,波动趋于平稳[24]。由此表明,饲料蛋白质水平可能通过调控整个卵黄积累过程的效率,影响亲本卵巢中的Vtg储备量,进而改善其繁殖性能。

3.3 饲料蛋白质水平对瓦氏黄颡鱼雌性亲本血清生化指标的影响

血清生化指标是评估鱼类机体健康、代谢状态和营养水平的重要手段[25]。TP和ALB主要反映肝脏的合成功能和机体的整体营养状况。本研究中,血清TP和ALB含量随饲料蛋白质水平的升高呈上升趋势,表明适宜的饲料蛋白质水平有利于肝脏蛋白质的合成,反映出机体处于良好的营养状态。AST和ALT为肝细胞内酶,血清中二者活性异常升高通常提示肝细胞发生损伤[25]。本研究结果显示,P3组血清ALT活性较P1组显著降低,而饲料蛋白质水平过高则会导致其活性上升,这可能与高蛋白质饲料加重肝脏代谢负荷,进而引发肝细胞损伤有关。该结果与鳙(Aristichthys nobilis)中的研究结果一致,其摄入高蛋白质饲料后,肝脏组织出现炎性细胞浸润,血清AST和ALT活性也显著上升[26]。TG和TC等脂类代谢指标与机体的能量平衡、肝脏脂质合成与输出以及内分泌功能密切相关。P3组血清GLU和TG含量较P1组显著降低,提示该蛋白质水平下鱼体的能量代谢处于高效平衡状态,外周组织对血液中GLU和TG的利用较为充分。而当饲料蛋白质水平过高时,肝脏代谢负担加重,过量氨基酸经脱氨基作用后,其碳骨架可通过糖异生途径转化为GLU,或经乙酰辅酶A途径从头合成脂肪,这可能是P5组血清GLU和TG含量回升的主要原因。

3.4 饲料蛋白质水平对瓦氏黄颡鱼雌性亲本肝脏功能和抗氧化能力的影响

ALP是评估肝脏功能的重要指标,其活性异常降低常提示肝细胞合成功能受损、能量代谢障碍或机体处于营养不良状态[27]。MDA含量则常用于反映鱼类体内脂质过氧化及氧化应激程度[28]。本研究中,当饲料蛋白质水平过高时,肝脏MDA含量升高,ALP活性降低,表明过量蛋白质摄入可能通过产生较多代谢废物(如氨、尿素)以及增强产生活性氧的代谢过程,引发肝细胞损伤和脂质过氧化。该结果与在黄颡鱼[5]和罗非鱼[29]中的研究结果相似,即饲料蛋白质水平过高可能对肝脏造成代谢压力。SOD是机体抵御氧化应激的关键酶,GSH则为重要的内源性抗氧化剂[30]。本研究中,肝脏SOD活性在P4组达到峰值,说明机体的抗氧化防御系统被有效激活,能够高效清除超氧阴离子自由基。而肝脏GSH含量在P3组最低,这可能是因为在适宜饲料蛋白质水平下,机体氧化应激程度较低,无需大量动员GSH以清除自由基;而在蛋白质不足(P1和P2组)或过高(P5组)的条件下,机体为应对不同程度的氧化应激,GSH可能被大量消耗而诱发了代偿性合成增强,导致其含量相对升高。

3.5 饲料蛋白质水平对瓦氏黄颡鱼雌性亲本F1代仔鱼质量的影响

在仔鱼质量方面,随着亲本饲料蛋白质水平的升高,仔鱼初始体重、终末体重及WGR均有所提高。孵化后第12天,P3、P4及P5组仔鱼全长均显著高于P1组,说明亲本营养状况显著影响子代生长表现。仔鱼质量的改善可能与卵巢中较高的Vtg含量有关。Vtg不仅为胚胎生长发育提供支持,还可作为胚胎和仔鱼阶段的重要营养储备,是早期发育的关键卵黄蛋白来源[5]。此外,Lucas[31]提出的“营养程序化”概念指出,在发育关键期内的营养刺激可重塑机体生理通路,并产生持续性影响。该机制在鱼类研究中日益受到关注,无论是来自母体的内源性营养(如卵黄物质),还是早期外源摄食,均可能对鱼类的生长、发育和代谢产生类似程序化调控作用[32]。此类调控可能通过DNA甲基化、组蛋白修饰等表观遗传机制实现,在不改变DNA序列的前提下影响基因表达[33]。然而,目前相关机制在鱼类中的研究仍较有限,有待进一步深入探讨。

4 结论

综上所述,饲料蛋白质水平为47.45%~54.14%时,可改善瓦氏黄颡鱼雌性亲本的生长性能(WGR和SGR)和繁殖性能(AF、RF及Vtg沉积);可显著降低亲本血清ALT活性(47.45%组)和TG含量,显著提高肝脏SOD活性(54.14%组),有助于维持机体代谢平衡与健康状态;同时,可显著提升仔鱼WGR、SGR和存活率等质量指标。然而,饲料蛋白质水平过高(60.63%)会诱发氧化应激,表现为肝脏MDA含量显著升高,对亲本健康产生不利影响。二次回归分析结果表明,当饲料蛋白质水平为50.79%时,雌性亲本RF达到最大值。因此,建议瓦氏黄颡鱼雌性亲本饲料的蛋白质水平为47.45%~50.79%。
[1]
FERNÁNDEZ-PALACIOS H, NORBERG B, IZQUIERDO M, et al. Larval fish nutrition[J]. Aquaculture International, 2011, 19:1019-1020.

DOI

[2]
HIRAMATSU N, TODO T, SULLIVAN C V, et al. Ovarian yolk formation in fishes:molecular mechanisms underlying formation of lipid droplets and vitellogenin-derived yolk proteins[J]. General and Comparative Endocrinology, 2015, 221:9-15.

DOI

[3]
HAMRE K, YÚFERA M, RØNNESTAD I, et al. Fish larval nutrition and feed formulation:knowledge gaps and bottlenecks for advances in larval rearing[J]. Reviews in Aquaculture, 2013, 5(S1):S26-S58.

[4]
TELES A O, COUTO A, ENES P, et al. Dietary protein requirements of fish-a Meta-analysis[J]. Reviews in Aquaculture, 2020, 12(3):1445-1477.

DOI

[5]
CHEN Z, FEI S Z, DUAN Y H, et al. Effects of dietary protein level on the growth,reproductive performance,and larval quality of female yellow catfish (Pelteobagrus fulvidraco) broodstock[J]. Aquaculture Reports, 2022, 24:101102.

DOI

[6]
SARIH S, DJELLATA A, ROO J, et al. Effects of increased protein,histidine and taurine dietary levels on egg quality of greater amberjack (Seriola dumerili,Risso,1810)[J]. Aquaculture, 2019, 499:72-79.

DOI

[7]
ENGDAW F, GEREMEW A. Broodstock nutrition in Nile tilapia and its implications on reproductive efficiency[J]. Frontiers in Aquaculture, 2024, 3:1281640.

DOI

[8]
金佳利, 许金娇, 杜明润, 等. 瓦氏黄颡鱼精子冷冻保存技术[J]. 中国水产科学, 2023, 30(11):1301-1310.

JIN J L, XU J J, DU M R, et al. Cryopreservation technique for sperm of darkbarbel catfish (Pelteobagrus vachelli)[J]. Journal of Fishery Sciences of China, 2023, 30(11):1301-1310. (in Chinese)

[9]
周崇旋. 瓦氏黄颡鱼仔稚鱼饲料大豆卵磷脂最适添加量的研究[D]. 硕士学位论文. 武汉: 华中农业大学, 2024.

ZHOU C X. The optimum supplement of soybean lecithin to the feed for Pelteobagrus vachelli larvae and juveniles[D]. Master’s Thesis. Wuhan: Huazhong Agriculture University, 2024. (in Chinese)

[10]
程心元. 饲料中分别以鱿鱼粉和南极磷虾粉作为主要蛋白源对瓦氏黄颡鱼仔稚鱼生长的探究[D]. 硕士学位论文. 武汉: 华中农业大学, 2024.

CHENG X Y. Study on the growth of Pelteobagrus vachelli larvae with squid powder and Antarctic krill powder as main protein sources in feed[D]. Master’s Thesis. Wuhan: Huazhong Agriculture University, 2024. (in Chinese)

[11]
胡晓娜, 吴兴兵, 朱永久, 等. 养殖密度对瓦氏黄颡鱼幼鱼生长和生理生化指标的影响[J]. 南方水产科学, 2025, 21(3):141-148.

HU X N, WU X B, ZHU Y J, et al. Effects of stocking density on growth performance and physiological and biochemical parameters of Pelteobagrus vachelli juvenile[J]. South China Fisheries Science, 2025, 21(3):141-148. (in Chinese)

[12]
陈杰, 贺扬, 戴旭平, 等. 瓦氏黄颡鱼头肾组织学观察与先天性免疫屏障研究[J]. 南方水产科学, 2021, 17(1):82-90.

CHEN J, HE Y, DAI X P, et al. Histological observation and innate immune barrier study of head kidney of Pelteobagrus vachelli[J]. South China Fisheries Science, 2021, 17(1):82-90. (in Chinese)

[13]
LATIMER G W Jr. The official methods of analysis of AOAC international[S]. 22nd ed. New York: Oxford University Press, 2023.

[14]
ORLANDO T M, FONTES T V, PAULINO R R, et al. Effects of the dietary linoleic acid to linolenic acid ratio for Nile tilapia (Oreochromis niloticus) breeding females[J]. Aquaculture, 2020, 516:734625.

DOI

[15]
XIONG Y, YU G J, WANG J Q, et al. Effects of feeding rate and dietary protein levels on the breeding performance of female yellow catfish (Pelteobagrus fulvidraco)[J]. Aquaculture Research, 2022, 53(1):243-254.

DOI

[16]
WANG S H, TIAN J W, JIANG X N, et al. Effects of different dietary protein levels on the growth performance,physicochemical indexes,quality,and molecular expression of yellow river carp (Cyprinus carpio haematopterus)[J]. Animals, 2023, 13(7):1237.

DOI

[17]
田佳明. n-3 HUFA对瓦氏黄颡鱼繁殖力与肝脏脂质代谢能力的影响[D]. 硕士学位论文. 重庆: 西南大学, 2024.

TIAN J M. Effects of n-3 HUFA on the fecundity and hepatic lipid metabolism capacity of Pelteobagrus vachelli[D]. Master’s Thesis. Chongqing: Southwest University, 2024. (in Chinese)

[18]
胡伟华, 熊阳, 郭稳杰, 等. 黄颡鱼母本的肠系膜脂肪沉积对繁育性能的影响[J]. 水生生物学报, 2021, 45(6):1181-1189.

HU W H, XIONG Y, GUO W J, et al. The effect of mesenteric fat deposition on reproduction performance of female parent fish (Pelteobagrus fulvidraco)[J]. Acta Hydrobiologica Sinica, 2021, 45(6):1181-1189. (in Chinese)

[19]
LOCHMANN S E, GOODWIN K J, LOCHMANN R T, et al. Volume and lipid,fatty acid,and amino acid composition of golden shiner eggs during a spawning season[J]. North American Journal of Aquaculture, 2007, 69(2):116-126.

DOI

[20]
SINGH R K, DESAI A S, CHAVAN S L, et al. Effect of water temperature on dietary protein requirement,growth and body composition of Asian catfish,Clarias batrachus fry[J]. Journal of Thermal Biology, 2009, 34(1):8-13.

DOI

[21]
GUNASEKERA R M, SHIM K F, LAM T J. Effect of dietary protein level on puberty,oocyte growth and egg chemical composition in the tilapia,Oreochromis niloticus (L.)[J]. Aquaculture, 1995, 134(1/2):169-183.

DOI

[22]
CHONG A S C, ISHAK S D, OSMAN Z, et al. Effect of dietary protein level on the reproductive performance of female swordtails Xiphophorus helleri (Poeciliidae)[J]. Aquaculture, 2004, 234(1/2/3/4):381-392.

DOI

[23]
HIRAMATSU N, MATSUBARA T, FUJITA T, et al. Multiple piscine vitellogenins:biomarkers of fish exposure to estrogenic endocrine disruptors in aquatic environments[J]. Marine Biology, 2006, 149(1):35-47.

DOI

[24]
GANESH C B. Follicular development status and profile of 17β estradiol and cortisol levels during spawning cycle in Oreochromis mossambicus (Peters)[J]. Indian Journal of Fisheries, 2014, 60(2):45-51.

[25]
SILVEIRA-COFFIGNY R, PRIETO-TRUJILLO A, ASCENCIO-VALLE F. Effects of different stressors in haematological variables in cultured Oreochromis aureus S.[J]. Comparative Biochemistry and Physiology Part C:Toxicology & Pharmacology, 2004, 139(4):245-250.

DOI

[26]
SUN S M, WU Y, YU H, et al. Serum biochemistry,liver histology and transcriptome profiling of bighead carp Aristichthys nobilis following different dietary protein levels[J]. Fish & Shellfish Immunology, 2019, 86:832-839.

[27]
FERNANDEZ N J, KIDNEY B A. Alkaline phosphatase:beyond the liver[J]. Veterinary Clinical Pathology, 2007, 36(3):223-233.

DOI

[28]
LUSHCHAK V I. Environmentally induced oxidative stress in aquatic animals[J]. Aquatic Toxicology, 2011, 101(1):13-30.

DOI PMID

[29]
QIANG J, YANG H, WANG H, et al. Effects of different dietary protein levels on serum biochemical indices and expression of liver HSP70 mRNA in GIFT tilapia (Oreochromis niloticus) under low temperature stress[J]. Acta Hydrobiologica Sinica, 2013, 37(3):434-443.

[30]
董滢, 周庆安, 任建存, 等. 抗氧化剂在动物生产中的应用[J]. 现代畜牧科技, 2024, 104(1):77-80.

DONG Y, ZHOU Q A, REN J C, et al. The application of antioxidants in animal production[J]. Modern Animal Husbandry Science & Technology, 2024, 104(1):77-80. (in Chinese)

[31]
LUCAS A. Programming by early nutrition:an experimental approach[J]. The Journal of Nutrition, 1998, 128(2):401S-406S.

[32]
HOU Z X, FUIMAN L A. Nutritional programming in fishes:insights from mammalian studies[J]. Reviews in Fish Biology and Fisheries, 2020, 30(1):67-92.

DOI

[33]
PERERA E, YÚFERA M. Effects of soybean meal on digestive enzymes activity,expression of inflammation-related genes,and chromatin modifications in marine fish (Sparus aurata L.) larvae[J]. Fish Physiology and Biochemistry, 2017, 43(2):563-578.

DOI

文章导航

/