研究论文

琼胶寡糖对脂多糖诱导的瘤胃上皮屏障功能损伤及细胞凋亡的影响

  • 何孟娟 ,
  • 何晓琳 ,
  • 周芷泠 ,
  • 白雨鑫 ,
  • 谭思琴 ,
  • 尹福泉 , *
展开
  • 广东海洋大学滨海农业学院, 湛江 524088
*尹福泉,教授,硕士生导师,E-mail:

何孟娟(1999—),女,福建宁德人,硕士研究生,研究方向为动物营养与饲料科学。E-mail:

Office editor: 陈燕

收稿日期: 2025-10-21

  网络出版日期: 2026-05-14

基金资助

广东海洋大学研究生院——雷州山羊科技小院

广东省科学技术厅“百千万工程”农村科技特派员项目(KTP20240547)

2025年广东省教育厅服务“百千万工程”重点领域项目(2025ZDZX4021)

广东省农业农村厅——广东省饲料产业技术体系(2024CXTD14)

Effects of Agaro-Oligosaccharides on Lipopolysaccharide-Induced Rumen Epithelial Barrier and Cell Apoptosis

  • HE Mengjuan ,
  • HE Xiaolin ,
  • ZHOU Zhiling ,
  • BAI Yuxin ,
  • TAN Siqin ,
  • YIN Fuquan , *
Expand
  • College of Coastal Agricultural Sciences, Guangdong Ocean University, Zhanjiang 524088, China
*professor, E-mail:

Received date: 2025-10-21

  Online published: 2026-05-14

摘要

本试验旨在探究琼胶寡糖(AOS)对脂多糖(LPS)诱导瘤胃上皮细胞损伤的缓解作用及其机理。首先通过0、50、100 μg/mL的LPS作用于瘤胃上皮细胞24 h来筛选最佳的LPS浓度并建立细胞损伤模型,然后设置0和15 μg/mL的AOS来探究AOS对瘤胃上皮细胞的毒性影响;在此基础上,试验设置3个组,对照组用不含AOS和LPS的培养基培养细胞42 h,L组和A+L组分别用0和15 μg/mL AOS培养基培养细胞18 h,然后加入50 μg/mL LPS刺激细胞24 h。干预结束后,分别检测细胞紧密连接蛋白和凋亡相关基因的mRNA相对表达量及Toll样受体4(TLR4)/丝裂原活化蛋白激酶(MAPK)信号通路相关蛋白的相对表达量。结果表明:1)与0 μg/mL LPS(对照)相比,50 μg/mL LPS显著降低闭锁小带蛋白-1(ZO-1)、封闭蛋白-1(Claudin-1)、Occludin和B淋巴细胞瘤-2(Bcl-2)的mRNA相对表达量以及Bcl-2/B淋巴细胞瘤-2相关X蛋白(BAX)的值(P<0.05),显著增加BAX的mRNA相对表达量(P<0.05)。2)与0 μg/mL AOS(对照)相比,15 μg/mL AOS显著提高Claudin-1、OccludinBcl-2的mRNA相对表达量以及Bcl-2/BAX的值(P<0.05),显著降低BAX的mRNA相对表达量(P<0.05)。3)与L组相比,A+L组ZO-1、Claudin-1、Occludin、封闭蛋白-4(Claudin-4)、Bcl-2的mRNA相对表达量显著提高(P<0.05),半胱天冬蛋白酶-3(Caspase-3)、半胱天冬蛋白酶-8(Caspase-8)、B淋巴细胞瘤-2相关死亡促进因子(BAD)和半胱天冬蛋白酶-9(Caspase-9)的mRNA相对表达量显著降低(P<0.05);与L组相比,A+L组TLR4和髓样分化因子88(MyD88)的蛋白相对表达量以及细胞外信号调节激酶(ERK)、c-Jun氨基末端激酶(JNK)和p38丝裂原活化蛋白激酶的相对磷酸化水平显著降低(P<0.05)。综上所述,AOS可通过调控紧密连接蛋白及凋亡相关基因的表达,并抑制MAPK信号通路,从而缓解LPS诱导的瘤胃上皮细胞损伤。

本文引用格式

何孟娟 , 何晓琳 , 周芷泠 , 白雨鑫 , 谭思琴 , 尹福泉 . 琼胶寡糖对脂多糖诱导的瘤胃上皮屏障功能损伤及细胞凋亡的影响[J]. 动物营养学报, 2026 , 38(5) : 3702 -3714 . DOI: 10.12418/CJAN2026.297

Abstract

This experiment aimed to investigate the alleviating effects and underlying mechanism of agaro-oligosaccharides (AOS) on lipopolysaccharide (LPS)-induced injury in rumen epithelial cells. First, rumen epithelial cells were treated with 0, 50 and 100 μg/mL LPS for 24 h to screen for the optimal LPS concentration and establish a cellular injury model. Then, rumen epithelial cells were treated with 0 and 15 μg/mL AOS to assess the potential cytotoxicity of AOS on rumen epithelial cells. Based on these results, three experimental groups were designed: control group was cultured in medium without AOS or LPS for 42 h; L group and A+L group were pre-incubated with 0 and 15 μg/mL AOS for 18 h, respectively, followed by stimulation with 50 μg/mL LPS for 24 h. After the interventions, the mRNA relative expression levels of tight junction proteins and apoptosis-related genes, as well as the protein relative expression levels of Toll-like receptor 4 (TLR4)/mitogen-activated protein kinase (MAPK) signaling pathway-related molecules, were measured. The results showed as follows: 1) compared with the 0 μg/mL LPS (control), 50 μg/mL LPS significantly decreased the mRNA relative expression levels of zonula occludens-1 (ZO-1), Claudin-1, Occludin and B-cell lymphoma-2 (Bcl-2), as well as the value of Bcl-2/B-cell lymphoma-2-associated X protein (BAX) (P<0.05), while significantly increasing the mRNA relative expression level of BAX (P<0.05). 2) Compared with the 0 μg/mL AOS (control), 15 μg/mL AOS significantly upregulated the mRNA relative expression levels of Claudin-1, Occludin and Bcl-2, and increased the value of Bcl-2/BAX (P<0.05), while significantly downregulating the mRNA relative expression level of BAX (P<0.05). 3) Compared with the L group, the A+L group exhibited significantly higher mRNA relative expression levels of ZO-1, Claudin-1, Occludin, Claudin-4 and Bcl-2 (P<0.05), and significantly lower mRNA relative expression levels of Caspase-3, Caspase-8, B-cell lymphoma-2-associated death promoter (BAD) and Caspase-9 (P<0.05). Compared with the L group, the A+L group also showed significantly lower protein relative expression levels of TLR4 and myeloid differentiation factor 88 (MyD88), as well as significantly reduced phosphorylation levels of extracellular signal-regulated kinase (ERK), c-Jun N-terminal kinase (JNK) and p38 mitogen-activated protein kinase (p38) (P<0.05). In conclusion, AOS can alleviate LPS-induced injury in rumen epithelial cells by regulating the expression of tight junction proteins and apoptosis-related genes, and by inhibiting the MAPK signaling pathway.

近年来,养殖场为了提高牛羊肉以及奶的生产效率,常以谷物淀粉为主的高精料饲粮饲喂反刍动物,这种饲养模式在提高生产效率的同时,也增加了发生营养代谢性疾病的风险[1]。亚急性瘤胃酸中毒(subacute ruminal acidosis,SARA)是反刍动物因长期摄入高精料饲粮,引起瘤胃pH持续低于正常水平的一类代谢性疾病,可严重降低反刍动物的生产性能[2-3]。革兰氏阴性菌细胞壁裂解产生的脂多糖(lipopolysaccharide,LPS)是SARA产生过程中的一种异常代谢产物,它不仅会破坏紧密连接蛋白、诱导细胞凋亡,而且其剂量越高、作用时间越长,对上皮通透性的损伤就越严重[4-5]。瘤胃上皮是一种复层鳞状上皮,其颗粒层和棘层的紧密连接和桥粒连接构成了一道独有的屏障,在调控营养物质的吸收和运输以及瘤胃壁的保护中起着至关重要的生理作用[6-7]。当反刍动物发生SARA时,瘤胃内长期的酸性环境会导致革兰氏阴性菌破裂,其细胞壁中的LPS进入瘤胃,引起瘤胃壁的通透性增加、瘤胃上皮结构破坏及瘤胃屏障功能损坏,黏膜相关淋巴细胞会通过Toll样受体4(Toll-like receptor 4,TLR4)信号通路触发局部炎症反应[8]。近年来研究发现,壳寡糖、卡拉胶寡糖、褐藻胶寡糖等营养物质和生物活性物质含量高的海洋功能性寡糖在抗炎方面有着很好的发展潜力[9-10]。琼胶寡糖(agaro-oligosaccharides,AOS)是红藻来源的琼胶多糖经降解后得到的一种低分子量功能活性糖类,主要由琼寡糖与新琼寡糖组成,其聚合度为2~20,易被机体吸收,具有抗氧化、抗炎、抗肿瘤及益生元等生物学特性,且在化妆品、保健品和水产养殖等领域中有广泛应用[11-18]。AOS的抗炎活性受到结构、浓度、纯度等多方面的影响[19-20]。Wang等[21]探究不同聚合度(NA2、NA4、NA6、NA8、NA10)及浓度(62.5、125、250、500 μg/mL)的AOS在RAW264.7细胞中的抗炎活性,发现NA4、NA6、NA8在低浓度下均有效果,但500 μg/mL NA4抗炎效果最好,其能显著下调诱导型一氧化氮合酶(INOS)及白细胞介素-1β(IL-1β)和白细胞介素-6(IL-6)等促炎细胞因子的表达和分泌,也能显著抑制由LPS诱导的丝裂原活化蛋白激酶(mitogen activated protein kinase,MAPK)磷酸化。Shirai等[22]研究发现,相比于高分子量AOS,低分子量AOS在Caco-2细胞单层模型中的跨膜渗透率更高,细胞通透性更强。Zou等[23]研究发现,未经分离纯化的AOS可能因为多糖之间的协同作用表现出良好的抗炎活性。目前,AOS对上皮组织的调控作用主要集中在肠道模型中,且其保护肠道上皮的多种机制已得到证实。通过微生物调控、自噬控制、屏障加固等途径,AOS能够缓解外界刺激引发的肠道上皮损伤。Ma等[24]研究表明,AOS可通过阻断MAPK信号通路和调节肠道微生物群来提高免疫力,抑制肠道上皮细胞自噬,改善十二烷基硫酸钠诱导的肠道上皮的损伤。Xu等[25]发现AOS可通过桃醋杆菌-醋酸-胰岛素/胰岛素样生长因子-1信号(insulin/IGF-1 signaling,IIS)轴改善肠道稳态,缓解高脂饲养的雌性果蝇肠道上皮细胞死亡。Brenda等[26]也发现100 mg/kg AOS灌胃后可显著提高结肠炎小鼠封闭蛋白-2(Claudin-2)和闭合蛋白(Occludin)分泌,从而缓解小鼠结肠上皮屏障功能障碍。尽管AOS在上皮生理功能调控领域的研究已逐步深入,但针对反刍动物瘤胃上皮的相关研究仍较为匮乏,对瘤胃上皮损伤的干预作用及潜在调控机制尚未阐明。因此,本文通过LPS诱导瘤胃上皮细胞损伤模型,评估AOS对LPS诱导的瘤胃上皮屏障功能损伤及细胞凋亡的影响,并深入探讨其与TLR4/MAPK信号通路的关系,从而为AOS开发为缓解SARA的绿色添加剂提供数据支撑。

1 材料与方法

1.1 试验材料

绵羊瘤胃上皮细胞由赛百慷(上海)生物技术股份有限公司提供,经过线粒体测序比对及免疫荧光鉴定,确认为绵羊瘤胃上皮细胞;LPS购自美国Sigma-Aldrich公司,来源于大肠杆菌O55∶B5,产品货号为L2880;精制AOS购自青岛和海生物科技有限公司,分子量为1.51 ku,聚合度在3~15之间,呈现为白色至淡黄色粉末状物。胎牛血清和高糖培养基源自美国Zeta Life公司;磷酸盐缓冲液(PBS)和0.25%胰蛋白酶-乙二胺四乙酸(EDTA)消化液购自美国Gibco公司;十二烷基硫酸钠-聚丙烯酰胺凝胶电泳(SDS-PAGE)凝胶配备试剂盒、细胞裂解液及蛋白酶抑制剂购自北京索莱宝科技有限公司;总RNA提取试剂盒购自南京诺唯赞生物科技股份有限公司;白鲨逆转录试剂盒和实时荧光定量PCR(qRT-PCR)试剂盒购自北京兰杰柯科技有限公司;二喹啉甲酸(BCA)试剂盒购自上海碧云天生物技术股份有限公司。

1.2 主要试剂配制

1.2.1 LPS工作液的配制

称取10 mg LPS粉末溶于10 mL的PBS中,充分混匀后配制成1 mg/mL的混合液,然后按照1 mL/管将其分装至10个1.5 mL的无酶离心管中,置于-20 ℃避光保存备用。试验时,将1 mg/mL的LPS储备液从-20 ℃取出解冻,分别稀释配制成15、50、100 μg/mL的工作液,置于4 ℃冰箱内避光储存2周。

1.2.2 AOS工作液的配制

提前2周,在44 mL的杜氏改良伊格尔培养基(DMEM)/F12培养基中充分混匀5 mL胎牛血清(10%)和1 mL青霉素-链霉素双抗溶液(2%)配制细胞基础培养基。称取5 mg AOS粉末于5 mL细胞基础培养基,混合均匀并用0.22 μm滤头过滤后,即可配制成1 mg/mL的储备溶液,然后将储备溶液分别稀释配制成1、15、50、100 μg/mL的工作液,置于4 ℃冰箱内储存2周。

1.2.3 细胞冻存液的配制

将100 μL的二甲基亚砜(DMSO)与900 μL的胎牛血清充分混匀即可。

1.3 细胞复苏与培养

从液氮中取出冻存细胞,快速移入预热到37 ℃的水浴锅中,等冻存管内液体全部融化后,转移至超净工作台。将细胞悬液移入无酶离心管,加入2倍体积的细胞培养基,以7.16×g离心7 min,弃上清液,加入1 mL细胞培养基重悬细胞并充分吹打混匀,随后移入提前加入4 mL细胞培养基的T25培养瓶中,晃匀后置于含5%二氧化碳(CO2)、37 ℃的细胞培养箱中培养。此后每天用PBS清洗换液,直至细胞密度达到90%以上,再进行传代培养。

1.4 预试验参数优化

试验前期通过预试验优化关键参数:LPS设置0、15、50、100 μg/mL浓度梯度及6、12、24 h时间梯度,AOS设置0、1、15、50、100 μg/mL浓度梯度及6、12、18、24 h时间梯度,以细胞计数试剂盒-8(CCK-8)法测定的细胞存活率为指标。结果显示,50和100 μg/mL LPS作用瘤胃上皮细胞24 h时损伤模型稳定;AOS作用18 h时,细胞存活率随AOS浓度呈典型的先升后降剂量效应关系,在15 μg/mL时细胞存活率达到最大。因此,选定50和100 μg/mL LPS作用于细胞24 h,15 μg/mL AOS作用于细胞18 h为正式试验条件。

1.5 试验设计

首先通过0、50、100 μg/mL的LPS作用于瘤胃上皮细胞24 h来筛选最佳的LPS浓度并建立细胞损伤模型,然后设置0和15 μg/mL的AOS来探究AOS对瘤胃上皮细胞的毒性影响,并以紧密连接蛋白及凋亡相关基因mRNA相对表达量作为检测指标。在此基础上,试验设置3个组,对照组用不含AOS和LPS的培养基培养细胞42 h,L组和A+L组分别用0和15 μg/mL AOS培养基培养细胞18 h,然后加入50 μg/mL LPS刺激细胞24 h。干预结束后,分别检测细胞紧密连接蛋白和凋亡相关基因的mRNA相对表达量及TLR4/MAPK信号通路相关蛋白的相对表达量。

1.6 测定指标与方法

1.6.1 qRT-PCR

采用总RNA提取试剂盒提取细胞总RNA,根据说明书要求进行操作。通过白鲨逆转录试剂盒将上述提取的总RNA逆转录为cDNA,总反应体系共20 μL(表1),反应程序见表2。此反应结束后,将逆转录的cDNA样品3倍稀释后,采用白鲨qRT-PCR试剂盒进行上机检测,PCR反应体系见表3,反应程序见表4。基于NCBI提供的基因序列,采用Primer软件完成引物设计,同时通过NCBI验证引物特异性,以确保引物能够准确识别目标基因。引物由生工生物工程(上海)股份有限公司合成。以甘油醛-3-磷酸脱氢酶(GAPDH)作为内参基因,用2-ΔΔCt的方法计算目的基因的mRNA相对表达量。引物序列见表5
表1 cDNA反应体系

Table 1 cDNA reaction system

项目 Items 用量 Volume
SuperRT三代一体化逆转录预混液
SuperRT Ⅲ all-in-one RT mix
1 μL
RNA模板 RNA template ≤1 μg总RNA
无逆转录酶对照混合液
No RT control mix
4 μL
无核酸酶水 Nuclease-free water 补足至20 μL
表2 cDNA反应程序

Table 2 cDNA reaction procedure

步骤
Steps
温度
Temperature/℃
时间
Time/min
1 37 2
2 50 15
3 85 2
表3 PCR反应体系

Table 3 PCR reaction system

项目
Items
用量
Volume/μL
2×通用型SYBR荧光定量预混液
2×universal SYBR qPCR mix
10
上游引物 Primer F (10 μmol/L) 0.5
下游引物 Primer R (10 μmol/L) 0.5
cDNA 1
参比染料 ROX reference dye 0.4
无核糖核酸酶双蒸水
RNase-free ddH2O
补至20
表4 PCR反应程序

Table 4 PCR reaction procedure

反应步骤
Reaction steps
温度
Temperature/℃
持续时间
Duration
循环次数
No. of cycles/次
预变性 Initial denaturation 95 2 min 1
扩增循环 Amplification
变性 Denaturation 95 15 s 40
退火延伸数据采集 Annealing extension data collection 60 30 s 40
熔解曲线分析 Melting curve analysis 根据仪器推荐程序设置
表5 引物序列

Table 5 Primer sequences

基因
Genes
引物序列
Primer sequences (5'—3')
登录号
Accession number
产物大小
Product size/bp
甘油醛-3-磷酸脱氢酶
GAPDH
F:GATAGGCCCACCCAAAAGGG
R:GGATGCGGCTGCGCTT
XM_060411595.1 142
闭锁小带蛋白-1
ZO-1
F:GGACAAAGAGAAGGGTGAGACC
R:GCTCCACTGGCTTCAGGAAC
XM_060401409.1 83
封闭蛋白-1
Claudin-1
F:CCCGGTCAATGCCAGGTATG
R:TTGTTTTCCGGGGACAGGAG
NM_001185016.1 113
闭合蛋白
Occludin
F:GAAGATCAAGTGAGCACCGA
R:TACAATGGCAATGGCAATTCATC
XM_060400238.1 93
B淋巴细胞瘤-2相关X蛋白
BAX
F:AAACTGGTGCTCAAGGCCC
R:TCTTCAGCGACTCAGCCAAG
XM_027978594.3 148
B细胞淋巴瘤-2
Bcl-2
F:GGGGTCATGTGTGTGGAGAG
R:ACAAAGGCATCCCAGCCTC
XM_012103831.5 134
封闭蛋白-4
Claudin-4
F:CCGTCCCCCTTCTTCAATCC
R:TTCTCATGGCCCCAGGTTTC
NM_001185017.2 107
B细胞淋巴瘤-2相关死亡促进因子
BAD
F:TTTCGGAAGACTGAGGTCTGAT
R:CGGCGAAGTTAGGGTTAATCTC
XM_004019650.3 185
半胱天冬蛋白酶-3
Caspase-3
F:CACGGAAGCAAATCAGTGGAC
R:CGACAGGCCATGCCAGTATT
XM_060406953.1 128
半胱天冬蛋白酶-8
Caspase-8
F:CCAGGATTCGCCTCTGGTAA
R:CCAGGATTCGCCTCTGGTAA
XM_012142477.5 130
半胱天冬蛋白酶-9
Caspase-9
F:TGACCTGACTGCCAAGCAAA
R:CAGCCGTGAGAGAGGATGAC
XM_060396596.1 102
肿瘤蛋白p53
p53
F:CAGGGCTCATTCTAGCCACCTG
R:AGGGTGGGGATGTCAACCA
NM_001009403.1 136

1.6.2 蛋白质印迹(Western blot)

收集干预后的细胞,使用放射免疫沉淀试验(RIPA)裂解液提取细胞总蛋白,再使用BCA试剂盒测定各样品的蛋白浓度,严格按照试剂盒说明书进行操作。根据结果取适量蛋白样本,加适量5×蛋白上样缓冲液,充分混匀后于沸水浴中变性10 min,离心后备用。根据目的蛋白分子量配置浓缩胶和分离胶,每孔加入等量蛋白样品,调电压至140 V进行电泳,然后将蛋白转移至聚偏二氟乙烯(PVDF)膜。将膜置于含5%脱脂奶粉溶液中,室温摇床封闭1 h,加入按照抗体说明书配制且适当比例稀释的一抗,4 ℃摇床孵育过夜。孵育结束后用1×三羟甲基氨基甲烷盐缓冲液(TBST)洗膜3次,每次持续10 min,再放入稀释好的二抗,室温摇床孵育1 h,并用1×TBST洗膜3次,每次10 min。采用ECL发光液显色,凝胶成像系统成像后,使用ImageJ软件进行分析条带灰度值。以β-肌动蛋白(β-actin)为内参蛋白对灰度值进行校准,目的蛋白相对表达量采用“目的蛋白灰度值/内参蛋白灰度值”计算,并以对照组归一化表示。抗体信息见表6
表6 抗体信息

Table 6 Antibody information

抗体名称
Names of antibodies
稀释比例
Dilution ratio
生产商
Manufacturers
货号
Catalog number
β-肌动蛋白 β-actin 1∶2 000 优抗 UM4001
Toll样受体4 TLR4 1∶1 000 Proteintech 19811-1-AP
髓样分化因子88 MyD88 1∶1 000 CST #4283
细胞外信号调节激酶 ERK 1∶1 000 CST #4695
c-Jun氨基末端激酶 JNK 1∶1 000 CST #9252
p38丝裂原活化蛋白激酶p38 1∶1 000 CST #8690
磷酸化细胞外信号调节激酶 P-ERK 1∶1 000 CST #4370
磷酸化c-Jun氨基末端激酶 P-JNK 1∶1 000 CST #9255
磷酸化p38丝裂原活化蛋白激酶P-p38 1∶1 000 CST #4511
二抗 Secondary antibody
羊抗兔免疫球蛋白G-辣根过氧化物酶偶联物
Goat anti-rabbit IgG-HRP
1∶4 000 Affinity S0001
羊抗小鼠免疫球蛋白G-辣根过氧化物酶偶联物
Goat anti-mouse IgG-HRP
1∶4 000 Affinity S0002

1.7 数据统计与分析

经Excel 2019初步整理数据后,采用SPSS 27.0软件进行单因素方差分析(one-way ANOVA),2组间采用最小显著差异(LSD)法进行多重比较,3组间采用Duncan氏法进行多重比较。结果以“平均值±标准差”的形式表示,P<0.05表示差异显著,图片均通过GraphPad Prism 10.0绘制。

2 结果与分析

2.1 LPS对瘤胃上皮细胞紧密连接蛋白及凋亡相关基因表达的影响

通过0、50、100 μg/mL LPS作用于瘤胃上皮细胞24 h来筛选最佳的LPS浓度并建立细胞损伤模型。由图1可知,与0 μg/mL LPS(对照)相比,50 μg/mL LPS作用下细胞闭锁小带蛋白-1(ZO-1)的mRNA相对表达量显著降低(P<0.05),50和100 μg/mL LPS作用下细胞封闭蛋白-1(Claudin-1)、Occludin和B淋巴细胞瘤-2(Bcl-2)的mRNA相对表达量以及Bcl-2/B淋巴细胞瘤-2相关X蛋白(BAX)的值显著降低(P<0.05);50和100 μg/mL LPS作用下细胞BAX的mRNA相对表达量显著增加(P<0.05),且50 μg/mL LPS时显著高于100 μg/mL LPS时(P<0.05)。因此,本试验选取50 μg/mL LPS作为诱导条件浓度建立模型。
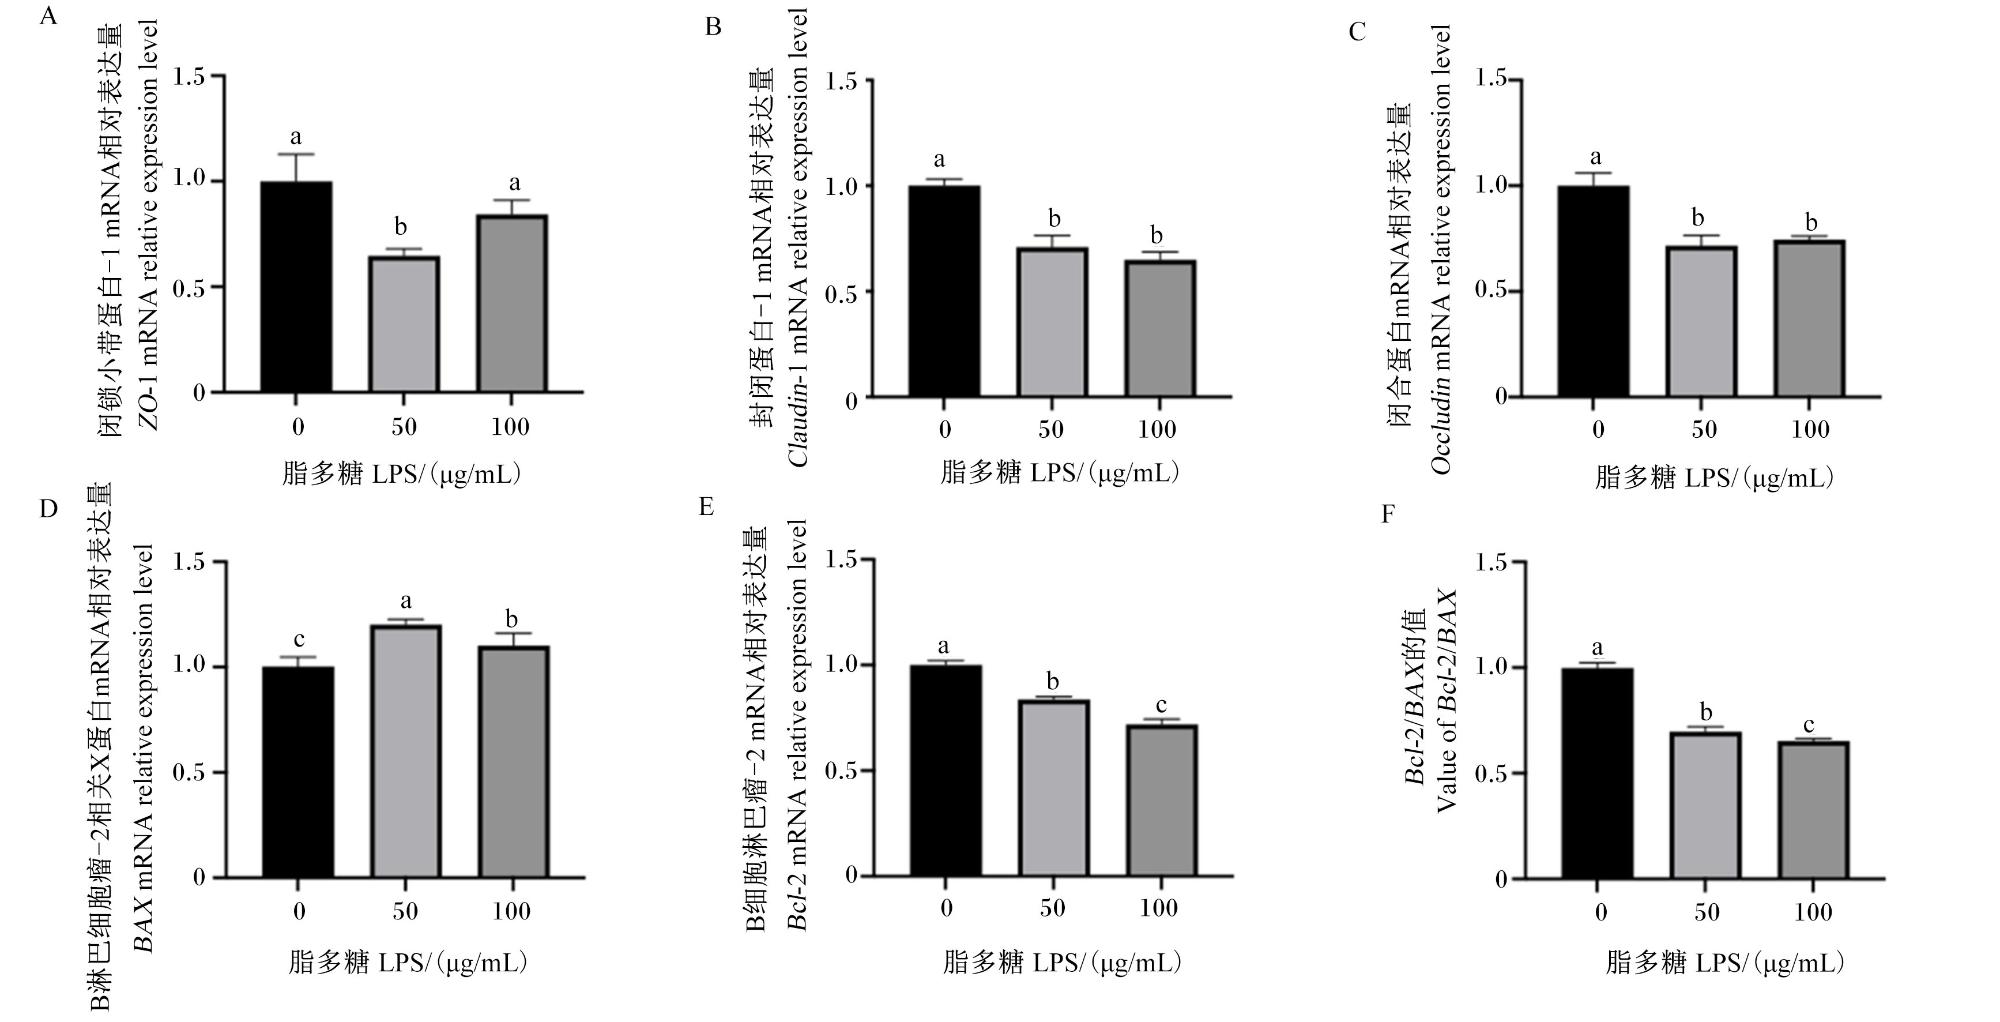
图1 不同LPS浓度对瘤胃上皮细胞紧密连接蛋白及凋亡相关基因表达的影响

数据柱无字母或相同字母表示差异不显著(P>0.05),不同小写字母表示差异显著(P<0.05)。下图同。

Fig.1 Effects of different LPS concentrations on expression of tight junction protein and apoptotic related genes in rumen epithelial cells

Value columns with no letter or the same letter mean no significant difference (P>0.05), while with different small letters mean significant difference (P<0.05). The same as below.

2.2 AOS对瘤胃上皮细胞紧密连接蛋白及凋亡相关基因表达的影响

设置0和15 μg/mL AOS作用于瘤胃上皮细胞18 h,探究AOS对瘤胃上皮细胞的毒性影响,由图2可知,与0 μg/mL AOS(对照)相比,15 μg/mL AOS作用下细胞Claudin-1、OccludinBcl-2的mRNA相对表达量以及Bcl-2/BAX的值均显著提高(P<0.05),BAX的mRNA相对表达量显著下降(P<0.05),ZO-1的mRNA相对表达量无显著差异(P>0.05)。结果表明,15 μg/mL AOS对瘤胃上皮细胞无毒性影响,本试验选用15 μg/mL AOS作为试验干预浓度可行。
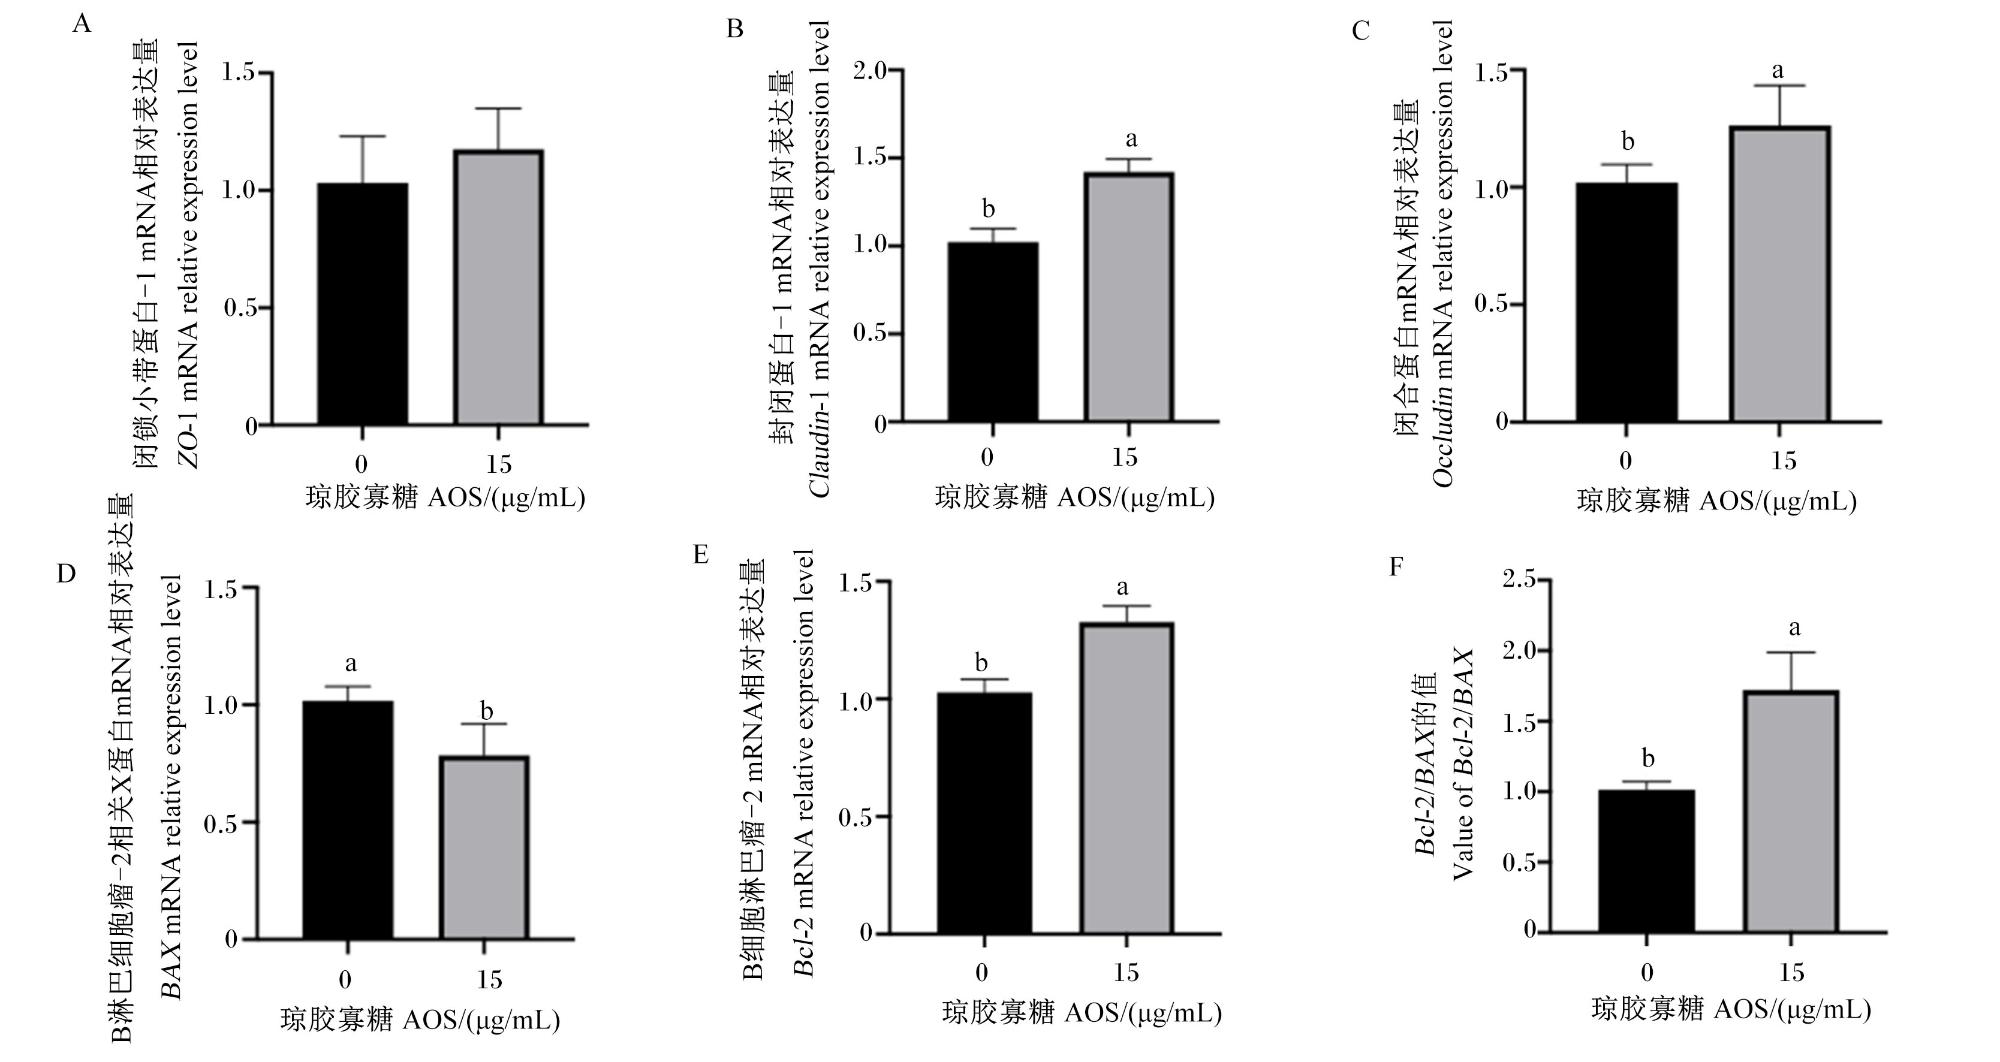
图2 AOS对瘤胃上皮细胞紧密连接蛋白及凋亡相关基因表达的影响

Fig.2 Effects of AOS on expression of tight junction protein and apoptotic related genes in rumen epithelial cells

2.3 AOS对LPS诱导的瘤胃上皮细胞紧密连接蛋白及凋亡相关基因表达的影响

图3可知,A+L组ZO-1、Claudin-1、Occludin和封闭蛋白-4(Claudin-4)的mRNA相对表达量均显著高于L组(P<0.05);A+L组Claudin-4的mRNA相对表达量显著高于对照组(P<0.05);A+L组ZO-1、Claudin-1、Occludin的mRNA相对表达量均高于对照组,但差异不显著(P>0.05)。
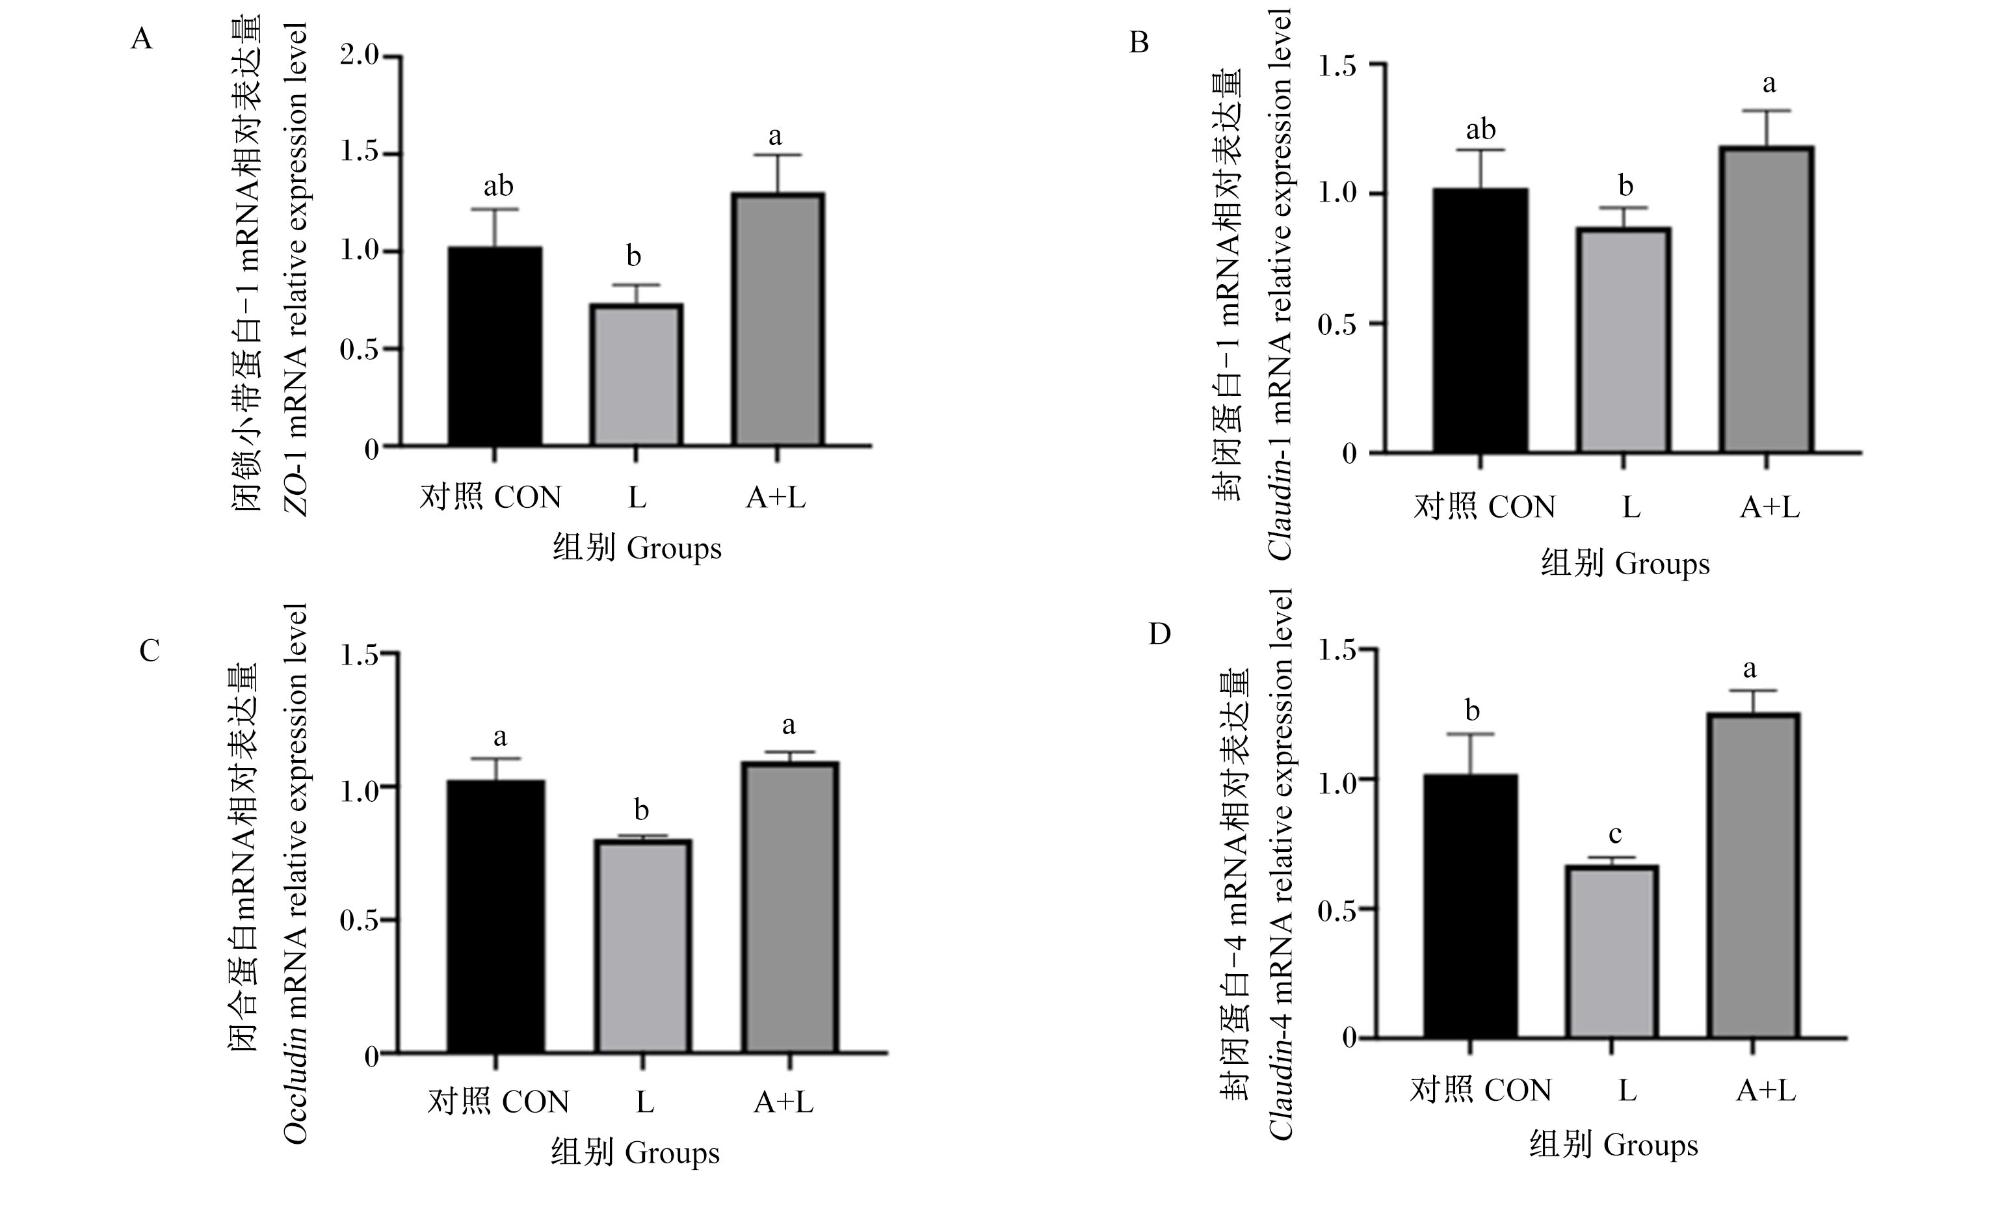
图3 AOS对LPS诱导的瘤胃上皮细胞紧密连接蛋白基因表达的影响

Fig.3 Effects of AOS on gene expression of tight junction protein in LPS-induced rumen epithelial cells

图4可知,A+L组Bcl-2的mRNA相对表达量和Bcl-2/BAX的值显著高于L组(P<0.05),A+L组半胱天冬蛋白酶-3(Caspase-3)、半胱天冬蛋白酶-8(Caspase-8)、B淋巴细胞瘤-2相关死亡促进因子(BAD)和半胱天冬蛋白酶-9(Caspase-9)的mRNA相对表达量显著低于L组(P<0.05);A+L组Bcl-2和BAX的mRNA相对表达量显著高于对照组(P<0.05),A+L组Caspase-3、Caspase-8、BADCaspase-9的mRNA相对表达量以及Bcl-2/BAX的值与对照组差异不显著(P>0.05);肿瘤蛋白p53(p53)的mRNA相对表达量在各组间差异不显著(P>0.05)。
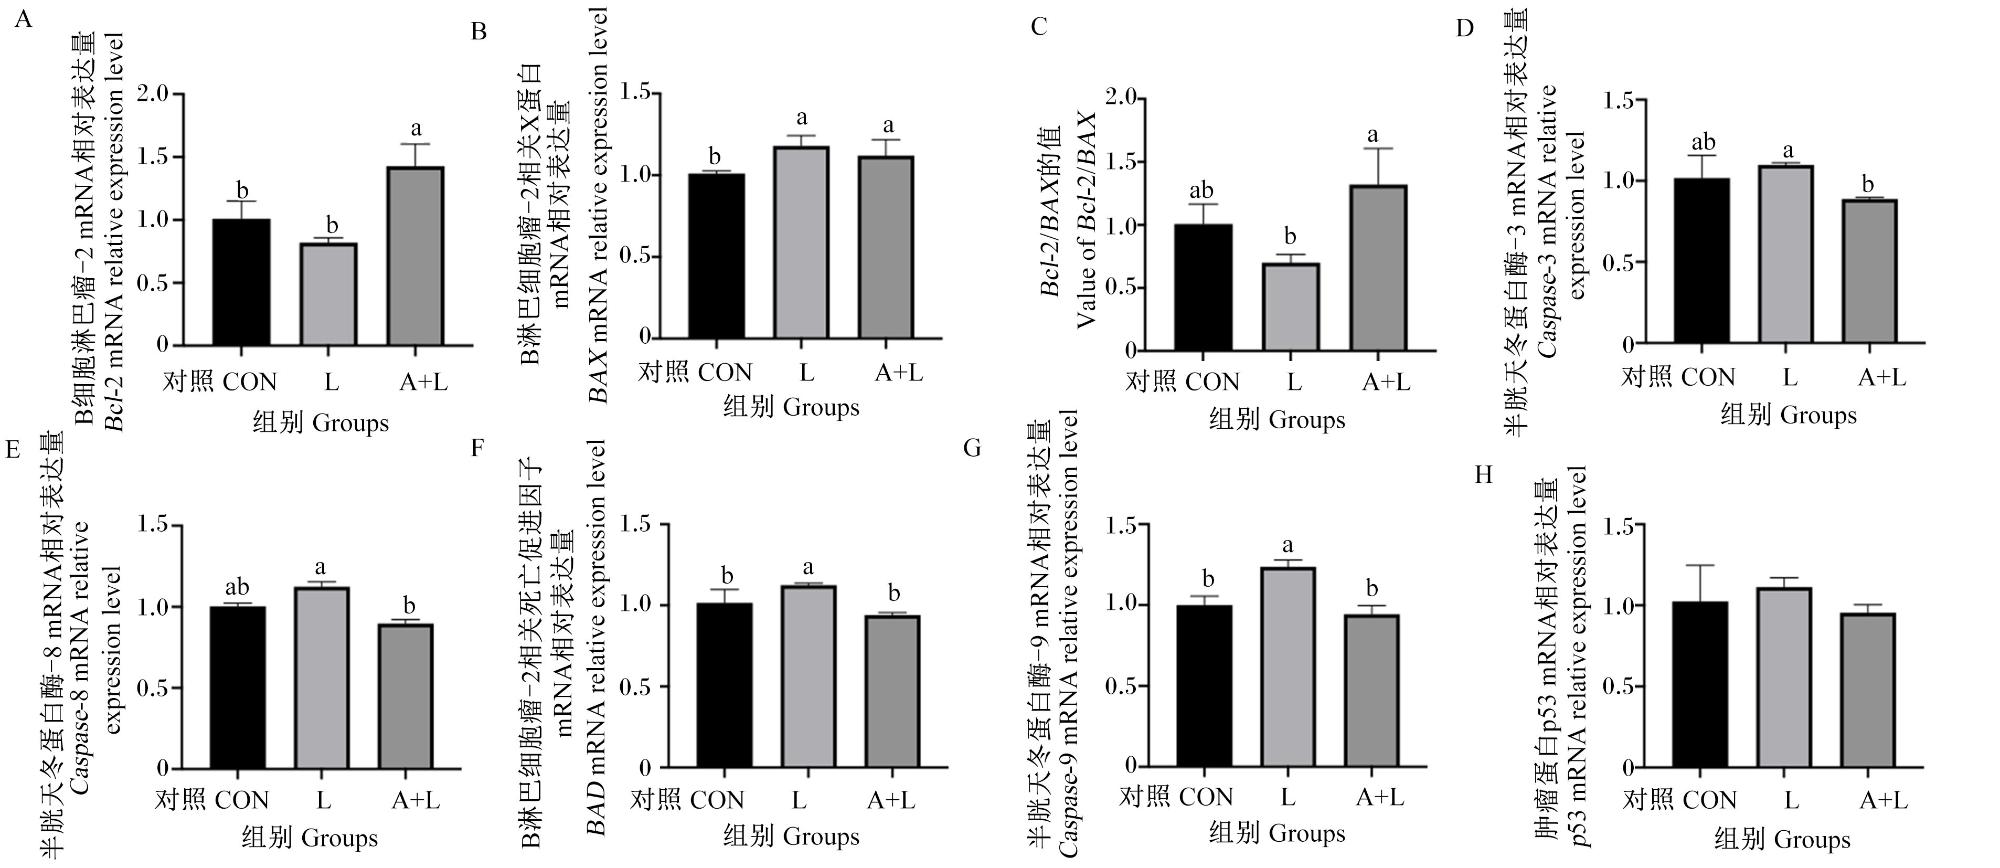
图4 AOS对LPS诱导的瘤胃上皮细胞凋亡相关基因表达的影响

Fig.4 Effects of AOS on expression of apoptosis-related genes in LPS-induced rumen epithelial cells

2.4 AOS对LPS诱导的瘤胃上皮细胞TLR4/MAPK信号通路相关蛋白表达的影响

图5可知,A+L组TLR4和髓样分化因子88(myeloid differentiation factor 88,MyD88)的蛋白相对表达量显著低于L组(P<0.05),显著高于对照组(P<0.05);A+L组的c-Jun氨基末端激酶(JNK)、细胞外信号调节激酶(ERK)和p38丝裂原活化蛋白激酶(p38)的相对磷酸化水平均显著低于L组(P<0.05),显著高于对照组(P<0.05);JNK、ERK和p38的蛋白相对表达量在各组间无显著差异(P>0.05)。
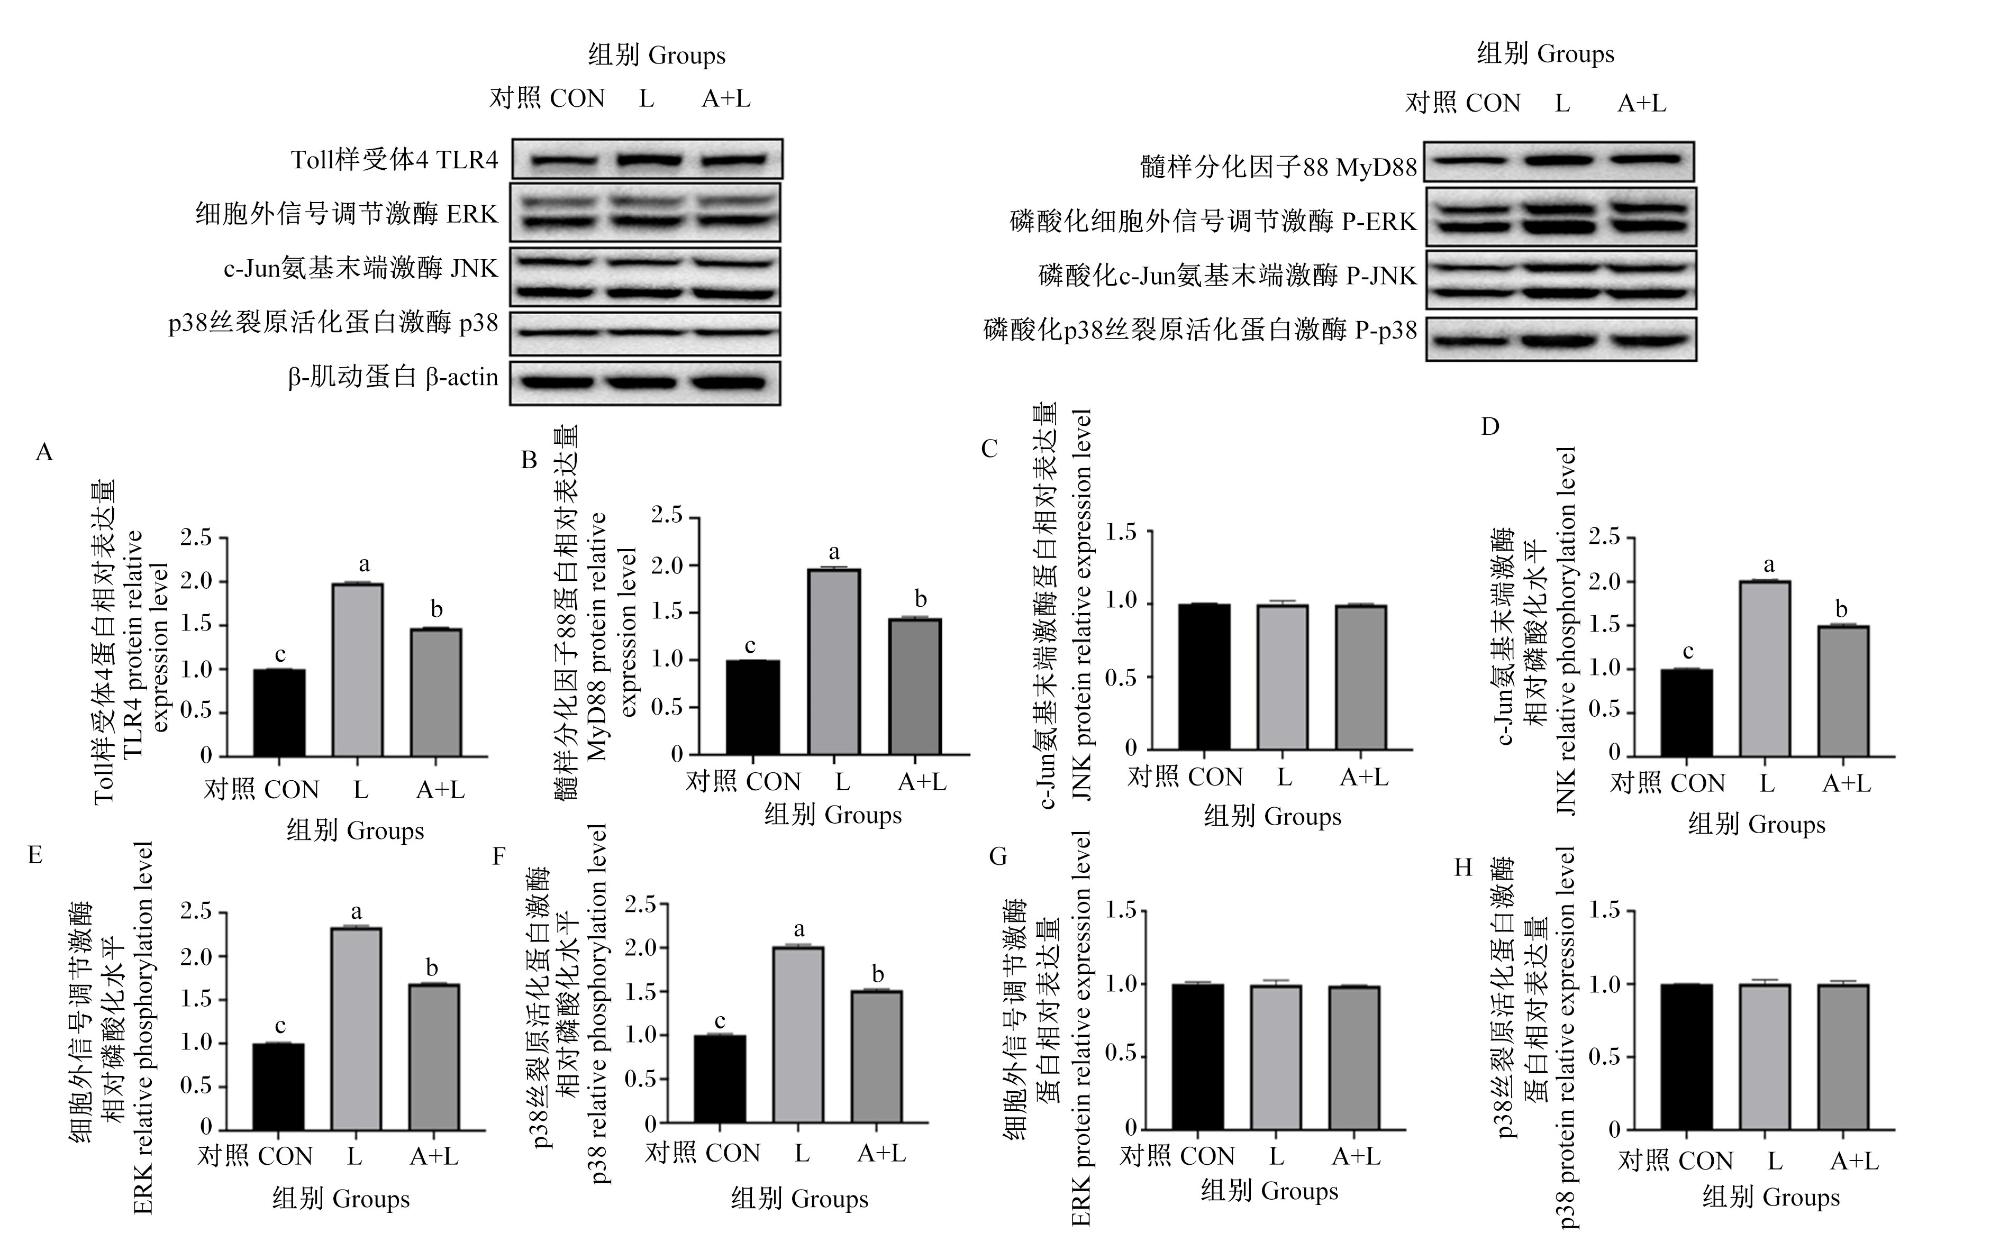
图5 AOS对LPS诱导的瘤胃上皮细胞TLR4/MAPK信号通路相关蛋白表达的影响

Fig.5 Effects of AOS on expression of TLR4/MAPK signaling pathway-related proteins in LPS-induced rumen epithelial cells

3 讨论

3.1 AOS对紧密连接关键蛋白的影响

紧密连接是由30多种结构或功能蛋白组成的大分子复合物,其中ZO-1、封闭蛋白(Claudin)和Occludin是维持其栅栏和屏障功能的关键蛋白。研究发现,细胞间紧密连接的破坏可诱发炎症反应,因此,维持紧密连接蛋白的正常表达量被认为是调控瘤胃上皮功能的有效途径[27-30]。LPS是SARA产生过程中胃肠道革兰氏阴性菌失衡所释放的关键致病成分之一,它不仅会增加瘤胃壁的通透性、破坏瘤胃上皮结构、损坏瘤胃屏障功能,还会促进IL-1β、白细胞介素-8(IL-8)、白细胞介素-10(IL-10)和肿瘤坏死因子-α(TNF-α)等炎症细胞因子的表达和相关疾病发展[31-34]。Zou等[35]研究发现,小鼠脑组织微血管内皮细胞中ZO-1蛋白表达量与LPS的浓度和刺激时间呈负相关。有研究表明,LPS能显著下调Caco-2细胞中Claudin-1、OcludinZO-1的mRNA表达量,从而引起Caco-2细胞的屏障功能障碍[36]。经大量研究证实,AOS可通过调控紧密连接相关蛋白表达量,对细胞或组织屏障起到保护作用。Wang等[37]研究指出,AOS可通过提高Claudin、Occludin、Ki67和黏蛋白2(mucin2,Muc2)等肠道屏障相关蛋白的表达量,维持肠道屏障功能完整性,从而缓解呕吐毒素(DON)诱导的小鼠肠道炎症。Yuan等[38]发现,AOS可通过提高Muc2、ZO-1和闭合蛋白-1(Occludin-1)的表达量修复葡聚糖硫酸钠(DSS)破坏的肠道屏障。此外,张紫贤[39]的研究表明,50和100 μg/mL新琼寡糖可显著提高ZO-1、Claudin-1和Occludin的mRNA相对表达量,保护Caco-2细胞免受DSS诱导的上皮屏障破坏。在本试验中,50 μg/mL LPS通过降低ZO-1、Claudin-1和Occludin的mRNA相对表达量,进而破坏绵羊瘤胃上皮细胞屏障功能,而15 μg/mL AOS作用下ZO-1、Claudin-1和Occludin的mRNA相对表达量显著提高,说明一定浓度的AOS能维持细胞屏障功能的完整性,缓解LPS诱导的瘤胃上皮细胞损伤,这与Zou等[35]、Wang等[37]、Yuan等[38]的结果一致。

3.2 AOS对细胞凋亡的影响

细胞凋亡是细胞受内、外刺激后启动程序性死亡的生物学过程,p53作为关键上游调控因子,通过调控Bcl-2家族蛋白(抗凋亡蛋白Bcl-2与促凋亡蛋白BAX的平衡)改变线粒体膜通透性,进而启动Caspases家族的级联反应,最终介导细胞发生程序性死亡[40-42]。LPS可通过激活下游信号通路直接或间接调控凋亡相关基因的表达,进而诱导细胞凋亡进程。Lin等[43]使用LPS干预A549细胞后,BAXBcl-2拮抗剂杀伤剂(Bak)、Caspase-3和炎症细胞因子的表达显著上调。Yang等[44]也发现LPS能够上调A549细胞Caspase-9、Caspase-3及BAX表达,下调Bcl-2表达,进而促进肺泡上皮细胞中p53介导的凋亡过程。在本试验中,50、100 μg/mL LPS能显著降低Bcl-2的mRNA相对表达量和Bcl-2/BAX的值,显著增加促凋亡蛋白BAX的mRNA相对表达量,诱导细胞凋亡,与Yang等[44]研究结果一致。AOS可通过调控Bcl-2家族蛋白的平衡,抑制Caspase家族的激活,从而抑制外源毒性物质介导的细胞凋亡,达到缓解炎症相关疾病的作用。全浩玮等[45]研究发现,AOS可降低由DON引起的Caspase-3和Caspase-1 mRNA高表达,抑制细胞过度凋亡,从而缓解DON诱导的小鼠肝脏损伤。Wang等[11]研究表明,AOS可显著缓解过氧化氢引起的细胞凋亡异常,从而提高Vero细胞活性。叶嫱[46]利用蛋白质印迹检测,结果显示,AOS能剂量依赖性地下调Caspase-3的表达,提高Bcl-2/BAX的值,缓解6-羟基多巴胺诱导的人体神经母细胞瘤细胞过度凋亡。在本试验中,A+L组的Caspase-3、Caspase-8、BADCaspase-9的mRNA相对表达量显著低于L组,Bcl-2的mRNA相对表达量和Bcl-2/BAX的值均显著高于L组,这与全浩玮等[45]和叶嫱[46]的结果一致。本试验结果表明,LPS进入瘤胃上皮细胞后,引起抗凋亡因子与促凋亡因子失衡,从而导致瘤胃上皮细胞凋亡;而AOS通过调节凋亡相关基因的表达,抑制瘤胃上皮细胞凋亡。

3.3 AOS对LPS介导的TLR4/MAPK信号通路的影响

MAPK信号通路是细胞中高度保守的信号转导网络,主要由ERK、p38和JNK这3种MAPK激酶构成;当细胞受到刺激时,该通路会通过逐级磷酸化反应激活下游转录因子,进而调控IL-1β、IL-6、TNF-α等炎性因子的转录、合成与释放,最终加剧炎症反应[47-48]。LPS可通过活化TLR4,激活其下游MyD88,后者可转化生长因子β激活激酶1,进而激活MAPK通路[49-50]。Wang等[51]研究结果表明,LPS通过TLR4-p38-热休克蛋白27(Hsp27)信号通路诱导肺上皮细胞通透性增加,导致肺泡屏障功能障碍。Lin等[43]也证实用LPS作用于A549细胞,可提高TLR4、核因子-κB(NF-κB)、MAPK蛋白的表达量和炎症细胞因子的分泌。而AOS可通过降低MAPK信号通路相关激酶的磷酸化,从而抑制TLR4/MAPK信号通路,缓解机体的炎症损伤。Wang等[21]研究发现,125、250和500 μg/mL AOS分别将ERK1/2的磷酸化水平从正常对照组的3.9倍显著降至约3.6、2.1和2.0倍,将JNK的磷酸化水平从正常对照组的5.3倍降至约4.4、3.2和2.4倍,有效阻断由LPS诱导MAPK信号通路激活。叶嫱[46]也指出,AOS能抑制p38、ERK1/2和JNK的磷酸化水平,参与神经保护作用。还有研究发现,奇数聚合度的AOS可显著逆转高脂饮食诱导的TLR4表达上调,以及核因子NF-κB p65亚基(p65)、ERK1/2和JNK磷酸化水平的增加,从而保护肠道屏障功能的完整性[52]。在本试验中,经LPS刺激后,瘤胃上皮细胞TLR4蛋白相对表达量显著增加,ERK、JNK和p38的相对磷酸化水平也显著增加,这表明LPS通过激活瘤胃上皮细胞中MAPKs家族激酶使其发生磷酸化,引起细胞炎症反应,与Lin等[43]研究结果一致。经AOS提前干预后,LPS诱导的瘤胃上皮细胞TLR4、MyD88蛋白相对表达量及ERK、JNK、p38的相对磷酸化水平均显著下降,这表明AOS能够通过抑制TLR4/MAPK信号通路的激活,减轻炎症反应,进而缓解LPS诱导的细胞损伤。

4 结论

在本试验条件下,AOS可通过调控紧密连接蛋白及凋亡相关基因的表达,并抑制MAPK信号通路,从而缓解LPS诱导的瘤胃上皮细胞损伤。
[1]
PAN X H, YANG L, XUE F G, et al. Relationship between thiamine and subacute ruminal acidosis induced by a high-grain diet in dairy cows[J]. Journal of Dairy Science, 2016, 99(11):8790-8801.

DOI PMID

[2]
HUA C F, TIAN J, TIAN P, et al. Feeding a high concentration diet induces unhealthy alterations in the composition and metabolism of ruminal microbiota and host response in a goat model[J]. Frontiers in Microbiology, 2017, 8:138.

DOI PMID

[3]
HUO W J, ZHU W Y, MAO S Y. Impact of subacute ruminal acidosis on the diversity of liquid and solid-associated bacteria in the rumen of goats[J]. World Journal of Microbiology and Biotechnology, 2014, 30(2):669-680.

DOI

[4]
申静. 日粮瘤胃可降解淀粉调控奶山羊瘤胃与肝脏代谢的机制[D]. 博士学位论文. 杨凌: 西北农林科技大学, 2020.

SHEN J. Effects of dietary rumen degradable starch on rumen and liver metabolism in dairy goats[D]. Ph.D.Thesis. Yangling: Northwest A & F University, 2020. (in Chinese)

[5]
ELMHADI M E, ALI D K, KHOGALI M K, et al. Subacute ruminal acidosis in dairy herds:microbiological and nutritional causes,consequences,and prevention strategies[J]. Animal Nutrition, 2022, 10:148-155.

DOI

[6]
BAASKE L, GÄBEL G, DENGLER F. Ruminal epithelium:a checkpoint for cattle health[J]. Journal of Dairy Research, 2020, 87(3):322-329.

DOI

[7]
SHA Y Z, HE Y Y, LIU X, et al. Rumen epithelial development- and metabolism-related genes regulate their micromorphology and VFAs mediating plateau adaptability at different ages in Tibetan sheep[J]. International Journal of Molecular Sciences, 2022, 23(24):16078.

DOI

[8]
KHAFIPOUR E, KRAUSE D O, PLAIZIER J C. A grain-based subacute ruminal acidosis challenge causes translocation of lipopolysaccharide and triggers inflammation[J]. Journal of Dairy Science, 2009, 92(3):1060-1070.

DOI PMID

[9]
DE ANDRADE R C L C, DE ARAÚJO N K, TORRES-RÊGO M, et al. Production and characterization of chitooligosaccharides:evaluation of acute toxicity,healing,and anti-inflammatory actions[J]. International Journal of Molecular Sciences, 2021, 22(19):10631.

DOI

[10]
GUO Z L, WEI Y S, ZHANG Y, et al. Carrageenan oligosaccharides:a comprehensive review of preparation,isolation,purification,structure,biological activities and applications[J]. Algal Research, 2022, 61:102593.

DOI

[11]
WANG L, FU X T, HYUN J, et al. In vitro and in vivo protective effects of agaro-oligosaccharides against hydrogen peroxide-stimulated oxidative stress[J]. Polymers, 2023, 15(7):1612.

DOI

[12]
PRAIBOON J, CHANTORN S, KRANGKRATOK W, et al. Evaluating the prebiotic properties of agar oligosaccharides obtained from the red alga Gracilaria fisheri via enzymatic hydrolysis[J]. Plants, 2023, 12(23):3958.

DOI

[13]
HIGASHIMURA Y, NAITO Y, TAKAGI T, et al. Protective effect of agaro-oligosaccharides on gut dysbiosis and colon tumorigenesis in high-fat diet-fed mice[J]. American Journal of Physiology-Gastrointestinal and Liver Physiology, 2016, 310(6):G367-G375.

[14]
FAN S H, ZHANG Q Y, SHE J Y, et al. Agar oligosaccharides improve the intestinal health of induced-aging mice by maintaining intestinal homeostasis via balancing the ISCs proliferation and differentiation[J]. European Journal of Nutrition, 2025, 64(1):9.

DOI

[15]
LONG J, YE Z Y, LI X F, et al. Enzymatic preparation and potential applications of agar oligosaccharides:a review[J]. Critical Reviews in Food Science and Nutrition, 2024, 64(17):5818-5834.

DOI

[16]
ZHANG X, AWEYA J J, HUANG Z X, et al. In vitro fermentation of Gracilaria lemaneiformis sulfated polysaccharides and its agaro-oligosaccharides by human fecal inocula and its impact on microbiota[J]. Carbohydrate Polymers, 2020, 234:115894.

DOI

[17]
XIE X T, CHEONG K L. Recent advances in marine algae oligosaccharides:structure,analysis,and potential prebiotic activities[J]. Critical Reviews in Food Science and Nutrition, 2022, 62(28):7703-7717.

DOI

[18]
ZHU LA A L T, LI D P, CHENG Z Q, et al. Enzymatically prepared neoagarooligosaccharides improve gut health and function through promoting the production of spermidine by Faecalibacterium in chickens[J]. Science of the Total Environment, 2024, 912:169057.

DOI

[19]
CHEN X D, FU X T, HUANG L Q, et al. Agar oligosaccharides:a review of preparation,structures,bioactivities and application[J]. Carbohydrate Polymers, 2021, 265:118076.

DOI

[20]
WANG C, LONG J, LI X F, et al. Preparation of agar polysaccharides and biological activities and relationships of agar-derived oligosaccharides and monosaccharides:a review[J]. International Journal of Biological Macromolecules, 2025, 295:139552.

DOI

[21]
WANG W, LIU P, HAO C, et al. Neoagaro-oligosaccharide monomers inhibit inflammation in LPS-stimulated macrophages through suppression of MAPK and NF-κB pathways[J]. Scientific Reports, 2017, 7(1):44252.

DOI

[22]
SHIRAI I, KARASAWA K, KODAIRA Y, et al. Intestinal permeability of agaro-oligosaccharides:transport across Caco-2 cell monolayers and pharmacokinetics in rats[J]. Frontiers in Nutrition, 2022, 9:996607.

DOI

[23]
ZOU Y X, FU X T, LIU N N, et al. The synergistic anti-inflammatory activities of agaro-oligosaccharides with different degrees of polymerization[J]. Journal of Applied Phycology, 2019, 31(4):2547-2558.

DOI

[24]
MA C, WANG Y F, ZHANG G C, et al. Agar oligosaccharides ameliorate the intestinal inflammation of male Drosophila melanogaster via modulating the microbiota,and immune and cell autophagy[J]. Food Science & Nutrition, 2021, 9(2):1202-1212.

DOI

[25]
XU Q Y, ZHANG Q Y, FAN S H, et al. Agar oligosaccharides improve metabolic health in HFD-fed D. melanogaster through regulating gut homeostasis via the Acetobacter persici-acetic acid-insulin/IGF-1 signaling axis[J]. International Journal of Biological Macromolecules, 2025, 328(Pt 1):147588.

DOI

[26]
BRENDA S, NAWIYA H, CHITTIPONG T, et al. Gracilaria fisheri oligosaccharides ameliorate inflammation and colonic epithelial barrier dysfunction in mice with acetic acid-induced colitis[J]. Asian Pacific Journal of Tropical Biomedicine, 2021, 11(10):440-449.

DOI

[27]
SAITO A C, HIGASHI T, CHIBA H. Tight-junction strand networks and tightness of the epithelial barrier[J]. Microscopy, 2023, 72(3):213-225.

DOI

[28]
OMONIJO F A, LIU S X, HUI Q R, et al. Thymol improves barrier function and attenuates inflammatory responses in porcine intestinal epithelial cells during lipopolysaccharide (LPS)-induced inflammation[J]. Journal of Agricultural and Food Chemistry, 2019, 67(2):615-624.

DOI PMID

[29]
LIU J H, LI H W, ZHU W Y, et al. Dynamic changes in rumen fermentation and bacterial community following rumen fluid transplantation in a sheep model of rumen acidosis:implications for rumen health in ruminants[J]. The FASEB Journal, 2019, 33(7):8453-8467.

DOI

[30]
丛馨, 张艳, 俞光岩, 等. 上皮细胞间紧密连接功能的研究进展[J]. 生理学报, 2016, 68(4):492-504.

CONG X, ZHANG Y, YU G Y, et al. Research progress on the function of epithelial tight junction[J]. Acta Physiologica Sinica, 2016, 68(4):492-504. (in Chinese)

[31]
BERTANI B, RUIZ N. Function and biogenesis of lipopolysaccharides[J]. EcoSal Plus, 2018, 8(1):10.1128/ecosalplus.ESP-0001-2018.[2025-10-21].https://pmc.ncbi.nlm.nih.gov/articles/PMC6091223/.

[32]
APERCE C C, AMACHAWADI R, VAN BIBBER-KRUEGER C L, et al. Effects of menthol supplementation in feedlot cattle diets on the fecal prevalence of antimicrobial-resistant Escherichia coli[J]. PLoS One, 2016, 11(12):e0168983.

DOI

[33]
STEELE N M, SWARTZ T H, ENGER K M, et al. The effect of J 5 bacterins on clinical,behavioral,and antibody response following an Escherichia coli intramammary challenge in dairy cows at peak lactation[J]. Journal of Dairy Science, 2019, 102(12):11233-11249.

DOI

[34]
CHAE B S. Pretreatment of low-dose and super-low-dose LPS on the production of in vitro LPS-induced inflammatory mediators[J]. Toxicological Research, 2018, 34(1):65-73.

DOI

[35]
ZOU P C, YANG F, DING Y J, et al. Lipopolysaccharide downregulates the expression of ZO-1 protein through the Akt pathway[J]. BMC Infectious Diseases, 2022, 22(1):774.

DOI PMID

[36]
CHU C, RU H, CHEN Y Y, et al. Gallic acid attenuates LPS-induced inflammation in Caco-2 cells by suppressing the activation of the NF-κB/MAPK signaling pathway[J]. Acta Biochimica et Biophysica Sinica, 2024, 56(6):905-915.

DOI PMID

[37]
WANG Q F, WANG Y W, WANG Y, et al. Agaro-oligosaccharides mitigate deoxynivalenol-induced intestinal inflammation by regulating gut microbiota and enhancing intestinal barrier function in mice[J]. Food & Function, 2024, 15(7):3380-3394.

[38]
YUAN L, LIU C H, LI B L, et al. Multi-omics analysis reveals that agaro-oligosaccharides with different degrees of polymerization alleviate colitis in mice by regulating intestinal flora and arginine synthesis[J]. Food & Function, 2024, 15(21):10628-10643.

[39]
张紫贤. 琼胶酶自组装重组表达及新琼寡糖抗溃疡性结肠炎机理研究[D]. 硕士学位论文. 福州: 福州大学, 2022.

ZHANG Z X. Recombinant expression of self-assembled agarase and anti-ulcerative colitis mechanism of neoagarooligo saccharides[D]. Master’s Thesis. Fuzhou: Fuzhou University, 2022. (in Chinese)

[40]
王艺如. 热应激和非酯化脂肪酸诱导奶牛卵巢颗粒细胞凋亡的机制研究[D]. 博士学位论文. 南京: 南京农业大学, 2021.

WANG Y R. The study on the mechanism of bovine ovary granulosa cells apoptosis induced by heat stress and non-esterified fatty acid[D]. Ph.D.Thesis. Nanjing: Nanjing Agricultural University, 2021. (in Chinese)

[41]
BUZUN K, GORNOWICZ A, LESYK R, et al. Autophagy modulators in cancer therapy[J]. International Journal of Molecular Sciences, 2021, 22(11):5804.

DOI

[42]
SAHOO G, SAMAL D, KHANDAYATARAY P, et al. A review on caspases:key regulators of biological activities and apoptosis[J]. Molecular Neurobiology, 2023, 60(10):5805-5837.

DOI

[43]
LIN J L, LI J M, SHU M, et al. The rCC16 protein protects against LPS-induced cell apoptosis and inflammatory responses in human lung pneumocytes[J]. Frontiers in Pharmacology, 2020, 11:1060.

DOI PMID

[44]
YANG R H, YANG H Z, LI W Q, et al. Lianhuaqingwen alleviates p53-mediated apoptosis in alveolar epithelial cells to prevent LPS-induced ALI[J]. Journal of Pharmacy and Pharmacology, 2022, 74(8):1117-1124.

DOI

[45]
全浩玮, 王庆凤, 王毓甜, 等. 琼胶寡糖缓解呕吐毒素诱导小鼠肝脏损伤的作用效果与机制[J]. 动物营养学报, 2023, 35(10):6737-6747.

DOI

QUAN H W, WANG Q F, WANG Y T, et al. Effects and mechanism of agaro-oligosaccharide on liver injury of mice induced by deoxynivalenol[J]. Chinese Journal of Animal Nutrition, 2023, 35(10):6737-6747. (in Chinese)

DOI

[46]
叶嫱. 琼五糖抗6-OHDA诱导SH-SY5Y细胞神经损伤作用研究[D]. 硕士学位论文. 青岛: 中国海洋大学, 2019.

YE Q. Neuroprotective effects of agaropentaose against 6-OHDA-induced SH-SY5Y cell injury[D]. Master’s Thesis. Qingdao: Ocean University of China, 2019. (in Chinese)

[47]
ZHAO H, DINH T H, WANG Y F, et al. The roles of MAPK signaling pathway in ovarian folliculogenesis[J]. Journal of Ovarian Research, 2025, 18(1):152.

DOI PMID

[48]
孙亚萍, 霍瑞卿, 赵敏菡, 等. 益气活血化浊解毒方调节脂多糖和TLR4/MyD88/MAPK信号通路减轻大鼠脑缺血再灌注损伤研究[J]. 中华中医药杂志, 2023, 38(12):5997-6002.

SUN Y P, HUO R Q, ZHAO M H, et al. Study of Yiqi Huoxue Huazhuo Jiedu formula on reducing cerebral ischemia reperfusion injury in rats by regulating lipolysaccharides and TLR4/MyD88/MAPK signaling pathway[J]. China Journal of Traditional Chinese Medicine and Pharmacy, 2023, 38(12):5997-6002. (in Chinese)

[49]
CAVALLA F, BIGUETTI C C, LETRA A, et al. TLR4 Asp299Gly SNP (rs4986790) protects from periodontal inflammatory destruction by altering TLR4 susceptibility to LPS stimulation[J]. Biology, 2025, 14(7):894.

DOI

[50]
LI X, ZHONG C Q, YIN Z Y, et al. Data-driven modeling identifies TIRAP-independent MyD88 activation complex and myddosome assembly strategy in LPS/TLR4 signaling[J]. International Journal of Molecular Sciences, 2020, 21(9):3061.

DOI

[51]
WANG W J, WENG J, YU L, et al. Role of TLR4-p38 MAPK-Hsp27 signal pathway in LPS-induced pulmonary epithelial hyperpermeability[J]. BMC Pulmonary Medicine, 2018, 18(1):178.

DOI PMID

[52]
WANG X L, YANG Z M, XU X, et al. Odd-numbered agaro-oligosaccharides alleviate type 2 diabetes mellitus and related colonic microbiota dysbiosis in mice[J]. Carbohydrate Polymers, 2020, 240:116261.

DOI

文章导航

/