研究论文

纤维素酶和植物乳杆菌对苹果渣青贮品质、微生物群落及瘤胃降解特性的影响

  • 张雄飞 , 1 ,
  • 惠靖涛 1 ,
  • 张烔 1 ,
  • 刘壮壮 2 ,
  • 姚军虎 1 ,
  • 雷新建 , 1, *
展开
  • 1 西北农林科技大学动物科技学院, 杨凌 712100
  • 2 西北农林科技大学动物医学院, 杨凌 712100
*雷新建,副教授,博士生导师,E-mail:

张雄飞(1998—),男,湖北应城人,博士研究生,动物营养与饲料科学专业。E-mail:

Office editor: 武海龙

收稿日期: 2025-10-12

  网络出版日期: 2026-05-14

基金资助

“十四五”国家重点研发计划项目(2021YFD1300300)

陕西省重点研发计划项目(2024NC-YBXM-125)

陕西省重点研发计划项目(2025NC-YBXM-226)

陕西省重点研发计划项目(2025NC-YBXM-128)

拉萨市科技计划项目(LSKJ202604)

Effects of Cellulase and Lactobacillus plantarum on Silage Quality, Microbial Community and Rumen Degradation Characteristics of Apple Pomace Silage

  • ZHANG Xiongfei , 1 ,
  • HUI Jingtao 1 ,
  • ZHANG Tong 1 ,
  • LIU Zhuangzhuang 2 ,
  • YAO Junhu 1 ,
  • LEI Xinjian , 1, *
Expand
  • 1 College of Animal Science and Technology, Northwest A & F University, Yangling 712100, China
  • 2 College of Veterinary Medicine, Northwest A & F University, Yangling 712100, China
*associate professor, E-mail:

Received date: 2025-10-12

  Online published: 2026-05-14

摘要

本试验旨在探究纤维素酶和植物乳杆菌对苹果渣青贮品质、微生物群落及瘤胃降解特性的影响。以新鲜苹果渣自然风干处理6 h,将水分降低至75%左右,作为青贮原料,共设4个组,对照组(CON组)不添加纤维素酶和植物乳杆菌,纤维素酶组(CE组)添加300 IU/g鲜重(FW)纤维素酶,植物乳杆菌组(LP组)添加2×106 CFU/g FW植物乳杆菌,纤维素酶和植物乳杆菌协同组(LPCE组)添加300 IU/g FW纤维素酶和2×10⁶ CFU/g FW植物乳杆菌。各组分别在青贮20、40、80 d时测定营养成分、发酵参数,青贮80 d时测定微生物群落和瘤胃降解特性。结果表明:1)与CON组相比,青贮20、40、80 d时,CE和LPCE组的中性洗涤纤维(NDF)和酸性洗涤纤维(ADF)含量均显著降低(P<0.05),CE组的可溶性碳水化合物(WSC)含量显著提高(P<0.05)。2)与CON组相比,青贮20、40、80 d时,LP和LPCE组的pH显著降低(P<0.05),LP组的乳酸(LA)含量显著升高(P<0.05),CE组的乙酸(AA)含量显著提高(P<0.05),CE和LPCE组的总有机酸(TA)含量均显著提高(P<0.05)。3)在门水平上,各组优势菌门为变形菌门(Proteobacteria)和厚壁菌门(Firmicutes);在属水平上,各组优势菌属为葡糖杆菌属(Gluconobacter)、醋杆菌属(Acetobacter)、液体乳杆菌属(Liquorilactobacillus)、明串珠菌属(Leuconostoc)、弗拉特氏菌属(Frateuria)、黏液乳杆菌属(Limosilactobacillus)。4)与CON组相比,CE、LP和LPCE组的瘤胃干物质(DM)、NDF和ADF有效降解率显著提高(P<0.05)。此外,LPCE组的瘤胃DM有效降解率显著高于CE和LP组(P<0.05)。综上所述,纤维素酶和植物乳杆菌协同处理可有效改善苹果渣青贮品质,提高瘤胃营养物质有效降解率。

本文引用格式

张雄飞 , 惠靖涛 , 张烔 , 刘壮壮 , 姚军虎 , 雷新建 . 纤维素酶和植物乳杆菌对苹果渣青贮品质、微生物群落及瘤胃降解特性的影响[J]. 动物营养学报, 2026 , 38(5) : 3795 -3809 . DOI: 10.12418/CJAN2026.303

Abstract

This study aimed to investigate the effects of cellulase and Lactobacillus plantarum on silage quality, microbial community and rumen degradation characteristics of apple pomace silage. The fresh apple pomace was naturally air-dried for 6 h to reduce its moisture content to approximately 75%, and used as the silage material. Four groups were set up, the control group (CON group) was not supplemented with cellulase and Lactobacillus plantarum, the cellulase group (CE group) was supplemented with 300 IU/g fresh weight (FW) cellulase, the Lactobacillus plantarum group (LP group) was supplemented with 2×10⁶ CFU/g FW Lactobacillus plantarum, and the cellulase and Lactobacillus plantarum synergistic group (LPCE group) was supplemented with 300 IU/g FW cellulase and 2×10⁶ CFU/g FW Lactobacillus plantarum. The nutritional composition and fermentation parameters of each group were determined at 20, 40 and 80 days of silage, and the microbial community and rumen degradation characteristics were determined at 80 days of silage. The results showed as follows: 1) compared with the CON group, at 20, 40 and 80 days of silage, the contents of neutral detergent fiber (NDF) and acid detergent fiber (ADF) of CE and LPCE groups were significantly decreased (P<0.05), and the water-soluble carbohydrates (WSC) content of CE group was significantly increased (P<0.05). 2) Compared with the CON group, at 20, 40 and 80 days of silage, the pH of LP and LPCE groups was significantly decreased (P<0.05), the lactic acid (LA) content of LP group was significantly increased (P<0.05), the acetic acid (AA) content of CE group was significantly increased (P<0.05), and the total organic acids (TA) content of CE and LPCE groups was significantly increased (P<0.05). 3) At the phylum level, the dominant phyla in each group were Proteobacteria and Firmicutes; at the genus level, the dominant genera in each group were Gluconobacter, Acetobacter, Liquorilactobacillus, Leuconostoc, Frateuria and Limosilactobacillus. 4) Compared with the CON group, the rumen effective degradation rates of rumen dry matter (DM), NDF and ADF of CE, LP and LPCE groups were significantly increased (P<0.05). In addition, the rumen effective degradation rate of DM of LPCE group was significantly higher than that of CE and LP groups (P<0.05). In conclusion, the synergistic treatment of cellulase and Lactobacillus plantarum can effectively improve the quality of apple pomace silage, and improve the effective degradation rates of rumen nutrients.

随着畜牧业高速发展,我国人畜争粮问题日益突出,开发和利用非常规饲料资源成为解决当前饲料原料短缺问题的有效途径之一[1]。苹果渣为苹果加工过程产生的副产物,每生产1 t苹果汁,约产生0.8 t苹果渣[2]。苹果渣营养价值丰富,含可溶性碳水化合物(water-soluble carbohydrates,WSC)、氨基酸、纤维素、维生素及生物活性物质(苹果多酚、根皮素等)等[2-3]。苹果渣具有促进动物生长、改善机体健康及降低饲养成本的潜力[4],可作为非常规饲料原料开发利用。然而,苹果渣因水分(85.22%)和可溶性糖含量(84.8 g/kg)高的特性,导致难以稳定贮存,严重限制了其饲料资源化利用进程。
青贮发酵是解决苹果渣贮存难题的有效途径之一。但高水分易引起饲料腐败变质和养分流失[5]。前期研究发现,采用自然风干的方式降低苹果渣的水分含量,可改变微生物区系,提高苹果渣的青贮品质,改善瘤胃降解特性,进而提高其饲用价值[6]。苹果渣经挤压、清洗等环节加工产生,自身附着的乳酸菌数量有限,自然风干过程可能导致苹果渣附生的好氧微生物快速增殖,影响青贮品质。生物添加剂在提升发酵品质方面发挥着关键作用。纤维素酶可促进结构性碳水化合物水解,为乳酸菌提供底物,增加乳酸(lactic acid,LA)含量,降低pH,提高青贮品质[7]。接种乳酸菌可促进LA的产生,通过快速降低pH,减少营养物质流失,改善青贮品质[8]。研究表明,利用纤维素酶和乳酸菌进行菌酶协同处理,可改善桑叶青贮品质[7]。但二者协同作用对自然风干苹果渣青贮品质、微生物群落及瘤胃降解特性的影响尚不明确。因此,本试验旨在探究纤维素酶和植物乳杆菌及二者协同对自然风干苹果渣青贮品质、微生物群落及瘤胃降解特性的影响,以期为苹果渣青贮条件的优化提供科学依据。

1 材料与方法

1.1 试验材料

将新鲜苹果渣自然风干处理6 h,以降低水分至75%左右,作为青贮原料,其干物质(dry matter,DM)含量为276.6 g/kg鲜重(fresh weight,FW),有机物(organic matter,OM)、WSC、粗蛋白质(crude protein,CP)含量分别为968.4、84.8和63.6 g/kg DM,中性洗涤纤维(neutral detergent fiber,NDF)和酸性洗涤纤维(acid detergent fiber,ADF)含量分别为584.8和522.6 g/kg DM。纤维素酶活性为50万IU/g,植物乳杆菌活菌数为1.0×1011 CFU/g。

1.2 试验设计

以自然风干苹果渣为青贮原料,分为4个组,对照组(CON组)不添加纤维素酶和植物乳杆菌,纤维素酶组(CE组)添加300 IU/g FW纤维素酶,植物乳杆菌组(LP组)添加2×10⁶ CFU/g FW植物乳杆菌,纤维素酶和植物乳杆菌协同组(LPCE组)添加2×10⁶ CFU/g FW植物乳杆菌和300 IU/g FW纤维素酶。将添加剂溶解于30 mL无菌水,混合均匀后喷洒于青贮原料,CON组喷洒等量无菌水。将处理后的青贮原料分装于青贮发酵袋(15 cm×20 cm),每袋装入0.5 kg,真空密封保存。分别在青贮20、40、80 d时开袋取样,对营养成分、发酵参数进行分析,并对青贮80 d时样品进行黄曲霉毒素B1、微生物群落和瘤胃降解特性分析。

1.3 测定指标与方法

1.3.1 营养成分

取待测样品于65 ℃烘干至恒重,粉碎并过1 mm筛网备用。采用AOAC(2019)[9]中烘干法测定DM含量,凯氏定氮法测定CP含量,灼烧法测定OM含量。计算DM损失率:

DM损失率(%)=[(青贮前DM含量-青贮后

DM含量)/青贮前DM含量]×100。

NDF和ADF含量使用半自动纤维分析仪(ANKOM 200i,美国ANKOM公司),参照Van Soest等[10]的方法测定NDF含量,根据AOAC(2000)[11]的方法测定ADF含量。取0.3 g新鲜青贮样品,按1∶10比例加入蒸馏水,用匀浆器研磨成匀浆液,沸水浴10 min(盖紧,管盖上扎一小孔,以平衡气压和减少水分散失),冷却后常温离心10 min,取上清液,随后使用试剂盒(南京建成生物工程研究所)测定WSC含量。

1.3.2 发酵参数

浸提液制备:1)准确称取10 g鲜重样品与90 mL无菌水充分混合,4 ℃条件下浸提24 h;2)使用4层纱布和2层滤纸过滤,立即测定pH;3)浸提液于-20 ℃保存待测。使用苯酚-次氯酸钠比色法[12]测定氨态氮(ammonia nitrogen,NH3-N)含量。乙酸(acetic acid,AA)、丙酸(propionic acid,PA)、丁酸(butyric acid,BA)含量采用高效气相色谱仪(GC7890A,美国安捷伦科技有限公司)测定[13]。LA含量使用试剂盒(南京建成生物工程研究所)测定。总有机酸(total organic acids,TA)含量为LA、AA、PA和BA含量之和。

1.3.3 霉菌毒素含量

采用酶联免疫吸附法(GB/T 17480—2008)测定青贮80 d时样品中黄曲霉毒素B1含量。

1.3.4 微生物群落

取新鲜青贮样品5.0 g,利用液氮急速冷冻后,放入干冰中,低温冷冻运输至上海派森诺生物科技有限公司对青贮样品的微生物群落进行16S rDNA基因测序。使用MN NucleoSpin 96 Soi试剂盒(德国美奇利-纳格有限公司)提取样品总DNA后利用特异性引物338F(5'-ACTCCTACGGGAGGCAGCA-3')和806R(5'-GGACTACHVGGGTWTCTAAT-3')对细菌16S rRNA基因的高变区(V3~V4)进行扩增,并在Illumina NovaSeq平台进行双端测序。基于QIIME 2[14]软件,通过DADA2流程进行原始数据质量控制、去噪、拼接及去嵌合体处理,获得扩增子序列变异(ASVs),进而分析微生物群落多样性和组成。
微生物数据及微生物组成在基因云平台(www.genescloud.cn)进行分析。利用Kruskal-Wallis H检验各组之间微生物群落α多样性的差异显著性。基于Bray-Curtis相异度矩阵构建主坐标分析(principal coordinate analysis,PCoA),并采用置换多元方差分析(permutational multivariate analysis of variance,PERMANOVA)检验组间微生物群落结构差异的显著性。采用线性判别分析效应量大小(linear discriminant analysis effect size,LEfSe)筛选组间差异微生物。

1.3.5 瘤胃降解特性

选取4头健康状况良好、干物质采食量和体重相近、装有永久性瘘管的中国荷斯坦奶牛作为试验动物。试验包括14 d预试期和3 d瘤胃孵育和样品采集期。试验期间饲养管理不变,试验牛分栏拴系饲养,每天饲喂2次(07:00和16:00),自由饮水。
取待测样品于65 ℃烘干至恒重后粉碎过2.0 mm筛备用。准确称取4.0 g样品装入特定尺寸(8 cm×10 cm)与孔径(50 μm)的尼龙袋,置于试验瘘管牛瘤胃内孵育,每种饲料样品设2个平行,4个重复,将尼龙袋固定于尼龙绳上并穿过塑料软管中。将所有装有样品的尼龙袋于晨饲后1 h(08:00)同时放入试验牛瘤胃内,分别孵育4、8、16、24、48、72 h后取出,浸入冰水中停止发酵,用自来水冲洗至水清。随后置于65 ℃条件下烘干至恒重,称重并记录数据,取出袋中残留物并分装保存,测定DM、NDF和ADF含量。DM、NDF、ADF在不同孵育时间的瘤胃降解率计算公式如下:
P=[(A-B)/A]×100。
式中:P为待测青贮样品中该营养成分的瘤胃降解率(%);A为待测青贮样品中该营养成分含量(g);B为未降解残渣中该营养成分含量(g)。
养分瘤胃降解参数和有效降解率计算公式如下:

y=a+b×(1-e-ct);

ED=a+(b×c)/(c+k)。

式中:y为待测青贮样品该营养成分在瘤胃内孵育t h的降解率(%);a为快速降解部分比例(%);b为慢速降解部分比例(%);c为慢速降解部分的降解速率(%/h);t为待测青贮样品在瘤胃内的孵育时间(h);ED为待测青贮样品该营养成分的有效降解率(%);k为待测青贮样品在瘤胃的外流速率(%/h),本试验中k设定为0.031%/h。

1.4 统计分析

试验数据使用SPSS 26.0进行单因素方差分析(one-way ANOVA),并采用Duncan氏法进行多重比较。结果用平均值和均值标准误(SEM)表示,P<0.05为差异显著。

2 结果与分析

2.1 纤维素酶和植物乳杆菌对苹果渣青贮营养成分的影响

表1可知,与CON组相比,青贮20 d时,CE组的DM含量显著降低(P<0.05),DM损失率显著升高(P<0.05)。与CON组相比,青贮20、40、80 d时,CE和LPCE组的NDF和ADF含量均显著降低(P<0.05),CE组的WSC含量显著提高(P<0.05)。青贮20、40、80 d时,各组之间OM和CP含量均无显著差异(P>0.05)。
表1 纤维素酶和植物乳杆菌对苹果渣青贮营养成分的影响

Table 1 Effects of cellulase and Lactobacillus plantarum on nutritional composition of apple pomace silage

项目
Items
组别 Groups SEM P
P-value
CON CE LP LPCE
20 d
干物质 DM/% FW 24.88a 24.40b 24.77ab 24.89a 0.071 0.041
干物质损失率 DM loss rate/% DM 5.60b 7.40a 6.06ab 5.06b 0.268 0.040
有机物 OM/% DM 96.48 96.20 96.41 96.40 0.074 0.620
可溶性碳水化合物 WSC/% DM 4.80b 10.83a 4.99b 9.94a 0.704 <0.001
粗蛋白质 CP/% DM 6.14 6.25 6.21 6.35 0.065 0.729
中性洗涤纤维 NDF/% DM 58.18a 49.78b 56.85a 48.95b 0.943 <0.001
酸性洗涤纤维 ADF/% DM 49.63a 45.23b 50.42a 45.49b 0.708 0.002
40 d
干物质 DM/% FW 24.78 24.32 24.62 24.71 0.078 0.164
干物质损失率 DM loss rate/% DM 5.99 7.72 6.60 6.26 0.294 0.165
有机物 OM/% DM 96.12 96.04 96.23 96.18 0.114 0.948
可溶性碳水化合物 WSC/% DM 7.76b 11.37a 8.25b 9.26b 0.436 0.006
粗蛋白质 CP/% DM 6.11 6.24 6.28 6.33 0.122 0.919
中性洗涤纤维 NDF/% DM 54.42a 47.84b 52.92a 49.21b 0.722 <0.001
酸性洗涤纤维 ADF/% DM 46.73a 42.37b 46.53a 42.83b 0.563 <0.001
80 d
干物质 DM/% FW 24.56 24.14 24.46 24.59 0.079 0.167
干物质损失率 DM loss rate/% DM 6.83 8.40 7.19 6.70 0.300 0.172
有机物 OM/% DM 95.52 95.53 95.66 95.73 0.104 0.880
可溶性碳水化合物 WSC/% DM 8.00bc 10.98a 6.56c 10.04ab 0.544 0.006
粗蛋白质 CP/% DM 5.99 6.21 6.32 6.26 0.139 0.873
中性洗涤纤维 NDF/% DM 52.78a 46.10b 52.86a 45.50b 0.952 <0.001
酸性洗涤纤维 ADF/% DM 44.79a 40.42b 43.81a 40.32b 0.651 0.011

同行数据肩标不同小写字母表示差异显著(P<0.05),相同或无字母表示差异不显著(P>0.05)。下表同。

In the same row, values with different small letter superscripts mean significant difference (P<0.05), while with the same or no letter superscripts mean no significant difference (P>0.05). The same as below.

2.2 纤维素酶和植物乳杆菌对苹果渣青贮发酵参数的影响

表2可知,与CON组相比,青贮20、40、80 d时,LP和LPCE组的pH显著降低(P<0.05);青贮40 d时,CE组的pH显著降低(P<0.05)。与CON组相比,青贮20、80 d时,LP组的LA含量显著升高(P<0.05);青贮40、80 d时,LPCE组的LA含量显著升高(P<0.05)。与CON组相比,青贮20、40、80 d时,CE组的AA含量显著提高(P<0.05);青贮20、40 d时,LPCE组的AA含量显著提高(P<0.05)。与CON组相比,青贮20、40、80 d时,CE组的LA/AA显著降低(P<0.05);青贮80 d时,LP组的LA/AA显著提高(P<0.05);青贮40 d时,LPCE组的LA/AA显著降低(P<0.05);青贮80 d时,LPCE组的LA/AA显著提高(P<0.05)。与CON组相比,青贮20、40、80 d时,CE和LPCE组的TA含量均显著提高(P<0.05);青贮20、80 d时,LP组的TA含量显著提高(P<0.05)。青贮20、40、80 d时,各组之间PA、BA和NH3-N含量均无显著差异(P>0.05)。
表2 纤维素酶和植物乳杆菌对苹果渣青贮发酵参数的影响

Table 2 Effects of cellulase and Lactobacillus plantarum on fermentation parameters of apple pomace silage

项目
Items
组别 Groups SEM P
P-value
CON CE LP LPCE
20 d
pH 3.89a 3.87a 3.80b 3.76b 0.016 0.002
总有机酸 TA/(g/kg DM) 26.97b 32.39a 29.78a 31.58a 0.640 0.004
乳酸 LA/(g/kg DM) 14.55b 14.43b 16.80a 15.41ab 0.326 0.022
乙酸 AA/(g/kg DM) 12.21b 17.74a 12.76b 15.88a 0.662 <0.001
丙酸 PA/(g/kg DM) 0.11 0.12 0.12 0.15 0.012 0.732
丁酸 BA/(g/kg DM) 0.09 0.11 0.10 0.14 0.008 0.063
乳酸/乙酸 LA/AA 1.22ab 0.83c 1.36a 0.97bc 0.063 0.003
氨态氮 NH3-N/(g/kg DM) 0.13 0.15 0.15 0.13 0.005 0.237
40 d
pH 3.82a 3.70b 3.64c 3.66bc 0.017 <0.001
总有机酸 TA/(g/kg DM) 37.74b 45.25a 37.47b 44.79a 0.888 <0.001
乳酸 LA/(g/kg DM) 20.85b 20.59b 21.26ab 22.94a 0.340 0.047
乙酸 AA/(g/kg DM) 16.47c 24.23a 15.74c 21.38b 0.820 <0.001
丙酸 PA/(g/kg DM) 0.12 0.10 0.14 0.15 0.042 0.291
丁酸 BA/(g/kg DM) 0.30 0.32 0.33 0.31 0.022 0.985
乳酸/乙酸 LA/AA 1.27a 0.88c 1.35a 1.08b 0.048 <0.001
氨态氮 NH3-N/(g/kg DM) 0.13 0.17 0.15 0.16 0.008 0.198
80 d
pH 3.56a 3.55a 3.34b 3.26b 0.034 <0.001
总有机酸 TA/(g/kg DM) 53.93c 61.14b 59.75b 69.26a 1.341 <0.001
乳酸 LA/(g/kg DM) 29.94c 29.90c 36.01b 42.79a 1.243 <0.001
乙酸 AA/(g/kg DM) 23.47b 29.71a 23.18b 25.86b 0.736 <0.001
丙酸 PA/(g/kg DM) 0.12 0.15 0.19 0.18 0.014 0.263
丁酸 BA/(g/kg DM) 0.40 0.37 0.37 0.44 0.032 0.899
乳酸/乙酸 LA/AA 1.28b 1.01c 1.56a 1.67a 0.079 <0.001
氨态氮 NH3-N/(g/kg DM) 0.17 0.23 0.16 0.21 0.015 0.214

2.3 纤维素酶和植物乳杆菌对苹果渣青贮霉菌毒素的影响

表3可知,青贮80 d时,各组苹果渣青贮中均未检测出黄曲霉毒素B1
表3 纤维素酶和植物乳杆菌对苹果渣青贮霉菌毒素的影响

Table 3 Effects of cellulase and Lactobacillus plantarum on mycotoxin of apple pomace silageμg/kg

项目
Item
组别 Groups
CON CE LP LPCE
黄曲霉毒素B1 AFB1 UD UD UD UD

UD:未检出 undetectable。

2.4 纤维素酶和植物乳杆菌对苹果渣青贮微生物群落的影响

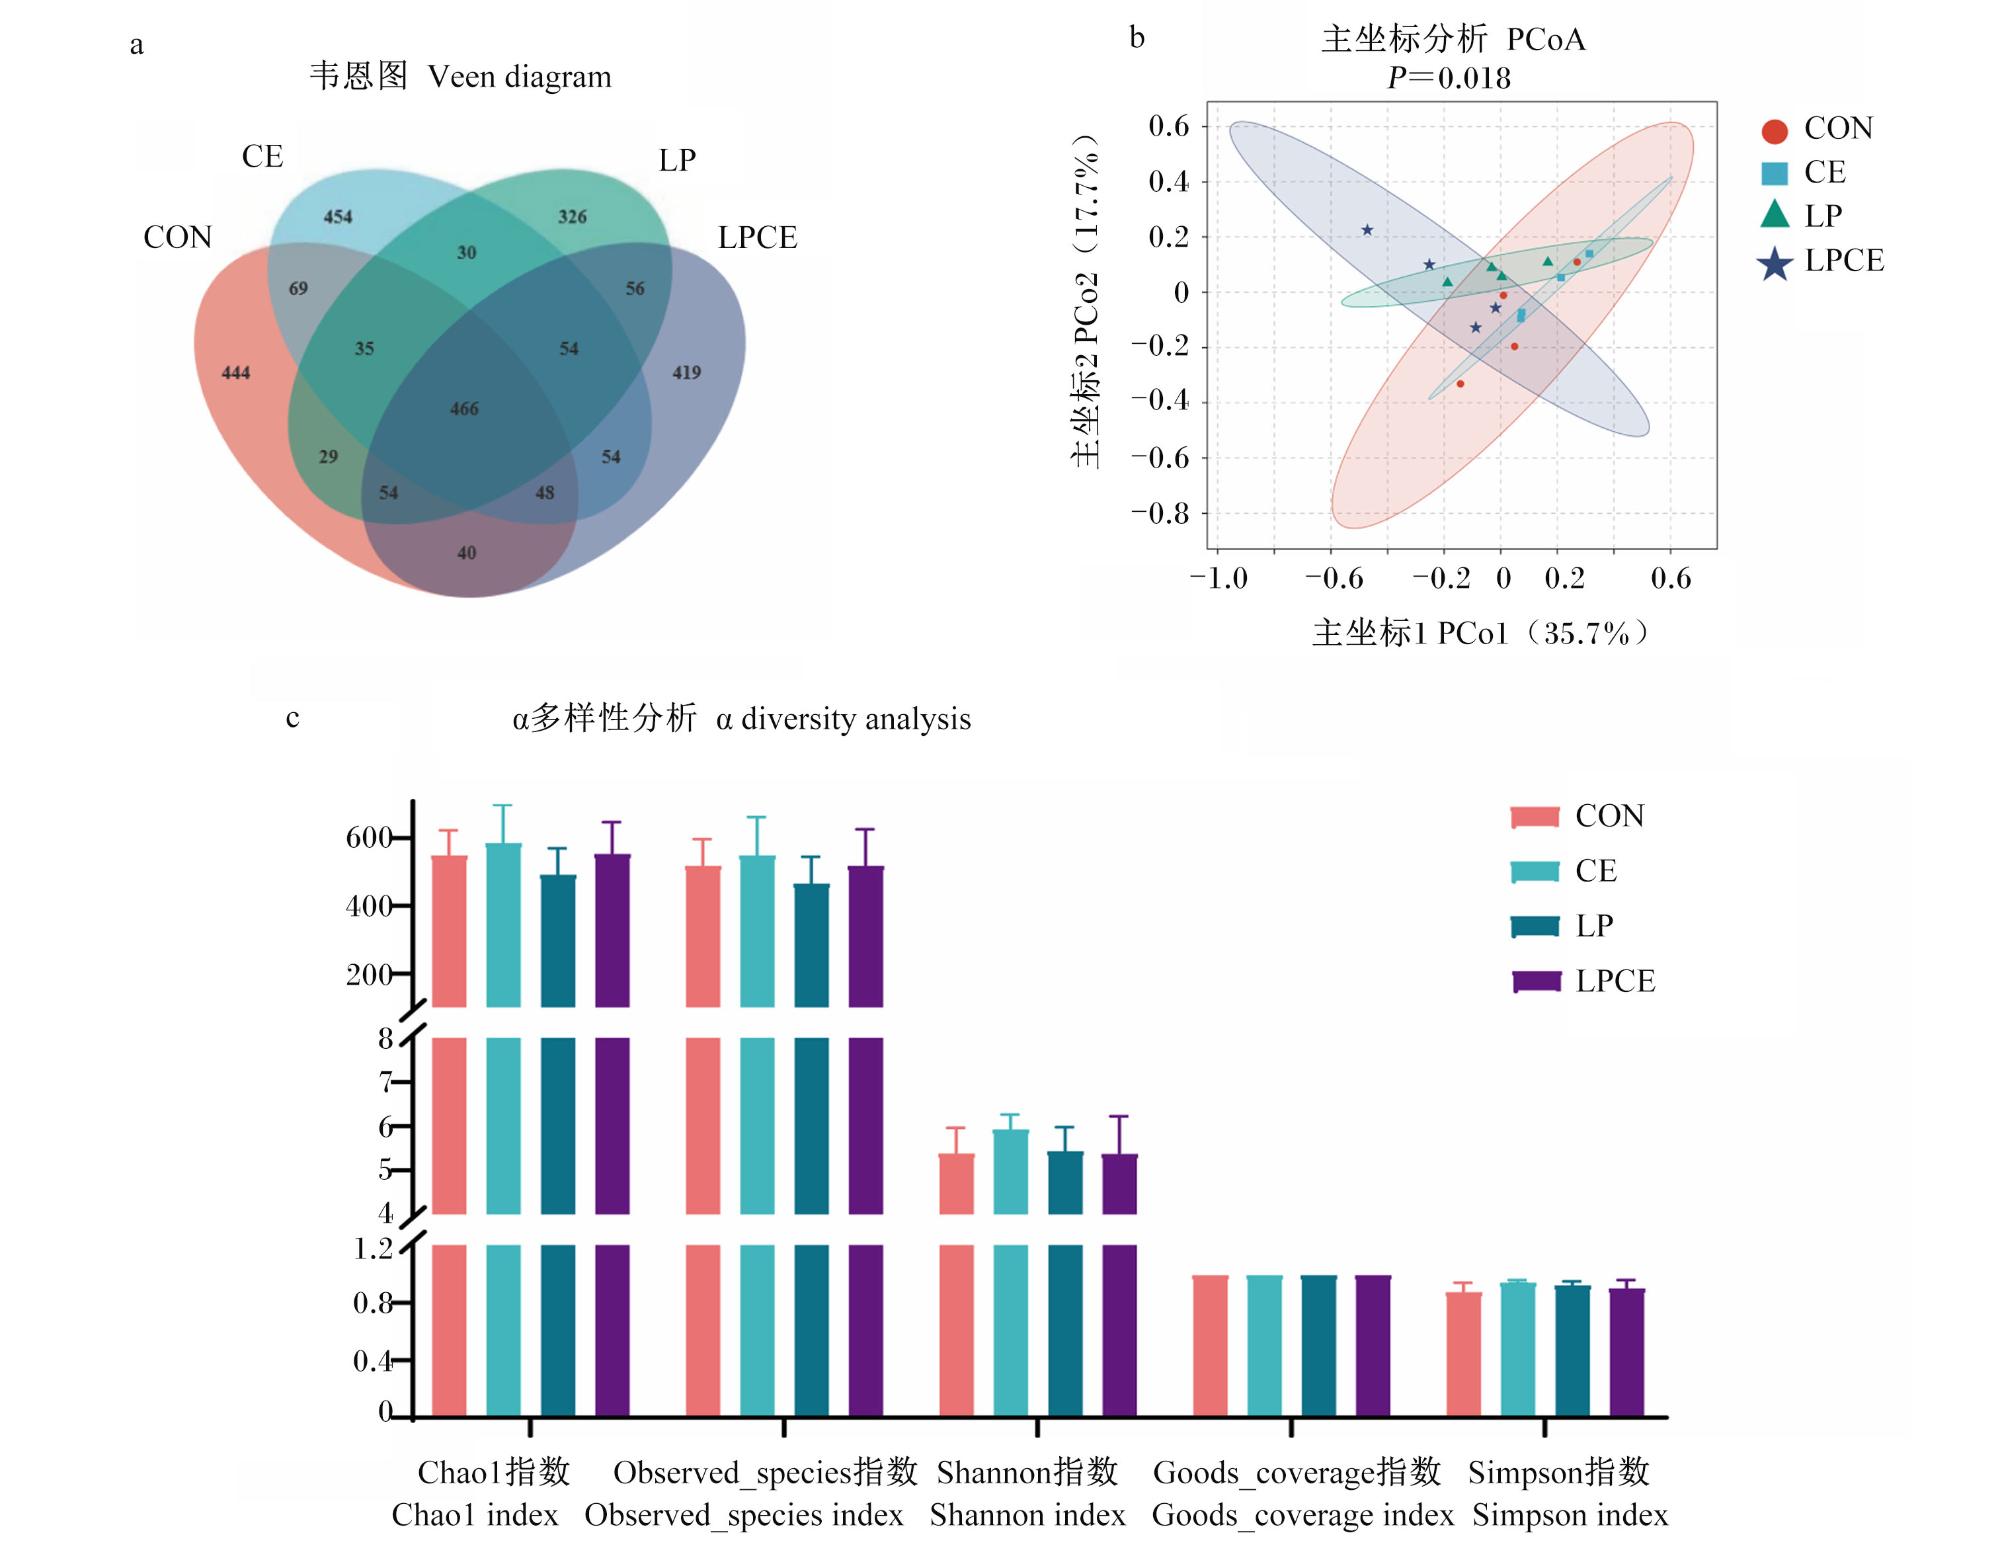
图1所示,韦恩(Venn)图结果表明,CON、CE、LP和LPCE组分别独有444、454、326、419个ASV;4个组共有466个ASV,CON组与CE、LP、LPCE组分别共有618、584、608个ASV。β多样性PCoA结果表明,CON组与CE、LP、LPCE组显著分离(P<0.05),且LP组与CE组显著分离(P<0.05)。α多样性分析结果表明,各组之间微生物α多样性指数无显著差异(P>0.05)。
图1 苹果渣青贮微生物韦恩图、PCoA和α多样性分析

CON:对照组 control group;CE:纤维素酶组 cellulase group;LP:植物乳杆菌组 Lactobacillus plantarum group;LPCE:纤维素酶和植物乳杆菌协同组 cellulase and Lactobacillus plantarum synergistic group。下图同 the same as below。

Fig.1 Microbial Venn diagram, PCoA and α diversity analysis of apple pomace silage

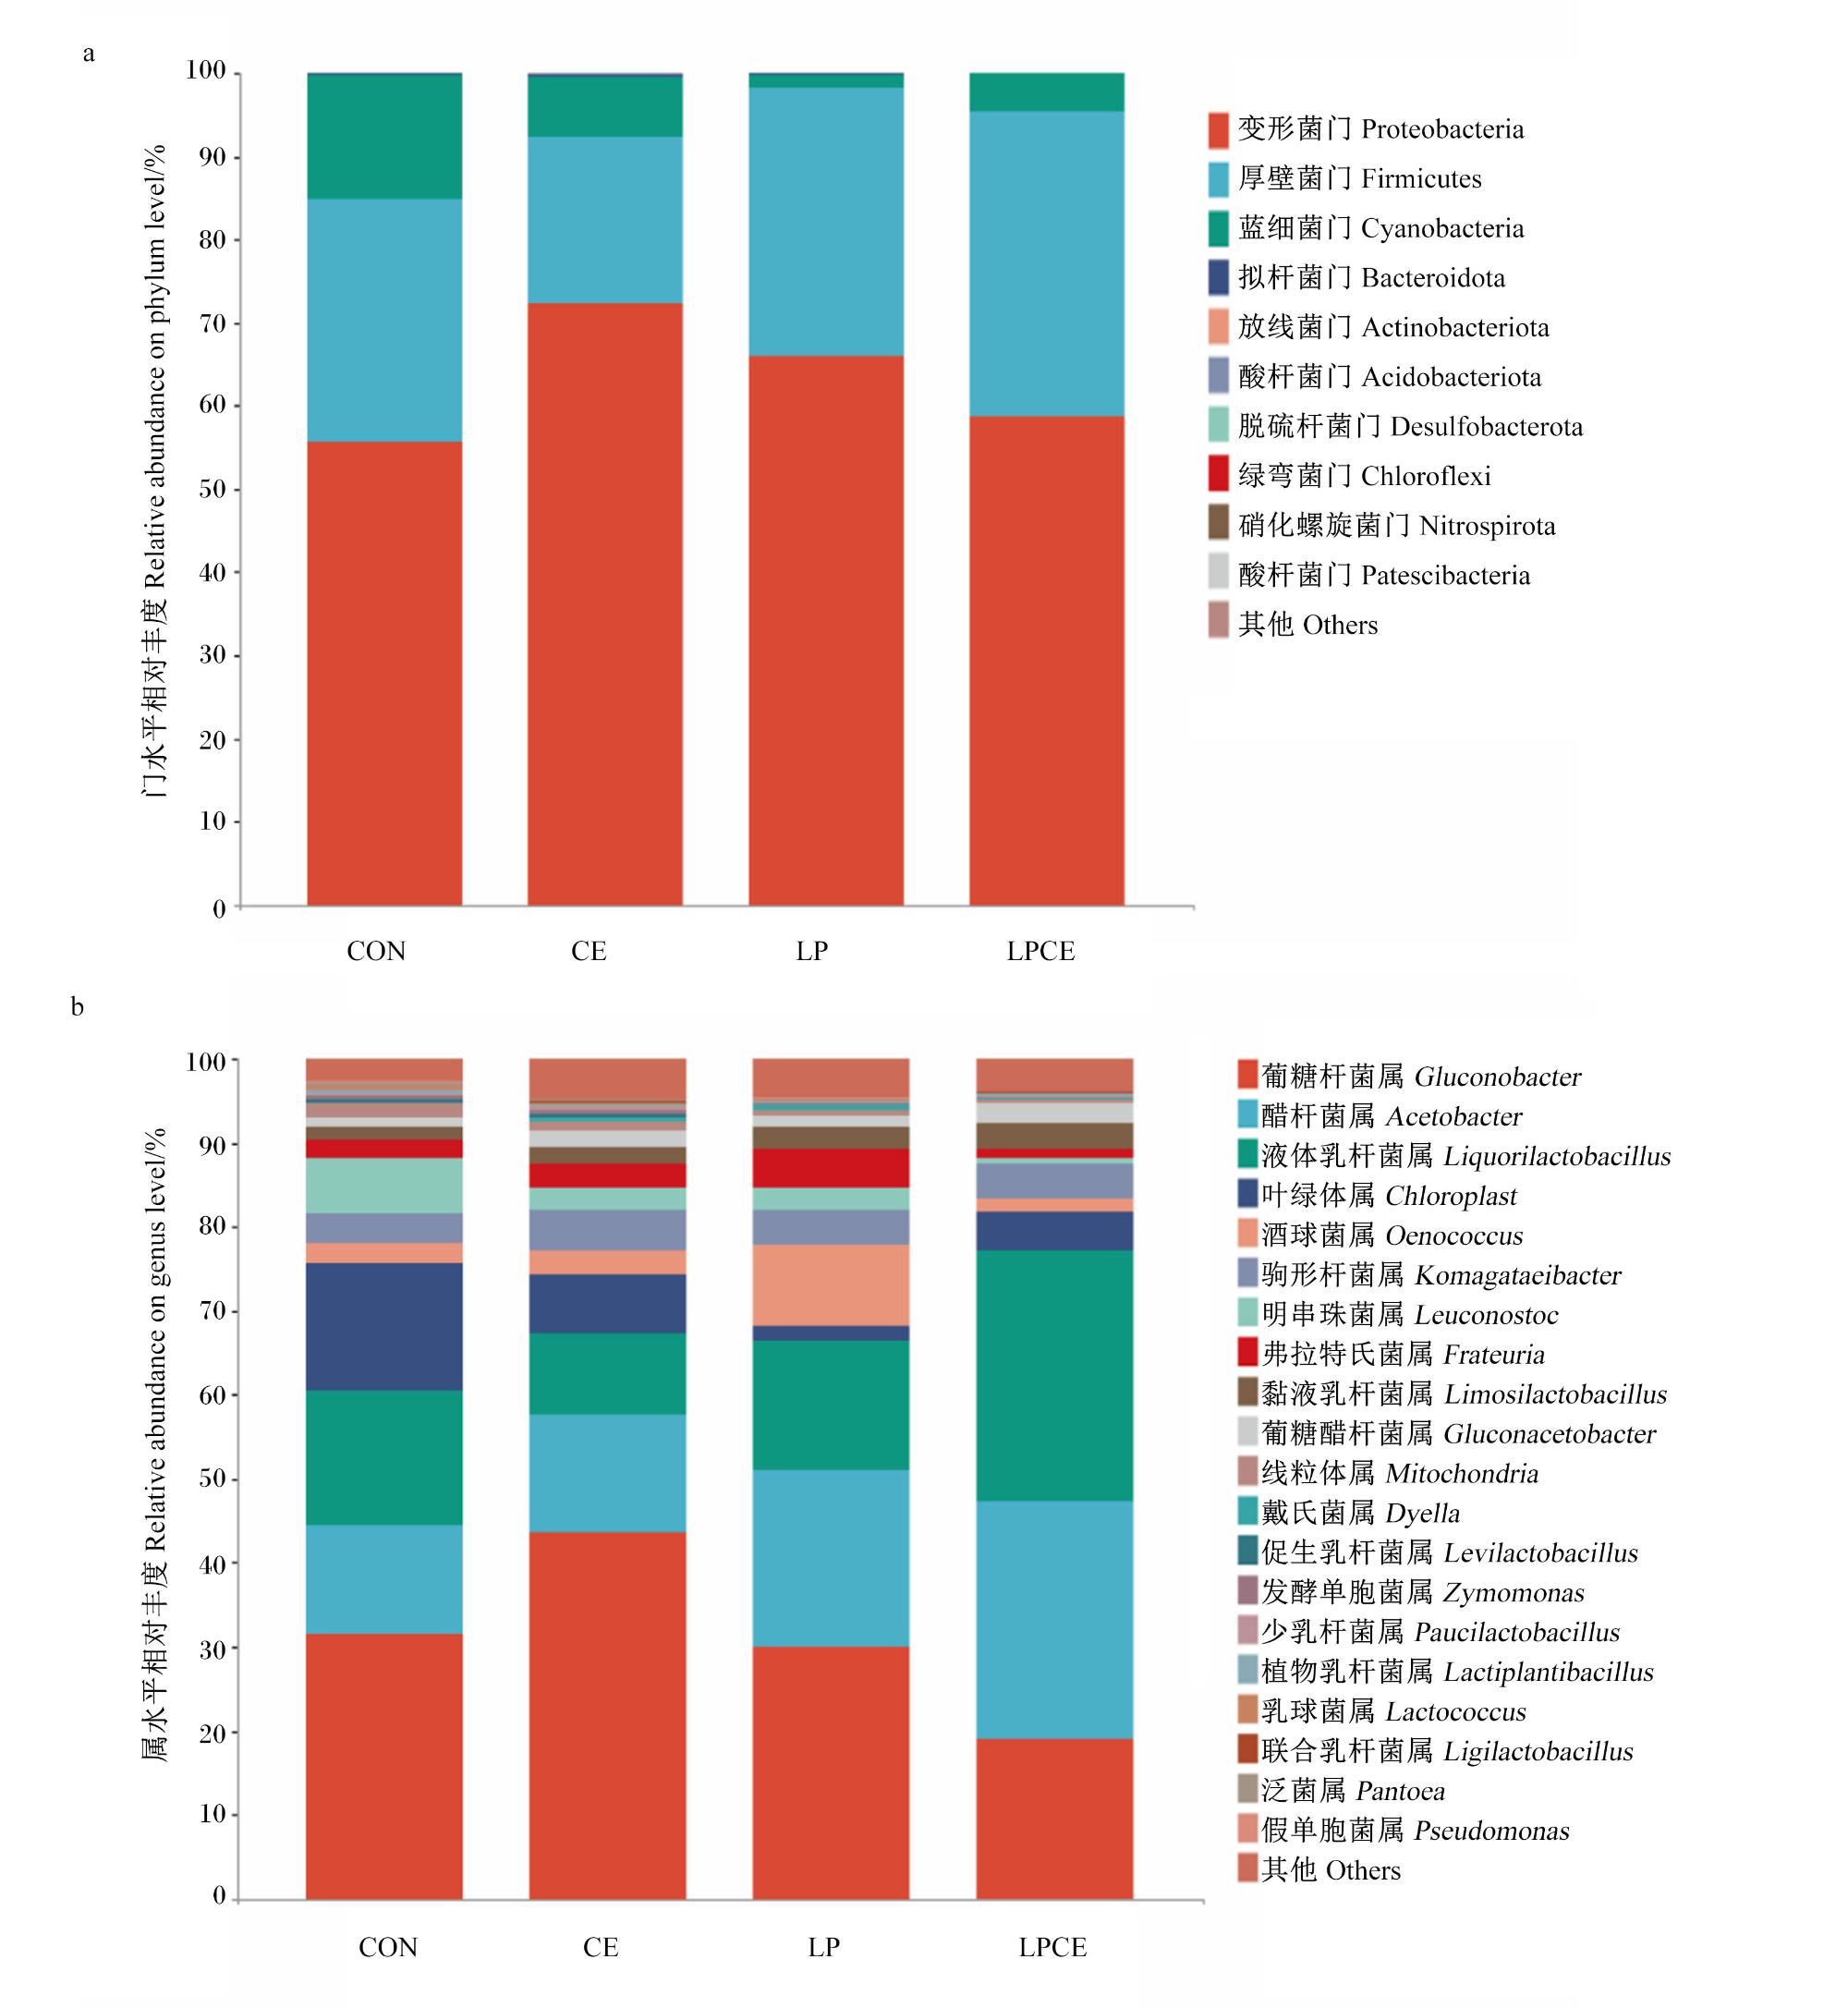
图2所示,在门水平上,各组优势菌门为变形菌门(Proteobacteria)和厚壁菌门(Firmicutes);在属水平上,各组优势菌属为葡糖杆菌属(Gluconobacter)、醋杆菌属(Acetobacter)、液体乳杆菌属(Liquorilactobacillus)、明串珠菌属(Leuconostoc)、弗拉特氏菌属(Frateuria)、黏液乳杆菌属(Limosilactobacillus)。
图2 苹果渣青贮微生物门水平和属水平组成

Fig.2 Microbial composition at phylum level and genus level of apple pomace silage

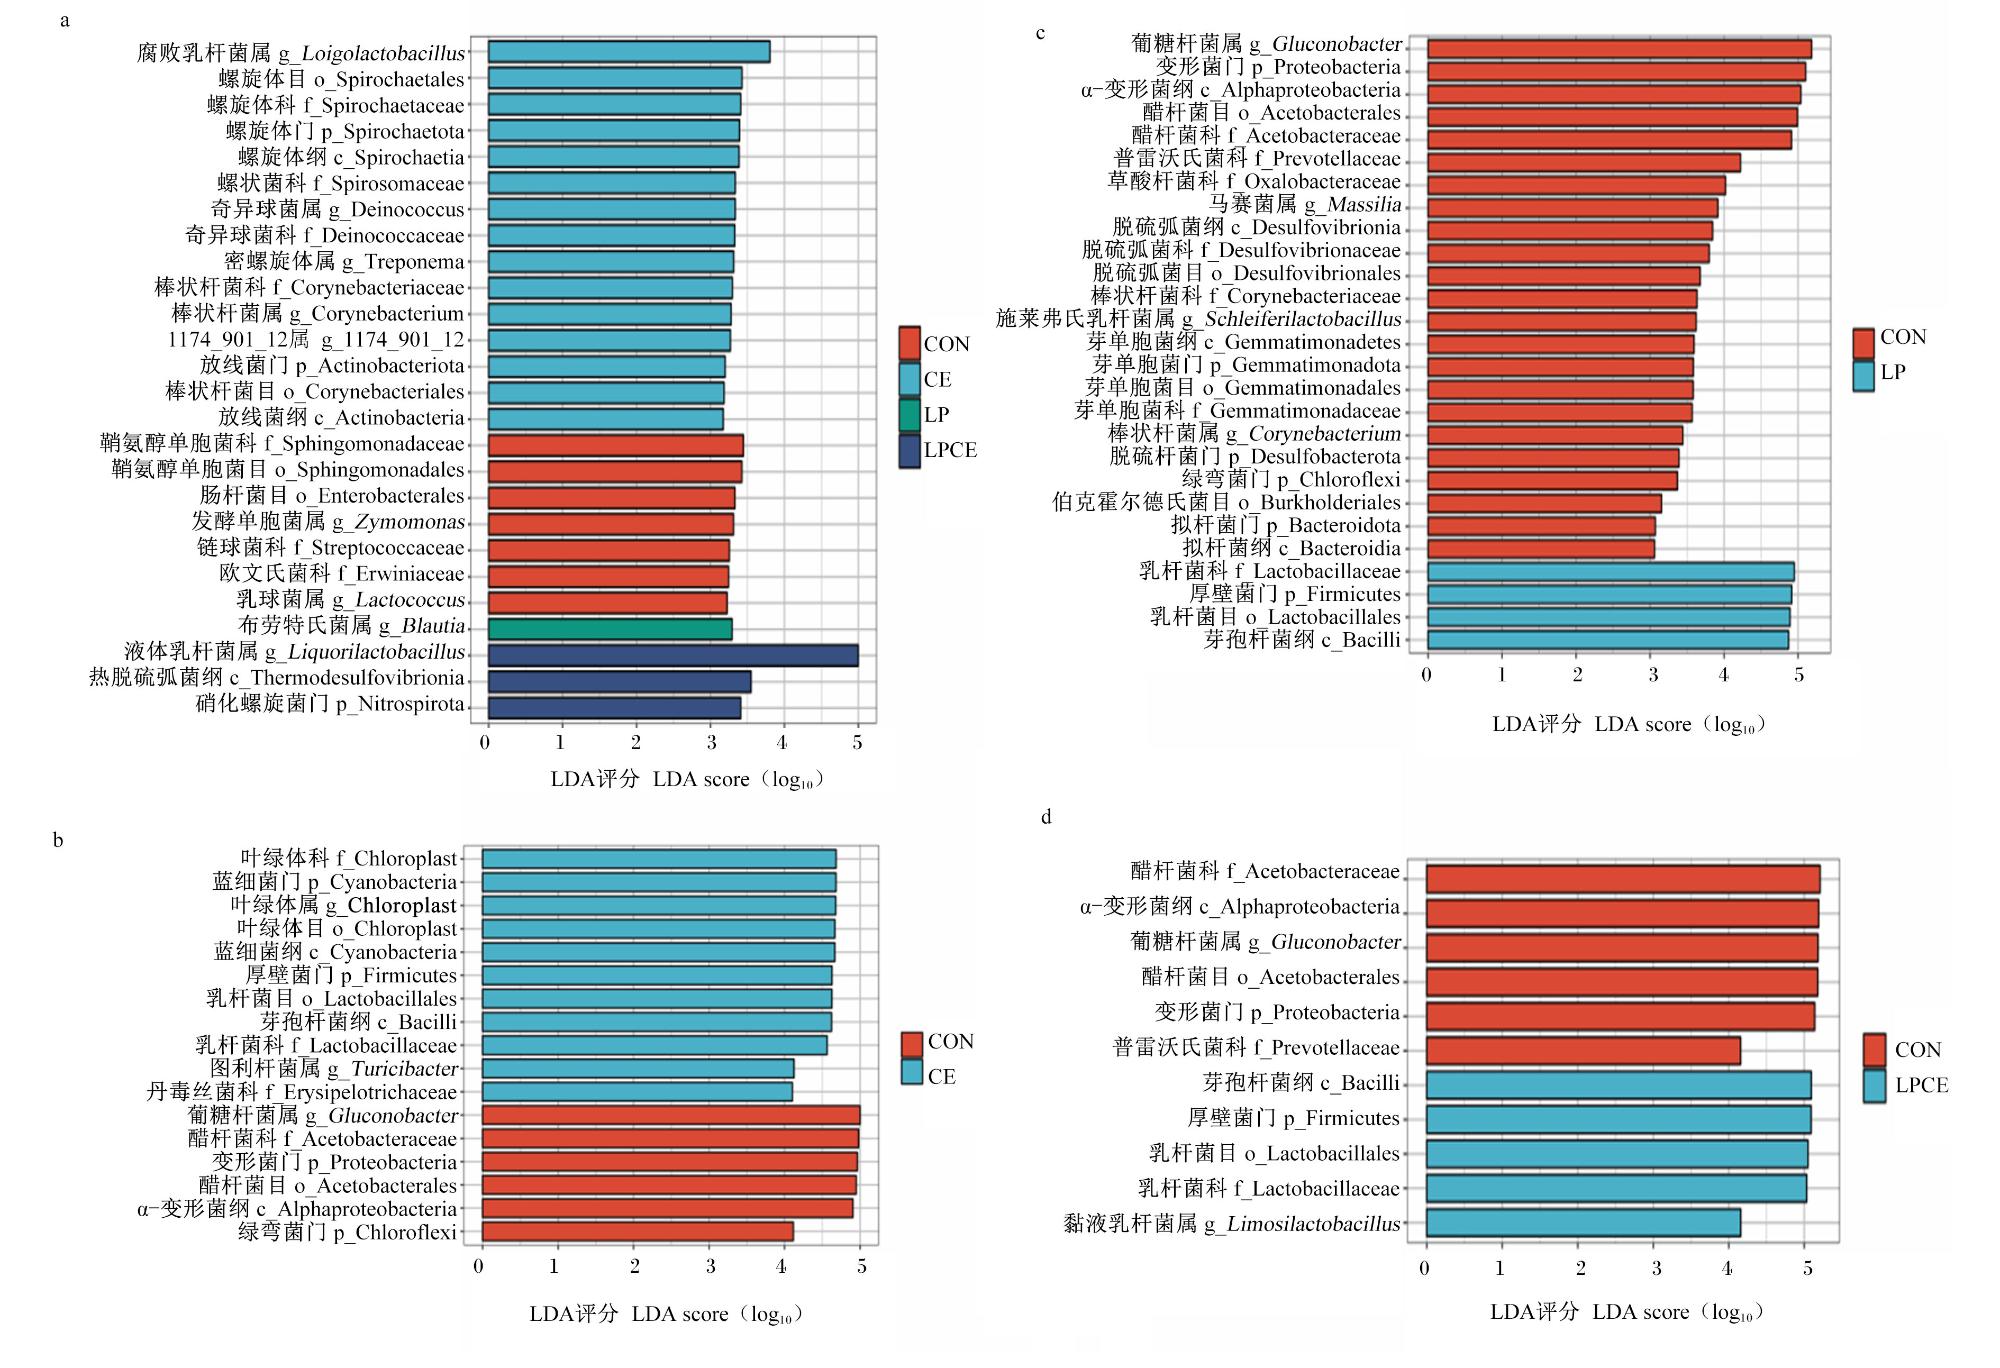
图3所示,LEfSe分析结果表明,发酵单胞菌属(Zymomonas)、乳球菌属(Lactococcus)等在CON组显著富集(P<0.05),螺旋体门(Spirochaetota)、放线菌门(Actinobacteriota)、腐败乳杆菌属(Loigolactobacillus)、奇异球菌属(Deinococcus)、密螺旋体属(Treponema)、棒状杆菌属(Corynebacterium)等在CE组显著富集(P<0.05);布劳特氏菌属(Blautia)在LP组显著富集(P<0.05),液体乳杆菌属等在LPCE组显著富集(P<0.05)。与CON组相比,CE组厚壁菌门、蓝细菌门(Cyanobacteria)、乳杆菌科(Lactobacillaceae)和图利杆菌属(Turicibacter)等相对丰度显著提高(P<0.05),变形菌门和葡糖杆菌属等相对丰度显著降低(P<0.05);LP组厚壁菌门和乳杆菌科等相对丰度显著提高(P<0.05),变形菌门、拟杆菌门(Bacteroidota)、芽单胞菌门(Gemmatimonadota)、脱硫杆菌门(Desulfobacterota)、普雷沃氏菌科(Prevotellaceae)、脱硫弧菌科(Desulfovibrionaceae)、草酸杆菌科(Oxalobacteraceae)、芽单胞菌科(Gemmatimonadaceae)、棒状杆菌科(Corynebacteriaceae)、醋杆菌科(Acetobacteraceae)、施莱弗氏乳杆菌属(Schleiferilactobacillus)、葡糖杆菌属和棒状杆菌属等相对丰度显著降低(P<0.05);LPCE组厚壁菌门、乳杆菌科和黏液乳杆菌属等相对丰度显著提高(P<0.05),变形菌门、醋杆菌科、普雷沃氏菌科和葡糖杆菌属等相对丰度显著降低(P<0.05)。
图3 苹果渣青贮微生物菌群组成的LEfSe分析

Fig.3 LEfSe analysis of microbial flora composition of apple pomace silage

2.5 纤维素酶和植物乳杆菌对苹果渣青贮瘤胃降解特性的影响

表4可知,与CON组相比,CE组4、8、12、24 h的DM瘤胃降解率及慢速降解部分的降解速率和有效降解率显著提高(P<0.05),慢速降低部分比例显著降低(P<0.05);LP组4、8、12、48、72 h的DM瘤胃降解率及快速降解部分比例和有效降解率显著提高(P<0.05);LPCE组4、8、12、24 h的DM瘤胃降解率及快速降解部分比例、慢速降解部分的降解速率和有效降解率显著提高(P<0.05),慢速降解部分比例显著降低(P<0.05)。此外,LPCE组的瘤胃DM有效降解率显著高于CE和LP组(P<0.05)。
表4 纤维素酶和植物乳杆菌对苹果渣青贮DM瘤胃降解特性的影响

Table 4 Effects of cellulase and Lactobacillus plantarum on DM rumen degradation characteristics of apple pomace silage

项目
Items
组别 Groups SEM P
P-value
CON CE LP LPCE
瘤胃降解率 Rumen degradation rate/%
4 h 15.85b 21.97a 21.13a 22.45a 0.730 <0.001
8 h 22.92c 26.97b 27.67b 31.28a 0.784 <0.001
12 h 31.90c 36.11b 35.36b 41.30a 0.903 <0.001
24 h 55.25c 64.27b 55.45c 62.18a 1.055 <0.001
48 h 70.01b 70.19b 74.15a 72.21ab 0.533 0.003
72 h 76.93b 75.89b 78.48a 77.79ab 0.332 0.016
瘤胃降解参数 Rumen degradation parameters
a/% 4.61b 6.83ab 8.41a 8.20a 0.517 0.014
b/% 77.51a 69.95b 75.62a 70.50b 0.936 <0.001
c/(%/h) 0.039b 0.052a 0.039b 0.054a 0.002 0.004
ED/% 47.72c 50.73b 50.64b 52.98a 0.488 <0.001

a:快速降解部分;b:慢速降解部分;c:慢速降解部分的降解速率;ED:有效降解率。下表同。

a: the fraction of immediately degraded; b: the fraction of slowly degraded; c: the degradation rate of the fraction of slowly degraded; ED: the effective degradation rate. The same as below.

表5可知,与CON组相比,CE组12、24 h的NDF瘤胃降解率及慢速降解部分的降解速率和有效降解率显著提高(P<0.05);LP和LPCE组8、12、24、48 h的NDF瘤胃降解率及有效降解率均显著提高(P<0.05)。
表5 纤维素酶和植物乳杆菌对苹果渣青贮NDF瘤胃降解特性的影响

Table 5 Effects of cellulase and Lactobacillus plantarum on NDF rumen degradation characteristics of apple pomace silage

项目
Items
组别 Groups SEM P
P-value
CON CE LP LPCE
瘤胃降解率 Rumen degradation rate/%
4 h 12.10 12.03 12.12 12.32 0.201 0.970
8 h 18.03c 25.26c 23.88b 23.58b 0.731 <0.001
12 h 26.43b 33.14a 32.87a 33.07a 0.777 <0.001
24 h 50.26c 56.79a 54.22b 53.74b 0.642 <0.001
48 h 61.20b 62.84ab 64.60a 63.42a 0.407 0.009
72 h 68.07 67.65 69.03 68.91 0.358 0.501
瘤胃降解参数 Rumen degradation parameters
a/% 4.80 4.72 6.84 6.37 0.415 0.156
b/% 69.65 64.62 68.10 65.09 0.778 0.043
c/(%/h) 0.032b 0.046a 0.037b 0.039b 0.002 0.008
ED/% 39.84b 43.39a 43.68a 42.31a 0.448 0.001
表6可知,与CON组相比,CE、LP和LPCE组8、12、24、48 h的ADF瘤胃降解率及有效降解率显著提高(P<0.05)。
表6 纤维素酶和植物乳杆菌对苹果渣青贮ADF瘤胃降解特性的影响

Table 6 Effects of cellulase and Lactobacillus plantarum on ADF rumen degradation characteristics of apple pomace silage

项目
Items
组别 Groups SEM P
P-value
CON CE LP LPCE
瘤胃降解率 Rumen degradation rate/%
4 h 9.91 10.21 10.22 10.45 0.174 0.778
8 h 16.18c 19.36b 21.08a 19.78b 0.499 <0.001
12 h 24.05b 28.19a 29.00a 29.26a 0.595 <0.001
24 h 46.84c 53.24a 50.96b 51.80b 0.645 <0.001
48 h 57.54c 60.90b 63.29a 62.11ab 0.617 <0.001
72 h 65.33 65.38 67.93 67.56 0.471 0.069
瘤胃降解参数 Rumen degradation parameters
a/% 4.40 4.94 6.55 5.86 0.352 0.126
b/% 68.27 67.79 71.07 70.06 0.753 0.410
c/(%/h) 0.028 0.034 0.030 0.031 0.001 0.588
ED/% 36.61b 40.45a 41.32a 40.68a 0.518 <0.001

3 讨论

3.1 纤维素酶和植物乳杆菌对苹果渣青贮营养成分的影响

DM含量是影响青贮品质的重要因素。DM含量过低时,有利于好氧细菌繁殖,降低青贮饲料的有氧稳定性并产生大量液体,造成环境污染和营养物质损失[15]。前期研究发现,采用自然风干的方式增加苹果渣DM含量,可提高青贮品质,改善瘤胃降解特性[6]。为避免长时间自然风干引起霉菌大量繁殖而腐败变质,本试验选择将新鲜苹果渣自然风干6 h后进行青贮试验。本研究结果表明,添加纤维素酶减少了NDF和ADF含量,但增加了青贮发酵前期DM损失率。与本研究结果相似,Li等[16]研究表明,纤维素酶可降低不同水分含量皇竹草青贮中NDF和ADF含量,但增加了DM损失率。青贮过程中,WSC作为底物可被微生物利用形成有机酸,同时纤维素等结构性碳水化合物可水解产生WSC[17]。本研究中,添加纤维素酶促进了结构性碳水化合物降解,降低了NDF和ADF含量,提高了WSC含量。经榨汁、洗涤等众多工序,苹果渣自身附着的同型发酵乳酸菌数量相对较少。同时,自然风干处理过程可能促进酵母菌、肠杆菌等杂菌增殖。添加纤维素酶后WSC含量提高,青贮发酵前期可能促进了其他杂菌的生长繁殖,从而增加了DM损失率[18]。本研究结果显示,添加植物乳杆菌未改变NDF与ADF含量,表明植物乳杆菌对苹果渣中纤维素等结构性碳水化合物降解无明显促进作用;此外,添加植物乳杆菌后可能提高了微生物对发酵底物的需求,导致WSC含量下降。纤维素酶和植物乳杆菌协同处理降低了NDF和ADF含量,提高了WSC含量,表明菌酶协同可促进结构性碳水化合物水解,为微生物提供充足发酵底物。同时,添加植物乳杆菌缓解了苹果渣自身附着同型发酵乳酸菌的不足和抑制了杂菌的大量增殖,有效避免了单独添加纤维素酶青贮发酵前期DM损失率增加。

3.2 纤维素酶和植物乳杆菌对苹果渣青贮发酵参数和霉菌毒素的影响

低pH环境可抑制微生物活性、减少营养物质流失,是实现青贮饲料长期稳定保存的关键条件[16]。本研究中,添加植物乳杆菌降低了pH,且pH<4.2,达到了优质青贮的标准。但需注意的是,本研究中青贮饲料pH最低降至3.2,较低pH水平虽进一步增强了保存效果,但可能对反刍动物胃肠道微生物及肠道上皮健康产生负面影响[19]。因此,在后续利用苹果渣青贮过程中可能需要控制其用量,避免因饲粮整体pH过低引发反刍动物瘤胃酸碱失衡、采食量下降等问题。与本研究结果一致,高博兰[20]研究发现,添加乳酸菌可降低苹果渣青贮的pH,改善青贮品质。pH降低主要源于微生物以WSC为底物发酵产生的LA、AA等有机酸的积累[21]。本研究结果表明,添加植物乳杆菌提高了苹果渣青贮的LA含量,这可能是pH降低的主要原因。添加植物乳杆菌后LA含量的提高主要归因于同型发酵乳酸菌的活动增强[8]。AA主要由肠杆菌和异型乳酸菌发酵产生[22],添加纤维素酶虽然增加了微生物发酵底物,但苹果渣自身附着微生物可能多为异型发酵乳酸菌、肠杆菌等,促进了AA产生和积累。此外,Rasmussen等[23]研究发现,半纤维素水解过程中乙酰基去除会伴随大量AA副产物生成,这也可能是AA含量增加的原因之一。Mu等[24]研究表明,添加纤维素酶可促进水稻秸秆与紫花苜蓿混合青贮中AA积累,并提高其有氧稳定性。
本研究中,与CON组相比,纤维素酶和植物乳杆菌协同添加提高了苹果渣青贮的LA、AA含量和LA/AA,降低了pH,改善了青贮品质。LA含量增加归因于苹果渣青贮中接种同型发酵乳酸菌(植物乳杆菌)后促进了LA的产生与积累。LA/AA常作为判断青贮发酵类型的重要指标,该比值升高可能指示青贮发酵过程更倾向于同型发酵,进而有利于降低青贮体系pH,改善青贮品质[25]。此外,青贮中适宜AA积累可抑制酵母菌和霉菌等有害菌增殖,提高有氧稳定性[26]。因此,纤维素酶单独添加或纤维素酶和植物乳杆菌协同添加可能具备提高苹果渣青贮有氧稳定性的潜力。本研究的发酵动态特征与传统青贮发酵认知存在一定差异。传统观点认为,青贮发酵30 d左右即可完成厌氧发酵阶段,随后逐步进入稳定贮存期,此阶段青贮体系内有机酸含量已趋于稳定,不会发生显著波动[17]。然而本研究发现,青贮40 d后LA、AA含量仍呈现显著变化,且随青贮时间的延长呈持续累积趋势。这一差异化现象可能由青贮原料特性、乳酸菌菌株特性及青贮环境温度等多重因素协同影响。苹果渣富含可溶性糖、果胶等发酵底物,这类底物可被微生物高效利用,为乳酸菌等功能微生物的持续代谢提供了充足的物质基础,从而延长了微生物的代谢活跃周期,推动有机酸持续合成[2]。此外,植物乳杆菌具备较强的耐酸性,即使在青贮后期较低的pH环境中仍能维持细胞活性与产酸能力,持续合成并分泌LA,进一步降低青贮体系pH的同时,促进有机酸总量累积[27]。同时,青贮过程中的环境温度可能对发酵进程产生影响。本研究青贮期间温度偏低,而低温环境可延缓微生物的生长代谢速率,导致厌氧发酵阶段后移[28]。不同时间点纤维素酶和植物乳杆菌对苹果渣青贮发酵参数和营养成分的影响存在差异,此现象归因于不同时间青贮发酵所处的阶段不同。关于苹果渣青贮随发酵时间不同的动态变化特征,以及纤维素酶和植物乳杆菌在不同发酵时期对苹果渣青贮品质的影响需进一步探究。
饲料安全指的是饲料中不含有害物质,可避免对动物的生理健康造成危害,并且不会在畜产品中残留有毒有害物质。因此,本研究检测了苹果渣青贮80 d后饲料中黄曲霉毒素B1含量,结果发现,各组均未检测出黄曲霉毒素B1,表明本研究各组的青贮饲料均对动物健康有一定的保障。

3.3 纤维素酶和植物乳杆菌对苹果渣青贮微生物组成的影响

微生物在青贮发酵过程中扮演着重要角色,了解微生物组成对于生产高质量青贮至关重要。本研究中,各组微生物β多样性存在差异,表明纤维素酶和植物乳杆菌可改变苹果渣青贮的微生物组成。与本研究结果一致,Xu等[29]研究发现,添加纤维素酶、植物乳杆菌改变了燕麦青贮的微生物β多样性。与Wang等[30]结果一致,本试验苹果渣青贮的优势菌门为厚壁菌门和变形菌门。除此之外,本试验中还鉴定到了醋杆菌门(Acidobacteria)、放线菌门等门水平微生物。虽然这些微生物在其他青贮研究中也被发现,但其在青贮过程中的确切作用仍需进一步研究[31]。属水平上,葡糖杆菌属、醋酸菌属、液体乳杆菌属为优势菌属。同型发酵乳酸菌未成为优势菌属可能归因于自然风干过程中其他杂菌的大量增殖,虽青贮发酵后pH降低限制了其活性,但其存在的遗传物质影响了后续16S rDNA的测序结果。优势菌属中葡糖杆菌属、醋酸菌属主要促进AA的产生,而液体乳杆菌属、黏液乳杆菌属、促生乳杆菌属(Levilactobacillus)、植物乳杆菌属(Lactiplantibacillus)等同型发酵乳酸菌主要促进LA的产生,与苹果渣青贮中LA/AA偏低结果一致。此外,液体乳杆菌属等在苹果酒等中被鉴定到,而传统青贮饲料中较少[32]。这一现象可能归因于苹果渣的底物特性,苹果渣富含果胶、可溶性糖等碳水化合物,其组分与酿酒原料相近,为适应高可溶性糖、耐酸的酒源乳杆菌提供了适宜的定植与代谢环境。
本研究中,添加纤维素酶降低了苹果渣青贮中变形菌门的相对丰度,提高了厚壁菌门的相对丰度。厚壁菌门可分泌纤维素酶、蛋白酶等活性酶,促进纤维素降解,且可在厌氧和低pH环境中增殖[33]。此外,大部分乳酸菌均属于厚壁菌门,而变形菌门主要包括大肠杆菌科(Enterobacteriaceae)等青贮有害菌。本研究中,添加纤维素酶增加了苹果渣青贮中乳杆菌科、丹毒丝菌科(Erysipelotrichaceae)及图利杆菌属的相对丰度。研究表明,乳杆菌科主要包括乳杆菌属(Lactobacillus)、植物乳杆菌属、乳酪杆菌属(Lacticaseibacillus)、片球菌属(Pediococcus)、伴生乳杆菌属(Companilactobacillus)、嗜水果乳杆菌属(Fructilactobacillus)等菌属,其多为有益菌,可促进青贮发酵,提高青贮品质[34]。丹毒丝菌科和图利杆菌属非青贮中常见微生物,其相对丰度提高可能与自然风干过程中杂菌增殖有关。本研究中,添加植物乳杆菌后苹果渣青贮中变形菌门、拟杆菌门、脱硫杆菌门和芽单胞菌门等的相对丰度降低,表明杂菌被有效抑制,有益于提高青贮品质。添加植物乳杆菌后,其未成为优势菌属,而优先占据生态位。因此,笔者推测可能厌氧发酵过程中微生物相互作用,改变了微生物组成,促进了其他微生物对生态位的占据,使其成为优势菌属[35]。此外,厚壁菌门和乳杆菌科相对丰度提高可能促进LA产生与积累,与LP组中LA含量升高结果一致。乳杆菌科主要包括的乳杆菌属、植物乳杆菌属、乳酪杆菌属、片球菌属、嗜水果乳杆菌属等均为同型发酵乳酸菌,可促进LA的产生。
在属水平上,本研究中添加植物乳杆菌降低了施莱弗氏乳杆菌属、葡糖杆菌属和棒状杆菌属等的相对丰度。研究表明,施莱弗氏乳杆菌属可利于碳水化合物发酵产生AA[36]。葡糖杆菌属属于醋杆菌科,厌氧条件下利于碳水化合物发酵产生AA[37]。异型发酵微生物的减少有益于同型发酵乳酸菌增殖,促进LA产生和积累。但本研究中添加植物乳杆菌后苹果渣青贮中AA含量未降低,其原因还需进一步探究。纤维素酶和植物乳杆菌协同处理后厚壁菌门、乳杆菌科和黏液乳杆菌属等青贮发酵有益菌的相对丰度增加,而变形菌门、醋杆菌科、普雷沃氏菌科和葡糖杆菌属等杂菌的相对丰度降低。研究指出,黏液乳杆菌属在青贮发酵中具有较强戊糖发酵能力,有利于减少DM损失并增强有氧稳定性[38]。Zhang等[38]研究发现,玉米秸秆青贮添加黏液乳杆菌属可促进LA产生,同时增强戊糖异质发酵产生AA,提高TA含量,降低pH,并提高有氧稳定性。因此,纤维素酶和植物乳杆菌协同处理后苹果渣青贮的黏液乳杆菌属等的相对丰度增加,及普雷沃氏菌科、葡糖杆菌属和棒状杆菌属等杂菌的相对丰度降低,这可能是苹果渣青贮品质改善的主要原因。

3.4 纤维素酶和植物乳杆菌对苹果渣青贮瘤胃降解特性的影响

瘤胃降解特性是评估反刍动物饲料营养价值的重要指标之一。多项研究证明,添加纤维素酶和植物乳杆菌可提高青贮饲料的瘤胃有效降解率[39-41]。本研究结果表明,添加纤维素酶或纤维素酶和植物乳杆菌协同处理降低了苹果渣青贮慢速降解部分比例,提高了快速降解部分比例和慢速降解部分的降解速度,从而增加了DM有效降解率。瘤胃降解参数的变化趋势表明,添加纤维素酶促进了结构性碳水化合物向非结构性碳水化合物转化,增加了DM有效降解率[41]。本研究中,添加植物乳杆菌增加了苹果渣青贮快速降解部分比例,提高DM有效降解率。这可能归因于植物乳杆菌促进了瘤胃微生物对青贮饲料的附着与降解,并减少了青贮发酵中可发酵有机物的损失[16]。本研究中,添加纤维素酶虽降低了苹果渣青贮NDF含量,却未提升其72 h瘤胃降解率,核心在于酶解作用的底物特异性。青贮阶段,纤维素酶优先水解NDF中易降解的纤维素和半纤维素,降低NDF含量;而剩余NDF以木质素-碳水化合物复合物为主,该致密结构显著阻碍了瘤胃微生物对纤维组分的降解进程,最终导致在瘤胃中长时间孵育的NDF降解率与CON组无明显差异。然而,纤维素酶和植物乳杆菌提高了NDF和ADF的瘤胃有效降解率。与本研究结果一致,Li等[39]研究发现,添加纤维素酶、植物乳杆菌或二者混合添加均提高了柱花草青贮的NDF和ADF瘤胃有效降解率。纤维素酶和植物乳杆菌破坏了饲料中纤维素结构,促进瘤胃微生物对结构性碳水化合物的附着和降解,可能是纤维素酶和植物乳杆菌单独或协同处理后苹果渣青贮NDF和ADF瘤胃有效降解率提高的主要原因[30]

4 结论

自然风干6 h将苹果渣水分调节至适宜水平后,添加纤维素酶降低了NDF和ADF含量,提高了WSC和AA含量,但增加了青贮发酵前期DM损失率;添加植物乳杆菌可促进LA的产生与积累,降低pH;添加纤维素酶和植物乳杆菌具有协同作用,可降低NDF和ADF含量,提高WSC含量,同时促进LA、AA产生,降低pH,且避免DM损失率增加。此外,单独添加纤维素酶、单独添加植物乳杆菌或二者混合添加均可改善苹果渣青贮瘤胃降解特性,提高DM、NDF、ADF瘤胃有效降解率,提高饲用价值。综上所述,纤维素酶和植物乳杆菌协同处理可有效改善苹果渣青贮品质。
[1]
赵圆圆, 樊雪莹, 成启明, 等. 不同混合比例茅台酒糟与芭蕉叶对其青贮饲料营养品质、发酵品质和微生物群落的影响[J]. 动物营养学报, 2024, 36(2):1340-1349.

DOI

ZHAO Y Y, FAN X Y, CHENG Q M, et al. Effects of different mixed proportions of Moutai distiller’s grains and Musa basjoo leaves on nutrient quality,fermentation quality and microbial community of silage[J]. Chinese Journal of Animal Nutrition, 2024, 36(2):1340-1349. (in Chinese)

[2]
ZHANG F, WANG T, WANG X, et al. Apple pomace as a potential valuable resource for full-components utilization:a review[J]. Journal of Cleaner Production, 2021, 329:129676.

DOI

[3]
SKINNER R C, GIGLIOTTI J C, KU K M, et al. A comprehensive analysis of the composition,health benefits,and safety of apple pomace[J]. Nutrition Reviews, 2018, 76(12):893-909.

[4]
RODRÍGUEZ MADRERA R, PANDO BEDRIÑANA R, SUÁREZ VALLES B. Enhancement of the nutritional properties of apple pomace by fermentation with autochthonous yeasts[J]. LWT-Food Science and Technology, 2017, 79:27-33.

DOI

[5]
MUCK R E, NADEAU E M G, MCALLISTER T A, et al. Silage review:recent advances and future uses of silage additives[J]. Journal of Dairy Science, 2018, 101(5):3980-4000.

DOI

[6]
吴志立, 张雄飞, 刘壮壮, 等. 含水量对苹果渣青贮品质、细菌群落和瘤胃降解特性的影响[J]. 中国畜牧杂志, 2025, 61(10):320-327.

WU Z L, ZHANG X F, LIU Z Z, et al. The effect of moisture content on the silage quality,bacterial community,and rumen degradation characteristics of apple pomace[J]. Chinese Journal of Animal Science, 2025, 61(10):320-327. (in Chinese)

[7]
DU Z M, YAMASAKI S, OYA T, et al. Cellulase-lactic acid bacteria synergy action regulates silage fermentation of woody plant[J]. Biotechnology for Biofuels and Bioproducts, 2023, 16(1):125.

DOI

[8]
WANG N W, WANG Y, LIN Y L, et al. Effect of lactic acid bacteria and wheat bran on the fermentation quality and bacterial community of Broussonetia papyrifera silage[J]. Chemical and Biological Technologies in Agriculture, 2023, 10(1):130.

DOI

[9]
AOAC. Official methods of analysis[M]. 21st ed.Washington,D.C.:AOAC International, 2019.

[10]
VAN SOEST P J, ROBERTSON J B, LEWIS B A. Methods for dietary fiber,neutral detergent fiber,and nonstarch polysaccharides in relation to animal nutrition[J]. Journal of Dairy Science, 1991, 74(10):3583-3597.

DOI

[11]
AOAC. Official methods of analysis[M]. 17th ed. Gaithersburg: The Association of Official Analytical Chemists, 2000.

[12]
BRODERICK G A, KANG J H. Automated simultaneous determination of ammonia and total amino acids in ruminal fluid and in vitro media[J]. Journal of Dairy Science, 1980, 63(1):64-75.

DOI

[13]
LI J W, MENG Q W, XING J X, et al. Citric acid enhances clean recycling of Chinese cabbage waste by anaerobic fermentation[J]. Journal of Cleaner Production, 2022, 348:131366.

DOI

[14]
BOLYEN E, RIDEOUT J R, DILLON M R, et al. Reproducible,interactive,scalable and extensible microbiome data science using QIIME 2[J]. Nature Biotechnology, 2019, 37(8):852-857.

DOI

[15]
TEIXEIRA FRANCO R, BUFFIÈRE P, BAYARD R. Ensiling for biogas production:critical parameters.A review[J]. Biomass and Bioenergy, 2016, 94:94-104.

DOI

[16]
LI F H, KE W C, DING Z T, et al. Pretreatment of Pennisetum sinese silages with ferulic acid esterase-producing lactic acid bacteria and cellulase at two dry matter contents:fermentation characteristics,carbohydrates composition and enzymatic saccharification[J]. Bioresource Technology, 2020, 295:122261.

DOI

[17]
周月明. 柑橘皮渣青贮饲料中微生物生态及其对饲料品质的影响机理研究[D]. 博士学位论文. 重庆: 重庆大学, 2019.

ZHOU Y M. Research on microbial ecology and its effect mechanism on silage quality during citrus waste ensiling[D]. Ph.D.Thesis. Chongqing: Chongqing University, 2019. (in Chinese)

[18]
BORREANI G, TABACCO E, SCHMIDT R J, et al. Silage review:factors affecting dry matter and quality losses in silages[J]. Journal of Dairy Science, 2018, 101(5):3952-3979.

DOI

[19]
THOMSON A L, HUMPHRIES D J, CROMPTON L A, et al. The effect of alfalfa (Medicago sativa) silage chop length and inclusion rate within a total mixed ration on the ability of lactating dairy cows to cope with a short-term feed withholding and refeeding challenge[J]. Journal of Dairy Science, 2018, 101(5):4180-4192.

DOI PMID

[20]
高博兰. 乳酸菌对苹果渣青贮发酵品质及体外发酵特性的影响[D]. 硕士学位论文. 哈尔滨: 东北农业大学, 2020:29-30.

GAO B L. Effects of lactic acid bacteria on fermentation quality of apple residue silage and fermentation characteristics in vitro[D]. Master’s Thesis. Harbin: Northeast Agricultural University, 2020:29-30. (in Chinese)

[21]
FENG Q X, ZHANG J, LING W Q, et al. Ensiling hybrid Pennisetum with lactic acid bacteria or organic acids improved the fermentation quality and bacterial community[J]. Frontiers in Microbiology, 2023, 14:1216722.

DOI

[22]
OLIVEIRA A S, WEINBERG Z G, OGUNADE I M, et al. Meta-analysis of effects of inoculation with homofermentative and facultative heterofermentative lactic acid bacteria on silage fermentation,aerobic stability,and the performance of dairy cows[J]. Journal of Dairy Science, 2017, 100(6):4587-4603.

DOI

[23]
RASMUSSEN H, SØRENSEN H R, MEYER A S. Formation of degradation compounds from lignocellulosic biomass in the biorefinery:sugar reaction mechanisms[J]. Carbohydrate Research, 2014, 385:45-57.

DOI

[24]
MU L, WANG Q L, WANG Y T, et al. Effects of cellulase and xylanase on fermentative profile,bacterial diversity,and in vitro degradation of mixed silage of agro-residue and alfalfa[J]. Chemical and Biological Technologies in Agriculture, 2023, 10(1):40.

DOI

[25]
KUNG L M Jr, SHAVER R D, GRANT R J, et al. Silage review:interpretation of chemical,microbial,and organoleptic components of silages[J]. Journal of Dairy Science, 2018, 101(5):4020-4033.

DOI

[26]
HAN L Y, BORJIGIN N, ZHU Y. Effect of inoculants and fibrolytic enzymes on the fermentation characteristics,in vitro digestibility and aflatoxins accumulation of whole-crop corn silage[J]. Grassland Science, 2017, 63(2):69-78.

DOI

[27]
XIE H, SHI C R, WEI Z, et al. Adaptive evolution refines short-term citric acid stress responses in Lactiplantibacillus plantarum:insights into enhanced acid tolerance[J]. LWT-Food Science and Technology, 2025, 229:118148.

DOI

[28]
BERNARDES T F, DANIEL J L P, ADESOGAN A T, et al. Silage review:unique challenges of silages made in hot and cold regions[J]. Journal of Dairy Science, 2018, 101(5):4001-4019.

DOI

[29]
XU J Y, ZHANG K Y, LIN Y F, et al. Effect of cellulase and lactic acid bacteria on the fermentation quality,carbohydrate conversion,and microbial community of ensiling oat with different moisture contents[J]. Frontiers in Microbiology, 2022, 13:1013258.

DOI

[30]
WANG Y, WANG C, ZHOU W, et al. Effects of wilting and Lactobacillus plantarum addition on the fermentation quality and microbial community of Moringa oleifera leaf silage[J]. Frontiers in Microbiology, 2018, 9:1817.

DOI

[31]
HE L W, LV H J, XING Y Q, et al. Intrinsic tannins affect ensiling characteristics and proteolysis of Neolamarckia cadamba leaf silage by largely altering bacterial community[J]. Bioresource Technology, 2020, 311:123496.

DOI

[32]
PUERTAS A I, LLAMAS-ARRIBA M G, ETXEBESTE O, et al. Characterization of the heteropolysaccharides produced by Liquorilactobacillus sicerae CUPV261 and Secundilactobacillus collinoides CUPV237 isolated from cider[J]. International Journal of Food Microbiology, 2023, 397:110199.

DOI

[33]
YUAN X J, DONG Z H, LI J F, et al. Microbial community dynamics and their contributions to organic acid production during the early stage of the ensiling of Napier grass (Pennisetum purpureum)[J]. Grass and Forage Science, 2020, 75(1):37-44.

DOI

[34]
LIU X D, WANG A F, ZHU L Q, et al. Effect of additive cellulase on fermentation quality of whole-plant corn silage ensiling by a Bacillus inoculant and dynamic microbial community analysis[J]. Frontiers in Microbiology, 2024, 14:1330538.

DOI

[35]
MA D B, LI J W, LIU J K, et al. The gain effect of microbial consortia induced by adaptive domestication for efficient conversion of Chinese cabbage waste by anaerobic fermentation[J]. Science of the Total Environment, 2024, 922:171313.

DOI

[36]
ZHENG Y, LI L, JIN Z K, et al. Characterization of fermented soymilk by Schleiferilactobacillus harbinensis M1,based on the whole-genome sequence and corresponding phenotypes[J]. LWT-Food Science and Technology, 2021, 144:111237.

DOI

[37]
GHARECHAHI J, KHARAZIAN Z A, SARIKHAN S, et al. The dynamics of the bacterial communities developed in maize silage[J]. Microbial Biotechnology, 2017, 10(6):1663-1676.

DOI PMID

[38]
ZHANG H, WU J W, ZHAO X L, et al. Improving aerobic stability and methane production of maize stover silage with lactic acid bacteria inoculants:focus on pentose-fermentation[J]. Industrial Crops and Products, 2023, 201:116861.

DOI

[39]
LI M, ZHOU H L, ZI X J, et al. Silage fermentation and ruminal degradation of stylo prepared with lactic acid bacteria and cellulase[J]. Animal Science Journal, 2017, 88(10):1531-1537.

DOI PMID

[40]
陈雷. 甜高粱和紫花苜蓿混合青贮发酵品质、有氧稳定性和体外瘤胃发酵特性的研究[D]. 博士学位论文. 南京: 南京农业大学, 2018.

CHEN L. Study on the fermentation quality,aerobic stability and in vitro ruminal fermentation characteristics of sweet sorghum-alfalfa silages[D]. Ph.D.Thesis. Nanjing: Nanjing Agricultural University, 2018. (in Chinese)

[41]
MA J, FAN X, MA Z, et al. Silage additives improve fermentation quality,aerobic stability and rumen degradation in mixed silage composed of amaranth and corn straw[J]. Frontiers in Plant Science, 2023, 14:1189747.

DOI

文章导航

/