研究论文

缓释尿素及酶解棉籽蛋白对瘤胃体外发酵特性和细菌群落结构的影响

  • 钟安熠 ,
  • 马秀莲 ,
  • 姜菲 ,
  • 彭忠利 ,
  • 高彦华 , *
展开
  • 西南民族大学畜牧兽医学院, 青藏高原动物遗传资源保护与利用教育部重点实验室,动物科学国家民委重点实验室, 成都 610041
*高彦华,讲师,硕士生导师,E-mail:

钟安熠(2000—),男,福建宁德人,硕士研究生,动物营养与饲料科学专业。E-mail:

Office editor: 靳爽

收稿日期: 2025-10-04

  网络出版日期: 2026-05-14

基金资助

四川省科技计划项目(2023NSFSC1148)

中央高校基本科研业务费专项资金项目(ZYN2025044)

Effects of Slow-Release Urea and Enzymatically Hydrolyzed Cottonseed Protein on in Vitro Rumen Fermentation Characteristics and Bacterial Community Structure

  • ZHONG Anyi ,
  • MA Xiulian ,
  • JIANG Fei ,
  • PENG Zhongli ,
  • GAO Yanhua , *
Expand
  • Key Laboratory of Animal Science of National Ethnic Affairs Commission of China, Ministry of Education Key Laboratory of Qinghai-Tibetan Plateau Animal Genetic Resources Reservation and Utilization, College of Animal and Veterinary Sciences, Southwest Minzu University, Chengdu 610041, China
*lecturer, E-mail:

Received date: 2025-10-04

  Online published: 2026-05-14

摘要

本试验旨在探究缓释尿素(SRU)及酶解棉籽蛋白(EHCP)对瘤胃体外发酵特性和细菌群落结构的影响。采用6×2双因素试验设计,分别在发酵底物中添加6个水平(0、3.2%、6.4%、9.6%、12.8%和16.0%,等量替代豆粕)SRU和2个水平(0和0.5%)EHCP,共设12个组,每组5个重复。体外发酵24 h,测定产气量、发酵参数、养分降解率及细菌群落结构。结果表明:1)SRU与EHCP对发酵12 h时的累积产气量、pH、干物质降解率(DMD)和粗蛋白质降解率(CPD)存在显著交互作用(P<0.05)。在0、3.2%、6.4%、9.6%和16.0% SRU添加水平下,与未添加EHCP相比,添加0.5% EHCP显著提高了发酵12 h的累积产气量(P<0.05);在未添加EHCP时,3.2%、6.4%、9.6%、12.8%和16.0% SRU添加组的DMD和CPD均显著高于0 SRU添加组(P<0.05);在添加0.5% EHCP时,9.6%、12.8%和16.0% SRU添加组的DMD显著高于0 SRU添加组(P<0.05)。2)SRU与EHCP对瘤胃液氨态氮(NH3-N)、微生物蛋白(MCP)和挥发性脂肪酸(VFA)含量均无显著交互作用(P>0.05)。与未添加SRU相比,添加各水平SRU均显著提高了瘤胃液NH3-N含量(P<0.05),添加9.6%、12.8%和16.0% SRU显著提高了瘤胃液MCP含量(P<0.05),添加16.0% SRU显著提高了瘤胃液乙酸含量(P<0.05);与未添加EHCP相比,添加0.5% EHCP显著提高了瘤胃液MCP、乙酸、丙酸和异戊酸含量(P<0.05)。3)细菌16S rRNA基因测序分析发现,各组之间瘤胃菌群β多样性存在显著差异(P<0.05)。与未添加SRU和EHCP相比,联合添加16.0% SRU和0.5% EHCP显著提高了纤维杆菌门和纤维杆菌属相对丰度(P<0.05)。Mantel-test相关性分析揭示,DMD、丙酸、异戊酸、乙酸、MCP和NH3-N含量与差异菌属相对丰度呈显著正相关(P<0.05)。综上所述,SRU和EHCP对瘤胃体外发酵12 h的累积产气量、pH、养分降解率存在显著交互作用,二者联合添加可显著改善瘤胃发酵特性,提高纤维杆菌属的相对丰度,并改变了瘤胃细菌群落的β多样性。

本文引用格式

钟安熠 , 马秀莲 , 姜菲 , 彭忠利 , 高彦华 . 缓释尿素及酶解棉籽蛋白对瘤胃体外发酵特性和细菌群落结构的影响[J]. 动物营养学报, 2026 , 38(5) : 3851 -3867 . DOI: 10.12418/CJAN2026.307

Abstract

This experiment was conducted to investigate the effects of slow-release urea (SRU) and enzymatically hydrolyzed cottonseed protein (EHCP) on in vitro rumen fermentation characteristics and bacterial community structure. A 6×2 two-factor experimental design was adopted, with six levels of SRU (0, 3.2%, 6.4%, 9.6%, 12.8% and 16.0%, replacing soybean meal in equal amounts) and two levels of EHCP (0 and 0.5%) added to the fermentation substrate. A total of 12 groups were set up with 5 replicates per group. In vitro fermentation was conducted for 24 hours, and gas production, fermentation parameters, nutrient degradability and bacterial community structure were measured. The results showed as follows: 1) there were significant interactive effects between SRU and EHCP on cumulative gas production at 12 h of fermentation, pH, dry matter degradability (DMD) and crude protein degradability (CPD) (P<0.05). At SRU supplemental levels of 0, 3.2%, 6.4%, 9.6% and 16.0%, supplementation with 0.5% EHCP significantly increased cumulative gas production at 12 h of fermentation compared with no EHCP supplementation (P<0.05). Without EHCP supplementation, DMD and CPD in the 3.2%, 6.4%, 9.6%, 12.8% and 16.0% SRU supplementation groups were significantly higher than those in the 0 SRU supplementation group (P<0.05). With 0.5% EHCP supplementation, DMD in the 9.6%, 12.8% and 16.0% SRU supplementation groups was significantly higher than that in the 0 SRU supplementation group (P<0.05). 2) There were no significant interactions between SRU and EHCP on rumen fluid ammonia nitrogen (NH3-N), microbial protein (MCP) and volatile fatty acid (VFA) contents (P>0.05). Compared with no SRU supplementation, supplementation with SRU at all levels significantly increased rumen fluid NH3-N content (P<0.05); supplementation with 9.6%, 12.8%, and 16.0% SRU significantly increased rumen fluid MCP content (P<0.05); supplementation with 16.0% SRU significantly increased rumen fluid acetate content (P<0.05). Compared with no EHCP supplementation, supplementation with 0.5% EHCP significantly increased rumen fluid contents of MCP, acetate, propionate and isovalerate (P<0.05). 3) Bacterial 16S rRNA gene sequencing analysis revealed significant differences in rumen bacterial β-diversity among groups (P<0.05). Compared with no SRU and EHCP supplementation, combined supplementation with 16.0% SRU and 0.5% EHCP significantly increased the relative abundances of Fibrobacterota and Fibrobacter (P<0.05). Mantel-test correlation analysis revealed that DMD and the contents of propionate, isovalerate, acetate, MCP and NH3-N were significantly positively correlated with the relative abundances of differential bacterial genera (P<0.05). In conclusion, SRU and EHCP exhibited significant interactive effects on cumulative gas production at 12 h of in vitro fermentation, pH and nutrient degradability. Their combined supplementation can significantly improve rumen fermentation characteristics, increase the relative abundance of Fibrobacter, and alter the β-diversity of the rumen bacterial community.

豆粕粗蛋白质含量高达46%且氨基酸组成均衡,是优质的畜禽饲粮蛋白质来源[1]。当前我国豆粕供应高度依赖进口,2022年大豆进口总量为9 108万t,其中饲用豆粕消费量6 580万t,约占大豆进口总量的88%[2]。我国饲用豆粕需求持续增长,而国内供应不足,蛋白质饲料资源供需呈现结构性失衡,大幅推高了畜禽养殖的饲料成本[3]。因此,开发高效可替代氮源成为研究关键,对提升养殖生产效率及降低进口蛋白质原料依赖具有重要战略意义。
缓释尿素(slow-release urea,SRU)作为一种重要的反刍动物非蛋白氮(non-protein nitrogen,NPN)来源,可有效解决常规尿素在瘤胃中水解速率过快、氨态氮(NH3-N)瞬时积累导致的氨中毒与氮利用率低等问题[4]。SRU通过物理包被或化学处理实现氮源的缓释,使氮源供应与能量供应同步,从而促进瘤胃微生物蛋白(MCP)的合成[5],并影响瘤胃微生物多样性[6]。Guo等[7]通过体外试验发现,饲粮中补充0.56% SRU可显著提高NH3-N、MCP和乙酸含量,并提升理研菌属(Rikenella)与普雷沃氏菌属(Prevotella)的相对丰度;Grossi等[8]研究表明,用0.22% SRU替代部分豆粕可显著提高奶牛饲料转化率、纤维降解率和日均产奶量。
酶解棉籽蛋白(enzymatically hydrolyzed cottonseed protein,EHCP)是以棉籽粕为原料,经蛋白酶水解制备而成的高效植物蛋白质源。与未经处理的棉籽粕相比,EHCP蛋白质含量更高且小肽含量显著增加[9]。研究表明,EHCP的添加能够为瘤胃微生物提供可利用的小肽和氨基酸底物,提高干物质降解率(DMD),进而改善奶牛产奶性能及瘤胃微生物群落结构[10]。Liu等[11]研究表明,奶牛饲粮中添加100 g/d酶解棉籽小肽可显著提高瘤胃中乙酸、丁酸及异丁酸含量;Yue等[10]研究表明,饲粮中添加0.4% EHCP可显著提升奶牛干物质消化率;Ma等[12]的体外发酵试验表明,饲粮中添加0.2%~1.0%酶解棉籽小肽可提高瘤胃球菌属(Ruminococcus)、双歧杆菌属(Bifidobacterium)等纤维及淀粉降解菌的相对丰度,改善瘤胃微生物群落结构。
现有研究表明,SRU可作为反刍动物替代豆粕等蛋白质饲料的重要氮源,EHCP能够以小肽和氨基酸形式为瘤胃微生物提供易于利用的氮源,并显著改善瘤胃发酵功能[12-13]。然而,二者联合应用是否对瘤胃微生态系统产生互作效应,特别是对细菌群落结构及多样性的影响,目前尚未见报道。因此,本研究通过体外发酵试验,评估SRU与EHCP联合添加对瘤胃发酵特性和细菌群落结构的影响,旨在揭示非蛋白氮与非豆粕植物蛋白质源的协同作用,为替代氮源在反刍动物饲粮中的高效安全应用和豆粕减量替代提供理论依据。

1 材料与方法

1.1 伦理声明

动物试验相关程序经西南民族大学实验动物伦理委员会批准,批准编号为SMU-202401125。

1.2 试验材料

SRU为非蛋白氮制剂,主要氮源为尿素(15.1%),通过与玉米粉(19.0%)、甜菜粕(11.9%)和稻草(54.0%)等载体原料均匀混合制备而成。载体原料在制剂中起稀释、吸附及结构支撑作用,以调控尿素在瘤胃中的释放过程。SRU营养成分为:粗蛋白质含量45.41%,中性洗涤纤维含量42.30%,酸性洗涤纤维含量22.02%,粗脂肪含量1.32%,粗灰分含量4.10%。EHCP采用液态复合酶对棉籽蛋白进行酶解制备,其营养成分为:小肽含量不低于36.0%,粗蛋白质含量55.0%,粗脂肪含量1.6%,粗灰分含量15.0%。

1.3 试验设计

采用6×2双因素试验设计,2个因素分别为SRU添加水平(0、3.2%、6.4%、9.6%、12.8%和16.0%)和EHCP添加水平(0和0.5%),共设12个组,分别为0 SRU组(A组)、3.2% SRU组(B组)、6.4% SRU组(C组)、9.6% SRU组(D组)、12.8% SRU组(E组)、16.0% SRU组(F组)、0 SRU+0.5% EHCP组(A1组)、3.2% SRU+0.5% EHCP组(B1组)、6.4% SRU+0.5% EHCP组(C1组)、9.6% SRU+0.5% EHCP组(D1组)、12.8% SRU+0.5% EHCP组(E1组)及16.0% SRU+0.5% EHCP组(F1组),每组5个重复,每个重复对应1头牛的瘤胃液。其中,A~F组发酵底物为添加0、3.2%、6.4%、9.6%、12.8%和16.0% SRU等量替代基础发酵底物中的豆粕,其组成及营养水平见表1。A1~F1组发酵底物为在A~F组发酵底物基础上添加0.5% EHCP。
表1 A~F组发酵底物组成及营养水平(干物质基础)

Table 1 Composition and nutrient levels of fermentation substrates in groups A to F (DM basis)%

项目
Items
缓释尿素添加水平 SRU supplemental level/%
0 3.2 6.4 9.6 12.8 16.0
原料 Ingredients
豆粕 Soybean meal 16.0 12.8 9.6 6.4 3.2
缓释尿素 SRU 3.2 6.4 9.6 12.8 16.0
玉米 Corn 22.0 22.0 22.0 22.0 22.0 22.0
苜蓿干草 Alfalfa hay 22.0 22.0 22.0 22.0 22.0 22.0
玉米青贮 Corn silage 40.0 40.0 40.0 40.0 40.0 40.0
合计 Total 100.0 100.0 100.0 100.0 100.0 100.0
营养水平 Nutrient levels
干物质 DM 90.97 90.86 91.55 92.93 91.00 90.61
粗脂肪 EE 2.31 2.09 2.50 2.66 2.73 2.31
粗蛋白质 CP 14.10 14.85 14.94 15.54 15.32 15.60
中性洗涤纤维 NDF 35.43 35.03 35.90 36.24 35.31 38.49
酸性洗涤纤维 ADF 18.91 19.22 20.44 20.78 21.44 22.01
粗灰分 Ash 5.44 5.57 5.71 5.91 6.25 6.22
淀粉 Starch 10.38 6.91 6.66 9.60 8.67 8.41
有机物 OM 85.53 85.29 85.84 87.02 84.75 84.39
泌乳净能 NEL/(MJ/kg) 6.92 6.79 6.66 6.53 6.40 6.27

干物质为风干基础;泌乳净能参照NRC(2001)计算,其余营养水平为实测值。

DM was air-dry basis; NEL was calculated according to NRC (2001), while the other nutrient levels were measured values.

1.4 体外瘤胃发酵试验及样品采集

瘤胃液采集自四川省成都市青白江区新希望奶牛场。选取5头健康荷斯坦奶牛,使用瘤胃导管采集瘤胃内容物,经4层无菌纱布过滤,去除大颗粒饲渣后,迅速转移至预先加热至39 ℃的保温瓶中,并持续充入二氧化碳以维持厌氧条件,随后立即转运回实验室用于体外发酵试验。
体外发酵试验参考Menke等[14]的方法。每1 L瘤胃缓冲液中含微量元素溶液0.1 mL,缓冲液208.1 mL,常量元素液208.1 mL,刃天青溶液1 mL,还原剂溶液62.4 mL,蒸馏水520.3 mL。取经4层纱布过滤的瘤胃液与瘤胃缓冲液按1∶2比例均匀混合,并在混合过程中持续通入二氧化碳气体,使溶液颜色从蓝色转为淡黄色,制备厌氧人工瘤胃液。精确称取1 g发酵底物置于100 mL一次性注射器中,加入50 mL厌氧人工瘤胃液,置于39 ℃恒温摇床发酵24 h,记录4、8、12、16、24 h累积产气量。发酵结束后将注射器置于冰上停止发酵,将发酵体系(含液体与固体混合物)通过250目尼龙布过滤,收集滤液作为瘤胃液样品,立即测定pH,并用于后续瘤胃发酵参数的测定;滤渣保留作为瘤胃残渣样品,经65 ℃恒温烘箱干燥至恒重,用于测定DMD和粗蛋白质降解率(CPD)。

1.5 指标测定及方法

1.5.1 营养成分含量及养分降解率测定

干物质含量参照GB/T 6435—2014测定;粗蛋白质含量参照GB/T 24318—2009,采用杜马斯燃烧法测定;粗脂肪含量参照GB/T 6433—2006,采用索氏提取法测定;粗灰分含量参照GB/T 6438—2007测定;中性洗涤纤维和酸性洗涤纤维含量参照Van Soet等[15]报道的纤维分析法利用Fibretherm FT12纤维测定分析仪(Gerhardt,德国)测定,淀粉含量参照Sniffen等[16]的方法测定;有机物含量由干物质和粗灰分含量的差值计算得出。DMD和CPD计算公式如下:

DMD(%)=100×(DM1-DM2)/DM1;

CPD(%)=100×(CP1-CP2)/CP1

式中:DM1为发酵前底物干物质含量(g);DM2为发酵后残渣干物质含量(g);CP1为发酵前底物粗蛋白质含量(g);CP2为发酵后残渣粗蛋白质含量(g)。

1.5.2 瘤胃发酵参数测定

pH通过PS-101便携式pH计(上海仪电科学仪器股份有限公司)测定;NH3-N含量参照冯宗慈等[17]改进的比色法测定;MCP含量参照姜菲等[18]的方法测定;VFA含量参照和立文[19]的方法使用Agilent 7890B GC气相色谱仪(Agilent,美国)测定,色谱条件为:进样口温度220 ℃,压力12.8 psi;色谱柱温度60 ℃,分流比3 mL/min;检测器(FID)温度250 ℃,燃气流量40.0 mL/min,空气流量400.0 mL/min,尾吹气流量45.0 mL/min。

1.5.3 产气动力学参数测定

体外产气量随时间变化的动力学参数采用Groot等[20]提出的公式进行计算:
GPt=A/[1+(C/t)B]。
式中:GPt表示t时间点(发酵时间)的累积产气量(mL/g DM);ABC为该指数方程的常数:A为理论最大产气量(mL/g DM);B为曲线陡度参数;C为达到1/2理论最大产气量的时间(h),ABC通过SPSS 19.0软件中的非线性拟合程序计算得出。

1.5.4 细菌16S rRNA基因测序及生物信息学分析

DNA提取及测序文库构建:采用E.Z.N.A.® Soil DNA Kit(Omega Bio-Tek,美国)提取样品总基因组DNA,利用1%琼脂糖凝胶电泳检测DNA完整性,并使用NanoDrop 2000超微量分光光度计(Thermo Scientific,美国)测定DNA纯度与浓度。以合格的基因组DNA为模板,使用通用引物515F(5'-GTGYCAGCMGCCGCGGTAA-3')和806R(5'-GGACTACNVGGGTWTCTAAT-3')对16S rRNA基因V3~V4可变区进行PCR扩增。扩增产物经琼脂糖凝胶纯化和Qubit 4.0定量后,采用NEXTFLEX Rapid DNA-Seq Kit构建测序文库,并在Illumina PE300/PE250平台(上海美吉生物医药科技有限公司)进行测序。
生物信息学分析:测序数据经fastp(v0.19.6)质控、FLASH(v1.2.11)拼接后,利用Qiime2中的DADA2插件进行去噪生成扩增子序列变体(ASV),基于Silva数据库(v138)完成物种分类注释。16S rRNA基因测序数据分析在美吉生物云平台(https://cloud.majorbio.com)进行。α多样性指数采用mothur软件(http://www.mothur.org/wiki/Calculators)计算,并采用Kruskal-Wallis秩和检验分析α多样性指数和物种的组间差异,通过错误发现率(FDR)对P值进行多重检验校正;基于Bray-Curtis距离算法进行主坐标分析(PCoA),结合置换多元方差分析(PERMANOVA)非参数检验,分析组间微生物群落结构的差异;基于Spearman相关系数|r|>0.6,P<0.05对瘤胃发酵参数和差异菌属进行Mantel-test相关性分析。

1.6 数据统计与分析

试验数据经Excel 2019初步整理后,采用SAS 9.4软件中的混合线性模型进行分析,以处理因素为固定效应,以瘤胃液样本为随机效应,并采用最小二乘均值法(LSMeans)结合Tukey法进行组间多重比较。结果以平均值和均值标准误(SEM)表示,P<0.05为差异显著。

2 结果与分析

2.1 SRU及EHCP对瘤胃体外发酵产气量及产气动力学参数的影响

表2可知,SRU与EHCP对发酵12 h的累积产气量存在显著交互作用(P<0.05)。其中,在0.5% EHCP添加水平下,9.6%、12.8%和16.0% SRU添加组的12 h累积产气量均显著低于0 SRU添加组(P<0.05);在0、3.2%、6.4%、9.6%和16.0% SRU添加水平下,0.5% EHCP添加组发酵12 h的累积产气量显著高于0 EHCP添加组(P<0.05)。主效应分析表明,SRU的添加显著影响了各时间点的累积产气量(P<0.05);与未添加EHCP相比,添加0.5% EHCP显著提高了除24 h以外其他时间点的累积产气量(P<0.05)。SRU与EHCP对产气动力学参数均无显著交互作用(P>0.05);但与未添加EHCP相比,添加0.5% EHCP显著提高了曲线陡度参数和达到1/2理论最大产气量的时间。
表2 SRU及EHCP对瘤胃体外发酵产气量及产气动力学参数的影响

Table 2 Effects of SRU and EHCP on in vitro rumen fermentation gas production and gas production kinetic parameters

项目
Items
累积产气量 Cumulative gas production/(mL/g DM) 产气动力学参数 Gas production kinetic parameters
4 h 8 h 12 h 16 h 24 h 理论最大产气量
Theoretical
maximum
gas production/
(mL/g DM)
曲线陡度
参数
Curve
steepness
parameter
达到1/2理论
最大产气量的时间
Time of reaching
1/2 theoretical
maximum gas
production/h
组别 Groups
A 12.00 51.00 88.60bcde 117.00 157.60 177.14 2.42 9.65
B 9.20 54.20 89.60bcd 120.60 158.20 177.18 2.46 9.69
C 4.60 42.80 80.80e 109.00 142.60 178.75 2.10 9.58
D 4.60 45.80 82.20de 111.80 144.20 178.88 2.08 9.58
E 6.80 47.20 89.60bcd 119.00 154.40 178.92 2.18 9.66
F 2.80 43.00 85.00cde 113.80 149.20 178.86 2.09 9.58
A1 17.67 70.40 104.60a 132.40 157.60 177.21 2.58 9.92
B1 15.20 64.80 103.80a 132.60 160.20 177.98 2.50 9.55
C1 11.00 64.80 104.00a 130.40 153.00 178.04 2.57 9.71
D1 10.20 55.80 94.60b 123.20 152.60 176.49 2.97 9.92
E1 9.50 55.50 91.50bc 122.50 153.25 177.24 2.46 9.70
F1 5.75 49.75 93.50b 121.75 145.25 178.13 2.31 9.67
SEM 1.291 2.858 2.782 2.996 3.189 0.698 0.156 0.093
SRU添加水平 SRU supplemental level/%
0 14.83a 60.70a 96.60a 124.70ab 157.60a 177.18 2.50 9.78
3.2 12.20a 59.50ab 96.70a 126.60a 159.20a 177.58 2.48 9.62
6.4 7.80b 53.80bc 92.40ab 119.70bc 147.80b 178.40 2.34 9.64
9.6 7.40b 50.80cd 88.40b 117.50c 148.40b 177.68 2.53 9.75
12.8 8.15b 51.35cd 90.55b 120.75abc 153.83ab 178.08 2.32 9.68
16.0 4.28c 46.38d 89.25b 117.78c 147.23b 178.49 2.20 9.62
SEM 0.913 2.021 1.967 2.119 2.392 0.494 0.110 0.656
EHCP添加水平 EHCP supplemental level/%
0 6.67b 47.33b 85.97b 115.20b 151.03 178.29 2.22b 9.62b
0.5 11.55a 60.18a 98.67a 127.14a 153.65 177.52 2.57a 9.74a
SEM 0.576 1.167 1.136 1.223 1.302 0.285 0.064 0.038
PP-value
SRU <0.001 <0.001 0.016 0.021 <0.001 0.353 0.227 0.632
EHCP <0.001 <0.001 <0.001 <0.001 0.125 0.064 <0.001 0.030
SRU×EHCP 0.609 0.057 0.016 0.098 0.210 0.342 0.174 0.232

SRU:缓释尿素;EHCP:酶解棉籽蛋白;SRU×EHCP:缓释尿素与酶解棉籽蛋白的交互作用。同列数据肩标无字母或相同小写字母表示差异不显著(P>0.05),不同小写字母表示差异显著(P<0.05)。下表同。

SRU: slow-release urea; EHCP: enzymatically hydrolyzed cottonseed protein; SRU×EHCP: the interaction between slow-release urea and enzymatically hydrolyzed cottonseed protein. In the same column, values with no letter or the same small letter superscripts mean no significant difference (P>0.05), while with different small letter superscripts mean significant difference (P<0.05). The same as below.

2.2 SRU及EHCP对瘤胃体外发酵参数的影响

表3可知,SRU与EHCP对瘤胃液pH存在显著交互作用(P<0.05),对瘤胃液NH3-N和MCP含量均无显著交互作用(P>0.05)。在0 SRU添加水平下,0.5% EHCP添加组瘤胃液pH显著高于0 EHCP添加组(P<0.05)。主效应分析表明,与未添加SRU相比,添加各水平SRU均显著提高了瘤胃液NH3-N含量(P<0.05),添加9.6%、12.8%和16.0% SRU显著提高了瘤胃液MCP含量(P<0.05);与未添加EHCP相比,添加0.5% EHCP显著提高了瘤胃液MCP含量(P<0.05)。
表3 SRU及EHCP对瘤胃体外发酵参数的影响

Table 3 Effects of SRU and EHCP on in vitro rumen fermentation parameters

项目 Items pH 氨态氮 NH3-N/(mg/mL) 微生物蛋白 MCP/(mg/mL)
组别 Groups
A 6.20g 4.76 15.74
B 6.23efg 5.41 16.10
C 6.24def 5.78 14.47
D 6.27def 6.18 16.70
E 6.34bc 6.95 17.55
F 6.41a 7.50 19.16
A1 6.29bcde 4.60 17.46
B1 6.29cde 5.49 18.54
C1 6.30cde 5.51 20.54
D1 6.21fg 5.94 20.73
E1 6.30bcd 6.63 20.17
F1 6.35ab 7.19 21.35
SEM 0.018 0.175 0.786
SRU添加水平 SRU supplemental level/%
0 6.25c 4.68e 16.60c
3.2 6.26c 5.45d 17.32bc
6.4 6.27c 5.64d 17.50bc
9.6 6.24c 6.06c 18.72ab
12.8 6.32b 6.79b 18.86ab
16.0 6.38a 7.34a 20.25a
SEM 0.022 0.124 0.556
EHCP添加水平 EHCP supplemental level/%
0 6.28 6.10 16.62b
0.5 6.29 5.89 19.80a
SEM 0.014 0.072 0.321
PP-value
SRU <0.001 <0.001 0.001
EHCP 0.420 0.053 <0.001
SRU×EHCP 0.002 0.882 0.074

2.3 SRU及EHCP对瘤胃体外发酵VFA含量的影响

表4可知,SRU与EHCP对瘤胃液乙酸、丙酸、丁酸、异戊酸、戊酸含量及乙丙比均无显著交互作用(P>0.05)。主效应分析表明,与未添加SRU相比,添加16.0% SRU显著提高了瘤胃液乙酸含量(P<0.05),添加3.2%、6.4%、12.8%和16.0% SRU显著降低了瘤胃液丁酸含量(P<0.05);与未添加EHCP相比,添加0.5% EHCP显著提高了瘤胃液乙酸、丙酸和异戊酸含量(P<0.05)。
表4 SRU及EHCP对瘤胃体外发酵VFA含量的影响

Table 4 Effects of SRU and EHCP on in vitro rumen fermentation VFA contents

项目
Items
乙酸
Acetate/
(mmol/L)
丙酸
Propionate/
(mmol/L)
丁酸
Butyrate/
(mmol/L)
异戊酸
Isovalerate/
(mmol/L)
戊酸
Valerate/
(mmol/L)
乙丙比
A/P
组别 Groups
A 28.80 17.11 27.90 0.85 2.43 2.16
B 24.58 14.14 22.32 0.71 1.73 2.24
C 27.77 15.88 23.41 0.73 1.87 2.02
D 30.47 17.04 26.51 0.78 2.10 1.98
E 30.73 17.11 24.40 0.76 1.83 2.02
F 33.02 18.14 25.38 0.80 1.88 2.05
A1 35.77 20.80 28.17 1.11 2.35 2.11
B1 33.28 18.96 23.41 0.98 1.88 2.14
C1 35.75 20.43 25.66 1.00 2.02 2.03
D1 38.18 21.48 25.37 1.23 1.93 2.01
E1 38.82 21.21 23.37 0.95 1.79 2.06
F1 39.79 21.57 24.20 0.92 1.79 1.93
SEM 1.741 0.926 1.440 0.084 0.126 0.076
SRU添加水平 SRU supplemental level/%
0 32.29bc 18.95a 28.03a 0.98 2.39a 2.14
3.2 28.93c 16.55b 22.86c 0.85 1.81b 2.19
6.4 31.76bc 18.15ab 24.53bc 0.86 1.94b 2.02
9.6 34.33ab 19.26a 25.94ab 1.00 2.02b 2.00
12.8 34.78ab 19.16a 23.88bc 0.85 1.81b 2.04
16.0 36.40a 19.85a 24.79bc 0.86 1.83b 1.99
SEM 1.232 0.655 1.019 0.060 0.089 0.063
EHCP添加水平 EHCP supplemental level/%
0 29.23b 16.57b 24.98 0.77b 1.97 2.08
0.5 36.93a 20.74a 25.03 1.03a 1.96 2.05
SEM 0.712 0.379 0.589 0.035 0.051 0.028
PP-value
SRU 0.002 0.017 0.013 0.239 <0.001 0.112
EHCP <0.001 <0.001 0.958 <0.001 0.847 0.501
SRU×EHCP 0.994 0.975 0.805 0.525 0.756 0.902

2.4 SRU及EHCP对瘤胃体外发酵养分降解率影响

表5可知,SRU与EHCP对DMD和CPD均存在显著交互作用(P<0.05)。在0 EHCP添加水平下,3.2%、6.4%、9.6%、12.8%和16.0% SRU添加组的DMD和CPD均显著高于0 SRU添加组(P<0.05);在0.5% EHCP添加水平下,与0 SRU添加组相比,9.6%、12.8%和16.0% SRU添加组的DMD显著提高(P<0.05),12.8% SRU添加组的CPD显著提高(P<0.05)。在相同SRU添加水平下,0.5% EHCP添加组的DMD显著高于0 EHCP添加组(P<0.05);在0、3.2%和6.4% SRU添加水平下,0.5% EHCP添加组的CPD显著高于0 EHCP添加组(P<0.05)。
表5 SRU及EHCP对瘤胃体外发酵养分降解率的影响

Table 5 Effects of SRU and EHCP on in vitro rumen fermentation nutrient degradation rates%

项目 Items 干物质降解率 DMD 粗蛋白质降解率 CPD
组别 Groups
A 58.01f 42.00g
B 59.65e 51.07f
C 60.35e 57.95e
D 60.03e 61.88de
E 59.65e 64.60bcd
F 59.76e 71.15a
A1 62.02d 61.91cde
B1 62.58d 62.41cd
C1 63.10cd 62.98cd
D1 64.18bc 64.06bcd
E1 65.20ab 68.75ab
F1 66.17a 65.97bc
SEM 0.550 1.514
SRU添加水平 SRU supplemental level/%
0 60.01d 51.96d
3.2 61.12c 56.74c
6.4 61.72bc 60.47b
9.6 62.10abc 62.97b
12.8 62.42ab 66.68a
16.0 62.97a 68.56a
SEM 0.386 1.073
EHCP添加水平 EHCP supplemental level/%
0 59.57b 58.11b
0.5 63.87a 64.35a
SEM 0.222 0.619
PP-value
SRU <0.001 <0.001
EHCP <0.001 <0.001
SRU×EHCP 0.012 <0.001

2.5 SRU及EHCP对瘤胃体外发酵细菌群落结构的影响

2.5.1 瘤胃体外发酵细菌菌群多样性分析

表6可知,SRU与EHCP对细菌α多样性指数(Sobs、Ace、Chao、Shannon和Simpson指数)均无显著交互作用(P>0.05),且SRU和EHCP的主效应对上述α多样性指数亦无显著影响(P>0.05)。
表6 SRU及EHCP对瘤胃体外发酵细菌α多样性的影响

Table 6 Effects of SRU and EHCP on in vitro rumen fermentation bacterial α-diversity

项目
Items
Sobs指数
Sobs index
Ace指数
Ace index
Chao指数
Chao index
Shannon指数
Shannon index
Simpson指数
Simpson index
组别 Groups
A 139.20 142.08 141.33 2.92 0.14
B 146.20 148.93 148.43 3.05 0.12
C 140.60 142.76 142.32 2.85 0.16
D 149.60 153.04 153.34 3.03 0.13
E 149.60 153.59 152.79 3.03 0.12
F 149.60 152.45 151.76 3.09 0.11
A1 152.40 157.55 156.26 3.23 0.09
B1 135.40 137.40 138.10 2.94 0.14
C1 151.40 155.39 153.77 3.21 0.09
D1 136.20 139.00 137.75 2.91 0.14
E1 135.20 136.70 135.92 2.95 0.13
F1 139.40 142.00 142.98 3.02 0.13
SEM 7.013 7.778 7.776 0.176 0.032
SRU添加水平 SRU supplemental level/%
0 145.80 149.82 148.80 3.07 0.12
3.2 140.80 143.16 143.27 3.00 0.13
6.4 146.00 149.07 148.04 3.03 0.12
9.6 142.90 146.02 145.54 2.97 0.14
12.8 142.40 145.14 144.36 2.99 0.13
16.0 144.50 147.22 147.37 3.05 0.12
SEM 5.012 5.503 5.542 0.127 0.019
EHCP添加水平 EHCP supplemental level/%
0 145.80 148.81 148.32 3.00 0.13
0.5 141.67 144.67 144.12 3.05 0.12
SEM 2.884 3.168 3.192 0.073 0.012
PP-value
SRU 0.973 0.959 0.977 0.992 0.991
EHCP 0.317 0.317 0.358 0.616 0.649
SRU×EHCP 0.181 0.156 0.188 0.572 0.553
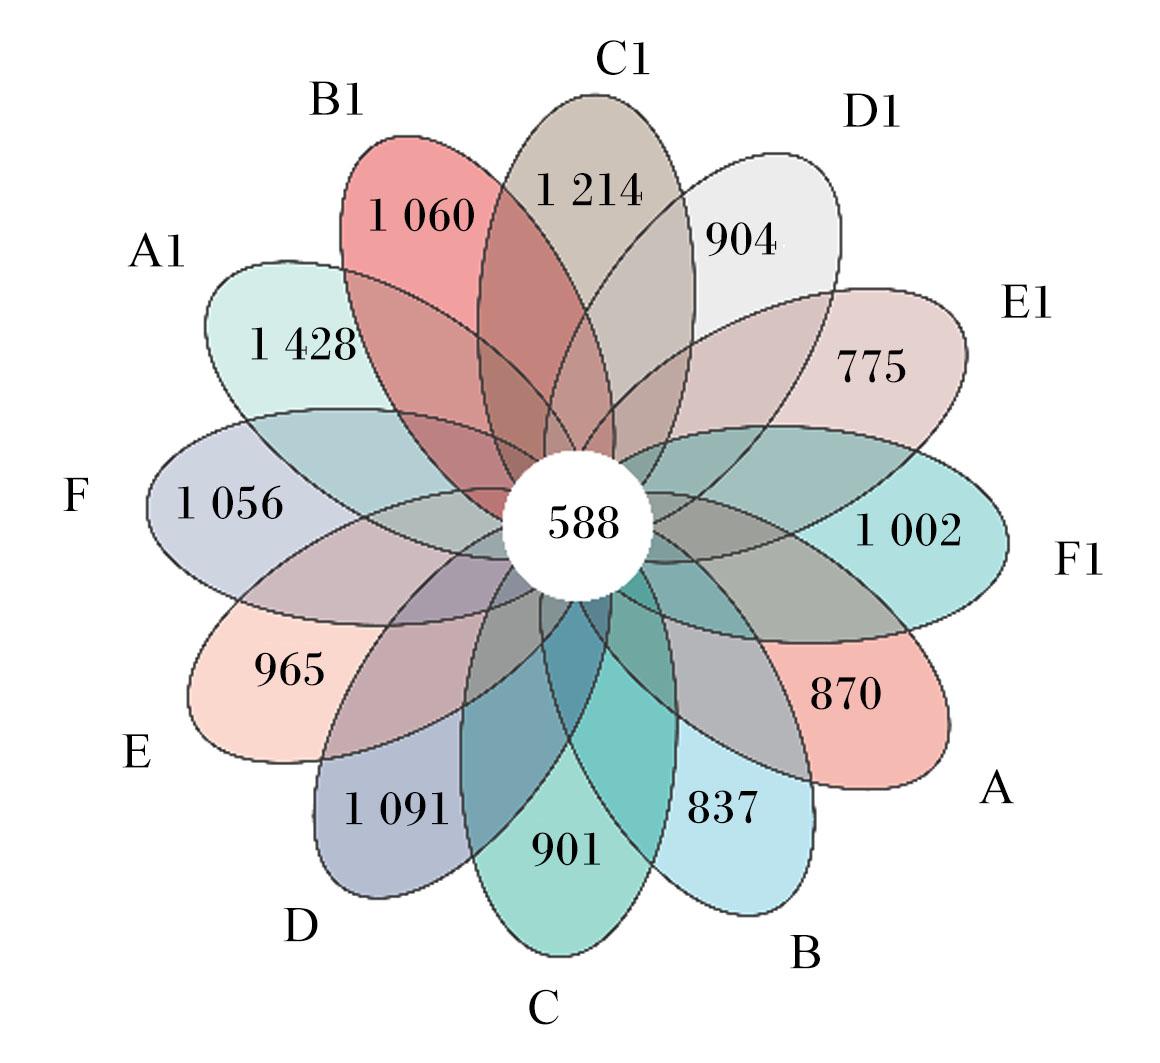
Venn图(图1)结果显示,12组样本共有ASV 588个,占ASV总数的4.85%。A、B、C、D、E和F组特有的ASV数量分别为870、837、901、1 091、965和1 056个,分别占ASV总数的7.19%、7.44%、6.92%、7.97%、9.01%和8.73%;A1、B1、C1、D1、E1和F1组特有的ASV数量分别为1 428、1 060、1 214、904、775和1 002个,分别占ASV总数的11.80%、8.76%、10.03%、7.47%、6.40%和8.27%。
图1 ASV水平Venn图

A、B、C、D、E、F、A1、B1、C1、D1、E1和F1分别表示A组、B组、C组、D组、E组、F组、A1组、B1组、C1组、D1组、E1组和F1组。下图同。

Fig.1 Venn diagram of ASV level

A, B, C, D, E, F, A1, B1, C1, D1, E1 and F1 represent group A, group B, group C, group D, group E, group F, group A1, group B1, group C1, group D1, group E1 and group F1, respectively. The same as below.

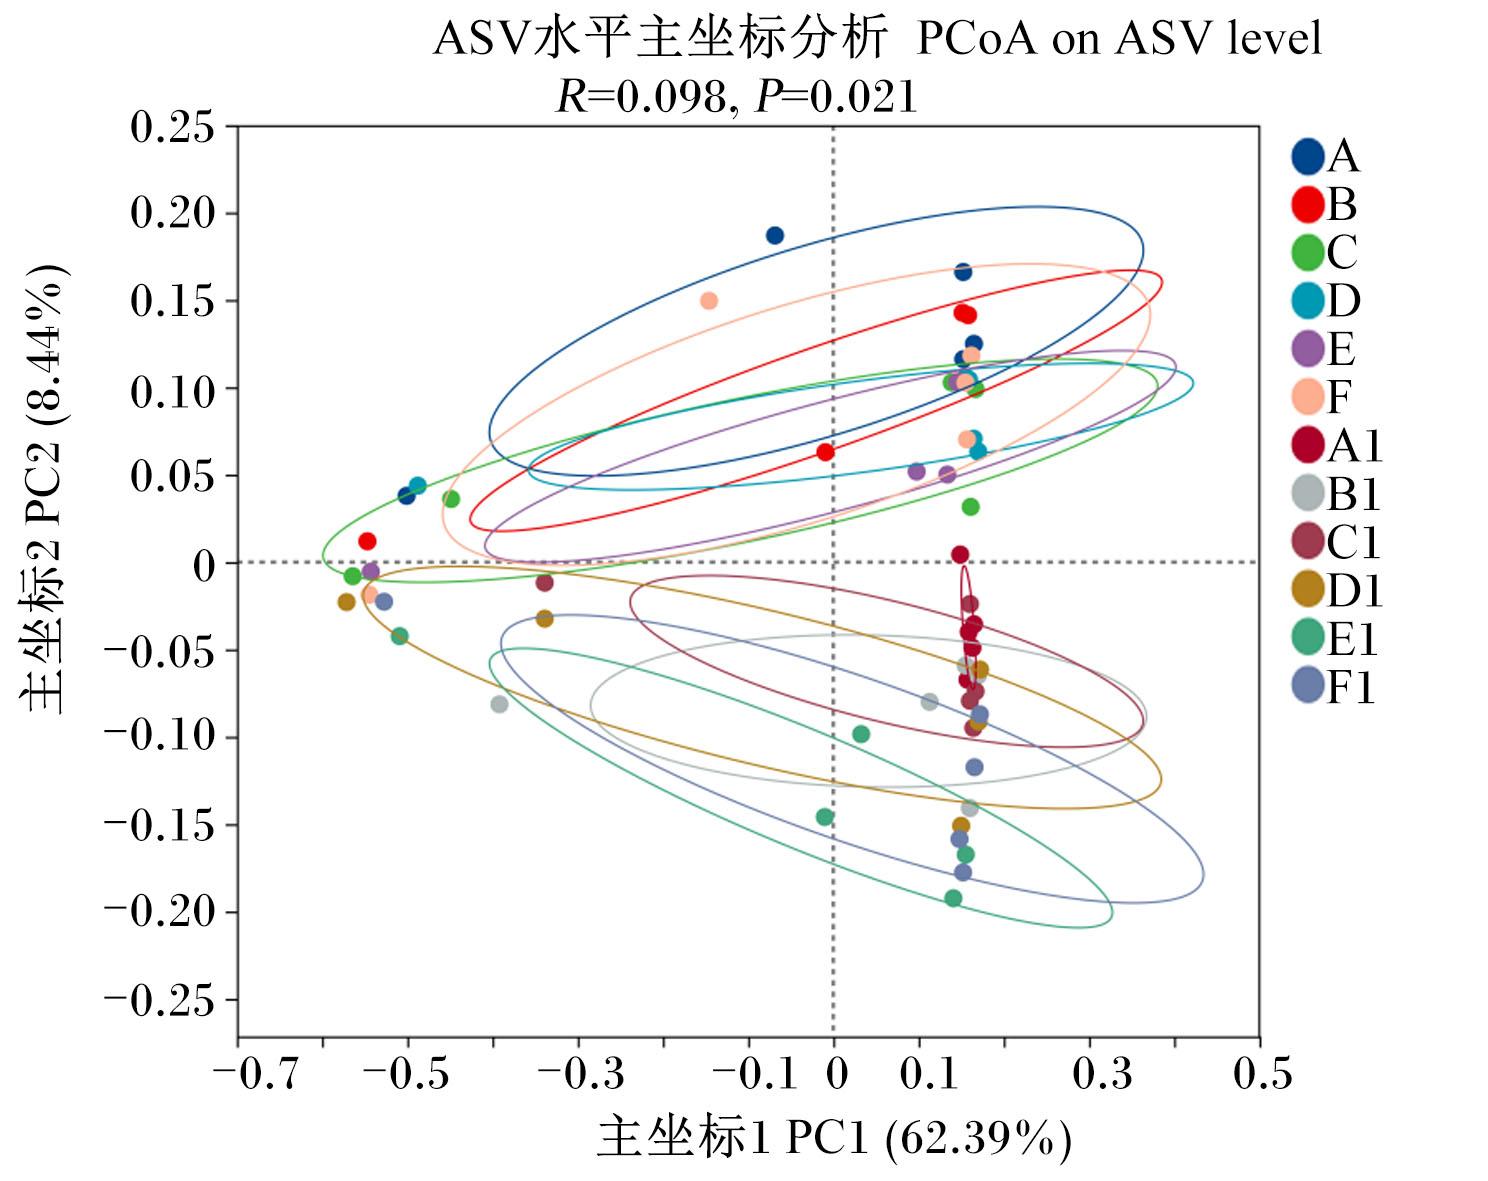
基于Bray-Curtis距离算法的PCoA展示了各组细菌群落的β多样性(图2)。PERMANOVA分析结果表明,各组间的细菌群落结构存在显著差异(P=0.021,R=0.098)。
图2 细菌群落主坐标分析

Fig.2 PCoA of bacterial community

2.5.2 瘤胃体外发酵细菌菌群组成分析

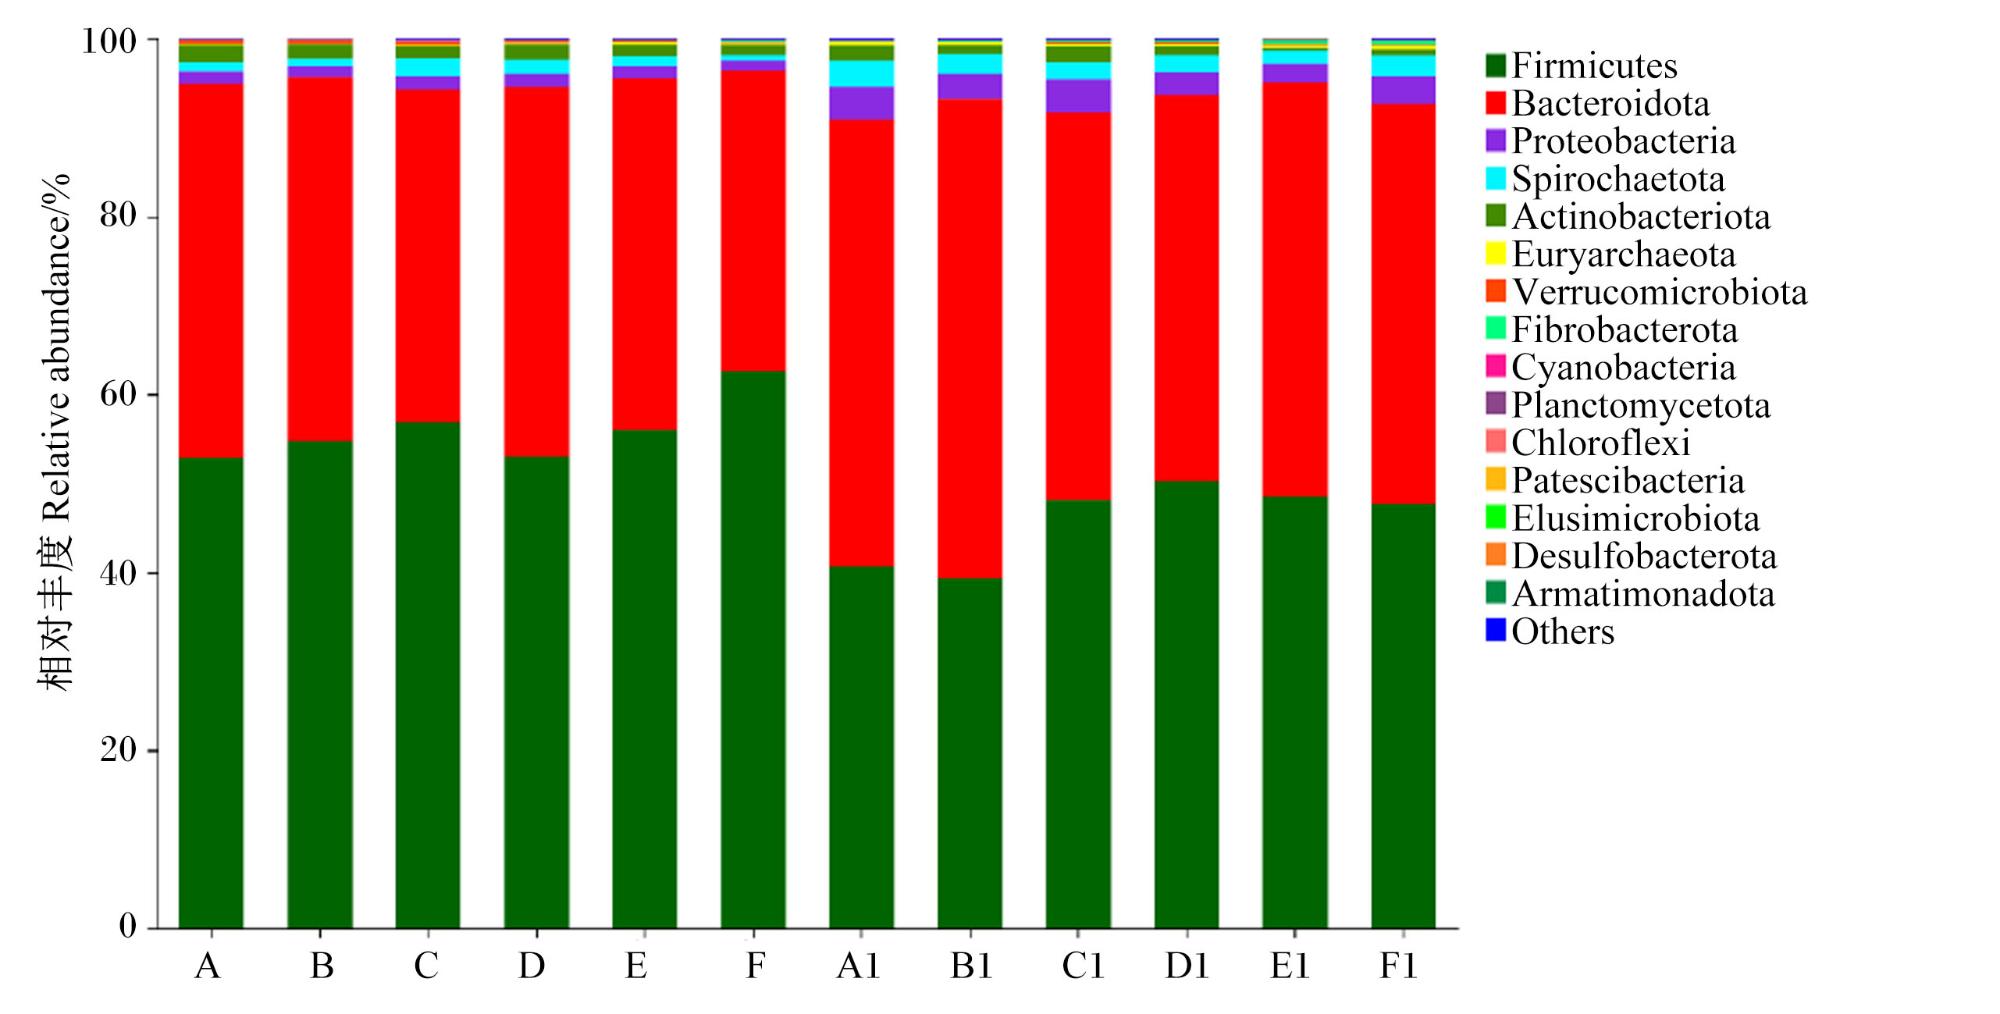
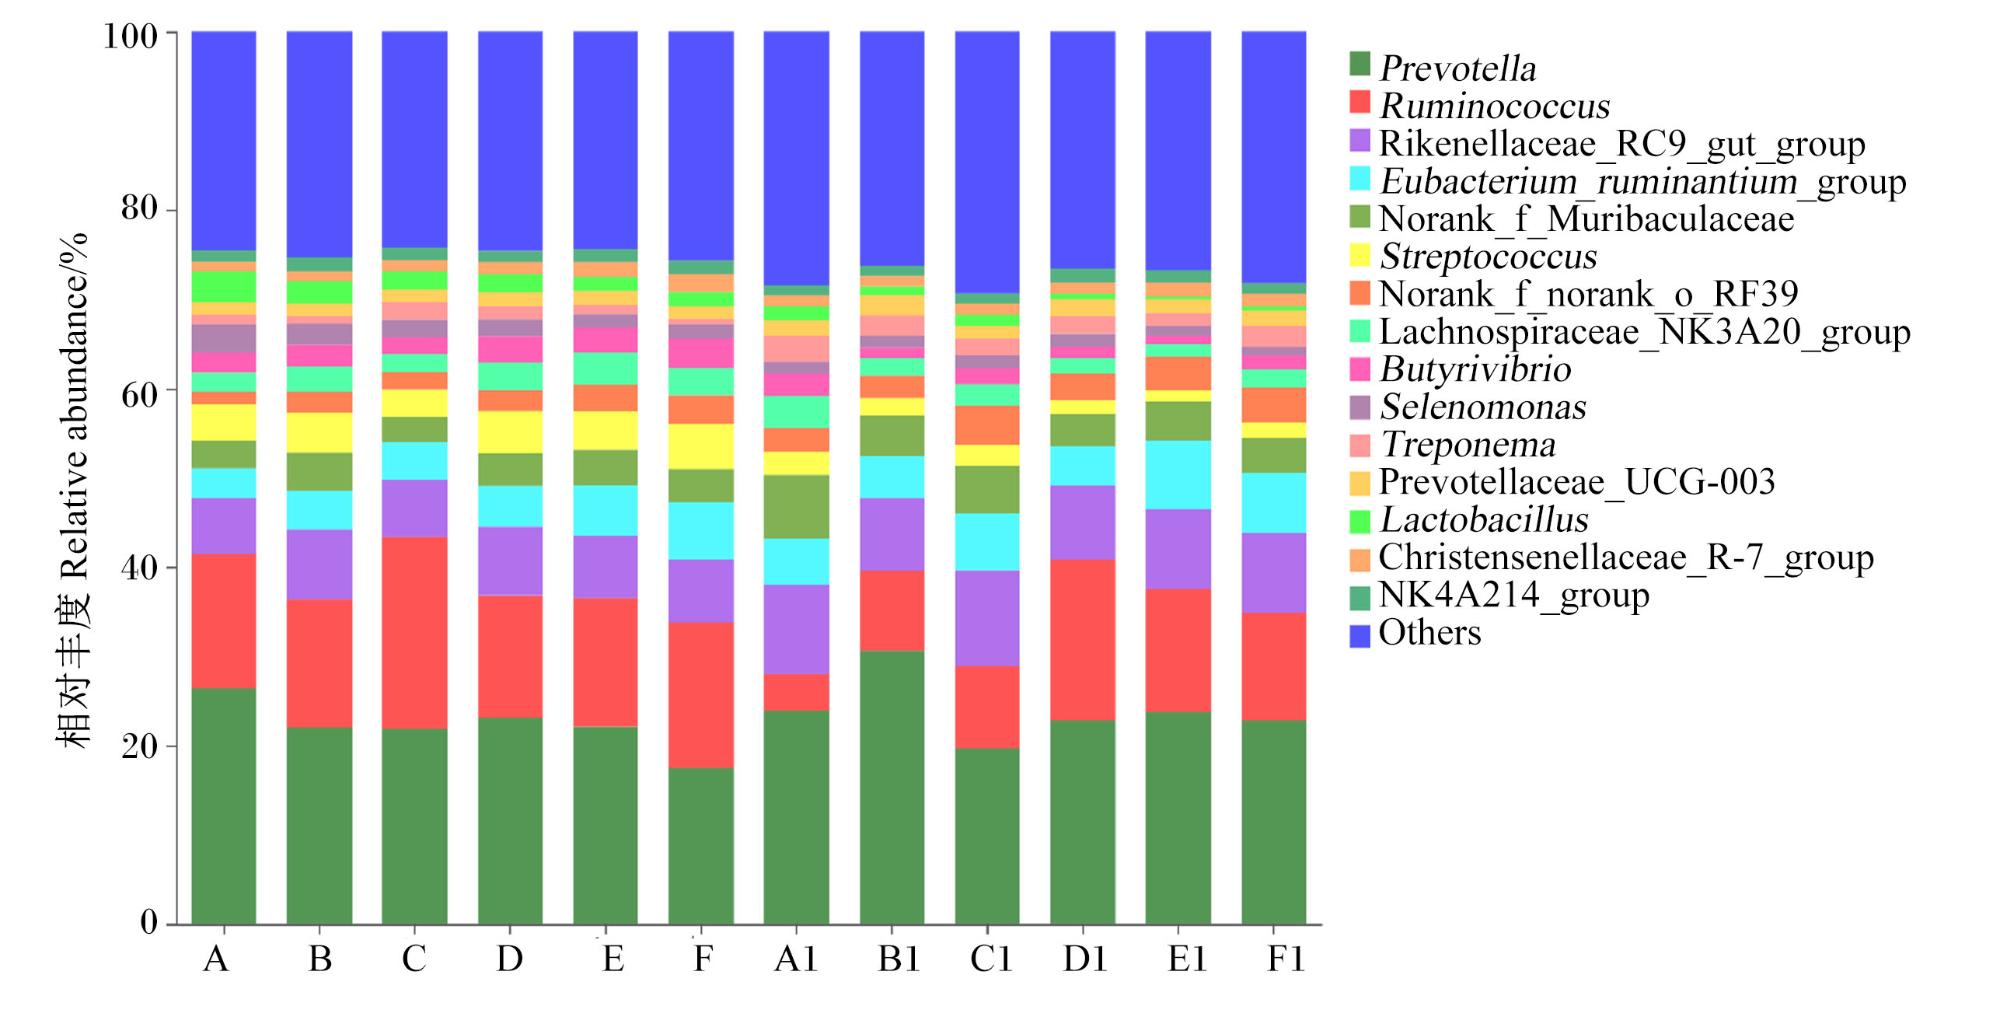
在门水平上(图3),各组共有的优势菌门依次为厚壁菌门(Firmicutes)、拟杆菌门(Bacteroidota)、变形菌门(Proteobacteria)、螺旋体门(Spirochaetota)、放线菌门(Actinobacteriota)、广古菌门(Euryarchaeota)。在属水平上(图4),各组共有的优势菌属依次为普雷沃氏菌属、瘤胃球菌属、理研菌科RC9肠道群(Rikenellaceae_RC9_gut_group)、反刍真杆菌群(Eubacterium_ruminantium_group)、未定级鼠杆菌科(norank_f_Muribaculaceae)、链球菌属(Streptococcus)。
图3 SRU及EHCP对瘤胃体外发酵门水平菌群组成的影响

Firmicutes:厚壁菌门;Bacteroidota:拟杆菌门;Proteobacteria:变形菌门;Spirochaetota:螺旋体门;Actinobacteriota:放线菌门;Euryarchaeota:广古菌门;Verrucomicrobiota:疣微菌门;Fibrobacterota:纤维杆菌门;Cyanobacteria:蓝细菌门;Planctomycetota:浮霉菌门 ;Chloroflexi:绿弯菌门;Patescibacteria:髌骨细菌门;Elusimicrobiota:迷踪菌门; Desulfobacterota:脱硫杆菌门;Armatimonadota:装甲菌门;Others:其他。

Fig.3 Effects of SRU and EHCP on in vitro rumen fermentation bacterial composition at phylum level

图4 SRU及EHCP对瘤胃体外发酵属水平菌群组成的影响

Prevotella:普雷沃氏菌属;Ruminococcus:瘤胃球菌属;Rikenellaceae_RC9_gut_group:理研菌科RC9肠道群;Eubacterium_ruminantium_group:反刍真杆菌群;Norank_f_Muribaculaceae:未定级鼠杆菌科;Streptococcus:链球菌属;Lachnospiraceae_NK3A20_group:毛螺菌科NK3A20群;Butyrivibrio:丁酸弧菌属;Selenomonas:月形单胞菌属;Treponema:密螺旋体属;Prevotellaceae_UCG-003:普雷沃氏菌菌科;UCG-003 Lactobacillus:乳杆菌属;Christensenellaceae_R-7_group:克里斯滕森氏菌科R-7群;NK4A214_group:NK4A214群;Others:其他。

Fig.4 Effects of SRU and EHCP on in vitro rumen fermentation bacterial composition at genus level

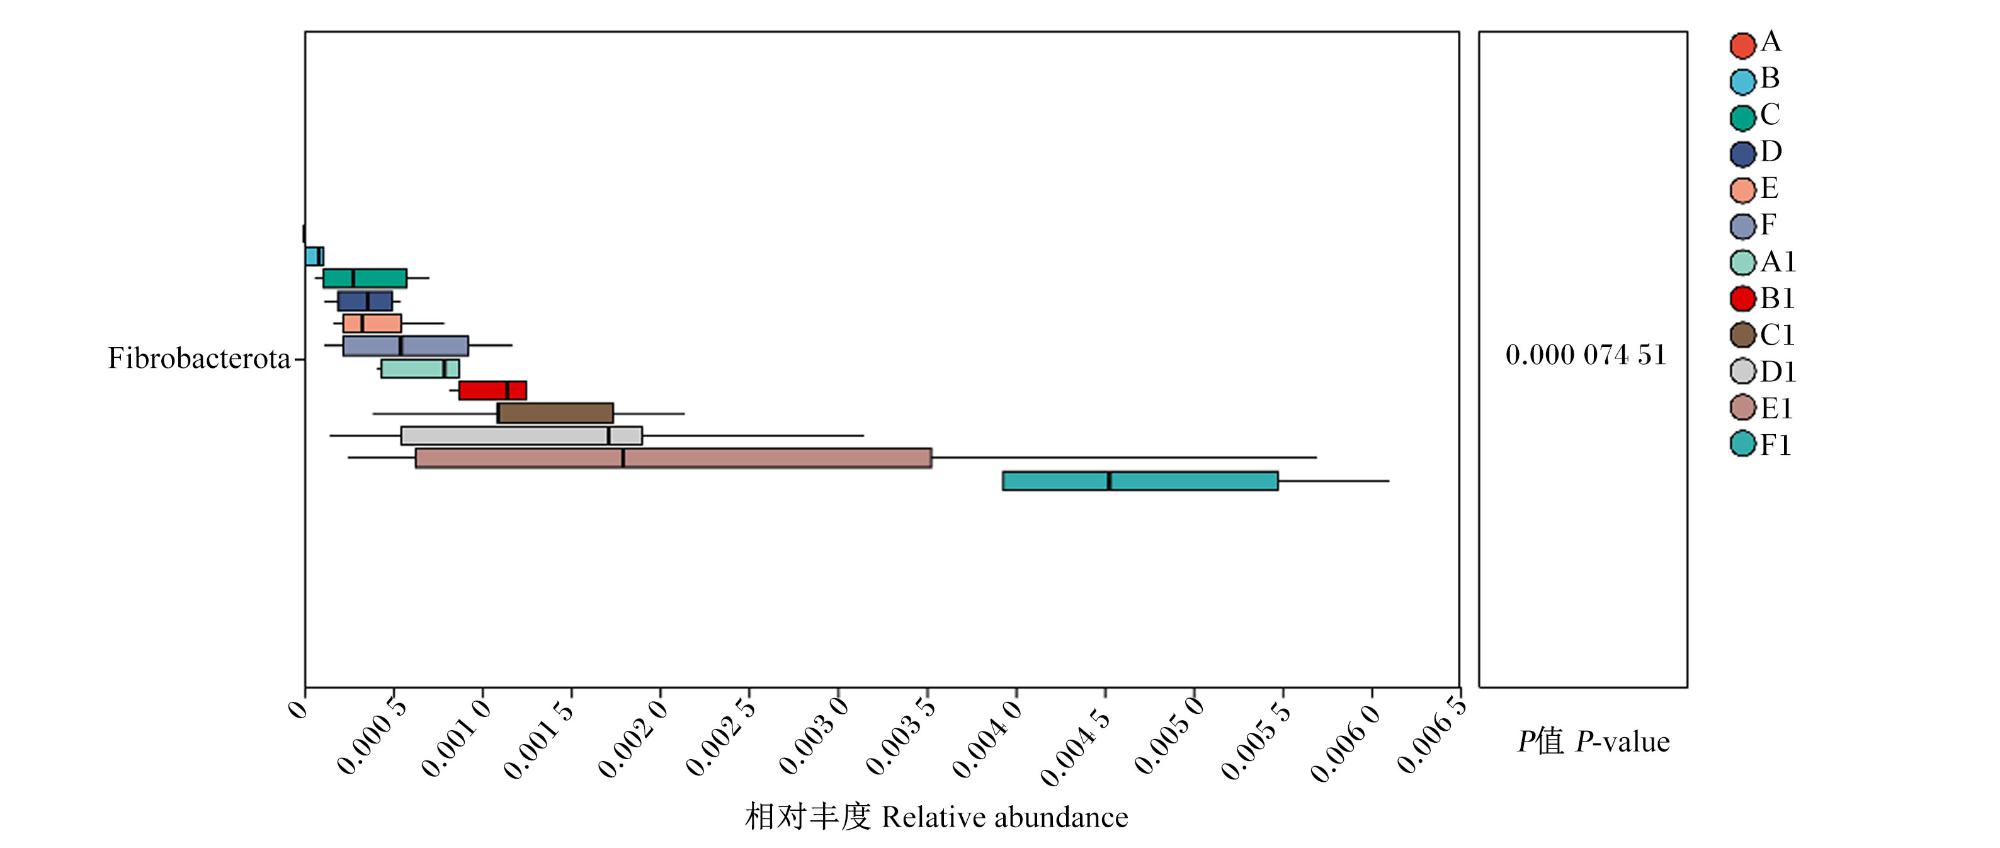
门水平的差异细菌分析表明(图5),与未添加EHCP组相比,在不同SRU水平发酵底物中添加0.5% EHCP均能够显著提高纤维杆菌门(Fibrobacterota)的相对丰度(P<0.05)。
图5 门水平差异菌群

Fibrobacterota:纤维杆菌门。

Fig.5 Differential microbiota at phylum level

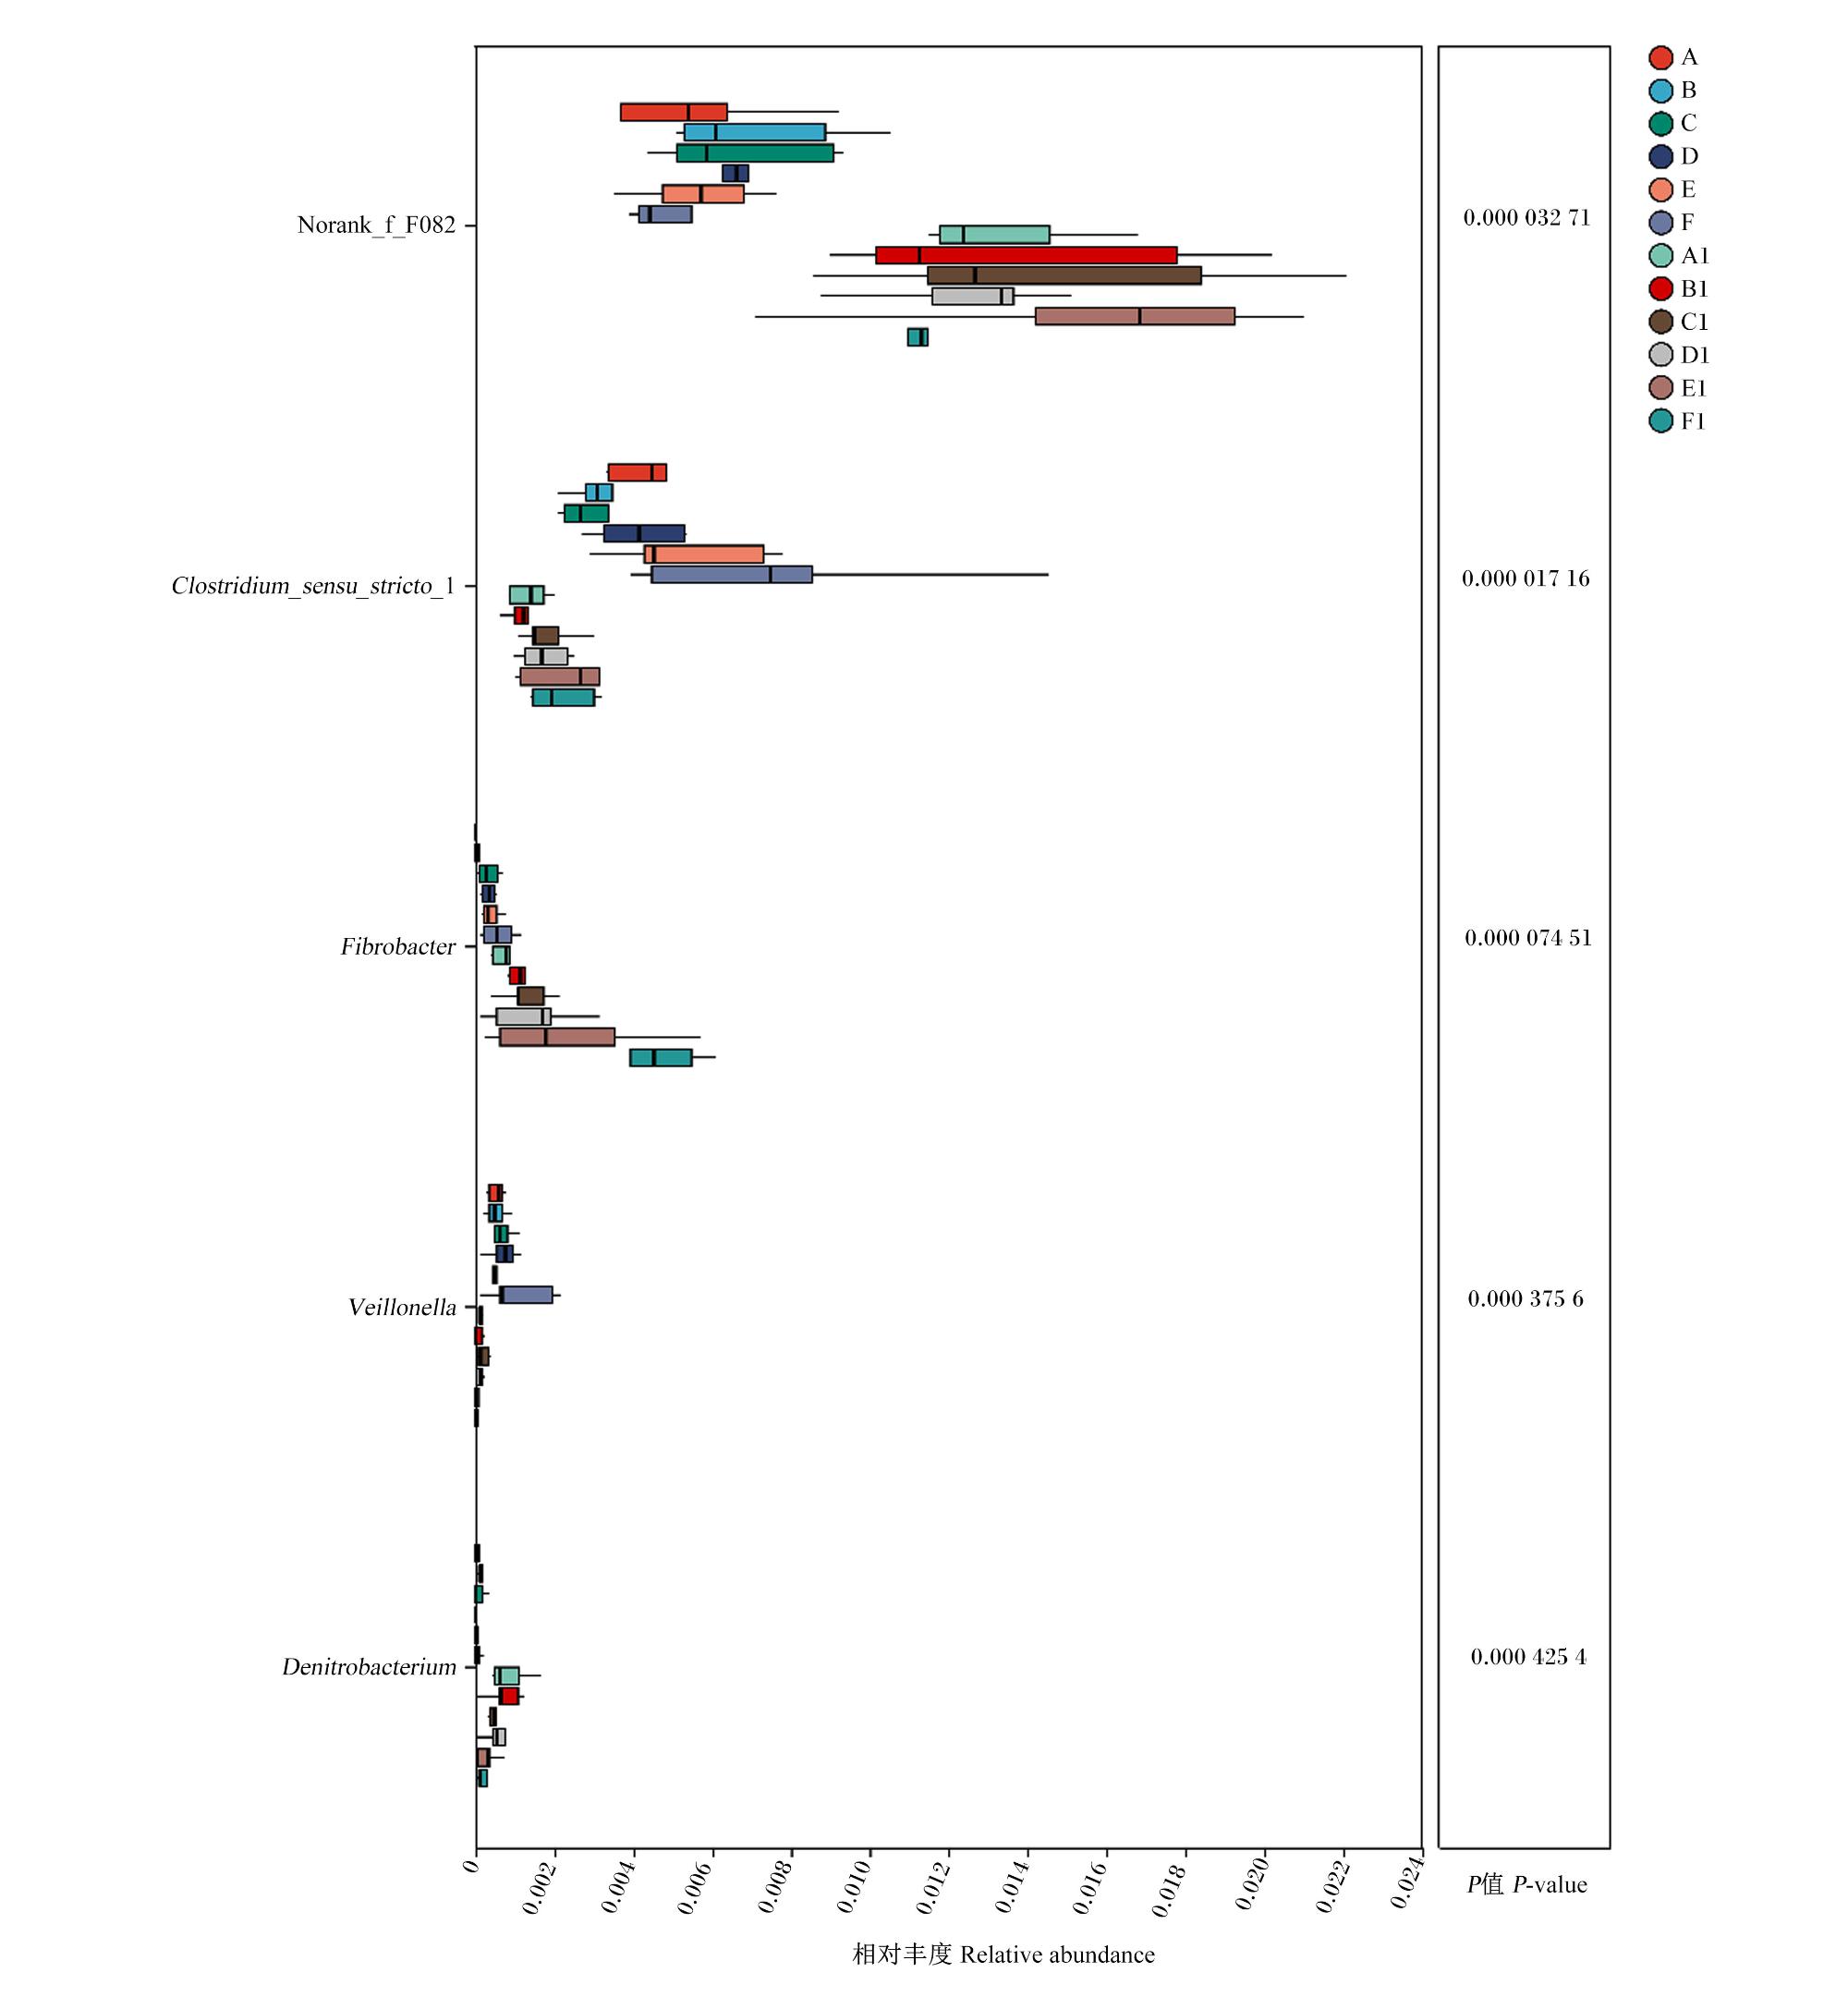
属水平的差异细菌分析表明(图6),与未添加EHCP组相比,在不同SRU水平发酵底物中添加0.5% EHCP均能够显著提高norank_f_F082的相对丰度(P<0.05),联合添加16.0% SRU和0.5% EHCP显著提高了纤维杆菌属(Fibrobacter)的相对丰度(P<0.05)。
图6 属水平差异菌群

Clostridium_sensu_stricto_1:狭义梭菌属1;Fibrobacter:纤维杆菌属;Veillonella:韦荣氏球菌属;Denitrobacterium:反硝化杆菌属。

Fig.6 Differential microbiota at genus level

2.5.3 Mantel-test相关性分析

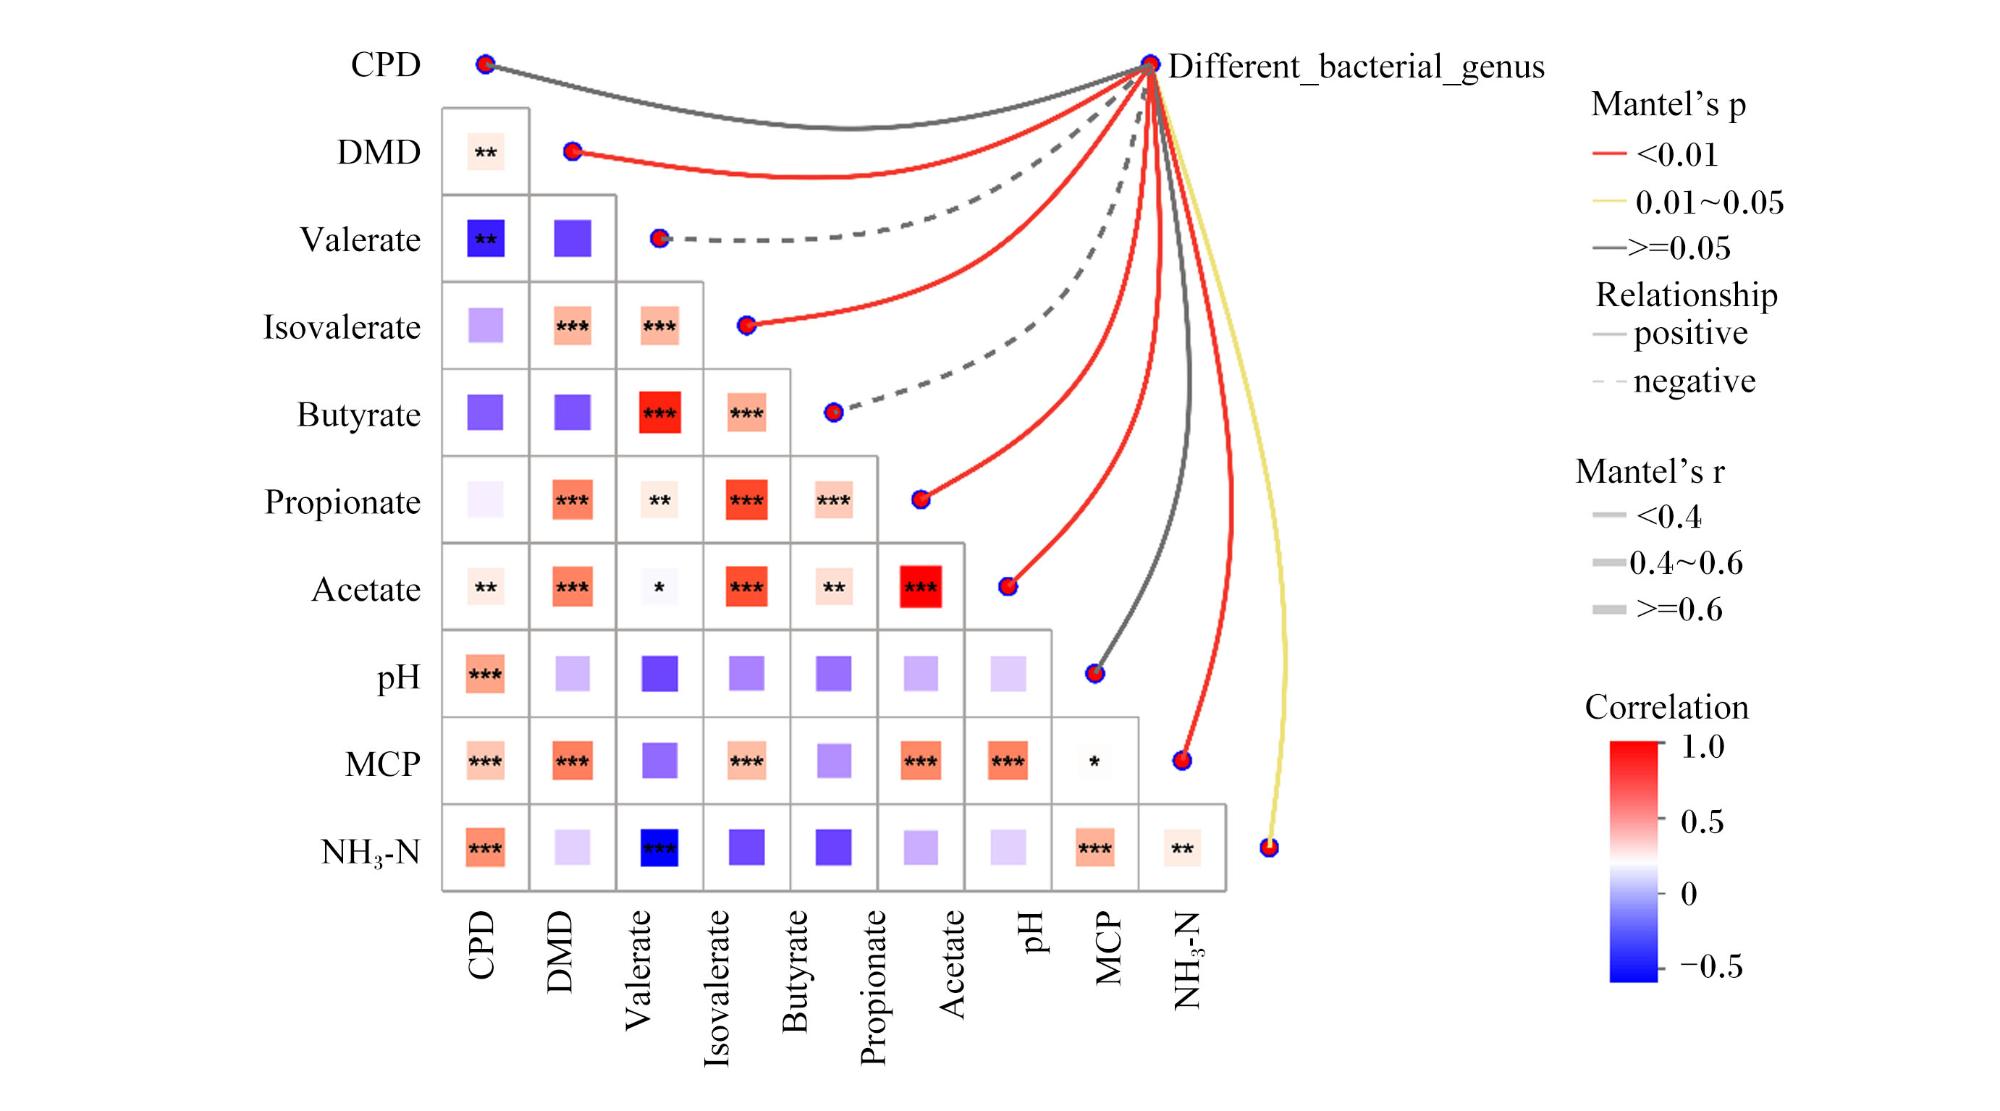
差异菌属相对丰度与瘤胃发酵参数及养分降解率之间的Mantel-test相关性分析显示(图7),差异菌属相对丰度与DMD、丙酸、异戊酸、乙酸、MCP以及NH3-N含量呈显著正相关(P<0.05),与CPD和pH呈正相关但未达显著水平(P>0.05),与戊酸和丁酸含量呈负相关但未达显著水平(P>0.05)。
图7 Mantel-test相关性分析热图

*:显著相关(P<0.05);**:极显著相关(P<0.01);***:极显著相关(P<0.001)。*: significant correlation (P<0.05); **: extremely significant correlation (P<0.01); ***: extremely significant correlation (P<0.001).

Mantel’s p:Mantel-test P值 Mantel-test P-value;Relationship:相关关系;positive:正相关;negative:负相关;Mantel’s r:Mantel-test相关系数 Mantel-test correlation coefficient;Correlation:相关性;Different_bacterial_genus:差异菌属;CPD:粗蛋白质降解率 crude protein degradability;DMD:干物质降解率 dry matter degradability;Valerate:戊酸;Isovalerate:异戊酸;Butyrate:丁酸;Propionate:丙酸;Acetate:乙酸;MCP:微生物蛋白 microbial protein;NH3-N:氨态氮 ammonia nitrogen。

Fig.7 Mantel-test correlation analysis heatmap

3 讨论

3.1 SRU及EHCP对瘤胃体外发酵产气量的影响

体外发酵产气量是反映饲粮养分降解和微生物活性的关键指标,来源于微生物分解蛋白质和碳水化合物并释放二氧化碳、甲烷与氢气的过程[21]。较高的产气量通常意味着可发酵底物丰富、微生物活性增强以及发酵程度较高[22]。本试验发现,在以3.2%、6.4%、9.6%和16.0% SRU等量替代豆粕的条件下,添加0.5% EHCP发酵12 h后,各组累积产气量均显著提高,与周亚强等[23]在饲粮添加6.67、13.33和20.00 g/kg EHCP所得研究结果一致。这表明EHCP所提供的小肽与氨基酸可被微生物快速利用[24],而SRU能够缓慢释放氮源,二者在氮源供给的时间上形成互补,从而促进了发酵。EHCP的添加提高了产气动力学参数中的曲线陡度参数值,该参数表征发酵早期底物的利用速率,说明EHCP可有效改善产气效率。已有研究表明,产气量与中性洗涤纤维和酸性洗涤纤维含量呈负相关[25]。本试验中,随着SRU替代豆粕比例的升高,发酵底物中的中性洗涤纤维和酸性洗涤纤维含量随之增加,这可能是SRU添加水平为9.6%和16.0%时累积产气量较未添加SRU时显著降低的主要原因。

3.2 SRU及EHCP对瘤胃体外发酵参数的影响

pH是反映瘤胃内环境稳定性的重要指标,其维持在5.5~7.5时,才能保障瘤胃微生物的正常生理功能[26]。本试验中各组瘤胃液pH为6.20~6.41,表明SRU与EHCP的添加未对瘤胃发酵环境产生不良影响。NH3-N是瘤胃氮代谢的关键中间产物,为微生物合成MCP提供氮源[27]。本研究发现,SRU与EHCP对瘤胃液NH3-N和MCP含量无显著交互作用;其中添加SRU显著提高了NH3-N含量,该结果与前人研究报道[7,28]一致,原因在于SRU的缓释特性可使氨持续释放,从而增加瘤胃液NH3-N含量[7]。MCP的合成量与瘤胃能氮同步性密切相关[29]。本试验结果表明,添加9.6%、12.8%和16.0% SRU及0.5% EHCP均能显著提高瘤胃液MCP含量,与Zhou等[13]的研究结果相符,表明SRU为瘤胃微生物提供了持续的氮源。EHCP通过酶解处理破坏了棉籽蛋白中的抗营养因子,可有效释放小分子肽和氨基酸。SRU与EHCP这2种氮源在功能上形成互补,通过不同途径促进了NH3-N向MCP的转化,从而减少氮损失[30],这揭示了非蛋白氮与非豆粕植物蛋白质源在瘤胃氮代谢中的互补调控作用。

3.3 SRU及EHCP对瘤胃体外发酵VFA含量的影响

VFA是瘤胃微生物发酵碳水化合物的主要代谢产物,可为反刍动物提供70%~80%的可消化能[31]。本研究未发现SRU与EHCP在瘤胃液VFA含量及乙丙比方面存在显著交互作用,主要表现为二者各自的主效应影响。与未添加SRU相比,添加3.2% SRU替代豆粕时乙酸含量有所降低,而添加16% SRU替代豆粕时能显著提高乙酸含量,可能是由于随着SRU添加水平的增加,瘤胃微生物获得了持续稳定的氮源供应,促进了纤维降解,从而提升了VFA的合成量[32]。此外,与未添加EHCP相比,添加0.5% EHCP能显著提高乙酸、丙酸及异戊酸含量,这与赵亚波等[33]在体外发酵试验中发现添加0.7% EHCP可显著提高瘤胃VFA含量的报道一致。EHCP可能通过破坏抗营养因子并释放小肽和氨基酸,为瘤胃微生物提供了更多可发酵底物,从而促进VFA合成[34]

3.4 SRU及EHCP对瘤胃体外发酵养分降解率的影响

DMD和CPD是评价瘤胃消化功能的重要指标,与发酵产气量呈显著正相关,可反映底物降解与能量代谢的同步性[35]。本研究发现,SRU与EHCP对DMD和CPD均存在显著交互作用。未添加EHCP时,添加低水平(3.2%、6.4%)SRU替代豆粕可显著提升DMD;而添加0.5% EHCP后,对应组别DMD无显著变化。此外,未添加EHCP时,添加SRU替代豆粕可显著提高CPD,这与张博等[36]报道的单独添加SRU可提高氮消化率的结论相符。而添加0.5% EHCP后,仅12.8% SRU添加组的CPD显著提高,其原因可能在于,添加EHCP后,其可提供小肽作为快速可利用氮源,使得CPD对SRU水平的依赖性减弱。

3.5 SRU及EHCP对瘤胃体外发酵细菌多样性的影响

瘤胃通过其中定植的复杂微生物群落降解饲粮纤维和蛋白质产生VFA和MCP,为宿主提供能量和可利用氮源[37-38]。本研究发现,SRU与EHCP对体外瘤胃细菌α多样性指数无显著交互作用,主效应也无显著影响,表明SRU和EHCP的添加未协同改变菌群的丰富度和多样性。但基于Bray-Curtis距离的PCoA分析显示,各组微生物群落显著分离,提示二者可重塑体外瘤胃微生物群落结构。本试验中,瘤胃优势菌门均为厚壁菌门、拟杆菌门和变形菌门。拟杆菌门具有分解饲粮中的碳水化合物生成丙酸,为机体提供能量的作用,同时还能降解多糖促进营养物质吸收[39];厚壁菌门主要负责降解纤维素[40]。优势菌属为普雷沃氏菌属、瘤胃球菌属和理研菌科RC9肠道群。普雷沃氏菌属是瘤胃内较为广泛的优势菌属,具有降解淀粉、细胞壁多糖的作用,也是主要的蛋白质降解菌[41];瘤胃球菌属隶属于厚壁菌门,可产生纤维素酶降解纤维为纤维二糖、戊糖和VFA[42]。本研究发现,在16.0% SRU基础上添加0.5% EHCP显著提高了纤维杆菌门和纤维杆菌属的相对丰度。前人研究表明,单独添加SRU对纤维杆菌的影响较为有限[7],而EHCP的添加则表现出促进瘤胃纤维杆菌门相对丰度的趋势[12-13],与本试验结果一致。纤维杆菌属可参与植物纤维降解[43],SRU作为缓释氮源,可在瘤胃内持续释放NH3-N,为纤维杆菌的生长代谢提供稳定的氮源以维持其菌体活性。同时,EHCP中的小肽能够被纤维分解菌利用促进菌体增殖并提高代谢效率[44]。Mantel-test相关性分析也表明,DMD与差异菌属相对丰度呈显著正相关。推测SRU与EHCP的联合添加增加了纤维分解菌的相对丰度,有助于提高DMD和CPD,增加体外发酵产气量,还可优化VFA的合成效率,尤其是促进乙酸和丙酸的生成,进而改善瘤胃整体发酵效率。

4 结论

① SRU与EHCP对瘤胃体外发酵12 h的累积产气量、pH和养分降解率存在显著交互作用,二者联合添加显著改善体外瘤胃发酵特性,提高纤维杆菌属的相对丰度,并改变了瘤胃细菌群落β多样性。
② 添加SRU等量替代豆粕可显著提高体外发酵瘤胃液NH3-N含量及DMD和CPD。添加0.5% EHCP可显著提高瘤胃液MCP含量、DMD和CPD。
[1]
DE FARIA A C, BOLSON D C, PINA D D S, et al. Levels of concentrates and protein sources in intensive pasture-based beef cattle rearing during the rainy season in the amazon biome[J]. PLoS One, 2025, 20(4):e0320629.

DOI

[2]
秦小童, 郭志强. 畜禽饲料豆粕减量替代的研究进展[J]. 饲料工业, 2025, 46(12):24-31.

QIN X T, GUO Z Q. Research progress on reduction and replacement of soybean meal in livestock and poultry feed[J]. Feed Industry, 2025, 46(12):24-31. (in Chinese)

[3]
李孟伟, 曾繁泉, 王克耀, 等. 茉莉花渣替代不同比例豆粕对奶水牛生长性能、营养物质表观消化率和血清生化指标的影响[J]. 动物营养学报, 2025, 37(6):3852-3862.

DOI

LI M W, ZENG F Q, WANG K Y, et al. Effects of replacing soybean meal with jasmine flower residue on growth peformance,nutrient apparent digestibility and serum biochemical indices of milk buffaloes[J]. Chinese Journal of Animal Nutrition, 2025, 37(6):3852-3862. (in Chinese)

[4]
CHANU Y M, PAUL S S, DEY A, et al. Reducing ruminal ammonia production with improvement in feed utilization efficiency and performance of Murrah buffalo (Bubalus bubalis) through dietary supplementation of plant-based feed additive blend[J]. Frontiers in Veterinary Science, 2020, 7:464.

DOI

[5]
CHOI Y, RYU J, LEE S R. Influence of carbon type and carbon to nitrogen ratio on the biochemical methane potential,pH,and ammonia nitrogen in anaerobic digestion[J]. Journal of Animal Science and Technology, 2020, 62(1):74-83.

DOI

[6]
ALIPOUR D, SALEEM A M, SANDERSON H, et al. Effect of combinations of feed-grade urea and slow-release urea in a finishing beef diet on fermentation in an artificial rumen system[J]. Translational Animal Science, 2020, 4(2):839-847.

DOI

[7]
GUO Y M, XIAO L, JIN L, et al. Effect of commercial slow-release urea product on in vitro rumen fermentation and ruminal microbial community using RUSITEC technique[J]. Journal of Animal Science and Biotechnology, 2022, 13(1):56.

DOI

[8]
GROSSI S, COMPIANI R, ROSSI L, et al. Effect of slow-release urea administration on production performance,health status,diet digestibility,and environmental sustainability in lactating dairy cows[J]. Animals, 2021, 11(8):2405.

DOI

[9]
ZHANG Q L, LIANG H L, XU P, et al. Effects of enzymatic cottonseed protein concentrate as a feed protein source on the growth,plasma parameters,liver antioxidant capacity and immune status of largemouth bass (Micropterus salmoides)[J]. Metabolites, 2022, 12(12):1233.

DOI

[10]
YUE S M, LI X M, QIAN J, et al. Impact of enzymatic hydrolyzed protein feeding on rumen microbial population,blood metabolites and performance parameters of lactating dairy cows[J]. The Pakistan Veterinary Journal, 2023, 43(4):804-808.

[11]
LIU E, XIAO W W, PU Q J, et al. Microbial and metabolomic insights into the bovine lipometabolic responses of rumen and mammary gland to zymolytic small peptide supplementation[J]. Frontiers in Veterinary Science, 2022, 9:875741.

DOI

[12]
MA P, HONG Y F, LIU C X, et al. Rumen microbiota responses to the enzymatic hydrolyzed cottonseed peptide supplement under high-concentrate diet feeding process[J]. Frontiers in Veterinary Science, 2022, 9:984634.

DOI

[13]
ZHOU J, DING Z Y, PU Q J, et al. Rumen fermentation and microbiome responses to enzymatic hydrolysate of cottonseed protein supplementation in continuous in vitro culture[J]. Animals, 2022, 12(16):2113.

DOI

[14]
MENKE K H, RAAB L, SALEWSKI A, et al. The estimation of the digestibility and metabolizable energy content of ruminant feedingstuffs from the gas production when they are incubated with rumen liquor in vitro[J]. The Journal of Agricultural Science, 1979, 93(1):217-222.

DOI

[15]
VAN SOEST P J, ROBERTSON J B, LEWIS B A. Methods for dietary fiber,neutral detergent fiber,and nonstarch polysaccharides in relation to animal nutrition[J]. Journal of Dairy Science, 1991, 74(10):3583-3597.

DOI

[16]
SNIFFEN C J, O’CONNOR J D, VAN SOEST P J, et al. A net carbohydrate and protein system for evaluating cattle diets:Ⅱ.Carbohydrate and protein availability[J]. Journal of Animal Science, 1992, 70(11):3562-3577.

DOI

[17]
冯宗慈, 高民. 通过比色测定瘤胃液氨氮含量方法的改进[J]. 内蒙古畜牧科学, 1993(4):40-41.

FENG Z C, GAO M. Improvement of the method for determining the ammonia-nitrogen content of rumen liquor by colourimetry[J]. Inner Mongolian Journal of Animal Sciences and Production, 1993(4):40-41. (in Chinese)

[18]
姜菲, 赖琦, 高彦华, 等. 添加异丁酸、2-甲基丁酸和戊酸对牦牛瘤胃体外发酵参数和养分降解率的影响[J]. 动物营养学报, 2022, 34(9):5915-5930.

DOI

JIANG F, LAI Q, GAO Y H, et al. Effects of supplementing isobutyric acid,2-methylbutyric acid and valeric acid on in vitro rumen fermentation parameters and nutrient degradation rates of yaks[J]. Chinese Journal of Animal Nutrition, 2022, 34(9):5915-5930. (in Chinese)

DOI

[19]
和立文. 全株玉米青贮品质评价及其对肉牛育肥性能和牛肉品质的影响[D]. 博士学位论文. 北京: 中国农业大学, 2017.

HE L W. Quality evaluation of corn silage and its effect on the growth performance and beef quality of finishing cattle[D]. Ph.D.Thesis. Beijing: China Agricultural University, 2017. (in Chinese)

[20]
GROOT J C J, CONE J W, WILLIAMS B A, et al. Multiphasic analysis of gas production kinetics for in vitro fermentation of ruminant feeds[J]. Animal Feed Science and Technology, 1996, 64(1):77-89.

DOI

[21]
HE L W, HUANG Y C, SHI L, et al. Steam explosion processing intensifies the nutritional values of most crop byproducts:morphological structure,carbohydrate-protein fractions,and rumen fermentation profile[J]. Frontiers in Nutrition, 2022, 9:979609.

DOI

[22]
VAZQUEZ-MENDOZA O V, ANDRADE-YUCAILLA V, ELGHANDOUR M M M Y, et al. Effect of dietary guanidinoacetic acid levels on the mitigation of greenhouse gas production and the rumen fermentation profile of alfalfa-based diets[J]. Animals, 2023, 13(11):1719.

DOI

[23]
周亚强, 姜宁, 于忠升, 等. 保护性蛋氨酸和缓释尿素对体外瘤胃发酵参数和纤维降解率的影响[J]. 黑龙江畜牧兽医, 2018(9):15-21,27.

ZHOU Y Q, JIANG N, YU Z S, et al. Effects of protective methionine and slow-release urea on rumen fermentation parameters and fiber degradation rate in vitro[J]. Heilongjiang Animal Science and Veterinary Medicine, 2018(9):15-21,27. (in Chinese)

[24]
XIE H D, ZENG F Q, GUO Y X, et al. Effect of tea seed oil on in vitro rumen fermentation,nutrient degradability,and microbial profile in water buffalo[J]. Microorganisms, 2023, 11(8):1981.

DOI

[25]
HIDAYAH N, NOVIANDI C T, ASTUTI A, et al. Chemical composition and in vitro rumen fermentation characteristics of various tropical seaweeds[J]. Journal of Advanced Veterinary and Animal Research, 2023, 10(4):751-762.

[26]
XU H Y, WANG G X, GAO Q H, et al. Microbial insights into ruminal fiber degradation and feed efficiency of Hu sheep[J]. Frontiers in Microbiology, 2025, 16:1561336.

DOI

[27]
WANG W K, WANG Y L, LI W J, et al. Gossypol exhibited higher detrimental effect on ruminal fermentation characteristics of low-forage in comparison with high-forage mixed feeds[J]. Toxics, 2021, 9(3):51.

DOI

[28]
严啊妮, 沈奔, 王洪荣, 等. 过瘤胃葡萄糖和缓释尿素对热应激绵羊生产性能及瘤胃发酵功能的影响[J]. 中国畜牧兽医, 2022, 49(6):2105-2115.

DOI

YAN A N, SHEN B, WANG H R, et al. Effects of rumen-protected glucose and slow-release urea on performance and rumen fermentation function of heat-stressed sheep[J]. China Animal Husbandry & Veterinary Medicine, 2022, 49(6):2105-2115. (in Chinese)

[29]
YIN X J, CHEN M J, YANG C H, et al. Effects of replacing soybean meal with cottonseed meal,peanut meal,rapeseed meal,or distillers’ dried grains with solubles on the growth performance,nutrient digestibility,serum parameters,and rumen fermentation in growing lambs[J]. Veterinary Sciences, 2024, 11(7):322.

DOI

[30]
TAN K, BIAN Z Y, LIANG H Q, et al. Enzymolytic soybean meal-impact on growth performance,nutrient digestibility,antioxidative capacity,and intestinal health of weaned piglets[J]. Frontiers in Veterinary Science, 2024, 11:1381823.

DOI

[31]
SEANKAMSORN A, CHERDTHONG A. Dried rumen digesta pellet can enhance nitrogen utilization in Thai native,Wagyu-crossbred cattle fed rice straw based diets[J]. Animals, 2019, 10(1):56.

DOI

[32]
张娇娇. 饲用缓释尿素对后备奶牛和肉牛体外瘤胃发酵参数、生长性能和血液指标的影响[D]. 硕士学位论文. 兰州: 兰州大学, 2018.

ZHANG J J. Effects of dietary slow-release urea supplementation on in vitro rumen fermentation、growth performance and serum parameters in dairy heifers and beef cattle[D]. Master’s Thesis. Lanzhou: Lanzhou University, 2018. (in Chinese)

[33]
赵亚波, 张腾龙, 张艳梅, 等. 棉籽酶解蛋白对奶牛瘤胃液体外发酵参数及微生物区系的影响[J]. 动物营养学报, 2021, 33(6):3297-3308.

DOI

ZHAO Y B, ZHANG T L, ZHANG Y M, et al. Effects of enzymatic hydrolysate of cottonseed protein on rumen fermentation and microflora of dairy cows in vitro[J]. Chinese Journal of Animal Nutrition, 2021, 33(6):3297-3308. (in Chinese)

[34]
ZHENG L, DUARTE M E, SEVAROLLI LOFTUS A, et al. Intestinal health of pigs upon weaning:challenges and nutritional intervention[J]. Frontiers in Veterinary Science, 2021, 8:628258.

DOI

[35]
WILACHAI K, PAENGKOUM P, TAETHAISONG N, et al. Effect of isolation ruminal yeast from ruminants on in vitro ruminal fermentation[J]. Veterinary Sciences, 2025, 12(2):155.

DOI

[36]
张博, 胡海燕, 张爱忠, 等. 缓释尿素和过瘤胃蛋氨酸复合使用对绵羊瘤胃发酵参数和氮代谢的影响[J]. 中国畜牧杂志, 2025, 61(6):361-366,374.

ZHANG B, HU H Y, ZHANG A Z, et al. Effect of a combination of slow-release urea and per rumen methionine on rumen fermentation parameters and nitrogen metabolism in sheep[J]. Chinese Journal of Animal Science, 2025, 61(6):361-366,374. (in Chinese)

[37]
LIU H J, XU T W, XU S X, et al. Effect of dietary concentrate to forage ratio on growth performance,rumen fermentation and bacterial diversity of Tibetan sheep under barn feeding on the Qinghai-Tibetan plateau[J]. PeerJ, 2019, 7:e7462.

DOI

[38]
YOU W, CHENG H J, HU X, et al. Capsaicin modulates ruminal fermentation and bacterial communities in beef cattle with high-grain diet-induced subacute ruminal acidosis[J]. Microorganisms, 2025, 13(1):84.

DOI

[39]
BRYANT M P, DOETSCH R N. Factors necessary for the growth of Bacteroides succinogenes in the volatile acid fraction of rumen fluid[J]. Journal of Dairy Science, 1955, 38(4):340-350.

DOI

[40]
THOREL M, OBREGON D, MULOT B, et al. Conserved core microbiota in managed and free-ranging Loxodonta africana elephants[J]. Frontiers in Microbiology, 2023, 14:1247719.

DOI

[41]
DAI X, TIAN Y, LI J T, et al. Metatranscriptomic analyses of plant cell wall polysaccharide degradation by microorganisms in the cow rumen[J]. Applied and Environmental Microbiology, 2015, 81(4):1375-1386.

PMID

[42]
ZHOU X N, MA Y, YANG C Y, et al. Rumen and fecal microbiota characteristics of Qinchuan cattle with divergent residual feed intake[J]. Microorganisms, 2023, 11(2):358.

DOI

[43]
BENNATO F, MARTINO C, DI DOMENICO M, et al. Metagenomic characterization and volatile compounds determination in rumen from Saanen goat kids fed olive leaves[J]. Veterinary Sciences, 2022, 9(9):452.

DOI

[44]
WEN S Y, ZHOU G H, SONG S X, et al. Discrimination of in vitro and in vivo digestion products of meat proteins from pork,beef,chicken,and fish[J]. Proteomics, 2015, 15(21):3688-3698.

DOI

文章导航

/