研究论文

南瓜皮多糖的硫酸化修饰及其抗疲劳机制研究

  • 张敬壮
展开
  • 郑州商学院体育学院, 郑州 451200

张敬壮(1980—),男,河南滑县人,讲师,硕士,研究方向为体育运动。E-mail:

Office editor: 陈 燕

收稿日期: 2025-11-08

  网络出版日期: 2026-06-13

Study on Sulfated Modification of Pumpkin Peel Polysaccharides and Their Anti-Fatigue Mechanism

  • ZHANG Jingzhuang
Expand
  • College of Physical Education, Zhengzhou Business University, Zhengzhou 451200, China

ZHANG Jingzhuang, lecturer, E-mail:

Received date: 2025-11-08

  Online published: 2026-06-13

摘要

本研究旨在探讨南瓜皮多糖(PPPs)的硫酸化修饰及其抗疲劳机制,并阐明其通过能量代谢与抗氧化缓解运动性疲劳的作用机理。以南瓜皮粉为原料,通过热水浸提法提取PPPs,并采用氯磺酸-吡啶法合成取代度分别为0.36±0.01和0.67±0.02的硫酸化南瓜皮多糖1(SPP1)和硫酸化南瓜皮多糖2(SPP2)。采用单因素完全随机试验设计,选取60只6周龄雄性昆明小鼠,随机分为5个组,每组12只。5个组分别为正常对照组(NC组)、疲劳对照组(FC组)以及3个干预组。3个干预组每日分别灌胃0.2 mL 125 mg/kg BW的PPPs(P组)、SPP1(S1组)和SPP2(S2组),NC和FC组每日灌胃等体积的生理盐水。连续灌胃4周后,除NC组外,其余4个组均建立运动性疲劳模型,建模完成后立刻取样。结果表明:1)与PPPs相比,SPP1和SPP2总糖含量显著下降(P<0.05),糖醛酸含量显著提高(P<0.05);SPP2取代度显著高于SPP1(P<0.05);硫酸化修饰可有效改变PPPs的化学组成与空间构象,且取代度越高,结构变化越明显。2)与FC组相比,P、S1和S2组小鼠骨骼肌的肌纤维排列更整齐、间质明显变窄,其中S2组的肌纤维更为完整。与FC组相比,P、S1和S2组小鼠游泳的力竭时间分别显著增加了5.47%、5.43%和8.31%(P<0.05),血清中超氧化物歧化酶(SOD)、谷胱甘肽过氧化物酶(GSH-Px)和过氧化氢酶(CAT)活性以及肝糖原、肌糖原含量均显著增加(P<0.05),血清中丙二醛(MDA)、甘油三酯、乳酸(LA)和尿素氮(UN)含量及乳酸脱氢酶(LDH)活性均显著降低(P<0.05)。S2组血清中SOD、GSH-Px、CAT活性均显著高于P和S1组(P<0.05),与NC组差异不显著(P>0.05);S2组血清中MDA、甘油三酯、LA和UN含量及LDH活性均显著低于P和S1组(P<0.05),与NC组差异不显著(P>0.05)。综上所述,在本试验条件下,硫酸化修饰可增强PPPs的抗疲劳活性,高取代度的SPP2效果最优,其机制与增强机体抗氧化能力、优化能量代谢及促进疲劳代谢产物清除密切相关。

本文引用格式

张敬壮 . 南瓜皮多糖的硫酸化修饰及其抗疲劳机制研究[J]. 动物营养学报, 2026 , 38(6) : 4541 -4551 . DOI: 10.12418/CJAN2026.364

Abstract

This study aimed to explore the sulfated modification of pumpkin peel polysaccharides (PPPs) and their anti-fatigue mechanism, and clarify the functional mechanism by which they alleviate exercise-induced fatigue via energy metabolism and antioxidant pathways. Using pumpkin peel powder as the raw material, PPPs were extracted by hot water extraction, and sulfated pumpkin peel polysaccharide 1 (SPP1) and sulfated pumpkin peel polysaccharide 2 (SPP2) with degrees of substitution of 0.36±0.01 and 0.67±0.02, respectively, were synthesized using the chlorosulfonic acid-pyridine method. A completely randomized single-factor experimental design was adopted. Sixty 6-week-old male Kunming mice were randomly divided into five groups with 12 mice per group. The five groups were: normal control group (NC group), fatigue control group (FC group) and three intervention groups. The three intervention groups were intragastrically administered 0.2 mL of 125 mg/kg BW of PPPs (P group), SPP1 (S1 group) and SPP2 (S2 group) daily, while the NC and FC groups received an equal volume of saline. After 4 weeks of continuous intragastric administration, exercise-induced fatigue models were established in all groups except the NC group, and samples were collected immediately after model establishment. The results showed as follows: 1) compared with PPPs, the total sugar content of SPP1 and SPP2 decreased significantly (P<0.05), while the uronic acid content increased significantly (P<0.05); the degree of substitution of SPP2 was significantly higher than that of SPP1 (P<0.05); sulfated modification effectively altered the chemical composition and spatial conformation of PPPs, and the higher the degree of substitution, the more obvious the structural changes. 2) Compared with the FC group, the skeletal muscle fibers of mice in the P, S1 and S2 groups were more regularly arranged and the interstitium was significantly narrowed, with the S2 group showing more intact muscle fibers. Compared with the FC group, the exhaustive time of swimming in mice in the P, S1 and S2 groups was significantly increased by 5.47%, 5.43% and 8.31%, respectively (P<0.05); the activities of superoxide dismutase (SOD), glutathione peroxidase (GSH-Px) and catalase (CAT) in serum, as well as the contents of hepatic glycogen and muscle glycogen, were significantly increased (P<0.05); the contents of malondialdehyde (MDA), triglyceride, lactic acid (LA) and urea nitrogen (UN) in serum, as well as lactate dehydrogenase (LDH) activity, were significantly decreased (P<0.05). The activities of SOD, GSH-Px and CAT in serum of the S2 group were significantly higher than those in the P and S1 groups (P<0.05), but not significantly different from those in the NC group (P>0.05); the contents of MDA, triglyceride, LA and UN, as well as LDH activity in serum of the S2 group, were significantly lower than those in the P and S1 groups (P<0.05), but not significantly different from those in the NC group (P>0.05). In conclusion, under the conditions of this experiment, sulfated modification enhances the anti-fatigue activity of PPPs, and the high-substitution-degree SPP2 exhibits the optimal effect. Its mechanism is closely related to enhancing the body’s antioxidant capacity, optimizing energy metabolism and promoting the clearance of fatigue metabolites.

疲劳通常被定义为身体无法维持特定的能量水平或维持一定强度的运动,表现为由于体力活动导致器官能量消耗增加而导致的工作能力和身体机能暂时下降[1-2]。长期疲劳可诱发免疫缺陷、代谢紊乱及慢性疲劳综合征(chronic fatigue syndrome,CFS),严重威胁人类健康[3-4]。疲劳主要源于身体对运动产生的应激性代谢反应及其相关因素,包括高能量底物消耗、代谢副产物积累、氧化应激损伤以及保护性中枢的抑制,通过调节上述机制缓解机体疲劳,已成为当前研究的热点方向之一[5-6]
植物多糖是由植物细胞在代谢中合成的高聚物(聚合度>10),广泛分布于植物细胞壁和细胞膜中,因其抗炎、免疫调节、降血糖、抗氧化和改善肠道健康等生物活性而备受关注[7-8]。然而,天然多糖常因水溶性差或生物活性有限而制约其应用[9-10]。南瓜作为常见的葫芦科植物,其果实外皮富含碳酸盐、果胶、矿物元素、维生素及南瓜多糖,具有降血糖、降血脂和抗癌作用[11-12]。硫酸化修饰是一种有效的化学改性手段,可通过引入硫酸基团增强多糖的水溶性、稳定性和生物活性,已有研究表明,硫酸化修饰可显著提升多糖的抗氧化能力(如清除自由基、激活抗氧化酶通路)并调节炎症因子表达,从而改善能量代谢和免疫功能[13]。王强等[14]证实南瓜皮粗多糖具有抗疲劳活性,为南瓜资源综合利用奠定了初步基础,但目前相关研究多聚焦于提取工艺优化及基础活性评价,针对南瓜皮多糖(pumpkin peel polysaccharides,PPPs)的硫酸化修饰及抗疲劳机制研究仍属空白[15]
本研究采用氯磺酸-吡啶法对PPPs进行硫酸化修饰,得到硫酸化南瓜皮多糖(sulfated pumpkin peel polysaccharides,SPPP),结合傅里叶红外光谱和核磁共振波谱分析等方法表征其理化性质,并利用小鼠运动性疲劳模型,系统评估其对能量代谢、抗氧化指标、能量代谢及疲劳生理指标的影响,以阐明硫酸化修饰提升抗疲劳活性的机制,为南瓜资源的高值化利用提供理论支撑,也为天然多糖的应用开发提供新的思路。

1 材料与方法

1.1 材料与仪器

1.1.1 试验材料

本研究所用南瓜皮粉产自河南省固始县。

1.1.2 检测试剂盒

超氧化物歧化酶(superoxide dismutase,SOD)活性(货号S0101S)、谷胱甘肽过氧化物酶(glutathione peroxidase,GSH-Px)活性(货号S0056)、丙二醛(malondialdehyde,MDA)含量(货号S0131S)、过氧化氢酶(catalase,CAT)活性(货号S0051)、甘油三酯(triglyceride,TG)含量(Amplex Red法,货号S0219FT)的检测试剂盒均来自上海碧云天生物技术有限公司;肝糖原与肌糖原含量(比色法,货号A043-1-1)、乳酸(lactic acid,LA)含量、尿素氮(urea nitrogen,UN)含量、乳酸脱氢酶(lactate dehydrogenase,LDH)活性测定试剂盒均来自南京建成生物工程研究所。

1.1.3 仪器与设备

旋转蒸发仪(RE-52AA,上海亚荣生化仪器厂);恒温水浴锅(HWS-24,上海一恒科学仪器有限公司);傅里叶变换红外光谱仪(Nicolet iS50,Thermo Fisher Scientific,美国);核磁共振波谱仪(AV600,Bruker,德国);超净工作台(KLCZ-1360A,北京亚泰科隆科技有限公司);紫外可见分光光度计(UV-2600,岛津制作所,日本);低温高速离心机(Sorvall ST1 Plus,Thermo Fisher Scientific,美国);全自动酶标仪(Multiskan Sky,Thermo Fisher Scientific,美国);电子天平(MS105,梅特勒-托利多,瑞士)。

1.2 试验方法

1.2.1 PPPs制备、硫酸化修饰与测定

1.2.1.1 PPPs的制备

参照王强等[14]的提取方法制备PPPs。将南瓜皮粉与水按照1∶10(v/m)混合后,95 ℃条件下水提2次(2 h/次),以3 000×g的离心力离心10 min后收集上清液,并在40 ℃条件下用旋转蒸发仪浓缩上清液,加入4倍体积的95%乙醇进行沉淀。沉淀经95%乙醇洗涤3次,溶于少量蒸馏水中。用Sevage法进行3次脱除蛋白质后,以3 000×g的离心力离心10 min后收集上清液。上清液在自来水中透析3 d,在蒸馏水中透析2 d。透析后的PPPs溶液在45 ℃条件下干燥并研磨成粉末,最终得到较为纯净的棕色PPPs粉末。

1.2.1.2 SPPP的制备

以黄凯等[16]的研究为基础,进行SPPP制备。冰浴装有10 mL吡啶的三口烧瓶,在搅拌下,30 min内缓慢滴加4 mL氯磺酸,出现浅黄色固体后移除冰浴。加入溶解于30 mL N,N - 二甲基甲酰胺(DMF)的0.5 g PPPs溶液,沸水浴恒温搅拌反应1 h。冷却至室温,用1 mol/L氢氧化钠(NaOH)溶液调至中性,加3倍体积无水乙醇,静置过夜沉淀。以4 500×g的离心力离心15 min后收集沉淀,并将其溶解在水中,得到溶液后,先后使用自来水和蒸馏水透析2 d。随后,将溶液置于45 ℃烘箱中除去水分,析出的固体即为SPPP,记为硫酸化南瓜皮多糖1(SPP1)。采用相同步骤,将氯磺酸用量增至6 mL,并将反应温度提高至110 ℃(油浴),其余条件保持一致,获得另一种硫酸化多糖衍生物,记为硫酸化南瓜皮多糖2(SPP2)。PPPs及其硫酸化多糖衍生物均使用生理盐水溶解,配制成相应浓度的溶液用于动物试验。

1.2.1.3 理化性质测定

采用硫酸-苯酚法测定PPPs及其硫酸化多糖衍生物样品的总糖含量(以葡萄糖为标准品);采用考马斯亮蓝法测定这些样品蛋白质残留量(以牛血清白蛋白为标准品);采用硫酸咔唑法测定这些样品中糖醛酸含量(以半乳糖醛酸为标准品)以及采用氯化钡-明胶法测定这些样品的硫酸基取代度(以硫酸钾为标准品)。

1.2.1.4 傅里叶红外光谱分析

分别准确称取1.0 mg的PPPs及其硫酸化多糖衍生物样品,各与100 mg溴化钾粉末在红外灯下研磨均匀,压片。测试条件设置如下:扫描范围4 000~500 cm-1,分辨率4 cm-1,扫描32次,采用空气背景校正。

1.2.1.5 13C核磁共振波谱分析

分别准确称取约5 mg的PPPs及其硫酸化多糖衍生物样品,各自溶解于0.6 mL的氘代水中,确保完全溶解。使用微量注射器将溶液转移至5 mm NMR标准管中进行测量,设定扫描次数(NS)=4 096次。

1.2.2 动物试验

1.2.2.1 伦理声明

本次动物试验经郑州商学院实验动物伦理委员会批准(批准号:ZZBU-2024-IAEC-008),试验过程严格遵循《实验动物福利伦理审查指南》及国际实验动物护理和使用原则,所有操作均以最大限度减少动物痛苦为宗旨。

1.2.2.2 试验设计

采用单因素完全随机试验设计。试验所用小鼠购自北京维通利华实验动物技术有限公司。选取60只6周龄雄性昆明小鼠,随机分为5个组,每组12只。5个组分别为正常对照组(NC组)、疲劳对照组(FC组)以及3个干预组。3个干预组每日分别灌胃0.2 mL 125 mg/kg BW的PPPs(P组)、SPP1(S1组)和SPP2(S2组),NC和FC组每日灌胃等体积的生理盐水。所有小鼠每天在09:00灌胃1次,灌胃方式为:使用1 mL注射器连接小鼠专用钝头灌胃针,经左侧嘴角沿上颚轻柔插入食道约3 cm,确认无阻力后缓慢推注药液。连续灌胃4周后,除NC组外,其余4个组均采用负重强迫游泳法建立运动性疲劳模型,建模完成后立刻取样。

1.2.2.3 试验饲粮与饲养管理

试验期间,各组小鼠均统一饲喂相同的啮齿类动物维持饲料作为基础饲粮,饲粮配制按照《实验动物 配合饲料营养成分》(GB 14924.3—2010)执行,其组成及营养水平见表1。各组小鼠均采用自由饮水和进食,环境温度严格控制在(22±2) ℃,相对湿度维持在(50±10)%;采用12 h光照/12 h黑暗循环;正式试验前,所有小鼠进行为期7 d的适应性饲养,期间观察小鼠摄食、饮水及活动情况,确保无异常。
表1 基础饲粮组成及营养水平(风干基础)

Table 1 Composition and nutrient levels of the basal diet (air-dry basis) %

原料 Ingredients 含量 Content 营养水平 Nutrient levels2) 含量 Content
玉米粉 Corn flour 55.00 代谢能 ME/(MJ/kg) 12.85
豆粕 Soybean meal 22.00 粗蛋白质 CP 19.18
麸皮 Wheat bran 10.00 粗脂肪 EE 4.85
鱼粉 Fish meal 5.00 粗纤维 CF 4.62
预混料 Premix1) 3.00 钙 Ca 0.95
植物油 Vegetable oil 2.00 总磷 TP 0.58
次粉 Wheat middlings 3.00 蛋氨酸+胱氨酸 Met+Cys 0.68
合计 Total 100.00

1)预混料为每千克饲粮提供 The premix provided the following per kg of the diet:VA 10 000 IU,VD3 1 000 IU,VE 30 mg,Fe 80 mg,Cu 15 mg,Zn 80 mg,Mn 80 mg。
2)代谢能和氨基酸为计算值,其余营养水平均为实测值。代谢能参照GB 14924.3—2010计算,氨基酸参照《中国饲料成分及营养价值表(2024年第35版)》计算。粗蛋白质(GB/T 6432—2018)、粗脂肪(GB/T 6433—2025)、粗纤维(GB/T 6434—2022)、钙(GB/T 6436—2018)和总磷(GB/T 6437—2018)分别参照相应国标进行测定。ME and amino acids were calculated values, while the others were measured values. ME was calculated in accordance with GB 14924.3—2010, amino acids calculated with reference to the Tables of Feed Composition and Nutritive Values in China (35th edition, 2024). CP (GB/T 6432—2018), EE (GB/T 6433—2025), CF (GB/T 6434—2022), Ca (GB/T 6436—2018) and TP (GB/T 6437—2018) were determined in accordance with the corresponding national standards, respectively.

1.2.2.4 建立运动性疲劳模型

采用负重强迫游泳法建立运动性疲劳模型。最后1次灌胃3 h后,除NC组外,其余各组小鼠尾部均负重5%体重的铅块进行负重游泳试验,游泳箱水深35 cm,水温(25±1) ℃,当小鼠头沉入水中时长达5 s或游泳姿态出现异常时,判定小鼠疲劳模型建立完成,对应时长记为力竭时间。NC组小鼠不进行负重游泳,仅常规饲养。

1.2.2.5 样品采集

待建模结束后,快速收集小鼠血液,置于离心管中,静置后3 000×g离心5 min,获得血清,待测;迅速处死小鼠,取小鼠胫骨前肌,置于4%多聚甲醛进行固定,待测;收集小鼠肝脏和骨骼肌,置于-80 ℃冰箱,待测。

1.2.2.6 胫骨前肌组织形态检测

将固定的胫骨前肌取出进行脱水与透明,将透明后的组织放入熔化的石蜡中包埋,制备石蜡切片。将石蜡切片经二甲苯脱蜡后,梯度乙醇复水,然后进行苏木精-伊红(HE)染色。

1.2.2.7 血清中抗氧化指标测定

将采集的小鼠血清取出进行SOD、GSH-Px、CAT活性及MDA含量测定,操作方法均参照试剂盒说明书进行。

1.2.2.8 能量代谢指标测定

将采集的小鼠肝脏、肌肉组织和血清取出,分别进行肝糖原、肌糖原和血清甘油三酯含量测定,这些指标均通过试剂盒进行测定,操作严格按照说明书执行。

1.2.2.9 血清中疲劳生理指标测定

将采集的小鼠血清取出进行LA、UN含量和LDH活性测定,这些指标均使用试剂盒进行测定,分别使用全自动酶标仪在500、630和340 nm波长处测量吸光度值,结果根据标准品绘制的标准曲线计算。

1.3 数据统计与分析

使用Excel 2019初步整理试验数据,采用SPSS Statistics 27进行单因素方差分析(one-way ANOVA)和Duncan氏法多重比较检验。P<0.05为差异显著的判定标准,所有结果以“平均值±标准差”的形式呈现。数据可视化通过GraphPad Prism 6.0完成。

2 结果与分析

2.1 硫酸化修饰对PPPs结构的影响

2.1.1 PPPs及其硫酸化多糖衍生物的理化性质

通过硫酸-苯酚法建立总糖含量测定的标准曲线,回归方程为y=13.900 3x+0.002 2,决定系数(R2)=0.999 1;通过考马斯亮蓝法建立蛋白质残留量测定的标准曲线,回归方程为y=1.346 8x+0.791 5,R2=0.998 7;通过硫酸咔唑法建立糖醛酸含量测定的标准曲线,回归方程为y=1.042 9x+0.597 3,R2=0.997 3;通过氯化钡-明胶法建立硫酸基取代度测定的标准曲线,回归方程为y=0.937 4x+0.158 2,R2=0.998 8。
结果如表2所示,与PPPs相比,硫酸化后的SPP1和SPP2总糖含量显著下降(P<0.05);SPP1和SPP2糖醛酸含量显著提高(P<0.05),其中SPP1提高了19.51%,SPP2提高了25.20%。硫酸化后的SPP1和SPP2中未检出蛋白质。SPP2取代度显著高于SPP1(P<0.05),SPP2为高度硫酸化表现。
表2 南瓜皮多糖及其硫酸化多糖衍生物的理化性质

Table 2 Physicochemical properties of pumpkin peel polysaccharides and their sulfated polysaccharide derivatives

项目
Items
南瓜皮多糖
PPPs
硫酸化南瓜皮多糖1
SPP1
硫酸化南瓜皮多糖2
SPP2
P
P-value
总糖 Total sugar/% 80.72±3.35a 62.31±3.79b 47.11±2.04c 0.001
蛋白质 Protein/% 5.33±0.88 ND ND NA
糖醛酸 Uronic acid/% 1.23±0.28b 1.47±0.18a 1.54±0.18a 0.024
取代度 Degree of substitution NA 0.36±0.01b 0.67±0.02a <0.001

ND:未检出 not detected;NA:不适用 not applicable。下表同 The same as below。

同行数据肩标无字母或相同字母表示差异不显著(P>0.05),不同小写字母表示差异显著(P<0.05)。下表同。

In the same row, values with no letter or the same letter superscripts mean no significant difference (P>0.05), while with different small letter superscripts mean significant difference (P<0.05). The same as below.

2.1.2 PPPs及其硫酸化多糖衍生物的傅里叶红外光谱分析

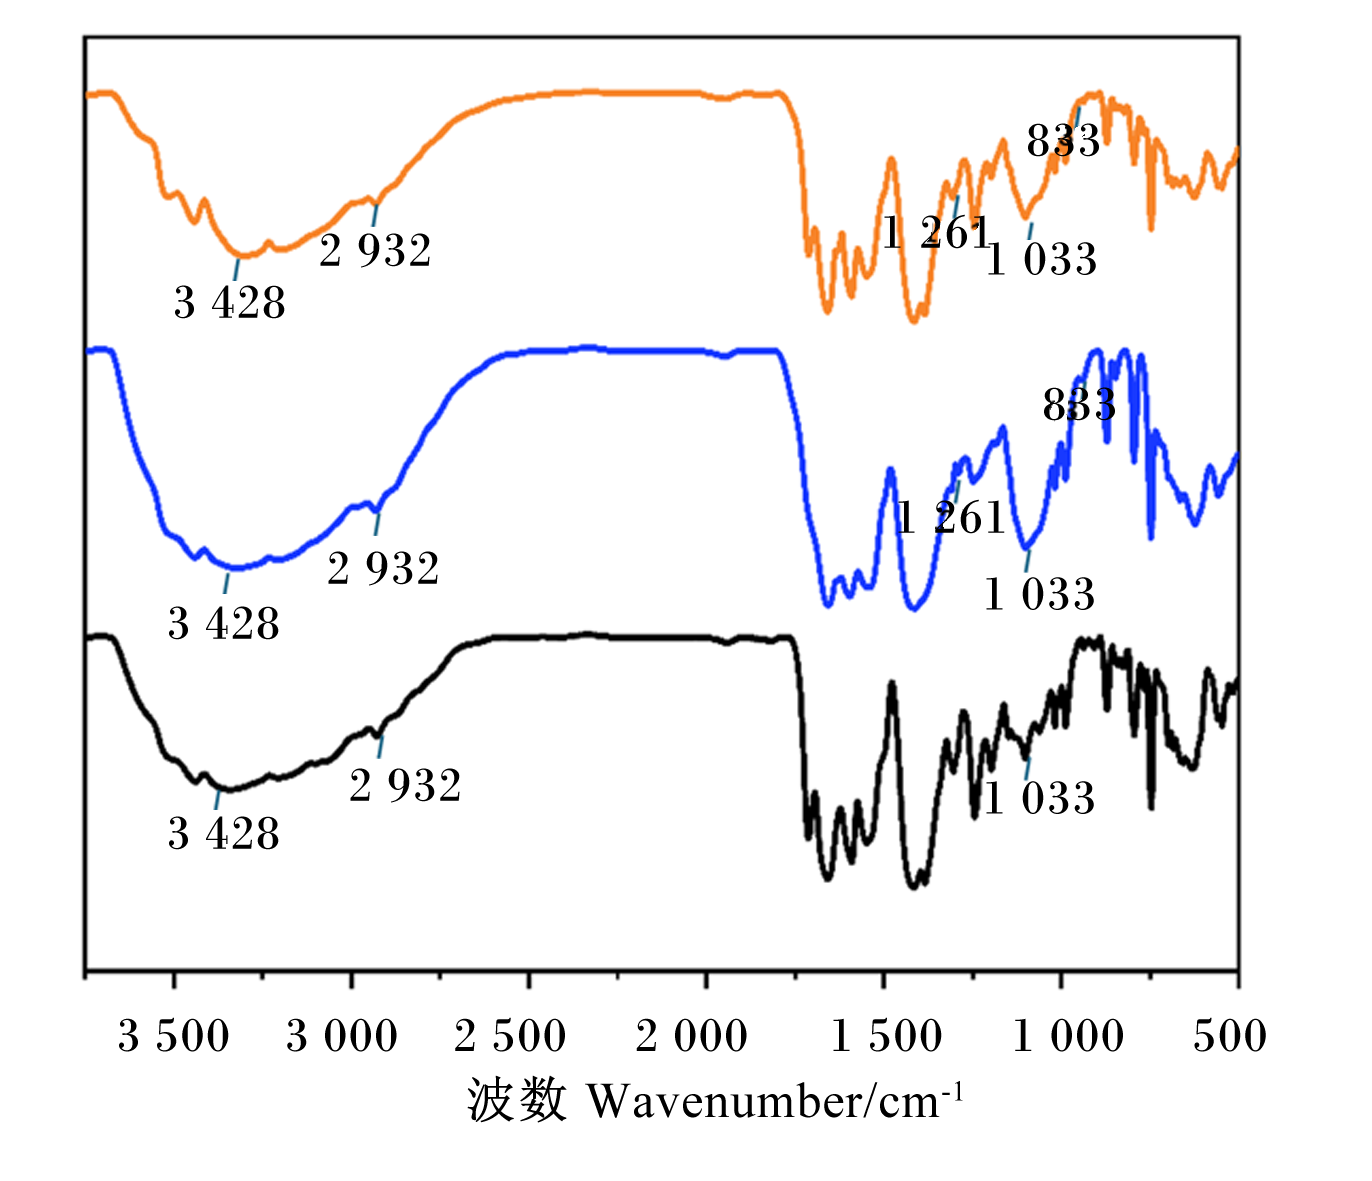
图1所示,PPPs、SPP1和SPP2均在3 428 cm-1处观察到宽而强的吸收峰,为O-H键伸缩振动的典型特征峰;SPP1和SPP2的O-H峰的宽/强度均低于PPPs;2 932 cm-1为C-H伸缩振动吸收峰,PPPs的C-H峰强度较SPP1和SPP2更高(PPPs>SPP1>SPP2);在1 033 cm-1处出现的吸收峰为吡喃糖环中C-O-C键的特征振动峰,与PPPs相比,SPP1和SPP2峰形/峰位发生变化;在1 261 cm-1处,SPP1和SPP2均表现出1个显著的吸收峰,SPP2峰更高(SPP2>SPP1);833 cm-1处的吸收峰是由C-O-S的拉伸振动吸收引起的,证明氯磺酸-吡啶法成功引入硫酸基团。
图1 南瓜皮多糖及其硫酸化多糖衍生物的傅里叶红外光谱分析

黑色曲线对应南瓜皮多糖;蓝色曲线对应硫酸化南瓜皮多糖1;橙色曲线对应硫酸化南瓜皮多糖2。

Fig.1 Fourier transform infrared spectroscopy analysis of pumpkin peel polysaccharides and their sulfated polysaccharide derivatives

Black curve corresponded to PPPs; blue curve corresponded to SPP1; and orange curve corresponded to SPP2.

2.1.3 PPPs及其硫酸化多糖衍生物的核磁共振波谱分析

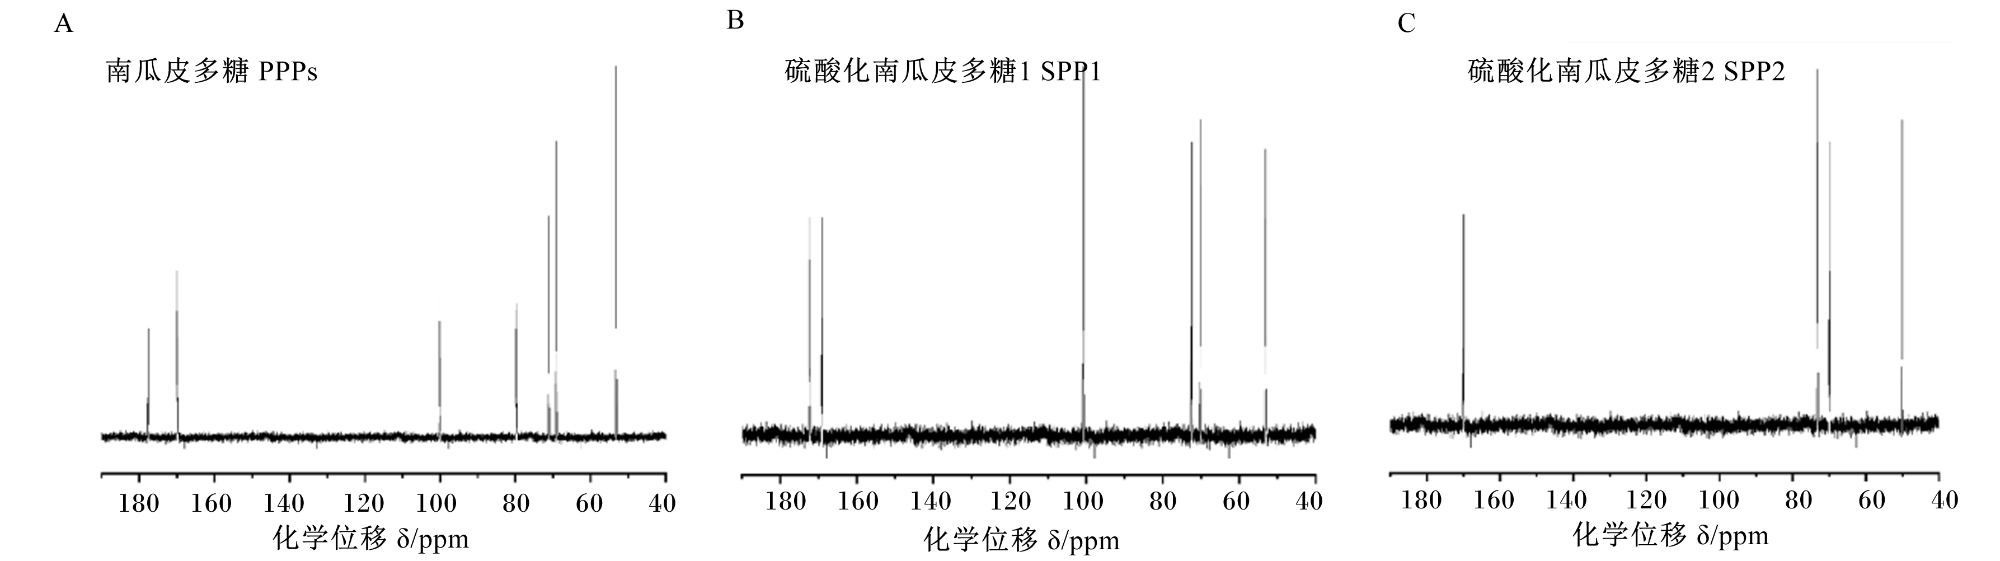
图2-A可见,PPPs在化学位移约170 ppm处呈现羰基碳特征信号,约100 ppm处为糖环异头碳(C1)的特征峰,60~80 ppm区间的多重尖锐峰归属为糖环C2~C6的亚甲基/次甲基碳,约52 ppm处可观察到甲基碳信号;各区间峰形锐利、基线平稳。
图2 南瓜皮多糖及其硫酸化多糖衍生物的核磁共振波谱分析

Fig.2 Nuclear magnetic resonance spectroscopy analysis of pumpkin peel polysaccharides and their sulfated polysaccharide derivatives

图2-B所示,硫酸化后,SPP1的C1及C2~C6区间碳信号化学位移发生明显迁移,且其峰强度较PPPs明显衰减,同时170 ppm处羰基碳信号强度变弱;如图2-C所示,SPP2的结构变化更为明显,其C1的特征峰几乎消失,C2~C6区间碳峰数量减少且峰形宽化;此外,样品基线噪声随取代度的升高而明显增加。

2.2 PPPs及其硫酸化多糖衍生物对小鼠抗疲劳能力的影响

2.2.1 PPPs及其硫酸化多糖衍生物对小鼠力竭时间的影响

表3所示,与FC组相比,P、S1和S2组小鼠力竭时间分别显著增加了5.47%、5.43%和8.31%(P<0.05);与P组相比,S1组力竭时间无显著变化(P>0.05),S2组力竭时间显著增加了2.69%(P<0.05)。
表3 南瓜皮多糖及其硫酸化多糖衍生物对小鼠力竭时间的影响

Table 3 Effect of pumpkin peel polysaccharides and their sulfated polysaccharide derivatives on exhaustive time in mices

项目
Item
FC组
FC group
NC组
NC group
P组
P group
S1组
S1 group
S2组
S2 group
P
P-value
力竭时间 Exhaustive time 498.40±17.16c NA 525.66±16.41b 525.46±14.26b 539.82±18.01a 0.011

2.2.2 PPPs及其硫酸化多糖衍生物对小鼠肌肉组织形态的影响

图3-A所示,FC组骨骼肌纤维排列松散,间质明显变宽,肌纤维大小不一,并出现炎性细胞浸润和细胞核内移现象;与FC组相比,P(图3-B)、S1(图3-C)和S2组(图3-D)骨骼肌的肌纤维排列更整齐、间质明显变窄,其中S2组的肌纤维更为完整。
图3 南瓜皮多糖及其硫酸化多糖衍生物对小鼠肌肉组织形态的影响

Fig.3 Effect of pumpkin peel polysaccharides and their sulfated polysaccharide derivatives on muscle tissue morphology in mice (100×)

A:FC组 FC group;B:P组 P group;C:S1组 S1 group;D:S2组 S2 group。

2.2.3 PPPs及其硫酸化多糖衍生物对小鼠血清中抗氧化指标的影响

表4所示,与FC组相比,P、S1和S2组小鼠血清中MDA含量显著降低(P<0.05),分别降低了20.13%、24.09%和32.01%;P、S1和S2组小鼠血清中SOD活性显著增加(P<0.05),分别增加了25.07%、33.22%和48.24%;P、S1和S2组小鼠血清中GSH-Px活性显著增加(P<0.05),分别增加了27.72%、34.26%和45.85%;P、S1和S2组小鼠血清中CAT活性显著增加(P<0.05),分别增加了37.88%、48.44%和78.88%。与P和S1组相比,S2组小鼠血清中SOD、GSH-Px、CAT活性显著增加(P<0.05),MDA含量显著下降(P<0.05),且均与NC组差异不显著(P>0.05)。
表4 南瓜皮多糖及其硫酸化多糖衍生物对小鼠血清中抗氧化指标的影响

Table 4 Effects of pumpkin peel polysaccharides and their sulfated polysaccharide derivatives on serum antioxidative indices in mice

项目
Items
FC组
FC group
NC组
NC group
P组
P group
S1组
S1 group
S2组
S2 group
P
P-value
丙二醛 MDA/(nmol/mL) 6.06±0.31a 3.99±0.24c 4.84±0.57b 4.60±0.37b 4.12±0.24c 0.014
超氧化物歧化酶SOD/(U/mL) 62.61±3.72c 95.36±4.28a 78.31±4.75b 83.42±3.73b 92.84±1.81a 0.011
谷胱甘肽过氧化物酶
GSH-Px/(U/mL)
32.14±2.38c 49.42±3.05a 41.05±3.51b 43.15±3.04b 46.88±2.36a 0.029
过氧化氢酶 CAT/(U/mL) 16.11±1.77c 30.54±2.33a 22.21±1.81b 23.91±2.04b 28.82±2.10a 0.022

2.2.4 PPPs及其硫酸化多糖衍生物对小鼠能量代谢指标的影响

表5所示,与FC组相比,P、S1和S2组小鼠肝糖原含量显著增加(P<0.05),分别增加了9.40%、15.43%和40.39%;P、S1和S2组小鼠肌糖原含量显著增加(P<0.05),分别增加了24.88%、41.53%和49.85%;P、S1和S2组血清中甘油三酯含量显著降低(P<0.05),分别降低了23.04%、25.04%和41.69%。与P、S1组相比,S2组小鼠肝糖原和肌糖原含量显著增加(P<0.05),血清中甘油三酯含量显著下降(P<0.05),展现出更优的糖原储备能力。
表5 南瓜皮多糖及其硫酸化多糖衍生物对小鼠能量代谢指标的影响

Table 5 Effects of pumpkin peel polysaccharides and their sulfated polysaccharide derivatives on energy metabolism indices in mice

项目
Items
FC组
FC group
NC组
NC group
P组
P group
S1组
S1 group
S2组
S2 group
P
P-value
肝糖原 Liver glycogen/(mg/g) 14.92±1.78d 22.36±2.01a 16.32±1.51c 17.22±1.64c 20.95±1.84b 0.010
肌糖原
Muscle glycogen/(mg/g)
8.42±0.83d 14.81±1.32a 10.51±1.08c 11.92±1.11c 12.62±0.78b 0.009
血清甘油三酯
TG in serum/(mmol/L)
3.60±0.25a 1.89±0.19c 2.77±0.17b 2.70±0.15b 2.10±0.22c 0.018

2.2.5 PPPs及其硫酸化多糖衍生物对小鼠血清中疲劳生理指标的影响

表6所示,与FC组相比,P、S1和S2组血清中LA含量显著下降(P<0.05),分别下降了25.51%、30.61%和46.53%;P、S1和S2组血清中UN含量显著下降(P<0.05),分别下降了20.39%、21.71%和32.89%;P、S1和S2组血清中LDH活性显著下降(P<0.05),分别下降了15.50%、20.10%和30.46%。与P、S1组相比,S2组血清中LA和UN含量以及LDH活性显著降低(P<0.05),且均与NC组差异不显著(P>0.05)。
表6 南瓜皮多糖及其硫酸化多糖衍生物对小鼠血清中疲劳生理指标的影响

Table 6 Effects of pumpkin peel polysaccharides and their sulfated polysaccharide derivatives on serum physiological indices on fatigue in mice

项目
Items
FC组
FC group
NC组
NC group
P组
P group
S1组
S1 group
S2组
S2 group
P
P-value
乳酸 LA/(mmol/L) 9.82±1.56a 4.98±0.87c 7.32±1.73b 6.82±1.13b 5.25±1.02c 0.018
尿素氮 UN/(mmol/L) 15.26±1.63a 9.75±1.12c 12.16±1.57b 11.95±1.58b 10.23±1.28c 0.025
乳酸脱氢酶 LDH/(U/L) 353.27±24.78a 228.56±18.45c 300.30±30.32b 282.31±28.33b 245.70±21.48c 0.011

3 讨论

3.1 硫酸化修饰对PPPs结构的影响

硫酸化修饰作为多糖结构改性的常用手段,其核心作用是通过向多糖分子骨架引入硫酸基团,改变多糖的理化性质与空间构象,进而影响其生物活性[17]。理化性质分析显示,硫酸化修饰后PPPs的总糖含量显著下降,而糖醛酸含量显著升高,推测可能是由于硫酸化反应过程中,多糖分子部分糖苷键发生断裂,导致总糖含量降低,同时糖醛酸基团暴露量增加,进一步提升了多糖纯度。
傅里叶红外光谱分析进一步证实了硫酸基团的成功引入,SPP1和SPP2在1 261 cm-1处出现的特征吸收峰的为S=O伸缩振动峰,833 cm-1处的吸收峰归属于C-O-S的拉伸振动,这是硫酸化多糖的典型特征峰[18],且SPP2的特征峰强度高于SPP1,表明高取代度衍生物的硫酸基团接枝量更高。同时,与PPPs相比,SPP1和SPP2的O-H键、C-H键伸缩振动峰强度均有所降低,且峰形发生变化,说明硫酸基团的引入破坏了多糖分子间的氢键作用,改变了其分子间作用力与空间构象[19-20]
核磁共振波谱分析结果显示,硫酸化修饰后多糖的化学位移发生明显迁移,SPP2的异头碳(C1)峰几乎消失,糖环C2~C6区间峰形展宽且数量减少,基线噪音增加,表明高取代度的硫酸化修饰对PPPs的糖环结构造成了更显著的影响,可能导致多糖分子骨架发生一定程度的降解与重构,这也是其理化性质发生改变的重要原因[21-22]。综上可知,硫酸化修饰可有效改变PPPs的化学组成与空间构象,且取代度越高,结构变化越明显,为其生物活性的提升奠定了结构基础。

3.2 PPPs及其硫酸化多糖衍生物对小鼠抗疲劳能力的影响

力竭时间是评价机体抗疲劳能力的直观指标,其值直接反映机体耐受疲劳的极限水平,而骨骼肌组织病理形态则可从组织层面反映疲劳导致的损伤程度及干预效果[23]。本研究结果显示,与FC组相比,P、S1和S2组小鼠游泳的力竭时间均显著延长,其中S2组增幅最高,表明硫酸化修饰可显著增强PPPs的抗疲劳活性,且抗疲劳效果与硫酸化取代度呈正相关。
骨骼肌作为运动过程中能量消耗与疲劳产生的主要器官,其形态结构的完整性直接影响机体的运动能力与疲劳恢复速度[24-25]。HE染色结果显示,FC组小鼠骨骼肌纤维排列松散、间质增宽,出现炎性细胞浸润及细胞核内移现象,表明力竭游泳导致骨骼肌发生明显损伤;而P、S1和S2组均能改善骨骼肌组织形态,其中S2组肌纤维排列最整齐、间质最窄,肌纤维完整性最好,说明SPPP可有效缓解力竭游泳造成的骨骼肌损伤,减少肌肉损伤对运动能力的影响,从而延长游泳的力竭时间。结合力竭时间与骨骼肌组织形态结果可推测,硫酸化修饰通过增强PPPs对骨骼肌损伤的保护作用,减少疲劳相关组织损伤,进而提升机体抗疲劳能力,且高取代度的SPP2保护效果最优,这为SPPP作为抗疲劳功能因子的应用提供了试验依据。

3.3 PPPs及其硫酸化多糖衍生物的抗疲劳机制

运动性疲劳的产生与机体氧化应激失衡[26]、能量储备不足[27]及疲劳代谢产物积累[28]密切相关,三者相互作用,共同导致机体运动能力下降。抗氧化方面,本研究中,与FC、P和S1组相比,S2组血清中MDA含量显著降低,同时SOD、GSH-Px、CAT活性显著增加,表明SPP2可通过增强抗氧化酶活性、清除自由基,缓解氧化应激诱导的疲劳,这与硫酸化修饰后多糖空间构象改变、活性位点暴露增加[29-30]有关。能量代谢失衡是疲劳核心诱因,机体运动主要依赖肝糖原、肌糖原供能,糖原储备不足会引发能量匮乏。本研究中,与FC、P、S1组相比,S2组肝糖原、肌糖原含量显著提高,血清中甘油三酯含量显著降低,这与灵芝多糖硫酸化的研究结果[31]类似,表明SPP2可通过促进糖原储备、优化甘油三酯代谢,提升能量供给能力,延缓疲劳。疲劳代谢产物积累会降低运动能力,本研究中,与FC、P、S1组相比,S2组血清中LA、UN含量和LDH活性显著降低,表明SPP2可促进疲劳代谢产物的清除与转化,减少体内积累,缓解其毒性作用,从而改善抗疲劳能力[32-33]

4 结论

本研究结果表明,氯磺酸-吡啶法可成功对PPPs进行硫酸化修饰,且优化反应条件可提高硫酸基团取代度;硫酸化修饰能显著改变PPPs的结构与理化性质,增强其抗疲劳活性,其中高取代度衍生物(SPP2)效果最优;SPPP的抗疲劳作用通过增强机体抗氧化能力、优化能量代谢及促进疲劳代谢产物清除多途径协同实现。
[1]
BROWN J P, MARTIN D, NAGARIA Z, et al. Mental health consequences of shift work:an updated review[J]. Current Psychiatry Reports, 2020, 22(2):7.

DOI

[2]
LIU R, LI Z, YU X C, et al. The effects of peanut oligopeptides on exercise-induced fatigue in mice and its underlying mechanism[J]. Nutrients, 2023, 15(7):1743.

DOI

[3]
ENOKA R M, DUCHATEAU J. Translating fatigue to human performance[J]. Medicine and Science in Sports and Exercise, 2016, 48(11):2228-2238.

DOI

[4]
任菁菁. 应对疲劳健康生活[J]. 健康博览, 2008(12):13-14.

REN J J. Coping with fatigue for a healthy life[J]. Health Review, 2008(12):13-14. (in Chinese)

[5]
曹树洪, 官翔仪, 朱晓皓, 等. 当归多糖对小鼠的抗疲劳作用研究[J]. 福建农业科技, 2024, 55(10):43-48.

CAO S H, GUAN X Y, ZHU X H, et al. Study on the anti-fatigue effect of angelica polysaccharide on mice[J]. Fujian Agricultural Science and Technology, 2024, 55(10):43-48. (in Chinese)

[6]
管继辉. 昆布多糖的提取工艺优化及其对小鼠抗疲劳能力的研究[J]. 美食研究, 2024, 41(4):73-78.

GUAN J H. Optimization of laminarin extraction and its effects of anti-fatigue on mice[J]. Journal of Researches on Dietetic Science and Culture, 2024, 41(4):73-78. (in Chinese)

[7]
王冬枝, 马矜烁. 紫灵芝多糖改善运动疲劳小鼠学习记忆能力[J]. 现代食品科技, 2025, 41(5):49-60.

WANG D Z, MA J S. Ganoderma sinense polysaccharide improves learning and memory abilities of mice with exercise-induced fatigue[J]. Modern Food Science and Technology, 2025, 41(5):49-60. (in Chinese)

[8]
李景辉. 蒲黄多糖对小鼠的抗疲劳作用研究[J]. 特种经济动植物, 2025, 28(2):4-7.

LI J H. Study on the anti-fatigue effect of typha pollen polysaccharides in mice[J]. Special Economic Animal and Plant, 2025, 28(2):4-7. (in Chinese)

[9]
MUKHERJEE S, JANA S, KHAWAS S, et al. Synthesis,molecular features and biological activities of modified plant polysaccharides[J]. Carbohydrate Polymers, 2022, 289:119299.

DOI

[10]
WANG A Q, LIU Y, ZENG S, et al. Dietary plant polysaccharides for cancer prevention:role of immune cells and gut microbiota,challenges and perspectives[J]. Nutrients, 2023, 15(13):3019.

DOI

[11]
陶鹏, 丁小雅, 岳智臣, 等. 南瓜果胶含量的全基因组关联分析与候选基因预测[J]. 浙江农业学报, 2025, 37(6):1244-1251.

DOI

TAO P, DING X Y, YUE Z C, et al. Genome-wide association study and candidate gene prediction of pectin content of pumpkin (Cucurbita moschata)[J]. Acta Agriculturae Zhejiangensis, 2025, 37(6):1244-1251. (in Chinese)

[12]
卓思雨, 梁颖康, 欧成成, 等. 南瓜籽饼粕可溶性膳食纤维的提取及其结构与功能特性分析[J]. 食品工业科技, 2025, 46(18):272-282.

ZHUO S Y, LIANG Y K, OU C C, et al. Extraction of soluble dietary fiber from pumpkin seed cake and analysis of its structure and functional properties[J]. Science and Technology of Food Industry, 2025, 46(18):272-282. (in Chinese)

[13]
DENG R, WANG F, WANG L F, et al. Advances in plant polysaccharides as antiaging agents:effects and signaling mechanisms[J]. Journal of Agricultural and Food Chemistry, 2023, 71(19):7175-7191.

DOI

[14]
王强, 龙洁, 李贵节, 等. 南瓜皮粗多糖对小鼠抗疲劳功效研究[J]. 食品科学, 2014, 35(13):254-257.

DOI

WANG Q, LONG J, LI G J, et al. Anti-fatigue effect of polysaccharides extracted from pumpkin peel in aged mice[J]. Food Science, 2014, 35(13):254-257. (in Chinese)

DOI

[15]
姜文杰. 南瓜皮多糖的提取及其对水中镉的吸附特性研究[D].硕士学位论文. 泰安: 山东农业大学, 2023.

JIANG W J. Study on extraction of pumpkin peel polysaccharide and its adsorption characteristics for cadmium in water[D].Master’s Thesis. Taian: Shandong Agricultural University, 2023. (in Chinese)

[16]
黄凯, 张舒婷, 轩华龙, 等. 硫酸化川明参多糖的制备及其抗氧化活性[J]. 现代食品科技, 2025, 41(10):302-311.

HUANG K, ZHANG S T, XUAN H L, et al. Preparation of sulfated Chuanminshen violaceum polysaccharides and their antioxidant activity[J]. Modern Food Science and Technology, 2025, 41(10):302-311. (in Chinese)

[17]
王宝忠, 曹勇勇, 杨丹, 等. 苦苣多糖的提取工艺优化及抗氧化活性研究[J]. 生物化工, 2025, 11(1):59-63,74.

WANG B Z, CAO Y Y, YANG D, et al. Optimization of extraction technology and antioxidant activity of Sonchus oleraceus L. polysaccharide[J]. Biological Chemical Engineering, 2025, 11(1):59-63,74. (in Chinese)

[18]
孔倩, 周婷, 葛佳, 等. 南瓜多糖硫酸酯化修饰与结构稳定性关系研究[J]. 食品科技, 2009, 34(4):160-163,166.

KONG Q, ZHOU T, GE J, et al. Study on the relationship of sulfation and structural stability of polysaccharides from pumpkin pulp[J]. Food Science and Technology, 2009, 34(4):160-163,166. (in Chinese)

[19]
许梦粤, 田鑫, 王君可, 等. 菜豆多糖与香菇多糖结构特征以及体外重要生物活性综合对比评价[J]. 食品科学, 2024, 45(23):18-27.

XU M Y, TIAN X, WANG J K, et al. Comparative evaluation of structural characteristics and in vitro biological activities of polysaccharides from common bean (Phaseolus vulgaris L.) and those from shiitake mushroom (Lentinus edodes)[J]. Food Science, 2024, 45(23):18-27. (in Chinese)

[20]
白光辉, 李海漫, 董新玉, 等. 虾夷扇贝裙边多糖的结构及生物活性[J]. 食品与生物技术学报, 2024, 43(12):92-100.

BAI G H, LI H M, DONG X Y, et al. Structure and biological activity of polysaccharides from Patinopecten yessoensis skirt[J]. Journal of Food Science and Biotechnology, 2024, 43(12):92-100. (in Chinese)

[21]
GIBBS S J, XING D, CARPENTER T A, et al. NMR flow imaging of aqueous polysaccharide solutions[J]. Journal of Rheology, 1994, 38(6):1757-1767.

DOI

[22]
MARTÍNEZ A T, GONZÁLEZ A E, VALMASEDA M, et al. Solid-state NMR studies of lignin and plant polysaccharide degradation by fungi[J]. Holzforschung, 1991, 45(Suppl.1):49-54.

DOI

[23]
单艺, 梁薇薇, 刘丽美, 等. 南瓜籽肽改善运动疲劳作用[J]. 食品工业科技, 2026, 47(2):429-436.

SHAN Y, LIANG W W, LIU L M, et al. Effect of pumpkin seed peptide on improving sports fatigue[J]. Science and Technology of Food Industry, 2026, 47(2):429-436. (in Chinese)

[24]
胡雅静, 喻金利, 张继坤, 等. 美藤果油改善力竭小鼠抗疲劳作用[J]. 食品科技, 2025, 50(2):71-78.

HU Y J, YU J L, ZHANG J K, et al. Anti-fatigue effect of Sacha inchi oil on exhausted mice[J]. Food Science and Technology, 2025, 50(2):71-78. (in Chinese)

[25]
黄平, 黄璟, 王伟, 等. TGF-β1/SMAD3信号通路在背部循经推拿促进慢性疲劳综合征大鼠NK细胞活性中的作用研究[J]. 中医康复, 2025, 2(6):8-14,20.

HUANG P, HUANG J, WANG W, et al. The role of TGF-β1/SMAD3 signaling pathway in back meridian tuina promoting NK cell activity in chronic fatigue syndrome rats[J]. Traditional Chinese Medicine Rehabilitation, 2025, 2(6):8-14,20. (in Chinese)

[26]
SHICHIRI M, HARADA N, ISHIDA N, et al. Oxidative stress is involved in fatigue induced by overnight deskwork as assessed by increase in plasma tocopherylhydroqinone and hydroxycholesterol[J]. Biological Psychology, 2013, 94(3):527-533.

DOI PMID

[27]
任建安, 李宁, 黎介寿. 能量代谢监测与营养物质需要量[J]. 中国实用外科杂志, 2001, 21(10):631-636.

REN J A, LI N, LI J S. Monitoring energy metabolism and the need of nutritive materials[J]. Chinese Journal of Practical Surgery, 2001, 21(10):631-636. (in Chinese)

[28]
XIAO F Y, KABACHKOVA A V, JIAO L, et al. Effects of cold water immersion after exercise on fatigue recovery and exercise performance—Meta analysis[J]. Frontiers in Physiology, 2023, 14:1006512.

DOI

[29]
JASON L A, PORTER N, HERRINGTON J, et al. Kindling and oxidative stress as contributors to myalgic encephalomyelitis/chronic fatigue syndrome[J]. Journal of Behavioral and Neuroscience Research, 2009, 7(2):1-17.

PMID

[30]
刘明润, 毛立科, 袁芳, 等. 运动性疲劳机制及抗疲劳天然产物研究进展[J]. 中国食品添加剂, 2025, 36(5):148-157.

LIU M R, MAO L K, YUAN F, et al. Research progress on mechanisms of exercise fatigue and anti-fatigue natural products[J]. China Food Additives, 2025, 36(5):148-157. (in Chinese)

[31]
AKATSUKA A, SINGH T J, HUANG K P. Phosphorylation of rat liver glycogen synthase bound to the glycogen particle[J]. Archives of Biochemistry and Biophysics, 1984, 235(1):186-195.

PMID

[32]
刘佳, 龙娟, 胡维新, 等. 人参茎叶总皂苷对负重游泳小鼠抗疲劳作用及其机制[J]. 青岛大学医学院学报, 2013, 49(3):221-223.

LIU J, LONG J, HU W X, et al. The antifatigue effects and mechanism of ginseng stem and leaf saponin on weight-bearing swimming mice[J]. Acta Academiae Medicinae Qingdao Universitatis, 2013, 49(3):221-223. (in Chinese)

[33]
陈元武, 俞旗. 浅析运动时血中SOD、LPO、LDH和LA变化与运动性疲劳的关系[J]. 体育与科学, 1992(2):16-17.

CHEN Y W, YU Q. Preliminary analysis of the relationship between changes in blood SOD,LPO,LDH and LA during exercise and exercise-induced fatigue[J]. Sports & Science, 1992(2):16-17. (in Chinese)

文章导航

/