综述

胆汁酸调控家禽生长、肝脏代谢和肠道健康的作用及其机制

  • 刘文静 ,
  • 侯飞雪 ,
  • 黎观红 ,
  • 周华 , *
展开
  • 江西农业大学动物科学技术学院, 动物营养与饲料江西省重点实验室, 南昌 330045
* 周 华,副教授,硕士生导师,E-mail:

刘文静(2001—),女,福建福州人,硕士研究生,研究方向为胆汁酸与家禽代谢健康。E-mail:

Office editor: 田艳明

收稿日期: 2025-11-27

  网络出版日期: 2026-07-14

基金资助

江西省自然科学基金青年项目(20242BAB20306)

江西省自然科学基金面上项目(20252BAC240656)

国家自然科学基金青年项目C类(32202707)

中国博士后科学基金面上项目(2023M731435)

Role and Mechanism of Bile Acids in Regulating Growth, Liver Metabolism and Intestinal Health of Poultry

  • LIU Wenjing ,
  • HOU Feixue ,
  • LI Guanhong ,
  • ZHOU Hua , *
Expand
  • Jiangxi Provincial Key Laboratory of Animal Nutrition and Feed, College of Animal Science and Technology, Jiangxi Agricultural University, Nanchang 330045, China
* associate professor, E-mail:

Received date: 2025-11-27

  Online published: 2026-07-14

摘要

胆汁酸是肠道微生物与宿主交流的重要信号分子,作为一种关键的生物活性物质,胆汁酸促进家禽对养分的消化吸收;改善脂质代谢,增强肝脏抗氧化和解毒能力;调节肠道菌群结构并有利于肠道健康。本文综述了胆汁酸的代谢循环及其对家禽生产性能、肝脏代谢和肠道健康的作用及可能机制,以期为胆汁酸在家禽生产中的科学应用提供参考。

本文引用格式

刘文静 , 侯飞雪 , 黎观红 , 周华 . 胆汁酸调控家禽生长、肝脏代谢和肠道健康的作用及其机制[J]. 动物营养学报, 2026 , 38(7) : 4805 -4815 . DOI: 10.12418/CJAN2026.385

Abstract

Bile acids are important signaling molecules for communication between intestinal microbiota and the host. As key bioactive substances, bile acids promote the digestion and absorption of nutrients in poultry; improve lipid metabolism and enhance the antioxidant and detoxification capabilities in liver; regulate the intestinal microbiota structure and be beneficial to intestinal health. This article reviews the metabolic cycle of bile acids and their effects and possible mechanisms on the performance, liver metabolism and intestinal health of poultry, with the aim of providing a reference for the scientific application of bile acids in poultry production.

胆汁酸由胆固醇在肝脏中经酶促反应产生,是具有疏水基团和亲水基团的两亲性分子,在促进脂质消化吸收,维持胆固醇稳态中发挥关键作用,并可预防因脂肪沉积、胆汁淤积和胆结石形成而诱发的肝胆疾病[1]。除作为乳化剂促进脂质和脂溶性营养物质消化吸收外,胆汁酸还具有抗菌抑炎特性,并通过激活法尼醇X受体(farnesoid X receptor,FXR)和Takeda G蛋白偶联受体5(Takeda G protein-coupled receptor 5,TGR5)等胆汁酸受体调控宿主代谢、免疫反应和信号传导[2]。胆汁酸不仅是重要的信号分子,还与肠道微生物紧密联系,其可通过肠-肝轴调控机体生理反应。研究证实,胆汁酸影响宿主肠道微生物组成与分布,抑制致病菌生长,从而改善肠道健康[3]。当前,胆汁酸已被用作禽类饲料添加剂,多项研究表明,胆汁酸对家禽生产性能的促进、脂质代谢的改善及肠道微生物的调控均具有明显作用[4-6]。本文主要对胆汁酸调节家禽生产性能、脂质代谢及肠道健康进行综述,并对胆汁酸影响家禽生长和健康可能的内在机制进行探讨,以期为胆汁酸在家禽生产中的科学应用提供参考。

1 胆汁酸来源与肠肝循环

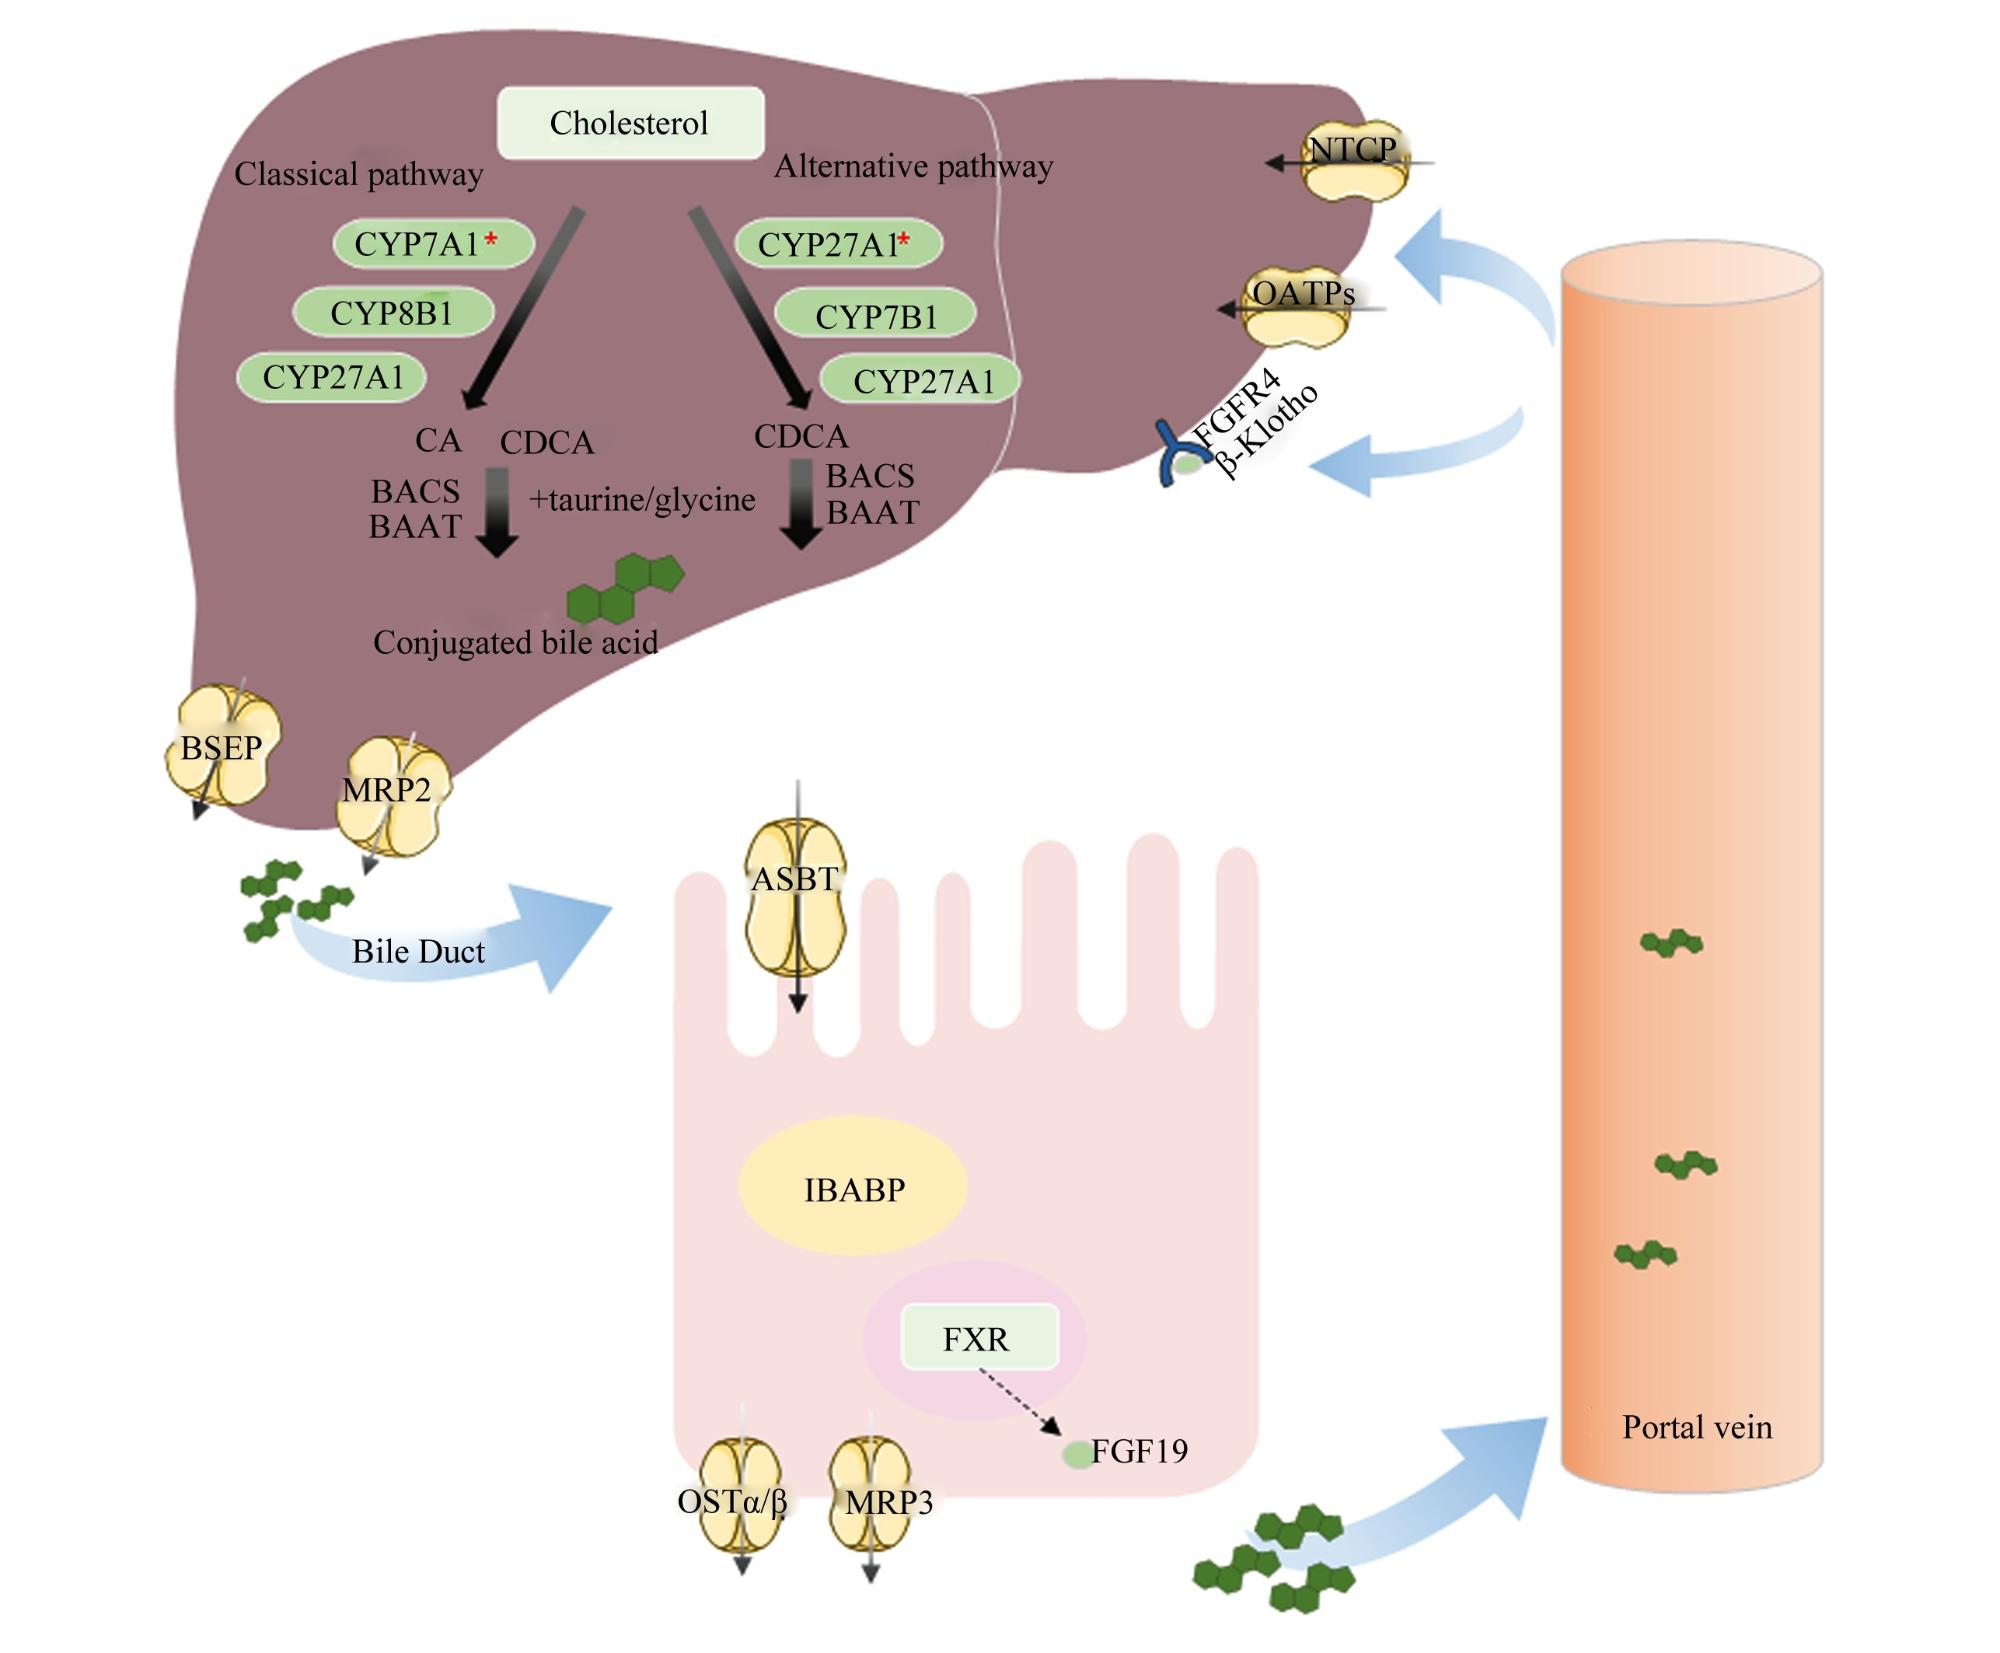
胆汁酸是胆固醇在肝脏内经多步酶促反应生成的一类重要代谢产物,其生物合成主要通过经典(中性)途径和替代(酸性)途径完成,该过程涉及多种肝细胞细胞器内酶的协同作用。在经典途径中,胆固醇7α-羟化酶(cholesterol 7α-hydroxylase,CYP7A1)作为该通路的限速酶,启动胆固醇的7α-羟基化反应,继而经氧化、差向异构化以及侧链氧化的生化修饰,逐步形成初级胆汁酸——胆酸(cholic acid,CA)和鹅去氧胆酸(chenodeoxycholic acid,CDCA)。由于经典途径产生的胆汁酸占总胆汁酸的75%,因此被认为是机体胆汁酸合成的主要来源[7]。CYP7A1作为经典途径的关键调控酶,其缺失会导致机体胆汁酸池缩小,并诱发胆固醇代谢障碍[8]。替代途径则由甾醇27α-羟化酶(sterol 27α-hydroxylase,CYP27A1)启动,胆固醇经羟基化和氧化修饰,最终生成CDCA。新合成的胆汁酸在肝细胞内会与甘氨酸或牛磺酸偶联,此过程显著提升胆汁酸的水溶性,从而促进其在肠肝循环中的高效运转。在家禽中,初级胆汁酸主要与牛磺酸偶联,其中牛磺鹅去氧胆酸(taurochenodeoxycholic acid,TCDCA)在家禽胆汁酸组成中占主导地位[9]
胆盐输出泵(bile salt export pump,BSEP)主要转运大部分的胆汁酸,而经硫酸化或葡萄糖醛酸化的胆汁酸排出则由多药耐药相关蛋白2(multidrug resistance-associated protein 2,MRP2)介导[10-11]。动物在摄食后,在胆囊收缩素(cholecystokinin,CCK)的刺激下,引起胆囊收缩,促使胆汁酸被释放进入肠道,参与肠内脂质乳化吸收。当胆汁酸随食糜到达回肠末端时,通过上皮细胞顶模上的顶端钠依赖性胆汁酸转运蛋白(apical sodium-dependent bile acid transporter,ASBT)被主动重吸收。在此过程中,肠道菌群分泌的胆盐水解酶(bile salt hydrolase,BSH)能水解结合型胆汁酸中的酰胺键,使其去结合转化为游离型胆汁酸[12]。游离型胆汁酸进一步经7α-脱羟化酶催化,生成次级胆汁酸脱氧胆酸(deoxycholic acid,DCA)和石胆酸(lithocholic acid,LCA)。进入肠细胞后,胆汁酸与回肠胆汁酸结合蛋白(ileum bile acid binding protein,IBABP)结合,以防止因胆汁酸蓄积引起的细胞毒性[13]。随后,胆汁酸被运输至细胞基底侧膜,通过有机溶质转运蛋白(organic solute transporter,OST)α/OSTβ的介导,进入肝门静脉[14]。转运至肝脏的胆汁酸由肝细胞基底膜的钠离子-牛磺胆酸共转运多肽(Na+-taurocholate cotransporting polypeptide,NTCP)和有机阴离子转运多肽家族(organic anion transporting polypeptides,OATPs)介导,被摄入肝细胞内。经再结合与修饰后,胆汁酸重新分泌进入胆囊,完成肠肝循环。机体胆汁酸代谢的动态平衡主要受FXR介导。在肝脏中,胆汁酸作为配体激活FXR,上调小异二聚体伴侣(small heterodimer partner,SHP)的表达,并通过SHP的负向调控抑制CYP7A1的转录,进而抑制肝脏中胆汁酸的合成。在肠道内,FXR的激活促使成纤维细胞生长因子19(fibroblast growth factor 19,FGF19)分泌并经循环运至肝脏,协同抑制CYP7A1的转录,从而维持胆汁酸的合成与代谢稳态[15-16](图1)。
图1 胆汁酸合成及肠肝循环

Cholesterol:胆固醇;Classical pathway:经典途径;CYP7A1:胆固醇7α-羟化酶 cholesterol 7α-hydroxylase;CYP8B1:甾醇12α-羟化酶 sterol 12α-hydroxylase;CYP27A1:甾醇27α-羟化酶 sterol 27α-hydroxylase;Alternative pathway:替代途径;CYP7B1:氧甾醇7α-羟化酶 oxysterol 7α-hydroxylase;CA:胆酸 cholic acid;CDCA:鹅去氧胆酸 chenodeoxycholic acid;BACS:胆汁酸辅酶A合成酶 bile acid-CoA synthase;BAAT:胆汁酸辅酶A:氨基酸N-酰基转移酶 bile acid-CoA:amino acid N-acyltransferase;taurine/glycine:牛磺酸/甘氨酸;Conjugated bile acid:结合型胆汁酸;NTCP:钠离子-牛磺胆酸共转运多肽 Na+-taurocholate cotransporting polypeptide;OATPs:有机阴离子转运多肽家族 organic anion transporting polypeptides;FGFR4:成纤维细胞生长因子受体4 fibroblast growth factor receptor 4;BSEP:胆盐输出泵 bile salt export pump;MRP2:多药耐药相关蛋白2 multidrug resistance-associated protein 2;Bile Duct:胆管;ASBT:顶端钠依赖性胆汁酸转运蛋白 apical sodium-dependent bile acid transporter;IBABP:回肠胆汁酸结合蛋白 ileum bile acid binding protein;FXR:法尼醇X受体 farnesoid X receptor;OSTα/β:有机溶质转运蛋白α/β organic solute transporter α/β;MRP3:多药耐药相关蛋白3 multidrug resistance-associated protein 3;FGF19:纤维细胞生长因子19 fibroblast growth factor 19;Portal vein:门静脉。
*表示限速酶。* indicated rate-limiting enzyme.

Fig.1 Bile acid synthesis and enterohepatic circulation[16]

2 胆汁酸调控家禽生长、肝脏代谢和肠道健康的作用及可能机制

2.1 胆汁酸对家禽生产性能、养分利用及肌肉生长的影响

胆汁酸作为一类重要的生物活性物质,在促进家禽对养分的消化吸收、提高生产性能方面均有显著作用。然而,在饲粮中添加不同剂量的胆汁酸对家禽生长和健康的作用存在差异,同时家禽种类、生长阶段及饲粮组成等也是其重要的影响因素。多项研究证实,胆汁酸能够有效提高家禽对粗脂肪、粗蛋白质和能量的表观代谢率,从而为家禽生长提供充足的养分和能量基础[6,17]。胆汁酸除促进对脂质的吸收外,Xing等[18]研究也发现,饲粮添加200 mg/kg胆汁酸可上调蛋鸡空肠氨基酸转运蛋白溶质载体家族7成员5(SLC7A5)的表达,提高氨基酸的利用率。此外,胆汁酸可提高肉禽的平均日增重(ADG)和蛋禽的产蛋率,并通过改善家禽对养分的利用率,有效提高饲料转化率,降低养殖成本[19-20]。Yin等[21]通过建立热应激肉鸡模型进一步证实,饲粮添加200 mg/kg胆汁酸不仅能够缓解热应激给肉鸡带来的负面影响,还能提高肉鸡ADG并改善料重比。袁琪等[6]在日本蛋鹌鹑的试验中也得到相似的结果,发现饲粮添加80 mg/kg胆汁酸可提高鹌鹑产蛋率,同时降低料蛋比。胆汁酸对家禽屠宰性能也有明显作用,其能提高肉鸡和肉鸭胸肌率和腿肌率,并降低腹脂率[17,22]。Chen等[23]研究也证实了该结果,并进一步发现饲粮添加250 mg/kg胆汁酸能显著提高肉鸡胸肌肌纤维直径和横截面积;同时,胆汁酸添加组肉鸡胸肌雷帕霉素靶蛋白(mTOR)、胰岛素样生长因子-2(insulin-like growth factor-2,IGF-2)mRNA表达水平显著提高,肝脏胰岛素样生长因子-1(insulin-like growth factor-1,IGF-1)含量有提高趋势。IGF-1在动物机体生长,特别是骨骼肌发育中起调控作用;mTOR参与机体蛋白质合成[24]。IGF-1与其受体胰岛素样生长因子-1受体(IGF-1R)结合,诱发受体自磷酸化并激活磷脂酰肌醇3-激酶(phosphatidylinositol 3-kinase,PI3K),活化的PI3K促使第二信使磷脂酰肌醇-3,4,5-三磷酸(phosphatidylinositol-3,4,5-trisphosphate,PIP3)大量生成,启动蛋白激酶B(protein kinase B,Akt),从而使Akt磷酸化激活mTOR,即经IGF-1/Akt/mTOR信号通路促进肌内蛋白质的合成和肌细胞肥大[25]。此外,Tamai等[26]通过肝硬化大鼠模型揭示了另一条胆汁酸调控骨骼肌的信号通路,发现LCA能够激活胆汁酸膜受体TGR5,进而上调大鼠骨骼肌IGF-1 mRNA表达水平,通过激活TGR5/IGF-1/Akt信号通路诱导骨骼肌细胞肥大,这为胆汁酸调控家禽肌肉生长提供了新的思路和参考依据。表1汇总了胆汁酸对家禽生产性能、养分利用及肌肉生长的影响[6,17-23,27-29]
表1 胆汁酸对家禽生产性能、养分利用及肌肉生长的影响

Table 1 Effects of bile acids on performance, nutrient utilization and muscle growth of poultry

动物
Animals
日/周龄
Days/weeks
of age
饲粮处理
Diet treatments
结果
Results
参考文献
References
儋州鸡
Danzhou chickens
1~35日龄 分别添加200、400和
800 mg/kg胆汁酸
饲粮添加400 mg/kg胆汁酸促进
脂质消化,进而改善儋州鸡平均
日增重和饲料转化率
[27]
爱拔益加肉鸡
Arbor Acres broilers
21~42日龄 添加200 mg/kg
胆汁酸
胆汁酸有效提高热应激肉鸡生长
性能和肉品质
[21]
爱拔益加肉鸡
Arbor Acres broilers
1~42日龄 添加300 mg/kg
胆汁酸
胆汁酸提高肉鸡生长性能和屠宰性能,
同时提高干物质、粗脂肪和粗蛋白质
表观代谢率
[17]
爱拔益加肉鸡
Arbor Acres broilers
1~42日龄 添加猪油和
80 mg/kg胆汁酸
胆汁酸改善肉鸡生长性能,
优化胸肌脂肪酸组成
[28]
科宝肉鸡
Cobb broilers
1~42日龄 分别添加30、60、90和
120 mg/kg胆汁酸
饲粮添加90和120 mg/kg胆汁酸
改善肉鸡生长效率,提高粗脂肪、
粗蛋白质、钙和磷表观代谢率
[19]
罗斯308肉鸡
Ross 308 broilers
1~42日龄 高脂饲粮添加
250 mg/kg胆汁酸
胆汁酸促进肌纤维肥大和胸肌
发育,提高整体生长性能
[23]
海兰褐蛋鸡
Hy-Line brown
laying hens
62~75周龄 添加120和200 mg/kg胆汁
酸(62~69周龄120 mg/kg,
70~75周龄200 mg/kg)
胆汁酸改善产蛋率,提高氨基酸
转运蛋白表达和氨基酸利用率
[18]
日本蛋鹌鹑
Japanese laying quails
16~23周龄 分别添加40、80和
120 mg/kg胆汁酸
胆汁酸促进蛋鹌鹑对粗蛋白质的
消化利用,并在添加80 mg/kg
胆汁酸时改善生产性能
[6]
日本蛋鹌鹑
Japanese laying quails
110~159日龄 组合添加80 mg/kg
胆汁酸和600 mg/kg
酯化植物甾醇
胆汁酸提高产蛋率,改善蛋品质 [20]
樱桃谷鸭
Cherry Valley ducks
7~35日龄 添加300 mg/kg胆汁
酸和300 mg/kg脂肪酶
联合添加组胸肌率提高、腹脂率降低,
同时胆汁酸提高肉鸭对养分的利用率
[22]
芷江鸭
Zhijiang ducks
20~50日龄 高脂饲粮添加
250 mg/kg胆汁酸
胆汁酸提高芷江鸭饲料利用率和
胸肌率,并促进胸肌肌纤维发育
[29]

2.2 胆汁酸对家禽肝脏代谢的影响

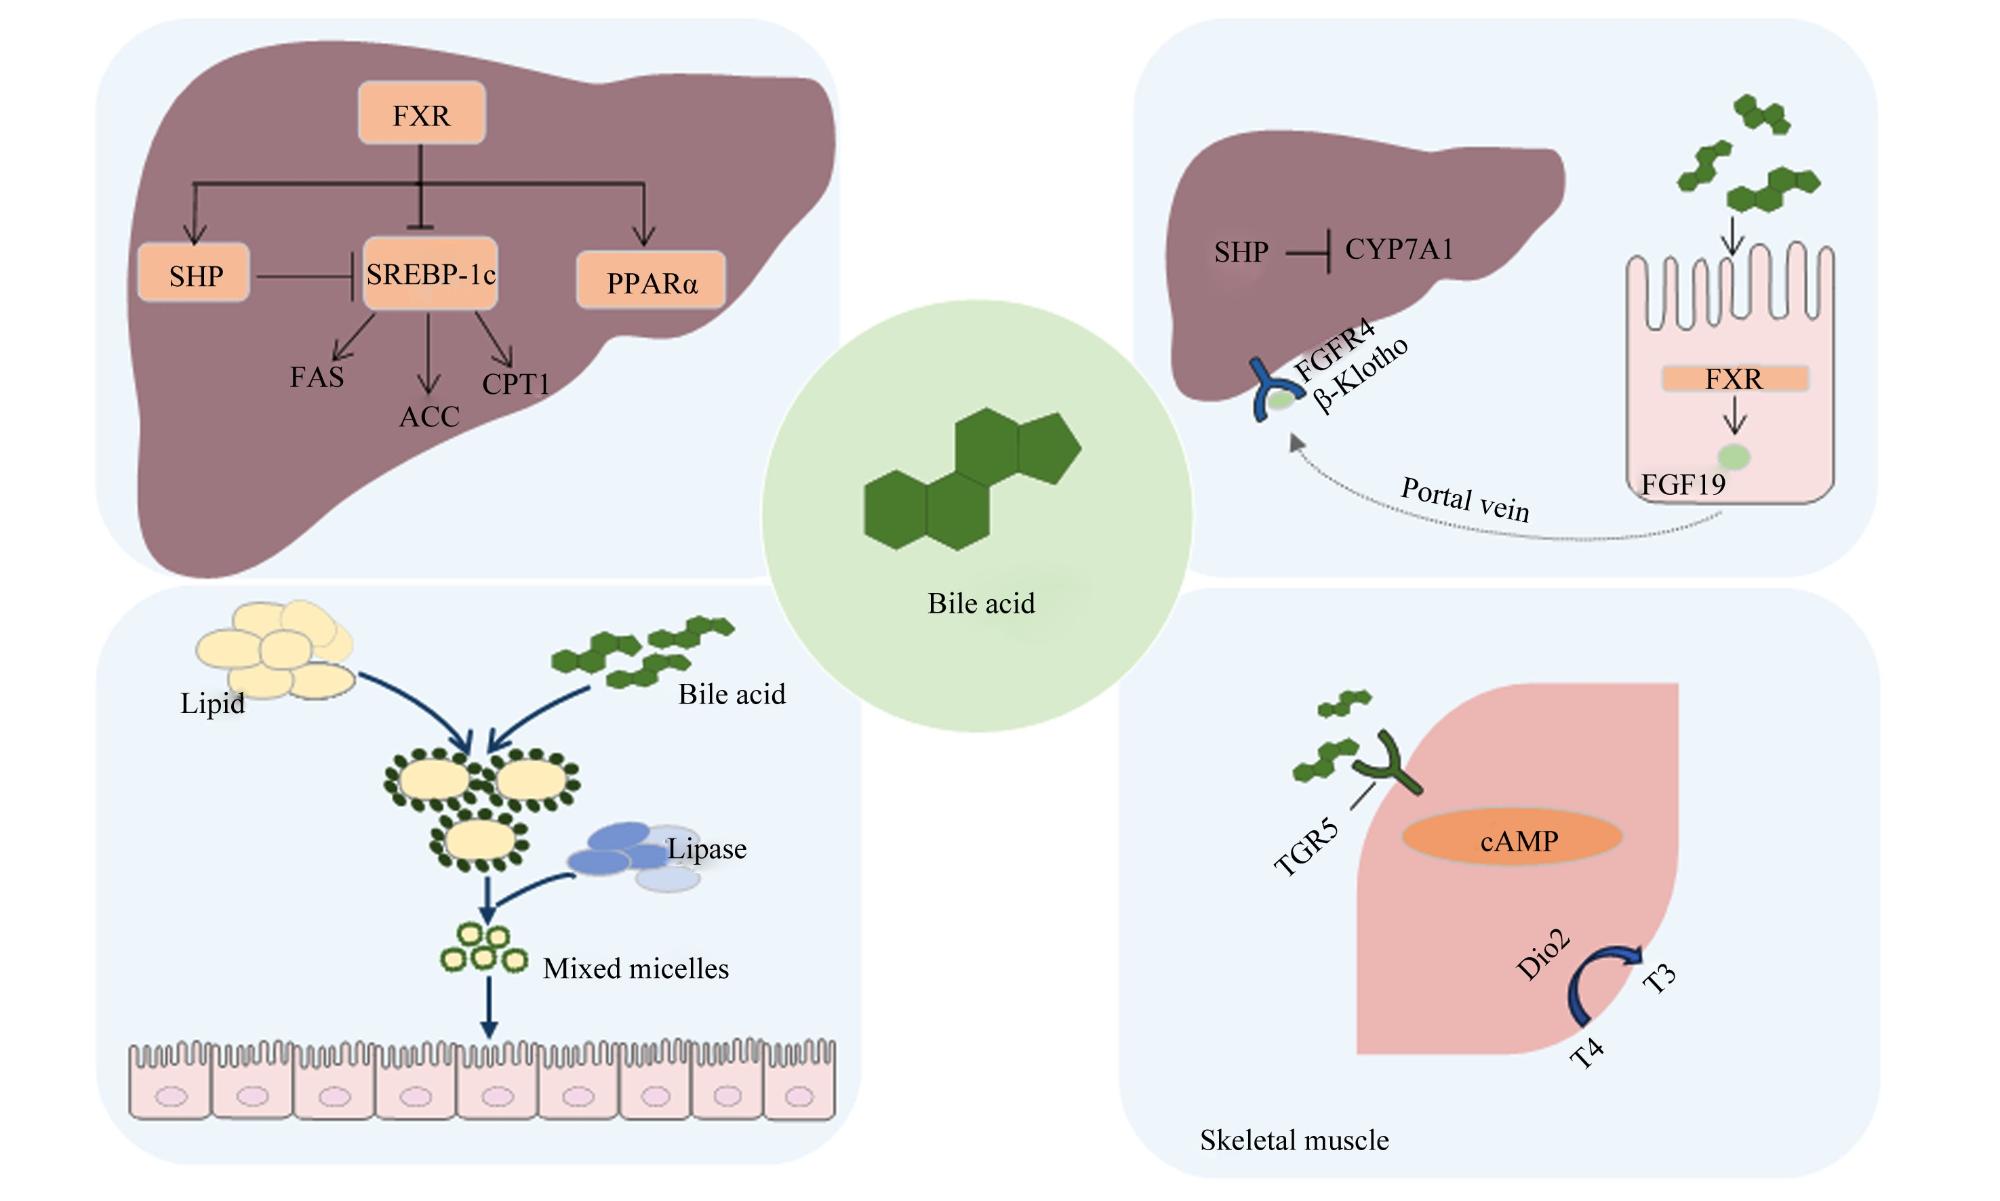
脂质代谢对机体生理功能的维持至关重要,不仅调节机体能量平衡,其紊乱还会引起腹部及皮下脂肪沉积,进而增加脂肪肝及其他代谢疾病患病的风险。凭借其两亲特性,胆汁酸能吸附到脂肪滴表面,有效降低油-水界面张力,从而高效乳化脂质;并增加脂类物质与脂肪酶间的接触面积,促使脂肪酶吸附到界面上并发生催化反应,最终将甘油三酯水解为甘油单酯和脂肪酸;随后,胆汁酸与水解产物、脂溶性维生素或胆固醇形成混合胶束,转运至肠上皮细胞完成消化[30]。除了脂质乳化,胆汁酸还能通过激活FXR和TGR5受体介导的信号通路参与机体脂质代谢调控(图2)。在机体脂质代谢中,甾醇调节元件结合转录因子-1c(sterol regulatory element binding transcription factor-1c,SREBP-1c)作为核心调控蛋白,可激活脂质从头合成与胆固醇摄取,并上调脂肪酸合酶(fatty acid synthase,FAS)、乙酰辅酶A羧化酶(acetyl-CoA carboxylase,ACC)等关键酶的表达,从而促进脂质合成[31]。然而,当胆汁酸激活FXR后,能够抑制肉鸡肝脏SREBP-1c的表达,进而降低肝脏甘油三酯含量,抑制肝脏脂肪的生成[21]。肉碱棕榈酰转移酶1(carnitine palmitoyltransferase 1,CPT1)和过氧化物酶体增殖物激活受体α(peroxisome proliferator-activated receptor α,PPARα)参与脂肪代谢,FXR的激活还可诱导家禽肝脏PPARαCPT1的表达,进而促进脂肪酸β氧化[5,32]。同时,胆汁酸还通过维持胆汁酸池的稳态,对肝脏脂代谢产生间接调控作用。SHP作为胆汁酸代谢的关键调节因子之一,其表达受FXR诱导,并能与FXR/FGF19信号通路协同作用,共同抑制CYP7A1的转录,从而下调肝脏胆汁酸的合成。此外,FGF19亦可通过上调SHP,继而抑制SREBP-1c的活性,从而对脂质生成产生抑制[33]。TGR5介导的信号通路在维持能量稳态中发挥重要作用。TGR5的激活提高环磷酸腺苷(cyclic adenosine monophosphate,cAMP)的水平,进而增强碘甲状腺原氨酸脱碘酶2(iodothyronine deiodinase 2,Dio2)的活性,该酶进一步将无活性的甲状腺激素转化为活性形式,从而提高机体产热、增加能量消耗,最终缓解脂质沉积[34]。在家禽上,高能饲粮条件下添加胆汁酸,可显著抑制肉鸡肝脏SREBP-1cACCFAS的表达,并同时上调CPT1和PPARα的表达[35],在抑制脂质合成的同时促进脂肪酸分解代谢,从而维持脂代谢稳态。Lai等[36]研究同样证实,饲粮添加80 mg/kg胆汁酸能够增强肉鸡十二指肠脂蛋白脂酶和脂肪酶活性,同时抑制激素敏感性脂肪酶活性,促进肠道对脂质的消化吸收,最终减少腹脂沉积。Xing等[18]测定蛋鸡血清脂代谢生化指标发现,胆汁酸添加组蛋鸡血清总胆固醇、甘油三酯和低密度脂蛋白胆固醇含量显著降低,这印证了胆汁酸对家禽脂肪沉积的缓解作用。
图2 胆汁酸在脂质代谢中的调控作用

FXR:法尼醇X受体 farnesoid X receptor;SHP:小异二聚体伴侣 small heterodimer partner;SREBP-1c:甾醇调节元件结合转录因子-1c sterol regulatory element binding transcription factor-1c;PPARα:过氧化物酶体增殖物激活受体α peroxisome proliferator-activated receptor α;FAS:脂肪酸合酶 fatty acid synthase;ACC:乙酰辅酶A羧化酶 acetyl-CoA carboxylase;CPT1:肉碱棕榈酰转移酶1 carnitine palmitoyltransferase 1;Lipid:脂质;Bile acid:胆汁酸;Lipase:脂肪酶;Mixed micelles:混合胶束;CYP7A1:胆固醇7α-羟化酶 cholesterol 7α-hydroxylase;FGFR4:成纤维细胞生长因子受体4 fibroblast growth factor receptor 4;FGF19:纤维细胞生长因子19 fibroblast growth factor 19;Portal vein:门静脉;TGR5:Takeda G蛋白偶联受体5 Takeda G protein-coupled receptor 5;cAMP:环磷酸腺苷 cyclic adenosine monophosphate;Dio2:碘甲状腺原氨酸脱碘酶2 iodothyronine deiodinase 2;T3:三碘甲状腺原氨酸 triiodothyronine;T4:四碘甲状腺原氨酸 tetraiodothyronine;Skeletal muscle:骨骼肌。

Fig.2 Regulatory role of bile acids in lipid metabolism[30,33-34]

胆汁酸在维持肝脏抗氧化能力方面具有重要调节作用。研究表明,饲粮添加400 mg/kg胆汁酸能显著提高肉鸡肝脏中过氧化氢酶(CAT)、超氧化物歧化酶(SOD)和谷胱甘肽过氧化物酶(GSH-Px)活性,并有效降低脂质过氧化产物丙二醛(MDA)含量,从而改善肉鸡肝脏抗氧化能力[27]。机体氧化还原平衡受活性氧(ROS)调控,当ROS过度积累时,会打破机体氧化与抗氧化系统间的平衡,诱发脂质过氧化,最终导致肝细胞损伤甚至死亡[37]。还原型烟酰胺腺嘌呤二核苷酸磷酸(NADPH)氧化酶系统是ROS的重要来源,可维护ROS的稳态;而核因子E2相关因子2(nuclear factor E2-related factor 2,Nrf2)则是关键的抗氧化调节因子。Nrf2通过促进NADPH氧化酶等靶基因的转录,参与细胞内ROS稳态的维持,并增强肝脏的抗氧化防御能力,从而缓解氧化应激对肝细胞造成的损害[38-39]。当机体胆汁酸代谢失衡,致使胆汁酸在肝脏内蓄积过多,会引发肝细胞损伤,并伴随炎症反应和氧化应激。Wang等[40]在胆汁淤积性肝病(cholestatic liver disease,CLI)小鼠模型中发现,FXR在抵抗氧化损伤中具有关键作用,其激活不仅可调节胆汁酸代谢,还能通过调控核因子-κB(nuclear factor-κB,NF-κB)/Nrf2通路以减轻肝脏组织损伤。目前,牛磺熊去氧胆酸(tauroursodeoxycholic acid,TUDCA)已被用于治疗肝胆疾病,Song等[41]通过小鼠模型证实TUDCA通过FXR/Nrf2信号通路对CLI的治疗作用明显。然而,该通路在家禽中是否具有相同功能尚待进一步研究,从而为探明家禽氧化应激机制提供参考。
此外,胆汁酸可增强家禽肝脏的解毒功能。T-2毒素和黄曲霉毒素B1(aflatoxin B1,AFB1)是动物饲料中常见的霉菌毒素,会对机体造成黏膜损伤,并损害肠道和神经系统。作为脂溶性分子,T-2毒素和AFB1易与细胞膜结合,破坏膜结构和功能;同时损伤星型胶质细胞,导致血脑屏障受到破坏,引发氧化应激和炎症反应[42]。家禽主要通过酯水解和羟基化代谢体内的T-2毒素和AFB1,该过程主要通过细胞色素P450(CYP)酶家族成员CYP3A4、CYP3A37、CYP2C18和CYP1A5等酶完成[43]。在肉鸡试验中发现,CA可活化FXR,促进CYP3A37和CYP1A5等代谢酶的表达,从而增强对T-2毒素的代谢能力,提高机体抗氧化能力并缓解氧化应激[44]。AFB1在家禽体内的代谢与T-2毒素相似,饲粮添加250 mg/kg胆汁酸可有效抑制AFB1诱导的肉鸡炎症反应,降低肝脏白细胞介素-1β(IL-1β)、干扰素γ(IFNγ)和诱导型一氧化氮合酶(iNOS)表达,提高CAT和SOD活性;同时显著降低血清和肝脏AFB1含量,上调肝脏解毒酶的表达[45]。除了缓解外源性毒素引起的炎症反应外,胆汁酸也能减轻由脂多糖(LPS)诱导的肝脏损伤。LPS是革兰氏阴性菌外膜的关键组分,能特异性识别并结合Toll样受体4(Toll-like receptor 4,TLR4),从而诱发炎症反应和氧化应激,甚至导致细胞凋亡[46]。据报道,胆汁酸可以减轻LPS诱导的肉鸡肝脏炎症反应,并上调胆汁酸合成限速酶CYP7A1 mRNA以及胆汁酸受体FXR和肝脏X受体α(LXRα)蛋白的表达,以促进LPS的排出[47]

2.3 胆汁酸对家禽肠道健康的影响

肠道作为家禽养分消化吸收的核心部位,也是机体免疫防御的重要屏障,直接关系着家禽的生产性能和机体健康。研究表明,胆汁酸可调节家禽肠道微生物群落、改善肠道形态结构以及维护肠道屏障,进而促进肠道健康。

2.3.1 调节家禽肠道微生物群落

肠道微生物群落是一个复杂的生态系统,其稳态对家禽生理代谢及免疫应答至关重要。研究表明,胆汁酸与肠道菌群间存在动态的双向调控关系,一方面菌群通过去共轭、脱羟基化及异构化等反应,将初级胆汁酸转化为次级胆汁酸,丰富胆汁酸的多样性[48];另一方面,胆汁酸也反向调控菌群结构及稳态,其两亲性分子结构使其直接与细菌膜磷脂双分子层结合,进而破坏膜结构的完整性并增加其通透性,从而发挥抗菌特性,抑制致病菌的增殖。产气荚膜梭菌是导致鸡肠炎的主要病原体,牛磺脱氧胆酸(taurodeoxycholic acid,TDCA)被证实能有效抑制肉鸡体内产气荚膜梭菌的毒力,其原因主要是DCA对产气荚膜梭菌具有抗菌活性,可破坏其细胞膜完整性[49]。另有研究发现,饲粮添加1.5 g/kg DCA可减少肉鸡肠道内产气荚膜梭菌的定植,维持胆汁酸池的稳态[50]。同时,胆汁酸也促进有益菌的增殖。乳酸杆菌和双歧杆菌被证实对机体脂质代谢和肠道健康有促进作用[51-52],研究发现饲粮添加90 mg/kg胆汁酸显著提高产蛋后期蛋鸡盲肠双歧杆菌和乳酸杆菌数量,进而益于肠道健康[53]。此外,胆汁酸也可降低沙门氏菌在肉鸡肠道内的增殖,并能提高乳酸杆菌的数量,降低弯曲杆菌的数量,缓解由沙门氏菌感染导致的肠道黏膜屏障损伤[3]

2.3.2 改善家禽肠道形态结构和屏障功能

肠道结构和功能的完整是养分消化和吸收的生理基础,小肠绒毛高度、隐窝深度及绒隐比(绒毛高度/隐窝深度)是评估肠道健康的形态学指标。研究表明,饮水中添加100 mL/t胆汁酸使肉鸡空肠绒毛高度显著提高,绒隐比也明显提升[54]。肠道形态结构的改善能促进养分的吸收,表明胆汁酸可维护家禽肠道形态结构的完整性,利于肠道健康。机械屏障是肠道屏障的关键组成部分,主要由肠上皮细胞、细胞间的连接及固有层共同构成,可防止大分子及病原体穿过肠壁。研究发现,当蛋鸡肠道屏障受损时,其杯状细胞数量减少,上皮细胞再生能力受损,而胆汁酸可维持其肠道完整性[55]。密封蛋白-1(Claudin-1)是重要的紧密连接蛋白,能有效调控肠上皮层对溶质的通透性,维护肠道内环境稳态;闭合蛋白(Occludin)也具有改变肠道上皮通透性的作用;作为细胞骨架的关键枢纽,闭锁小带蛋白-1(zona occludens-1,ZO-1)将上述2种跨膜蛋白紧密连接,调控细胞间的分子转运[56]。胆汁酸可通过增强上皮细胞间的紧密连接,维护家禽肠道机械屏障。研究发现,饲粮添加400 mg/kg胆汁酸可有效缓解热应激对肉鸡的肠道屏障损伤,提高ZO-1和Occludin mRNA表达水平[57]。同样,胆汁酸对产蛋后期蛋鸡也有相似的功效,其回肠黏膜ZO-1 mRNA表达水平显著上调[58]。肌球蛋白轻链激酶(myosin light-chain kinase,MLCK)是调控肠上皮紧密连接功能的关键因子,MLCK的激活使肌球蛋白轻链磷酸化,进而改变细胞骨架结构,影响肠道机械屏障[59]。在肠道屏障障碍的小鼠模型中,MLCK的激活被证实会加剧LPS诱导的肠上皮屏障受损;而添加CDCA能激活FXR并抑制MLCK信号通路,从而防止肠道屏障受损[60]。TUDCA可通过激活TGR5阻断MLCK信号通路的激活,从而改善上皮屏障损伤[61]。不过,胆汁酸能否通过MLCK信号通路改善屏障功能,目前尚未在家禽研究中证实,但可为胆汁酸增强家禽肠道屏障功能提供新的研究思路。
肠上皮细胞上覆盖着的黏液层能将肠腔内的微生物与上皮组织有效隔离,是抵御病原体的重要防线。黏液层主要由杯状细胞分泌的黏蛋白2(MUC2)组成凝胶网状结构,对保护肠道、免受病原微生物的感染至关重要[62]。MUC2的缺乏导致机体促炎因子增加,诱发肠道炎症[63]。TUDCA被证实可以促进小鼠结肠黏液的分泌,增加黏液层的厚度[64]。在家禽上的研究表明,胆汁酸可上调肉鸡回肠MUC2的表达,下调促炎因子IL-1β、白细胞介素-8(IL-8)的表达,进而缓解沙门氏菌引起的屏障损伤[3]。肿瘤坏死因子-α(TNF-α)和IL-1β是机体炎症和免疫应答的促炎介质,通过抑制该促炎因子的表达可减轻炎症对肠道造成的组织损伤。研究发现,饲粮添加400 mg/kg胆汁酸显著下调热应激肉鸡空肠白细胞介素-6(IL-6)、IL-1βTNF-α mRNA表达水平,有利于缓解炎症引发的肠道组织损伤[57]。针对由产气荚膜梭菌感染引发的高发性坏死性肠炎,DCA则可抑制回肠白细胞介素-17α(IL-17α)、白细胞介素-22(IL-22)和白细胞介素-23(IL-23)等促炎介质的表达[50]。NF-κB和TNF-α都是重要的免疫调节因子,TNF-α与受体肿瘤坏死因子受体1(TNFR1)结合能促使蛋白肿瘤坏死因子受体相关死亡域蛋白(tumor necrosis factor receptor-associated death domain protein,TRADD)和肿瘤坏死因子受体相关因子2(tumor necrosis factor receptor-associated factor 2,TRAF2)被招募至受体内形成复合物Ⅰ,而后复合物Ⅰ的组成蛋白发生泛素化修饰,进而募集线性泛素链组装复合物(linear ubiquitin chain assembly complex,LUBAC)。LUBAC介入使得激酶复合物组装,最终激活NF-κB信号通路,从而诱导促炎因子的表达[65]。在小鼠上的研究发现,LCA可以激活NF-κB信号通路,以调控炎症反应基因的表达[66]。胆汁酸可抑制肉鸡肠细胞促炎因子的生成[67],然而其是否通过NF-κB信号通路调控仍需进一步探究。

3 小结与展望

胆汁酸作为重要的信号分子,在家禽生长和健康中扮演着关键角色。饲粮添加胆汁酸不仅能提高家禽生产性能,还能促进脂质乳化吸收,缓解家禽肝脏和腹部的脂肪沉积,同时能增强肝脏抗氧化和解毒能力。此外,胆汁酸与肠道菌群存在互作,胆汁酸可调节家禽肠道微生物群落并改善肠道屏障功能。由此可见,将胆汁酸应用到家禽生产上具有较好的潜力,但受家禽种类差异、生理状况及饲粮组成等因素影响,胆汁酸的适宜添加剂量尚不明晰。同时,胆汁酸对家禽肝肠代谢的调控机制尚未系统弄清,胆汁酸受体信号通路的介导作用仍需深入阐明。未来研究应聚焦家禽胆汁酸代谢的调控网络,结合肠-肝轴、脑-肠轴等完整地阐释胆汁酸影响家禽生长和健康的内在机制,为其在动物生产中的应用提供更多依据。
[1]
LIN S, WANG S T, WANG P, et al. Bile acids and their receptors in regulation of gut health and diseases[J]. Progress in Lipid Research, 2023,89:101210.

[2]
JIA W, LI Y T, CHEUNG K C P, et al. Bile acid signaling in the regulation of whole body metabolic and immunological homeostasis[J]. Science China Life Sciences, 2024, 67(5):865-878.

DOI

[3]
HU D, YANG X R, QIN M, et al. Dietary bile acids supplementation protects against Salmonella Typhimurium infection via improving intestinal mucosal barrier and gut microbiota composition in broilers[J]. Journal of Animal Science and Biotechnology, 2024, 15(1):155.

DOI

[4]
MA H, BIAN S X, HAN P M, et al. Supplementation of exogenous bile acids improve antitrichomonal activity and enhance intestinal health in pigeon (Columba livia)[J]. Poultry Science, 2023, 102(7):102722.

DOI

[5]
HU D, HOU M M, SONG P, et al. Dietary bile acids supplementation improves the growth performance and alleviates fatty liver in broilers fed a high-fat diet via improving the gut microbiota[J]. Poultry Science, 2024, 103(2):103270.

DOI

[6]
袁琪, 肖圆圆, 袁剑华, 等. 饲粮添加胆汁酸对16-23周龄日本蛋鹌鹑生产性能、养分表观代谢率和血清生化指标的影响[J]. 动物营养学报, 2023, 35(3):1658-1665.

DOI

YUAN Q, XIAO Y Y, YUAN J H, et al. Effects of dietary bile acid on performance,nutrient apparent metabolic rates and serum biochemical indices of laying Japanese quails from 16 to 23 weeks of age[J]. Chinese Journal of Animal Nutrition, 2023, 35(3):1658-1665. (in Chinese)

DOI

[7]
RUSSELL D W. The enzymes,regulation,and genetics of bile acid synthesis[J]. Annual Review of Biochemistry, 2003,72:137-174.

[8]
FERRELL J M, BOEHME S, LI F, et al. Cholesterol 7α-hydroxylase-deficient mice are protected from high-fat/high-cholesterol diet-induced metabolic disorders[J]. Journal of Lipid Research, 2016, 57(7):1144-1154.

DOI PMID

[9]
REITER S, DUNKEL A, DAWID C, et al. Targeted LC-MS/MS profiling of bile acids in various animal tissues[J]. Journal of Agricultural and Food Chemistry, 2021, 69(36):10572-10580.

DOI PMID

[10]
TRAUNER M, BOYER J L. Bile salt transporters:molecular characterization,function,and regulation[J]. Physiological Reviews, 2003, 83(2):633-671.

DOI

[11]
MAZZA T, ROUMELIOTIS T I, GARITTA E, et al. Structural basis for the modulation of MRP2 activity by phosphorylation and drugs[J]. Nature Communications, 2024, 15(1):1983.

DOI PMID

[12]
GENG W J, LONG S L, CHANG Y J, et al. Evaluation of bile salt hydrolase inhibitor efficacy for modulating host bile profile and physiology using a chicken model system[J]. Scientific Reports, 2020, 10(1):4941.

DOI PMID

[13]
FANG C M, FILIPP F V, SMITH J W. Unusual binding of ursodeoxycholic acid to ileal bile acid binding protein:role in activation of FXRα[J]. Journal of Lipid Research, 2012, 53(4):664-673.

DOI

[14]
SOROKA C J, MENNONE A, HAGEY L R, et al. Mouse organic solute transporter alpha deficiency enhances renal excretion of bile acids and attenuates cholestasis[J]. Hepatology, 2010, 51(1):181-190.

DOI PMID

[15]
FLEISHMAN J S, KUMAR S. Bile acid metabolism and signaling in health and disease:molecular mechanisms and therapeutic targets[J]. Signal Transduction and Targeted Therapy, 2024, 9(1):97.

DOI

[16]
COLLINS S L, STINE J G, BISANZ J E, et al. Bile acids and the gut microbiota:metabolic interactions and impacts on disease[J]. Nature Reviews Microbiology, 2023, 21(4):236-247.

DOI

[17]
高露, 王建民, 陈德, 等. 胆汁酸对白羽肉鸡生长性能、屠宰性能和脂类代谢的影响[J]. 动物营养学报, 2023, 35(1):221-229.

DOI

GAO L, WANG J M, CHEN D, et al. Effects of bile acid on growth performance,slaughter performance and lipid metabolism of white feather broilers[J]. Chinese Journal of Animal Nutrition, 2023, 35(1):221-229. (in Chinese)

DOI

[18]
XING R H, FAN K F, FAN Z Z, et al. Porcine bile acids improve performance by altering hepatic lipid metabolism and amino acid metabolism with different protein level diets in late laying hens[J]. Poultry Science, 2025, 104(2):104777.

DOI

[19]
马欣欣, 秦国栋, 李雪静, 等. 不同水平胆汁酸对肉鸡生长性能、屠宰性能、肌肉风味物质含量和养分利用率的影响[J]. 中国畜牧杂志, 2025, 61(5):281-286.

MA X X, QIN G D, LI X J, et al. Effects of different levels of bile acids on broiler growth performance,slaughter performance,muscle flavor compound content,and nutrient utilization efficiency[J]. Chinese Journal of Animal Science, 2025, 61(5):281-286. (in Chinese)

[20]
肖圆圆, 袁琪, 袁剑华, 等. 饲粮添加胆汁酸和酯化植物甾醇对蛋用鹌鹑产蛋性能、蛋品质及血清指标的影响[J]. 中国家禽, 2022, 44(3):50-55.

XIAO Y Y, YUAN Q, YUAN J H, et al. Effects of dietary bile acids and esterified phytosterols on egg production,egg quality and serum indexes of laying quail[J]. China Poultry, 2022, 44(3):50-55. (in Chinese)

[21]
YIN C, TANG S L, LIU L, et al. Effects of bile acids on growth performance and lipid metabolism during chronic heat stress in broiler chickens[J]. Animals, 2021, 11(3):630.

DOI

[22]
李元凤, 范明东, 敖翔, 等. 胆汁酸和脂肪酶对樱桃谷肉鸭生长性能、屠宰性能及养分回肠表观消化率的影响[J]. 中国畜牧杂志, 2021, 57(6):210-214.

LI Y F, FAN M D, AO X, et al. Effects of dietary bile acid and lipase on growth performance and slaughter performance and nutrients apparent ileal digestibility of Cherry Valley duck[J]. Chinese Journal of Animal Science, 2021, 57(6):210-214. (in Chinese)

[23]
CHEN L, SHI Y H, LI J B, et al. Dietary bile acids improve breast muscle growth in chickens through FXR/IGF2 pathway[J]. Poultry Science, 2024, 103(2):103346.

DOI

[24]
WANG P, KANG S Y, KIM S J, et al. Monotropein improves dexamethasone-induced muscle atrophy via the AKT/mTOR/FOXO3a signaling pathways[J]. Nutrients, 2022, 14(9):1859.

DOI

[25]
YOSHIDA T, DELAFONTAINE P. Mechanisms of IGF-1-mediated regulation of skeletal muscle hypertrophy and atrophy[J]. Cells, 2020, 9(9):1970.

DOI

[26]
TAMAI Y, EGUCHI A, SHIGEFUKU R, et al. Association of lithocholic acid with skeletal muscle hypertrophy through TGR5-IGF-1 and skeletal muscle mass in cultured mouse myotubes,chronic liver disease rats and humans[J]. eLife, 2022,11:e80638.

[27]
YU X L, CAO T, IPEMBA E, et al. Effects of dietary supplementation with bile acids on growth performance,antioxidant capacity,lipid metabolism,and cecal microbiota of Danzhou chickens[J]. Poultry Science, 2025, 104(8):105276.

DOI

[28]
GENG S X, ZHANG Y X, CAO A Z, et al. Effects of fat type and exogenous bile acids on growth performance,nutrient digestibility,lipid metabolism and breast muscle fatty acid composition in broiler chickens[J]. Animals, 2022, 12(10):1258.

DOI

[29]
CHEN L, ZHANG Z Z, DENG W, et al. Bile acids enhance fat metabolism and skeletal muscle development in Zhijiang duck by modulating gut microbiota[J]. Poultry Science, 2025, 104(8):105319.

DOI

[30]
MACIERZANKA A, TORCELLO-GÓMEZ A, JUNGNICKEL C, et al. Bile salts in digestion and transport of lipids[J]. Advances in Colloid and Interface Science, 2019,274:102045.

[31]
GENG F, GUO D L. SREBF1/SREBP-1 concurrently regulates lipid synthesis and lipophagy to maintain lipid homeostasis and tumor growth[J]. Autophagy, 2024, 20(5):1183-1185.

DOI

[32]
LI Y, WANG L L, YI Q, et al. Regulation of bile acids and their receptor FXR in metabolic diseases[J]. Frontiers in Nutrition, 2024,11:1447878.

[33]
BHATNAGAR S, DAMRON H A, HILLGARTNER F B. Fibroblast growth factor-19,a novel factor that inhibits hepatic fatty acid synthesis[J]. The Journal of Biological Chemistry, 2009, 284(15):10023-10033.

DOI

[34]
WATANABE M, HOUTEN S M, MATAKI C, et al. Bile acids induce energy expenditure by promoting intracellular thyroid hormone activation[J]. Nature, 2006, 439(7075):484-489.

DOI

[35]
GE X K, WANG A A, YING Z X, et al. Effects of diets with different energy and bile acids levels on growth performance and lipid metabolism in broilers[J]. Poultry Science, 2019, 98(2):887-895.

DOI PMID

[36]
LAI W Q, HUANG W G, DONG B, et al. Effects of dietary supplemental bile acids on performance,carcass characteristics,serum lipid metabolites and intestinal enzyme activities of broiler chickens[J]. Poultry Science, 2018, 97(1):196-202.

DOI

[37]
ENDALE H T, TESFAYE W, MENGSTIE T A. ROS induced lipid peroxidation and their role in ferroptosis[J]. Frontiers in Cell and Developmental Biology, 2023,11:1226044.

[38]
KOVAC S, ANGELOVA P R, HOLMSTRÖM K M, et al. Nrf2 regulates ROS production by mitochondria and NADPH oxidase[J]. Biochimica et Biophysica Acta, 2015, 1850(4):794-801.

DOI PMID

[39]
DRÖGE W. Free radicals in the physiological control of cell function[J]. Physiological Reviews, 2002, 82(1):47-95.

DOI PMID

[40]
WANG M Q, ZHANG K H, LIU F L, et al. Wedelolactone alleviates cholestatic liver injury by regulating FXR-bile acid-NF-κB/NRF2 axis to reduce bile acid accumulation and its subsequent inflammation and oxidative stress[J]. Phytomedicine, 2024,122:155124.

[41]
SONG G C, WENG F Y, ZOU B, et al. Potential therapeutic action of tauroursodeoxycholic acid against cholestatic liver injury via hepatic Fxr/Nrf2 and CHOP-DR5-caspase-8 pathway[J]. Clinical Science, 2023, 137(7):561-577.

DOI

[42]
SONG C, WANG Z X, CAO J, et al. Neurotoxic mechanisms of mycotoxins:focus on aflatoxin B1 and T-2 toxin[J]. Environmental Pollution, 2024,356:124359.

[43]
YANG S P, DE BOEVRE M, ZHANG H Y, et al. Metabolism of T-2 toxin in farm animals and human in vitro and in chickens in vivo using ultra high-performance liquid chromatography-quadrupole/time-of-flight hybrid mass spectrometry along with online hydrogen/deuterium exchange technique[J]. Journal of Agricultural and Food Chemistry, 2017, 65(33):7217-7227.

DOI

[44]
DAI D P, PAN Y H, ZENG C P, et al. Activated FXR promotes xenobiotic metabolism of T-2 toxin and attenuates oxidative stress in broiler chicken liver[J]. Chemico-Biological Interactions, 2020,316:108912.

[45]
CHEN L, WEN T, CAO A, et al. Bile acids promote hepatic biotransformation and excretion of aflatoxin B1 in broiler chickens[J]. Toxins, 2023, 15(12):694.

DOI

[46]
LI H B, HUYNH T N, DUONG M T, et al. ACAT1/SOAT1 blockade suppresses LPS-mediated neuroinflammation by modulating the fate of Toll-like receptor 4 in microglia[J]. International Journal of Molecular Sciences, 2023, 24(6):5616.

DOI

[47]
CHEN L, MA S, CAO A Z, et al. Bile acids promote lipopolysaccharide clearance via the hepato-biliary pathway in broiler chickens[J]. Ecotoxicology and Environmental Safety, 2024,282:116767.

[48]
郭世娇, 宫旭, 骆超超, 等. 胆汁酸与肠道微生物协同调控机制及其对机体健康的影响[J]. 动物营养学报, 2025, 37(7):4265-4273.

DOI

GUO S J, GONG X, LUO C C, et al. Co-regulation mechanism of bile acids and gut microbiota and its significance for body health[J]. Chinese Journal of Animal Nutrition, 2025, 37(7):4265-4273. (in Chinese)

DOI

[49]
ALENEZI T, ALRUBAYE B, FU Y, et al. Recombinant bile salt hydrolase enhances the inhibition efficiency of taurodeoxycholic acid against Clostridium perfringens virulence[J]. Pathogens, 2024, 13(6):464.

DOI

[50]
BANSAL M, FU Y, ALRUBAYE B, et al. A secondary bile acid from microbiota metabolism attenuates ileitis and bile acid reduction in subclinical necrotic enteritis in chickens[J]. Journal of Animal Science and Biotechnology, 2020, 11(1):37.

DOI

[51]
SHOJADOOST B, ALIZADEH M, BOODHOO N, et al. Effects of treatment with Lactobacilli on necrotic enteritis in broiler chickens[J]. Probiotics and Antimicrobial Proteins, 2022, 14(6):1110-1129.

DOI

[52]
LIANG X, ZHENG X M, WANG P, et al. Bifidobacterium animalis subsp. lactis F1-7 alleviates lipid accumulation in atherosclerotic mice via modulating bile acid metabolites to downregulate intestinal FXR[J]. Journal of Agricultural and Food Chemistry, 2024, 72(5):2585-2597.

DOI

[53]
YANG B W, HUANG S M, ZHAO G X, et al. Dietary supplementation of porcine bile acids improves laying performance,serum lipid metabolism and cecal microbiota in late-phase laying hens[J]. Animal Nutrition, 2022,11:283-292.

[54]
LIU W J, LI X N, ZHANG Y L, et al. Effects of bile acids on production performance,serum biochemistry,lipid metabolism,and intestinal morphology in broilers[J]. Frontiers in Veterinary Science, 2025,12:1584544.

[55]
ZHAO L H, JIANG Q Y, LEI J Q, et al. Bile acid disorders and intestinal barrier dysfunction are involved in the development of fatty liver in laying hens[J]. Poultry Science, 2024, 103(12):104422.

DOI

[56]
AWAD W A, HESS C, HESS M. Enteric pathogens and their toxin-induced disruption of the intestinal barrier through alteration of tight junctions in chickens[J]. Toxins, 2017, 9(2):60.

DOI

[57]
LI N, LIU D F, WANG C, et al. Comparison study of protective effects of porcine bile acids and sheep bile acids against heat stress in chickens[J]. Journal of the Science of Food and Agriculture, 2023, 103(12):5687-5696.

DOI

[58]
XING R H, DU P F, WANG Z Y, et al. Porcine bile acids improve antioxidant status and immune function by increasing Hungatella abundance with different protein level diets in late-laying hens[J]. Animals, 2025, 15(4):500.

DOI

[59]
CUNNINGHAM K E, TURNER J R. Myosin light chain kinase:pulling the strings of epithelial tight junction function[J]. Annals of the New York Academy of Sciences, 2012, 1258(1):34-42.

DOI

[60]
SONG M, YE J Y, ZHANG F L, et al. Chenodeoxycholic acid (CDCA) protects against the lipopolysaccharide-induced impairment of the intestinal epithelial barrier function via the FXR-MLCK pathway[J]. Journal of Agricultural and Food Chemistry, 2019, 67(32):8868-8874.

DOI PMID

[61]
SONG M, ZHANG F L, FU Y M, et al. Tauroursodeoxycholic acid (TUDCA) improves intestinal barrier function associated with TGR5-MLCK pathway and the alteration of serum metabolites and gut bacteria in weaned piglets[J]. Journal of Animal Science and Biotechnology, 2022, 13(1):73.

DOI PMID

[62]
JOHANSSON M E V, PHILLIPSON M, PETERSSON J, et al. The inner of the two Muc2 mucin-dependent mucus layers in colon is devoid of bacteria[J]. Proceedings of the National Academy of Sciences, 2008, 105(39):15064-15069.

DOI

[63]
WU M N, WU Y Q, LI J M, et al. The dynamic changes of gut microbiota in Muc2 deficient mice[J]. International Journal of Molecular Sciences, 2018, 19(9):2809.

DOI

[64]
NAAMA M, TELPAZ S, AWAD A, et al. Autophagy controls mucus secretion from intestinal goblet cells by alleviating ER stress[J]. Cell Host & Microbe, 2023, 31(3):433-446.e4.

[65]
WEBSTER J D, VUCIC D. The balance of TNF mediated pathways regulates inflammatory cell death signaling in healthy and diseased tissues[J]. Frontiers in Cell and Developmental Biology, 2020,8:365.

[66]
LIU Y Y, GAO J, CHEN L, et al. Lithocholic acid ameliorates ulcerative colitis via the PXR/TLR4/NF-κB/NLRP3 signaling pathway and gut microbiota modulation[J]. Cellular and Molecular Life Sciences, 2025, 82(1):336.

DOI PMID

[67]
FAN G Q, CHEN W J, HE J X, et al. Bile acids alleviate intestinal inflammation by modulating gut microbiota composition in LPS-challenged broilers[J]. Research in Veterinary Science, 2025,184:105526.

文章导航

/